Niniejszy protokół przedstawia konfigurację i zasady obsługi opatentowanego bioreaktora do badań nad mechanoimmunomodulacją. Wykorzystując specjalistyczny bioreaktor odwzorowujący siły fizjologiczne, wykazujemy, że makrofagi wykazują wyraźną odpowiedź prozapalną na stymulację mechaniczną.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Mechaniczna aktywacja makrofagów indukowana perystaltyką
W tym artykule
Podsumowanie
Streszczenie
Stan zapalny jest złożonym procesem, który napędza zarówno choroby ostre, jak i przewlekłe. Jest on modulowany przez kaskadowe sygnały biochemiczne i biofizyczne, które prowadzą do aktywacji komórek odpornościowych. Makrofagi są głównym typem komórek odpornościowych zaangażowanych w wiele stanów zapalnych, w tym w nowotwory, włóknienie i choroby autoimmunologiczne. Tradycyjne metody badania aktywacji makrofagów opierają się na stymulacji biochemicznej za pomocą określonych sygnałów cytokin lub chemokin, co aktywuje makrofagi w kierunku stanu prozapalnego lub przeciwzapalnego. Pojawiające się dowody sugerują, że obok sygnałów biochemicznych w tkankach, rolę w aktywacji makrofagów odgrywają również sygnały biofizyczne. Jednym z tak powszechnych sygnałów mechanicznych jest perystaltyka, składająca się z odkształceń wieloosiowych i naprężeń ścinających, występująca w przewodzie pokarmowym, macicy, rozwijających się drogach oddechowych i moczowodach. W niniejszej pracy przetestowaliśmy hipotezę, że perystaltyka może aktywować makrofagi. W niniejszym protokole opisano wykorzystanie bioreaktora perystaltycznego do badania mechanicznej aktywacji makrofagów. Membrany z polidimetylosiloksanu pokryto fibronektyną w celu zwiększenia adhezji makrofagów. Unieruchomione makrofagi pochodzące z szpiku kostnego myszy (iBMDM) wysiano na membrany pokryte fibronektyną i utrzymywano jako kontrole statyczne lub eksponowano na perystaltykę przez 4 h. Perystaltyka aktywowała makrofagi, wywołując istotne różnice w ekspresji genów Il6 (50,9-krotny wzrost w stosunku do kontroli statycznych; p < 0,0001, t-test) oraz Nos2 (19,8-krotny wzrost w stosunku do kontroli statycznych; p = 0,0046). Co ciekawe, nie zaobserwowano istotnych zmian w ekspresji Chil3 (1,22-krotny wzrost w stosunku do kontroli statycznych; p = 0,9726) ani Mrc1 (1,16-krotny wzrost w stosunku do kontroli statycznych; p = 0,9810) w porównaniu z kontrolami statycznymi, co wskazuje, że czynniki mechaniczne stymulowały głównie aktywację prozapalną. Obecne wyniki wspierają koncepcję mechano-immunomodulacji makrofagów, szczególnie w odpowiedzi na mechanikę perystaltyczną, która dominuje w wielu tkankach opartych na mięśniach gładkich.
Wprowadzenie
Makrofagi to komórki odporności wrodzonej, które odgrywają kluczową rolę w obronie organizmu, przebudowie tkanek oraz regulacji stanu zapalnego poprzez fagocytozę i sekrecję cytokin1,2,3,4. W zależności od bodźców w mikrośrodowisku in vivo, niezróżnicowane makrofagi (M0) mogą plastycznie polaryzować się w kierunku fenotypów prozapalnych (M1) lub przeciwzapalnych/proregeneracyjnych (M2)5,6. Do izolowania tych różnych bodźców w celu lepszego zrozumienia złożonych mechanizmów sterujących polaryzacją makrofagów zazwyczaj wykorzystuje się modele in vitro. Makrofagi M1 aktywowane klasycznie są zazwyczaj indukowane in vitro za pomocą bodźców biochemicznych, takich jak lipopolisacharyd (LPS) i interferon gamma (IFN-γ), co prowadzi do zwiększonej ekspresji mediatorów zapalnych, w tym indukowalnej syntazy tlenku azotu (iNOS), interleukiny-6 (IL6) oraz czynnika martwicy nowotworu alfa (TNF-α)7,8. Makrofagi M2 aktywowane alternatywnie są powszechnie indukowane poprzez ekspozycję na interleukinę-4 (IL-4) i interleukinę-13 (IL-13), co sprzyja przebudowie tkanek i odpowiedziom gojenia ran8,9. Makrofagi M2 dzielą się dalej na fenotypy M2a, M2b i M2c, w zależności od odrębnych ścieżek aktywacji i profili ekspresji markerów powierzchniowych10,11. Choć biochemiczna regulacja polaryzacji makrofagów została szeroko scharakteryzowana w systemach in vivo i in vitro, makrofagi bytują w wysoce dynamicznych mikrośrodowiskach, które zawierają również istotne bodźce biofizyczne12. Oprócz rozpuszczalnych cytokin i chemokin, makrofagi są narażone na oddziaływania z macierzą zewnątrzkomórkową i innymi komórkami, sztywność podłoża, naprężenia ścinające płynu, ciśnienie hydrostatyczne oraz cykliczną deformację tkanek12,13,14. Jako komórki mechanoczułe, makrofagi mogą zmieniać swoje fenotypy zapalne w odpowiedzi na te sygnały fizyczne, co podkreśla znaczenie mechanobiologii w regulacji odporności.
Coraz obszerniejsza literatura wykazuje, że izolowane bodźce mechaniczne in vitro mogą znacząco wpływać na stany aktywacji makrofagów (Rycina 1). Ekspozycja na sztywniejsze podłoża zwiększała polaryzację M1 oraz produkcję cytokin zapalnych w porównaniu z podłożami miękkimi, które indukowały fenotyp proregeneracyjny15,16,17,18,19,20. Podobnie naprężenie ścinające płynu moduluje fenotyp makrofagów w sposób zależny od jego wartości, przy czym niskie poziomy przepływu płynu śródmiąższowego często promują aktywację proregeneracyjną21,22, podczas gdy wyższe naprężenia ścinające, zbliżone do wartości obserwowanych w tętnicach, mogą indukować odpowiedzi prozapalne23,24,25,26,27,28. Modele cyklicznego rozciągania in vitro, zaprojektowane w celu naśladowania mechaniki tkanek mięśniowo-szkieletowych, mięśnia sercowego, płuc i jelit, wykazały również zwiększoną ekspresję mediatorów zapalnych, choć wyniki różnią się w zależności od wielkości, czasu trwania, częstotliwości i wymiarowości przyłożonej siły29,30,31,32. Ponadto mechanoczułość makrofagów różni się w zależności od gatunku i źródła komórek, co podkreśla znaczenie doboru odpowiednich modeli eksperymentalnych w badaniach nad mechanobiologią13,14.
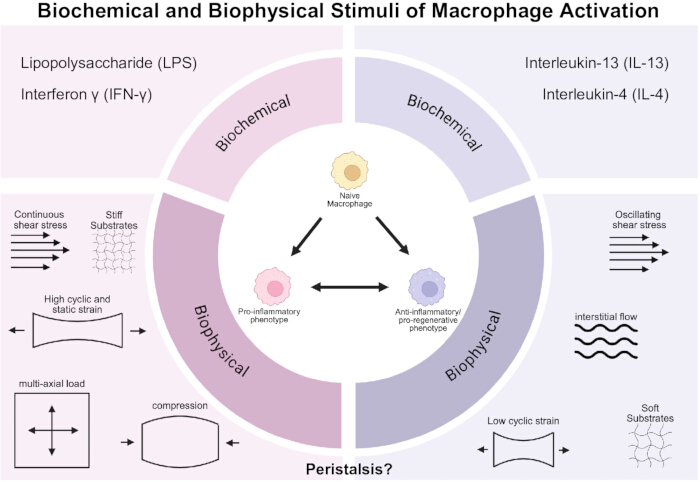
Rysunek 1: Schemat przedstawiający in vitro bodźce biochemiczne i biofizyczne prowadzące do aktywacji makrofagów do stanów prozapalnych lub proregeneracyjnych. Makrofagi mogą zostać pobudzone do stanu prozapalnego in vitro poprzez dodanie bodźców chemicznych, takich jak lipopolisacharyd (LPS), interferon γ (IFN-γ), lub poprzez ekspozycję na bodźce mechaniczne, w tym naprężenia ścinające, zwiększoną sztywność, wysoki cykliczny i statyczny odkształcenie indukowany jednowymiarowym rozciąganiem, kompresję oraz odkształcenie indukowane kompresją wieloosiową. Makrofagi mogą zostać pobudzone do stanu proregeneracyjnego poprzez in vitro dodanie bodźców chemicznych, takich jak interleukina-13 (IL-13) i IL-4. Mogą one również stać się proregeneracyjne pod wpływem bodźców mechanicznych w formie oscylacyjnych naprężeń ścinających, przepływu śródmiąższowego, miękkich podłoży lub niskich poziomów cyklicznego odkształcenia jednowymiarowego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Oprócz niezależnego badania izolowanych bodźców mechanicznych, ważne jest rozwinięcie tych prac w celu rozpoczęcia studiowania wpływu złożonych sił fizycznych, biorąc pod uwagę, że makrofagi in vivo są powszechnie narażone na kombinacje jednoczesnych sił. Perystaltyka stanowi jedno z takich złożonych środowisk mechanicznych, składające się z jednoczesnego wieloosiowego odkształcenia cyklicznego i naprężenia ścinającego płynu generowanego przez skurcze mięśni gładkich33. Mechanizmy te występują w wielu układach narządowych, w tym w przewodzie pokarmowym, rozwijających się drogach oddechowych, naczyniach krwionośnych, macicy i moczowodach34,35,36. Co istotne, funkcja perystaltyczna jest często zaburzona w chorobach zapalnych, w tym w zwłóknieniach, nieswoistych zapaleniach jelit, nowotworach oraz zaburzeniach przebudowy dróg oddechowych, z których wszystkie wiążą się ze znacznym zapaleniem pośredniczonym przez makrofagi33,37,38,39. Pomimo uznanej roli makrofagów w tych chorobach, wciąż istnieje istotna luka w wiedzy na temat tego, jak mechaniczne siły perystaltyczne bezpośrednio wpływają na aktywację makrofagów.
Niniejszy protokół opisuje wykorzystanie systemu bioreaktora perystaltycznego do badania mechano-immunomodulacji makrofagów w warunkach mechanicznych odpowiadających warunkom fizjologicznym. W porównaniu z konwencjonalnymi statycznymi systemami hodowlanymi lub platformami stymulacji mechanicznej pojedynczą siłą, metoda ta umożliwia jednoczesne zastosowanie cyklicznego odkształcenia wieloosiowego i naprężenia ścinającego cieczy, co dokładniej odwzorowuje mechaniczne mikrośrodowisko in vivo tkanek opartych na mięśniach gładkich. W tym protokole unieśmiertelnione makrofagi pochodzące z szpiku kostnego myszy (iBMDMs) hodowane w bioreaktorach w warunkach perystaltycznych wykazały zwiększoną ekspresję markerów aktywacji M1, nie wykazując jednocześnie tendencji do aktywacji M2. Wyniki te dowodzą, że mechanika perystaltyczna jest wystarczająca do modulowania zachowania zapalnego makrofagów i wspiera szerszą koncepcję mechano-immunomodulacji w tkankach narażonych na dynamiczne siły generowane przez mięśnie gładkie. Metoda ta jest szczególnie przydatna dla badaczy zajmujących się mechanobiologią, stanami zapalnymi, inżynierią tkankową, fizjologią przewodu pokarmowego, rozwojem płuc, zwłóknieniami oraz innymi chorobami, w których makrofagi są narażone na złożone mikrośrodowiska mechaniczne. Dzięki starannemu montażowi, spójnej kalibracji i stałemu monitorowaniu użytkownicy mogą zapewnić powtarzalną pracę bioreaktora i uniknąć typowych ograniczeń tej techniki.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Protokół opisuje montaż i obsługę opatentowanego40 systemu bioreaktora do badań nad mechanoimmunomodulacją. Odczynniki i sprzęt użyte w badaniu są wymienione w Tabeli materiałów.
1. Hodowla komórek
- Hodować unieśmielone makrofagi pochodzące z szpiku kostnego myszy (iBMDMs) w pełnej pożywce RPMI 1640 uzupełnionej o 10% inaktywowanego ciepłem FBS, 1% bufor HEPES, 1% pirogronianu sodu oraz 1% penicyliny-streptomycyny w temperaturze 37 °C w atmosferze z dodatkiem 5% CO2.
2. Wytwarzanie polidimetylosiloksanu (PDMS)
- Odważyć i wymieszać bazę oraz utwardzacz z zestawu elastomeru silikonowego w stosunku 10:1 (w/w).
- Mieszać mieszaninę przez 5 min, aby zapewnić jednorodne połączenie.
- Ostrożnie wlać wymieszany PDMS do kwadratowej szalki Petriego o wymiarach 100 mm x 15 mm, aż PDMS osiągnie wysokość 3 mm.
- Umieścić szalki Petriego z PDMS w eksykatorze.
- Odgazować w próżni przez 1 h w celu usunięcia pęcherzyków powietrza.
- Wyjąć PDMS z eksykatora i upewnić się, że nie pozostały w nim pęcherzyki powietrza.
- Przenieść nieutwardzone membrany PDMS do piekarnika rozgrzanego do 60 ˚ C i utwardzać przez 4 h.
- Wyjąć membrany PDMS z piekarnika i pozostawić je do ostygnięcia na blacie laboratoryjnym przez noc.
- Po 18–24 h ostrożnie oddzielić utwardzone membrany PDMS od szalek Petriego i dociąć je do wymiarów 70 mm x 40 mm x 3 mm.
3. Sterylizacja membrany PDMS
- Wewnątrz komory z laminarnym przepływem powietrza wypłukać membrany PDMS 70% etanolem i umieścić je bezpośrednio na powierzchni komory (BSC) (Rycina uzupełniająca 1).
- Sterylizować promieniami UV przez 10 min, a następnie przenieść membranę PDMS do naczynia hodowlanego o średnicy 90 mm, który nie był traktowany do hodowli tkanek, stroną naświetlaną promieniami UV do góry.
UWAGA: Membranę PDMS należy chwytać za boki i nigdy nie przekładać dłoni nad jej górną powierzchnią, aby zminimalizować ryzyko kontaminacji. - W eksperymentach nad perystaltyką należy używać membran PDMS o ich oryginalnych wymiarach.
- W przypadku warunków hodowli statycznej każdą membranę PDMS o wymiarach 70 mm x 40 mm należy przeciąć na dwie równe połowy o wymiarach 35 mm x 40 mm.
4. Powlekanie membran PDMS fibronektyną
- Wewnątrz BSC przygotować odpowiednią objętość sterylnego roztworu fibronektyny o stężeniu 0.5 mg/mL w soli fizjologicznej z buforem fosforanowym (PBS), tak aby móc nanieść 100 µL na każdą membranę.
- Nanieść 100 µL tego roztworu powlekającego na środek każdej membrany PDMS, upewniając się, że obszar powleczony pokrywa się dokładnie z miejscem kontaktu membrany PDMS ze śrubą.
UWAGA: Użyć końcówki pipety, aby delikatnie rozprowadzić roztwór w cienką, równomierną warstwę. - Pozostawić powleczone membrany PDMS w szalce hodowlanej bez przykrycia na 45 min w celu umożliwienia adsorpcji.
UWAGA: Pozostawić szybę BSC uchyloną, aby zapewnić ciągły przepływ powietrza. - Po 45 min odessać pozostały roztwór fibronektyny z każdej membrany.
- Delikatnie przepłukać membrany 1 mL sterylnego PBS.
5. Wysiewanie komórek iBMDM na membranie PDMS
- Przy 70%–80% konfluencji poddać iBMDM hodowane w kolbie T25 trypsynizacji, aby odłączyć je od powierzchni.
- Oznaczyć stężenie komórek za pomocą hemocytometru i przygotować zawiesinę o gęstości 100,000 cells/mL w pożywce.
- Na każdą membranę PDMS powleczoną fibronektyną nanieść 1 mL przygotowanej zawiesiny komórkowej.
- W każdym doświadczeniu zasiać co najmniej jedną membranę statyczną i jedną membranę z perystaltyką, aby zapewnić równoległe porównanie warunków.
- Umieścić zasiane membrany PDMS w inkubatorze z nawilżaniem w temperaturze 37 °C i 5% CO2 na co najmniej 24 h, aby umożliwić adhezję komórek zarówno w warunkach statycznych, jak i perystaltycznych (Supplementary Figure 1B).
6. Bioreaktor
- Wykonaj bioreaktor, korzystając z plików projektowania wspomaganego komputerowo (CAD) oraz specyfikacji zawartych w patencie na bioreaktor (US12522795)40 lub zamów gotową jednostkę od autorów.
7. Montaż i kalibracja obwodu Arduino
- Konstrukcja obwodu
- Złożyć obwód sterujący na płytce stykowej, używając potencjometrów, rezystorów, tranzystorów i przewodów przewodzących, zgodnie z Supplementary Figure 2.
- Zainstalować środowisko Arduino IDE na komputerze i otworzyć nowy szkic.
- Ustawić prędkość silnika na 5 revolutions per min (RPM) oraz pompę perystaltyczną na 28 mL/min.
- Podłączyć płytkę Arduino do komputera poprzez USB i wgrać kod dostarczony w Supplementary File 1, używając przycisku Upload w IDE.
UWAGA: Dioda LED Arduino zmieni kolor na pomarańczowy podczas wgrywania i powróci do zielonego, gdy będzie gotowa do pracy. Po zakończeniu wgrywania Arduino automatycznie uruchomi program po podłączeniu zasilania.
- Kalibracja silnika
- Uruchomić silnik i odliczyć liczbę obrotów przez 1 min za pomocą stoperem.
UWAGA: W razie potrzeby dostosować parametr prędkości silnika w kodzie Arduino, aby osiągnąć 5 RPM. - Wgrać kod ponownie po każdej korekcie, aż do osiągnięcia pożądanej prędkości.
- Uruchomić silnik i odliczyć liczbę obrotów przez 1 min za pomocą stoperem.
- Kalibracja pompy
- Uruchomić pompę na 30 s i zmierzyć zebraną masę, aby zweryfikować przepływ na poziomie 28 mL/min (~14 g w 30 s)
- Regulować potencjometr i powtarzać czynność, aż do momentu, gdy objętość wydzielona w 30 s będzie konsekwentnie bliska 14 g.
- Po skalibrowaniu silnika i pompy połączyć je z jednostką bioreaktora.
UWAGA: Skalibrowany zespół silnik–pompa–bioreaktor jest teraz gotowy do użycia eksperymentalnego (Figure 2).
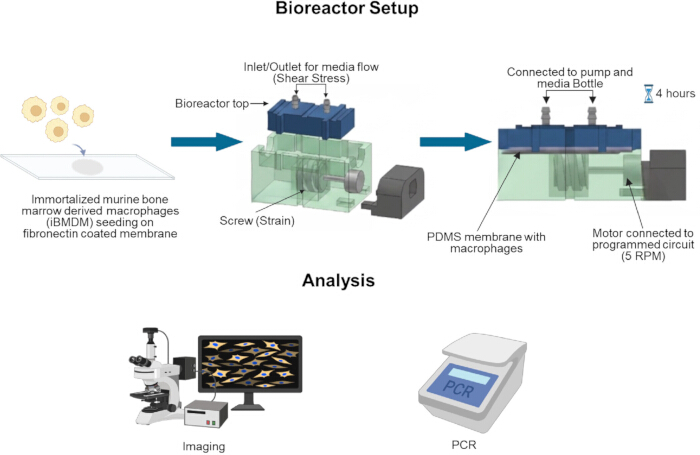
Rysunek 2: Schemat budowy bioreaktora perystaltycznego oraz analizy następczych. Komórki iBMDM są wysiewane na powlekaną fibronektyną membranę PDMS umieszczoną w bioreaktorze. Po 4 h ekspozycji na perystaltykę lub utrzymaniu w warunkach statycznych jako kontrole, komórki są zbierane do dalszych analiz, w tym qPCR, barwienia immunofluorescencyjnego i obrazowania. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
8. Montaż i konfiguracja bioreaktora perystaltycznego
- Przygotowanie komponentów
- Zebrać wszystkie wymagane elementy, w tym butelkę na medium, zakrętkę do butelki, wydrukowaną w technologii 3D górną część butelki, wydrukowaną w technologii 3D górną część bioreaktora, wydrukowaną w technologii 3D dolną część bioreaktora, wydrukowany w technologii 3D napęd śrubowy, opaski zaciskowe (trzy na bioreaktor), szczypce nastawne, szczypce boczne, naczynia hodowlane 150 mm, smar silikonowy oraz wydrukowany w technologii 3D uchwyt silnika. Każdy element spryskać 70% etanolem przed umieszczeniem w komorze BSC.
- Umieścić silnik DC, pompę perystaltyczną oraz dodatkowy odcinek drenu pompy wewnątrz BSC.
- Zamknąć pokrywę BSC i włączyć lampę UV na 10 min w celu wysterylizowania wszystkich komponentów (Supplementary Figure 1C).
- Weryfikacja przyczepienia i żywotności komórek
- Obejrzeć pod mikroskopem zarówno statyczne, jak i poddane perystaltyce membrany PDMS z wysianymi komórkami. Potwierdzić przyczepienie >80% komórek do powierzchni PDMS powlekanych fibronektyną oraz ocenić morfologię komórek pod kątem żywotności.
- W razie potrzeby wykonać reprezentatywne zdjęcia komórek przed montażem.
- Przygotowanie kontroli statycznych
- Odssać 1 mL pełnego medium RPMI z każdej membrany statycznej.
- Dodać 1 mL świeżego pełnego medium RPMI do każdej membrany.
- Oznaczyć naczynia jako statyczne i umieścić je ponownie w inkubatorze.
- Montaż bioreaktora perystaltycznego
- Dodać 15 mL medium do każdej butelki przeznaczonej do użytku w bioreaktorze.
- Przymocować do butelek zakrętki z zamontowanymi wydrukowanymi w technologii 3D górnymi częściami butelek (zawierającymi porty wlotowe/wylotowe). Odstawić je na bok (Supplementary Figure 1D).
- Złożyć podstawę bioreaktora.
- Włożyć wydrukowany w technologii 3D napęd śrubowy do centralnego otworu w dolnej części bioreaktora.
- Włożyć silnik DC do gniazda silnika w dolnej części bioreaktora.
- Upewnić się, że wał napędowy silnika jest stabilnie osadzony w centralnym otworze wydrukowanego w technologii 3D napędu śrubowego.
- Wsunąć uchwyt silnika na miejsce, aby ustabilizować silnik.
- Umieścić częściowo złożony bioreaktor w naczyniu hodowlanym 150 mm, aby ułatwić przeniesienie z BSC do inkubatora po całkowitym montażu (Supplementary Figure 1E).
- Nanieść cienką warstwę smaru silikonowego na rowki napędu śrubowego w miejscach, gdzie membrana PDMS będzie stykać się z napędem. Pozwala to na łatwiejszy obrót śruby i redukcję tarcia.
- Ładowanie membrany PDMS z wysianymi komórkami
- Ostrożnie przenieść membrany PDMS do perystaltyki z wysianymi komórkami z inkubatora do BSC.
- Odssać medium z każdej membrany i umieścić membranę w bioreaktorze powierzchnią z komórkami skierowaną do góry, przeciwnie do nasmarowanego interfejsu napędu śrubowego.
- Ustawić górną część bioreaktora tak, aby wgłębienie komory komórkowej pokrywało się z membraną PDMS. Wsunąć górną część w rowki prowadzące dolnej części bioreaktora.
- Zabezpieczanie bioreaktora
- Połączyć górną i dolną część bioreaktora za pomocą opasek zaciskowych i szczypiec bocznych.
- Odciąć nadmiar opasek zaciskowych szczypcami.
- Połączenia płynowe i konfiguracja systemu
- Ustawić pompę perystaltyczną tak, aby jej metalowy konektor był skierowany w tę samą stronę co konektor silnika.
- Podłączyć odcinek drenu pompy znajdujący się najbliżej bioreaktora do portu wlotowego najbliżej silnika w górnej części bioreaktora. Nasunąć dren całkowicie na dyszę wlotową.
- Zanurzyć przeciwległy koniec tego drenu w butelce z medium.
- Używając dodatkowego odcinka drenu pompy, podłączyć jeden koniec do dyszy wylotowej górnej części bioreaktora, a drugi koniec umieścić w butelce z medium powyżej poziomu cieczy, aby umożliwić recyrkulację bez cofania się płynu (Supplementary Figure 1F).
- Inkubacja i eksploatacja
- Umieścić cały zespół bioreaktora (w naczyniu 150 mm) wewnątrz inkubatora (Supplementary Figure 1G), natomiast płytkę obwodową/Arduino pozostawić na zewnątrz, podłączoną do zasilania.
- Podłączyć klipsy krokodylkowe:
- Pompa: dodatni do dodatniego, ujemny do ujemnego.
- Silnik: odwrócić polaryzację zgodnie z projektem układu.
- Umieścić puste, sterylne szalki Petriego w inkubatorze do późniejszego pobierania próbek.
- Pozostawić system bioreaktora perystaltycznego w działaniu przez 4 h (lub pożądany czas) (Supplementary Figure 1H) w standardowych warunkach hodowli w inkubatorze.
9. Demontaż bioreaktora
- Otwórz inkubator i podnieś rurkę wlotową z butelki z pożywką, aby umożliwić dopływ powietrza do systemu i całkowicie odprowadzić pozostałą pożywkę z bioreaktora.
- Po ustaniu przepływu pożywki odłącz przewody silnika i/lub pompy z płytki obwodu drukowanego, aby zatrzymać ruch mechaniczny.
- Przenieś cały zestaw bioreaktora do BSC, zdejmij rurki, przetnij opaski zaciskowe i zdejmij górną część bioreaktora.
- Odsaj pozostałą pożywkę z membrany PDMS i przenieś membranę z powrotem do tej samej szalki Petriego, której użyto podczas przygotowania.
- Sprawdź adhezję i żywotność komórek, oceniając ich morfometrię pod mikroskopem do hodowli komórkowych, a następnie przystąp do wymaganych analiz końcowych.
10. Analiza końcowa
- Pobieranie próbek do qPCR
- Wewnątrz BSC oznakuj probówki do mikrocentryfugi o pojemności 1,5 mL identyfikatorami próbek, w tym typem komórek i warunkami eksperymentalnymi.
- Zweryfikuj za pomocą mikroskopu do hodowli komórkowych, czy komórki nadal znajdują się na PDMS, zarówno dla warunków statycznych, jak i perystaltycznych.
- Odsącz pozostałe medium z każdej membrany PDMS.
- Przygotuj świeży bufor do lizy RNA, dodając β‑merkaptoetanol do Buforu RLT w stosunku 1:100.
- Dodaj 370 µL Buforu RLT + β-merkaptoetanolu do każdej membrany PDMS w celu lizy komórek.
- Używając sterylnego skrobaka do komórek, energicznie zeskrob obszar zasiedlony komórkami na PDMS, aby odczepić wszystkie komórki.
- Przenieś ~350 µL lizatu do odpowiedniej probówki 1,5 mL.
- Przejdź do ekstrakcji RNA lub przechowuj próbki w temperaturze -80 °C do czasu dalszego użycia.
- Zdekontaminuj BSC.
UWAGA: Bufor RLT oraz β-merkaptoetanol należy traktować zgodnie z ich odpowiednimi kartami charakterystyki (SDS) i utylizować w odpowiednich pojemnikach na odpady.
- Barwienie immunofluorescencyjne
- Dodaj 1 mL 4% paraformaldehydu (PFA) do każdej membrany i inkubuj w temperaturze pokojowej przez 20 min.
- Odsącz PFA i zutylizuj go w wyznaczonym pojemniku na odpady niebezpieczne.
- Dodaj 1 mL PBS do każdej membrany, aby usunąć pozostałości utrwalacza.
- Kontynuuj protokół barwienia immunofluorescencyjnego odpowiedni dla markerów docelowych.
11. Czyszczenie bioreaktorów i komponentów powiązanych
- Spryskaj wszystkie elementy bioreaktora, które mają kontakt z pożywką, komórkami lub membranami PDMS, 70% etanolem, w tym wloty i wyloty bioreaktora.
- Odsaj pozostałą pożywkę z butelki z pożywką, a następnie wypłucz wnętrze, obficie rozpylając 70% etanol i ponownie odsysając zawartość.
- Wyjmij wszystkie zdezynfekowane elementy z BSC i przechowuj je w wyznaczonym czystym obszarze.
- W przypadku butelek z pożywką:
- Wyczyść 20% wybielaczem, zamieszaj i wylej zawartość do zlewu pod bieżącą wodą.
- Wyszoruj octem rozcieńczonym w stosunku 1:10 i umyj mydłem oraz wodą ultrapurystyczną, a następnie spłucz 70% etanolem i wysusz do góry nogami.
- Wyczyść nakrętki butelek z pożywką oraz wkładki pompy 70% etanolem.
- Czyszczenie pomp perystaltycznych
- Przygotuj zlewki o pojemności 250 mL zawierające odpowiednio (1) 70% etanol, (2) wodę ultrapurystyczną lub (3) pusty pojemnik na odpady.
- Podłącz pompę za pomocą przewodów w zamkniętym obiegu i zasil ją za pomocą płytki obwodu sterowanej przez Arduino.
- Uruchom pompę w 70% etanolu przez 1 min, a następnie w wodzie ultrapurystycznej przez 1 min, aby przepłukać układ do pustej zlewki z odpadami.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Celem niniejszego protokołu było zademonstrowanie powtarzalnej metody określania, w jaki sposób perystaltyczne siły mechaniczne bezpośrednio modulują aktywację makrofagów. Przed eksperymentami w bioreaktorze potwierdzono, że iBMDM odpowiednio polaryzują w odpowiedzi na standardowe warunki stymulacji biochemicznej. Zgodnie z opisanym protokołem, membrany PDMS pokryto fibronektyną, a następnie zasiano iBMDM. Komórkom pozwolono przytwierdzić się przez 24 h przed inspekcją wizualną w celu potwierdzenia skutecznej adhezji, ró...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Obecne rozumienie wpływu sił perystaltycznych na funkcje makrofagów pozostaje ograniczone, mimo powszechnego występowania zaburzeń perystaltyki w chorobach zapalnych. Choć wiadomo, że poszczególne bodźce mechaniczne, takie jak naprężenie ścinające i odkształcenie cykliczne, modulują aktywację makrofagów, efekty jednoczesnego wieloosiowego odkształcenia i przepływu płynu, które razem stanowią perystaltykę, nie zostały szeroko zbadane w kontekście mechanobiologii makrofagów. Opisany tutaj protokół zapewnia powtarzalną plat...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Praca ta została sfinansowana przez National Science Foundation, numer przyznania 2440798. Rysunek 1 oraz Rysunek 2 zostały przygotowane przy użyciu licencjonowanej wersji BioRender.com.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,25% Trypsyna-EDTA | Fisher | 25200056 | |
| Probówki do mikrocentryfugi 1,5 mL | USA Scientific | 1615-5510 | |
| Szalki Petriego 100 mm x 15 mm | Fisher | 50-190-0276 | |
| Naczynia hodowlane 150 mm | Fisher | FB012925 | |
| 4% paraformaldehyd | Santa Cruz | sc-281692 | |
| Naczynia hodowlane 90 mm | Fisher | FB012923 | |
| Przeciwciało Alexa Fluor 488 anty-F4/80 | Abcam | ab204266 | |
| Przeciwciało Alexa Fluor 647 anty-CD40 | Abcam | ab275158 | |
| Arduino Uno | Amazon | B008GRTSV6 | |
| Płytka stykowa | Amazon | ||
| Bufor RLT | Qiagen | 79216 | |
| Skrobacz do komórek | Fisher | 353087 | |
| DAPI | MilliporeSigma | 50-874-10001 | |
| Deskator | MilliporeSigma | Z119008 | |
| Szczypce boczne | Amazon | ||
| Płodowa surowica bydlęca | Innovative Biosciences | 11-01-500 | |
| Fibronektyna | MilliporeSigma | F1141-1MG | |
| Bufor HEPES | Fisher (Gibco) | 15630080 | |
| iBMDM | Applied Biological Materials Inc. (abm) | T0673 | |
| Silnik | Robotshop | FT-SPARK16-360 | |
| Przeciwciało PE anty-Ym-1 + Ym-2 | Abcam | ab211621 | |
| Penicylina-Streptomycyna | Fisher | 15140122 | |
| Pompa perystaltyczna | DigiKey | 1150 | |
| Bufor fosforanowo-solny | Fisher | 14190250 | |
| Filament PLA | Amazon | B0D7ZYCVTY | |
| Potencjometr B1K 1K Ohm | Amazon | B0CZ747F6F | |
| RPMI 1640 | Fisher | 11875085 | |
| Smar silikonowy | Amazon | B000XBH9HI | |
| Szczypce kombinowane | Amazon | ||
| Pirowinian sodu | Cytiva Hyclone | SH3023901 | |
| Zestaw elastomeru silikonowego Sylgard 184 | Fisher | NC9285739 | |
| Kolba hodowlana T-25 | Fisher | 229331 | |
| Tranzystor | DigiKey | IRF520NPBF-ND | |
| Okablowanie/Krokodylki | Amazon | ||
| Opaski zaciskowe 18 cali | Amazon | ||
| β-merkaptoetan | Fisher | AC125472500 |
Bibliografia
- Mass E, Nimmerjahn F, Kierdorf K, Schlitzer A. Tissue-specific macrophages: how they develop and choreograph tissue biology. Nat Rev Immunol. 2023;23(9):563-579.
- Kumar V, Kumar V. Macrophages: the potent immunoregulatory innate immune cells. In: Macrophage Activation - Biology and Disease. London: IntechOpen; 2019. doi:10.5772/intechopen.88013.
- Ross EA, Devitt A, Johnson JR. Macrophages: the good, the bad, and the gluttony. Front Immunol. 2021;12:708186.
- Sreejit G, Fleetwood AJ, Murphy AJ, Nagareddy PR. Origins and diversity of macrophages in health and disease. Clin Transl Immunology. 2020;9(12):e1222.
- Locati M, et al. Diversity, mechanisms, and significance of macrophage plasticity. Annu Rev Pathol. 2020;15:123-147.
- Mosser DM, Edwards JP. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 2008;8(12):958-969.
- Boutilier AJ, Elsawa SF. Macrophage polarization states in the tumor microenvironment. Int J Mol Sci. 2021;22(13):6995.
- Orecchioni M, Ghosheh Y, Pramod AB, Ley K. Macrophage polarization: different gene signatures in M1 (LPS+) versus classically and M2 (LPS−) versus alternatively activated macrophages. Front Immunol. 2019;10:1084.
- Huang X, Li Y, Fu M, Xin HB. Polarizing macrophages in vitro. Methods Mol Biol. 2018;1784:119-126.
- Gharavi AT, et al. The role of macrophage subtypes and exosomes in immunomodulation. Cell Mol Biol Lett. 2022;27(1):83.
- Peng Y, et al. Regulatory mechanism of M1/M2 macrophage polarization in the development of autoimmune diseases. Mediators Inflamm. 2023;2023:8821610.
- Clevenger AJ, Jha A, Moore E, Raghavan SA. Manipulating immune activity of macrophages: a materials and mechanics perspective. Trends Biotechnol. 2025;43(1):33-49.
- Khanmohammadi M, Mirzaalikhan Y, Baratchi S. Immunity in motion: the role of mechanics in macrophage biology. Cell Chem Biol. 2025;32(12). doi:10.1016/j.chembiol.2025.11.004.
- Adams S, et al. Mechano-immunomodulation: mechanoresponsive changes in macrophage activity and polarization. Ann Biomed Eng. 2019;47(11):2213-2231.
- Meizlish ML, et al. Mechanosensing regulates tissue repair program in macrophages. Sci Adv. 2024;10(11):adk6906.
- Lee M, Du H, Winer DA, Clemente-Casares X, Tsai S. Mechanosensing in macrophages and dendritic cells in steady-state and disease. Front Cell Dev Biol. 2022;10:1044729.
- Chen M, et al. Substrate stiffness modulates bone marrow-derived macrophage polarization through NF-κB signaling pathway. Bioact Mater. 2020;5(4):880-890.
- Blakney AK, Swartzlander MD, Bryant SJ. The effects of substrate stiffness on the in vitro activation of macrophages and in vivo host response to poly(ethylene glycol)-based hydrogels. J Biomed Mater Res A. 2012;100A(6):1375-1386.
- Sridharan R, Cavanagh B, Cameron AR, Kelly DJ, O'Brien FJ. Material stiffness influences the polarization state, function and migration mode of macrophages. Acta Biomater. 2019;89:47-59.
- Previtera ML, Sengupta A. Substrate stiffness regulates proinflammatory mediator production through TLR4 activity in macrophages. PLoS One. 2015;10(12):e0145813.
- Song C, et al. Microfluidic three-dimensional biomimetic tumor model for studying breast cancer cell migration and invasion in the presence of interstitial flow. Chin Chem Lett. 2019;30(5):1038-1042.
- Li R, et al. Interstitial flow promotes macrophage polarization toward an M2 phenotype. Mol Biol Cell. 2018;29(16):1927-1940.
- Son H, et al. Shear stress induces monocyte/macrophage-mediated inflammation by upregulating cell-surface expression of heat shock proteins. Biomed Pharmacother. 2023;161:114566.
- Zhou H, Scatena M, Tu LN, Giachelli CM, Nigam V. Monocyte adhesion to and transmigration through endothelium following cardiopulmonary bypass shearing is mediated by IL-8 signaling. Front Cardiovasc Med. 2024;11:1454302.
- Jui E, et al. Shear stress induces a time-dependent inflammatory response in human monocyte-derived macrophages. Ann Biomed Eng. 2024;52(11):2690-2705.
- Castro-Núñez L, Dienava-Verdooold I, Herczenik E, Mertens K, Meijer AB. Shear stress is required for the endocytic uptake of the factor VIII-von Willebrand factor complex by macrophages. J Thromb Haemost. 2012;10(9):1929-1937.
- Cheng C, et al. Atherosclerotic lesion size and vulnerability are determined by patterns of fluid shear stress. Circulation. 2006;113(23):2744-2753.
- Seneviratne AN, et al. Low shear stress induces M1 macrophage polarization in murine thin-cap atherosclerotic plaques. J Mol Cell Cardiol. 2015;89(Pt B):168-172.
- Bonito V, de Kort BJ, Bouten CVC, Smits AIPM. Cyclic strain affects macrophage cytokine secretion and extracellular matrix turnover in electrospun scaffolds. Tissue Eng Part A. 2019;25(17-18):1312-1325.
- Ballotta V, Driessen-Mol A, Bouten CVC, Baaijens FPT. Strain-dependent modulation of macrophage polarization within scaffolds. Biomaterials. 2014;35(18):4919-4928.
- Dziki JL, et al. The effect of mechanical loading upon extracellular matrix bioscaffold-mediated skeletal muscle remodeling. Tissue Eng Part A. 2018;24(1-2):128-139.
- Wehner S, et al. Mechanical strain and TLR4 synergistically induce cell-specific inflammatory gene expression in intestinal smooth muscle cells and peritoneal macrophages. Am J Physiol Gastrointest Liver Physiol. 2010;299(5):G1187-G1197.
- Clevenger AJ, et al. Rapid prototypable biomimetic peristalsis bioreactor capable of concurrent shear and multiaxial strain. Cells Tissues Organs. 2023;212(1):57-72.
- Huizinga JD. Gastrointestinal peristalsis: joint action of enteric nerves, smooth muscle, and interstitial cells of Cajal. Microsc Res Tech. 1999;47(4):239-247.
- Kunz G, Leyendecker G. Uterine peristaltic activity during the menstrual cycle: characterization, regulation, function and dysfunction. Reprod Biomed Online. 2002;4(Suppl 3):5-9.
- Hosseini G, et al. A computational model of ureteral peristalsis and an investigation into ureteral reflux. Biomed Eng Lett. 2018;8(1):91-101.
- Clevenger AJ, et al. Peristalsis-associated mechanotransduction drives malignant progression of colorectal cancer. Cell Mol Bioeng. 2023;16(4):315-330.
- Leyendecker G, Kunz G, Wildt L, Beil D, Deininger H. Uterine hyperperistalsis and dysperistalsis as dysfunctions of the mechanism of rapid sperm transport in patients with endometriosis and infertility. Hum Reprod. 1996;11(7):1542-1551.
- Iwakiri K, et al. Mechanisms underlying excessive esophageal acid exposure in patients with gastroesophageal reflux disease. Esophagus. 2017;14(3):213-218.
- Raghavan S, Crawford LZ. 3D rapid prototypable tunable peristalsis bioreactor. United States patent. 2022: US12522795.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.