Niniejsze badanie wykazuje, że Qiming Granule (QMG) łagodzi retinopatię cukrzycową (DR) poprzez modulację osi jelito–siatkówka. QMG przekształciło mikrobiotę jelitową, zahamowało zapalenie systemowe i przywróciło sieć regulacyjną skoncentrowaną wokół CMKLR1, co doprowadziło do odwrócenia histopatologicznych uszkodzeń siatkówki. Wyniki te pozycjonują QMG jako obiecującą strategię terapeutyczną ukierunkowaną na oś jelito–siatkówka w leczeniu DR.
Artykuł badawczy
Analiza korelacyjna granulek Qiming z siecią scentrowaną wokół CMKLR1 i zapaleniem systemowym za pośrednictwem osi jelito-siatkówka w retinopatii cukrzycowej
W tym artykule
Podsumowanie
Streszczenie
Retinopatia cukrzycowa (DR) jest powikłaniem naczyniowo-nerwowym wywołanym przez przewlekłą hiperglikemię i systemowy stan zapalny, a pojawiające się dowody wskazują na oś jelito–siatkówka jako krytyczny, lecz niewykorzystany cel terapeutyczny. Niniejsze badanie sprawdza, czy Qiming Granule (QMG) wykazuje działanie ochronne przeciwko DR poprzez modulację osi jelito–siatkówka. Myszy C57BL/6 zostały randomizowane do grup eksperymentalnych i poddane różnym interwencjom. Zmiany histopatologiczne siatkówki oceniono za pomocą barwienia hematoksyliną i eozyną (HE). Poziomy cytokin zapalnych w surowicy (IL-1β, IL-6, TNF-α) zmierzono za pomocą testu immunoenzymatycznego (ELISA). Ekspresję kluczowych białek regulacyjnych (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) w tkankach siatkówki i jelita grubego wykryto metodą Western blot (WB). Skład i różnorodność mikrobioty jelitowej scharakteryzowano za pomocą pełnowymiarowego sekwencjonowania 16S rDNA. Analizy korelacyjne przeprowadzono w celu oceny zależności między mikrobiotą jelitową a czynnikami zapalnymi lub kluczowymi białkami. Leczenie QMG poprawiło nieprawidłowości histopatologiczne siatkówki, co potwierdzono poprzez przywrócenie warstwowej architektury siatkówki, częściową regenerację liczby komórek zwojowych siatkówki (P < 0,01) oraz odwrócenie procesu cieńczenia siatkówki (P < 0,01). Obniżyło ono również znacząco poziomy IL-1β, IL-6 i TNF-α w surowicy (P < 0,01). W obrębie osi jelito‑siatkówka QMG odwróciło nieprawidłową ekspresję kluczowych białek regulacyjnych, w szczególności sieci zorientowanej wokół CMKLR1 (Wnt5a, PPAR-γ, AP-1, TP53). Ponadto QMG przywróciło skład, różnorodność i funkcję mikrobioty jelitowej, a analizy korelacyjne wykazały, że QMG łączy systemowy stan zapalny z tymi białkami regulacyjnymi w celu modulacji osi jelito‑siatkówka. Badanie to dostarcza wstępnych dowodów farmakologicznych na to, że QMG łagodzi DR poprzez powiązanie sieci regulacyjnej zorientowanej wokół CMKLR1 (obejmującej Wnt5a, PPAR-γ, AP-1 i TP53) oraz systemowego stanu zapalnego za pośrednictwem osi jelito–siatkówka, co pozycjonuje QMG jako obiecującą strategię terapeutyczną opartą na osi jelito–siatkówka w leczeniu DR.
Wprowadzenie
Retinopatia cukrzycowa (DR), jedna z najczęstszych mikronaczyniowych powikłań cukrzycy (DM), jest wiodącą przyczyną ślepoty wśród osób w wieku produkcyjnym na całym świecie1. W skali globalnej DR dotyka około 20–30% populacji osób z DM2. Przewlekła hiperglikemia napędza patogenezę DR, wyzwalając kaskadę zdarzeń patologicznych, w tym zaburzenia sprzężenia neuronaczyniowego, nasilone odpowiedzi zapalne oraz stres oksydacyjny3. Niedawno u pacjentów z cukrzycą z retinopatią zaobserwowano zmiany w różnorodności i składzie mikrobioty jelitowej w porównaniu z pacjentami bez tej choroby4,5. W konsekwencji oś jelito–siatkówka — dwukierunkowa sieć komunikacyjna łącząca homeostazę jelit ze zdrowiem siatkówki — pojawiła się jako nowy czynnik przyczyniający się do progresji DR. Jednak specyficzne mediatory molekularne, które przekładają sygnały z osi jelito–siatkówka na patologię siatkówki, pozostają w dużej mierze niecharakteryzowane, co ogranicza identyfikację wiarygodnych biomarkerów i celów terapeutycznych.
Oś jelitowo-siatkówkowa wyznacza złożoną, dwukierunkową sieć komunikacyjną między mikrobiotą jelitową i jej metabolitami a tkankami siatkówki, przebiegającą poprzez szlaki immunologiczne, metaboliczne, neuroendokrynne i naczyniowe, co moduluje ich równowagę homeostatyczną6. Na poziomie molekularnym oś jelitowo-siatkówkowa charakteryzuje się dysregulacją kluczowych białek odpowiedzi stresowej i determinujących losy komórek, a konkretnie AP-1 i TP537,8,9. Ponadto CMKLR1, kluczowy receptor chemokin, jawi się jako istotny mediator dysfunkcji śródbłonka i dysregulacji metabolicznej, tworząc krytyczne ogniwo między zmianami w mikrobiocie jelitowej a patogenezą retinopatii cukrzycowej10. Co ważne, sygnalizacja Wnt pełni podwójną rolę regulacyjną w utrzymaniu homeostazy naczyniowej siatkówki oraz funkcji bariery nabłonka jelitowego1, podczas gdy sygnalizacja PPAR służy jako główny regulator odpowiedzi zapalnych i procesów metabolicznych zarówno w tkankach oka, jak i jelit12,13. Te cząsteczki sygnałowe wspólnie tworzą powiązaną sieć sygnalizacyjną w obrębie osi jelitowo-siatkówkowej, dostarczając nowych wglądów mechanistycznych i możliwości terapeutycznych w przypadku powikłań związanych z cukrzycą. Celowanie w zmiany strukturalne i funkcjonalne wzdłuż tej osi stanowi zatem obiecującą strategię leczenia DR.
Tradycyjna Medycyna Chińska (TCM) historycznie odgrywała istotną rolę w leczeniu cukrzycy i związanej z nią retinopatii, a decyzje terapeutyczne opierano na różnicowaniu zespołów14. Granulat Qiming (QMG), składający się z Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia, oraz Whitmania pigra, jest szeroko stosowany w leczeniu DR. Zatwierdzony przez Narodową Administrację Produktów Medycznych Chin (nr zatwierdzenia Z209036), QMG pomyślnie przeszedł badania kliniczne i otrzymał zezwolenie na wprowadzenie do obrotu. QMG wykazuje działanie ochronne poprzez zapobieganie pogrubieniu błony podstawnej w naczyniach włosowatych siatkówki, ograniczanie uszkodzeń perycytów i mikrokrążenia siatkówki oraz utrzymywanie lokalnej morfologii patologicznej oka15, co czyni go obiecującą terapią w leczeniu DR. Poprzez oddziaływanie na kluczowe białka i czynniki zapalne, aktywne składniki QMG wywierają działanie przeciwzapalne, przeciwutleniające i przeciwapoptotyczne, co stanowi podstawę mechanistyczną dla jego modulacji osi jelito–siatkówka16. Właściwości te stanowią podstawę mechanistyczną dla potencjalnej modulacji osi jelito–siatkówka przez QMG, jednak niewiele badań zgłębiło to powiązanie. Dlatego celem niniejszego badania jest walidacja skuteczności QMG w modulowaniu osi jelito–siatkówka, co dostarczy dowodów eksperymentalnych na jego potencjał terapeutyczny w DR.
Niniejsze badanie łączy przewidywania teoretyczne z danymi eksperymentalnymi in vivo w celu potwierdzenia skuteczności QMG w modulowaniu osi jelito-siatkówka. Wyniki te wykazują, że QMG łagodzi przebieg DR poprzez powiązanie sieci regulacyjnej skoncentrowanej wokół CMKLR1 (obejmującej Wnt5a, PPAR-γ, AP-1 i TP53) z zapaleniem układowym za pośrednictwem osi jelito-siatkówka, co pozycjonuje QMG jako obiecującą strategię terapeutyczną ukierunkowaną na oś jelito-siatkówka w leczeniu DR. Streszczenie graficzne przedstawiono na Rysunku 1.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z wytycznymi ARRIVE. Badanie zostało zatwierdzone przez Komisję Etyki Sichuan Scientist Biotechnology Co., Ltd. (IACUC ISSUE SYST-2024-01). Szczegółowy harmonogram eksperymentalny podsumowujący plan badania przedstawiono na Rysunku uzupełniającym 1.
Przygotowanie i traktowanie zwierząt
Myszy poddano głębokiej anestezji poprzez inhalację 2% izofluranu. W stanie głębokiej anestezji pobrano krew metodą enukleacji retroorbitalnej. Bezpośrednio po pobraniu krwi przeprowadzono enukleację gałek ocznych w celu pozyskania tkanki siatkówki. Następnie, w celu zapewnienia eutanazji, wykonano zwichnięcie stawu szyjnego w głębokiej anestezji. Bezpośrednio po tym wypreparowano tkanki okrężnicy. Zwierzęta wykazujące zdarzenia niepożądane były niezwłocznie wycofywane z badania i otrzymywały odpowiednią opiekę weterynaryjną.
Randomizacja i zaślepienie
Samce myszy C57BL/6 w wieku 5 tygodni o masie od 20 do 30 g przebywały w ściśle kontrolowanych warunkach, w tym pod kątem temperatury i wilgotności. Po tygodniu aklimatyzacji myszy C57BL/6 zostały losowo przydzielone do trzech grup (grupy kontrolnej, grupy modelowej i grupy interwencyjnej) przy użyciu komputerowo wygenerowanego ciągu liczb losowych. Sekwencja randomizacji została wygenerowana przez badacza niezaangażowanego w opiekę nad zwierzętami ani w ocenę wyników.
Aby zapewnić zaślepienie, wszystkie czynności związane z opieką nad zwierzętami, podawaniem leków oraz gromadzeniem danych były wykonywane przez badaczy nieznających przydziału do grup. Zakodowane przypisania do grup ujawniono dopiero po zakończeniu wszystkich eksperymentów i analiz statystycznych. Zaślepienie dotyczyło: technika wykonującego zgłębnik doustny; patologa oceniającego histologię siatkówki oraz analityka kwantyfikującego prążki w analizie Western blot (WB).
Obliczanie wielkości próby
Wielkość próby określono na podstawie wstępnego eksperymentu oceniającego liczbę komórek zwojowych siatkówki (RGC) w tych samych warunkach doświadczalnych. Przy założeniu dwustronnego poziomu istotności (α) wynoszącego 0,05 oraz mocy statystycznej (1-β) wynoszącej 0,80, wymagane było minimum 5 myszy na grupę, aby wykryć klinicznie istotną różnicę w liczbie RGC pomiędzy grupą modelową a grupą interwencyjną. Uwzględniając potencjalny odsetek ubytków na poziomie około 20%, do każdej grupy zaplanowano włączenie 6 myszy.
Wytwarzanie zwierząt z cukrzycą
Grupa kontrolna otrzymywała standardową dietę, natomiast grupy interwencyjna i modelowa były karmione dietą wysokotłuszczową i wysokocukrową (HFHSD) przez cztery tygodnie. Po tym okresie dietetycznym zwierzęta z grup interwencyjnej i modelowej poddano domięśniowym iniekcjom 1% roztworu streptozotocyny (STZ) w dawce 35 mg/kg17,18,19,20. Po siedemdziesięciu dwóch godzinach od iniekcji myszy wykazujące poziom glukozy we krwi na czczo przekraczający 16,7 mmol/L uznano za model DM i wybrano do dalszych eksperymentów. Zwierzęta z modelem DM kontynuowały dietę wysokotłuszczową i wysokocukrową przez kolejne cztery miesiące, podczas gdy grupa kontrolna pozostawała na standardowej diecie.
Walidacja taksonomiczna i ocena jakości
Osiem składników QMG zostało zweryfikowanych taksonomicznie przy użyciu wyszukiwarki Modernized Plant Names Search (MPNS, http://mpns.kew.org/mpns-portal/). Jakość raportowania składu QMG oceniono za pomocą narzędzia ConPhYMP.
Metody podawania
W grupie interwencyjnej zwierzęta otrzymywały doustnie QMG. Preparat QMG został zakupiony w firmie Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. (chiński krajowy numer zatwierdzenia leku Z2090036). Zawiesinę QMG przygotowano poprzez jednorodne wymieszanie QMG z wodą destylowaną. Myszy w grupie interwencyjnej otrzymywały zawiesinę poprzez zgłębnik do żołądka w objętości równoważnej objętościom podawanym grupie modelowej i kontrolnej. Dawkę obliczono na podstawie klinicznej pojedynczej dawki terapeutycznej wynoszącej 4,5 g na 60 kg masy ciała dorosłego (standardowa dawka jednostkowa preparatu wprowadzonego do obrotu), stosując metodę normalizacji powierzchni ciała (BSA) zalecaną przez FDA oraz Reagan-Shaw21. Współczynnik przeliczeniowy między dorosłymi ludźmi (Km = 37) a myszami (Km = 3) wynosił 12,3, co przełożyło się na dawkę dla myszy wynoszącą 0,9 g/kg masy ciała. Grupa modelowa i grupa kontrolna otrzymywały równoważną objętość soli fizjologicznej poprzez zgłębnik do żołądka. Podawanie leku odbywało się codziennie między godziną 9:0 a 1:0 rano przez okres 3 kolejnych miesięcy.
Wskaźniki obserwacji i testowania
Ogólne monitorowanie oznak życiowych
Ogólne oznaki życiowe i wskaźniki fizjologiczne, w tym masa ciała, poziom glukozy we krwi, spożycie wody i pokarmu, diureza, poziom aktywności i zachowanie, temperatura ciała, a także stan skóry i sierści, były systematycznie obserwowane i rejestrowane w celu kompleksowej oceny interwencji terapeutycznych oraz wykrycia potencjalnych powikłań.
Obserwacja zmian morfologicznych w siatkówce za pomocą analizy barwienia HE
Wszystkie preparaty po utrwaleniu poddano procesowi odwodnienia w automatycznym dehydratorze z wykorzystaniem serii roztworów etanolu i ksylenu, a następnie zatopiono w parafinie. Następnie wykonano skrawki parafiny o grubości 4 µm, które zabarwiono metodą HE i zamontowano za pomocą gumy neutralnej. Obrazy siatkówki zostały zeskanowane przy użyciu skanera 3DHISTECH Pannoramic SCAN. Analiza obrazów i pomiary danych zostały wykonane programem Image-Pro Plus.
Oznaczanie poziomu IL-6, TNF-α i IL-1β w surowicy za pomocą analizy ELISA
Próbki krwi pobrano poprzez enukleację zaoczodołową. Surowicę oddzielono za pomocą wirowania przy 1,0 × g przez 15 min w temperaturze 4 °C i przechowywano w -80 °C do czasu analizy. Poziomy IL‑1β, IL‑6 i TNF‑α w surowicy zmierzono zgodnie ze standardowymi procedurami, obejmującymi wyrównanie temperatury odczynników, dodanie próbek, inkubację, przemywanie, dodanie koniugatu i substratu, przerwanie reakcji, pomiar gęstości optycznej oraz obliczenie stężenia na podstawie krzywej wzorcowej. Gęstość optyczną odczytano przy 450 nm za pomocą czytnika mikropłytek, a stężenia cytokin obliczono względem krzywych wzorcowych.
Wykrywanie kluczowych białek regulacyjnych w siatkówce i jelicie grubym za pomocą analizy WB
Przeprowadzono trzy niezależne powtórzenia biologiczne na pojedynczej membranie, którą następnie sekwencyjnie analizowano pod kątem białek docelowych. Wszystkie powtórzenia pochodziły z jednej kohorty zwierząt uśmierconych w tym samym czasie. W przypadku, gdy masa cząsteczkowa białka docelowego była zbyt zbliżona do masy cząsteczkowej GAPDH (<(różnica 5 kDa), analizowano je na oddzielnych membranach, aby zapobiec nakładaniu się sygnałów. Każdą membranę poddano inkubacji wyłącznie z przeciwciałem przeciwko białku docelowemu lub przeciwko GAPDH w celu zapewnienia dokładnej kwantyfikacji. Wykorzystano następujące przeciwciała pierwszorzędowe: GAPDH poliklonalny przeciwciało (1:500), poliklonalne przeciwciało przeciwko CMKLR1 (1:10), poliklonalne przeciwciało przeciwko Wnt5a (1:100), poliklonalne przeciwciało przeciwko TP53 (1:100), monoklonalne przeciwciało przeciwko AP-1 (1:50) oraz PPAR gamma (PPAR-γ) przeciwciało poliklonalne (1:100). Białka całkowite otrzymano poprzez lizę komórek, a następnie wirowanie. Stężenia białek oznaczono z wykorzystaniem testu BCA. Wyekstrahowane białka rozdzielono metodą SDS-PAGE, używając 12% żelu rozdzielającego, a następnie przeniesiono na membrany. Membrany zablokowano w buforze TBST zawierającym 5% odtłuszczonego mleka i inkubowano z odpowiednimi przeciwciałami pierwszorzędowymi przez noc w temperaturze 4 °CPo przemyciu membrany inkubowano z przeciwciałami wtórnymi anty-króliczymi lub anty-mysimi sprzężonymi z HRP w rozcieńczeniu 1:10 0. Na koniec prążki białkowe zwizualizowano i przeanalizowano za pomocą obrazowania chemiluminescencyjnego. Podczas wizualizacji i przetwarzania danych bloty przycięto poziomo, aby usunąć nieistotne regiony masy cząsteczkowej, zachowując wszystkie ścieżki próbek bez usuwania obszarów między nimi. Podczas przycinania w celu usunięcia nieistotnych fragmentów żelu mogło dojść do niewielkich zniekształceń krawędzi.
Wykrywanie mikrobioty jelitowej za pomocą analizy sekwencjonowania 16S rDNA
Przed procedurami końcowymi od każdej myszy pobrano świeże próbki kału. Myszy umieszczano indywidualnie w sterylnych klatkach na 10–15 min, aby umożliwić spontaniczną defekację. Kulki kału zbierano natychmiast za pomocą sterylnych pincet, przenoszono do sterylnych probówek 1,5 mL, zamrażano gwałtownie w ciekłym azocie i przechowywano w temperaturze -80 °C do momentu ekstrakcji DNA. Wszystkie procedury przeprowadzono w warunkach sterylnych, aby zminimalizować ryzyko kontaminacji krzyżowej. Odstęp czasu między defekacją a zamrożeniem utrzymywano w granicach 10 min, aby zapewnić integralność mikrobiologiczną. Próbki genomowego DNA (gDNA) z kału oczyszczano przy użyciu zestawu Fecal gDNA extraction kit, a następnie przeprowadzono amplifikację pełnej długości genu 16S rDNA za pomocą reakcji łańcuchowej polimerazy (PCR) z zastosowaniem uniwersalnych starterów 8F (5’-AGTTTGATCATGGCTCAG-3’) i 1492R (5’-CGGTTACCTTGTTACGACTT-3’). Produkty PCR analizowano następnie za pomocą elektroforezy w żelu agarozowym, oczyszczano i oznaczano ilościowo na potrzeby dalszych zastosowań. Sekwencjonowanie wysokoprzepływowe wykonano na sekwenatorze Nanopore GridION. Proces analizy danych obejmował basecalling, kontrolę jakości danych, adnotację gatunkową, konstrukcję drzewa filogenetycznego, analizę społeczności, analizę różnorodności alfa i beta, analizę gatunków o różnej liczebności oraz przewidywanie funkcji społeczności. Podczas analizy wykorzystano różne narzędzia i bazy danych, takie jak NanoFilt, Usearch, język programowania R, Python oraz baza danych SILVA.
Analiza korelacji osi jelito–siatkówka z zapaleniem ogólnoustrojowym i wielopoziomowym mikrobiotą jelitową
Aby zbadać potencjalne powiązania między wielopoziomową mikrobiotą jelitową a surowiczymi cytokinami zapalnymi i kluczowymi białkami regulatorowymi, przeprowadzono analizę korelacji przy użyciu platformy Luoning Bio-Cloud. W pierwszej kolejności z wyników sekwencjonowania wyodrębniono dane o liczebności gatunków na poziomach królestwa, typu, klasy, rzędu, rodziny, rodzaju i gatunku. Czynniki fizykochemiczne, w tym stężenia surowiczych cytokin zapalnych i poziomy ekspresji białek, zestawiono w pliku czynników środowiskowych. Aby zapewnić wiarygodność i możliwość wizualizacji korelacji, dane poddano normalizacji w celu wyeliminowania różnic w skali między liczebnością mikrobów a jednostkami pomiarów klinicznych. Obliczono współczynniki korelacji (wartości R) oraz odpowiadające im poziomy istotności (wartości P). Wyniki zwizualizowano za pomocą mapy ciepła korelacji, w której gradienty kolorów wskazują siłę i kierunek korelacji (kolor czerwony oznacza korelację dodatnią, niebieski – korelację ujemną), a gwiazdki (**) oznaczają istotność statystyczną (P < 0.01).
Metody statystyczne
Wszystkie analizy statystyczne oraz wizualizacje wykonano przy użyciu oprogramowania GraphPad Prism. Do porównania średnich dla danych o rozkładzie normalnym zastosowano test t. W przypadkach, gdy dane odbiegały od rozkładu normalnego, wykorzystano test Kruskala-Wallisa. Zależności między zmiennymi analizowano za pomocą korelacji Spearmana lub Pearsona. Wszystkie testy statystyczne przeprowadzono dwustronnie, przyjmując poziom istotności statystycznej 0,05.
Wyniki
General situation of experimental animals
Blood glucose levels were significantly elevated in the model group (27.21 ± 6.03 mmol/L) compared with the blank group (P < 0.001), indicating the successful induction of the DM model. During the study period, the experimental animals showed stable body weight, continuous water and food intake, normal urine output, body temperature, healthy fur and skin condition, and normal behavior during the experiment.
Composition and validation of QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
Table 1: The composition and quality information of QMG ingredients. Detailed information on the composition and quality information of QMG ingredients, including the Chinese name, scientific name by MPNS validation, species, family, part used, and representative bioactive compounds.
QMG ameliorates the retinal morphology
As depicted in Figure 2A, the retina of the blank group exhibited a well-organized structure. The cellular arrangement was dense and orderly across all layers, with no evidence of structural disruption, exudation, or inflammatory infiltration. Compared with the blank group, retinal sections from the model group (Figure 2B) exhibited marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in RGC counts (P < 0.0001, Table 2, Figure 3A), and pronounced thinning of the total retinal thickness (P < 0.0001, Figure 3B). Notably, neovascular tufts penetrating the inner limiting membrane were observed (indicated by a red arrow), confirming successful establishment of the DR model. In contrast, the intervention group (Figure 2C) demonstrated significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001, Table 2, Figure 3A), and reversal of retinal thinning (P < 0.01, Table 2, Figure 3B). These data provide strong evidence for QMG as an effective intervention for DR.
QMG attenuates systemic inflammatory response in DR
Compared with the blank group, the expression levels of IL-1β, IL-6, and TNF-α were significantly upregulated in the model group (P < 0.0001), confirming that the modeling procedure successfully induced a marked inflammatory response. Conversely, compared with the model group, the expression levels of IL-1β, IL-6, and TNF-α were significantly downregulated in the intervention group (p < 0.0001), indicating a potent inhibitory effect of QMG on systemic inflammation. The serum concentrations of IL-1β, IL-6, and TNF-α across the three groups are summarized in Table 3 and illustrated in Figure 4A–C.
QMG modulates the CMKLR1-centered regulatory network along the gut–retina axis
As shown in Figure 5, Figure 6, Figure 7, and Supplementary Figure 2, the results of this study showed that in DR model mice, the expression levels of five key regulatory proteins—AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ—exhibited a consistent downward trend in both colonic and retinal tissues. Following QMG intervention, the expression of these proteins showed varying degrees of recovery, with some proteins reaching statistical significance. Specifically, after QMG intervention, the expression of AP-1, Wnt5a, and CMKLR1 in colonic tissue was significantly higher than that in the model group (P < 0.05), while in retinal tissue, the expression of CMKLR1 and TP53 was significantly higher than that in the model group (P < 0.01). These findings may suggest that AP-1 and Wnt5a are more sensitive responders in the colon, whereas TP53, as an apoptosis regulator, plays a more critical role in retinal neuroprotection. Notably, CMKLR1 was the only protein that achieved significant recovery in both tissues, indicating that QMG may facilitate bidirectional communication along the gut–retina axis through systemic regulation of CMKLR1 expression.
The consistent directionality of expression changes for these five proteins in both colonic and retinal tissues holds important biological significance. As the primary habitat of the gut microbiota, changes in colonic protein expression reflect the state of the intestinal microenvironment, while the retina is the effector organ of DR. The consistency of expression patterns between these two tissues strongly supports the gut–retina axis as an important participant in the pathophysiological processes of DR.
QMG restores and improves the composition, diversity, and function of gut microbiota
The results of the community composition
Hierarchical clustering analysis revealed distinct shifts in gut microbial composition and clustering at multiple taxonomic levels following QMG intervention. At the phylum level (Figure 8A), the model group exhibited a marked reduction in Firmicutes abundance and a significant enrichment of Bacteroidetes compared with the blank group, indicating a diabetes-driven shift in the Firmicutes/Bacteroidetes ratio; notably, the intervention restored the proportions of both Firmicutes and Bacteroidetes to levels approaching those of the blank group, accompanied by an elevated relative abundance of Proteobacteria. At the class level (Figure 8B), the model group manifested an elevation in Bacteroidia and Clostridia and a lessening in Bacilli and Erysipelotrichia compared with the blank group; in contrast, the intervention group showed restoration in Bacteroidia and Erysipelotrichia to levels approaching those of the blank group, accompanied by elevated relative abundance of Clostridia and Alphaproteobacteria. At the order level (Figure 8C), the model group demonstrated an elevated proportion of Bacteroidales, and a decreased proportion of Erysipelotrichales and Lactobacillales compared with the blank group; conversely, the intervention group restored the proportions of Bacteroidales and Erysipelotrichales to levels approaching those of the blank group, accompanied by an elevated relative abundance of Clostridiales. At the family level (Figure 8D), the model group presented a growth in Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, and Tannerellaceae, and a decrease in Erysipelotrichaceae, Lactobacillaceae, Muribaculaceae, and Ruminococcaceae compared with the blank group; in contrast, the intervention group downregulated the proportions of Odoribacteraceae and Peptostreptococcaceae compared with the model group; restored the proportions of Erysipelotrichaceae and Ruminococcaceae to levels approaching those of the blank group, accompanied by an elevated relative abundance of Lachnospiraceae. At the genus level (Figure 8E), the model group exhibited an upward trend in Odoribacter, Paeniclostridium, Alistipes, Parabacteroides, and Clostridioides, and a decrease trend in Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides, and Muribaculum compared with the blank group; notably, the intervention group downregulated the proportions of Odoribacter, Clostridioides, and Paeniclostridium compared with the model group; restored the proportions of Faecalibaculum and Ruminococcus to levels approaching those of the blank group; and increased the relative abundance of Lachnoclostridium, Sphingomonas, Flavonifractor, and Blautia. At the species level (Figure 8F), the model group showed an increase in Odoribacter splanchnicus, Clostridioides difficile, and Paeniclostridium sordellii, and a decrease in Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale compared with the blank group; in contrast, the intervention group downregulated the proportion of Odoribacter splanchnicus and Clostridioides difficile compared with the model group; restored the proportions of Faecalibaculum rodentium, and Muribaculum intestinale, accompanied by elevated relative abundance of Lachnoclostridium phocaeense, and Flavonifractor plautii. Collectively, these findings indicate that QMG restored gut microbial composition across multiple taxonomic levels, shifting the community structure toward a homeostatic state.
The results of the Alpha diversity and Beta diversity
As indicated by the Alpha diversity results (Figure 9A), the intervention group exhibited the highest Chao1, PD, Simpson, and Shannon indices, while the model group displayed the lowest, with the blank group showing intermediate levels. These findings underscore the detrimental impact of DR on gut microbiota diversity and demonstrate that QMG intervention effectively restores and enhances microbial richness and evenness in DR mice.
As indicated by the Beta diversity representative results (Figure 9B,C), the principal coordinates analysis (PCoA) plots revealed a distinct separation of microbial communities across the three groups, which was statistically supported by the Permutational Multivariate Analysis of Variance (PERMANOVA). Specifically, the Bray-Curtis-based analysis indicated a significant structural divergence (PERMANOVA: R2 = 0.67, P < 0.001), suggesting that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. Consistent with this, the analysis based on Weighted unique fraction (UniFrac) distance, which incorporates phylogenetic relationships between taxa, further confirmed the significant community shift (PERMANOVA: R2 = 0.58, P < 0.01).
As displayed by the Beta diversity results (Figure 9D), the non-metric multidimensional scaling (NMDS) ordination plot demonstrated a clear spatial clustering of samples according to the respective groups, with a stress value of 0.04. Given that a stress value below 0.05 is generally considered to represent an excellent representation of the community structure in a reduced-dimensional space, these results collectively suggest that the QMG intervention significantly altered the global composition of the gut microbiota.
The results of the differential abundance analysis
According to the linear discriminant analysis effect size (LEfSe) analysis (Figure 9E), the results revealed that Clostridia, Clostridiales, Lachnospiraceae, and Lachnoclostridium were remarkably enriched in the intervention group, whereas Odoribacteraceae, Odoribacter, Peptostreptococcaceae, and Paeniclostridium were notably enriched in the model group. Therefore, the above gut microbiota might be the primary differential microbiota responsible for the intergroup differences between the model and intervention groups.
The results of community function prediction
The predicted functional profiles at Level 2 and Level 3 showed distinct clustering patterns across the three groups (Figure 9F,G). Specifically, compared with the blank group, the model group exhibited a significant deviation in the relative abundance of metabolic pathways. Notably, this functional perturbation in the model group was largely ameliorated in the intervention group. The functional composition of the intervention group showed a substantial shift back towards the profile observed in the blank group, indicating that the QMG intervention effectively modulated the gut microbial functional structure. These results suggest that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state.
QMG modulates the gut–retina axis by coupling systemic inflammation and key regulatory proteins
Associations at global levels
At the kingdom level (Figure 10A–C), QMG improved the CMKLR1-centered network mainly by modulating Bacteria along the gut-retina axis. Specifically, Bacteria positively correlated with retinal PPAR-γ in the blank group (P < 0.01), but this association was not observed in the model group. Following QMG intervention, bacterial abundance positively correlated with retinal CMKLR1 and Wnt5a yet negatively correlated with colonic TP53 and PPAR-γ (P < 0.01).
At the phylum level (Figure 10D–F), QMG improved the CMKLR1-centered network mainly by modulating Candidatus and Bacteroidetes along the gut-retina axis. Specifically, the positive correlation between Candidatus and colonic CMKLR1 observed in the blank group was lost following DR induction, but was restored by QMG intervention, which was accompanied by a negative correlation with serum IL-1β and TNF-α, while positively correlated with retinal PPAR-γ, AP-1, TP53, colonic AP-1, and serum IL-6 (P < 0.01). Proteobacteria in the model group negatively correlated with colonic CMKLR1 (P < 0.01), a trend that persisted following QMG intervention. Meanwhile, Firmicutes were positively correlated with retinal CMKLR1 in the model group, whereas Bacteroidetes and Tenericutes were negatively correlated with retinal CMKLR1 (P < 0.01). Following QMG intervention, Bacteroidetes shifted to positive correlations with retinal PPAR-γ, AP-1, TP53, and colonic CMKLR1 (P < 0.01). Additionally, Actinobacteria positively correlated with retinal CMKLR1 and Wnt5a (P < 0.01).
At the class level (Figure 10G–I), QMG improved the CMKLR1-centered network mainly by regulating Cytophagia and Bacteroidia along the gut-retina axis. Specifically, Cytophagia and Chitinophagia negatively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Cytophagia, Bacteroidia, and Mollicutes negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriia and Epsilonproteobacteria, yet negatively with Tissierellia, Alphaproteobacteria, Clostridia, and Bacilli (P < 0.01). Following QMG intervention, Bacteroidia and Cytophagia positively correlated with colonic CMKLR1, retinal PPAR-γ, AP-1, TP53, colonic AP-1 and serum IL-6, whereas Mollicutes, Deltaproteobacteria, Alphaproteobacteria, and Gammaproteobacteria showed the opposite pattern (P < 0.01). Moreover, Chlamydiia, Actinobacteria, Tissierellia, Bacilli, and Negativicute negatively correlated with retinal CMKLR1 and Wnt5a, while Coriobacteriia exhibited the reverse correlation (P < 0.01).
At the order level (Figure 10J–L), QMG improved the CMKLR1-centered network mainly by modulating Bacteroidales, Bacillales, and Clostridiales along the gut–retina axis. Specifically, Cytophagales and Chitinophagales negatively correlated with retinal CMKLR1, whereas Marinilabiliales positively correlated with colonic CMKLR1 in the blank group (P < 0.01). In the model group, Mycoplasmatales, Cytophagales, Bacteroidales, and Marinilabiliales negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriales and Campylobacterales, yet negatively with Tissierellales, Bacillales, Sphingomonadales, Clostridiales, and Lactobacillales (P < 0.01). Following QMG intervention, Bacteroidales and Clostridiales positively correlated with colonic CMKLR1, AP-1, retinal PPAR-γ, AP-1, TP53, and serum IL-6, whereas Desulfovibrionales, Rhizobiales, Sphingomonadales, and Enterobacterales showed the opposite pattern (P < 0.01). Moreover, Eggerthellales and Coriobacteriales positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, and Bacillales exhibited the reverse correlation (P < 0.01).
Associations at Fine levels
At the family level (Figure 11A–C), QMG improved the CMKLR1-centered network primarily by modulating Lachnospiraceae, Bacteroidaceae, and Lactobacillaceae along the gut–retina axis. Specifically, Ruminococcaceae negatively correlated with retinal CMKLR1, whereas Lachnospiraceae positively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Peptostreptococcaceae positively correlated with retinal CMKLR1, while Tannerellaceae, Bacteroidaceae, Odoribacteraceae, and Lachnospiraceae showed the opposite pattern (P < 0.01). Meanwhile, colonic CMKLR1 positively correlated with Marinilabiliaceae, Rikenellaceae, and Flavobacteriaceae, yet negatively with Lachnospiraceae and Lactobacillaceae (P < 0.01). Following QMG intervention, Enterobacteriaceae, Sphingomonadaceae, and Oscillospiraceae negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Peptococcaceae, Bacteroidaceae, Muribaculaceae, and Rikenellaceae showed the opposite pattern (P < 0.01). Moreover, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceae, and Ruminococcaceae negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Eggerthellaceae, Lachnospiraceae, and Hungateiclostridiaceae exhibited the reverse correlation (P < 0.01).
At the genus level (Figure 11D–F), QMG improved the CMKLR1-centered network primarily by modulating Lachnoclostridium, Clostridioides, and Bacteroides along the gut–retina axis. Specifically, Ruminococcus negatively correlated with retinal CMKLR1, whereas Lachnoclostridium showed the opposite pattern in the blank group (P < 0.01). In the model group, Lactobacillus and Sphingomonas negatively correlated with colonic CMKLR1, while Alistipes and Croceibacter positively correlated with colonic CMKLR1 (P < 0.01). Meanwhile, retinal CMKLR1 positively correlated with Paeniclostridium and Clostridioides, yet negatively with Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, and Lachnoclostridium (P < 0.01). Following QMG intervention, Sphingomonas and Oscillibacter negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Bacteroides, Muribaculum, and Alistipes showed the opposite pattern (P < 0.01). Moreover, Dialister, Flavonifractor, Clostridioides, Ruminococcus, and Paeniclostridium negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Pseudoclostridium, Lachnoclostridium, and Blautia exhibited the reverse correlation (P < 0.01).
At the species level (Figure 11G–I), QMG improved the CMKLR1-centered network primarily by modulating Clostridioides difficile, Alistipes shahii, and Paeniclostridium sordellii along the gut–retina axis. Specifically, Ruminococcus bicirculans and endosymbiont 'TC1' of Trimyema compressum negatively correlated with retinal CMKLR1, whereas Lactobacillus fermentum and Lactobacillus helveticus displayed the opposite pattern in the blank group (P < 0.01). In the model group, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, and Alistipes shahii positively correlated with colonic CMKLR1, while Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, and Lactobacillus murinus positively correlated with retinal CMKLR1, yet Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, and Intestinimonas butyriciproducens showed the opposite pattern (P < 0.01). Following QMG intervention, Alistipes shahii and Muribaculum intestinale positively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while negatively correlating with serum IL-1β and TNF-α, whereas Sphingomonas panacis, Oscillibacter sp. PEA192, and Oscillibacter valericigenes exhibited the reverse pattern (P < 0.01). Moreover, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, and Blautia sp. N6H1-15 positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, and Dialister pneumosintes showed the reverse correlation (P < 0.01). The detailed correlation results at kingdom, phylum, class, order, family, genus, and species levels are presented in Supplementary File 1.
DATA AVAILABILITY:
The 16S rDNA sequencing datasets generated and analyzed during the current study are available in the National Center for Biotechnology Information (NCBI) Sequence Read Archive (SRA) repository under the BioProject accession number: PRJNA1281561. All other data generated or analyzed during this study are included in this article.
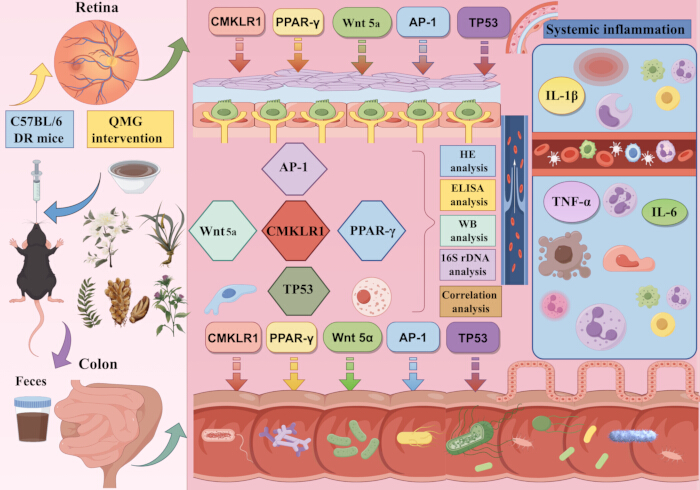
Figure 1: Graphical abstract. The graphical abstract shows the process of this study. Please click here to view a larger version of this figure.
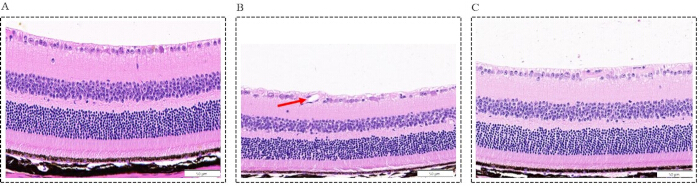
Figure 2: Morphological changes in the retina across the three groups (Scale bar = 50 µm, Magnification: ×400). (A) Blank group: representative photomicrographs of hematoxylin-eosin (HE)-stained retinal sections, showing an intact, well-organized retinal architecture with neatly arranged cellular layers; (B) Model group: representative photomicrographs of HE-stained retinal sections, showing marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in retinal ganglion cell (RGC) counts (P < 0.0001), pronounced thinning of the retinal thickness (P < 0.0001), and neovascular tufts penetrating the inner limiting membrane (indicated by a red arrow); (C) Intervention group: representative photomicrographs of HE-stained retinal sections, showing significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001), and restoration of retinal thinning (P < 0.01). Please click here to view a larger version of this figure.
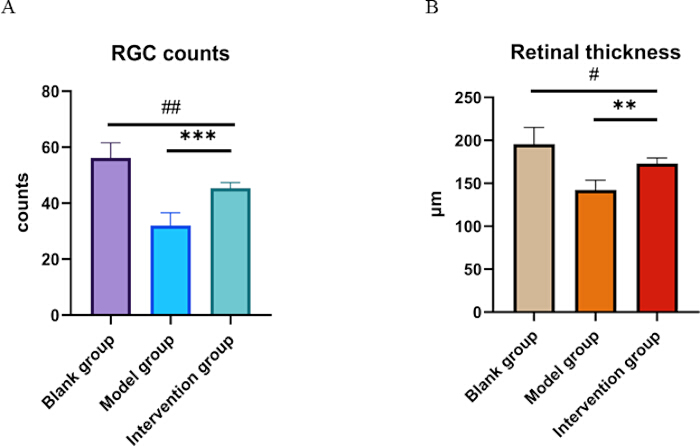
Figure 3: Histological quantification of RGC counts and retinal thickness. (A) Quantification of RGC counts in the ganglion cell layer. (B) Measurement of total retinal thickness (µm). Data are shown as mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01; compared with the model group: **P <0.01, ***P <0.001. Please click here to view a larger version of this figure.
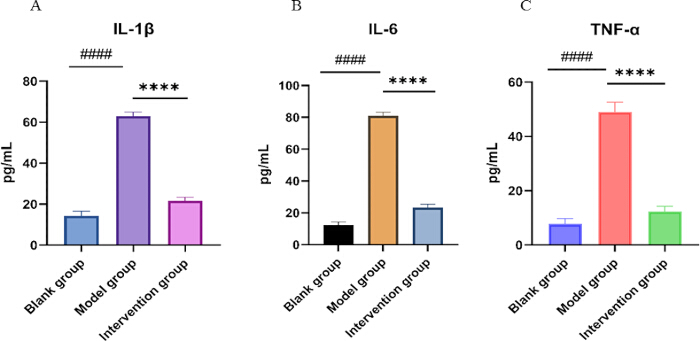
Figure 4: Serum concentrations of inflammatory cytokines in the three groups. Bar charts showing ELISA‑based quantification of serum IL‑1β (A), IL‑6 (B), and TNF‑α (C) levels in the blank control, model group, and intervention groups. Data are expressed as mean ± SD (n = 6 per group). Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001. Please click here to view a larger version of this figure.
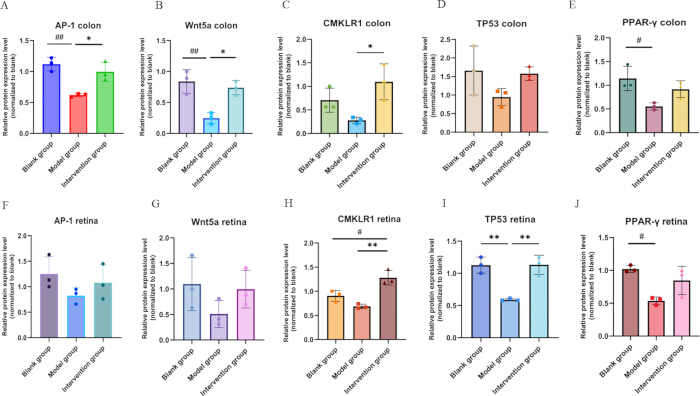
Figure 5: Bar chart of the expression levels of key regulatory proteins in the retina and colon. (A) Relative protein expression level (normalized to blank) of AP-1 in the colon (n = 3); (B) Relative protein expression level (normalized to blank) of Wnt5a in the colon (n = 3); (C) Relative protein expression level (normalized to blank) of CMKLR1 in the colon (n = 3); (D) Relative protein expression level (normalized to blank) of TP53 in the colon (n = 3); (E) Relative protein expression level (normalized to blank) of PPAR-γ in the colon (n = 3); (F) Relative protein expression level (normalized to blank) of AP-1 in the retina (n = 3); (G) Relative protein expression level (normalized to blank) of Wnt5a in the retina (n = 3); (H) Relative protein expression level (normalized to blank) of CMKLR1 in the retina (n = 3); (I) Relative protein expression level (normalized to blank) of TP53 in the retina (n = 3); (J) Relative protein expression level (normalized to blank) of PPAR-γ in the retina (n = 3). Compared with the blank group: #P < 0.05, ##P < 0.01; compared with the model group: *P < 0.05, **P < 0.01. Please click here to view a larger version of this figure.
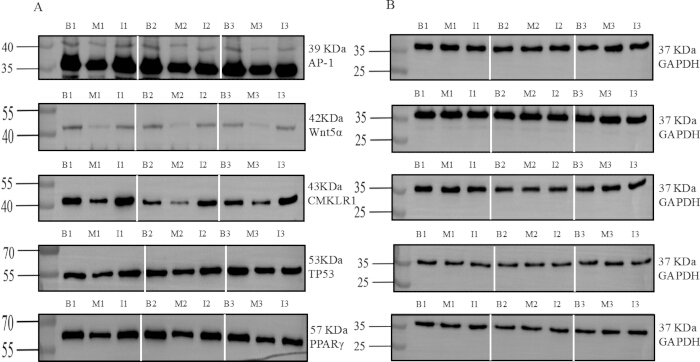
Figure 6: Representative WB grayscale blots of key regulatory proteins in the colon. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped Western blot (WB) images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
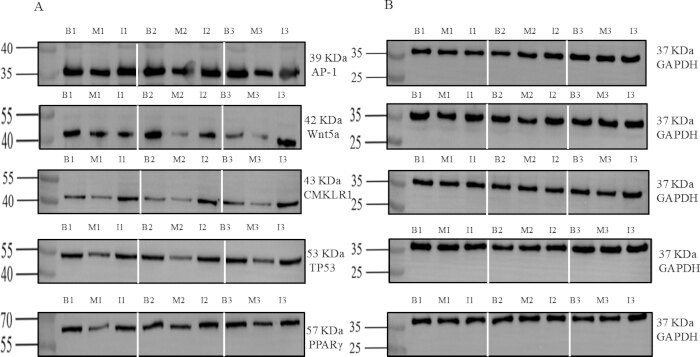
Figure 7: Representative WB grayscale blots of key regulatory proteins in the retina. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped WB images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
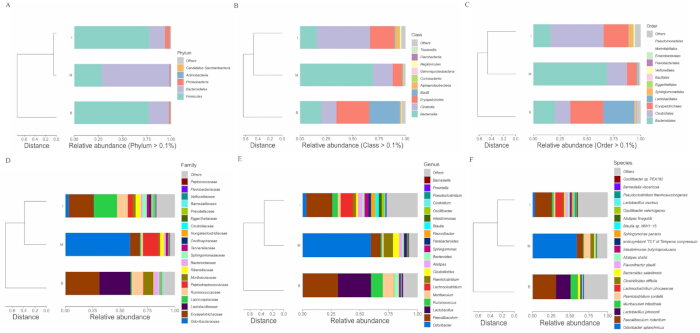
Figure 8: Hierarchical clustering of gut microbiota composition at different levels. Hierarchical clustering dendrogram based on Bray-Curtis dissimilarity among the blank control (B), model group(M), and intervention group (I). The branch length represents the degree of structural divergence. Stacked bar chart depicting the relative abundances of dominant phyla across the three groups. Phyla falling below the threshold are aggregated as “Others”. (A) Qiming granule (QMG) rebalances the gut microbiota composition at the phylum level; (B) QMG rebalances the gut microbiota composition at the class level; (C) QMG rebalances the gut microbiota composition at the order level; (D) QMG rebalances the gut microbiota composition at the family level; (E) QMG rebalances the gut microbiota composition at the genus level; (F) QMG rebalances the gut microbiota composition at the species level. Abbreviation: B, blank group; M, model group; I, intervention group. Please click here to view a larger version of this figure.
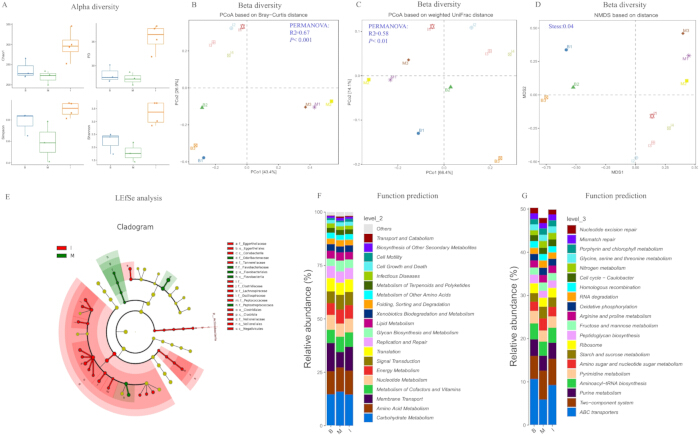
Figure 9: Analysis of gut microbiota diversity, differential abundance, and predicted functional pathways. (A) Alpha diversity analysis assessed by Chao1, PD, Simpson, and Shannon indices revealed that the intervention group exhibited higher microbial diversity than the model group, indicating that QMG treatment effectively restores gut microbial richness and evenness. (B) Beta diversity analysis assessed by principal coordinates analysis (PCoA) based on Bray-Curtis distance revealed significant differences among groups (PERMANOVA: R2=0.67, P < 0.001), indicating that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. (C) Beta diversity analysis assessed by PCoA based on weighted unique fraction (UniFrac) distance further confirmed the significant community shift (PERMANOVA: R2= 0.58, P < 0.01). (D) Beta diversity analysis assessed by non-metric multidimensional scaling (NMDS) ordination demonstrated a stress value of 0.04, suggesting that the QMG intervention significantly altered the global composition of the gut microbiota. (E) Cladogram of differential abundance analysis assessed by linear discriminant analysis effect size (LEfSe) revealed the primary differential microbiota between the model and intervention groups. Functional prediction of the gut microbiota at KEGG Level 2 (F) and KEGG Level 3 (G) suggested that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state. Please click here to view a larger version of this figure.
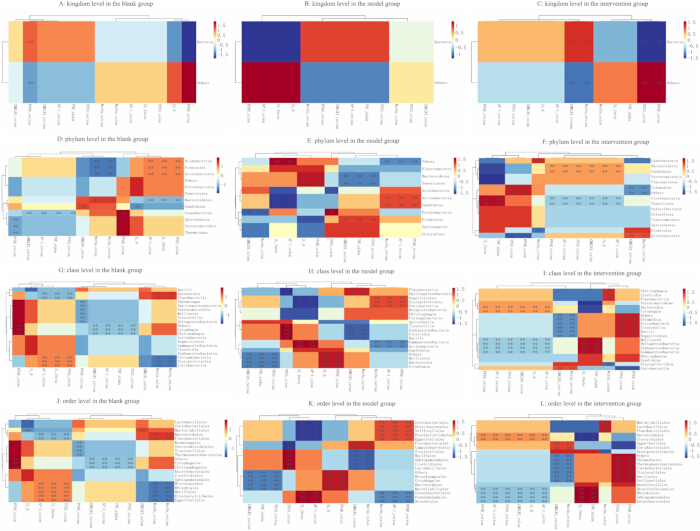
Figure 10: Global association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at kingdom level in the blank group; (B) Association of gut microbiota at kingdom level in the model group; (C) Association of gut microbiota at kingdom level in the intervention group; (D) Association of gut microbiota at phylum level in the blank group; (E) Association of gut microbiota at phylum level in the model group; (F) Association of gut microbiota at phylum level in the intervention group; (G) Association of gut microbiota at class level in the blank group; (H) Association of gut microbiota at class level in the model group; (I) Association of gut microbiota at class level in the intervention group; (J) Association of gut microbiota at order level in the blank group; (K) Association of gut microbiota at order level in the model group; (L) Association of gut microbiota at order level in the intervention group. Please click here to view a larger version of this figure.
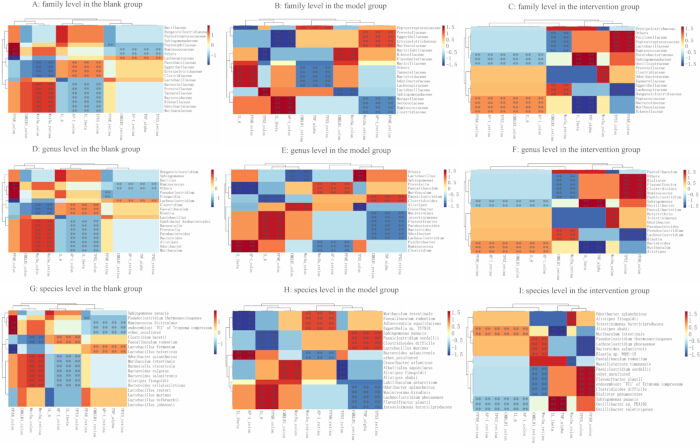
Figure 11: Fine association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at the family level in the blank group; (B) Association of gut microbiota at the family level in the model group. (C) Association of gut microbiota at family level in the intervention group; (D) Association of gut microbiota at genus level in the blank group; (E) Association of gut microbiota at genus level in the model group; (F) Association of gut microbiota at genus level in the intervention group; (G) Association of gut microbiota at species level in the blank group; (H) Association of gut microbiota at species level in the model group;(I) Association of gut microbiota at species level in the intervention group. Please click here to view a larger version of this figure.
| Groups (n = 6) | RGCs counts | Retinal thickness |
| Blank group | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| Model group | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| Intervention group | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
Table 2: Quantitative analysis of RGC counts and retinal thickness in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01, ####P <0.0001; compared with the model group: **P <0.01, ***P <0.001.
| Groups (n = 6) | IL-1β | IL-6 | TNF-α |
| Blank group | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| Model group | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| Intervention group | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
Table 3: Serum expression levels of IL-1β, IL-6, and TNF-α in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Cytokine concentrations were determined by enzyme‑linked immunosorbent assay (ELISA) and are reported in pg/mL. Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001.
Supplementary Figure 1: Experimental Design and Study Timeline. Schematic overview of the experimental design.Please click here to download this file.
Supplementary Figure 2: Original, full-length, uncropped WB images corresponding to Figure 6 and Figure 7. Raw images without modification contain all molecular weight markers in colon and retina blots for AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ, and loading control GAPDH. Molecular weight markers (kDa) are indicated. Lanes are labeled: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2(Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). The original blots were not subjected to high-contrast adjustments.Please click here to download this file.
Supplementary File 1: Detailed correlation analyses of gut microbiota with inflammatory and regulatory factors.Please click here to download this file.
Dyskusja
Retinopatia cukrzycowa (DR) jest złożonym powikłaniem naczyniowo-nerwowym wywołanym przez chroniczną hiperglikemię, stan zapalny i rozregulowanie metaboliczne2. Amerykańska Akademia Okulistyki (American Academy of Ophthalmology) dzieli DR na nieproliferacyjną i proliferacyjną, która charakteryzuje się wystąpieniem neowaskularyzacji23. Biorąc pod uwagę ograniczenia obecnych strategii terapeutycznych, badanie nowych mechanizmów stało się obiecującym kierunkiem w leczeniu DR. Warto zauważyć, że niedawne przełomy zidentyfikowały oś jelito–siatkówka jako kluczowy, choć niewystarczająco wykorzystany cel terapeutyczny w DR. Oś jelito–siatkówka, po raz pierwszy wprowadzona i opisana przez Sheldona Rowana w 2017 roku6, zyskała na znaczeniu w badaniach nad procesami patofizjologicznymi chorób oczu. Jednak specyficzne mechanizmy molekularne leżące u podstaw roli osi jelito–siatkówka w patogenezie i progresji DR pozostają niejasne, co utrudnia opracowanie i kliniczne zastosowanie strategii terapeutycznych celujących w tę oś.
W niniejszym badaniu systematycznie oceniliśmy skuteczność i mechanizmy działania QMG przeciwko DR. Wyniki te dostarczają wstępnych dowodów na to, że QMG łagodzi histopatologiczne uszkodzenia siatkówki, hamuje systemowy stan zapalny, przywraca homeostazę mikrobioty jelitowej i dwukierunkowo moduluje kluczowe białka regulacyjne (sieć regulacyjną skoncentrowaną wokół CMKLR1) zarówno w okrężnicy, jak i w siatkówce, co czyni QMG potencjalnym modulatorem osi jelito-siatkówka. Przewlekły, niskostopniowy stan zapalny w obrębie całego organizmu jest cechą charakterystyczną DM oraz głównym czynnikiem napędzającym uszkodzenia mikro naczyniowe siatkówki i progresję DR24. Wyniki testów ELISA wykazały, że poziomy IL-1β, IL-6 i TNF-α w surowicy były znacznie podwyższone u myszy w modelu DR (P < 0,01), co potwierdza występowanie silnej systemowej odpowiedzi zapalnej w stanie DR. Niekontrolowane uwalnianie tych cytokin może prowadzić do rozszczelnienia bariery krew-siatkówka, promować apoptozę RGC i napędzać patologiczną neowaskularyzację. Po interwencji z użyciem QMG poziomy tych cytokin uległy znacznemu obniżeniu (P < 0,01), podczas gdy przywrócono integralność strukturalną siatkówki, zwiększono przeżywalność RGC i zachowano grubość siatkówki. Wyniki te wskazują, że ochronne działanie QMG na siatkówkę jest ściśle powiązane z jego silną systemową aktywnością przeciwzapalną. Co istotne, ten systemowy efekt przeciwzapalny nie występuje w izolacji, lecz jest powiązany z indukowaną przez QMG modulacją mikrobioty jelitowej i przywróceniem kluczowych białek regulacyjnych w okrężnicy, co sugeruje, że QMG może wywierać swoje efekty terapeutyczne poprzez oś „jelita-systemowy stan zapalny-siatkówka”.
Aby dalej wyjaśnić mechanizm molekularny, za pomocą którego QMG wywiera swoje działanie przeciwdziałające DR wzdłuż osi jelito–siatkówka, zbadano ekspresję białek sieci regulacyjnej skupionej wokół CMKLR1 (obejmującej CMKLR1, Wnt5a, TP53, AP-1 oraz PPAR-γ) zarówno w tkankach jelita grubego, jak i siatkówki. Wyniki wykazały, że po indukowaniu modelu DR wszystkie pięć białek wykazało spójną tendencję spadkową zarówno w jelicie grubym, jak i w siatkówce, co sugeruje, że komunikacja sygnałowa między jelitem a siatkówką może być systemowo zablokowana w warunkach DR. Po interwencji z użyciem QMG poziom CMKLR1 uległ znacznemu zwiększeniu zarówno w jelicie grubym, jak i w siatkówce (P < 0,05 oraz P < 0,01), co wskazuje, że QMG może przywracać dwukierunkową komunikację wzdłuż osi jelito–siatkówka poprzez systemową aktywację CMKLR1. Ponadto QMG znacząco przywróciło ekspresję AP-1 i Wnt5a w jelicie grubym, a także ekspresję TP53 w siatkówce, co sugeruje, że różne białka mogą pełnić tkankowo specyficzne role funkcjonalne wzdłuż tej osi: AP-1 i Wnt5a są bardziej wrażliwymi respondentami na QMG w jelicie grubym, podczas gdy TP53, jako regulator apoptozy, odgrywa ważniejszą rolę w neuroprotekcji siatkówki. Dalsza analiza korelacji wykazała, że ekspresja AP-1, CMKLR1, PPAR-γ i Wnt5a w jelicie grubym była znacząco ujemnie skorelowana z systemowymi poziomami cytokin zapalnych (IL-1β, IL-6, TNF-α) (P < 0,05 do P < 0,01), natomiast nie zaobserwowano bezpośredniej korelacji między cytokinami w surowicy a ekspresją białek w siatkówce. Ta rozbieżność ma istotne znaczenie mechanistyczne: QMG może działać głównie na mikrośrodowisko jelitowe poprzez przywrócenie ekspresji kluczowych białek regulacyjnych w jelicie grubym, hamując tym samym systemowy stan zapalny; z kolei regeneracja białek siatkówki może być osiągana poprzez drogi pośrednie, takie jak translokacja metabolitów pochodzących z mikrobioty jelitowej do krwiobiegu, które następnie zdalnie regulują kaskady sygnalizacyjne siatkówki, zamiast być bezpośrednio pośredniczone przez systemowe czynniki zapalne. Wynik ten wspiera model regulacji osiowej „jelito–systemowy stan zapalny–siatkówka” i dostarcza kluczowych dowodów mechanistycznych na efekt terapeutyczny QMG w DR poprzez oś jelito–siatkówka. spośród badanych celów, CMKLR1 wykazało znaczące zmiany zarówno w tkankach siatkówki, jak i jelita grubego, jawiąc się jako potencjalny główny biomarker łączący oś jelito–siatkówka. CMKLR1 było powiązane z metabolizmem glikolipidów, ciężkością DR oraz modulacją mikrobioty jelitowej w poprzednich badaniach25,26,27,28,29,30, co sugeruje, że jego różnicowa ekspresja wzdłuż osi jelito–siatkówka może odzwierciedlać jego udział w wielu procesach patologicznych. Odkrycia te pozycjonują CMKLR1 jako obiecującego kandydata na biomarker do diagnostyki DR i interwencji terapeutycznej, co uzasadnia dalszą walidację mechanistyczną.
Podczas gdy CMKLR1 pełni funkcję centralnego węzła w osi jelito–siatkówka, efekt terapeutyczny QMG jest osiągany poprzez wielowymiarową sieć regulacyjną, w której Wnt5a, TP53, AP-1 i PPAR-γ zapewniają niezbędne wsparcie synergiczne. Sygnalizacja Wnt ma kluczowe znaczenie dla homeostazy nabłonka jelitowego i zdrowia jelita grubego, w tym odgrywa rolę w zachowaniu integralności nabłonka, modulacji zapalenia oraz ochronie błony śluzowej pośredniczonej przez mikrobiotę31,32,3,34. PPAR-γ reguluje odpowiedzi zapalne i wykazano, że hamuje aktywowane lipidami fagocyty w DR oraz promuje przeżycie fotoreceptorów poprzez modulację mikrogleju35,36,37. AP-1 służy jako czynnik transkrypcyjny, za pośrednictwem którego metabolity mikrobioty jelitowej, takie jak kwas deoksycholowy, wpływają na homeostazę zapalną i immunologiczną38,39,40,41. TP53 uczestniczy w autofagii, apoptozie i uszkadzaniu neuronów siatkówki w warunkach hiperglikemii42,43,4,45. Wspólnie węzły sygnalizacyjne te tworzą wzajemnie powiązaną sieć, która łączy dynamikę mikrobioty jelitowej z patologią siatkówki, co skłoniło nas do zbadania, czy QMG moduluje tę sieć wzdłuż osi jelito–siatkówka.
Kluczowy mechanizm regulacji stanu zapalnego w organizmie wywodzi się z ekosystemu jelitowego. Analiza sekwencjonowania 16S rDNA wykazała indukowaną przez cukrzycę dysbiozę strukturalną w grupie modelowej, charakteryzującą się znaczną nierównowagą w stosunku Firmicutes/Bacteroidetes, wzbogaceniem taksonów potencjalnie patogennych (np. Odoribacter i Clostridioides) oraz ubytkiem taksonów korzystnych (np. Lactobacillus i Faecalibaculum). Co istotne, leczenie QMG zadziałało jako środek przywracający mikrobiotę, odwracając te patologiczne zmiany poprzez: (i) przywrócenie homeostazy mikrobiologicznej: normalizację proporcji kluczowych rodzin i rodzajów (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) w kierunku poziomu grupy kontrolnej; (ii) ukierunkowaną modulację patobiontów: hamowanie związanego z cukrzycą nadmiernego wzrostu Odoribacter splanchnicus i Clostridioides difficile; (iii) promowanie budowy korzystnej społeczności: indukcję proliferacji taksonów przeciwzapalnych lub produkujących metabolity, takich jak Lachnoclostridium, Blautia oraz Flavonifractor plautii. Ponadto analizy różnorodności oraz wielopoziomowa analiza korelacji Spearmana wykazały, że interwencja QMG skutecznie przywraca równowagę w rdzeniowym składzie wielopoziomowym w sposób sprzyjający ochronnym interakcjom gospodarz-mikrob wzdłuż osi jelito–siatkówka. Wynik ten nie tylko potwierdza regulacyjny wpływ QMG na mikrobiotę jelitową, ale także ujawnia potencjalną strategię terapeutyczną, w której QMG koordynuje przebudowę mikrobioty z aktywnością kluczowych białek regulatorowych (np. IL-6, TP53), aby wspólnie tłumić systemowy stan zapalny i w ten sposób łagodzić retinopatię cukrzycową.
Ostatnie badania mieć potwierdzono, że TCM wywiera wielokierunkową regulację na oś mikrobiota-metabolizm-układ odpornościowy, co odróżnia te metody od jednokierunkowych środków farmaceutycznych46Narastające dowody wykazały potencjał terapeutyczny QMG w leczeniu DR oraz powiązanych schorzeń ocznych. Wieloośrodkowe randomizowane badanie kontrolowane wykazało, że QMG znacząco skróciło czas krążenia tętniczo-żylnego w siatkówce u pacjentów z DR, co sugeruje poprawę przepływu krwi w siatkówce oraz zmniejszenie niedotlenienia.47Metaanalizy dodatkowo potwierdziły, że QMG w połączeniu z leczeniem konwencjonalnym znacząco poprawia grubość centralną plamki, ostrość wzroku oraz ogólny wskaźnik skuteczności w obrzęku plamki żółtej w przebiegu cukrzycy.48oraz wydłużenie czasu przerwania filmu łzowego i zwiększenie wydzielania łez u pacjentów z zespołem suchego oka49U pacjentów z uszkodzeniem nerwów związanym z NPDR, QMG wykazało niegorszą skuteczność w porównaniu z dobesylanem wapnia w zachowaniu grubości warstwy włókien nerwowych siatkówki oraz powierzchni beznaczyniowej plamki.50Badania mechanistyczne wykazały, że QMG chroni przed uszkodzeniem siatkówki poprzez wiele szlaków, w tym poprzez hamowanie piroptozy komórek Müllera oraz stanu zapalnego o charakterze immunologicznym za pośrednictwem szlaku P2X7R/NLRP3.51, aktywację szlaku sygnalizacyjnego PI3K/Akt w celu ograniczenia apoptozy oraz modulację białek połączeń ścisłych w celu zachowania integralności bariery krew-siatkówka52Analizy farmakologii sieciowej zidentyfikowały w QMG wiele związków bioaktywnych, które działają synergistycznie na cele związane z DR.16, a badania kliniczne nie wykazały wystąpienia ciężkich zdarzeń niepożądanych, co wskazuje na korzystny profil bezpieczeństwa50Skuteczność terapeutyczna QMG przypisuje się synergistycznemu działaniu jego aktywnych składników, w tym kwercetyny, kaempferolu, izorhamnetyny, formononetyny oraz β‑sitosterol, które łącznie wykazują działanie przeciwzapalne, przeciwutleniające i przeciwapoptotyczne poprzez oddziaływanie na IL-6 oraz TNF‑α, TP53 oraz AP‑153,54,55,56,57,58,59Niniejsze badanie rozszerza tę wiedzę, wykazując, że działanie ochronne QMG jest pośredniczone również poprzez modulację osi jelito–siatkówka, a konkretnie poprzez przywrócenie homeostazy mikrobioty jelitowej i regulację sieci molekularnej scentrowanej wokół CMKLR1 w celu zahamowania systemowego stanu zapalnego i złagodzenia uszkodzeń siatkówki.
Należy odnotować kilka ograniczeń niniejszego badania, które uzasadniają dalsze analizy w przyszłych pracach badawczych. Po pierwsze, związek przyczynowo-skutkowy między zmianami w mikrobiocie jelitowej a poprawą funkcji siatkówki wymaga dalszej walidacji. Choć zaobserwowano silne korelacje między przebudową mikrobioty indukowaną przez QMG a fenotypami ochronnymi siatkówki, w przyszłych badaniach cenne byłyby eksperymenty bezpośredniego wnioskowania przyczynowego, takie jak przeszczep mikrobioty kałowej, modele zwierzęce wolne od drobnoustrojów (germ-free) lub usuwanie mikrobioty za pomocą antybiotyków, aby potwierdzić tę zależność. Po drugie, do profilowania składu mikrobiologicznego wykorzystano sekwencjonowanie 16S rDNA, co zapewnia odpowiednią rozdzielczość taksonomiczną na poziomie rodzaju i wyższym, lecz ma ograniczoną zdolność dostarczania informacji funkcjonalnych na poziomie szczepu lub precyzyjnego potencjału metabolicznego. W kolejnych badaniach zostaną przeprowadzone sekwencjonowanie metagenomiczne lub analizy metabolomiczne w celu zidentyfikowania kluczowych funkcjonalnych ścieżek mikrobiologicznych regulowanych przez QMG. Po trzecie, zmiany mikrobiologiczne oceniano wyłącznie w punkcie końcowym eksperymentu, co uniemożliwiło dynamiczne śledzenie ewolucji czasowej rekonstrukcji mikrobioty podczas interwencji z użyciem QMG. Pobieranie próbek wzdłużnych w przyszłych badaniach pomoże określić kinetykę przebudowy mikrobioty indukowanej przez QMG oraz jej relację czasową z ochroną siatkówki. Po czwarte, choć analiza histopatologiczna wykazała cieńczenie siatkówki, utratę RGC oraz kępki neowaskularne, przyszłe badania powinny zgłębić protokoły wielokrotnych iniekcji STZ i genetyczne modele cukrzycy, a także zapewnić bardziej kompleksową charakterystykę fenotypu DR.
Podsumowując, niniejsze badanie wykazuje, że QMG łagodzi DR poprzez powiązanie sieci molekularnej skoncentrowanej wokół CMKLR1 z zapaleniem ogólnoustrojowym za pośrednictwem osi jelito-siatkówka. Mechanizm działania QMG przejawia się na trzech poziomach: na poziomie mikrobiologicznym QMG odwraca wywołaną cukrzycą dysbiozę jelitową (np. przywracając stosunek Firmicutes/Bacteroidetes, hamując Odoribacter i Clostridioides oraz promując pożyteczne bakterie, takie jak Faecalibaculum); na poziomie molekularnym QMG reguluje ścieżkę CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 i łagodzi zapalenie ogólnoustrojowe; na poziomie tkankowym QMG chroni morfologię siatkówki. Wyniki te wskazują, że QMG jest obiecującą strategią terapeutyczną opartą na osi jelito-siatkówka w leczeniu DR i stanowią podstawę mechanistyczną dla zastosowania TCM w leczeniu powikłań cukrzycy.
Oświadczenia
Autorzy oświadczają, że nie mają żadnych znanych konkurencyjnych interesów finansowych ani osobistych relacji, które mogłyby wpłynąć na pracę przedstawioną w niniejszej publikacji.
Podziękowania
Autor pragnie podziękować wszystkim członkom swojego zespołu, którzy zapewnili ogromne wsparcie i pomoc w realizacji niniejszych badań.
Badania te były wspierane przez Narodową Fundację Nauk Naturalnych Chin (grant nr: 82474580) oraz Projekt Swobodnych Badań Fundacji Szpitalnej w Szpitalu Uniwersytetu Medycyny Tradycyjnej Chińskiej w Chengdu (nr 23ZYTS1601).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Przeciwciało monoklonalne AP-1 | Proteintech | 6313-1-IG | 1:500 |
| Przeciwciało poliklonalne CMKLR1 | Affinity | AF5291 | 1:100 |
| Przeciwciało poliklonalne GAPDH | Affinity | AF7021 | 1:50 |
| GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM072 | 1:100 |
| GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR072 | 1:10 |
| GraphPad Prism | / | version 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | version 6.0 | |
| Platforma Luoning Bio-Cloud | http://www.biomediv.cn/login.html | ||
| Zestaw ELISA dla mysiej IL-1β(Interleukiny 1 Beta) | Elabscience | E-EL-M037 | Wykrywanie cytokin w surowicy |
| Zestaw ELISA dla mysiej IL-6(Interleukiny-6) | Elabscience | E-EL-M04 | Wykrywanie cytokin w surowicy |
| Zestaw ELISA dla mysiego TNF-α(Czynnika martwicy nowotworów Alpha) | Elabscience | E-EL-M3063 | Wykrywanie cytokin w surowicy |
| NanoFilt | / | version 2.7.1 | |
| Sekwenator Nanopore GridION | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | Skaner 3DHISTECH Pannoramic SCAN | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| Przeciwciało poliklonalne PPAR gamma (PPAR-γ) | ImmunoWay | bs-0530R | 1:100 |
| Python | / | version 3.7.4 | |
| Qiming Granule | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | Chinese National Drug Approval No. Z209036 | 0.9 g/kg, zgłębnik doustny |
| Język programowania R | / | version 4.0.3 | |
| Baza danych SILVA | / | version 138 | |
| Streptozotocyna (STZ) | Sigma-Aldrich | S0130 | 35 mg/kg, i.p. |
| Przeciwciało poliklonalne TP53 | Abcam | ab13142 | 1:100 |
| Usearch | / | version 10.0.240 | |
| Przeciwciało poliklonalne Wnt5a | Proteintech | 5184-1-AP | 1:10 |
| Zestaw Zymo Research BIOMICS DNA Microprep Kit | Zymo Research | D4301 | Ekstrakcja gDNA z kału |
Bibliografia
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.