Ekspresja plazmowego LINC00707 jest podwyższona w przypadku urazów rdzenia kręgowego i nasila zapalenie oraz stres oksydacyjny pośredniczone przez mikroglej poprzez oś sygnałową miR-145-5p/TRAF6. Wyciszenie LINC0707 łagodzi te odpowiedzi patologiczne, co podkreśla jego potencjał jako celu terapeutycznego.
Artykuł badawczy
Wyciszanie LINC0707 łagodzi stan zapalny i stres oksydacyjny w mikrogleju BV2 stymulowanym LPS poprzez oś miR-145-5p/TRAF6 w urazie rdzenia kręgowego
110 wyświetleń
⸱
11 września 2026
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Uraz rdzenia kręgowego (SCI) powoduje dożywotnią niepełnosprawność, głęboko obniża jakość życia i generuje znaczne obciążenie socjoekonomiczne. W niniejszym badaniu zbadano rolę LINC0707 w SCI poprzez regulację osi sygnalizacyjnej miR-145-5p/TRAF6. Próbki osocza od 30 zdrowych ochotników oraz 75 pacjentów z SCI poddano analizie ekspresji LINC0707, miR-145-5p oraz TRAF6 przy użyciu metody RT-qPCR. U pacjentów z SCI oceniono powiązania między poziomami LINC0707 w osoczu a czynnikami prozapalnymi. Komórki mikrogleju BV2 poddano działaniu LPS w stężeniu 10 ng/mL, a następnie zmierzono czynniki związane ze stanem zapalnym i stresem oksydacyjnym. Interakcje molekularne oceniono za pomocą podwójnego testu reporterowego lucyferazy. Do identyfikacji czynników związanych z ekspresją LINC0707 wykorzystano analizę regresji logistycznej. Poziomy LINC0707 i TRAF6 w osoczu były podwyższone u pacjentów z SCI, podczas gdy poziomy miR-145-5p były obniżone. Poziomy LINC0707 w osoczu korelowały dodatnio z poziomami czynników zapalnych w osoczu. LINC0707 działał jako molekularna gąbka dla miR-145-5p, a TRAF6 był genem docelowym miR-145-5p. Inhibicja LINC0707 prowadziła do zmniejszenia poziomu czynników zapalnych, substancji wywołujących stres prooksydacyjny oraz poziomów mRNA TRAF6 w komórkach BV2. Inhibicja miR-145-5p wywoła przeciwstawne efekty. Wyniki te sugerują, że podwyższona ekspresja LINC0707 wiąże się z ciężkością urazu SCI, a wyciszenie LINC00707 może łagodzić zapalenie i stres oksydacyjny pośredniczone przez mikroglej poprzez regulację osi sygnalizacyjnej miR-145-5p/TRAF6.
Wprowadzenie
Uraz rdzenia kręgowego (SCI) jest stanem urazowym, który uszkadza rdzeń kręgowy, będący kluczowym elementem ośrodkowego układu nerwowego. SCI bezpośrednio przerywa szlaki przewodzenia neuronalnego między rdzeniem kręgowym a mózgiem, powodując poważne zaburzenia funkcji motorycznych, sensorycznych i autonomicznych1,2. Badania epidemiologiczne wykazały roczną zapadalność na poziomie około 5 przypadków na 10 0 osób, przy czym śmiertelność związana z chorobą sięga 16,7%3,4. Kanadyjska ankieta oszacowała dożywotni koszt rehabilitacji każdego pacjenta z SCI na kwotę sięgającą 36 0 US$5. Wysoka zapadalność, śmiertelność oraz znaczne koszty związane z diagnostyką, leczeniem i rehabilitacją sprawiają, że SCI stanowi poważne wyzwanie kliniczne, wymagające udoskonalonych strategii terapeutycznych.
Patologiczny przebieg SCI składa się z dwóch etapów: uszkodzenia pierwotnego i wtórnego. Uszkodzenie pierwotne wynika z traumatycznej kompresji mechanicznej lub przerwania tkanki rdzenia kręgowego, podczas gdy uszkodzenie wtórne jest pośredniczone przez procesy patologiczne, w tym stan zapalny i stres oksydacyjny6,7. W warunkach fizjologicznych neuroinflamacja pośredniczona przez mikroglej przyczynia się do homeostazy ośrodkowego układu nerwowego8,9,10. Jednak po SCI mikroglej ulega nadmiernej aktywacji i uwalnia duże ilości mediatorów prozapalnych1,12. Mediatory te wywołują nadmierną produkcję reaktywnych form tlenu (ROS), co prowadzi do uszkodzenia i śmierci neuronów oraz zaostrza wtórne uszkodzenie rdzenia kręgowego13,14. Zatem hamowanie nadmiernej aktywacji mikrogleju i przerywanie kaskady zapalnej stanowią obiecujące strategie terapeutyczne w celu promowania regeneracji neurologicznej i poprawy wyników po SCI.
Długie niekodujące RNA (lncRNA) to klasa niekodujących RNA o długości przekraczającej 20 nukleotydów, które nie posiadają potencjału kodującego białka15. Początkowo uważane za transkrypcyjny „szum”, lncRNA są obecnie uznawane za istotne regulatory różnorodnych procesów fizjologicznych i patologicznych16. Niedawne badania wykazały, że lncRNA odgrywają krytyczną rolę w uszkodzeniach neuronów. Długie międzygenowe niekodujące białka RNA 707 (LINC0707) okazało się ważnym regulatorem zaburzeń układu nerwowego. Wcześniejsze badania donosiły, że LINC0707 zaostrza urazowe uszkodzenie mózgu poprzez nasilenie zapalenia pośredniczonego przez mikroglej17. Dodatkowo Zhu et al. wykazali, że wyciszenie LINC0707 znacząco łagodzi indukowany lipopolisacharydem (LPS) stan zapalny oraz apoptozę w komórkach PC1218. Wyniki te stanowią wstępną podstawę teoretyczną do badania udziału LINC00707 w SCI. Pozostaje jednak do wyjaśnienia, czy LINC0707 reguluje zapalenie pośredniczone przez mikroglej podczas SCI.
LncRNA działają jako molekularne gąbki poprzez mechanizm konkurencyjnego endogennego RNA (ceRNA), sekwestrując mikroRNA (miRNA) i regulując ekspresję genów docelowych w dalszych etapach kaskady19. Ten wzorzec regulacyjny jest szeroko zaangażowany w patogenezę wielu chorób. Co istotne, miR-145-5p jest znacząco obniżony w tkankach po SCI20 oraz podczas uszkodzenia indukowanego LPS21, a jego nadekspresja skutecznie łagodzi mikroglejalne odpowiedzi zapalne i stres oksydacyjny2. Czynnik 6 związany z receptorem czynnika martwicy nowotworu (TRAF6) również odgrywa kluczową rolę w patologii SCI23,24,25. Niemniej jednak, kwestia tego, czy LINC0707, miR-145-5p i TRAF6 wywierają skoordynowane funkcje regulacyjne w SCI, pozostaje do wyjaśnienia.
W niniejszym badaniu stwierdzono znaczną nadekspresję LINC00707 w komórkach mikrogleju stymulowanych LPS. Wysunęliśmy zatem hipotezę, że LINC0707 może działać jako regulator prozapalny w mikrogleju, a jego wyciszenie może osłabić odpowiedź neurozapalną, łagodząc tym samym progresję patologiczną SCI. W badaniu tym sprawdzono, czy LINC00707 reguluje odpowiedzi zapalne mikrogleju i przyczynia się do patogenezy SCI.
Protokół
Badanie to zostało zatwierdzone przez Komisję Etyki Pierwszego Szpitala w Zhangjiakou (nr zatwierdzenia 2024-KY-18). Wszyscy uczestnicy zostali poinformowani o celach badania oraz potencjalnych ryzykach i przed włączeniem do grupy badawczej wyrazili pisemną zgodę. Próbki krwi żylnej pobrano od zdrowych osób kontrolnych podczas rutynowych badań fizykalnych oraz od pacjentów z SCI bezpośrednio po przyjęciu do szpitala. Pomiary laboratoryjne zostały wykonane przez szpitalne laboratorium kliniczne. Narzędzia badawcze wykorzystane w niniejszym protokole wymieniono w Tabeli Materiałów.
1. Uczestnicy
W okresie od stycznia 2023 do stycznia 2025 roku z Pierwszego Szpitala w Zhangjiakou zrekrutowano łącznie 75 pacjentów z SCI. Kryteria włączenia obejmowały SCI potwierdzone w tomografii komputerowej (CT) lub rezonansie magnetycznym (MRI) oraz czas od momentu urazu do przyjęcia do szpitala wynoszący ≤ 12 h. Kryteria wykluczenia obejmowały: uraz rdzenia kręgowego lub mózgu bądź przebyty zabieg chirurgiczny w ciągu ostatnich 6 miesięcy; ciężką chorobę sercowo-naczyniową, w tym zawał mięśnia sercowego lub arytmię; ciążę lub okres laktacji; a także nowotwory złośliwe, upośledzoną funkcję wątroby lub nerek, ciężką chorobę naczyniowo-mózgową lub choroby zakaźne.
Zgodnie ze standardami klasyfikacji neurologicznej American Spinal Injury Association (ASIA)26, 75 pacjentów z SCI podzielono na grupy: z prawidłową funkcją neurologiczną (n = 21), z niepełnym SCI (n = 36) oraz z pełnym SCI (n = 18). Rozkład miejsc urazu przedstawiał się następująco: odcinek szyjny 36,0%, odcinek piersiowy 30,7% oraz odcinek lędźwiowy 3,3%. Do grupy kontrolnej w sposób losowy zakwalifikowano 30 zdrowych osób dobranych do populacji badawczej. Dla wszystkich uczestników zebrano podstawowe informacje kliniczne. Kryteria włączenia dla osób zdrowych obejmowały: brak historii urazów rdzenia kręgowego lub mózgu, operacji lub zaburzeń neurologicznych; brak historii przewlekłych chorób zapalnych, chorób autoimmunologicznych lub nowotworów; brak ciężkich chorób sercowo-naczyniowych, wątroby lub nerek; brak infekcji ostrych lub przewlekłych w ciągu ostatnich 4 tygodni; brak ciąży lub laktacji; oraz dopasowanie pod względem wieku i płci do grupy SCI.
Do oceny niezależności funkcjonalnej w czynnościach dnia codziennego wykorzystano skalę Functional Independence Measure (FIM). Maksymalna liczba punktów w skali FIM wynosi 126. W celu oceny funkcji czuciowych i ruchowych zastosowano punktację dla czucia dotykowego, acmestezji oraz funkcji motorycznych. Maksymalna liczba punktów dla czucia dotykowego i acmestezji wynosiła 12, a maksymalna punktacja motoryczna wynosiła 100. Niższe wyniki wskazują na cięższy stopień uszkodzenia neurologicznego.
2. Hodowla komórek, konstrukcja modelu i transfekcja
Unieśmiertelnione komórki mikrogleju mysiego BV2 otrzymano z Centrum Zasobów Komórkowych Szanghajskiego Instytutu Biotechnologii. Komórki hodowano w wysokoglukozowej pożywce DMEM (Dulbecco's Modified Eagle Medium) uzupełnionej o 10% płodowej surowicy bydlęcej (FBS), penicylinę (10 U/mL) i streptomycynę (10 U/mL). Komórki utrzymywano w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO₂.
W celu konstrukcji modelu komórki BV2 stymulowano dawkami 0, 10, 20, 50, 10, 150 lub 20 ng/mL lipopolisacharydu (LPS) przez 24 h. Optymalne stężenie LPS wybrano na podstawie wyników eksperymentalnych.
Do transfekcji wykorzystano komórki BV2 wysiane w płytkach 6-dołkowych, które poddano procesowi po osiągnięciu odpowiedniego stopnia konfluencji. Odczynnik do transfekcji zastosowano w ilości 1.5 µL/well zgodnie z instrukcją producenta. Po 6 h medium hodowlane zastąpiono świeżym medium, a komórki inkubowano przez kolejne 24 h. Konstrukt do knockdownu LINC0707, odpowiadający kontrolę negatywną, oligonukleotyd miR-145-5p oraz odpowiedni oligonukleotyd kontrolny zastosowano w stężeniu 50 nM na dołek. Wszystkie eksperymenty z transfekcją powtórzono niezależnie co najmniej 5 razy, wykonując 3 równoległe powtórzenia w każdym niezależnym doświadczeniu. Dane poddano analizie statystycznej w oparciu o wyniki z co najmniej 5 niezależnych eksperymentów.
3. ELISA
Nadnadkładki hodowlane z transfekowanych i stymulowanych LPS komórek BV2 pobrano poprzez wirowanie przy 12,0 × g przez 10 min, a poziomy interleukiny-1β (IL-1β), IL-6 oraz czynnika martwicy nowotworów-α (TNF-α) zmierzono przy użyciu odpowiednich zestawów ELISA. W skrócie, analizę przeprowadzono poprzez sekwencyjną inkubację z biotynilowanym przeciwciałem, koniugatem HRP-streptawidyny oraz substratem TMB zgodnie z instrukcjami producenta. Absorbancję zarejestrowano przy 450 nm za pomocą czytnika mikropłytek. Poziomy cytokin wyznaczono na podstawie krzywych wzorcowych. Każdą próbkę zmierzono w trzech powtórzeniach, a przeprowadzono 6 niezależnych eksperymentów.
4. Pomiar ROS
Wewnątrzkomórkowe poziomy ROS w komórkach BV2 stymulowanych LPS zmierzono przy użyciu zestawu do oznaczania reaktywnych form tlenu. W skrócie, komórki inkubowano z 10 µmol/L DCFH-DA w temperaturze 37 °C przez 20 min. Po inkubacji odlano nadsącz, a komórki przemyto 3 razy solą fizjologiczną z buforem fosforanowym (PBS), aby usunąć nadmiar sondy pozakomórkowej. Intensywność fluorescencji zmierzono za pomocą czytnika mikropłytek przy długościach fal wzbudzenia i emisji odpowiednio 48 nm i 525 nm. Względne poziomy ROS obliczono na podstawie intensywności fluorescencji. Wszystkie próbki analizowano w trzech powtórzeniach, a cały eksperyment powtórzono niezależnie co najmniej 5 razy.
5. Oznaczanie poziomu malondialdehydu, dysmutazy ponadtlenkowej i glutationu
Zabrano potraktowane komórki BV2 i przygotowano homogenaty komórkowe. Próbki wirowano przy 12 0 × g przez 10 min w temperaturze 4 °C w celu uzyskania supernatantu. Do oznaczenia poziomów malondialdehydu (MDA), dysmutazy ponadtlenkowej (SOD) i glutationu (GSH) w supernatantach komórkowych wykorzystano komercyjne zestawy do detekcji zgodnie z instrukcjami producenta. Wszystkie próbki analizowano w trzech powtórzeniach, a cały eksperyment powtórzono niezależnie co najmniej 5 razy.
6. Dualny test reporterowy lucyferazy
Fragmenty 3' niekodującej regionu (3' UTR) LINC0707 oraz TRAF6 zawierające przewidywane miejsca wiązania miR-145-5p, wraz z odpowiadającymi im sekwencjami zmutowanymi, sklonowano do wektora reporterowego lucyferazy pmirGLO w celu uzyskania konstruktów reporterowych typu dzikiego (WT-LINC0707 i WT-TRAF6) oraz zmutowanych (MUT-LINC0707 i MUT-TRAF6). Komórki BV2 poddano ko-transfekcji konstruktami reporterowymi oraz oligonukleotydami miR-145-5p, a następnie inkubowano przez 24 h. Następnie zebrano komórki i zmierzono aktywność lucyferazy świetlika oraz Renilla za pomocą czytnika mikropłytek.
7. RT-qPCR
Kwas RNA całkowity wyekstrahowano przy użyciu odczynnika do ekstrakcji RNA. Jakość RNA oceniono za pomocą pomiaru OD₂₆₀/OD₂₈₀ stosunek, przy czym wartości między 1,8 a 2,0 uznaje się za akceptowalne. Około 1 µg całkowitego RNA poddano odwrotnej transkrypcji do cDNA przy użyciu zestawu do odwrotnej transkrypcji. Ekspresję genów oznaczono metodą RT-qPCR z wykorzystaniem gotowej mieszaniny reakcyjnej SYBR Green PCR master mix. Odwrotną transkrypcję przeprowadzono w 42 °C przez 15 min, a następnie inaktywacja odwrotnej transkryptazy w temperaturze 95 °C przez 3 min. Zsyntetyzowane cDNA przechowywano w temperaturze −20 °C do czasu analizy. Ilościową reakcję PCR w czasie rzeczywistym przeprowadzono, rozpoczynając od przeddenaturacji w 95 °C przez 1 min, a następnie 40 cykli denaturacji w 95 °C przez 5 s, a następnie przyłączanie i elongację w 60 °C przez 15 s. Sygnały fluorescencji zbierano po każdym etapie przyłączania i elongacji. Analizę krzywej topnienia przeprowadzono w 95 °C przez 15 s, a następnie 60 °C przez 1 min. Poziomy ekspresji względnej obliczono przy użyciu metody 2-⁻ΔΔCt metoda. W celu normalizacji ekspresji genów jako referencję wewnętrzną wykorzystano GAPDH lub 5S. Sekwencje starterów były następujące: LINC0707, starter przedni 5'-CCAACAGGGTATCAGAATTCTC-3' i odwrotny 5'-TGCTGACAATAGCCATTAGG-3'; miR-145-5p, starter przedni 5'-GCCGAGGTCCAGTTCCCA-3' i odwrotny 5'-CTCAACTGGTGTCGTGGA-3'; TRAF6, starter przedni 5'-ATTACAACTGAGGTGCTTCT-3' i odwrotny 5'-GCATCTGGTTCTGTTATAGGA-3'; GAPDH, starter przedni 5'-ATCCCATCACCATCTTCCAGG-3' i odwrotny 5'-CGCCCCACTTGATTTTGG-3'; oraz 5S, starter przedni 5'-TCGTCTGATCTCGGAAGCTAA-3' i odwrotny 5'-AAGCCTACAGCACCCGGTAT-3'.
8. Analiza statystyczna
Analizy statystyczne przeprowadzono przy użyciu oprogramowania statystycznego. Normalność rozkładu danych oceniono za pomocą testu Shapiro-Wilka, przyjmując, że P > 0,05 wskazuje na rozkład normalny. Dane o rozkładzie normalnym przedstawiono jako średnią ± SD, natomiast dane o rozkładzie innym niż normalny przedstawiono jako medianę (P25, P75). W przypadku zmiennych ciągłych o rozkładzie normalnym, porównania między dwiema grupami przeprowadzono za pomocą testu t Studenta, a porównania między wieloma grupami za pomocą jednoczynnikowej analizy wariancji (ANOVA) z następującym po niej testem post hoc Tukeya. Dla danych o rozkładzie innym niż normalny, do porównań dwóch grup wykorzystano test U Manna-Whitneya, a do porównań wielu grup test Kruskala-Wallisa. Do analizy zmiennych kategorycznych między grupami zastosowano test chi-kwadrat. Analizy jednowymiarowej i wielowymiarowej regresji logistycznej wykorzystano do oceny czynników klinicznych związanych z ekspresją LINC0707. Zmienne ciągłe zdychotomizowano według mediany kohorty (grupa o wysokiej wartości = 1; grupa o niskiej wartości = 0). Zmienne z P < 0,05 w jednowymiarowej analizie regresji logistycznej włączono do wielowymiarowej analizy regresji logistycznej. Wyniki przedstawiono jako ilorazy szans (ORs) wraz z 95% przedziałami ufności (CIs), gdzie OR > 1 wskazywało na powiązanie dodatnie, a OR < 1 na powiązanie ujemne. Wszystkie eksperymenty dotyczące fenotypu komórek obejmowały co najmniej 4 niezależne powtórzenia biologiczne, z 3 powtórzeniami technicznymi na każde powtórzenie biologiczne. Wartość P < 0,05 uznano za istotną statystycznie.
Wyniki
Poziomy LINC0707 w osoczu były podwyższone u pacjentów z SCI
Przeanalizowano wyjściowe charakterystyki kliniczne 30 zdrowych ochotników oraz 75 pacjentów z SCI. W porównaniu z osobami zdrowymi, pacjenci z SCI wykazywali wyraźnie niższe wyniki w badaniu czucia dotyku, acmestezji, funkcji motorycznych oraz w skali FIM (Functional Independence Measure), co wskazywało na upośledzenie funkcji sensorycznych i motorycznych. Ponadto poziomy cytokin prozapalnych w surowicy były znacznie wyższe u pacjentów z SCI niż w grupie kontrolnej osób zdrowych (Tabela 1, P < 0,01), co sugeruje wzmocnioną odpowiedź zapalną.
| Elementy | HS | SCI | Pwartość p |
| (n=30) | (n=75) | ||
| Wiek (lata) | 45.83±10.06 | 46.17±9.92 | 0.786 |
| BMI (kg/m²)2) | 22.82±1.57 | 23.94±1.29 | 0.69 |
| Płeć (mężczyzna, n) | 18 | 41 | 0.619 |
| Palenie tytoniu (n) | 11 | 28 | 0.949 |
| Picie (n) | 14 | 33 | 0.804 |
| Klasyfikacja ASIA dla SCI (n) | / | ||
| Pełny SCI | / | 18 | |
| Niepełny uraz rdzenia kręgowego (SCI) | / | 36 | |
| Prawidłowe funkcjonowanie neuronów | / | 21 | |
| Poziom uszkodzenia rdzenia kręgowego (n, %) | / | ||
| Kręg szyjny | / | 27 (36.0%) | |
| Kręg piersiowy | / | 23 (30.7%) | |
| Kręg lędźwiowy | / | 25 (33.3%) | |
| Wynik odczuwania dotyku | / | 53.42±22.12 | |
| skala acmestezji | / | 53.39±24.68 | |
| Wynik ćwiczenia | / | 49.07±18.74 | |
| wynik w skali Functional Independence Measure | / | 71.33±19.41 | |
| IL-1β (pg/ml) | 1.47±0.52 | 52.21±11.32 | <0.001 |
| IL-6 (pg/ml) | 2.14±0.97 | 88.47±23.52 | <0.001 |
| TNF-α (pg/mL) | 2.84±1.13 | 61.09±18.24 | <0.001 |
| CRP (mg/L) | 1.42±0.63 | 62.67±21.85 | <0.001 |
| Skróty: HS, zdrowy ochotnik; SCI, uraz rdzenia kręgowego; BMI, wskaźnik masy ciała; ASIA, American Spinal Injury Association; FIM, miernik niezależności funkcjonalnej; IL, interleukina; TNF, czynnik martwicy nowotworu; CRP, białko C-reaktywne. | |||
Tabela 1: Porównanie wyjściowych cech klinicznych między zdrowymi ochotnikami a pacjentami z urazem rdzenia kręgowego. Tabela ta porównuje cechy demograficzne, wyniki funkcji neurologicznych, zmienne związane z urazem oraz poziomy markerów zapalnych u zdrowych ochotników i pacjentów z urazem rdzenia kręgowego. Skróty: HS, zdrowi ochotnicy; SCI, uraz rdzenia kręgowego; ASIA, American Spinal Injury Association; FIM, Functional Independence Measure; IL, interleukina; TNF, czynnik martwicy nowotworu; CRP, białko C-reaktywne.
Ekspresję LINC0707 w osoczu określono ilościowo za pomocą metody RT-qPCR. W porównaniu z osobami zdrowymi, u pacjentów z SCI odnotowano istotnie zwiększoną ekspresję LINC0707 w osoczu (Rycyna 1A, P < 0.01). Analiza krzywej charakterystyki operacyjnej odbiornika (ROC) dostarczyła wstępnych dowodów na to, że ekspresja LINC0707 może mieć pewną wartość dyskryminacyjną w odróżnianiu pacjentów z SCI od osób zdrowych (Rycyna 1B). Ponadto ekspresja LINC0707 w osoczu wzrastała wraz ze wzrostem klinicznego stopnia ciężkości SCI (Rycyna 1C, P < 0.01). Analiza korelacji wykazała, że ekspresja LINC0707 w osoczu była dodatnio skorelowana z poziomami IL-1β (r = 0.635, P < 0.001), IL-6 (r = 0.612, P < 0.01), TNF-α (r = 0.675, P < 0.01) oraz białka C-reaktywnego (CRP; r = 0.61, P < 0.01) (Rycyna 1D–G). Wyniki te sugerują, że podwyższona ekspresja LINC0707 wiąże się z odpowiedziami zapalnymi u pacjentów z SCI.
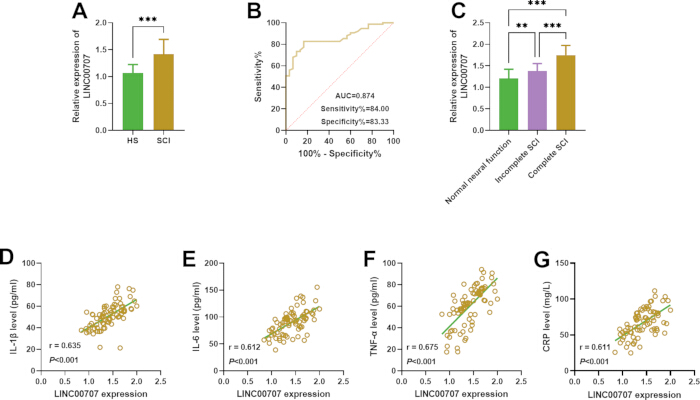
Rycina 1Ekspresja LINC0707 w osoczu oraz jej korelacje z czynnikami zapalnymi w osoczu. (A) Ekspresja LINC0707 w osoczu była wyższa u pacjentów z urazem rdzenia kręgowego (SCI) niż u zdrowych ochotników. Analizę statystyczną przeprowadzono za pomocą testu t dla prób niezależnych. (BAnaliza krzywej charakterystyki operacyjnej odbiornika (ROC) dostarczyła wstępnych informacji wskazujących, że ekspresja LINC0707 może być przydatna w rozróżnianiu pacjentów z SCI od osób zdrowych.C) Ekspresja LINC0707 w osoczu wzrastała wraz ze wzrostem ciężkości SCI zgodnie z klasyfikacją American Spinal Injury Association (ASIA). Analizę statystyczną przeprowadzono przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). (D–G) Ekspresja LINC0707 w osoczu była dodatnio skorelowana z poziomami czynników zapalnych. Analizę statystyczną przeprowadzono z wykorzystaniem analizy korelacji Pearsona. *P < 0,01 oraz **P < 0.01. Zdrowe osoby, n = 30; pacjenci z SCI, n = 75. Dane przedstawiono jako średnia ± SD. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Czynniki powiązane z ekspresją LINC0707 analizowano za pomocą jednowymiarowej i wielowymiarowej regresji logistycznej
Przeprowadzono jednowymiarowe i wielowymiarowe analizy regresji logistycznej w celu zidentyfikowania czynników powiązanych z ekspresją LINC00707. Analiza jednowymiarowa wykazała, że klasyfikacja ASIA dla SCI (OR = 3,912, 95% CI: 1,792–8,537, P < 0,01), wynik FIM (OR = 0,281, 95% CI: 0,108–0,729, P = 0,009) oraz poziom CRP (OR = 4,600, 95% CI: 1,724–12,271, P = 0,02) były powiązane z ekspresją LINC00707. Po skorygowaniu o potencjalne zmienne zakłócające, wielowymiarowa regresja logistyczna wykazała, że klasyfikacja ASIA dla SCI (OR = 2,598, 95% CI: 1,08–6,203, P = 0,032), wynik FIM (OR = 0,303, 95% CI: 0,102–0,902, P = 0,032) oraz poziom CRP (OR = 3,202, 95% CI: 1,024–10,015, P = 0,045) były niezależnymi czynnikami powiązanymi z ekspresją LINC0707 (Tabela 2). Cięższa klasyfikacja ASIA oraz podwyższony poziom CRP wiązały się z wyższą ekspresją LINC0707, natomiast wyższy wynik FIM wiązał się z niższą ekspresją LINC0707. Powiązania te stanowią dalsze wsparcie dla hipotezy, że LINC0707 uczestniczy w procesie patologicznym SCI.
| Pozycje | Jednowymiarowa analiza regresji | Wielowymiarowa analiza regresji | ||||
| OR | 95% CI | wartość P | OR | 95% CI | wartość P | |
| Wiek | 1.176 | 0.475-2.914 | 0.725 | |||
| Płeć | 1.303 | 0.524-3.240 | 0.57 | |||
| Klasyfikacja ASIA dla SCI | 3.912 | 1.792-8.537 | <0.01 | 2.598 | 1.08-6.203 | 0.032 |
| Klasyfikacja ASIA dla SCI | 0.58 | 0.497-1.480 | 0.582 | |||
| Wynik czucia dotykowego | 0.85 | 0.343-2.105 | 0.725 | |||
| Wynik acmestezji | 0.854 | 0.345-2.19 | 0.734 | |||
| Wynik ćwiczeń | 0.392 | 0.153-1.06 | 0.051 | |||
| Wynik FIM | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.23 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Skróty: OR, iloraz szans; CI, przedział ufności; ASIA, American Spinal Injury Association; FIM, miara niezależności funkcjonalnej; IL, interleukina; TNF, czynnik martwicy nowotworu; CRP, białko C-reaktywne. | ||||||
Tabela 2: Analiza regresji logistycznej czynników związanych z ekspresją LINC0707. Tabela ta przedstawia jednowymiarowe i wielowymiarowe analizy regresji logistycznej wykorzystane do zidentyfikowania czynników klinicznych związanych z ekspresją LINC0707 u pacjentów z urazem rdzenia kręgowego. Wyniki przedstawiono jako ilorazy szans z 95% przedziałami ufności i odpowiadającymi im wartościami P. Skróty: OR, iloraz szans; CI, przedział ufności; ASIA, American Spinal Injury Association; FIM, Functional Independence Measure; IL, interleukina; TNF, czynnik martwicy nowotworu; CRP, białko C-reaktywne.
Wyciszenie LINC0707 łagodziło stan zapalny i stres oksydacyjny w komórkach BV2 stymulowanych LPS
Komórki BV2 poddano działaniu rosnących stężeń LPS (0, 10, 20, 50, 10, 150 lub 200 ng/mL). Analiza RT-qPCR wykazała, że ekspresja LINC0707 była znacząco zwiększona po zastosowaniu 10, 150 i 200 ng/mL LPS (Rycina 2A, P < 0,01, n = 6). Na podstawie tych wyników oraz wcześniejszych doniesień27˒28, do stworzenia modelu SCI in vitro wybrano stężenie 10 ng/mL LPS. W porównaniu z grupą kontrolną, ekspresja LINC0707 była znacząco podwyższona w komórkach BV2 stymulowanych LPS. Transfekcja si-LINC0707 skutecznie zahamowała ekspresję LINC0707 (Rycina 2B, P < 0,01, n = 6).
Następnie oceniono wpływ wyciszenia LINC0707 na stan zapalny i stres oksydacyjny. Stymulacja LPS znacząco zwiększyła sekrecję IL-1β (Ryc. 2C, P < 0.01, n = 5), IL-6 (Ryc. 2D, P < 0.01, n = 5) i TNF-α (Ryc. 2E, P < 0.01, n = 5), a także wewnątrzkomórkowe poziomy ROS (Ryc. 2F, P < 0.01, n = 6) i zawartość MDA (Ryc. 2G, P < 0.01, n = 5). Z kolei stymulacja LPS znacząco obniżyła poziomy markerów przeciwutleniających SOD (Ryc. 2H, P < 0.01, n = 6) i GSH (Ryc. 2I, P < 0.01, n = 5). Wyciszenie LINC0707 znacząco zredukowało sekrecję cytokin prozapalnych oraz poziomy markerów stresu prooksydacyjnego, przywracając jednocześnie poziomy przeciwutleniaczy w stymulowanych LPS komórkach BV2. Wyniki te wskazują, że knockdown LINC0707 łagodzi indukowaną przez LPS odpowiedź zapalną i stres oksydacyjny w komórkach BV2.
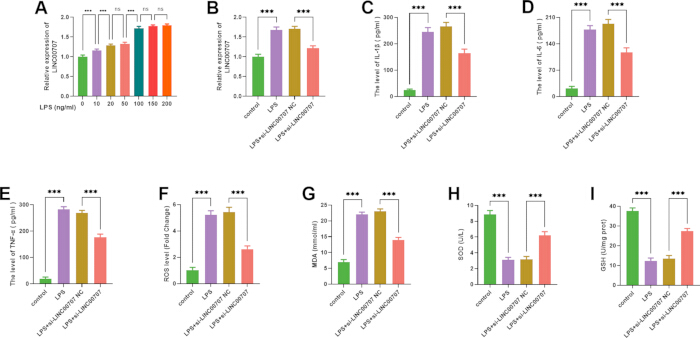
Rycina 2Wpływ wyciszenia LINC0707 na stan zapalny i stres oksydacyjny w komórkach BV2 stymulowanych LPS. Komórki BV2 stymulowano lipopolisacharydem (LPS) w stężeniu 10 ng/mL.APoziom ekspresji LINC0707 zmierzono za pomocą RT-qPCR w komórkach BV2 traktowanych różnymi stężeniami LPS.B) Ekspresja LINC0707 była zwiększona w grupie LPS i zmniejszona po transfekcji si-LINC0707. (C–E) Analiza ELISA wykazała, że wydzielanie czynników prozapalnych było zwiększone w grupie LPS i zmniejszone po wyciszeniu genu LINC0707. (F–GPoziomy reaktywnych form tlenu (ROS) oraz zawartość malondialdehydu (MDA) wzrosły w grupie LPS i uległy obniżeniu po wyciszeniu genu LINC00707.H–I) Aktywność dysmutazy ponadtlenkowej (SOD) oraz poziom zredukowanego glutationu (GSH) były obniżone w grupie LPS i wzrosły po wyciszeniu genu LINC0707. **P** < 0,01; ns, brak istotności statystycznej. n ≥ 5. Analizy statystyczne przeprowadzono z wykorzystaniem jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). Dane przedstawiono jako średnia ± SD. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
LINC0707 pełni funkcję molekularnej gąbki dla miR-145-5p
Aby zbadać mechanizm molekularny leżący u podstaw funkcji biologicznej LINC00707, wykorzystano bazę danych ENCORI do przewidywania potencjalnych docelowych miRNA. Analiza bioinformatyczna wykazała obecność komplementarnych sekwencji wiążących między LINC0707 a miR-145-5p (Rysunek 3A). Testy reporterowe z podwójną lucyferazą wykazały, że aktywność lucyferazy w konstrukcie WT-LINC0707 była istotnie obniżona przez mimik miR-145-5p i zwiększona przez inhibitor miR-145-5p. Z kolei żadna z tych metod nie wpłynęła na aktywność lucyferazy w konstrukcie MUT-LINC0707 (Rysunek 3B, P < 0,01, n = 4), co potwierdziło bezpośrednią interakcję między LINC0707 a miR-145-5p.
Analiza RT-qPCR wykazała, że ekspresja miR-145-5p w osoczu była znacząco obniżona u pacjentów z SCI w porównaniu z osobami zdrowymi (Rycyna 3C, P < 0.01). Dodatkowo ekspresja LINC0707 była ujemnie skorelowana z ekspresją miR-145-5p (Rycina 3D, P < 0.01), a poziomy miR-145-5p w osoczu stopniowo spadały wraz ze wzrostem ciężkości SCI (Rycina 3E, P < 0.01). In vitro ekspresja miR-145-5p była znacząco zredukowana w komórkach BV2 stymulowanych LPS w porównaniu z komórkami kontrolnymi, podczas gdy wyciszenie LINC0707 przywróciło ekspresję miR-145-5p (Rycina 3F, P < 0.001, n = 6). Wyniki te sugerują, że LINC00707 pełni funkcję konkurującego endogennego RNA (ceRNA), sekwestrując miR-145-5p i w ten sposób regulując jego ekspresję podczas patologicznego przebiegu SCI.
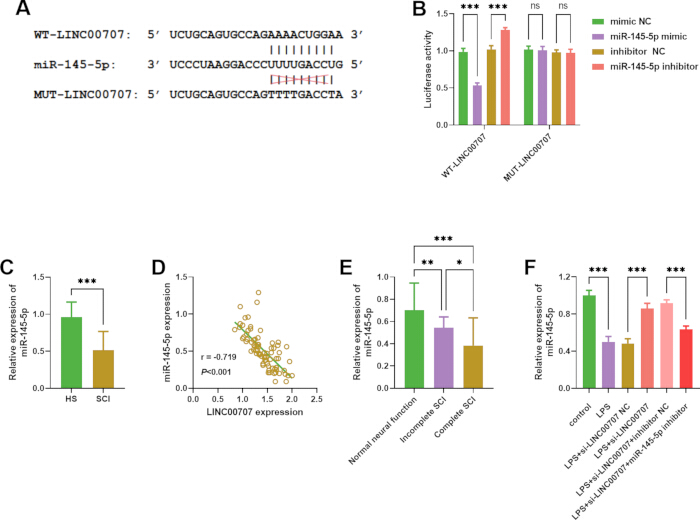
Rycina 3LINC0707 pełni funkcję molekularnej gąbki dla miR-145-5p. (A) Baza danych ENCORI przewidziała komplementarne sekwencje wiążące pomiędzy LINC0707 a miR-145-5p. (B) Interakcję między LINC0707 a miR-145-5p potwierdzono za pomocą podwójnego testu reporterowego lucyferazy. Analizę statystyczną przeprowadzono przy użyciu dwuczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). (C) Analiza RT-qPCR wykazała, że ekspresja miR-145-5p w osoczu była obniżona u pacjentów z SCI. Analizę statystyczną przeprowadzono za pomocą testu t dla prób niezależnych. (D) Ekspresja LINC0707 była ujemnie skorelowana z ekspresją miR-145-5p u pacjentów z SCI. Analizę statystyczną przeprowadzono za pomocą analizy korelacji Pearsona. (E) Ekspresja miR-145-5p w osoczu spadała wraz ze wzrostem stopnia ciężkości SCI zgodnie z klasyfikacją ASIA. Analizę statystyczną przeprowadzono przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). (F) Ekspresja miR-145-5p była obniżona w grupie LPS, zwiększona po transfekcji si-LINC0707 oraz zmniejszona po transfekcji inhibitorem miR-145-5p. Analiza statystyczna została przeprowadzona przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). P < 0,05, *P < 0,01, a **P < 0,01; ns, brak istotności statystycznej. Zdrowe osoby, n = 30; pacjenci z SCI, n = 75; eksperymenty komórkowe, n ≥ 4. Dane przedstawiono jako średnia ± SD. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ilustracji.
Inhibicja miR-145-5p nasiliła stan zapalny i stres oksydacyjny w stymulowanych LPS komórkach BV2
Aby zbadać rolę miR-145-5p, komórki BV2 przetransfekowano inhibitorem miR-145-5p lub odpowiednią kontrolą negatywną. Następnie oceniono poziomy cytokin zapalnych i markerów stresu oksydacyjnego. W porównaniu z grupą kontrolną negatywną inhibitora, inhibicja miR-145-5p znacząco zwiększyła sekrecję IL-1β (Rycyna 4A, P < 0.01, n = 5), IL-6 (Rycyna 4B, P < 0.001, n = 5) oraz TNF-α (Rycyna 4C, P < 0.01, n = 5). Ponadto znacząco wzrosły wewnątrzkomórkowe poziomy ROS (Rycyna 4D, P < 0.01, n = 6) i zawartość MDA (Rycyna 4E, P < 0.01, n = 5), podczas gdy poziomy SOD (Rycyna 4F, P < 0.01, n = 6) i GSH (Rycyna 4G, P < 0.001, n = 5) uległy znacznemu obniżeniu. Wyniki te wskazują, że inhibicja miR-145-5p znosi efekty ochronne knockdownu LINC0707 w odniesieniu do indukowanego LPS stanu zapalnego i stresu oksydacyjnego w komórkach BV2.
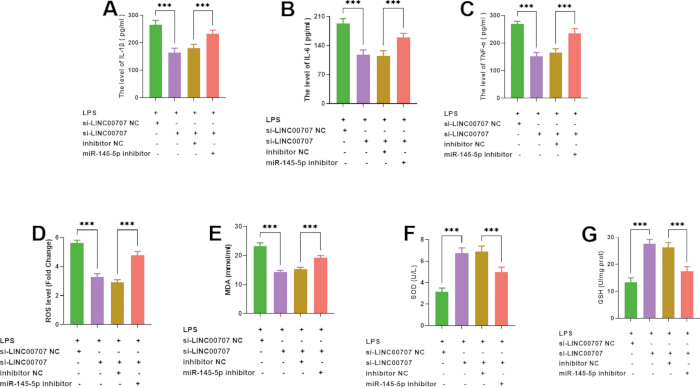
Rycina 4Wpływ inhibicji miR-145-5p na stan zapalny i stres oksydacyjny w komórkach BV2. (A–CAnaliza ELISA wykazała, że po transfekcji inhibitorem miR-145-5p nastąpił istotny wzrost wydzielania czynników prozapalnych.D–EPo transfekcji inhibitorem miR-145-5p odnotowano istotny wzrost poziomu reaktywnych form tlenu (ROS) oraz zawartości malondialdehydu (MDA).F–G) Aktywność dysmutazy ponadtlenkowej (SOD) oraz poziomy glutationu (GSH) uległy znacznemu obniżeniu po transfekcji inhibitorem miR-145-5p. **P** < 0,01. n ≥ 5. Analizy statystyczne przeprowadzono przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). Dane przedstawiono jako średnia ± SD. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ilustracji.
TRAF6 został zidentyfikowany jako gen docelowy miR-145-5p
Baza danych miRDB wskazała TRAF6 jako potencjalny cel miR-145-5p. Zidentyfikowano komplementarne sekwencje wiązania między 3′ UTR TRAF6 a miR-145-5p (Rycyna 5A). Testy reporterowe z użyciem podwójnej lucyferazy wykazały, że aktywność lucyferazy w konstrukcie WT-TRAF6 była znacząco obniżona przez mimik miR-145-5p i zwiększona przez inhibitor miR-145-5p. W przeciwieństwie do tego, żadna z tych metod nie wpłynęła na aktywność lucyferazy w konstrukcie MUT-TRAF6 (Rycyna 5B, P < 0.01, n = 4), co potwierdza, że TRAF6 jest bezpośrednim celem miR-145-5p.
Analiza RT-qPCR wykazała, że ekspresja mRNA TRAF6 w osoczu była znacząco zwiększona u pacjentów z SCI (Rycyna 5C, P < 0,01). Ekspresja TRAF6 była ujemnie skorelowana z ekspresją miR-145-5p (Rycina 5D, P < 0,01), a poziomy mRNA TRAF6 w osoczu wzrastały wraz z ciężkością SCI (Rycina 5E, P < 0,01). In vitro ekspresja TRAF6 była znacząco zwiększona w stymulowanych LPS komórkach BV2 w porównaniu z grupą kontrolną, lecz uległa znacznemu zmniejszeniu po wyciszeniu LINC0707 (Rycina 5F, P < 0,01, n = 6). Odwrotnie, inhibicja miR-145-5p przywróciła ekspresję TRAF6 (Rycina 5G, P < 0,01, n = 6). Wyniki te wskazują, że LINC0707 reguluje ekspresję TRAF6 poprzez szlak sygnalizacyjny miR-145-5p.
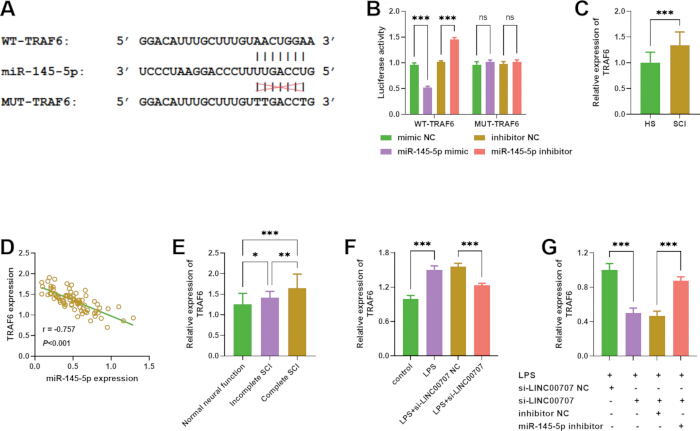
Rycina 5TRAF6 jest genem docelowym miR-145-5p. (ABaza danych miRDB przewidziała sekwencje wiązania komplementarnego pomiędzy TRAF6 a miR-145-5p.B) Assay reporterowy z podwójną lucyferazą potwierdził relację celowania między TRAF6 a miR-145-5p. Analizę statystyczną przeprowadzono za pomocą dwuczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). (C) Analiza RT-qPCR wykazała, że ekspresja TRAF6 w osoczu była podwyższona u pacjentów z SCI. Analizę statystyczną przeprowadzono przy użyciu testu t dla prób niezależnych. (D) Ekspresja TRAF6 była ujemnie skorelowana z ekspresją miR-145-5p w osoczu u pacjentów z SCI. Analizę statystyczną przeprowadzono przy użyciu analizy korelacji Pearsona. (E) Ekspresja TRAF6 w osoczu wzrastała wraz ze wzrostem ciężkości SCI zgodnie z klasyfikacją ASIA. Analizę statystyczną przeprowadzono za pomocą jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). (FEkspresja TRAF6 wzrosła w komórkach BV2 stymulowanych LPS i uległa zmniejszeniu po wyciszeniu genu LINC0707. Analizę statystyczną przeprowadzono przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD).G) Ekspresja TRAF6 wzrosła po zahamowaniu miR-145-5p. Analizę statystyczną przeprowadzono przy użyciu jednoczynnikowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya (HSD). P < 0,05, *P < 0,01, a **P < 0,01; ns, nieistotne statystycznie. Zdrowe osoby, n = 30; pacjenci z SCI, n = 75; eksperymenty komórkowe, n ≥ 4. Dane przedstawiono jako średnia ± SD. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
DOSTĘPNOŚĆ DANYCH:
Zbiory danych wygenerowane i/lub przeanalizowane w niniejszym badaniu są dostępne w repozytorium Zenodo: https://doi.org/10.5281/zenodo.21470454.
Dyskusja
Uraz rdzenia kręgowego (SCI) jest ciężkim zaburzeniem urazowym ośrodkowego układu nerwowego, które skutkuje upośledzeniem lub całkowitą utratą przewodnictwa nerwowego przez rdzeń kręgowy, prowadząc dożywotnej dysfunkcji ruchowej, sensorycznej i autonomicznej, a także do głębokich następstw fizjologicznych i psychologicznych29˒30. Stopień nasilenia tych zaburzeń zazwyczaj wzrasta wraz z rozległością SCI. W niniejszym badaniu wykazano podwyższoną ekspresję osoczowego LINC0707 u pacjentów z SCI, która dodatnio korelowała z poziomami krążących cytokin prozapalnych, co sugeruje potencjalną rolę LINC0707 w zapaleniu i stresie oksydacyjnym związanym z SCI. W oparciu o te ustalenia kliniczne dalej zbadano regulacyjną rolę LINC00707 w zapaleniu i stresie oksydacyjnym w komórkach BV2 traktowanych LPS w kontekście patogenezy SCI.
LINC00707 jest zaangażowany w szereg procesów biologicznych poprzez regulację wielu szlaków sygnalizacyjnych31. Oprócz regulacji proliferacji, apoptozy, migracji i inwazji komórek, wykazano, że LINC0707 uczestniczy w odpowiedziach zapalnych i stresie oksydacyjnym18˒32˒3. W poprzednich badaniach zgłoszono podwyższoną ekspresję LINC0707 w rakach płuc34, piersi35, szyjki macicy36 oraz wątroby37, gdzie promuje on progresję choroby poprzez regulację docelowych cząsteczek downstream. Ponadto wyciszenie LINC0707 sprzyja różnicowaniu osteogenicznemu mezenchymalnych komórek macierzystych szpiku kostnego poprzez regulację miR-103a-3p38. Zou et al. wykazali ponadto, że LINC0707 promuje indukowane przez LPS odpowiedzi zapalne w komórkach MRC-5, co potwierdza jego prozapalną rolę3. Zgodnie z tymi odkryciami, niniejsze badanie wykazało, że ekspresja LINC0707 była znacząco zwiększona w komórkach BV2 stymulowanych LPS, podczas gdy knockdown LINC00707 zmniejszył produkcję cytokin prozapalnych i markerów stresu oksydacyjnego. Wyniki te stanowią dalszy dowód na zaangażowanie LINC0707 w odpowiedzi zapalne i reakcje na stres oksydacyjny.
Doniesiono również, że LINC00707 pełni funkcję konkurencyjnego endogennego RNA (ceRNA) poprzez regulację miR-145-5p w kilku stanach patologicznych, w tym w reumatycznej chorobie serca39, raku pęcherza moczowego40 oraz w różnicowaniu osteogenicznym41. Poprzednie badania wykazały, że miR-145-5p wykazuje działanie ochronne w SCI poprzez hamowanie stanu zapalnego i stresu oksydacyjnego42˒43 oraz poprzez promowanie angiogenezy i regeneracji neuronów4˒45. Zgodnie z tymi obserwacjami, niniejsze badanie wykazało, że ekspresja miR-145-5p w osoczu była obniżona u pacjentów z SCI oraz w komórkach BV2 stymulowanych LPS. Potwierdzono ponadto, że LINC0707 oddziałuje bezpośrednio z miR-145-5p, a wyciszenie LINC0707 przywróciło ekspresję miR-145-5p. Co więcej, inhibicja miR-145-5p odwróciła ochronny efekt wyciszenia LINC00707 w odniesieniu do odpowiedzi zapalnych i stresu oksydacyjnego. Wyniki te sugerują, że LINC0707 może przyczyniać się do progresji SCI poprzez regulację odpowiedzi zapalnej i stresu oksydacyjnego pośredniczonych przez miR-145-5p.
Poprzednie badania wykazały, że TRAF6 odgrywa istotną rolę w chorobach ośrodkowego układu nerwowego46. Istnieją również dowody wskazujące, że hamowanie TRAF6 może znacząco poprawić stan po SCI47˒48. Niniejsze badanie dodatkowo zidentyfikowało TRAF6 jako bezpośredni cel miR-145-5p. Ekspresja TRAF6 była znacznie zwiększona u pacjentów z SCI oraz w komórkach BV2 stymulowanych LPS. Ponadto wyciszenie LINC0707 zmniejszyło ekspresję TRAF6, podczas gdy hamowanie miR-145-5p przywróciło ekspresję TRAF6. Wyniki te sugerują, że LINC00707 może regulować ekspresję TRAF6 poprzez miR-145-5p podczas SCI.
Niniejsze badanie sugeruje, że LINC0707 może wpływać na odpowiedzi zapalne pośredniczone przez mikroglej oraz uszkodzenia spowodowane stresem oksydacyjnym podczas SCI poprzez regulację osi sygnalizacyjnej miR-145-5p/TRAF6. Wynik ten jest zgodny z wcześniejszym raportem Zhu et al., którzy wykazali, że wyciszenie LINC0707 łagodzi indukowany LPS stan zapalny i apoptozę w komórkach PC-12; jednak mechanizm leżący u podłoża ich badania obejmował oś miR-30a-5p/Neurod118. Łącznie odkrycia te sugerują, że LINC0707 może nie działać poprzez pojedynczy cel miRNA, lecz za pośrednictwem odrębnych sieci miRNA w sposób zależny od typu komórek, przyczyniając się tym samym do procesów patologicznych w SCI.
Niniejsze badanie posiada kilka ograniczeń. Po pierwsze, oceniono jedynie ekspresję mRNA TRAF6, natomiast nie zbadano ekspresji białka. Przyszłe badania powinny obejmować walidację na poziomie białka, np. analizę Western blot, aby dokładniej scharakteryzować relację regulacyjną między LINC00707, miR-145-5p a TRAF6. Po drugie, badanie to przeprowadzono wyłącznie na poziomie komórkowym z wykorzystaniem modelu mikrogleju BV2 stymulowanego LPS, bez walidacji in vivo. Biorąc pod uwagę złożoność mikrośrodowiska w przypadku SCI, obecne wyniki mogą nie odzwierciedlać w pełni warunków patofizjologicznych in vivo. Pozostaje do potwierdzenia, czy LINC0707 wykazuje podobne działanie prozapalne w modelach zwierzęcych SCI. W przyszłych badaniach zostaną opracowane modele zwierzęce SCI w celu walidacji roli regulacyjnej LINC00707 oraz powiązanych z nią mechanizmów molekularnych. Po trzecie, choć nasze wyniki wskazują, że LINC0707 oddziałuje na stan zapalny poprzez szlak sygnalizacyjny miR-145-5p/TRAF6, nie wiadomo, czy LINC0707 funkcjonuje wyłącznie jako „gąbka” dla specyficznych miRNA, czy również wiąże się bezpośrednio z określonymi białkami. W celu wyjaśnienia tych szczegółów mechanistycznych wymagane są dalsze badania. Po czwarte, analiza krzywej ROC opierała się na danych z jednego ośrodka medycznego i stosunkowo niewielkiej liczby pacjentów. Mogło to wprowadzić błąd systematyczny, co sprawia, że wyniki mają charakter wstępny. Aby potwierdzić potencjał diagnostyczny zidentyfikowanych biomarkerów, konieczne są szersze badania wieloośrodkowe z udziałem większej liczby pacjentów.
Wyniki niniejszego badania sugerują, że LINC0707 może stanowić potencjalny, eksperymentalny biomarker osoczowy oraz cel terapeutyczny w przypadku SCI. Jednakże przeniesienie tych odkryć do zastosowań klinicznych będzie wymagało kilku dodatkowych kroków. Po pierwsze, potencjalna wartość dyskryminacyjna LINC0707 w osoczu powinna zostać oceniona w większych kohortach wieloośrodkowych, niezależnych kohortach walidacyjnych oraz odpowiednich grupach kontrolnych z urazami lub stanami zapalnymi. Ocena kliniczna i badanie radiologiczne pozostają głównymi metodami diagnostyki SCI. Po drugie, potencjał terapeutyczny ukierunkowania na LINC0707 powinien zostać oceniony na modelach zwierzęcych w celu zbadania jego skuteczności i bezpieczeństwa. W ostateczności modulowanie sygnalizacji LINC0707/miR-145-5p/TRAF6 może zaoferować nowatorskie podejście do łagodzenia neurostanu zapalnego i stresu oksydacyjnego u pacjentów z SCI, choć przed przejściem od badań podstawowych do praktyki klinicznej pozostało jeszcze wiele pracy.
Ogólnie stwierdzono zwiększoną ekspresję plazmatycznego LINC0707 oraz TRAF6, natomiast obniżoną ekspresję miR-145-5p u pacjentów z SCI oraz w stymulowanych LPS komórkach BV2. Wyciszenie LINC0707 złagodziło reakcje zapalne i stres oksydacyjny poprzez oś sygnalizacyjną miR-145-5p/TRAF6, co sugeruje, że ta ścieżka regulacyjna może stanowić potencjalny cel terapeutyczny w leczeniu SCI.
Oświadczenia
Autorzy declare, że nie mają żadnych konfliktów interesów.
Podziękowania
Praca ta była wspierana przez Medical Science Research Project of Hebei (Grant nr 20251479).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| probówka do mikrowirówki o pojemności 1,5 ml | KIRGEN | KG211 | Probówka z polipropylenu z nakrętką zatrzaskową, wolna od DNaz/RNaz, apirogenna, maksymalna siła odśrodkowa 20 00 x g × g, do przechowywania i wirowania próbek RNA/białek. |
| płytka 6-dołkowa do hodowli komórek | Corning | 3516 | sterylna, indywidualnie zapakowana płytka polistyrenowa z płaskim dnem, modyfikowana do hodowli komórek (TC-treated); objętość dołka wynosi 16,8 ml, a powierzchnia wzrostu 9,5 cm² |
| Igła do pobierania krwi | Becton, Dickinson and Company | 367283 | Jednorazowa igła do pobierania krwi BD Vacutainer. Dwustronna konstrukcja igły, w której jeden koniec służy do nakłucia żyły, a drugi do połączenia z uchwytem i probówką próżniową w celu wielokrotnego pobierania próbek do kilku probówek. Powłoka silikonowa w celu zminimalizowania dyskomfortu pacjenta podczas wkłucia. |
| Probówki do pobierania krwi | Becton, Dickinson and Company | 367605 | Próżniowe probówki do pobierania krwi BD Vacutainer. Różne kolory zakrętek oznaczają zastosowanie różnych dodatków, odpowiadających konkretnym badaniom laboratoryjnym. |
| unieśmiertelniona linia komórkowa mikrogleju mysiego BV2 | Centrum Zasobów Komórkowych Szanghajskiego Instytutu Biotechnologii | RRID: CVCL_0182 | Unieruchomiona linia komórek mikrogleju mysiego, która stabilnie wykazuje ekspresję markerów specyficznych dla mikrogleju (Iba1, CD1b, F4/80). Po stymulacji LPS komórki BV2 wydzielają cytokiny prozapalne (IL-1β, IL-6, TNF-α) i kumulują wewnątrzkomórkowe ROS oraz MDA, aby naśladować in vivo mikroglejalną aktywację zapalną po urazie rdzenia kręgowego. Komórki hoduje się w DMEM z wysoką zawartością glukozy, uzupełnionym o 10% FBS i 1× penicylina-streptomycyna, utrzymywana w 37 °C z 5% CO2 inkubator z nawilżaniem; pasażowane po osiągnięciu 70% konfluencji–konfluencja na poziomie 80%, aby uniknąć nadmiernej aktywacji. |
| Zestaw do oznaczania malondialdehydu (MDA) w komórkach | Nanjing Jiancheng Bioengineering Institute | A03-4-2 | Kolorymetryczny zestaw oparty na mikropłytkach do ilościowego oznaczania komórkowego malondialdehydu, markeru peroksydacji lipidów. MDA reaguje z kwasem tiobarbiturowym (TBA) pod wpływem ogrzewania, tworząc czerwone addukty; absorbancję mierzy się przy 532 nm za pomocą spektrofotometru do mikropłytek. Zestaw zoptymalizowany pod kątem próbek lizatów komórkowych, umożliwiający wysokoprzepustową analizę w płytkach 96-dołkowych; liniowy zakres kwantyfikacji obejmuje niski i umiarkowany poziom utleniania lipidów w mikrogleju. |
| Tlenek węgla2 inkubator | Thermo Scientific | 3111 | Kuweta z nawilżonymi warunkami i płaszczem wodnym CO22 inkubator o objętości wewnętrznej 184 L, IR CO22 czujnik, system filtracji powietrza HEPA w celu zminimalizowania kontaminacji mikrobiologicznej. Utrzymuje stabilne środowisko hodowlane przy 37 °C, 5% CO22 or nasycona wilgotność dla długoterminowej hodowli komórek adherentnych. |
| Zestaw do podwójnego testu reporterowego lucyferazy | Beyotime Biotechnology | RG028 | Ten zestaw do podwójnego pomiaru lucyferazy umożliwia sekwencyjną ilościową detekcję lucyferazy świetlika oraz lucyferazy Renilla w lizatach komórkowych. Sygnał lucyferazy świetlika jest mierzony w pierwszej kolejności przy użyciu substratu lucyferyny; następujący po nim odczynnik do detekcji lucyferazy Renilla zawiera silny wygaszacz, który eliminuje >9,9% pozostałej luminescencji świetlika, co zapewnia czysty odczyt sygnału Renilla przy zastosowaniu substratu koelenterazyny. Zestaw zawiera dedykowany bufor do lizy komórek w celu lizy komórek adherentnych, kompatybilny z luminometrem do mikropłytek 96-dołkowych. Odczynnik dla świetlika jest gotową mieszaniną w formie płynnej do bezpośredniego użycia; wartości luminescencji świetlika i Renilla są rejestrowane sekwencyjnie w celu obliczenia znormalizowanej względnej aktywności lucyferazy (stosunek Firefly/Renilla) do walidacji celu ceRNA. |
| Modyfikowane podłoże Eagle'a według Dulbecco | Gibco | 11995065 | DMEM jest szeroko stosowanym podłożem podstawowym, wspierającym wzrost wielu różnych komórek ssaków. Formuła ta zawiera wysoką koncentrację glukozy, L-glutaminę, czerwoną fenolową oraz pirogronian sodu. Wymaga ona suplementacji, najczęściej 10% płodową surowicą bydlęcą (FBS), oraz 5–10% CO2 środowisko zapewniające utrzymanie fizjologicznego pH. |
| Płodowa surowica bydlęca | CAŁKOWICIE ZIELONY | 13011-8611 | FBS klasy premium, niska zawartość endotoksyn, bez mykoplazm & negatywny pod kątem bakteriofagów, dodawany do DMEM w stężeniu 10% v/v w celu wsparcia wzrostu komórek. |
| GraphPad Prism wersja 9 | GraphPad Software, San Diego, CA, USA | NA | Oprogramowanie do tworzenia wykresów naukowych i analizy statystycznej, wyspecjalizowane w przetwarzaniu danych z eksperymentów komórkowych in vitro. Wszystkie surowe wartości absorbancji z testów qPCR, ELISA, stresu oksydacyjnego oraz luminescencji dual-lucyferazy zostały zaimportowane do programu Prism 9 w celu weryfikacji normalności rozkładu, przeprowadzenia parametrzyczno-nieparametrycznych porównań grup, wygenerowania wszystkich wykresów ilościowych oraz obliczenia średniej ± SD, dokładne wartości P oraz 95% przedziały ufności (CI), a następnie wyeksportowano postacie o wysokiej rozdzielczości (30 dpi), spełniające standardy publikacyjne czasopism. Oryginalne pliki źródłowe projektów .prism wszystkich wykresów zostały złożone w publicznym repozytorium danych zgodnie z wymogami. |
| IBM SPSS Statistics wersja 26.0 | IBM Corporation, Armonk, NY, USA | ND | Kompleksowy pakiet oprogramowania statystycznego wykorzystywany do sortowania danych wyjściowych z próbek klinicznych, testowania normalności rozkładu (test Shapiro-Wilka), przeprowadzania niezależnego/nieparzystego testu t oraz jednoczynnikowej analizy wariancji (ANOVA) z testem Tukeya’zastosowano korekcję dla wielokrotnych porównań, nieparametryczny test U Manna-Whitneya oraz obliczono dokładne wartości P i 95-procentowe przedziały ufności dla wszystkich ilościowych zbiorów danych ludzkich i komórkowych. Wszystkie demograficzne i laboratoryjne dane kliniczne pacjentów zostały przetworzone i przeanalizowane w ramach tej platformy. |
| IL-1β Zestaw SimpleStep ELISA | Abcam | ab25730 | Ten zestaw do kanapkowego kolorymetrycznego testu ELISA z jednym etapem płukania wykorzystuje zastrzeżoną technologię SimpleStep, co pozwala na przeprowadzenie całej procedury detekcji w ciągu 90 minut. Służy on do ilościowego oznaczania interleukiny-1 szczura.β w supernatancie hodowli komórkowych, surowicy, próbkach osocza z dodatkiem EDTA/cytrynianu/heparyny. Czułość detekcji osiąga 26,58 pg/mL, przy liniowym zakresie kwantyfikacji wynoszącym 54,69–350 pg/mL. W zestawie znajduje się gotowa, łamana płytka mikrotitracyjna z 8-dołkowymi paskami. Sygnały absorbancji są wykrywane przy 450 nm za pomocą czytnika płytek w celu obliczenia stężenia IL-1β stężenie |
| Zestaw SimpleStep ELISA do oznaczania IL-6 | Abcam | ab234570 | Kanapkowy kolorymetryczny zestaw SimpleStep ELISA zoptymalizowany do ilościowego oznaczania interleukiny 6 (IL-6) szczura w nadsączu z hodowli komórkowych, surowicy oraz próbkach osocza z cytratem/EDTA/heparyną. Zastosowanie jednoetapowej inkubacji i pojedynczego cyklu płukania skraca całkowity czas analizy do 90 min, przy czułości detekcji na poziomie 43 pg/mL i liniowym zakresie ilościowym od 125 pg/mL do 800 pg/mL. W skład zestawu wchodzi gotowa, powlekana mikropłytka paskowa z 8 dołkami; wartości absorbancji odczytuje się przy 450 nm za pomocą spektrofotometru do mikropłytek w celu obliczenia końcowego stężenia IL-6. |
| Płytka wielodołkowa LightCycler 96, biała | Roche LifeScience, Szwajcaria | 4729692001 | Białe polipropylenowe płytki reakcyjne z 96 studniami o niskim rąbku, specjalnie zoptymalizowane do pracy z systemem do rzeczywistej PCR LightCycler 96. Białe ścianki studni ograniczają interferencję tła fluorescencyjnego i zwiększają odbicie sygnału, co poprawia czułość detekcji rzadkich transkryptów. Jednolita konstrukcja cienkościennych studni gwarantuje spójne przewodnictwo cieplne we wszystkich studniach, przy zachowaniu kompatybilności z objętościami reakcji w zakresie od 10 do 50 μLWolne od DNaz/RNaz i pirogenów, przeznaczone do testów amplifikacji cDNA pochodzącego z RNA. |
| Odczyn do transfekcji LipofectamineTM 30 | Thermo Fisher Scientific | L3015 | Odczynnik do transfekcji w postaci nanocząsteczek lipidowych, stosowany wraz z wzmacniaczem P30, umożliwia wysokowydajną transfekcję siRNA/plazmidem w mikrogleju BV2 przy niskiej cytotoksyczności. |
| zestaw do syntezy pierwszej nici cDNA z lncRNA lnRcute | TIANGEN | KR202-02 | Ten zestaw został specjalnie zoptymalizowany do odwrotnej transkrypcji długich niekodujących RNA (lncRNA) o niskiej obfitości, zmiennej zawartości GC i złożonych struktur drugorzędowych. Zawiera on niezależny bufor do usuwania gDNA w celu wyeliminowania kontaminacji DNA genomicznego przed odwrotną transkrypcją oraz specjalistyczną mieszankę starterów lnR-RT w celu wzbogacenia pełnowymiarowych matryc lncRNA. Modyfikowana odwrotna transkryptaza umożliwia wydajną syntezę długich nici cDNA z całkowitej ilości RNA w zakresie od 10 ng do 2 ng. |
| zestaw do detekcji lncRNA metodą qPCR lnRcute lncRNA qPCR Detection Kit (SYBR Green) | TIANGEN | FP402 | Specjalistyczny premiks do ilościowej PCR opartej na SYBR Green, przeznaczony do ilościowego oznaczania lncRNA. Polimeraza DNA typu hot-start, aktywowana za pomocą przeciwciał, zapewnia wysoką swoistość amplifikacji; komponenty H-competitor niwelują zakłócenia wynikające z obecności struktur drugorzędowych w matrycach lncRNA o wysokiej zawartości GC. Produkt jest kompatybilny z cDNA otrzymanym z zestawu do odwrotnej transkrypcji lncRNA lnRcute oraz odpowiedni do ilościowego oznaczania względnej ekspresji lncRNA występujących w niskim stężeniu. |
| oligonukleotydy miR-145-5p | Generalbiol (Wuhan, Chiny) | ND | Syntetyczny mimik miR-145-5p, inhibitor oraz odpowiadające im oligonukleotydy kontrolne negatywne, wykorzystywane do modulacji aktywności miR-145-5p w komórkach BV2. Stosowane w analizach ekspresji, testach stanu zapalnego, stresu oksydacyjnego oraz w podwójnym teście reporterowym lucyferazy. |
| Zestaw do syntezy pierwszej nici cDNA miRNA miRcute Plus | TIANGEN | KR21-02 | Zastosowano połączoną w jednej probówce reakcję poliadenylacji i odwrotnej transkrypcji w celu uproszczenia przebiegu eksperymentu. Mieszanina enzymatyczna zawiera polimerazę poli(A) z E. coli, odwrotną transkryptazę pozbawioną aktywności RNazy H oraz inhibitor RNazy, co pozwala na specyficzne celowanie w dojrzałe jednoniciowe miRNA i zapobiega zakłóceniom amplifikacji przez pre-miRNA o strukturze spinki do włosów. Metoda jest odpowiednia dla miRNA wyekstrahowanego z lizatów komórkowych, osocza oraz próbek tkanek. |
| Zestaw do detekcji miRNA metodą qPCR miRcute Plus (SYBR Green) | TIANGEN | FP41 | Premiks SYBR Green zoptymalizowany do kwantyfikacji dojrzałego miRNA, w pełni kompatybilny z produktami odwrotnej transkrypcji miRcute. System buforowy zwiększa wydajność przyłączania starterów dla krótkich amplikonów miRNA, zapewnia stabilne sygnały fluorescencji oraz wysoką czułość w wykrywaniu słabo eksponowanych miRNA. U6 snRNA jest powszechnie stosowane jako wewnętrzny odnośnik do normalizacji. |
| roztwór penicyliny i streptomycyny (10×) | Beyotime Biotechnology | C022 | Sterylnie filtrowana mieszanina zawierająca 10 0 J/ml penicyliny i 10 mg/ml streptomycyny; rozcieńczenie robocze 1:10 w pożywce hodowlanej w celu zapobiegania kontaminacji bakteryjnej. |
| Zestaw do oznaczania reaktywnych form tlenu z rozcieńczalnikiem | Beyotime Biotechnology | S034M | Zestaw ten wykorzystuje sondę fluorescencyjną DCFH-DA do ilościowego oznaczania wewnątrzkomórkowych reaktywnych form tlenu (ROS). DCFH-DA przenika przez błonę komórkową i jest hydrolizowany przez wewnątrzkomórkową esterazę do DCFH, który następnie ulega utlenieniu przez ROS do fluorescencyjnego DCF. Zestaw jest kompatybilny z mikropłytkami 96-dołkowymi i fluorescencyjnymi czytnikami mikropłytek, co umożliwia detekcję wysokoprzepustową (Ex = 48 nm, Em = 525 nm). Wyposażono go w dedykowany rozcieńczalnik sondy oraz reagent kontroli pozytywnej Rosup w celu stabilizacji sygnałów barwienia; zestaw nadaje się do wykrywania stresu oksydacyjnego w adherentnych mikroglejach BV2 bez konieczności lizy komórek. |
| Zestaw do oznaczania zredukowanego glutationu (GSH) | Nanjing Jiancheng Bioengineering Institute | A06-1-2 | Kolorymetryczny zestaw do mikropłytek do wykrywania zredukowanego glutationu (GSH), głównego wewnątrzkomórkowego przeciwutleniacza. GSH reaguje z kwasem ditiodinitrobenzoenowym (DTNB), tworząc żółty produkt chromogenny, którego absorbancję mierzy się przy 405 nm za pomocą czytnika mikropłytek. Zestaw adaptuje standardowy protokół probówkowy do wysokoprzepustowego wykrywania w 96-dołkowych mikropłytkach w celu analizy przeciwutleniaczy w lizatach komórkowych. |
| si-LINC0707 | GenePharma (Szanghaj, Chiny) | ND | Małe interferujące RNA zaprojektowane w celu redukcji ekspresji LINC0707 w komórkach BV2. Stosowane w eksperymentach z utratą funkcji w celu oceny wpływu wyciszenia LINC0707 na odpowiedziy zapalne, stres oksydacyjny, ekspresję miR-145-5p oraz ekspresję TRAF6. |
| si-LINC0707 NC | GenePharma (Szanghaj, Chiny) | Brak danych | Niekierunkowe małe interferujące RNA użyte jako kontrola negatywna dla transfekcji si-LINC0707. Służą do kontroli nieswoistych efektów procedury transfekcji oraz ekspozycji na siRNA. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Uniwersalna mieszanina (premix) do ilościowej reakcji PCR z użyciem SYBR Green do względnej kwantyfikacji mRNA, zawierająca polimerazę Taq typu hot-start, dNTP, SYBR Green I oraz barwnik referencyjny ROX do normalizacji fluorescencji. Niska amplifikacja niespecyficzna, stabilna wydajność amplifikacji, szerokie zastosowanie w kwantyfikacji genów docelowych mRNA (TRAF6, GAPDH itp.). |
| Mała wirówka laboratoryjna Thermo ScientificTM SorvallTM ST 8 | Thermo Scientific | 75200709 | Klasyczny wybór dla laboratoriów klinicznych, zdolny do obsługi do 24 × 5/7 mL probówek do pobierania krwi jednocześnie. Seria R jest wersją chłodzoną, która zapewnia lepszą ochronę próbek wymagających wirowania w niskiej temperaturze. |
| Zestaw do syntezy pierwszej nici cDNA TIANScript II | TIANGEN | GKR107-02 | Zaprojektowany do ogólnej odwrotnej transkrypcji mRNA w celu generowania długich cDNA o długości do 12 kb. Wyposażony zarówno w primery Oligo(dT)15, jak i randomowe heksamery, co umożliwia stosowanie elastycznych strategii inicjacji syntezy. Modyfikowana odwrotna transkryptaza M-MLV efektywnie przepisuje sekwencje o wysokiej zawartości GC oraz złożone struktury drugorzędowe mRNA, wykazując szeroką kompatybilność z późniejszą amplifikacją mRNA w technice qPCR. |
| TNF-α Zestaw SimpleStep ELISA | Abcam | ab236712 | Szybki zestaw do testu sandwich ELISA SimpleStep z jednym etapem płukania, zoptymalizowany do ilościowego oznaczania czynnika martwicy nowotworu szczura-α (TNF-α) w supernatancie hodowli komórkowej, surowicy oraz różnych próbkach osocza. Całkowity czas trwania analizy wynosi 90 min, przy ultra-wysokiej czułości na poziomie 1,04 pg/mL i liniowym zakresie detekcji od 15,63 pg/mL do 100 pg/mL. Wyposażony w odłączane 8×płyta 12-dołkowa pokryta uprzednio; wartości OD przy 450 nm są rejestrowane dla końcowego TNF-α obliczenia ilościowe |
| Zestaw do oznaczania całkowitej dysmutazy ponadtlenkowej (T-SOD) | Instytut Bioinżynierii Nanjing Jiancheng | A01-3-2 | Chromogeniczny zestaw do mikropłytek WST-1 do oznaczania całkowitej aktywności enzymatycznej SOD. SOD eliminuje rodniki anionowe ponadtlenku i hamuje reakcję redukcji WST-1. Absorbancję rejestruje się przy 450 nm za pomocą czytnika mikropłytek w celu obliczenia aktywności. Zestaw odpowiedni do homogenatów komórkowych, surowicy oraz próbek tkankowych, zapewniający stabilny rozwój barwy i wysoką powtarzalność w ocenie potencjału przeciwutleniającego. |
| Odczynnik TRIzol | Thermo Fisher Scientific | 15596018 | Monofazowy odczynnik fenolowo-gwidynowy izotiocyjanian do jednoetapowej izolacji całkowitego RNA z hodowli komórek mikrogleju; umożliwia jednoczesną ekstrakcję DNA i białek z tych samych próbek. |
Bibliografia
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.