Niniejszy protokół ustanawia powtarzalną metodę przygotowania wysokich przeżywalności suspensji pojedynczych komórek z tkanek gruczołu mlekowego i guzów piersi myszy, która pozwala na zachowanie epitopów powierzchni komórkowych do późniejszych analiz, w tym cytometrii przepływowej i sekwencjonowania RNA pojedynczych komórek.
Artykuł metodologiczny
Dysocjacja tkanek gruczołu mlekowego i guza myszy w celu otrzymania wysokiej żywotności zawiesin pojedynczych komórek
W tym artykule
Podsumowanie
Streszczenie
Dysocjacja tkanki do postaci zawiesin pojedynczych komórek do analizy pomaga w zrozumieniu procesów zachodzących na poziomie komórkowym w mikrośrodowisku guza. Długotrwałym wyzwaniem w pozyskiwaniu i wykorzystywaniu komórek pierwotnych jest otrzymywanie wysokiej jakości zawiesin komórkowych, które zachowują charakterystyki komórek niezbędne do dalszego przetwarzania, w tym sekwencjonowania RNA pojedynczych komórek (scRNA-Seq) lub immunofenotypowania za pomocą cytometrii przepływowej. Zazwyczaj tkanki są dysocjowane przy użyciu kombinacji rozdrabniania mechanicznego, trawienia enzymatycznego i filtracji, a szereg czynników na każdym etapie wprowadza zmienność do otrzymanego produktu. W związku z tym należy przeprowadzić etapy optymalizacji, aby zidentyfikować metodę najlepiej dostosowaną do konkretnego typu tkanki. Na przykład tkanka poduszki tłuszczowej gruczołu mlekowego jest bogata w adipocyty, co utrudnia uzyskanie czystej zawiesiny komórkowej oraz skuteczne zachowanie żywotności komórek. W rezultacie generowanie porównywalnych zawiesin komórkowych z tkanki poduszki tłuszczowej gruczołu mlekowego i guzów epitelialnych jest trudne. Niniejszy protokół ustanawia powtarzalną i kosztowo efektywną metodę generowania wysoce żywotnych zawiesin pojedynczych komórek z mysich tkanek gruczołu mlekowego i guzów, które zachowują epitopy powierzchni komórkowych do dalszych analiz. Procedura ta była wykorzystywana do wytwarzania wysokiej jakości bibliotek scRNA-Seq oraz do przeprowadzania immunofenotypowania z użyciem wieloparametrowej cytometrii przepływowej.
Wprowadzenie
Dysocjacja tkanek umożliwia pozyskanie zawiesin pojedynczych komórek oraz charakterystykę typów komórek w obrębie tkanek. Jest to szczególnie istotne podczas analizy odpowiedzi na immunoterapię, ponieważ naciekające komórki odpornościowe mogą pomóc w wyjaśnieniu mechanizmów leżących u podstaw tkankowo specyficznych odpowiedzi immunologicznych. Szczepienie kwasem deinoksyrybonukleinowym (DNA) kodującym onkogen HER2/neu prowadzi do zwiększenia ochrony przed spontanicznymi guzami gruczołów mlekowych indukowanymi przez HER2/neu w modelach mysich1. Dodatkowo wykazano, że szczepionka DNA indukuje odpowiedź systemową charakteryzującą się produkcją przeciwciał oraz obecnością limfocytów T wydzielających interferon-γ (IFN-γ)1,2,3. Z tego powodu skupiliśmy się na opracowaniu protokołu dysocjacji guzów gruczołów mlekowych oraz bogatych w tkankę tłuszczową tkanek gruczołu mlekowego, aby umożliwić enumerację miejscowej odporności. Dysocjacja tkanki do pojedynczych komórek wymaga metod enzymatycznych, mechanicznych lub obu tych metod jednocześnie. Jednym z wyzwań związanych z dysocjacją enzymatyczną jest konieczność ekspozycji na enzymy przez dłuższy czas, często przez noc4. Nadmierna ekspozycja prowadzi do degradacji poszczególnych komórek i markerów powierzchniowych, wywierając najbardziej szkodliwy wpływ na komórki odpornościowe5,6. Trawienie mechaniczne może być dobrą opcją uwalniania komórek odpornościowych, takich jak limfocyty i makrofagi, choć nie rozkłada ono skutecznie stromy, co uniemożliwia uzyskanie reprezentatywnej próbki komórek nabłonkowych i stromalnych. Niedawno badano zastosowanie mikroprzepływów do dysocjacji tkanek, które po raz pierwszy wykorzystano do rozbijania agregatów komórkowych w roztworze7. Jeden z zespołów wdrożył podejście mikroprzepływowe do dalszego rozdrabniania posiekanej tkanki przy użyciu sił ścinających w urządzeniu8. Po 60 min zoptymalizowanej dysocjacji metoda ta pozwoliła na 2-krotny wzrost liczby komórek nabłonkowych i 4-krotny wzrost liczby komórek śródbłonka w porównaniu z tradycyjnym protokołem trawienia enzymatycznego w tkance gruczołu mlekowego. Pojawiły się jednak trudności podczas pomiaru wydajności uzyskiwania hepatocytów z próbki wątroby, gdzie wydajność spadała z czasem, prawdopodobnie ze względu na rozmiar i kruchość hepatocytów. Dlatego znalezienie kompromisu, który pozwoli na uzyskanie czystej reprezentatywnej próbki wielu typów komórek przy jednoczesnym zachowaniu integralności komórek i epitopów powierzchniowych, jest kwestią najwyższej wagi.
Enzymy stosowane w mieszaninach trawiennych zazwyczaj obejmują kombinację ogólnych kolagenaz9,10, trypsyny (Przewodnik po dysocjacji tkanek stałych)4,10,11, hialuronidazy9,10,11 lub dispazy4,9,10 i wymagają różnego czasu dla skutecznego trawienia. Opisany tutaj protokół wykorzystuje dwa specyficzne typy kolagenaz, kolagenazę typu II oraz kolagenazę D, jako główne enzymy trawienne, przy czym kwas etylenodiaminotetraoctowy (EDTA) jest stosowany pomocniczo w celu dalszego osłabienia wiązań międzykomórkowych poprzez chelatację. Kolagenaza typu II to główny enzym dysocjacyjny produkowany przez Clostridium histolyticum, który wspomaga trawienie małych fragmentów kolagenu w macierzy zewnątrzkomórkowej. Kolagenaza D jest również produkowana przez C. histolyticum i była szeroko stosowana do dysocjacji różnych tkanek, takich jak tkanki płuc, serca, mięśniowe, kostne, nerwowe i śródbłonkowe. Kolagenaza ta pomaga zachować funkcjonalność i integralność białek powierzchniowych komórek, co jest istotnym czynnikiem dla późniejszego immunofenotypowania za pomocą cytometrii przepływowej. Oprócz kolagenazy, tkanki są trawione w obecności doksyrybonukleazy I (DNase I), która degraduje wolny DNA, usuwając go tym samym z otrzymanej zawiesiny komórkowej.
Kolejnym wyzwaniem specyficznym dla dysocjacji gruczołów mlekowych jest obecność adipocytów w próbce. Wraz z wiekiem myszy w tkance tłuszczowej gruczołu mlekowego gromadzi się znaczna liczba adipocytów. Komórki te są bardziej kruche i podatne na pękanie podczas dalszej obróbki, co może prowadzić do uwolnienia RNA i wewnątrzkomórkowych resztek do zawiesiny komórkowej, zwiększając ilość wolnego RNA, zakłócając przygotowanie bibliotek scRNA-Seq i obniżając jakość próbki. DNA pozakomórkowe może prowadzić do powstawania agregatów komórkowych; dlatego wszelkie adipocyty pozostałe po wstępnej dysocjacji enzymatycznej muszą zostać usunięte w celu zachowania integralności próbki. Na szczęście wyporność adipocytów można wykorzystać do ich oddzielenia od pozostałych komórek podczas wirowania. Stosując odpowiedni protokół wirowania, adipocyty pozostają na powierzchni nadfiltratu. Pozwala to na usunięcie tych komórek wraz z nadfiltratem, zapobiegając ich włączeniu do głównego osadu komórkowego. Choć nie jest to obowiązkowe, zastosowanie stopniowego zwalniania redukuje siły Coriolisa w probówce, co pomaga utrzymać adipocyty w wyraźnej warstwie na górze, szczególnie w przypadku tkanek mlekowych szczególnie bogatych w adipocyty lub gdy usuwanie adipocytów jest głównym celem badania12,13.
Biorąc pod uwagę te uwarunkowania specyficzne dla danej tkanki, dążyliśmy do opracowania protokołu, który byłby kosztowo efektywny, nie wymagał specjalistycznego sprzętu i pozwalał na uzyskanie reprezentatywnej próbki komórek z tkanki macierzystej o konsekwentnie wysokiej jakości i powtarzalności.
Protokół
Wszystkie procedury opisane w niniejszym protokole zostały przeprowadzone zgodnie z polityką US Public Health Service dotyczącą wykorzystania zwierząt laboratoryjnych oraz za zgodą Institutional Animal Care and Use Committee Uniwersytetu Stanowego w Michigan.
1. Przygotowanie zawiesiny pojedynczych komórek z tkanki nowotworowej myszy oraz tkanki gruczołu mlekowego:
Trawienie tkanek
- Wszystkie nadmiarowe lub niewykorzystane tkanki mysie należy zutylizować jako odpady biologiczne. Plastiki zanieczyszczone tkankami lub komórkami mysimi należy umieścić w odpadach biologicznych w celu utylizacji. Roztwory zawierające komórki należy zebrać do pojemnika na płynne odpady biologiczne i poddać działaniu 10% roztworu wybielacza przed utylizacją.
- Należy upewnić się, że świeży koktajl do trawienia tkanek zostanie przygotowany bezpośrednio przed rozpoczęciem trawienia. Każda próbka wymaga 10 mL koktajlu do trawienia (10 mL pożywki Roswell Park Memorial Institute (RPMI), 60 U DNazy I, 25 mg kolagenazy D, 50 mg kolagenazy typu II). Przechowywać w temperaturze pokojowej (RT) do momentu użycia.
- Myszy uśmiercać poprzez zwichnięcie szyi, stosując dwustronny odma opłucnowa jako drugą metodę eutanazji, z upuszczeniem krwi lub bez.
- Mysz ułożyć w pozycji na plecach, z nogami rozciągniętymi na zewnątrz i przypiętymi.
- Mysz całkowicie spryskać 70% etanolem, aby zapobiec zanieczyszczeniu próbki luźną sierścią.
- Wykonać pojedyncze nacięcie wzdłuż linii środkowej myszy od pachwinowych poduszek tłuszczowych do szyi, uważając, aby nie przebić otrzewnej, a następnie nacięcie wzdłuż każdej nogi, tworząc kształt odwróconego „Y”.
- Rozciągnąć skórę, stosując techniki tępego rozdzielania w celu oddzielenia skóry od leżącej pod nią otrzewnej, a następnie przypiąć skórę płasko do stołu sekcyjnego.
- Usunąć guzy średniej wielkości lub gruczoły mleczne/poduszki tłuszczowe i umieścić w probówce stożkowej 50 mL z 5 mL pożywki do przemywania komórek R10 (R10 to RPMI) z dodatkiem 10% płodowej surowicy bydlęcej (FBS).
- Jeśli to możliwe, należy unikać stosowania guzów martwiczych lub wypełnionych krwią (które mają bardzo ciemny kolor i są miękkie).
- W komorze bezpieczeństwa biologicznego przenieść wyłącznie poduszki tłuszczowe gruczołów mlecznych i guzy do czystej szalki Petriego. Rozdrobić tkankę drobno za pomocą dwóch ostrzy skalpela chirurgicznego, aż uzyska ona konsystencję pastowatą, a następnie umieścić ją w czystej probówce 50 mL. Krok ten należy wykonywać w RT.
- Dodać 10 mL koktajlu do trawienia na każdą próbkę.
- Inkubować w inkubatorze z wytrząsaniem w temperaturze 37 °C przy 250 obrotach na minutę (rpm) przez 30 min.
- Dodać EDTA 0,5 M do stężenia końcowego 10 mM (200 µL EDTA/10 mL buforu do trawienia).
- Ponownie umieścić w inkubatorze z wytrząsaniem w 37 °C i 250 rpm na kolejne 5 min.
- Dodać 40 mL pożywki do przemywania komórek R10, aby zatrzymać reakcję.
- Przefiltrować strawione komórki przez filtr 70 µm do czystej probówki 50 mL w celu usunięcia grudek.
- Wirować przy 500 x g z ustawieniem przyspieszenia 9 i opóźnienia 6 w 4 °C przez 10 min (jeśli interesują wyłącznie komórki limfocytarne, siłę wirowania można zmniejszyć do 300 x g przez 5 min)14 w celu osadzenia komórek. Ponieważ proces ten obejmuje dysocjację tkanki gruczołu mlecznego, która jest bogata w adipocyty, protokół z zmniejszonym hamowaniem pomaga utrzymać gradient utworzony przez pływającą naturę adipocytów podczas wirowania13.
- Odlać nadsącz do odpadów biologicznych, rozbić osad i dodać 40 mL pożywki do przemywania komórek, a następnie wirować jak wyżej (krok 1.15). W kolejnych krokach można powrócić do pełnego hamowania. Zaniechanie tego nie wpłynie negatywnie na próbkę.
- Przemyć 40 mL pożywki do przemywania komórek R10 i wirować jak w kroku 1.15 łącznie 3 razy.
- Rozbić osad i resuspendować komórki w 2 mL zimnego 1 × PBS.
- Dodać dwie objętości 1× buforu do lizy RBC. Rozcieńczyć 10 × koncentrat buforu do lizy do 1 × za pomocą wody (tzn. 2 x = 2 mL 1 × PBS + 4 mL buforu do lizy). Krok ten należy wykonywać w RT.
- Inkubować w temperaturze pokojowej przez 5 min, okazjonalnie delikatnie mieszając poprzez odwracanie probówki.
- Zneutralizować bufor do lizy RBC, dodając równą objętość pożywki do przemywania komórek R10.
- Przefiltrować zawiesinę komórkową przez filtr 30 µm do probówki 15 mL w celu usunięcia resztek komórkowych.
- Uzupełnić objętość do 15 mL pożywką do przemywania komórek R10.
- Wirować przy 500 x g przez 10 min w 4 °C.
- Całkowicie usunąć nadsącz i resuspendować w pożywce do przemywania komórek do objętości końcowej do 5 mL w celu policzenia i oceny żywotności. Resuspendować do pożądanego rozcieńczenia. Przejść do barwienia do cytometrii przepływowej lub przygotowania do scRNA-seq.
- Komórki przechowywać na lodzie pomiędzy poszczególnymi krokami, chyba że wskazano inaczej.
2. Barwienie zawiesiny pojedynczych komórek do cytometrii przepływowej
- Przenieś odpowiednie komórki do 5 mL polipropylenowej probówki z okrągłym dnem i przechowuj na lodzie.
- Przygotuj roztwór do barwienia komórek, używając wybranych przeciwciał monoklonalnych (mAb) sprzężonych z znacznikami fluorescencyjnymi w całkowitej objętości (n + 1) × 100 µL, wykorzystując do tego flow PBS (490 mL 1x PBS, 10 mL FBS, 0,5g azotku sodu). Przygotuj (n+1) × 100 µL roztworu barwiącego, gdzie n = liczba próbek (np. 6 × 100 µL = 600 µL dla 5 próbek).
UWAGA: Azotek sodu w formie proszku jest substancją rakotwórczą. Należy stosować odpowiednie środki ochrony osobistej i umyć cały sprzęt, aby upewnić się, że azotek znajduje się w roztworze przed utylizacją w pojemniku na odpady chemiczne. - Wirowaj każdą próbkę przeznaczoną do barwienia przez 5 min w temperaturze 4 °C przy 500 x g. Resuspenduj w 100 µL roztworu barwiącego. Kontrole niebarwione resuspenduj w 1000 µL flow PBS.
- Przykryj probówki, aby chronić je przed światłem, i inkubuj w temperaturze 4 °C przez 15 min.
UWAGA: Przeciwciała znakowane fluorescencyjnie mogą ulegać degradacji przy długotrwałym wystawieniu na światło i powinny pozostawać przykryte podczas inkubacji oraz późniejszego przechowywania próbek. - Dodaj 1 mL flow PBS do każdej zabarwionej probówki i wirowaj przy 500 x g, 4 °C, przez 5 min w celu przemycia.
- Odlaniu nadpływ, rozbij grudkę (pellet) i resuspenduj komórki w 1 mL flow PBS. Wirować jak poprzednio (Krok 2.5).
- Powtórz krok 2.6, aby uzyskać łącznie trzy przemycia. Odlaniu nadpływ i rozbij grudki.
- Resuspenduj komórki w roztworze do fiksacji lub w flow PBS, w zależności od wymaganych kolejnych barwień.
- Zastosuj w przypadku fiksacji komórek lub wykonywania barwienia wewnątrzkomórkowego. W przeciwnym razie przejdź do Kroku 2.10:
- Dodaj 200 µL roztworu do permeabilizacji/fiksacji do każdej próbki, aby umożliwić barwienie wewnątrzjądrowe.
- Przykryj komórki folią aluminiową i inkubuj przez co najmniej 20 min w temperaturze 4 °C. Jeśli planujesz analizę próbek w innym dniu, na tym etapie można je przechowywać przykryte w temperaturze 4 °C przez noc.
- Po fiksacji wirowaj próbki przy 500 x g przez 5 min i resuspenduj w 1 × buforze do permeabilizacji (rozcieńczonym w wodzie).
- W przypadku przygotowania barwienia wtórnego lub wewnątrzkomórkowego, zabarwij próbki przy pożądanym rozcieńczeniu w 1x buforze do permeabilizacji. Umieść przykryte probówki w inkubatorze w temperaturze 4 °C na 15–20 min.
- Dodaj 1 mL 1x bufora do permeabilizacji do każdej zabarwionej probówki i wirowaj przy 500 x g przez 5 min w celu przemycia.
- Odlaniu nadpływ, rozbij grudkę i resuspenduj komórki w 1 mL 1x bufora do permeabilizacji. Wirować jak poprzednio (Krok 9.5).
- Powtórz krok 2.9.6, aby uzyskać łącznie trzy przemycia. Odlaniu nadpływ i rozbij grudki.
- Resuspenduj komórki w 200 µL 1x bufora do permeabilizacji i przechowuj na lodzie do momentu analizy na cytometrze przepływowym.
- W przypadku braku fiksacji komórek, resuspenduj je w 200 µL flow PBS i przechowuj na lodzie do momentu analizy na cytometrze przepływowym.
- W przypadku analizy scRNA-Seq postępuj zgodnie z protokołami usuwania zanieczyszczeń i martwych komórek, oceny jakości RNA oraz generowania bibliotek.
3. Ocena jakości biblioteki scRNA-Seq
- Należy zwrócić uwagę na wysoki odsetek odczytów pewnie przypisanych do komórek. Idealnie wartość ta powinna być większa niż 90%.
- Należy porównać liczbę unikalnych identyfikatorów molekularnych (UMI) z kodami kreskowymi. Próbka wysokiej jakości będzie charakteryzować się gwałtownym spadkiem liczby UMI przy około 10 000 kodów kreskowych (tzw. „punkt przegięcia” na wykresie rangi kodów kreskowych).
- Należy przeanalizować mapy UMAP (aproksymacja i projekcja rozmaitości jednorodnej). Próbka wysokiej jakości pobrana z tkanek złożonych, takich jak gruczoły mleczne lub spontaniczne guzy gruczołu mlekowego, będzie wykazywać wyraźne, dobrze odseparowane klastry komórkowe.
- Należy określić liczbę ekspresyjnych genów mitochondrialnych (mt-); klastry z wysoką liczbą genów mitochondrialnych wskazują, że komórki są martwe lub obumierające.
Wyniki
HER2 jest onkogenem nowotworowym, który napędza rozwój agresywnych guzów piersi u kobiet, a do 70% kobiet leczonych przeciwciałami monoklonalnymi skierowanymi przeciwko HER2 nie wykazuje odpowiedzi lub rozwija oporność na taką terapię15,16,17,18. Nadrzędnym celem jest aktywacja odpowiedzi immunologicznej przeciwko HER2/neu w celu poprawy odporności przeciwko HER2 i zwiększenia przeżywalności. Aby badać odporność przeciwko HER2/neu, stosuje się immunokompetentne modele mysie, u których rozwijają się spontaniczne guzy piersi napędzane przez HER2/neu2,19. HER2 jest kodowany przez ludzki gen Erbb2, a neu przez szczurzy gen Erbb2. Myszy BALB NeuT posiadają transformujący transgen szczurzego neu (NeuT), sterowany przez promotor MMTV19. Neu jest ekspresowany w gruczołach mlekowych dojrzewających samic myszy na tle genetycznym BALB, co prowadzi do rozwoju raka przewodowego (Rysunek 1A, wstawka) u wszystkich transgenicznych samic w jednym lub wszystkich gruczołach mlekowych. Ciągła ekspresja neu prowadzi do powstania wyczuwalnych guzów między 14. a 19. tygodniem życia, które postępują w rozwoju1. Szczepienie myszy transgenicznych plazmidowym DNA kodującym zarówno autologiczny neu, jak i heterologiczny HER2 (nazwane pNeuE2TM), może przełamać tolerancję immunologiczną na neu, prowadząc do zwiększenia liczby układowych poliklonalnych przeciwciał skierowanych przeciwko neu oraz wydzielających IFN-γ komórek T śledzionowych1. Odpowiedź immunologiczna ta doprowadziła do odrzucenia komórek nowotworowych TUBO wykazujących ekspresję neu. Chociaż odpowiedź układowa jest informacyjna, nie pozwala ona na zrozumienie mechanizmu działania w miejscu guza. W związku z tym postanowiliśmy opracować protokół dysocjacji tkanek gruczołu mlekowego i guzów piersi, który pozwoli uzyskać pojedyncze komórki o wysokiej żywotności przy jednoczesnym zachowaniu markerów powierzchniowych komórek. Rysunek 1 przedstawia schemat postępowania. W skrócie, po pobraniu tkanka jest drobno siekana skalpelami (Rysunek 1B) i umieszczana w buforze do trawienia tkanek na bazie RPMI, zawierającym kombinację 2 części kolagenazy typu II na 1 część kolagenazy D oraz DNazy I, na 30 min w inkubatorze z wytrząsaniem (Rysunek 1C–D), a następnie przez dodatkowe 5 min z 0,5 M EDTA (Rysunek 1E). Trawienie jest przerywane poprzez dodanie buforu płuczącego zawierającego FBS, a następnie mieszanina jest filtrowana w celu usunięcia szczątków tkankowych (Rysunek 1F). Po etapach płukania i lizie czerwonych krwinek (Rysunek 1G–H), komórki są przeciskane przez sito 30 µm i przeliczane (Rysunek 1I–K oraz Rysunek 2). Na tym etapie komórki mogą zostać przeznaczone do dalszych analiz, takich jak cytometria przepływowa lub scRNA-Seq.
W celu bezpośredniego porównania dysocjację przeprowadzono równolegle przy użyciu zestawu komercyjnego. W przypadku guzów typu „Tough” zastosowano opublikowany protokół, a po neutralizacji enzymów próbki poddano tym samym zabiegom (np. lizie RBC itp.). Przy użyciu zestawu komercyjnego odzyskano 1,3 × 10⁶ komórek/mL przy żywotności 76%, podczas gdy przy zastosowaniu opisanego tutaj protokołu odzyskano 4,5 × 10⁶ komórek/mL przy żywotności 89% (Rysunek 2A,B). Ilość debris po obu protokołach, po przeprowadzeniu lizy RBC, była podobna. Aby usunąć martwe komórki, 1 × 10⁷ komórek z każdego protokołu przepuszczono przez system usuwania martwych komórek. Zestaw komercyjny pozwolił na odzyskanie 1,3 × 10⁶ komórek/mL przy żywotności 96% w porównaniu do 1,94 × 10⁶ komórek/mL i żywotności 98% dla protokołu opisanego w niniejszej pracy (Rysunek 2C,D). Zatem protokół opisany w niniejszej pracy zapewnił wyższą wydajność żywych komórek do dalszych analiz bez konieczności stosowania specjalistycznego sprzętu.
W celu szczegółowej oceny jakości i powtarzalności zawiesin komórkowych uzyskanych zgodnie z opisanym tutaj protokołem, pobrano próbki gruczołów mlekowych od naiwnych samic myszy BALB oraz BALB NeuT w wieku 16–18 tygodni. Tkanka BALB NeuT zawierała zarówno tkankę gruczołu mlekowego, jak i tkankę nowotworową. Pobrano tkankę z pachwinowych poduszek tłuszczowych gruczołów mlekowych (gruczoły mlekowe 4 i 9), w tym tkankę nowotworową z BALB NeuT, a następnie poddano ją dysocjacji do postaci homogenicznego roztworu w celu przeprowadzenia dalszych analiz. Należy zauważyć, że przed pobraniem gruczołów mlekowych usunięto węzły chłonne wartownicze.
Po przetworzeniu próbki oceniono za pomocą cytometrii przepływowej w celu potwierdzenia zachowania markerów powierzchniowych i żywotności komórek (Rysunek 3), a następnie poddano analizie scRNA-Seq (Rysunek 4), aby zweryfikować jakość preparatu komórkowego pod kątem generowania bibliotek. Żywotność pojedynczych komórek gruczołu mlekowego lub pochodzących z guza wynosiła średnio ≥85% przed usunięciem martwych komórek. W celu uzyskania wysoce żywotnego preparatu komórkowego startowego do scRNA-Seq można zastosować dostępne komercyjnie zestawy do usuwania martwych komórek i debrisów. Po zastosowaniu tych protokołów żywotność preparatów pojedynczych komórek wynosiła od 94% do 98% (Rysunek 2C,F). Komórki uzyskane zgodnie z niniejszym protokołem utrwalono i porównano z zalecaną metodą utrwalania dla scRNA-Seq, określaną jako komercyjny protokół dysocjacji z utrwalaniem wstępnym, wykorzystujący komercyjną termolizynę (Rysunek 2E,F). Komercyjny protokół dysocjacji z utrwalaniem wstępnym pozwolił uzyskać 1,5 × 10⁷ komórek/mL, a żywotność nie była mierzona, ponieważ tkanka jest utrwalana przed dysocjacją, podczas gdy niniejszy protokół pozwolił uzyskać 8,6 × 10⁶ komórek/mL przy początkowej żywotności 94%. Zatem komercyjny protokół dysocjacji z utrwalaniem wstępnym dał porównywalną lub nieco wyższą liczbę komórek niż protokół opisany w niniejszej pracy.
Komórki barwiono i analizowano pod kątem markerów powierzchniowych przy użyciu cytometrii przepływowej. Komórki nabłonkowe (Rysunek 3A) oraz fibroblasty (Rysunek 3B) zidentyfikowano poprzez barwienie odpowiednio przeciwciałami mAb przeciwko EpCAM i Pdgfrb/CD140a. Ponieważ trzykrotne szczepienie myszy BALB NeuT DNA HER2/neu doprowadziło do znacznego opóźnienia wystąpienia guza oraz wywołania odporności systemowej, szczególnie istotna była ocena komórek odpornościowych w gruczołach mlekowych i guzach. Komórki CD45+ linii immunologicznej stanowiły ~50% zawiesiny komórkowej (Rysunek 3C). Obecność limfocytów B i T oceniano za pomocą markerów B220/CD45R oraz CD3 (Rysunek 3D), a limfocyty T CD3+ podzielono dalej na populacje CD4 i CD8 (Rysunek 3E). Aby ocenić zdolność do zachowania rzadkich populacji komórkowych, próbki barwiono pod kątem limfocytów T regulatorowych. W tym celu próbkę komórkową utrwalono i barwiono na swoisty dla komórek Treg czynnik transkrypcyjny Foxp3. Limfocyty T regulatorowe zazwyczaj stanowią niewielką część całkowitej populacji immunologicznej organizmu, choć ich rola w modulacji układu odpornościowego jest przedmiotem dużego zainteresowania w badaniach nad rakiem i chorobami autoimmunologicznymi. Dlatego wiarygodna izolacja małych, lecz istotnych populacji komórek odpornościowych, takich jak limfocyty T regulatorowe, jest kluczowa przy wyborze protokołu dysocjacji tkanki. Limfocyty T regulatorowe Foxp3+ zidentyfikowano poprzez wstępne bramowanie komórek CD3+CD4+ pod kątem ekspresji CD25 (wysokoafininitycznego receptora IL-2) oraz Foxp3. Stosując tę strategię bramowania, ~5% komórek CD4+ było pozytywnych dla obu markerów, podczas gdy ~25% było pozytywnych dla Foxp3, lecz wykazywało niską ekspresję lub brak ekspresji CD25 (Rysunek 3F). Marker CD64 oceniano na oddzielnej próbce guza, aby upewnić się, że makrofagi CD64+ mogą zostać skutecznie wyizolowane przy użyciu tej techniki dysocjacji (Rysunek 3G). W celu identyfikacji szerszych grup mieloidalnych wyznaczono makrofagi F4/80+ oraz komórki F4/80- CD11c+, zidentyfikowane jako komórki dendrytyczne (Rysunek 3H). Komórki dendrytyczne stanowiły około 3% wszystkich komórek, natomiast neutrofile CD11b+Ly6G+ stanowiły ~5% (Rysunek 3H,I). Zatem, stosując powyższy protokół dysocjacji zarówno tkanki gruczołu mlekowego, jak i guza, osiągnięto wiarygodną odzyskalność i zachowanie epitopów powierzchniowych w komórkach CD45+.
Przed przekazaniem próbek do generowania bibliotek scRNA-Seq można ocenić integralność RNA. Świeże próbki przygotowane zgodnie z protokołem komercyjnym lub protokołem opisanym w niniejszej pracy wykazały stosunki A260/230 odpowiednio na poziomie 1,9 oraz 2,2. Próbki utrwalone ocenia się poprzez wyznaczenie procentu odczytów dłuższych niż 200 nukleotydów (nt). Zastosowanie opisanego tutaj protokołu, po którym nastąpiło natychmiastowe utrwalenie i przechowywanie w temperaturze –80 °C, pozwoliło uzyskać 83% odczytów > 200 nt w próbce.
Jakość próbek
Po przygotowaniu biblioteki scRNA-Seq i sekwencjonowaniu oceniono jakość próbek (Rycina 4). Biblioteki próbek scRNA-Seq są najpierw oceniane za pomocą metryk określających identyfikację komórek (cell calling) i jakość mapowania, wykresu rangi kodów kreskowych (barcode rank plot), nasycenia sekwencjonowania oraz projekcji UMAP. Dysocjacja tkanki gruczołu mlekowego myszy BALB z użyciem opisanego tutaj protokołu dysocjacji pozwoliła uzyskać 16 182 komórki, przy czym 97% odczytów przypisano do komórek, co wskazuje na dobrą jakość próbki, gdyż niewielka liczba odczytów została przypisana do pozakomórkowego RNA. Znaczący odsetek odczytów zarejestrowanych poza komórką wskazuje na zwiększony poziom zanieczyszczenia zewnętrznym mRNA z martwych lub obumierających komórek. Jakość mapowania to procent sond, które zmapowano do zestawu sond; wyniosła ona 99,1%. Nasycenie sekwencjonowania osiągało poziom plateau, co wskazywało na replikację już zidentyfikowanych genów, a nie na wykrywanie unikalnych genów. Wykres rangi kodów kreskowych przedstawia liczbę UMI w stosunku do kodów kreskowych, a wysokiej jakości próbka wykazuje wyraźny spadek, tzw. „zgięcie kolana”, przy ok. 10K UMI (Rycina 4A). Wreszcie, projekcja UMAP wykazuje kilka wyraźnych klastrów (Rycina 4A). Wszystkie te metryki wskazują na wysoką jakość biblioteki scRNA-Seq.
Aby porównać jakość niniejszego protokołu z zalecanym komercyjnym protokołem dysocjacji z uprzednią fiksacją dla chemii Flex, przeprowadzono równolegle komercyjny protokół dysocjacji z uprzednią fiksacją i oceniono jakość powstałej biblioteki. Komercyjny protokół dysocjacji z uprzednią fiksacją dla próbek gruczołu mlekowego BALB pozwolił na odzyskanie 720 komórek, przy czym 68% odczytów przypadało na komórki, a jakość mapowania wyniosła 89,3%. Podobnie nasycenie zaczynało osiągać plateau, jednak liczba genów na komórkę była wyraźnie niższa niż w przypadku dysocjacji żywych komórek (4 500 genów/komórkę dla żywych względem 1 000 genów/komórkę dla komercyjnego protokołu dysocjacji z uprzednią fiksacją). Wykres rangi kodów kreskowych nie wykazuje punktu przegięcia (Rycina 4B), a choć widoczne są wyraźne klastry, jest ich mniej (Rycina 4B).
Oceniono również jakość bibliotek tkanki gruczołu mlekowego z guzami myszy BALB NeuT (Ryc. 4C,D). Stosując opisaną tutaj dysocjację na żywo, zsekwencjonowano 18 077 komórek, przy czym 97% odczytów pochodziło z komórek, a 99,1% zmapowano do zestawu sond. Widoczne było załamanie krzywej (knee bend) (Ryc. 4C), a także wyraźna separacja między klastrami (Ryc. 4C). Komercyjny protokół dysocjacji z uprzednią fiksacją wykazał lepsze wyniki w obecności guza: zsekwencjonowano 7 119 komórek, 91% odczytów pochodziło z komórek, a 98,6% odczytów zmapowano do zestawu sond. Na wykresie rangi kodów kreskowych (barcode rank plot) zaobserwowano wyraźniejsze załamanie krzywej (Ryc. 4D), jednak mimo nasycenia sekwencjonowania, projekcje UMAP zawierały niewiele odrębnych klastrów (Ryc. 4D).
Dodatkowe wskaźniki jakości obejmują określenie liczby ekspresjonowanych genów mitochondrialnych w klastrach komórkowych. Dobra separacja komórek świadczy o jakości próbki, przy czym wysoki procent „reads in cell” potwierdza żywotność próbki. Komórki z wysoką liczbą genów mitochondrialnych (oznaczonych jako „mt-”) można zidentyfikować i usunąć za pomocą otwartych narzędzi klastrowania lub narzędzi dostarczonych przez producenta. Bezpośrednie porównanie próbek można przeprowadzić poprzez agregację próbek w aplikacji Cell Ranger, co umożliwia bezpośrednie porównanie bioinformatyczne, lub poprzez zastosowanie skryptu „integration” w otwartych lub komercyjnych narzędziach klastrowania. Klastry komórkowe są identyfikowane poprzez wyszukiwanie znanych markerów linii komórkowych (np. CD45/Ptprc dla komórek odpornościowych, EpCAM dla komórek nabłonkowych, Fap lub Pdgfra dla fibroblastów). Jeśli klastra komórkowego nie można zdefiniować za pomocą znanych markerów linii, w celu uzyskania informacji o potencjalnym typie komórek można przeanalizować 10–15 najsilniej ekspresjonowanych genów za pomocą narzędzi do analizy wzbogacenia zestawów genów (gene-set enrichment tools). Alternatywnie, najsilniej ekspresjonowane geny można zweryfikować w narzędziach do atlasów komórkowych w celu sprawdzenia ich ekspresji w znanych typach komórek.
Z każdej próbki usunięto komórki z wysoką liczbą genów mitochondrialnych, co pozostawiło 16 114 komórek (0,5% komórek zawierających wysoką liczbę genów mitochondrialnych) w gruczole mlekowym BALB oraz 18 024 komórki (0,3%) w BALB NeuT. W ramach próbek opracowanych zgodnie z komercyjnym protokołem dysocjacji z wcześniejszą fiksacją, w gruczole mlekowym BALB pozostało 627 komórek (13% komórek zawierających wysoką liczbę genów mitochondrialnych), a w BALB NeuT pozostało 6 181 (14%) komórek.
Integracja gruczołów mlecznych myszy BALB i BALB NeuT została przeprowadzona dla opisanego tutaj protokołu dysocjacji żywych komórek i jest przedstawiona na rysunku 4E,F. Porównanie próbek wykazało podobne populacje komórek pomiędzy bibliotekami (rysunek 4E, F oraz tabela 1). Klastry komórkowe zostały oznakowane przy użyciu znanych markerów linii komórkowych, a następnie przeprowadzono porównania między próbkami. Populacje komórek odpornościowych obejmowały limfocyty T, limfocyty B oraz klastry makrofagów, natomiast populacje komórek nieodpornościowych obejmowały komórki nabłonkowe, fibroblasty i komórki śródbłonka. Przewidywalnie w próbce BALB NeuT wystąpiła dodatkowa populacja komórek nowotworowych (rysunek 4F). Analizując konkretne populacje komórek, w próbce BALB NeuT z nowotworem stwierdzono więcej makrofagów, ale mniej limfocytów T i nienowotworowych komórek nabłonkowych. Analiza scRNA-Seq wykazała porównywalną populację komórek nabłonkowych pochodzących z gruczołu mlekowego BALB oraz znaczną populację komórek nabłonkowych/nowotworowych w odpowiedniku NeuT. Wykres redukcji wymiarowości pokazuje wyraźne rozróżnienie między normalną populacją komórek nabłonkowych rezydujących w gruczole mlekowym a komórkami nowotworowymi nabłonka charakterystycznymi dla próbki BALB NeuT (rysunek 4E,F).
Po wyodrębnieniu populacji nabłonkowych, oceniono komórki zrębu w próbkach BALB i BALB NeuT. Analiza ekspresji genu receptora czynnika wzrostu płyt obsessive alfa (Pdgfrα) w fibroblastach pozwoliła zidentyfikować odrębną populację fibroblastów w obu próbkach, BALB oraz BALB NeuT. W próbce scRNA-Seq BALB fibroblasty wykazujące ekspresję Pdgfrα stanowiły 15% komórek, co było nieco niższym wynikiem niż w analizie przeprowadzonej metodą cytometrii przepływowej, w której fibroblasty stanowiły 29% komórek (Rycina 3B). Po zastosowaniu bramkowania pod kątem żywotności oraz statusu pojedynczych komórek, fibroblasty zidentyfikowano metodą cytometrii przepływowej przy użyciu markera PDGFRα (CD140a). Wyniki obserwowane we wszystkich próbkach, niezależnie od zastosowanych metod analizy końcowej, potwierdzają powtarzalność tego protokołu dysocjacji w czasie oraz w wielu próbach.
Białko CD45 jest kodowane przez gen Ptprc, a sekwencjonowanie RNA komórek wykazujących ekspresję Ptprc ujawniło w próbce wyraźnie identyfikowalne klastry limfocytów (Ryc. 4E). Aby dalej ocenić populacje limfocytów, przeanalizowano populacje limfocytów B i T pod kątem ekspresji Cd3e+ lub Cd79a+ (Ryc. 4E,F). Populacje te były wyraźnie rozdzielone w analizie danych z sekwencjonowania pojedynczych komórek, choć scRNA-Seq pozwoliło dodatkowo zidentyfikować kilka subklastrów limfocytów T wykazujących ekspresję Cd3. Dodatkowe zliczenia komórek odpornościowych z analizy sekwencjonowania wykazały wzrost liczby makrofagów w próbce BALB NeuT, co wskazywała ekspresja Itgam i Adgre1 (F4/80) (Ryc. 4F). W celu oceny możliwości identyfikacji rzadkich populacji komórek w scRNA-Seq, limfocyty T regulatorowe zidentyfikowano na podstawie ekspresji Foxp3 (Ryc. 4F). Limfocyty T regulatorowe są obecne w bibliotekach scRNA-Seq, ale nie były wystarczająco liczne, aby utworzyć odrębny klaster. Zamiast tego zgrupowały się one z limfocytami T oraz komórkami natural killer (NK).
Wreszcie, zdolność do identyfikacji neutrofili (PMN) w bibliotekach scRNA-Seq była źródłem trudności i nie została osiągnięta przy użyciu innych dostępnych komercyjnie protokołów dysocjacji gruczołu mlekowego20. Przy użyciu cytometrii przepływowej zidentyfikowano, że ~5% komórek odpornościowych stanowiły neutrofile wykazujące ekspresję Ly6G i CD11b (Rysunek 3H). Aby zidentyfikować neutrofile w bibliotekach scRNA-Seq, zaleca się ponowne klastrowanie z wykorzystaniem potoków analizy dostawcy w celu wyznaczenia komórek poniżej standardowego punktu przegięcia (knee bend). Praktyka ta została zastosowana zarówno dla bibliotek gruczołu mlekowego myszy BALB, jak i BALB NeuT. Wykresy kropkowe genów typowo związanych z makrofagami (Ptprc, Adgre1, Mrc1) porównano z genami ekspresjowanymi przez neutrofile (S100a8, Trem1, Clec4). Ani biblioteki BALB, ani BALB NeuT nie zawierały znaczącej liczby neutrofili (Rysunek 5A,B). Wydaje się jednak, że zależy to od tła modelu, ponieważ myszy F1 NeuT na tle BALB x PWK posiadały klaster komórek wykazujący markery neutrofili (Rysunek 5C).
W ten sposób niniejszy protokół dysocjacji umożliwił wyjaśnienie typów komórek w gruczołach mlekowych myszy BALB oraz myszy BALB NeuT rozwijających spontaniczne guzy piersi. Ze względu na wysoką żywotność tych komórek, technikę tę można wykorzystać do oceny odporności przeciwnowotworowej oraz funkcjonalności anty-HER2/neu izolowanych populacji komórek odpornościowych.
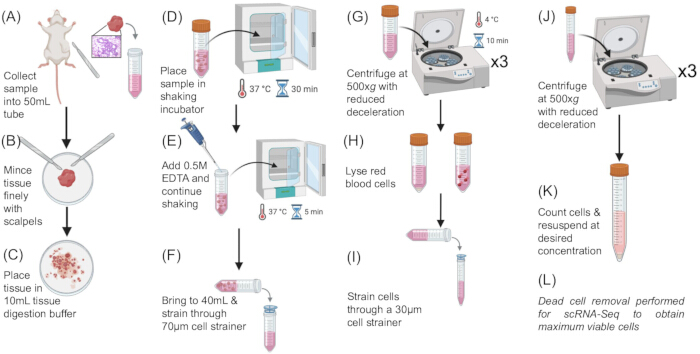
Rycina 1: Schemat protokołu dysocjacji tkanki. (A) Gruczoły mlekowe lub guzy zostały usunięte (B,C), drobno posiekane (D) i trawione w temperaturze 37 °C przy wstrząsaniu w koktajlu zawierającym kolagenazę typu II, kolagenazę D oraz DNazę I (E). Dodano EDTA i kontynuowano trawienie przez kolejne 5 min. (F) Trawienie przerwano, uzupełniając objętość do 40 mL pożywką RPMI z dodatkiem 10% FBS (medium piorące R10), a następnie zawiesinę przefiltrowano przez filtry 70 µm. (G) Zawiesiny komórkowe wirowano w temperaturze 4 °C przy 500 × g przez 10 min, a następnie przemyto 3 razy medium piorącym RPMI. (H) Krwinki czerwone (RBC) poddano lizie przy użyciu 10 × roztworu do lizy RBC na bazie chlorku amonu. (I) Do przerwania lizy użyto buforu piorącego R10, a zawiesiny komórkowe przefiltrowano przez filtry 30 µm. (J,K) Po lizie krwinek czerwonych komórki przemyto dodatkowo trzykrotnie przed oceną ich stężenia i żywotności. (L) Jeśli komórki są wykorzystywane do generowania bibliotek scRNA-Seq, martwe komórki i debris usuwa się za pomocą dostępnych komercyjnie zestawów, zgodnie z ich protokołami. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
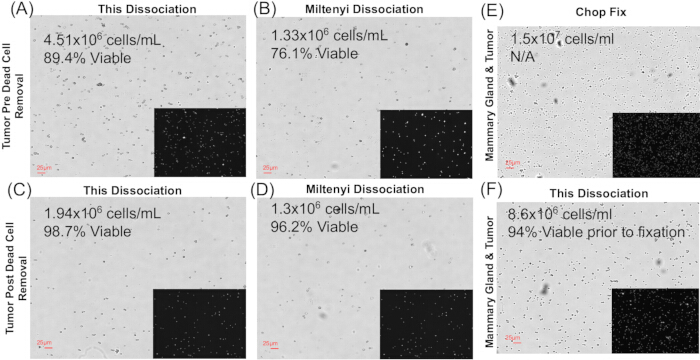
Rycina 2: Porównanie dysocjacji. Dane dotyczące liczby i żywotności komórek służące do porównania opisanego tutaj protokołu dysocjacji z dostępnym komercyjnie protokołem Miltenyi oraz komercyjnym protokołem dysocjacji z uprzednią fiksacją zalecanym dla scRNA-Seq. Liczba komórek po dysocjacji została wyznaczona za pomocą automatycznego licznika komórek z barwieniem martwych komórek akrydyną pomarańczową/jodkiem propidyny (AO/PI). Komórki przeliczono, a żywotność zarejestrowano po usunięciu martwych komórek. (A–B) Liczba i żywotność komórek bezpośrednio przed usunięciem martwych komórek. (C–D) Liczba i żywotność komórek po usunięciu martwych komórek, co reprezentuje próbkę wprowadzaną do analizy scRNA-Seq. (E–F) Liczba i żywotność komórek przy porównaniu opisanego tutaj protokołu z komercyjnym protokołem dysocjacji z uprzednią fiksacją. Żywotności nie można było ocenić po dysocjacji z wykorzystaniem protokołu zawierającego Liberase, ponieważ próbka tkanki została ufiksowana przed dysocjacją. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
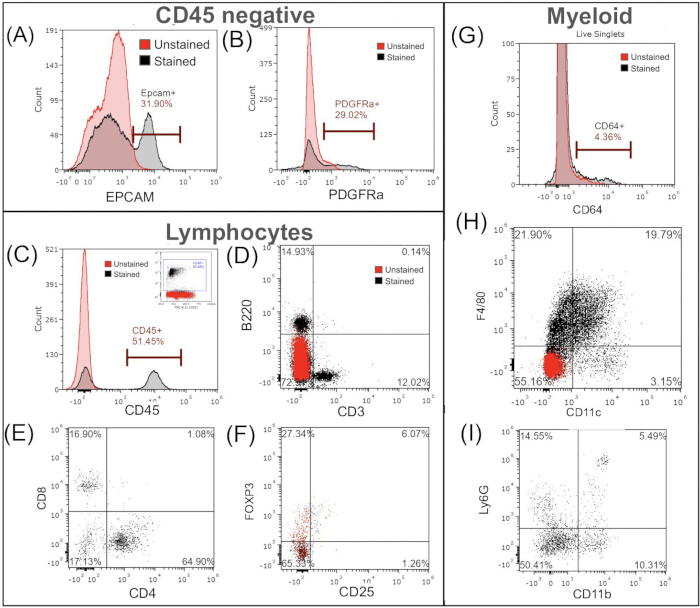
Rysunek 3: Analiza cytometryczna przepływowa dysocjowanych tkanek. W celu potwierdzenia obecności i żywotności komórek odpornościowych przeanalizowano reprezentatywne próbki BALB oraz BALB NeuT. W pierwszej kolejności wyznaczone bramki dla żywotności komórek, a następnie zidentyfikowano singlety przed identyfikacją podgrup. Aby upewnić się, że odzyskano komórki linii nabłonkowej i stromalnej, przeprowadzono ich wstępną ocenę. EpCAM wykorzystano do identyfikacji komórek pochodzenia nabłonkowego (A), a PDGFRa do identyfikacji fibroblastów (B). Aby ocenić populacje immunologiczne, wykazano, że 51% całkowitej liczby komórek w gruczole mlekowym było CD45-dodatnich (C). Populacje limfocytów B (B220+) i limfocytów T (CD3+) uzyskano z dysocjowanej tkanki gruczołu mlekowego myszy (D), natomiast populacje CD8+ i CD4+ wyodrębniono z tkanki nowotworowej (E). Aby ustalić, czy niniejszy protokół pozwala na skuteczną izolację rzadszych populacji komórek, (F) oceniono obecność komórek Treg w tkance nowotworowej za pomocą ekspresji Foxp3+. W tym celu najpierw wyznaczono bramkę dla populacji CD3+ i CD4+, a w obrębie tej populacji zidentyfikowano komórki Foxp3+ i CD25+ (około 6%). (G) Ocena makrofagów CD64+ z tkanki nowotworowej. (H) Komórki CD11b+ poddano dalszej analizie pod kątem ekspresji F4/80 i CD11c, przy czym komórki F4/80− CD11c+ zidentyfikowano jako komórki dendrytyczne. (I) Neutrofile zidentyfikowano jako komórki wykazujące ekspresję CD45+, Ly6G+ i CD11b+, lecz F4/80−. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
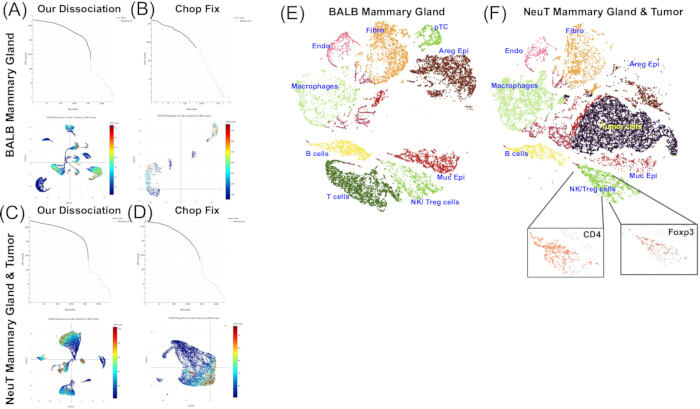
Rycina 4Ocena bibliotek scRNA-Seq. Do generowania bibliotek scRNA-Seq wykorzystano próbki utrwalone; zastosowano albo opisany tutaj protokół dysocjacji żywych komórek z późniejszym utrwaleniem zgodnie z opisem w niniejszym manuskrypcie, albo rekomendowany komercyjny protokół dysocjacji z uprzednim utrwaleniem.A) Kontrola jakości biblioteki scRNA-Seq z dysocjacji żywych komórek gruczołu mlekowego myszy BALB. Zsekwencjonowano 16 182 komórki, przy czym 97,1% odczytów zmapowano z wysoką pewnością do komórek, a 98,8% zmapowano z wysoką pewnością do przefiltrowanego zestawu sond. Na górze przedstawiono wykresy „knee bend”, a poniżej projekcje UMAP. Wyraźne załamanie na wykresie „knee bend” oraz odrębne klastry komórkowe świadczą o wysokiej jakości bibliotek.B) Ocena jakości komercyjnego protokołu dysocjacji z wstępną fiksacją dla biblioteki scRNA-Seq gruczołu mlekowego myszy BALB wykazuje brak punktu przegięcia (knee bend) oraz niewielką liczbę komórek (n = 720).CBibliotekę scRNA-Seq gruczołów mlecznych myszy BALB NeuT wygenerowano zgodnie z opisanym tutaj protokołem. Zsekwencjonowano 18 077 komórek, przy czym 97% odczytów przypisano do komórek, a 98,9% do przefiltrowanego zestawu sond. Wyraźny punkt przełamania (knee bend) wraz z odrębnymi klastrami świadczą o dobrej jakości, podczas gdy biblioteka BALB NeuT przygotowana z użyciem komercyjnego protokołu dysocjacji z utrwaleniem w pierwszym kroku (D) wykazuje słaby przełom (knee bend), lecz niezróżnicowane skupiska komórek wśród 7 119 sekwencjonowanych komórek. Po przygotowaniu bibliotek wykorzystano program Cell Ranger do zintegrowania bibliotek gruczołów mlekowych myszy BALB i BALB NeuT, a następnie przeprowadzono klasteryzację metodą K-średnich (K-Means) w programie Loupe Cell Browser w celu bezpośredniego porównania. Dziesięć unikalnych klastrów definiuje komórki tworzące gruczoł mlekowy BALB/c, co przedstawiono na wykresach T-SNE (E, F). W modelu transgenicznym NeuT (F) gruczołu mlekowego występowała dodatkowa populacja komórek nowotworowych. W obrębie skupiska limfocytów, Cd4- i CD8akomórki wykazujące ekspresję są rozproszone w całej objętości. Cd4 ekspresja jest przedstawiona na wstawce. Limfocyty T regulatorowe, zdefiniowane przez ekspresję Foxp3, nie były wystarczająco liczne, aby utworzyć oddzielną grupę, lecz skupiły się wraz z limfocytami T, co pokazano na wyróżnionym wykresie cech. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
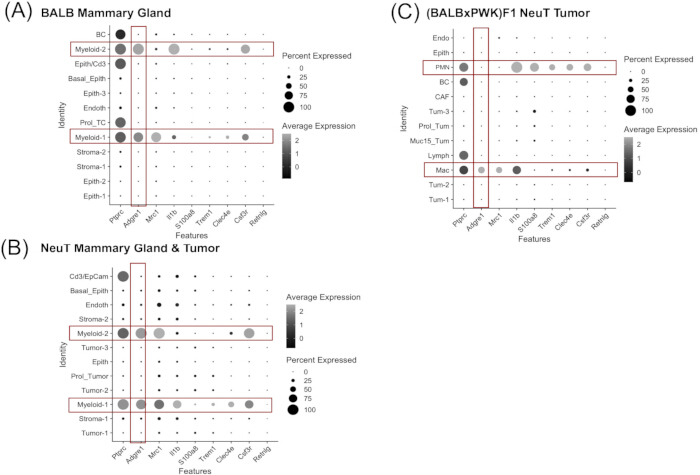
Rycina 5Identyfikacja neutrofili (PMN). PMN są wyjątkowo trudne do zidentyfikowania w bibliotekach scRNA-Seq ze względu na niskie poziomy transkryptów RNA oraz słabą Ly6g ekspresja. PMN w bibliotekach scRNA-Seq można zidentyfikować, korzystając z komendy „count” w programie Cell Ranger i dodając opcję „force cell = 8000” w wierszu poleceń. Analizę tę przeprowadzono zarówno dla BALB (A) oraz BALB NeuT (B) biblioteki gruczołu mlekowego, lecz niewiele komórek wykazywało ekspresję genów specyficznych dla PMN. Wszystkie klastry komórek mieloidalnych w grupie BALB oraz BALB NeuT również wykazywały ekspresję Adgre1 (F4/80) i Mrc1 (CD206). Bardzo niewiele komórek w populacjach mieloidalnych wykazuje ekspresję genów specyficznych dla neutrofili (PMN) S100a8, Trem1i Clec4eJednakże wynik ten wynika z tła BALB zastosowanego modelu, ponieważ biblioteki scRNA-Seq przygotowane z wykorzystaniem techniki dysocjacji u samic myszy (BALBxPWK)F1 NeuT, zgodnie z opisem w niniejszym materiale (C), bez polecenia force cell, zaobserwowano obecność klastra komórek wykazujących ekspresję genów specyficznych dla PMN, ale nie Adgre1Wskazuje to, że niniejszy protokół dysocjacji może rzeczywiście wyodrębnić PMN poza innymi populacjami mieloidalnymi. Czerwone prostokąty zaznaczają klastry wykazujące ekspresję Adgre1. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
| Guz BALB NeuT | Cytometria przepływowa | scRNA-Seq |
| CD3 / limfocyty | 6% wszystkich komórek (12% komórek CD45+) | 7% wszystkich komórek |
| CD4 / Cd4 | 3,9% wszystkich komórek (65% komórek CD45+CD3+) | 4% wszystkich komórek |
| CD8 / Cd8a | 1% wszystkich komórek (17% komórek CD45+CD3+) | 0,9% wszystkich komórek |
| Foxp3 / Foxp3 | 0,8% wszystkich komórek (33% komórek CD3+CD4+) | 0,7% wszystkich komórek |
| F4/80 / Adgre1 | 20% wszystkich komórek | 16% wszystkich komórek |
| CD64 / Fcgr1 | NT | 14% wszystkich komórek |
| PMN/neutrofile | 2% wszystkich komórek (5% komórek CD45+) | 0,05% wszystkich komórek |
| PDGFRa (CD140a) / Stroma | 29% wszystkich komórek | 10% wszystkich komórek |
| EpCAM / Nabłonkowe | 32% wszystkich komórek | 54% wszystkich komórek |
| NT, nie badano |
Tabela 1: Porównanie procentowej zawartości komórek uzyskanych z zastosowanego protokołu dysocjacji przy użyciu technik analitycznych, w tym sekwencjonowania RNA pojedynczych komórek oraz cytometrii przepływowej.
Dyskusja
Niniejszy protokół dysocjacji pozwala na powtarzalne otrzymywanie zawiesin pojedynczych komórek składających się z populacji reprezentatywnych dla tkanki wyjściowej. W celu wyizolowania reprezentatywnych typów komórek z tkanki gruczołu mlekowego – w tym większych fibroblastów i komórek macierzystych adipocytów – zastosowano siłę odśrodkową 500 x g14,21,22. Żywotność oraz epitopy powierzchniowe komórek są niezawodnie zachowywane w wielu typach komórek, w tym w populacjach immunologicznych, nabłonkowych i stromalnych. Jedną z zalet logistycznych tego protokołu dysocjacji jest stosunkowo krótki czas przejścia od początkowego pobrania tkanki do uzyskania czystej zawiesiny komórkowej gotowej do dalszej obróbki, bez konieczności stosowania specjalistycznego sprzętu. Cały proces trwa około trzech godzin od początku do końca, co stanowi przewagę nad podobnymi protokołami dysocjacji enzymatycznej, które mogą wymagać nocnej inkubacji próbki z enzymem. Protokół ten został opracowany i jest stosowany w tym oraz innych laboratoriach w przedstawionej formie od 2023 roku. W ciągu ostatnich 6 miesięcy laboratorium przeprowadziło ten protokół 37 razy, uzyskując podobne wyniki, a osoby na wszystkich poziomach szkolenia pomyślnie go zrealizowały. Oprócz cytometrii przepływowej i generowania bibliotek scRNA-Seq, protokół był wykorzystywany do izolacji limfocytów naciekających guz (TIL) oraz makrofagów związanych z guzem (TAM) do analiz funkcjonalnych ex vivo. Chociaż wyniki wykazują, że protokół dysocjacji pozwala na identyfikację głównych populacji komórek, należy zaznaczyć, że cytometria przepływowa i scRNA-Seq są metodami zasadniczo różnymi. Cytometria przepływowa służy do badania ekspresji wielu markerów na poziomie pojedynczej komórki i wykorzystuje bramkowanie oraz podbramkowanie w celu osiągnięcia tego celu. scRNA-Seq z kolei służy do identyfikacji zmian w ekspresji genów w klastrze komórek bez zastosowania bramkowania i podbramkowania.
Rozwiązywanie problemów z protokołem obejmuje: 1) Niepełne trawienie: Trawienie próbek tkankowych jest w dużym stopniu zależne od dysocjacji fizycznej. Rozdrobnij tkankę, aż stanie się pastopodobna, rozprowadzając ją, aby ocenić wielkość fragmentów tkanki. Ten etap trwa zazwyczaj dłużej, niż się spodziewamy. Niepełna dysocjacja skutkuje zmniejszoną liczbą komórek zrębu i nabłonka w porównaniu z komórkami odpornościowymi. 2) Niska żywotność: Żywotność komórek zależy od czasu trawienia oraz zachowania stosunku kolagenazy typu II do kolagenazy D w proporcji 2:1. Brak kolagenazy typu II spowoduje znaczny spadek żywotności komórek. Ponadto, jeśli żywotność próbki mieści się w przedziale 70–85%, komercyjnie dostępne systemy usuwania martwych komórek są skuteczne w poprawie żywotności i są zalecane przed przekazaniem próbek do generowania bibliotek scRNA-Seq. 3) Duża ilość detrytusu komórkowego: Detrytus komórkowy jest często skutkiem ubocznym dysocjacji fizycznej i trawienia. Najskuteczniej usuwa się go za pomocą medium do gradientu gęstości lub komercyjnie dostępnego roztworu do usuwania detrytusu o znacznie zredukowanej gęstości. 4) Słaba odzyskiwalność osadu: Słaba odzyskiwalność próbki zależy przede wszystkim od ilości tkanki wyjściowej. Niniejszy protokół został zoptymalizowany dla 2 gruczołów mlekowych lub guzów o średniej wielkości w zakresie od 10 do 20 mg. Jeśli rozmiar próbki wyjściowej jest mniejszy niż jeden gruczoł mlekowy lub guz jest mniejszy niż ~200 mm3, wydajność komórkowa będzie niska. W przypadku małych rozmiarów tkanki objętości można zredukować o 50%. Podobnie, w przypadku dużych guzów lub wielu gruczołów mlekowych (więcej niż 4 gruczoły mlekowe lub guzy większe niż ~25 mg), objętości można zwiększyć 1,5 ×. Próbki większe niż ~25 mg należy podzielić przed procesowaniem. 5) Słaba jakość scRNA-Seq: Jakość bibliotek scRNA-Seq zależy niemal całkowicie od jakości próbki wyjściowej. Podczas pracy z tkankami nowotworowymi kluczowy jest czas początkowego tworzenia kropel żelowych w emulsji (GEM) oraz generowania cDNA. Z tego powodu zastosowanie protokołu, który naturalnie przechodzi w natychmiastową fiksację RNA, takiego jak system chemii jednokomórkowej z fiksowanym RNA oparty na sondach, eliminuje czas jako zmienną wpływającą na jakość próbki. Niemniej jednak, ocena jakości RNA przed wprowadzeniem do potoku scRNA-Seq zapewnia, że otrzymane biblioteki będą informatywne. 6) Mniejsza niż oczekiwana liczba klastrów komórkowych: Gdy wyniki scRNA-Seq wykazują niski poziom ekspresji genów w kilku unikalnych klastrach, biblioteki można zsekwencjonować ponownie, aby zwiększyć liczbę odczytów (głębokość sekwencjonowania). Ponadto, jeśli badanie koncentruje się wyłącznie na komórkach odpornościowych, oczyszczenie populacji CD45+ przed generowaniem biblioteki zwiększy czułość sekwencjonowania.
Wspomniany powyżej komercyjny protokół fiksacji i dysocjacji napotkał trudności podczas przetwarzania tkanki tłuszczowej. Przede wszystkim ufiksowana tkanka tłuszczowa wykazywała wyporność, co utrudniało jej dalszą dysocjację i skuteczne filtrowanie. Z tego powodu tkanka tłuszczowa nie jest zalecana do zastosowania w wykorzystanym tutaj komercyjnym protokole fiksacji i dysocjacji. Fiksacja tkanki przed dysocjacją do zawiesiny pojedynczych komórek wyeliminowała etapy kontroli jakości, takie jak pomiary żywotności po fiksacji oraz dysocjacja. Utrudniło to oszacowanie jakości próbek przed przekazaniem ich do dalszej analizy scRNA-seq, co jest niezbędnym krokiem w procesie dysocjacji tkanek. Fiksacja tkanki przeznaczonej do scRNA-Seq może prowadzić do degradacji RNA. Jakość RNA można ocenić, badając długość odczytów nukleotydowych (nt) w próbkach ufiksowanych komórek. Im wyższy procent próbki z odczytami >200 nt, tym lepsza jakość. Próbki z wynikiem integralności RNA będą miały >30% odczytów >200 nt i mogą być następnie wykorzystane do generowania bibliotek scRNA-Seq z wysoką pewnością. Ufiksowane próbki z gruczołu mlekowego BALB oraz tkanek guza BALB NeuT opisane w niniejszym opracowaniu wykazały odpowiednio 83% i 82% odczytów >200 nt.
Tkanki o wysokiej zawartości tkanki tłuszczowej, takie jak gruczoły mlekowe, stanowią problem, ponieważ adipocyty mogą utrudniać otrzymanie wysokiej jakości preparatów komórkowych. Większość adipocytów pozostaje na górnej powierzchni probówki stożkowej i może zostać usunięta za pomocą próżni lub poprzez odlanie supernatantu. Stwierdzono, że gruczoły mlekowe o bardzo wysokiej zawartości tłuszczu, np. pochodzące od samic z linii New Zealand Obese (NZO), wymagają dodatkowego kroku: przetarcia górnej części probówki czystą, beztuszową chusteczką laboratoryjną w celu ułatwienia usunięcia adipocytów, a następnie dodatkowych etapów płukania, aby całkowicie usunąć tkankę tłuszczową. Tkanki gruczołów mlekowych mają również tendencję do niższej wydajności. Aby zniwelować ten problem, próbki są w miarę możliwości łączone w celu zwiększenia uzyskanej liczby komórek. W przypadku bardzo twardych guzów niezbędne jest odpowiednie rozdrobnienie tkanki, ponieważ pozwala to kolagenazom na działanie na mniejszej powierzchni w czasie wymaganym do uzyskania wysoko żywotnych pojedynczych komórek.
Niniejszy protokół posiada jednak pewne ograniczenia. Całkowite strawienie komórek nabłonkowych do postaci zawiesiny pojedynczych komórek jest trudne w przypadku uzyskiwania heterogenicznej mieszaniny komórkowej. Guzy piersi BALB NeuT są zazwyczaj twarde, z obecnością torebki nowotworowej i silnie rozwiniętym komponentem zrębowym. Z kolei pobieranie naciekających komórek odpornościowych wymaga minimalnej ekspozycji na enzym, a nadmierna ekspozycja może zmienić ich stan fenotypowy. Aby zatem zebrać komórki nowotworowe i zrębowe, należy wypracować kompromis pozwalający zachować jakość tej różnorodnej grupy typów komórek, w tym naciekających neutrofili. W związku z tym proporcje komórek nabłonkowych i zrębowych uzyskane za pomocą tego protokołu mogą być niższe niż te faktycznie występujące w tkance macierzystej. Protokół ten został zoptymalizowany w drodze wielu prób oceniających stosunki enzymu kolagenazy oraz czasy dysocjacji, aby ustalić najlepsze praktyki pobierania wysokiej jakości, wysoce żywotnej, a zarazem heterogenicznej próbki komórek. Przy zastosowaniu tego protokołu przyszłe kierunki badań obejmują analizę funkcjonalną ex vivo naciekających komórek odpornościowych podczas powstawania i progresji guzów piersi w celu zidentyfikowania okien możliwości dla terapeutyki.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Przedstawione tutaj dane zostały w części pozyskane przy użyciu aparatury w Genomics Core (RRID: SCR_012406), przy wsparciu Biura Badań i Innowacji (Office of Research & Innovation) Uniwersytetu Stanowego Michigan.
Niniejsza praca została sfinansowana z grantu CA278818.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNaza | Invitrogen | 18047019 | |
| Kollagenaza D | Sigma | 11088866001 | |
| Kolagenaza II | Worthington Biochemical | LS004177 | |
| Płodowa surowica bydlęca | VWR | 97068-085 | |
| 10x PBS | Gibco | 70011-044 | |
| Azotek sodu | VWR | 0639-250G | |
| Sito MACS Smart Strainer, 70 µm | Miltenyi Biotec | 130-110-916 | |
| Sito MACS Smart Strainer, 30 µm | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| 10x bufor do lizy erytrocytów | eBioscience/Invitrogen | 00-4300-54 | |
| Zestaw do fiksacji i permeabilizacji Foxp3/czynników transkrypcyjnych | eBioscience/Invitrogen | 00-5523-00 | |
| Bufor barwiący Brilliant | Invitrogen | 00-4409-42 | |
| Zestaw do usuwania martwych komórek Mojosort | Biolegend | 580157 | |
| Bufor Mojosort (5x) | Biolegend | 480017 | |
| Zestaw Quick-RNA Miniprep Plus Kit | Zymo Research | R1057 | |
| Zestaw do dysocjacji guza, mysz | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| Barwnik do oceny żywotności Fixable Viability Dye eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| APC FOXP3 | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| Zestaw odczynników 10x Genomics GEM-X Flex Gene Expression Reagent Kit | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| Cytometr przepływowy Attune NxT | Thermo Fisher Scientific | Służy do gromadzenia danych z cytometrii przepływowej z kanałami laserów czerwonego, niebieskiego i fioletowego. | |
| FCS Express | Oprogramowanie De Novo | Stosowane do analizy danych z cytometrii przepływowej. | |
| zestaw do dysocjacji guzów firmy Miltenyi | komercyjny zestaw do dysocjacji guza | ||
| zestaw Miltenyi / protokół Miltenyi | zestaw komercyjny" lub "zestaw referencyjny | ||
| Enzym Liberase | komercyjna mieszanina termolizyny i kolagenazy | ||
| Unieruchomienie Chop | komercyjny protokół dysocjacji z wstępną fiksacją | ||
| System Flex chemistry / System Flex chemistry | metoda chemii jednokomórkowej opartej na sondach dla unieruchomionego RNA | ||
| Seurat | (https://satijalab.org/seurat/ | narzędzia do klastrowania otwartoźródłowe i komercyjne | |
| Cell Ranger | narzędzia do klasteryzacji otwartoźródłowe i komercyjne | ||
| Przeglądarka komórek Loupe | narzędzia do klasteryzacji otwartoźródłowe i komercyjne | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | narzędzia do analizy wzbogacenia zestawów genów i referencyjnych atlasów komórkowych | |
| Tabula Muris | https://tabula400 muris.sf.czbiohub.org/wizualizacje | narzędzia do analizy wzbogacenia zestawów genów i referencyjnych atlasów komórkowych | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | narzędzia do analizy wzbogacenia zestawów genów i referencyjnych atlasów komórkowych | |
| Cellometer K2" instrument i "pomarańcz akrydynowy / jodek propidyny (AOPI)" | automatyczny licznik komórek z barwieniem żywotności akrydyną pomarańczową i jodkiem propidyny (AO/PI) | ||
| Kimwipe | bezpyłowa chusteczka laboratoryjna | ||
| STEMCELL Technologies | medium o gradiencie gęstości (np. medium typu Ficoll lub Percoll) | ||
| Ficoll/Percoll | ostrza skalpela nr 10 | ||
| dwa skalpele nr 10 | |||
| Cellometer K2 + odczynnik AOPI | automatyczny licznik komórek z barwieniem żywotności akrydyną pomarańczową/jodkiem propidium (AO/PI) | ||
| STEMCELL Technologies | KOMÓRKI MACIERZYSTE Technologies, www.stemcell.com, 2018 | ||
| Ficoll/Percoll | medium o gradientowej gęstości | ||
| 10 skalpeli | ostrze skalpela chirurgicznego | ||
| Zestaw do fiksacji i permeabilizacji dla Foxp3/czynników transkrypcyjnych | dostępny w handlu roztwór umożliwiający barwienie jądrowe |
Bibliografia
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny