Niniejsze badanie optymalizuje test izotermicznej amplifikacji zapętlonej (LAMP) z wykorzystaniem węgla aktywnego i bentonitu w celu wykrywania patogennych gatunków Vibrio w owocach morza. Ta obróbka wstępna skutecznie usuwa inhibitory reakcji, zapewniając znacznie szybszą, bardziej czułą i bardziej opłacalną diagnostykę w porównaniu z metodami konwencjonalnymi.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł badawczy
Zwiększona czułość pętlowego wzmocnienia sygnału z wykorzystaniem węgla aktywnego i bentonitu do wykrywania Vibrio spp. w produktach rybnych
W tym artykule
Podsumowanie
Streszczenie
Rodzaj Vibrio obejmuje ponad 100 gatunków, z których 12 uznaje się za patogenne dla ludzi; gatunkami najczęściej izolowanymi w żywności są V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus. Głównym problemem w ich identyfikacji za pomocą konwencjonalnych metod mikrobiologicznych są wysokie koszty oraz długi czas diagnozy. Do identyfikacji V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus zastosowano izotermiczną amplifikację zapętloną (LAMP). W celu usunięcia inhibitorów i poprawy czułości testu wykorzystano węgiel aktywny z bentonitem (ACB); przetestowano wartości pH 6, 7 i 9, a także różne czasy kontaktu próbki z ACB. Czułość metody LAMP uległa poprawie po zastosowaniu węgla aktywnego i bentonitu do usuwania inhibitorów reakcji w próbkach krewetek, ryb i ostryg. Czułość LAMP, ujemna wartość predykcyjna, dodatnia wartość predykcyjna oraz swoistość LAMP były równe lub przekraczały 90% dla wszystkich badanych próbek. Metoda LAMP może stanowić alternatywę dla identyfikacji V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus w produktach rybnych ze względu na szybsze zastosowanie, wyższą czułość i niższe koszty w porównaniu z metodą standardową.
Wprowadzenie
Gatunki z rodzaju Vibrio są szeroko rozpowszechnione w środowiskach morskich i mogą być powiązane z rybami, mięczakami lub skorupiakami w sposób patogenny lub komensalny. Doniesiono, że 12 gatunków może być patogennych dla ludzi, przy czym Vibrio cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus wykazują wyższą częstotliwość izolacji w produktach rybnych. W Stanach Zjednoczonych organy zdrowia publicznego szacują, że Vibrio spp. powodują ponad 80 000 infekcji rocznie1,2,3,4,5. Izolację Vibrio spp. przeprowadza się za pomocą konwencjonalnych metod obejmujących wstępne namnażanie, hodowlę na pożywkach selektywnych oraz potwierdzenie za pomocą testów biochemicznych i serologicznych6,7. Metody konwencjonalne są ograniczone przez długi czas wymagany do izolacji patogenu (do 5 dni) oraz brak rozdzielczości, co często uniemożliwia dokładne rozróżnienie blisko spokrewnionych gatunków w obrębie rodzaju Vibrio ze względu na podobne profile fenotypowe i biochemiczne6,7,8.
Alternatywnie, izotermiczna amplifikacja zapętlona (LAMP) została opisana jako szybka, dokładna i niedroga technika molekularna do identyfikacji patogenów9,10. Metoda ta jest wysoce efektywna kosztowo i szybsza niż konwencjonalna PCR, ponieważ nie wymaga zaawansowanego sprzętu, takiego jak termocyklery9. Metoda LAMP pozwala w jednym kroku na detekcję genu docelowego poprzez obserwację zmętnienia w probówce reakcyjnej, wywołanego wytrąceniem pirofosforanu magnezu, który jest stabilnym produktem reakcji w 65 °C (temperaturze stosowanej w technice LAMP); wzrost zmętnienia koreluje zatem z ilością syntetyzowanego DNA, co pozwala uniknąć stosowania żeli agarozowych i transiluminatorów11,12,13,14,15.
Czułość wykrywania tych patogenów można poprawić poprzez eliminację inhibitorów reakcji, takich jak proteazy, jony wapnia, glikogen i lipidy, które mogą hamować polimerazę Bst lub wiązać się z docelowym DNA, zapobiegając amplifikacji13,16,17,18,19,20. Wykazano, że kombinacja węgla aktywnego z bentonitem (ACB) charakteryzuje się wysoką wydajnością w usuwaniu inhibitorów amplifikacji, co zwiększa czułość wykrywania Escherichia coli w próbkach ostryg i obniża koszty, ponieważ ACB jest tańszy niż stosowanie komercyjnych zestawów21.
W niniejszej pracy proponujemy optymalizację metody LAMP poprzez zastosowanie węgla aktywnego i bentonitu w celu zwiększenia czułości identyfikacji V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus bezpośrednio z produktów rybnych. Ta zoptymalizowana metoda stanowi praktyczną wytyczną dla rutynowego monitorowania i kontroli jakości w przemyśle spożywczym, będąc wysoce przydatną do szybkiej diagnostyki patogenów z pominięciem czasochłonnych etapów wstępnego namnażania. W odniesieniu do oczekiwanej wydajności, metoda ta wykazuje doskonałą czułość (powyżej 98%) i swoistość (100%) w matrycach takich jak ryby i krewetki. Należy jednak wziąć pod uwagę kluczowe ograniczenie: w przypadku silnie zanieczyszczonych próbek pochodzących z niektórych źródeł, takich jak ostrygi, system ACB nie jest w stanie całkowicie wyeliminować wszystkich interferujących substancji organicznych, co może nieznacznie obniżyć czułość testu (94%–98%).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Badanie to nie obejmowało ludzi ani zwierząt kręgowców; w związku z tym nie wymagano instytucjonalnej zgody komisji etycznej. Użyte odczynniki i sprzęt wymieniono w Tabeli materiałów.
1. Wykorzystane szczepy bakteryjne i ekstrakcja DNA
Szczepy Vibrio cholerae no O1 CECT 55, V. parahaemolyticus ATCC 17802, V. vulnificus ATCC 29037 oraz V. alginolyticus ATCC 17749 hodowano w bulionie BHI (brain heart infusion) z dodatkiem 2% NaCl w temperaturze 37 °C przez 24 h. Szczepy Escherichia coli ATCC 25922, Cronobacter sakazakii ATCC 12868, Listeria monocytogenes ATCC 49594 oraz Salmonella Typhimurium ATCC 14028 hodowano w bulionie BHI bez chlorku sodu w temperaturze 37 °C przez 24 h, aby wykorzystać je jako kontrole negatywne w testach. W celu ekstrakcji DNA hodowlę nocną wirowano przy 16,000 x g przez 6 min w temperaturze 25 °C w wirówce. Nadfiltr ostrożnie odlano, aby nie zaburzyć osadu komórkowego, a następnie osad dokładnie resuspendowano poprzez pipetowanie w 500 μL roztworu buforu TAE (kwas TRIS-octowy-EDTA, pH 8). Zawiesinę gotowano przez 6 min w celu lizy komórek, a następnie natychmiast schłodzono na lodzie przez 5 min. Wykonano końcowe wirowanie w celu osadzenia szczątków komórkowych, otrzymując klarowny nadfiltr zawierający ekstrahowane DNA, który następnie wykorzystano jako matrycę do amplifikacji metodą LAMP22,23.
2. Procedura LAMP
Startery użyte w metodzie LAMP (Tabela 1) zostały przetestowane w celu potwierdzenia specyficzności identyfikacji V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus. Identyfikację każdego gatunku Vibrio za pomocą metody LAMP przeprowadzono w probówkach reakcyjnych, przygotowując końcową objętość 25 μL mieszaniny zawierającej: 1,6 μM każdego z starterów, 1,4 mM mieszaniny dNTP, 6 mM MgSO4, 800 mM betainy, 8 U polimerazy DNA Bst oraz 5 μL matrycowego DNA. Mieszaninę reakcyjną delikatnie wymieszano i inkubowano w kąpieli wodnej w temperaturze 65 °C przez 60 min. Po czasie inkubacji produkty amplifikacji rozdzielono w 1,5% żelu agarozowym. Produkty amplifikacji zabarwiono następnie za pomocą 1 μL fluorescencyjnego barwnika DNA rozcieńczonego 1:100 i wykazano przy użyciu transiluminatora światła niebieskiego. Inna technika ustalania, czy test identyfikacji patogenu był pozytywny, polegała na dodaniu do probówek reakcyjnych 4 μL błękitu hydroksynaftolowego (HNB, 125 μM) i obserwacji zmiany barwy gołym okiem. Pozytywny wynik testu wskazywała zmiana barwy na niebieską, a wynik negatywny na fioletową24. Jako kontrole negatywne dla metody LAMP wykorzystano Escherichia coli ATCC 25922, Cronobacter sakazakii ATCC 12868, Listeria monocytogenes ATCC 49594 oraz Salmonella Typhimurium ATCC 14028. Produkty amplifikacji uzyskane w metodzie LAMP rozdzielono w żelu agarozowym i obserwowano za pomocą transiluminatora. Uzyskane obrazy zarejestrowano i zdigitalizowano przy użyciu oprogramowania MS 1D Analysis Software.
3. Obróbka próbek ostryg, krewetek i ryb w celu eliminacji naturalnie występujących w próbkach gatunków Vibrio spp.
Pobrano dziesięć próbek ostryg, dziesięć próbek krewetek oraz dziesięć próbek ryb o przybliżonej wadze 200 g każda. W celu usunięcia naturalnie występujących komórek Vibrio zastosowano wcześniej opisaną metodologię21. Odważono pięćdziesiąt gramów (50 g) każdej próbki i poddano mechanicznej homogenizacji w blenderze łopatkowym przy 260 rpm przez 1 min, uzyskując jednorodną zawiesinę tkankową, którą następnie przechowywano w temperaturze -70 °C przez 72 h. Następnie próbki całkowicie rozmrożono w łaźni wodnej o temperaturze 40 °C i przemyto 300 mL soli fosforanowego buforu fizjologicznego (0,85% NaCl, pH 9). Aby upewnić się, że poprzednia procedura skutecznie wyeliminowała Vibrio z próbek, przeprowadzono metodologię wstępnego namnażania wskazaną w rozdziale 9 podręcznika Bacteriological Analytical Manual Agencji Żywności i Leków (FDA)7. Roztwór soli zawierający próbkę zastąpiono 450 mL alkalicznej wody peptonowej (APW, pH 9). Następnie w APW starannie przygotowano rozcieńczenia seryjne do stężenia 10⁻3 i inkubowano przez 24 h. Na koniec alikwot z każdej probówki wysiało się na selektywne podłoże agar TCBS (thiosulfate-citrate-bile salts-sucrose) i inkubowano przez 24 h w temperaturze 37 °C, aby wizualnie potwierdzić brak charakterystycznych kolonii Vibrio. Wszystkie testy wykonano w trzech powtórzeniach.
4. Przygotowanie węgla aktywnego z bentonitem (ACB) i ocena odzyskiwania komórek
Aby określić warunki, w których ACB najskuteczniej absorbuje inhibitory obecne w próbkach produktów rybnych, przy jednoczesnym minimalnym pochłanianiu komórek docelowych, zastosowano opublikowaną metodologię21 w celu ustalenia optymalnego pH oraz czasu kontaktu ACB z próbkami żywności. Węgiel aktywny dokładnie przepłukano wodą destylowaną i wysuszono w temperaturze 55 °C. Następnie 32,6 g węgla aktywnego zmieszano z 3,04 g bentonitu, mieszając w sposób ciągły przy 150 rpm przez 24 h w celu zapewnienia jednorodnego rozkładu, po czym wysuszono w 55 °C i wysterylizowano, otrzymując drobny, jednorodny suchy proszek ACB. Aby ocenić odzysk komórek po zmieszaniu komórek Vibrio z mieszaniną węgla aktywnego i bentonitu (ACB), szczepy hodowano oddzielnie w bulionie BHI z dodatkiem 2% NaCl do momentu osiągnięcia gęstości komórek 1,5 x 10⁴ CFU/mL. Następnie 1 mL każdego szczepu Vibrio zaszczepiono oddzielnie do 100 mL buforu fosforanowego (PBS, 0,85% NaCl, skorygowanego do pH 4, 6 i 9). Zawiesinę bakteryjną połączono z 4,6 g wcześniej przygotowanego ACB i mieszano przy 150 rpm przez 15, 30 i 60 min, aby umożliwić kontakt. Po każdym wyznaczonym czasie kontaktu ostrożnie oddzielono aliquot o objętości 0,1 mL, naniesiono metodą wylewania na agar TCBS i inkubowano w 37 °C przez 24 h przed przystąpieniem do liczenia kolonii.
5. Ocena granicy wykrywalności V. cholerae, V. parahaemolyticus, V. vulnificus oraz V. alginolyticus w próbkach ostryg, krewetek i ryb poddanych działaniu węgla aktywnego i bentonitu
Każdy z gatunków Vibrio wykorzystanych w niniejszym badaniu był hodowany w bulionie BHI, a gęstość ich komórek została precyzyjnie dostosowana do 1,5 x 10⁴, 7,5 x 10³, 3,8 x 10³, 1,5 x 10³, 7,5 x 10², 3 x 10², 1,5 x 10² oraz 76 CFU/mL (A600 nm ~0,25), co zmierzono przy użyciu spektrofotometru. Następnie 1 mL każdej kultury Vibrio wykorzystano do inokulacji 50 g każdej próbki (ostrygi, ryby, krewetki), które zostały wcześniej poddane obróbce w celu wyeliminowania obecności Vibrio. Zainokulowane próbki homogenizowano w blenderze łopatkowym przy 360 rpm przez 30 s i rozcieńczono 450 mL APW (pH 6). Mieszaninę odwirowano następnie w wirówce przy 260 x g przez 5 min w 4 °C w celu oddzielenia dużych zanieczyszczeń. Otrzymany supernatant przelano do kolb zawierających 23 g ACB, mieszano przy 150 rpm przez 15 min w celu absorpcji inhibitorów, a następnie przefiltrowano za pomocą papieru filtracyjnego, uzyskując przejrzysty eluat pozbawiony dużych cząstek. Eluat ten odwirowano przy 16 000 x g przez 10 min w 4 °C, w wyniku czego na dnie probówki powstał widoczny osad komórkowy, który następnie wykorzystano do ekstrakcji DNA. Każdy gatunek Vibrio zidentyfikowano metodą LAMP. Kontrole negatywne stanowiły próbki zainokulowane szczepami Escherichia coli ATCC 25922, Cronobacter sakazakii ATCC 12868, Listeria monocytogenes ATCC 49594 oraz Salmonella Typhimurium ATCC 14028. Mieszaninę reakcyjną inkubowano w kąpieli wodnej w temperaturze 65 °C przez 60 min. Po czasie inkubacji produkty amplifikacji rozdzielono w 1,5% żelu agarozowym i zabarwiono fluorescencyjnym barwnikiem do DNA. Żele wizualizowano w transiluminatorze światła niebieskiego. Na koniec do każdej probówki dodano 4 μL błękitu hydroksynaftolowego (125 μM) w celu detekcji gołym okiem24.
6. Wyznaczenie wartości predykcyjnej dodatniej, wartości predykcyjnej ujemnej, swoistości i czułości metody LAMP
Czułość, swoistość oraz wartości predykcyjne metody LAMP określono przy użyciu 30 próbek (10 próbek krewetek, 10 ostryg i 10 ryb). Każdą próbkę zaszczepiono minimalną wykrywalną koncentracją ustaloną dla każdego gatunku Vibrio. Aby wyznaczyć procentową czułość i swoistość, a także ujemną wartość predykcyjną (NPV) i dodatnią wartość predykcyjną25, zastosowano tabelę kontyngencji do podsumowania wyników prawdziwie dodatnich (TP), prawdziwie ujemnych (TN), fałszywie dodatnich (FP) oraz fałszywie ujemnych (FN) uzyskanych podczas eksperymentów (Tabela 2). Na podstawie tych danych zastosowano następujące wzory:
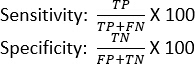
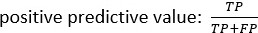
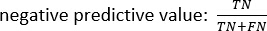
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wykorzystane szczepy bakteryjne i ekstrakcja DNA
DNA zostało pomyślnie wyekstrahowane ze wszystkich szczepów patogennych oraz szczepów kontroli negatywnej, aby posłużyć jako matryce w dalszych analizach LAMP.
Procedura LAMP
Startery wykorzystane w tej pracy były specyficzne dla amplifikacji celu molekularnego w każdym gatunku Vibrio. Produkty amplifikacji otrzymane metodą LAMP przy użyciu szczepów Vibrio wykazały, że każdy starter był...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Niniejsze badanie określa zoptymalizowane warunki w celu zwiększenia czułości izotermicznej amplifikacji zapętlonej (LAMP) w detekcji V. cholerae, V. parahaemolyticus, V. alginolyticus oraz V. vulnificus w skażonych próbkach owoców morza. Dzięki pominięciu tradycyjnego etapu wstępnego namnażania znacznie skrócono czas diagnostyki, co zapewnia wysoce wydajne i szybkie podejście do bezpośredniej identyfikacji patogenów w produktach rybnych.
Kluczową udoskonale...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Węgiel aktywny | Sigma-Aldrich | C2764 | |
| Bentonit | Sigma-Aldrich | 682659 | |
| Betaina | Sigma-Aldrich | B0300 | |
| Transiluminator systemu Bio-Image systems | Systemy obrazowania biologicznego | MBE-CP-01 | |
| polimeraza DNA Bst | New England Biolabs | M0374 | |
| Wirówka (model J2-HS) | Beckman Coulter | https://www.americaninstrument.com/products/beckman-j2-hs-high-speed-1273g-centri | |
| Cronobacter sakazakii | ATCC | 12868 | |
| mieszanina dNTP | Thermo Fisher Scientific | R0241 | |
| Escherichia coli | ATCC | 25922 | |
| Błękit hydroksynaftolowy | Sigma-Aldrich | 219916 | |
| Listeria monocytogenes | ATCC | 49594 | |
| Midori Green Advanced | Nippon Genetics | MG01 | |
| Oprogramowanie do analizy MS 1D | Kluczowe nauki | MBE-IMG-SW | |
| Salmonella Typhimurium | ATCC | 14028 | |
| Spektrofotometr (model 6300) | Jenway | 630531 | |
| Homogenizator mechaniczny Stomacher Circulator (model 400) | Seward | 0400/000/AJ | |
| Vibrio alginolyticus | ATCC | 17749 | |
| Vibrio cholerae nie-O1 | CECT (tomografia komputerowa z kontrastem) | 55 | |
| Vibrio parahaemolyticus | ATCC | 17802 | |
| Vibrio vulnificus | ATCC | 29037 | |
| papier Whatmana | Whatman | 1001-055 |
Bibliografia
- Baker GL. Food safety impacts from post-harvest processing procedures of molluscan shellfish. Foods. 2016;5(2):29.
- Kim HJ et al. Multiplex PCR for detection of the Vibrio genus and five pathogenic Vibrio species with primer sets designed using comparative genomics. BMC Microbiol. 2015;15(1):239.
- CDC. Cholera and Other Vibrio Illness Surveillance (COVIS). Cdc.gov; 2022. Available from: http://www.cdc.gov/vibrio/surveillance.html
- Robert-Pillot A et al. Occurrence of the three major Vibrio species pathogenic for human in seafood products consumed in France using real-time PCR. Int J Food Microbiol. 2014;189:75-81.
- Brands DA et al. Prevalence of Salmonella spp. in oysters in the United States. Appl Environ Microbiol. 2005;71(2):893-897.
- Gxalo O et al. Virulence and antibiotic resistance characteristics of Vibrio isolates from rustic environmental freshwaters. Front Cell Infect Microbiol. 2021;11:732001.
- De Paola A, Kaysner CA. Bacteriological Analytical Manual, Vibrio. Food and Drug ENTER
- Chahorm K, Prakitchaiwattana C. Application of Reverse Transcriptase-PCR-DGGE as a rapid method for routine determination of Vibrio spp. in foods. Int J Food Microbiol. 2018;264:46-52.
- Anupama KP et al. Evaluation of loop-mediated isothermal amplification assay along with conventional and real-time PCR assay for sensitive detection of pathogenic Vibrio parahaemolyticus from seafood sample without enrichment. Mol Biol Rep. 2021;48(1):1009-1016.
- Notomi T et al. Loop-mediated isothermal amplification of DNA. Nucleic Acids Res. 2000;28(12):E63.
- Sridapan T et al. Rapid detection of Clostridium perfringens in food by loop-mediated isothermal amplification combined with a lateral flow biosensor. PLoS One. 2021;16(1):e0245144.
- Notomi T, Mori Y, Tomita N, Kanda H. Loop-mediated isothermal amplification (LAMP): principle, features, and future prospects. J Microbiol. 2015;53(1):1-5.
- Yamazaki W, Ishibashi M, Kawahara R, Inoue K. Development of a loop-mediated isothermal amplification assay for sensitive and rapid detection of Vibrio parahaemolyticus. BMC Microbiol. 2008;8:163.
- Nagamine K, Hase T, Notomi T. Accelerated reaction by loop-mediated isothermal amplification using loop primers. Mol Cell Probes. 2002;16(3):223-229.
- Mori Y, Nagamine K, Tomita N, Notomi T. Detection of loop-mediated isothermal amplification reaction by turbidity derived from magnesium pyrophosphate formation. Biochem Biophys Res Commun. 2001;289(1):150-154.
- Yamazaki W et al. Development of a loop-mediated isothermal amplification assay for sensitive and rapid detection of the tdh and trh genes of Vibrio parahaemolyticus and related Vibrio species. Appl Environ Microbiol. 2010;76(3):820-828.
- Di H et al. Development and evaluation of a loop-mediated isothermal amplification assay combined with enrichment culture for rapid detection of very low numbers of Vibrio parahaemolyticus in seafood samples. Biol Pharm Bull. 2015;38(1):82-87.
- Cai SH et al. Loop-mediated isothermal amplification method for rapid detection of Vibrio alginolyticus, the causative agent of vibriosis in mariculture fish. Lett Appl Microbiol. 2010;50(5):480-485.
- Han F, Ge B. Evaluation of a loop-mediated isothermal amplification assay for detecting Vibrio vulnificus in raw oysters. Foodborne Pathog Dis. 2008;5(3):311-320.
- Zhang L et al. Rapid, specific and sensitive detection of Vibrio vulnificus by loop-mediated isothermal amplification targeted to vvhA gene. Hai Yang Xue Bao. 2018;37(4):83-88.
- Luan C, Levin RE. Use of activated carbon coated with bentonite for increasing the sensitivity of PCR detection of Escherichia coli O157:H7 in Canadian oyster (Crassostrea gigas) tissue. J Microbiol Methods. 2008;72(1):67-72.
- Ren C-H, Hu C-Q, Luo P, Wang Q-B. Sensitive and rapid identification of Vibrio vulnificus by loop-mediated isothermal amplification. Microbiol Res. 2009;164(5):514–21.
- Srisuk C et al. Rapid and sensitive detection of Vibrio cholerae by loop-mediated isothermal amplification targeted to the gene of outer membrane protein ompW: Detection of Vibrio cholerae by LAMP. Lett Appl Microbiol. 2010;50(1):36-42.
- Goto M et al. Colorimetric detection of loop-mediated isothermal amplification reaction by using hydroxy naphthol blue. Biotechniques. 2009;46(3):167-172.
- Parikh R et al. Understanding and using sensitivity, specificity and predictive values. Indian J Ophthalmol. 2008;56(1):45-50.
- Yung CM et al. Insensitivity of diverse and temporally variable particle-associated microbial communities to bulk seawater environmental parameters. Appl Environ Microbiol. 2016;82(11):3431-3437.
- Abolmaaty A, Gu W, Witkowsky R, Levin RE. The use of activated charcoal for the removal of PCR inhibitors from oyster samples. J Microbiol Methods. 2007;68(2):349-352.
- Lee JL, Levin RE. Detection of 5 CFU/g of Escherichia coli O157:H7 on lettuce using activated charcoal and real-time PCR without enrichment. Food Microbiol. 2011;28(3):562-567.
- Tian CD et al. Study on detection of Vibrio parahaemolyticus in shellfish by use of loop-mediated isothermal amplification method: V. Parahaemolyticus in shellfish. J Food Saf. 2011;31(3):371-378.
- Niessen L, Luo J, Denschlag C, Vogel RF. The application of loop-mediated isothermal amplification (LAMP) in food testing for bacterial pathogens and fungal contaminants. Food Microbiol. 2013;36(2):191-206.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.