Niniejsze badanie integruje farmakologię sieciową, zwalidowane dokowanie molekularne oraz eksperymenty in vitro w celu oceny relacji między potencjalnymi związkami a celami w obrębie składników Cordyceps sinensis a procesów związanych z przewlekłym kłębowkowym zapaleniem nerek. Do walidacji na poziomie związku wybrano β-sitosterol, który wykazał zdolność do osłabiania aktywacji zapalnej i profibrotycznej w modelach komórek mezanialnych.
Artykuł metodologiczny
Ocena β-sitosterolu w modelach zapalnych i profibrotycznych komórek kłęboszkowych istotnych dla przewlekłego kłębuszkowego zapalenia nerek w oparciu o analizę sieciową
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Przewlekłe zapalenie kłębuszków nerkowych (CGN) charakteryzuje się uporczywym uszkodzeniem zapalnym i postępującym przebudowaniem włóknistym, jednak relacje związek-cel leżące u podstaw interwencji opartych na produktach naturalnych pozostają niepełnie zdefiniowane. W niniejszym badaniu zintegrowano farmakologię sieciową, zwalidowane dokowanie molekularne oraz eksperymenty in vitro w celu oceny potencjalnych składników Cordyceps sinensis (C. sinensis) w procesach patologicznych związanych z CGN. Przesiewowo wyłoniono potencjalne składniki C. sinensis, a cele powiązane ze związkami, pochodzące z Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform, zestawiono z genami powiązanymi z CGN. Analizy wzbogacenia funkcjonalnego i oddziaływań białko-białko wykorzystano do priorytetyzacji procesów biologicznych i kluczowych celów (hub targets). PTGS2 zidentyfikowano jako kluczowy wspólny cel. Dokowanie molekularne przeprowadzono przy użyciu struktury COX-2 związanej z celekoksybem. Ponowne dokowanie kokrystalizowanego ligandu celekoksybu odtworzyło pozę krystalograficzną z wartością RMSD 0,876 Å, co potwierdziło protokół dokowania. β-sitosterol oraz octan linoleylu wykazały przewidywaną kompatybilność z regionem dokowania COX-2, z powinowactwami wiązania wynoszącymi odpowiednio −7,2 i −7,5 kcal/mol. β-sitosterol wybrano do walidacji na poziomie związku w szczurzych komórkach mezan gialnych kłębuszków nerkowych HBZY-1. W stężeniach 0,5–10 µM β-sitosterol nie spowodował znaczącego zmniejszenia żywotności komórek. W komórkach stymulowanych lipopolisacharydem (LPS) β-sitosterol obniżył ekspresję Tnf, Il6 i Ptgs2, zmniejszył produkcję prostaglandyny E2 (PGE2) oraz obniżył zawartość białka cyklooksygenazy-2 (COX-2). W komórkach traktowanych czynnikiem wzrostu TGF-β1 β-sitosterol obniżył ekspresję Col1a1 i Acta2 oraz zmniejszył zawartość białka alfa-aktyny mięśni gładkich (α-SMA). Wyniki te dostarczają dowodów pozwalających sformułować hipotezę, że β-sitosterol moduluje aktywację zapalną i profibrotyczną w modelach komórek mezangialnych, jednak nie potwierdzają one bezpośredniego hamowania enzymatycznego COX-2 ani skuteczności terapeutycznej w CGN.
Wprowadzenie
Przewlekłe kłębuszkowe zapalenie nerek (CGN) obejmuje heterogenną grupę schorzeń kłębuszków, które mogą prowadzić do przewlekłej choroby nerek oraz schyłkowej niewydolności nerek1. Charakteryzuje się ono uporczywym uszkodzeniem kłębuszków, aktywacją stanu zapalnego oraz postępującą przebudową włóknistą2,3. Chociaż kortykosteroidy i leki immunosupresyjne są stosowane u wybranych pacjentów, długoterminowa kontrola choroby w wielu przypadkach pozostaje trudna, a działania niepożądane związane z leczeniem są częste1,4,5. Progresja CGN obejmuje oddziałujące na siebie procesy patologiczne, w tym aktywację odpornościową, dysfunkcję śródbłonka, stres oksydacyjny oraz gromadzenie macierzy zewnątrzkomórkowej3,6,7. W związku z tym zidentyfikowanie węzłów molekularnych łączących odpowiedzi zapalne i profibrotyczne może pomóc w sformułowaniu sprawdzalnych hipotez dotyczących strategii interwencyjnych istotnych dla przebiegu choroby.
Cordyceps sinensis (C. sinensis) jest stosowany w klinicznych i eksperymentalnych kontekstach związanych z nerkami i doniesiono, że wykazuje działanie przeciwzapalne, antyapoptotyczne i cytoprotekcyjne w kilku modelach chorób8,9,10. Jednakże molekularne podstawy, dzięki którym potencjalne składniki tego grzyba mogą oddziaływać na cele istotne dla kłębuszkowego zapalenia nerek, pozostają niewystarczająco określone11. Biorąc pod uwagę wieloskładnikową naturę C. sinensis oraz heterogeniczność mechanistyczną CGN, farmakologia sieciowa dostarcza użytecznych ram dla priorytetyzacji relacji między potencjalnymi związkami, celami a szlakami sygnałowymi12,13.
W niniejszym badaniu zintegrowano przesiewowe badanie związków, identyfikację celów terapeutycznych, analizę punktów wspólnych między chorobą a genami, analizę wzbogacenia funkcjonalnego, analizę sieci oddziaływań białko-białko, dokowanie molekularne oraz walidację in vitro, aby zbadać potencjalne zależności molekularne pomiędzy kandydackimi składnikami C. sinensis a procesami patologicznymi związanymi z CGN. Syntaza prostaglandynowo-endoperoksydowa 2 (PTGS2) została uznana za priorytetowy cel centralny (hub target) w sieci związek-choroba i została poddana ocenie poprzez dokowanie molekularne z wykorzystaniem struktury cyklooksygenazy-2 (COX-2) z wiązanym celekoksybem oraz walidacją poprzez redokowanie. Na podstawie wyników analizy sieciowej, dokowania oraz wcześniejszych dowodów na działanie przeciwzapalne i przeciwzwłóknieniowe, β-sitosterol wybrano jako reprezentatywny związek kandydacki do dalszej walidacji14,15,16. Do oceny aktywacji zapalnej oraz odpowiedzi związanej z COX-2/prostaglandyną E2 (PGE2) wykorzystano komórki mezaangialne stymulowane lipopolisacharydem (LPS), natomiast w celu oceny ekspresji markerów profibrotycznych zastosowano model indukowany czynnikiem wzrostu TGF-β1.
Protokół
Analizy farmakologii sieciowej i bioinformatyczne oparto na publicznie dostępnych bazach danych i nie angażowały one uczestników będących ludźmi ani zwierząt. Eksperymenty in vitro przeprowadzono z wykorzystaniem uznanej linii komórkowej i nie wymagały one zgody komisji etycznej zgodnie z wymogami instytucjonalnymi.
Przesiewowe badanie potencjalnych składników i identyfikacja celu
Kandydackie składniki oraz ich odpowiednie cele pobrano z Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) 13 lipca 2025 roku, używając terminu wyszukiwania „dongchongxiacao”. Zachowano związki z przewidywaną biodostępnością doustną wynoszącą co najmniej 30% oraz lekopodobnością na poziomie co najmniej 0,18. Siedem kandydackich składników spełniło oba kryteria przesiewowe. Masę cząsteczkową, biodostępność doustną, lekopodobność oraz inne dostępne deskryptory farmakokinetyczne odnotowano z TCMSP w celu porównania opisowego.
Informacje o powiązaniach związek-cel dla zachowanych składników pobrano bezpośrednio z bazy TCMSP. Podczas tworzenia nieredundantnego zbioru celów ręcznie usunięto powtarzające się wpisy, zachowując jednocześnie oryginalne relacje związek-cel do późniejszej konstrukcji sieci. Ponieważ baza TCMSP dostarczała pełne nazwy celów zamiast standaryzowanych symboli genów, każdy cel przeszukano w bazie UniProt (dostęp z dnia 14 lipca 2025 r.). Wybrano odpowiadający im wpis dla człowieka, a nazwę celu przekształcono na oficjalny symbol genu. Standaryzowany zbiór danych związek-cel wykorzystano do analizy przecięcia choroba-cel oraz analizy sieci związek-cel.
Zbiór genów związanych z kłębuszkowym zapaleniem nerek i analiza punktów wspólnych dla celów terapeutycznych
Geny związane z chorobą pobrano z baz GeneCards, DisGeNET, PharmGKB oraz Therapeutic Target Database, stosując termin wyszukiwania „glomerulonephritis” w dniu 14 lipca 2025 r. W przypadku GeneCards zachowano wpisy z wynikiem istotności wyższym niż mediana wynosząca 10. Kwalifikujące się wpisy z pozostałych baz danych zostały uwzględnione zgodnie z ich opracowanymi adnotacjami cel-choroba. Nazwy genów ustandaryzowano do oficjalnych symboli genów ludzkich, a duplikaty usunięto. Procedura ta pozwoliła uzyskać 1 134 unikalnych genów związanych z kłębuszkowym zapaleniem nerek. Ponieważ w wyszukiwaniu zastosowano szeroki termin „glomerulonephritis”, otrzymany zestaw danych uznano za istotny dla procesów molekularnych związanych z przewlekłym kłębuszkowym zapaleniem nerek, a nie za specyficzny dla pojedynczego podtypu histopatologicznego.
Cele powiązane ze związkami pochodzącymi z TCMSP zestawiono z zestawem genów powiązanych z chorobą przy użyciu programu R. Zidentyfikowano dwadzieścia trzy wspólne cele. Diagramy Venna wygenerowano za pomocą pakietu R venn, a sieć wspólnych celów związków zbudowano i zwizualizowano przy użyciu programu Cytoscape. Relacje między kandydackimi składnikami a wspólnymi celami podsumowano w Tabeli 1.
Analizy wzbogacenia funkcjonalnego oraz oddziaływań białko-białko
Analizy wzbogacenia Gene Ontology (GO) oraz Kyoto Encyclopedia of Genes and Genomes (KEGG) przeprowadzono w środowisku R przy użyciu pakietów clusterProfiler i org.Hs.eg.db. Terminy Gene Ontology analizowano w kategoriach procesów biologicznych, komponentów komórkowych i funkcji molekularnych. Wartości P skorygowano pod kątem wielokrotnych testów metodą Benjamini-Hochberga, a zachowano terminy lub szlaki o skorygowanych wartościach P poniżej 0,05. Wzbogacone terminy i szlaki przedstawiono za pomocą niezależnie wygenerowanych wykresów słupkowych oraz wykresów kropkowych.
Lista 23 wspólnych celów została wprowadzona do bazy STRING, z wyborem Homo sapiens jako organizmu oraz minimalnym wynikiem interakcji powyżej 0,4. Uzyskana sieć oddziaływań białko-białko została zaimportowana do programu Cytoscape. Topologię sieci oceniono za pomocą narzędzia CytoNCA w oparciu o stopień, centralność pośrednictwa, centralność bliskości, centralność wektora własnego, lokalną średnią łączność oraz centralność sieci. Cele pełniące rolę węzłów centralnych (hub targets) zdefiniowano jako węzły, dla których wartości stopnia, centralności pośrednictwa, centralności bliskości, centralności wektora własnego, lokalnej średniej łączności oraz centralności sieci były wszystkie wyższe niż odpowiadające im wartości mediany sieci. Analiza ta pozwoliła na wyłonienie dziewięciu kluczowych celów (hub targets) do dalszej interpretacji.
Dokowanie molekularne i walidacja poprzez redokowanie
Dokowanie molekularne przeprowadzono z wykorzystaniem struktury cyklooksygenazy-2 związanej z celekoksybem (PDB ID 3LN1). Łańcuch A oraz powiązana z nim grupa hemu zostały zachowane jako receptor, natomiast podczas przygotowania receptora usunięto krystalograficzne cząsteczki wody oraz współkrystalizowany ligand celekoksyb. Rodzima konformacja celekoksybu została osobno wyekstrahowana z łańcucha A w celu walidacji poprzez redokowanie. Za pomocą AutoDockTools dodano polarne atomy wodoru oraz ładunki Gasteigera, a receptor zapisano w formacie PDBQT. PDB ID 3LN1 to struktura mysiej COX-2 związanej z celekoksybem o rozdzielczości 2,40 Å. Struktury β-sitosterolu i octanu linoleylu pobrano z bazy PubChem i przygotowano za pomocą programu Open Babel. Dodano atomy wodoru i cząstkowe ładunki Gasteigera, przypisano wiązania rotowalne, a każdy ligand przekonwertowano do formatu PDBQT. Celekoksyb, β-sitosterol oraz octan linoleylu zadokowano przy użyciu AutoDock Vina z zastosowaniem tego samego receptora i parametrów przeszukiwania.
Pole dokowania (docking box) zostało wycentrowane na natywnym regionie wiązania celekoxybu przy użyciu następujących współrzędnych: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. Wartość dokładności (exhaustiveness) ustawiono na 16, liczbę trybów wyjściowych na 10, a zakres energii na 3 kcal/mol. Do wizualizacji wybrano najlepiej ocenioną pozę na podstawie najniższej przewidywanej energii wiązania. W celu walidacji protokołu przeprowadzono redokowanie natywnego celekoxybu w tych samych warunkach, a następnie za pomocą programu PyMOL obliczono odchylenie średniokwadratowe (RMSD) atomów ciężkich pomiędzy pozą krystalograficzną a pozą po redokowaniu. Odchylenie średniokwadratowe poniżej 2 Å uznano za dopuszczalne odtworzenie pozy referencyjnej. W programie PyMOL zidentyfikowano reszty znajdujące się w odległości 4 Å od każdego dokowanego ligandu. Wyniki dokowania i pozy interpretowano jako szacunki kompatybilności strukturalnej, a nie jako bezpośredni dowód wiązania z celem lub inhibicji enzymatycznej.
Hodowla komórkowa i przygotowanie związków
Komórki kłębuszkowe mezańgium szczura HBZY-1 hodowano w wysokoglukozowej pożywce Dulbecco’s modified Eagle uzupełnionej o 10% płodowej surowicy bydlęcej oraz 1% penicyliny i streptomycyny w temperaturze 37 °C w warunkach uwilgotnienia z 5% CO₂. Do wszystkich eksperymentów wykorzystano komórki z przejść 2–7, a przed użyciem zweryfikowano brak obecności mykoplazm. Jako związki chemicznie zdefiniowane zastosowano β-sitosterol i celekoksyb. β-sitosterol rozpuszczono w etanolu absolutnym w celu przygotowania roztworu stokowego o stężeniu 10 mM (około 4,15 mg/mL). W razie potrzeby przeprowadzono krótką sonikację i podgrzano roztwór do 50–60 °C, aby uzyskać klarowny wizualnie roztwór. Celekoksyb rozpuszczono w dimetylosulfoksydzie w celu przygotowania roztworu stokowego o stężeniu 10 mM (około 3,81 mg/mL). Roztwory stokowe podzielono na alikwoty i przechowywano w temperaturze −20 °C. Przed zastosowaniem roztwory stokowe rozcieńczano bezpośrednio w uprzednio ogrzanej pożywce hodowlanej i niezwłocznie mieszano.
Stężenia rozpuszczalników zostały ujednolicone w każdym z eksperymentów. W teście żywotności komórek końcowe stężenie etanolu dostosowano do 0,2% v/v we wszystkich grupach, ponieważ najwyższe przetestowane stężenie β-sitosterolu wynosiło 20 µM. W eksperymencie dotyczącym stanu zapalnego indukowanego przez LPS końcowe stężenia etanolu i dimetylosulfotlenku dostosowano odpowiednio do 0,1% i 0,01% v/v we wszystkich grupach. W eksperymencie dotyczącym zmian profibrotycznych indukowanych przez TGF-β1 końcowe stężenie etanolu dostosowano do 0,1% v/v we wszystkich grupach. Do grup kontrolnej, LPS i TGF-β1 dodano równoważne objętości odpowiednich rozpuszczalników.
Test żywotności komórek
Komórki wysiano na płytki 96-dołkowe z gęstością 5 × 10³ komórek na dołek w 100 µL pożywki kompletnej i pozostawiono na 24 h w celu adhezji. Aby ocenić zakres stężeń β-sitosterolu, komórki inkubowano z β-sitosterolem w stężeniach 0,5, 1, 5, 10 lub 20 µM przez 24 h. W teście żywotności komórek w związku z LPS, komórki poddano wstępnemu traktowaniu β-sitosterolem w stężeniach 1, 5 lub 10 µM przez 2 h, a następnie eksponowano na 1 µg/mL lipopolisacharydu przez kolejne 24 h.
Grupy badawcze obejmowały grupę kontrolną, β-sitosterol w stężeniu 0.5 µM, β-sitosterol w stężeniu 1 µM, β-sitosterol w stężeniu 5 µM, β-sitosterol w stężeniu 10 µM, β-sitosterol w stężeniu 20 µM, LPS, LPS z dodatkiem β-sitosterolu w stężeniu 1 µM, LPS z dodatkiem β-sitosterolu w stężeniu 5 µM oraz LPS z dodatkiem β-sitosterolu w stężeniu 10 µM. Odczynnik Cell Counting Kit-8 dodawano w ilości 10 µL na studzienkę, a następnie płytki inkubowano przez 2 h. Następnie zmierzono absorbancję przy 450 nm. Żywotność komórek określono po odjęciu wartości tła dla studzienek bez komórek i wyrażono ją względem grupy kontrolnej. Każdy wariant obejmował sześć studzienek technicznych w każdym z sześciu niezależnych eksperymentów biologicznych. Wartości ze studzienek technicznych z każdego eksperymentu uśredniono, aby uzyskać jedną wartość powtórzenia biologicznego do analizy statystycznej.
Aktywacja zapalna indukowana LPS
W eksperymentach nad aktywacją zapalną komórki HBZY-1 wysiano na płytki 6-dołkowe w gęstości 2 × 10⁵ komórek na dołek i poddano działaniu substancji po osiągnięciu konfluencji na poziomie około 70%–80%. Komórki utrzymywano w pożywce uzupełnionej o 1% płodowej surowicy bydlęcej przez 12 h przed traktowaniem. β-Sitosterol lub celekoksyb podano 2 h przed stymulacją LPS. Następnie komórki eksponowano na 1 µg/mL LPS przez 24 h.
Grupy eksperymentalne obejmowały grupę kontrolną, β-sitosterol w stężeniu 10 µM, LPS, LPS plus β-sitosterol w stężeniu 1 µM, LPS plus β-sitosterol w stężeniu 5 µM, LPS plus β-sitosterol w stężeniu 10 µM oraz LPS plus celekoksyb w stężeniu 1 µM. Celekoksyb zastosowano jako funkcjonalną kontrolę pozytywną dla hamowania produkcji prostaglandyn zależnej od COX-2. Po zakończeniu inkubacji zebrano nadnadkładki hodowlane w celu oznaczenia PGE2. Komórki zebrano osobno do analizy ilościowej PCR w czasie rzeczywistym dla genów Tnf, Il6 oraz Ptgs2 a także do analizy COX-2 metodą western blot.
Profibrotyczna aktywacja indukowana przez TGF-β1
Osobny model indukowany TGF-β1 został wykorzystany do oceny aktywacji profibrotycznej. Komórki HBZY-1 wysiano do płytek 6-dołkowych w gęstości 2 × 10⁵ komórek na dołek i utrzymywano w pożywce uzupełnionej o 1% płodowej surowicy bydlęcej przez 12 h przed traktowaniem. Komórki poddano wstępnej inkubacji z β-sitosterolem przez 2 h, a następnie stymulowano rekombinowanym TGF-β1 w stężeniu 10 ng/mL przez 48 h.
Grupy badawcze obejmowały grupę kontrolną, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM) oraz TGF-β1 + β-sitosterol (10 µM). Po zakończeniu okresu traktowania komórki zebrano do ilościowej analizy qPCR genów Col1a1 i Acta2 oraz do analizy western blot w celu oznaczenia poziomu alfa-aktyny mięśni gładkich (α-SMA).
Ilościowa reakcja łańcuchowa polimerazy w czasie rzeczywistym (qPCR)
Całkowity RNA wyizolowano z poddanych działaniu preparatów komórek, stosując odczynnik do ekstrakcji RNA oparty na fenolu i guanidynium zgodnie z protokołem producenta. Stężenie i czystość RNA określono za pomocą spektrofotometru. Do transkrypcji odwrotnej wykorzystano wyłącznie próbki o stosunku A260/A280 w zakresie 1,8–2,0. Dla każdej próbki 1 µg całkowitego RNA poddano transkrypcji odwrotnej do komplementarnego DNA w końcowej objętości reakcji 20 µL. Otrzymane komplementarne DNA rozcieńczono pięciokrotnie wodą wolną od nukleaz przed przeprowadzeniem ilościowej PCR. Ilościową PCR przeprowadzono w całkowitej objętości 20 µL zawierającej 10 µL 2× SYBR Green master mix, po 0,4 µL starterów prawego i lewego o stężeniu 10 µM, 2 µL rozcieńczonego komplementarnego DNA oraz 7,2 µL wody wolnej od nukleaz. Warunki amplifikacji obejmowały początkowy etap denaturacji w 95 °C przez 30 s, po którym nastąpiło 40 cykli denaturacji w 95 °C przez 5 s oraz przyłączania i elongacji w 60 °C przez 30 s. Następnie przeprowadzono analizę krzywej topnienia w zakresie od 65 °C do 95 °C w celu weryfikacji swoistości amplifikacji.
Zmierzono ekspresję genów Tnf, Il6, Ptgs2, Col1a1, Acta2 oraz Gapdh. Gen Gapdh służył jako wewnętrzny gen referencyjny. Względną ekspresję genów określono metodą 2−ΔΔCt, przyjmując grupę kontrolną jako kalibrator. Sekwencje starterów podano w Tabeli uzupełniającej 1. Każda próbka była analizowana w trzech powtórzeniach technicznych, a przeprowadzono sześć niezależnych eksperymentów biologicznych. Wartości uzyskane z powtórzeń technicznych uśredniono przed analizą statystyczną.
Pomiar PGE2 za pomocą enzymatycznego testu immunosorpcyjnego (ELISA)
Nadnadkliny hodowlane zebrano po 24 h stymulacji LPS i odwirowano przy 1,000 × g przez 10 min w temperaturze 4 °C w celu usunięcia szczątków komórkowych. Stężenia PGE2 określono przy użyciu dostępnego komercyjnie zestawu do testu immunoenzymatycznego (ELISA) zgodnie z instrukcjami producenta.
Standardy i próbki naniesiono na płytkę testową w dwóch powtórzeniach. Po zakończeniu etapów wiązania przeciwciał i rozwoju barwy zmierzono absorbancję przy 450 nm za pomocą czytnika mikropłytek. Stężenia PGE2 określono na podstawie czteroparametrycznej logistycznej krzywej standardowej i wyrażono w pg/mL. Przeanalizowano supernatanty z sześciu niezależnych eksperymentów komórkowych. Pomiary powtórzone dla każdej próbki biologicznej uśredniono przed przeprowadzeniem analizy statystycznej.
Western blotting
Poddane działaniu komórki poddano lizie w buforze do analizy radioimmunoprecypitacyjnej uzupełnionym o mieszaninę inhibitorów proteaz. Lizaty inkubowano na lodzie przez 30 min, a następnie wirowano przy 12,000 × g przez 15 min w temperaturze 4 °C. Stężenia białek w supernatantach określono za pomocą testu białkowego z kwasem bicinchononowym. Równe ilości białka (30 µg na ścieżkę) zmieszano z buforem do nakładania i denaturowano w temperaturze 95 °C przez 5 min. Białka z eksperymentów z LPS rozdzielano na 10% żelach poliakrylamidowych z dodecylosiarczanem sodu, natomiast białka z eksperymentów z TGF-β1 rozdzielano na żelach 12%. Rozdzielone białka przeniesiono następnie na membrany z polifluororku winylidenu.
Membrany blokowano 5% odtłuszczonym mlekiem w soli buforowanej Tris z dodatkiem 0,1% Tween 20 przez 1 h w temperaturze pokojowej, a następnie inkubowano przez noc w 4 °C z przeciwciałami pierwszorzędowymi przeciwko COX-2 (1:1000), α-SMA (1:1000) i GAPDH (1:5000). COX-2 analizowano w próbkach z eksperymentu z LPS, natomiast α-SMA analizowano w próbkach z eksperymentu z TGF-β1. Po przemyciu membrany inkubowano z przeciwciałami wtórnymi sprzężonymi z peroksydazą chrzanową (1:5000) przez 1 h w temperaturze pokojowej. Prążki białkowe wizualizowano przy użyciu substratu do wzmocnionej chemiluminescencji i rejestrowano za pomocą systemu obrazowania chemiluminescencyjnego. Czasy ekspozycji wynosiły około 10 s dla COX-2, 10 s dla α-SMA i 2 s dla GAPDH.
Intensywność prążków została zmierzona przy użyciu programu ImageJ. Sygnały COX-2 i α-SMA zostały znormalizowane względem odpowiadającego im sygnału GAPDH. Western blotting przeprowadzono na próbkach białek uzyskanych z sześciu niezależnych eksperymentów z hodowlami komórkowymi i ich traktowaniem.
Analiza statystyczna
Analizy statystyczne przeprowadzono przy użyciu oprogramowania GraphPad Prism. Dane przedstawiono jako średnią ± odchylenie standardowe. Dla każdej analizy ilościowej wykonano sześć niezależnych eksperymentów z hodowlami komórkowymi i traktowaniem, przy czym każdy niezależny eksperyment stanowił jedną powtórkę biologiczną. Pomiary z powtórek technicznych uzyskane w ramach tego samego eksperymentu biologicznego uśredniono przed analizą statystyczną i nie uznano ich za niezależne obserwacje.
W przypadku testu żywotności komórek każdy eksperyment biologiczny obejmował sześć dołków technicznych na każdy warunek. Reakcje ilościowego PCR przeprowadzono w trzech powtórzeniach technicznych dla każdej próbki biologicznej, a pomiary PGE2 wykonano w dubletach. Ilościowa analiza Western blot opierała się na sześciu niezależnie przygotowanych próbkach białek. Zatem każdy słupek ilościowy zawiera wartości z sześciu indywidualnych powtórzeń biologicznych.
Różnice między wieloma grupami analizowano za pomocą jednoczynnikowej analizy wariancji, a następnie testu wielokrotnych porównań Tukeya. Dwustronną wartość P < 0,05 uznano za statystycznie istotną. Wartości dla poszczególnych powtórzeń biologicznych przedstawiono wraz ze średnią i odchyleniem standardowym.
Wyniki
Przesiewanie potencjalnych składników, odzyskiwanie celów i wyznaczanie wspólnych celów
Przebieg procesu identyfikacji potencjalnych wspólnych celów dla związku i choroby przedstawiono w Rysunek 1ASiedem związków kandydackich z C. sinensis spełniały zdefiniowane kryteria przesiewowe OB ≥30% oraz DL ≥0,18, w tym kwas arachidonowy, octan linoleilu, β-sitosterol, peroksyergosterol, cerewisterol, palmitynian cholesterylu oraz CLR (Tabela 2). Równolegle z baz danych GeneCards, DisGeNET, PharmGKB i TTD pobrano 1134 genów związanych z kłębuszkowym zapaleniem nerek, a ich rozkład w czterech bazach danych przedstawiono w Rycina 1BAnaliza przecięcia zbioru celów powiązanych z związkiem oraz zbioru genów powiązanych z chorobą pozwoliła zidentyfikować 23 wspólne cele (Tabela 1, Rycina 1C). Odpowiadająca mu sieć nakładających się celów związków została przedstawiona w Rysunek 1Dobrazując zależności między reprezentatywnymi związkami kandydatami, wspólnymi celami a CGN. Wspólne cele te obejmowały kilka genów związanych z regulacją stanu zapalnego, apoptozą oraz sygnalizacją naczyniową, takich jak PTGS2, CASP3, MAPK1, PPARG, TNFRSF1Aoraz NOS3.
Analizy wzbogacenia funkcjonalnego i oddziaływań białko-białko
W celu zbadania znaczenia biologicznego 23 nakładających się celów przeprowadzono analizy wzbogacenia GO oraz ścieżek KEGG. Wyniki wykazały, że cele te są istotnie wzbogacone w wielu ścieżkach związanych ze stanem zapalnym i metabolizmem.
Analiza GO zaklasyfikowała cele do kategorii procesów biologicznych (BP), komponentów komórkowych (CC) oraz funkcji molekularnych (MF). Najistotniej wzbogacone terminy BP obejmowały odpowiedź na lipopolisacharyd, odpowiedź na cząsteczki pochodzenia bakteryjnego oraz regulację procesów układu mięśniowego. Na poziomie komórkowym cele były wzbogacone w przedziały takie jak tratwy lipidowe, kawiolae i ziarnistości alfa płytek krwi, podczas gdy terminy MF, takie jak aktywność oksydoreduktazy i wiązanie receptorów jądrowych, dodatkowo wskazywały na rolę w stresie oksydacyjnym i regulacji transkrypcyjnej (Rysunek 2A).
Analiza KEGG wykazała, że ścieżka metabolizmu lipidów i miażdżycy (hsa05417) była najistotniej wzbogacona (wartość q <1 × 10⁻⁶), obok takich ścieżek jak sygnalizacja AGE–RAGE w powikłaniach cukrzycy, sygnalizacja TNF, sygnalizacja IL-17 oraz sygnalizacja HIF-1 (Rycyna 2B). Warto zauważyć, że ścieżka metabolizmu lipidów i miażdżycy obejmowała 10 z 23 celów, w tym CASP3, MAPK1, PPARG, NOS3 oraz TNFRSF1A.
Wspólnie wyniki te wskazują, że nakładające się cele są funkcjonalnie powiązane z procesami biologicznymi związanymi ze stanem zapalnym, odpowiedzią na stres oraz śródbłonkiem, które mają znaczenie w przypadku CGN.
Analiza sieci oddziaływań białko–białko
Wykorzystując program STRING, skonstruowano sieć oddziaływań białko-białko (PPI) dla 23 nakładających się celów, co doprowadziło do powstania sieci zawierającej 23 węzły i 102 krawędzie (Rysunek 3A). Analiza topologiczna z użyciem CytoNCA pozwoliła zidentyfikować dziewięć silnie połączonych celów centralnych (hubów): PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 oraz PRKCA (Rysunek 3B). spośród tych celów PTGS2 wykazał wyraźną centralność sieci, dlatego został wybrany do późniejszej analizy dokowania molekularnego. Wyniki te wskazują na podzbiór priorytetyzowanych w sieci potencjalnych regulatorów-kandydatów, które mogą mieć znaczenie dla punktu styku związku i choroby.
Dokowanie molekularne i walidacja poprzez redokowanie
Aby dalej ocenić wiarygodność strukturalną relacji kandydackich związanych z PTGS2, zidentyfikowanych za pomocą analizy sieci, przeprowadzono dokowanie molekularne z wykorzystaniem struktury COX-2 z wiązanym celekoksibem. Wybrano strukturę krystaliczną PDB ID 3LN1, ponieważ zawiera ona celekoksib związany w centrum aktywnym COX-2, co zapewnia eksperymentalnie zdefiniowaną kieszeń wiązania ligandu do walidacji dokowania. W pierwszej kolejności wyekstrahowano współkrystalizowany ligand celekoksib i poddano go ponownemu dokowaniu do tej samej kieszeni wiązania. Poza z redokowania celekoksibu ściśle odtworzyło pozę krystalograficzną, przy wartości średniokwadratowego odchylenia (RMSD) z redokowania wynoszącej 0,876 Å i przewidywanej powinowactwie wiązania na poziomie -12,3 kcal/mol (Rycina 4A). Wynik ten wskazał, że protokół dokowania był w stanie odtworzyć znaną pozę wiązania ligandu w wybranych warunkach dokowania.
Przy zastosowaniu tego samego receptora, ramki grid box oraz parametrów dokowania, β-sitosterol został zadokowany do regionu wiązania COX-2 zdefiniowanego przez celekoksyb. β-sitosterol wykazał przewidywaną powinowatość wiązania na poziomie -7.2 kcal/mol (Rysunek 4B). Zadokowana poza znajdowała się w obrębie zdefiniowanego regionu dokowania COX-2, a reszty otaczające pozę zadokowanego β-sitosterolu obejmowały ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 oraz TYR341.
Octan linoleylu został również oceniony jako drugorzędny kandydat obliczeniowy, ponieważ pozostał na liście składników-kandydatów i był powiązany z PTGS2 w analizie sieciowej. W tych samych warunkach dokowania octan linoleylu wykazał przewidywane powinowactwo wiązania na poziomie -7,5 kcal/mol, co było nieco korzystniejsze niż w przypadku β-sitosterolu (Ryc. 4C). Jego przewidywana poza znajdowała się blisko ligandu referencyjnego celekoksybu w obszarze dokowania. Pozostałości otaczające octan linoleylu obejmowały ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 oraz VAL509.
Żywotność komórek, aktywacja zapalna i aktywacja profibrotyczna
β-sitosterol wybrano do walidacji na poziomie związku, ponieważ w analizie sieciowej zidentyfikowano go jako kandydata powiązanego z PTGS2, a wcześniejsze badania eksperymentalne potwierdziły jego działanie przeciwzapalne i przeciwzwłóknieniowe. W pierwszej kolejności oceniono żywotność komórek, aby ustalić zakres stężeń odpowiedni do kolejnych eksperymentów. Traktowanie β-sitosterolem w stężeniach 0,5, 1, 5 i 10 µM nie spowodowało wyraźnego zmniejszenia żywotności komórek w porównaniu z grupą kontrolną, natomiast stężenie 20 µM β-sitosterolu wywołało lekki spadek. Ekspozycja na LPS obniżyła żywotność komórek, a jednoczesne podanie β-sitosterolu częściowo poprawiło żywotność komórek pod wpływem stymulacji LPS, przy czym najbardziej wyraźny efekt zaobserwowano przy 10 µM (Rycina 5A). Na podstawie tych wyników do następnych eksperymentów nad zapalną aktywacją indukowaną LPS wykorzystano β-sitosterol w stężeniach 1, 5 i 10 µM.
Stymulacja LPS wyraźnie zwiększyła ekspresję mRNA genów zapalnych w komórkach HBZY-1. W porównaniu z grupą kontrolną, grupa LPS wykazała wyższe poziomy ekspresji Tnf, Il6 oraz Ptgs2 (Rycina 5B-D). Leczenie β-sitosterolem zmniejszyło indukowaną przez LPS nadekspresję tych genów w sposób zależny od stężenia. Tendencja hamująca była najbardziej widoczna w grupie LPS z dodatkiem 10 µM β-sitosterolu. Celekoksyb, włączony jako funkcjonalna kontrola inhibitora COX-2, również w pewnym stopniu zredukował ekspresję genów zapalnych, choć jego efekt był mniej wyraźny niż ten zaobserwowany dla 10 µM β-sitosterolu w przypadku kilku markerów transkrypcyjnych (Rycina 5B-D).
Ponieważ Ptgs2 koduje COX-2, a PGE2 jest głównym produktem prostaglandyny powstającym w wyniku aktywności COX-2, wydzielanie PGE2 zmierzono za pomocą testu ELISA. Leczenie LPS zwiększyło stężenie PGE2 w supernatancie hodowlanym w porównaniu z grupą kontrolną. β-sitosterol zmniejszył indukowaną przez LPS produkcję PGE2 w sposób zależny od stężenia. Celekoksyb również zredukował produkcję PGE2 i posłużył jako kontrola pozytywna dla funkcjonalnego hamowania osi COX-2/PGE2 (Rysunek 5E). Analiza Western blot dodatkowo wykazała, że LPS zwiększył obfitość białka COX-2. Leczenie β-sitosterolem zredukowało poziomy białka COX-2 pod wpływem stymulacji LPS, przy czym silniejszą redukcję zaobserwowano przy wyższym stężeniu. W przeciwieństwie do tego, celekoksyb zredukował produkcję PGE2, ale wywarł bardziej ograniczony wpływ na obfitość białka COX-2 (Rysunek 5F).
Aby uzupełnić model stanu zapalnego indukowanego przez LPS, zastosowano model aktywacji profibrotycznej indukowanej przez TGF-β1, aby ocenić, czy β-sitosterol wpływa na ekspresję markerów włóknienia w komórkach kłębuszkowych. TGF-β1 znacznie zwiększył ekspresję mRNA Col1a1 oraz Acta2 w porównaniu z grupą kontrolną (Rycina 6A,B). β-sitosterol zredukował indukowany przez TGF-β1 wzrost obu markerów, a redukcja ta była bardziej wyraźna przy stężeniu 10 µM niż przy 5 µM (Rycina 6A,B). Analiza Western blot wykazała odpowiadający temu wzrost ekspresji białka α-SMA po stymulacji TGF-β1, natomiast zastosowanie β-sitosterolu zmniejszyło zawartość białka α-SMA w komórkach traktowanych TGF-β1 (Rycina 6C).
DOSTĘPNOŚĆ DANYCH:
Surowe i przetworzone dane wspierające niniejsze badanie zostały zdeponowane w Zenodo pod adresem DOI: https://zenodo.org/records/21649482. Obrazy pełnego skanu z western blotu znajdują się w Pliku uzupełniającym 1.
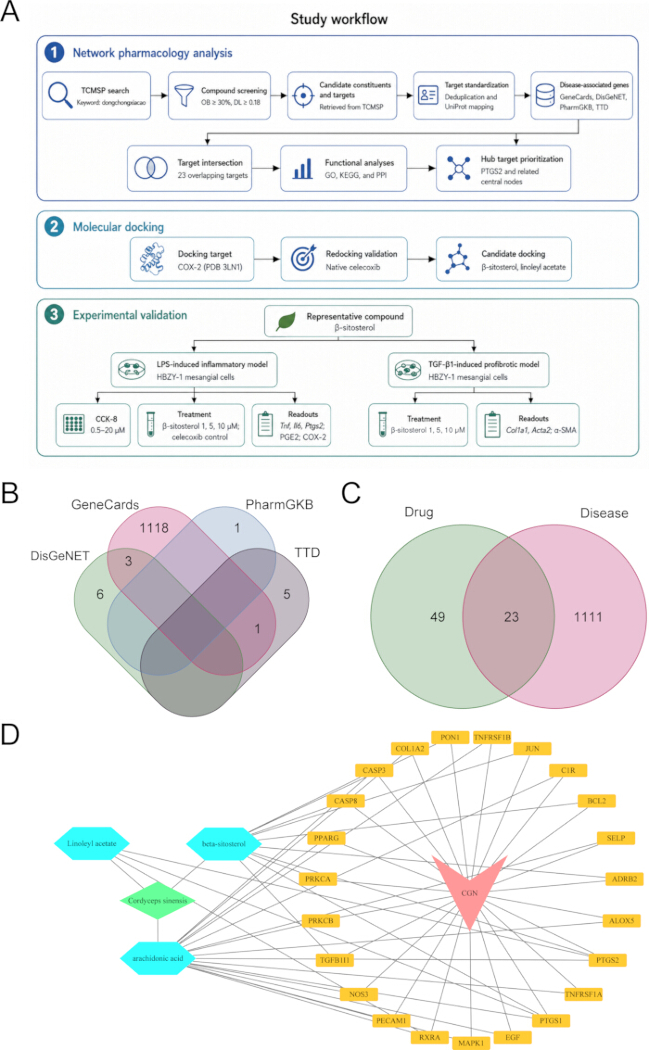
Rysunek 1. Schemat postępowania oraz identyfikacja oparta na sieciach potencjalnych wspólnych celów związku–choroba dla C. sinensis w kłębuszkowym zapaleniu nerek. (A) Schematyczny przebieg procesu obejmujący identyfikację potencjalnych związków, pozyskiwanie i standaryzację celów powiązanych ze związkami, pozyskiwanie genów powiązanych z kłębuszkowym zapaleniem nerek, analizę przecięcia oraz konstrukcję sieci wspólnych celów związków. (B) Wykres Venna ilustrujący rozmieszczenie genów powiązanych z kłębuszkowym zapaleniem nerek pobranych z GeneCards, DisGeNET, PharmGKB i TTD. (C) Wykres Venna pokazujący część wspólną między celami powiązanymi ze związkami pochodzącymi z TCMSP a genami powiązanymi z chorobą, co pozwoliło wyłonić 23 wspólne cele. (D) Sieć wspólnych celów związków. Zielony romb reprezentuje C. sinensis, niebieskie sześciokąty oznaczają potencjalne związki, żółte okręgi wskazują wspólne cele, a różowy trójkąt reprezentuje CGN. Krawędzie oznaczają odpowiednie relacje związek–cel lub choroba–cel. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
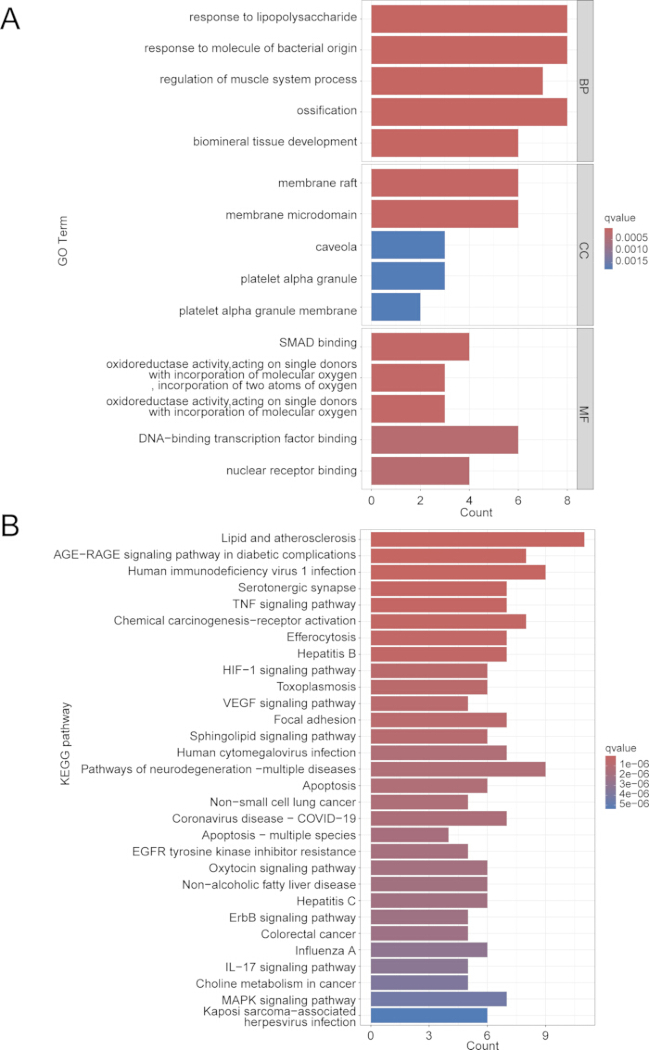
Rysunek 2. Analiza wzbogacenia funkcjonalnego wspólnych celów. (A) Analiza wzbogacenia GO dla 23 wspólnych celów. Zidentyfikowano najważniejsze termy BP, CC i MF. Długość słupka wskazuje liczbę genów; gradient kolorów reprezentuje wartość q. (B) Analiza wzbogacenia KEGG dla 23 wspólnych celów. Ścieżki zostały uszeregowane według liczby genów i istotności statystycznej. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
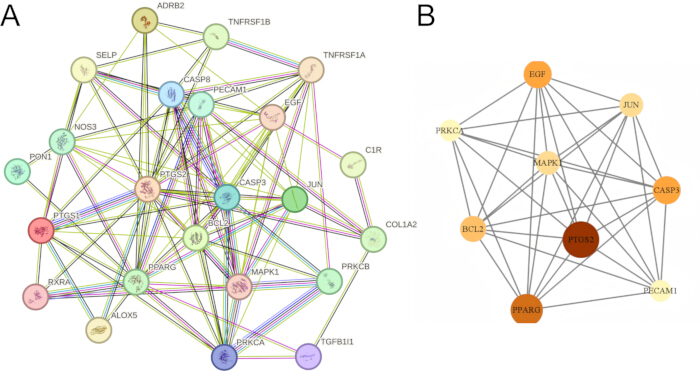
Rysunek 3. Sieć interakcji białko-białko oraz priorytetyzacja głównych celów wśród celów nakładających się. (A) Sieć PPI skonstruowana z 23 nakładających się celów przy użyciu bazy STRING z progiem wyniku interakcji >0.4. (B) Dziewięć najważniejszych celów typu hub zostało wytypowanych na podstawie analizy topologii sieci za pomocą CytoNCA. PTGS2 wykazał znaczną centralność sieciową i został wybrany do późniejszej analizy dokowania molekularnego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
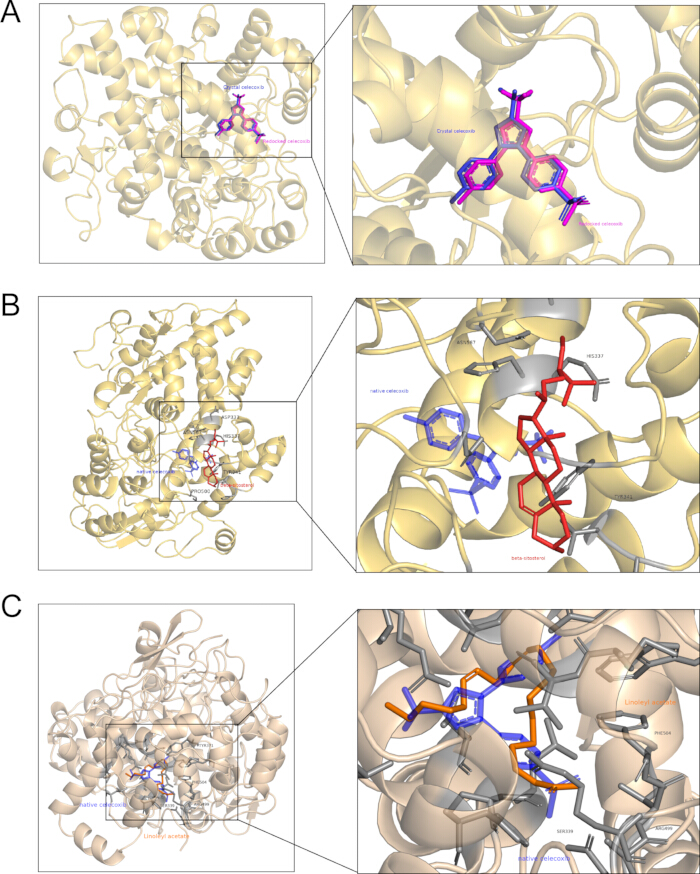
Rycina 4. Dokowanie molekularne i walidacja poprzez redokowanie wybranych związków kandydackich z COX-2. (A) Nałożenie krystalograficznej pozy celekoksybu i najwyżej ocenionej pozy po redokowaniu w strukturze mysiej COX-2 z wiązanym celekoksybem (PDB ID 3LN1). Redokowanie odtworzyło eksperymentalną orientację wiązania. (B) Najwyżej oceniona poza dokowania β-sitosterolu w regionie dokowania COX-2 zdefiniowanym przez celekoksyb. Krystalograficzna poza celekoksybu została uwzględniona jako punkt odniesienia przestrzennego. (C) Najwyżej oceniona poza dokowania octanu linoleylu w tym samym regionie dokowania. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
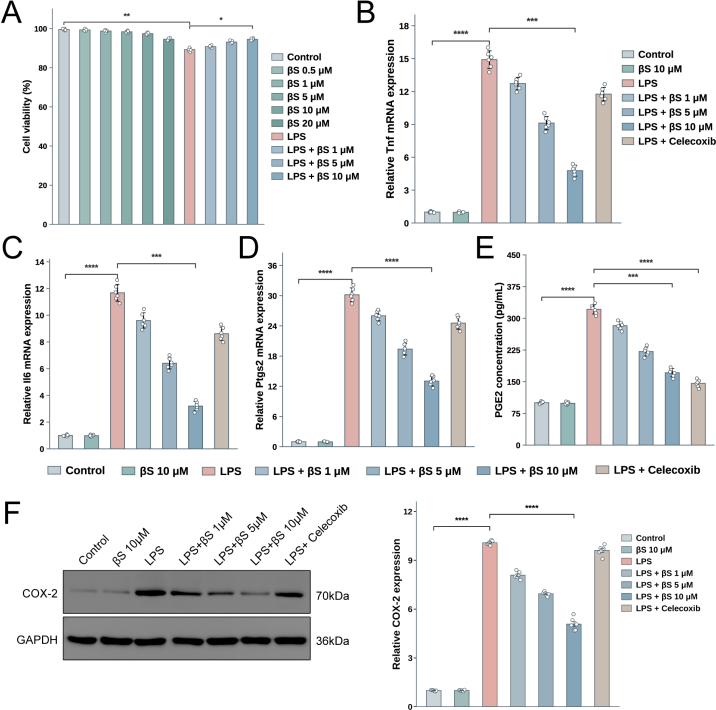
Rycina 5. β-Sitosterol łagodzi indukowaną LPS aktywację zapalną i produkcję PGE2 w komórkach kłębuszkowych HBZY-1. (A) Żywotność komórek zmierzono za pomocą testu Cell Counting Kit-8. Komórki traktowano β-sitosterolem w stężeniach 0.5, 1, 5, 10 lub 20 µM przez 24 h. W grupach stymulowanych LPS komórki poddano wstępnemu traktowaniu β-sitosterolem w stężeniach 1, 5 lub 10 µM przez 2 h przed ekspozycją na 1 µg/mL LPS przez 24 h. Żywotność komórek wykazano w stosunku do grupy kontrolnej. (B–D) Ilościowa analiza RT-PCR ekspresji mRNA dla genów Tnf (B), Il6 (C) oraz Ptgs2 (D). Ekspresję genów znormalizowano względem Gapdh i wykazano w stosunku do grupy kontrolnej. (E) Stężenia PGE2 w nadkresztkach hodowlanych zmierzone za pomocą testu ELISA. Celekoksyb zastosowano jako funkcjonalną kontrolę pozytywną dla supresji zależnej od COX-2 produkcji prostaglandyn. (F) Reprezentatywne obrazy western blot dla COX-2 i GAPDH w wskazanych grupach traktowania. Dane przedstawiono jako średnia ± SD z sześciu niezależnych eksperymentów biologicznych, z uwzględnieniem wartości dla poszczególnych powtórzeń biologicznych. Wartości z powtórzeń technicznych uśredniono przed analizą. Porównania przeprowadzono za pomocą jednoczynnikowej analizy wariancji (ANOVA), a następnie testu wielokrotnych porównań Tukeya. Istotność statystyczną zaznaczono nawiasami na poszczególnych panelach: *P < 0.05, **P < 0.01, ***P < 0.001 oraz ****P < 0.0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
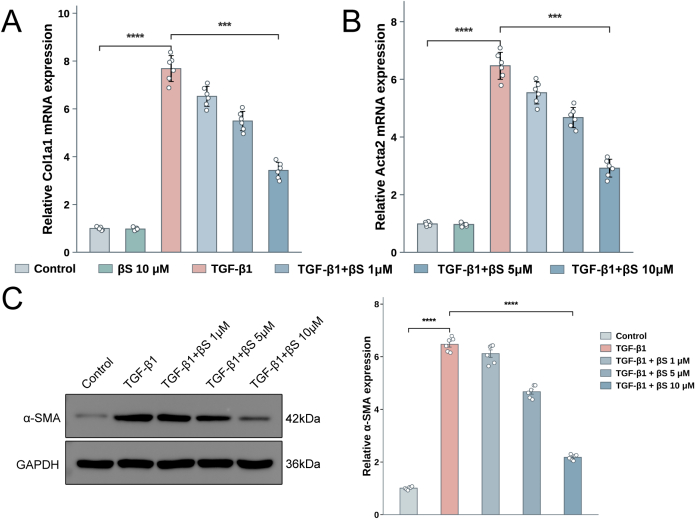
Rysunek 6. β-Sitosterol zmniejsza indukowaną przez TGF-β1 ekspresję markerów profibrotycznych w komórkach mezanialnych HBZY-1. (A–B) Ilościowa analiza qPCR ekspresji mRNA Col1a1 (A) i Acta2 (B). Ekspresję genów znormalizowano do Gapdh i przedstawiono w stosunku do grupy kontrolnej. (C) Reprezentatywne obrazy western blot dla α-SMA i GAPDH w wskazanych grupach traktowania. Dane przedstawiono jako średnia ± SD z sześciu niezależnych eksperymentów biologicznych, z naniesionymi wartościami dla poszczególnych powtórzeń biologicznych. Wartości z powtórzeń technicznych uśredniono przed analizą. Porównania przeprowadzono za pomocą jednoczynnikowej analizy wariancji ANOVA, a następnie testu wielokrotnych porównań Tukeya. Istotność zaznaczono nawiasami na poszczególnych panelach: *P < 0,05, **P < 0,01, ***P < 0,001 oraz ****P < 0,0001. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
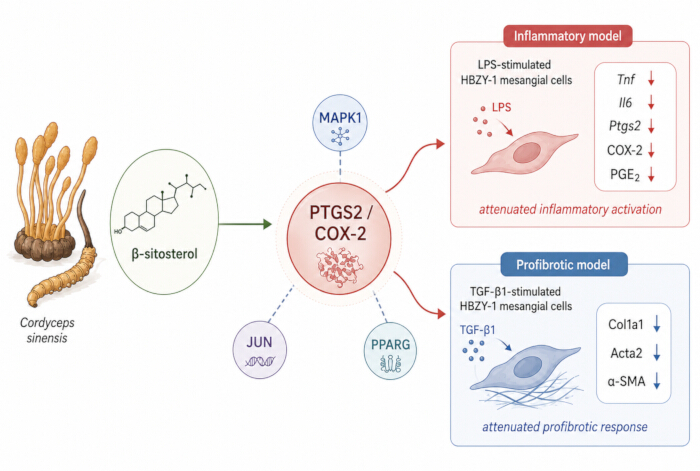
Rycina 7. Zintegrowana interpretacja odpowiedzi zapalnych i profibrotycznych związanych z β-sitosterolem w komórkach HBZY-1. Analizy sieciowe i dokowanie wyłoniły PTGS2/COX-2 jako priorytetowe w szerszym kontekście obejmującym MAPK1, JUN oraz PPARG. Leczenie β-sitosterolem wiązało się z redukcją indukowanej przez LPS ekspresji Tnf, Il6 i Ptgs2, obfitości białka COX-2 i produkcji PGE2, a także redukcją indukowanej przez TGF-β1 ekspresji Col1a1, Acta2 i α-SMA. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Nr | Nakładający się cel | Kandydackie związki powiązane z celem |
| 1 | PTGS1 | β-sitosterol; octan linoleylu; kwas arachidonowy |
| 2 | PTGS2 | β-sitosterol; octan linoleylu; kwas arachidonowy |
| 3 | CASP3 | β-sitosterol; kwas arachidonowy |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | octan linoleylu; kwas arachidonowy |
| 12 | TNFRSF1A | kwas arachidonowy |
| 13 | TNFRSF1B | kwas arachidonowy |
| 14 | ALOX5 | kwas arachidonowy |
| 15 | SELP | kwas arachidonowy |
| 16 | C1R | kwas arachidonowy |
| 17 | COL1A2 | kwas arachidonowy |
| 18 | PPARG | kwas arachidonowy |
| 19 | PRKCB | kwas arachidonowy |
| 20 | NOS3 | kwas arachidonowy |
| 21 | PECAM1 | kwas arachidonowy |
| 22 | MAPK1 | kwas arachidonowy |
| 23 | EGF | kwas arachidonowy |
Tabela 1: Wspólne cele między celami związanymi ze związkami pochodzącymi z TCMSP a genami związanymi z kłębuszkowym zapaleniem nerek.Zapisy par związek-cel zostały pobrane z TCMSP, ręcznie odduplikowane i ustandaryzowane do oficjalnych symboli ludzkich genów przy użyciu UniProt.
| Nazwa cząsteczki | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Kwas arachidonowy | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Octan linoleylu | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroksyergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Palmitynian cholesterylu | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Cholesterol (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabela 2: Potencjalne składniki C. sinensis pobrane z bazy TCMSP przy użyciu kryteriów przesiewowych dotyczących biodostępności doustnej i podobieństwa do leku. Zachowano związki o biodostępności doustnej co najmniej 30% i podobieństwie do leku co najmniej 0,18. MW, masa cząsteczkowa; ALogP, przewidywany współczynnik podziału oktanol-woda; OB, biodostępność doustna; Caco-2, przewidywana przepuszczalność Caco-2; BBB, przenikanie przez barierę krew-mózg; DL, podobieństwo do leku; FASA, ułamkowa ujemna dostępna powierzchnia powierzchniowa; HL, okres półtrwania.
Tabela uzupełniająca 1. Sekwencje starterów wykorzystane do ilościowej PCR w czasie rzeczywistym w kłębuszkowych komórkach mezangialnych szczura HBZY-1. Wszystkie sekwencje przedstawiono w kierunku 5′ do 3′.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1. Pełne obrazy skanowania dla Western blot.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym badaniu zintegrowano farmakologię sieciową, dokowanie molekularne zweryfikowane za pomocą ligandu referencyjnego oraz eksperymenty na poziomie związków, aby zbadać hipotezę związaną z PTGS2, sformułowaną na podstawie kandydackich składników C. sinensis. Siedem składników spełniło zdefiniowane kryteria przesiewowe TCMSP, a 23 cele pokrywało się ze zbiorem genów związanych z kłębuszkowym zapaleniem nerek. Analiza oddziaływań białkowych pozwoliła wyłonić dziewięć kluczowych celów, spośród których PTGS2 wybrano do dokowania i oceny eksperymentalnej. Ponowne dokowanie celekoksybu odtworzyło jego pozę krystalograficzną, natomiast β-sitosterol i octan linoleylu wykazały umiarkowaną przewidywaną kompatybilność z regionem dokowania COX-2. W komórkach kłębuszkowych HBZY-1 β-sitosterol zredukował indukowaną LPS ekspresję genów zapalnych, ilość COX-2 oraz produkcję PGE2, a także zmniejszył indukowaną TGF-β1 ekspresję markerów profibrotycznych. Wyniki te łączą priorytetyzację obliczeniową z fenotypami komórkowymi, jednak wspierają one kandydacką relację regulacyjną, a nie ściśle zdefiniowany mechanizm terapeutyczny.
Wyniki wzbogacenia przypisały wspólne cele do procesów biologicznych związanych ze stymulacją zapalną, stresem komórkowym, regulacją lipidów, funkcją naczyniową i przebudową tkanek. Wzbogacenie odpowiedzi na lipopolisacharyd i produkty bakteryjne było zgodne z modelem zapalnym wykorzystanym do walidacji eksperymentalnej. Szlaki związane z TNF, IL-17, AGE-RAGE oraz HIF-1 dostarczyły również prawdopodobnego kontekstu funkcjonalnego dla zapalenia kłębuszków i nieadaptacyjnej przebudowy6,17,18,19. Niemniej jednak wzbogacenie szlaków odzwierciedla statystyczną koncentrację adnotowanych genów i nie potwierdza aktywacji ani inhibicji danego szlaku przez β-sitosterol12. Dominująca adnotacja dotycząca lipidów i miażdżycy powinna zatem być interpretowana jako wspólna biologia zapalna, apoptotyczna i naczyniowa, a nie jako dowód na to, że miażdżyca stanowi główny mechanizm chorobowy w CGN. Podobnie, dane dotyczące biodostępności doustnej, podobieństwa do leków (drug likeness) oraz rekordy celów w bazie TCMSP zostały wykorzystane do priorytetyzacji kandydatów.
PTGS2 wyłonił się jako istotny węzeł, ponieważ występował w punkcie przecięcia związków i choroby, wykazywał wysoką centralność sieciową oraz był powiązany eksperymentalnie ze zmianami w transkrypcji Ptgs2, zawartością białka COX-2 oraz produkcją PGE2. Ta zgodność na poziomach obliczeniowym i komórkowym wzmacnia uzasadnienie dla badania odpowiedzi związanej z PTGS2. Nie oznacza to jednak, że PTGS2 jest jednolicie patogenny w nerkach. Prostanoidy pochodne COX uczestniczą w przepływie krwi nerkowej, gospodarce solnej i homeostazie adaptacyjnej oraz mogą wywierać działanie ochronne lub szkodliwe w zależności od typu komórek, rozkładu receptorów, fazy choroby i lokalnego stężenia20,21. W eksperymentalnym zapaleniu nerek celekoksyb zmniejszył produkcję związaną z PGE2, podczas gdy sama PGE2 wpływała na ekspresję receptorów prostaglandyn w komórkach kłębuszkowych22. Obserwacje te ilustrują, że biologiczne skutki działania COX-2 i PGE2 wykraczają poza prostą, liniową ścieżkę prozapalną20,23. Porównanie z celekoksybem pomaga odróżnić ekspresję celu od funkcji enzymu. Celekoksyb spowodował najbardziej wyraźną redukcję PGE2, co jest zgodne z jego rolą jako funkcjonalnego inhibitora COX-2, ale wywarł bardziej ograniczony wpływ na ekspresję Ptgs2 i zawartość białka COX-222. β-Sitosterol wykazał szerszy wzorzec, który obejmował obniżone poziomy Tnf, Il6, Ptgs2, COX-2 i PGE2. Różnica ta nie wskazuje na wyższą potencjalną zdolność hamowania COX-2. Sugeruje ona raczej, że β-sitosterol może zmieniać stan zapalny, w którym indukowany jest PTGS2, podczas gdy celekoksyb przede wszystkim ogranicza syntezę prostaglandyn poprzez hamowanie aktywności katalitycznej. Aby ustalić, czy β-sitosterol również oddziałuje funkcjonalnie na COX-2, wymagane byłyby bezpośrednie testy enzymatyczne, badania zaangażowania celu oraz perturbacje PTGS2.
Wyniki analizy sieci sugerują również, że PTGS2 nie powinno być interpretowane jako izolowany węzeł molekularny. MAPK1, JUN oraz PPARG zostały wspólnie uznane za priorytetowe w sieci oddziaływań białkowych, co sytuuje syntezę prostanoidów w szerszym kontekście sygnalizacyjnym i transkrypcyjnym. W komórkach mezangialnych nerek sfingozyna 1-fosforan zwiększyła ekspresję COX-2 i powstawanie PGE2 poprzez sygnalizację p42/p44 MAPK zależną od receptora S1P 2, co stanowi bezpośredni dowód na to, że aktywność MAPK może znajdować się powyżej odpowiedzi COX-2/PGE2 w tym typie komórek24. Ponieważ JUN jest głównym składnikiem kompleksu czynnika transkrypcyjnego AP-1, AP-1 może stanowić jeden z interfejsów między aktywacją MAPK a transkrypcją PTGS2. Zgodnie z tą możliwością, 15-deoksy-Δ12,14-prostaglandyna J2 hamowała indukowaną przez IL-1β ekspresję COX-2 wraz z aktywnością AP-1 w hodowlanych komórkach mezangialnych25. W pozanerkowych modelach komórkowych β-sitosterol redukował aktywację ERK i p38, sygnalizację NF-κB, ekspresję COX-2 oraz produkcję cytokin zapalnych po ekspozycji na LPS14,15. Obserwacje te dostarczają prawdopodobnego kontekstu dla skoordynowanych redukcji Tnf, Il6, Ptgs2, COX-2 i PGE2 zaobserwowanych w niniejszym badaniu. Jednakże przytoczone badania nad β-sitosterolem przeprowadzono na komórkach mikroglejalnych lub śródbłonkowych, a nie na komórkach mezangialnych nerek, a fosforylacja MAPK1 i aktywność JUN nie były tutaj mierzone. Zatem obecne wyniki nie ustanawiają mechanizmu regulacji PTGS2 przez β-sitosterol zależnego od MAPK1 lub JUN. PPARG może przecinać się z siecią zorientowaną wokół PTGS2 poprzez wrażliwą na lipidy regulację transkrypcyjną i modulację profibrotycznego fenotypu komórek mezangialnych, a nie jako prosty liniowy efektor downstream PTGS2. W kłębkowych komórkach mezangialnych naturalne i syntetyczne ligandy PPARγ hamowały indukowaną przez TGF-β1 ekspresję fibronektyny, podczas gdy oddzielne prace wykazały, że agoniści PPARγ redukowali indukowaną przez TGF-β aktywację komórek mezangialnych, ekspresję α-SMA i akumulację kolagenu IV poprzez osłabienie sygnalizacji PKA i CREB26,27. Nowsze prace na myszach z cukrzycą i kłębkowych komórkach mezangialnych stymulowanych wysokim stężeniem glukozy umieściły NF-κB/COX-2 oraz PPARγ/UCP2 w ramach równoległych osi regulacyjnych związanych z zapaleniem i włóknieniem nerek, co wspiera potencjalną konwergencję funkcjonalną bez wykazania bezpośredniego sprzężenia PTGS2-PPARG28. Wyniki te dostarczają biologicznie prawdopodobnego kontekstu dla redukcji Col1a1, Acta2 i α-SMA zaobserwowanych w obecnym modelu TGF-β1. Jednak ekspresja PPARG, aktywność transkrypcyjna i angażowanie ligandów nie zostały ocenione. Zatem obecne dane nie mogą przypisać zaobserwowanej odpowiedzi profibrotycznej aktywacji PPARG ani zdefiniować sekwencyjnej ścieżki sygnalizacyjnej MAPK1-PTGS2-PPARG. Co ważne, MAPK1 i PPARG zostały uznane za priorytetowe na poziomie zintegrowanej sieci związek-choroba i nie powinny być interpretowane jako bezpośrednie cele β-sitosterolu na podstawie obecnej analizy.
Analizę dokowania należy interpretować w tych samych granicach dowodowych. Wartość RMSD dla redokowania wynosząca 0,876 Å wskazała, że wybrany protokół dokowania mógł odtworzyć znaną orientację celekoksybu w strukturze 3LN1. Znacznie mniej korzystne przewidywane powinowactwa β-sitosterolu i octanu linoleylu w porównaniu z celekoksybem potwierdziły dopasowanie przestrzenne w obrębie zdefiniowanego regionu, lecz nie wskazały na równoważną siłę wiązania lub działanie farmakologiczne29,30. Różnica 0,3 kcal/mol między octanem linoleylu a β-sitosterolem jest zbyt mała, aby na jej podstawie uzasadnić ranking biologiczny w izolacji. β-Sitosterol wybrano do dalszych testów, ponieważ jego powiązanie sieciowe było wspierane przez szerszą literaturę eksperymentalną dotyczącą stanu zapalnego i włóknienia14,15,16. Wcześniejsze badania zgłaszały redukcję TNF-α, IL-6 oraz COX-2 w mikrogleju i komórkach śródbłonka eksponowanych na LPS, wraz ze zmianami w sygnalizacji MAPK i NF-κB14,15. Kwas arachidonowy wymaga innej interpretacji, ponieważ jest on endogennym substratem COX21. Jego obecność w sieci pochodzącej z TCMSP nie wskazuje na przeciwzapalne działanie hamujące i ilustruje, że relacje między związkami a celami oparte na bazach danych nie definiują kierunkowości. Redukcje markerów zapalnych zależne od stężenia, obserwowane w komórkach HBZY-1, są zgodne z tymi wcześniejszymi znaleziskami komórkowymi, rozszerzając jednocześnie dowody na kontekst kłębkowej komórek mezangialnych14,15. Model TGF-β1 odnosił się do innego aspektu procesu chorobowego31. β-Sitosterol zredukował transkrypcję Col1a1 i Acta2 oraz zmniejszył zawartość α-SMA po stymulacji TGF-β1. Wcześniejsze prace w ludzkich komórkach nabłonkowych pęcherzyków płucnych analogicznie wykazały, że β-sitosterol redukuje indukowaną przez TGF-β1 ekspresję kolagenu, fibronektyny i α-SMA, choć badanie to dotyczyło innej tkanki i procesu komórkowego16. Niniejsze wyniki wspierają zatem aktywność przeciwko fenotypowi profibrotycznemu w komórkach mezangialnych, ale nie ustanawiają hamowania konkretnego receptora TGF-β lub mechanizmu zależnego od SMAD31.
Zakres interpretacji ograniczają kilka czynników. Zbiór genów związanych z chorobą został wygenerowany przy użyciu szerokiego terminu kłębuszkowe zapalenie nerek i nie jest specyficzny dla jednego klinicznego lub histologicznego podtypu CGN. Analiza obliczeniowa opierała się na adnotacjach ludzkich, dokowanie wykorzystywało strukturę mysiej COX-2, a doświadczenia przeprowadzono na szczurzych komórkach HBZY-1. Relacje ortologiczne wspierają porównania, jednak nadal możliwe są różnice gatunkowe w regulacji i rozpoznawaniu ligandów. Pojedyncza unieśmielona linia komórek kłębuszkowych nie może reprezentować oddziaływań między komórkami kłębuszkowymi, podocytami, komórkami śródbłonka, naciekającymi komórkami odpornościowymi a przedziałem cewkowo-śródmiąższowym. W badaniu nie oceniano również bezpośredniego wiązania, aktywności enzymatycznej COX-2, zależności od PTGS2, nie oceniano wpływu na pierwotne ludzkie komórki nerkowe, skuteczności in vivo, farmakokinetyki ani ekspozycji nerkowej. Wreszcie, przetestowanie określonego preparatu β-sitosterolu rozwiązuje wcześniejszą niespójność między przewidywanymi składnikami a niecharakterystycznym ekstraktem, ale nie dowodzi, że β-sitosterol odpowiada za działanie całej rośliny C. sinensis ani że pozostałe składniki są nieaktywne.
Wzięte razem, wyniki analizy sieciowej, dokowania oraz badania na komórkach wskazują na β-sitosterol jako reprezentatywnego kandydata związanego z ograniczoną aktywacją zapalną i profibrotyczną w komórkach HBZY-1. Wyniki są zgodne z modulacją odpowiedzi związanej z PTGS2/COX-2/PGE2, jednak nie potwierdzają bezpośredniego wiązania z COX-2, przyczynowości zależnej od PTGS2 ani skuteczności terapeutycznej w przypadku CGN. Wymagane są dalsze badania dotyczące oddziaływania z celem, perturbacje genetyczne, badania na komórkach pierwotnych oraz badania in vivo (Rysunek 7).
Oświadczenia
Autorzy deklarują brak konfliktów interesów. Narzędzia oparte na sztucznej inteligencji (ChatGPT, OpenAI) zostały wykorzystane w celu pomocy w redakcji językowej oraz wstępnego projektowania schematów. Generatywna sztuczna inteligencja została użyta do przygotowania wstępnych projektów graficznych do Ryciny 1A i 7, które zostały następnie zweryfikowane i poprawione przez autorów w celu zapewnienia spójności z opisanymi metodami i wynikami. Wszystkie produkty opracowane przy wsparciu AI zostały krytycznie ocenione i zatwierdzone przez autorów. Autorzy zweryfikowali ostateczną treść rycin i wzięli pełną odpowiedzialność za rzetelność oraz dokładność manuskryptu.
Podziękowania
Niniejsze badanie było wspierane przez Integrated Traditional Chinese and Western Medicine Nephropathy Characteristic Specialty (ZYTSZK2-3) oraz Study on TCM Intervention Strategy of Chronic Kidney Disease from the Perspective of Chronic Disease Management (202240169).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Etanol absolutny | Sigma-Aldrich/Merck | E7023 | Etanol klasy biologii molekularnej, 200 proof, niedenaturowany; rozpuszczalnik dla roztworu zapasowego β-sitosterolu. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Symulacja dokowania molekularnego |
| Komora z laminarem | Thermo Fisher Scientific | 1300 Series A2 | Sterylne operacje na kulturach komórkowych |
| Celekoksyb | MedChemExpress | HY-14398 | Selektywny inhibitor COX-2 stosowany jako kontrola pozytywna; roztwór zapasowy 10 mM w DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | Kolorymetryczny test WST-8 do oceny żywotności komórek; absorbancja mierzona przy 450 nm. |
| System obrazowania chemiluminescencyjnego | Bio-Rad Laboratories | ChemiDoc MP | Akwizycja obrazów Western blot |
| Pakiet R clusterProfiler | Bioconductor | Version 4.10.0 | Analiza wzbogacenia GO i KEGG |
| Inkubator do kultur komórkowych CO2 | Thermo Fisher Scientific | Forma Series II 3111 | Inkubacja kultur komórkowych w 37 °C i 5% CO2 |
| Królicze przeciwciało monoklonalne COX-2 (D5H5) | Cell Signaling Technology | 12282 | Zwalidowane do Western blot dla COX-2 ludzkiej, mysiej i szczurej; stosowane w rozcieńczeniu 1:1 000. |
| Wtyczka CytoNCA | Cytoscape App Store | Version 2.1.6 | Topologiczna analiza celów typu hub |
| Oprogramowanie Cytoscape | Cytoscape Consortium | Version 3.8.0 | Wizualizacja i analiza sieci |
| Dimetylosulfotlenek | Sigma-Aldrich/Merck | D2650 | BioReagent filtrowany sterylnie, ≥99,7%; rozpuszczalnik dla roztworu zapasowego celekoksybu. |
| Baza danych DisGeNET | Integrative Biomedical Informatics Group | Not applicable | Wyszukiwanie genów związanych z kłębuszkowym zapaleniem nerek |
| Podłoże DMEM (Dulbecco's Modified Eagle Medium) | Gibco/Thermo Fisher Scientific | C11995500BT | Podłoże podstawowe do hodowli komórek HBZY-1 |
| Substrat do wzmocnionej chemiluminescencji | Beyotime Biotechnology | P0018S | Wizualizacja prążków w Western blot |
| Płodowa surowica bydlęca | Gibco/Thermo Fisher Scientific | 10099-141C | Surowica jako dodatek do kultur komórkowych |
| Królicze przeciwciało monoklonalne GAPDH (D16H11) | Cell Signaling Technology | 5174 | Kontrola załadunku w Western blot; reaktywne z GAPDH ludzkim, mysim i szczurzym; stosowane w rozcieńczeniu 1:5 000 po optymalizacji wewnętrznej. |
| Baza danych GeneCards | Weizmann Institute of Science | NA | Wyszukiwanie genów związanych z kłębuszkowym zapaleniem nerek |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | Analiza statystyczna danych eksperymentalnych in vitro |
| Kozie przeciwciało anty-rabbit IgG sprzężone z HRP | Proteintech Group | SA00001-2 | Przeciwciało wtórne dla króliczych przeciwciał pierwotnych |
| Oprogramowanie ImageJ | National Institutes of Health | Version 1.54 | Analiza densytometryczna Western blot |
| Odwrócony mikroskop fazowo-kontrastowy | Olympus | CKX53 | Obserwacja morfologii komórek |
| Pakiet R org.Hs.eg.db | Bioconductor | Version 3.18.0 | Adnotacje genów ludzkich do analizy wzbogacenia |
| Roztwór penicyliny i streptomycyny | Gibco/Thermo Fisher Scientific | 15140122 | Dodatek antybiotykowy do kultur komórkowych |
| Zestaw do oznaczania parametrów PGE2 | R&D Systems, a Bio-Techne brand | KGE004B | Wielogatunkowy konkurencyjny test ELISA do nadnadpływów z kultur komórkowych; zakres pomiarowy 39–2 500 pg/mL; detekcja kolorymetryczna przy 450 nm. |
| Baza danych PharmGKB | Pharmacogenomics Knowledgebase | NA | Wyszukiwanie celów związanych z chorobą |
| Baza danych PubChem | National Center for Biotechnology Information | NA | Wyszukiwanie struktur ligandów |
| Membrana PVDF | Millipore/Merck | IPVH00010 | Membrana do transferu białek w Western blot |
| System grafiki molekularnej PyMOL | Schrödinger, LLC | Version 2.6.2 | Wizualizacja poz dokowania |
| Oprogramowanie R | R Foundation for Statistical Computing | Version 4.3.2 | Analiza przecięcia celów i analiza wzbogacenia |
| Linia komórek mezanialnych kłębuszków szczura (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | In vitro model walidacyjny komórek mezanialnych |
| RCSB Protein Data Bank | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | Wyszukiwanie struktury krystalicznej PTGS2/COX2 |
| Rekombinowane ludzkie białko TGF-β1 | PeproTech, a Thermo Fisher Scientific brand | 100-21-10UG | Rekombinowane ludzkie TGF-β1 pochodzące z HEK293; stymulacja profibrotyczna w stężeniu 10 ng/mL. |
| System elektroforezy SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Rozdział białek metodą SDS-PAGE |
| Baza danych STRING | ELIXIR/STRING Consortium | Version 12.0 | Konstrukcja sieci oddziaływań białko-białko |
| Baza danych TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | Przesiewanie związków kandydackich z Cordyceps sinensis |
| Therapeutic Target Database | Innovative Drug Research and Bioinformatics Group | NA | Wyszukiwanie celów terapeutycznych |
| Przeciwciało pierwotne α-SMA | Proteintech Group | 14395-1-AP | Detekcja ekspresji białka α-SMA |
| β-Sitosterol (czystość >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; określony związek stosowany do traktowania komórek; roztwór zapasowy 10 mM w etanolu absolutnym. |
Bibliografia
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).