Niniejsze badanie ocenia działanie ochronne kapsułek Yangjing w przypadku dysfunkcji spermatogenezy indukowanej cyklofosfamidą u myszy oraz bada udział szlaku sygnałowego lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł badawczy
Kapsułka Yangjing łagodzi dysfunkcję spermatogenezy u myszy poprzez hamowanie szlaku QKI-5/p38 MAPK poprzez upregulację lncRNA NONMMUT031883.2
W tym artykule
Podsumowanie
Streszczenie
Dysfunkcja spermatogenezy jest istotną przyczyną męskiej niepłodności, a cyklofosfamid (CP) może upośledzać spermatogenezę poprzez indukcję nieprawidłowej apoptozy spermatogonii. Kapsułki Yangjing (YC) są stosowane w celu poprawy funkcji rozrodczych, jednak ich podstawowy mechanizm molekularny pozostaje niejasny. W niniejszym badaniu zbadano efekty ochronne YC w modelu dysfunkcji spermatogenezy indukowanej CP u myszy oraz w komórkach spermatogonialnych GC-1. Oceńiano liczbę i ruchliwość plemników, płodność samców, poziom hormonów płciowych w surowicy oraz zmiany histopatologiczne w jądrach i najazdach. W komórkach GC-1 oceniano żywotność komórek, uwalnianie dehydrogenazy mleczanowej, apoptozę oraz białka związane z apoptozą. Do analizy lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) oraz szlaku sygnałowego p38 kinazy aktywowanej mitogenem (MAPK) wykorzystano ilościową reakcję polimerazy łańcuchowej z odwrotną transkrypcją, testy RNA pull-down, immunofluorescencję oraz Western blotting. YC w sposób zależny od dawki poprawiły jakość plemników, poziomy hormonów płciowych w surowicy, morfologię narządów rozrodczych, histopatologię jąder oraz płodność u myszy traktowanych CP. W komórkach GC-1 YC zwiększyły żywotność komórek oraz zmniejszyły uszkodzenia komórkowe i apoptozę. LncRNA NONMMUT031883.2 wchodziły w fizyczną interakcję z QKI-5, a zastosowanie YC zwiększyło ekspresję lncRNA NONMMUT031883.2, jednocześnie redukując ekspresję QKI-5 i fosforylację p38. Leczenie YC hamowało apoptozę indukowaną przez wyciszenie lncRNA NONMMUT031883.2 w komórkach GC-1, podczas gdy nadekspresja QKI-5 zmniejszyła antyapoptotyczne działanie YC. Wyniki te sugerują, że YC łagodzi indukowaną przez CP dysfunkcję spermatogenezy, a jej efekty ochronne są mediowane przez regulację szlaku lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Wprowadzenie
Dysfunkcja spermatogenezy odnosi się do upośledzenia funkcji rozrodczych spowodowanego nieprawidłowościami w produkcji, dojrzewaniu lub funkcji plemników w męskim układzie rozrodczym. Charakteryzuje się ona obniżoną liczbą i ruchliwością plemników oraz zwiększonym odsetkiem plemników zdeformowanych1,2. Patogeneza dysfunkcji spermatogenezy jest złożona i wiąże się z czynnikami genetycznymi, zaburzeniami autoimmunologicznymi, toksynami środowiskowymi, uszkodzeniami wywołanymi chemioterapią oraz zmianami chorobowymi w narządach rozrodczych3-5. Leki chemioterapeutyczne, takie jak cyklofosfamid (CP), mogą bezpośrednio uszkadzać kanaliki nasienne jąder i indukować apoptozę spermatogoniów, przyczyniając się tym samym do wystąpienia męskiej dysfunkcji spermatogenezy6,7. Jako interwencje kliniczne stosuje się obecnie terapię hormonalną, suplementację przeciwutleniaczami oraz techniki wspomaganego rozrodu. Podejścia te charakteryzują się jednak niespójną skutecznością i znacznymi działaniami niepożądanymi8,9,10. Dlatego zidentyfikowanie bezpiecznych i skutecznych interwencji oraz wyjaśnienie ich celów molekularnych ma istotne znaczenie kliniczne dla poprawy wyników płodności u pacjentów z dysfunkcją spermatogenezy.
Chińskie zioła lecznicze wykazują potencjał w ochronie funkcji rozrodczych mężczyzn i leczeniu zaburzeń spermatogenezy ze względu na swoje właściwości wielocelowe i stosunkowo niską toksyczność11,12. Kapsułka Yangjing (YC) jest tradycyjnym chińskim lekiem patentowym składającym się z Rehmannia glutinosa, Epimedium, łożyska, Polygonatum sibiricum, Angelica sinensis oraz innych chińskich ziół leczniczych. Jest ona stosowana w celu wzmocnienia nerek i esencji, odżywienia krwi i szpiku oraz regulacji funkcji rozrodczych13. Wcześniejsze badania wykazały, że YC może regulować poziom hormonów płciowych u zwierząt męskich, poprawiać jakość plemników, naprawiać uszkodzenia tkanki jawotwarowej oraz chronić przed urazami rozrodczymi wywołanymi przez czynniki chemiczne14,15. Komórki spermatogonialne stanowią podstawę spermatogenezy, a nieprawidłowa apoptoza spermatogonii jest kluczowym zdarzeniem w rozwoju zaburzeń spermatogenezy16. Doniesiono również, że YC poprawia żywotność spermatogonii, zwiększa odsetek komórek w fazie S oraz hamuje apoptozę17. Jednakże jej efekty ochronne oraz specyficzne mechanizmy molekularne w przypadku dysfunkcji spermatogenezy indukowanej przez CP pozostają niewyjaśnione.
Długie niekodujące RNA (lncRNA) to cząsteczki RNA o długości przekraczającej 200 nukleotydów, które nie posiadają zdolności do kodowania białek18. LncRNA mogą regulować ekspresję genów poprzez mechanizmy obejmujące wyciszanie chromosomalne, modyfikację chromatyny, imprinting genomiczny oraz aktywację transkrypcyjną19,20. Białko wiążące RNA Quaking-5 (QKI-5) uczestniczy w procesach fizjologicznych i patologicznych, w tym w proliferacji i apoptozie komórek, poprzez regulację alternatywnego splicingu genów downstream21. Szlak kinazy p38 mitogenowo aktywowanej (MAPK) jest zaangażowany w regulację apoptozy i odgrywa również istotną rolę w męskiej płodności oraz rozwoju jąder22,23. Wcześniejsze badanie wykazało, że nadekspresja QKI-5 aktywuje szlak p38 MAPK w komórkach raka wątrobowokomórkowego24. Ponadto wykazano, że lncRNA NONMMUT074098.2 wiąże QKI-5 w spermatogoniach, podczas gdy wyciszenie QKI-5 hamowało szlak p38 MAPK i redukowało apoptozę spermatogonialną25. W niniejszym badaniu wykorzystano indukowany przez CP model myszy z dysfunkcją spermatogenezy, aby sprawdzić, czy YC reguluje ekspresję lncRNA NONMMUT031883.2 oraz oś sygnałową QKI-5/p38 MAPK, redukując tym samym nieprawidłową apoptozę spermatogonialną i łagodząc indukowaną przez CP dysfunkcję spermatogenezy (Rysunek 1). Celem było wyjaśnienie mechanizmu molekularnego leżącego u podstaw ochronnego działania YC na spermatogenezę oraz poszerzenie wiedzy o jego roli farmakologicznej w ochronie funkcji rozrodczych mężczyzn.
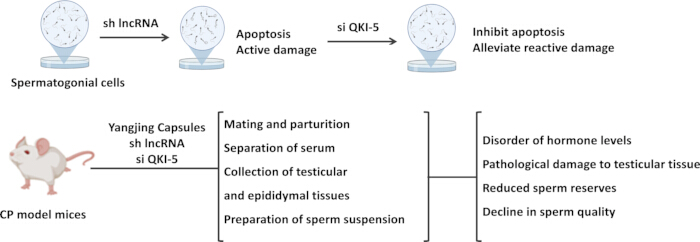
Rysunek 1: Schemat projektu eksperymentalnego. Górny panel podsumowuje eksperymenty in vitro w komórkach spermatogonalnych GC-1. Wyciszenie lncRNA NONMMUT031883.2 zastosowano w celu wywołania apoptozy i uszkodzeń komórkowych, po czym przeprowadzono wyciszenie QKI-5, aby ocenić jego wpływ na apoptozę i uszkodzenie komórek. Dolny panel podsumowuje eksperymenty in vivo w mysich modelach dysfunkcji spermatogenezy wywołanej cyklofosfamidem (CP). Myszy otrzymały leczenie kapsułkami Yangjing i/lub interwencję lncRNA NONMMUT031883.2 lub QKI-5. Następnie oceniono płodność, poziomy hormonów w surowicy, tkanki jąder i najduszek, zawiesinę plemników, rezerwy plemników, jakość plemników oraz histopatologiczne uszkodzenia jąder. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z wytycznymi ARRIVE oraz przewodnikiem National Institutes of Health Guide for the Care and Use of Laboratory Animals. Wszystkie protokoły eksperymentalne zostały przeanalizowane i zatwierdzone przez Komisję Etyki ds. Zwierząt Uniwersytetu Południowo-Wschodniego (numer zatwierdzenia 20230216022).
1. Przygotowanie surowicy zawierającej YC
Otwarto dwie kapsułki Yangjing (YC; 0,5 g/kapsułka) i odważono 0,8 g zawartości kapsułek. Dodano sól fizjologiczną do uzyskania końcowej objętości 10 mL, a mieszaninę dokładnie wymieszano za pomocą wortexa w celu przygotowania zawiesiny o stężeniu 80 mg/mL. Samce myszy BALB/c wolne od specyficznych patogenów (SPF) o masie 22–25 g i wieku 8 tygodni utrzymywano w temperaturze 22 °C i wilgotności 55%–60% przy 12-godzinnym cyklu światła/ciemności, z dostępem do pokarmu i wody ad libitum. Po 1 tygodniu aklimatyzacji myszy otrzymywały YC poprzez zgłębnik żołądkowy w dawce 800 mg/kg masy ciała w objętości 10 mL/kg raz dziennie przez 5 kolejnych dni. Dwie godziny po ostatnim podaniu myszy znieczulono intraperitonealnie 1% roztworem pentobarbalsodu i pobrano próbki krwi w celu przygotowania surowicy zawierającej YC. Surowicę inaktywowano w temperaturze 56 °C przez 30 min, przefiltrowano przez membranę 0,22 µm i przechowywano w temperaturze −80 °C do czasu użycia.
2. Hodowla komórek i transfekcja
Mysie komórki spermatogonialne GC-1 hodowano w pożywce DMEM zawierającej 1% penicyliny-streptomycyny i 10% płodowej surowicy bydlęcej. Wszystkie hodowle utrzymywano w temperaturze 37 °C w atmosferze zawierającej 5% CO₂ (v/v).
Zsyntetyzowano i skonstruowano specyficzne dla lncRNA krótkie zapinki RNA (sh-lncRNA), plazmid do nadekspresji QKI-5 (OE-QKI-5), małe interferujące RNA przeciwko QKI-5 (si-QKI-5) oraz odpowiadające im kontrole negatywne (sh-NC, OE-NC i si-NC). Komórki GC-1 poddano transfekcji sh-lncRNA lub sh-NC, si-QKI-5 lub si-NC, bądź OE-QKI-5 lub OE-NC zgodnie z instrukcją dołączoną do odczynnika transfekcyjnego. Po 48 h inkubacji oceniono wydajność transfekcji poprzez pomiar ekspresji lncRNA NONMMUT031883.2 lub QKI-5.
W przypadku grupy sh-lncRNA + si-QKI-5 + etoposyd, komórki GC-1 poddano transfekcji sh-lncRNA oraz si-QKI-5, a następnie traktowano 100 µM etoposydu przez 12 h26. Do późniejszych testów żywotności komórek wykorzystano komórki GC-1 hodowane w pożywce uzupełnionej o 5%, 10% lub 20% surowicy zawierającej YC, które oznaczono odpowiednio jako grupy z niską dawką YC (L-YC), średnią dawką YC (M-YC) i wysoką dawką YC (H-YC). Stężenia surowicy zawierającej YC (5%, 10% i 20% YC) określono na podstawie wyników wstępnych eksperymentów z gradientem stężeń. W przypadku grup sh-lncRNA + H-YC + OE-NC oraz sh-lncRNA + H-YC + OE-QKI-5, komórki GC-1 poddano transfekcji sh-lncRNA wraz z OE-NC lub sh-lncRNA wraz z OE-QKI-5 przez 48 h, a następnie eksponowano na 20% surowicę zawierającą YC przez 24 h.
3. Analiza z użyciem zestawu Cell Counting Kit-8
Komórki GC-1 wysiano do płytek 96-dołkowych w zagęszczeniu 5 × 10³ komórek/dołek i hodowano przez 24 h. Po przytwierdzeniu komórek pierwotne medium zastąpiono 100 µL medium kompletnego uzupełnionego o surowicę zawierającą YC, a następnie komórki inkubowano przez 6, 12 lub 24 h. Po inkubacji do każdego dołka dodano 10 µL odczynnika Cell Counting Kit-8 i inkubowano komórki w temperaturze 37 °C w ciemności przez 2 h. Absorbancję przy 450 nm zmierzono za pomocą czytnika mikroplatek.
4. Analiza aktywności dehydrogenazy mleczanowej
Po 48 h od transfekcji sh-NC lub sh-lncRNA zebrano pożywkę hodowlaną komórek GC-1, a następnie w wyniku wirowania otrzymano nadsącz. Zgodnie z instrukcją zestawu do analizy dehydrogenazy mleczanowej, nadsącz delikatnie zmieszano z roboczym roztworem detekcyjnym i przeniesiono do płytki 96-dołkowej. Płytkę inkubowano w temperaturze 25 °C w ciemności przez 30 min. Absorbancję przy 490 nm zmierzono za pomocą czytnika mikro płytek, a następnie obliczono uwalnianie dehydrogenazy mleczanowej w celu oceny uszkodzeń komórek.
5. Barwienie kalceiną AM i jodkiem propidium
Po 48 h od transfekcji sh-NC lub sh-lncRNA oceniono przeżywalność komórek GC-1 za pomocą barwienia kalceiną AM i jodkiem propidium (PI). Komórki wysiano do płytek 12-dołkowych w zagęszczeniu 5 × 10⁴ komórek/dołek i hodowano do czasu osiągnięcia 60%–70% konfluencji. Komórki delikatnie przepłukano solą fizjologiczną w buforze fosforanowym, a następnie do każdego dołka dodano 500 µL roztworu barwiącego Calcein AM/PI. Komórki inkubowano w ciemności w temperaturze 37 °C przez 30 min, po czym poddano je obserwacji pod mikroskopem fluorescencyjnym. Liczbę żywych i martwych komórek określono przy użyciu oprogramowania do analizy obrazu, a następnie obliczono odsetek komórek przeżywalnych.
6. Cytometria przepływowa
Komórki GC-1 zebrano poprzez wirowanie i delikatnie przepłukano solą fizjologiczną buforowaną fosforanami. Osad komórkowy resuspenderowano w 500 µL buforu wiążącego przy gęstości 5 × 10⁵ komórek/mL. Następnie dodano po 5 µL Annexin V-APC oraz PI, a zawiesinę dokładnie wymieszano i inkubowano w temperaturze 25 °C w ciemności przez 10 min. Apoptozę analizowano za pomocą cytometrii przepływowej, stosując długości fal wzbudzenia/emisji 633/660 nm dla APC oraz 488/630 nm dla PI. Stopień apoptozy oceniono przy użyciu oprogramowania do analizy cytometrii przepływowej.
7. Analiza aktywności kaspazy-3
Po wskazanych zabiegach zebrano około 1 × 10⁶ komórek GC-1, opłukano je i zawieszono ponownie w soli fizjologicznej z buforem fosforanowym. Komórki zmieszano z 100 µL odczynnika II z zestawu do analizy aktywności kaspazy-3 i lizowano na lodzie przez 15 min. Po wirowaniu pobrano 50 µL supernatantu lizatu i zmieszano z 40 µL odczynnika I oraz 10 µL odczynnika III. Mieszaninę inkubowano w temperaturze 37 °C przez 2 h. Absorbancję przy 405 nm zmierzono za pomocą czytnika płytek mikroplate, a aktywność kaspazy-3 oceniono zgodnie z instrukcją dołączoną do zestawu.
8. Analiza RNA pull-down
Nici sens i antysens lncRNA NONMMUT031883.2 zostały zsyntetyzowane zgodnie z odpowiednią sekwencją i znakowane biotyną. Komórki poddano lizie w buforze do lizy komórek w immunoprecypitacji na lodzie przez 30 min, a następnie za pomocą wirówki zebrano supernatant zawierający białka. Magnetyczne kulki streptawidynowe przemyto trzykrotnie buforem do wiązania RNA i inkubowano w buforze do wiązania zawierającym 1% albuminy surowicy bydlęcej przez 30 min.
Wstępnie potraktowane koraliki połączono z sondami znakowanymi biotyną i inkubowano w temperaturze 25 °C przez 30 min. Niezwiązane sondy usunięto za pomocą separacji magnetycznej. Następnie dodano nadsącz z lizatu komórkowego, a mieszaninę inkubowano w temperaturze 4 °C przez 4 h w celu utworzenia kompleksów koralików magnetycznych-RNA-białka. Koraliki magnetyczne przemyto trzykrotnie buforem do mycia, aby usunąć niespecyficznie związane białka. Bufor do mycia usunięto za pomocą separacji magnetycznej, a następnie dodano 2× bufor do nakładania próbek SDS. Próbki podgrzewano w temperaturze 95 °C przez 10 min, a nadsącz zebrano za pomocą separacji magnetycznej do późniejszej analizy Western blot.
9. Konstrukcja modelu dysfunkcji spermatogenezy u myszy
Po 5 dniach aklimatyzacji, samce myszy BALB/c wolne od specyficznych patogenów o masie 22–25 g i wieku 8 tygodni otrzymały cyklofosfamid (CP) drogą dosytronialną w dawce 50 mg/kg raz dziennie przez 7 dni w celu utworzenia modelu dysfunkcji spermatogenezy14,27. Myszy z pomyślnie indukowanym modelem zostały losowo przydzielone za pomocą tablicy liczb losowych do grup: CP, 200 mg/kg YC, 400 mg/kg YC, 800 mg/kg YC, 800 mg/kg YC + sh-NC oraz 800 mg/kg YC + sh-lncRNA, po sześć myszy w każdej grupie.
Myszy w grupach traktowanych YC otrzymywały odpowiednią dawkę YC drogą zgłębnika raz dziennie przez 30 dni13. W przypadku grup 800 mg/kg YC + sh-NC oraz 800 mg/kg YC + sh-lncRNA, po pomyślnym utworzeniu modelu, myszy zanieczulono poprzez inhalację 2% izofluranu. Po potwierdzeniu braku odruchu cofania łapy oraz stabilności częstości oddechów, miejsce operacyjne ogolono i zdezynfekowano jodopowidionem. W warunkach aseptycznych wykonano cięcie w linii środkowej brzucha przez skórę i ścianę ciała przed narządami płciowymi. Jądro odsłonięto, ostrożnie manipulując poduszką tłuszczową najądrza, dbając o to, aby nie uszkodzić naczyń krwionośnych. Za pomocą mikromanipulatora zlokalizowano kanaliki nasienne i powoli wstrzyknięto 1 µL zawiesiny adenowirusowej (1 × 10¹⁰ TU/mL) przy użyciu igły do mikroiniekcji28. Igłę pozostawiono w miejscu wstrzyknięcia przez 5 min, a następnie powoli wycofano, po czym uzyskano hemostazę za pomocą sterylnego tamponu bawełnianego. Tę samą procedurę zastosowano następnie w obrębie przeciwległego jądra. Następnie zaszyto cięcie, a myszy pozostawiono do rekonwalescencji na podgrzewającej podkładce pooperacyjnie. Myszy kontrolne otrzymywały codziennie równą objętość roztworu soli fizjologicznej drogą zgłębnika oraz iniekcji.
10. Ocena płodności
Po zakończeniu podawania leku samce myszy z każdej grupy kopulowano swobodnie z samicami myszy BALB/c w stosunku 1:2 przez 7 dni. Codziennie monitorowano i odnotowywano obecność czopów pochwowych u samic. Po potwierdzeniu udanego zapłodnienia samce usunięto, a samice kwaterowano indywidualnie aż do naturalnego porodu. Do analizy włączono dziewięć ciężarnych samic na grupę. Odnotowano średnią liczebność lęgów w celu oceny płodności samców w każdej grupie.
Pod koniec okresu eksperymentalnego myszy poddano eutanazji poprzez podanie doszpikowe pentobarbitalu sodowego w dawce 100 mg/kg. Metoda eutanazji została zatwierdzona przez Komitet Etyki Zwierząt Uniwersytetu Południowo-Wschodniego (numer zatwierdzenia 20230216022). Jądra i najotoczki nasion zostały starannie oddzielone, sfotografowane i zważone. Indeksy jądra i najotoczki obliczono jako stosunek masy organu do masy ciała. Z każdej myszy pobrano jedną najotoczkę, pocięto ją na fragmenty, umieszczono w 1 mL uprzednio ogrzanego soli fizjologicznej w buforze fosforanowym (37 °C) i inkubowano przez 20 min, aby umożliwić wypłynięcie plemników29. Zawiesinę plemników delikatnie wymieszano, a następnie 10 µL zawiesiny nanieśli na podgrzaną płytkę do liczenia komórek krwi. Plemniki policzono ręcznie pod mikroskopem świetlnym przy powiększeniu 200×, a wyniki wyrakowano jako 106/L. Ponadto jako ruchliwość plemników obliczono procent plemników o ruchliwości progresywnej w stosunku do całkowitej liczby plemników13.
11. Oznaczenie poziomu hormonów płciowych
Krew pobrano z żyły ocznej myszy w każdej grupie i pozostawiono w temperaturze 25 °C na 30 min. Surowicę wyizolowano poprzez wirowanie przy 3,000 × g przez 10 min30. Poziomy testosteronu w surowicy, hormonu luteotropowego (LH) oraz hormonu folikulotropowego (FSH) zmierzono przy użyciu odpowiednich zestawów do testów immunoenzymatycznych (ELISA).
12. Analiza stabilności RNA
Komórki GC-1 wysiano do 96-dołkowych płytek hodowlanych, przetransfekowano za pomocą si-QKI-5 lub si-NC i hodowano przez 48 h. Następnie dodano aktynomycynę D w stężeniu 5 µg/mL i pobrano komórki w czasie 0, 3, 6 i 9 h. Wyizolowano całkowite RNA, a względny poziom ekspresji lncRNA NONMMUT031883.2 określono za pomocą ilościowej reakcji łańcuchowej polimerazy z odwrotną transkrypcją po przeprowadzeniu odwrotnej transkrypcji. Względny poziom RNA w każdym punkcie czasowym obliczono, przyjmując poziom ekspresji w czasie 0 h jako 100%.
13. Ilościowa reakcja polimerazy łańcuchowej z odwrotną transkrypcją
Komórki GC-1 oraz tkanki jąder myszy opłukano roztworem soli fizjologicznej buforowanej fosforanem, a następnie poddano lizie w celu izolacji całkowitego RNA. Komplementarne DNA wygenerowano poprzez odwrotną transkrypcję z użyciem odwrotnej transkryptazy AMV. Amplifikację metodą reakcji polimerazy łańcuchowej przeprowadzono przy użyciu systemu PCR w czasie rzeczywistym oraz zestawu do ilościowego PCR, wykorzystując komplementarne DNA jako matrycę amplifikacji. U6 posłużył jako wewnętrzna referencja dla lncRNA NONMMUT031883.2, natomiast GAPDH wykorzystano jako wewnętrzną referencję dla QKI-5. Względną ekspresję genu docelowego obliczono metodą 2−ΔΔCt25. RNA izolowano również osobno z frakcji cytoplazmatycznej i jądrowej, aby określić lokalizację subkomórkową lncRNA NONMMUT031883.2. Sekwencje starterów przedstawiono w Tabeli 1.
| Gen | Starter prawy (5' do 3') | Primer odwrotny (5' do 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| RNA U6 | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tabela 1: Sekwencje starterów użytych do ilościowej reakcji łańcuchowej polimerazy z odwrotną transkrypcją. Sekwencje starterów prawych i lewych podano w kierunku 5′–3′ dla lncRNA NONMMUT031883.2, QKI-5, U6 oraz GAPDH.
14. Barwienie hematoksyliną i eozyną
Tkanki jąder i nadjądrzy myszy zanurzono w 4% paraformaldehydzie i utrwalono w temperaturze 4 °C przez 24 h. Po wypłukaniu buforem fosforanowym (PBS) tkanki odwodniono w szeregu stężeń etanolu, zawleczono w parafinie i pocięto na skrawki o grubości 5 µm. Skrawki podgrzewano w temperaturze 60 °C przez 60 min i odparafinowano w ksylenie przez 30 min.
Po nawodnieniu w szeregu roztworów etanolu o malejących stężeniach, skrawki barwiono hematoksyliną przez 5 min, traktowano roztworem różnicującym z kwasu solnego i etanolu przez 10 s, płukano wodą z kranu w celu przejścia w kolor niebieski, a następnie barwiono 1% eozyną przez 2 min. Następnie skrawki odwodniono w 95% etanolu oraz etanolu absolutnym i klarowano w ksylenie przez 30 min. Po wysuszeniu na powietrzu skrawki osadzono w gumie neutralnej. Zmiany morfologiczne w jądrach i najogoniach obserwowano pod mikroskopem.
15. Immunofluorescencja
Parafinowe przekroje jąder myszy poddano odparafinowaniu i rehydratacji w szeregu stężeń etanolu, po czym przeprowadzono mikrofalową odzyskiwanie antygenu w buforze cytrynowym o pH 6.0. Po naturalnym schłodzeniu do temperatury pokojowej przekroje inkubowano z 0,3% Triton X-100 przez 10 min. Próbki blokowano 5% albuminą surowicy bydlęcej (BSA) w temperaturze 25 °C przez 60 min, płukano solą fizjologiczną w buforze fosforanowym (PBS) i inkubowano przez noc w temperaturze 4 °C z przeciwciałem pierwszorzędowym przeciwko Ki67. Następnego dnia zastosowano znakowane fluorochromem przeciwciało drugorzędowe klasy immunoglobulin G i inkubowano przekroje w temperaturze 37 °C w ciemności przez 60 min. Po wypłukaniu buforem PBS przekroje barwiono kontrastowo DAPI przez 10 min i analizowano pod mikroskopem fluorescencyjnym. Intensywność fluorescencji analizowano przy użyciu oprogramowania do analizy obrazu.
W celu przeprowadzenia barwienia immunofluorescencyjnego komórek GC-1, komórki wysiano do płytek 12-dołkowych w zagęszczeniu 1 × 10⁵ komórek/dołek i inkubowano przez 24 h. Komórki utrwalono w 4% paraformaldehydzie przez 30 min, przepuszczczono za pomocą 0,3% Triton X-100 przez 10 min, zablokowano 5% albuminą surowicy bydlęcej, a następnie inkubowano przez noc w temperaturze 4 °C z przeciwciałem pierwotnym przeciwko QKI-5. Pozostałą część procedury wykonano zgodnie z opisem dla skrawków tkanki jąder.
16. Barwienie TUNEL
Parafinowe skrawki tkanek jąder myszy poddano dewaksacji, nawodnieniu w serii rozcieńczeń etanolu, a następnie inkubowano z 0,1% Triton X-100 przez 5 min w celu zwiększenia przepuszczalności błon komórkowych. Na skrawki równomiernie nanesiono roztwór roboczy proteinazy K w stężeniu 20 µg/mL bez DNazy, po czym inkubowano je w temperaturze 37 °C przez 15 min. Dodano roztwór detekcyjny TUNEL i inkubowano skrawki w ciemności w temperaturze 37 °C przez 90 min. Po inkubacji z DAPI przez 10 min zastosowano medium montażowe zapobiegające zanikaniu fluorescencji, a następnie tkankę jąder obserwowano pod mikroskopem fluorescencyjnym.
Komórki GC-1 wysiano do płytek 12-dołkowych i utrwalono 4% paraformaldehydem przez 30 min. Po permeabilizacji 0,1% Triton X-100 przez 5 min, na komórki nałożono roztwór do detekcji TUNEL, a następnie inkubowano je w ciemności przez 60 min. Następnie komórki barwiono DAPI przez 10 min i analizowano pod mikroskopem fluorescencyjnym.
17. Western blotting
Tkanki jąder myszy oraz komórki GC-1 poddano lizie w buforze do lizy komórek stosowanym w immunoprecypitacji na lodzie przez 30 min, a następnie rozbito za pomocą sonikacji. Po wirowaniu zebrano supernatant zawierający białka, a stężenie białka określono przy użyciu zestawu do testu kwasu bicinchonininowego. Supernatant białkowy zmieszano z buforem do ładowania SDS i podgrzewano w wrzącej wodzie przez 10 min. Po rozdziale za pomocą elektroforezy żelowej białka przeniesiono na membrany z polifluorku winylidenu i blokowano 5% albuminą wołową przez 2 h31.
Membrany inkubowano przez noc w temperaturze 4 °C z przeciwciałami pierwszorzędowymi przeciwko rozszczepionej kaspazie-3 (1:500), Bcl-2 (1:1000), kaspazie-3 (1:2000), Bax (1:500), QKI-5 (1:1000), fosforylowanej p38 (1:1000) lub p38 (1:500). Następnego dnia membrany płukano buforem Tris-buffered saline z dodatkiem Tween 20, a następnie inkubowano z kozimi przeciwciałami anty-króliczymi przeciwko immunoglobulinie G w rozcieńczeniu 1:10000 przez 2 h w temperaturze 25 °C. Na powierzchnię membrany naniesiono roboczy roztwór do wzmocnionej chemiluminescencji, a prążki białkowe obrazowano za pomocą systemu do obrazowania żeli. Intensywność prążków analizowano przy użyciu oprogramowania do analizy obrazu, a względną ekspresję białek normalizowano względem GAPDH (1:3000).
Do zahamowania syntezy białek zastosowano cykloheksymidę w stężeniu 50 µg/mL. Aby określić okres półtrwania QKI-5, komórki zbierano w czasie 0, 3, 6 i 9 h, a następnie poziom białka QKI-5 oznaczono metodą Western blotting25.
18. Analiza statystyczna
Wszystkie dane zostały poddane analizie statystycznej oraz przedstawione na wykresach z wykorzystaniem oprogramowania do obliczeń statystycznych, tworzenia grafiki i analizy obrazów. Do oceny normalności rozkładu danych zastosowano test Shapiro-Wilka. Dane eksperymentalne przedstawiono jako średnia ± odchylenie standardowe. Do oceny różnic między grupami wykorzystano jednoczynnikową analizę wariancji. Do porównań post hoc przeprowadzano test LSD-t w przypadku jednorodności wariancji, natomiast test Dunnetta T3 w przypadku wariancji niejednorodnych. Wartość p < 0,05 uznano za statystycznie istotną.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wyciszenie lncRNA NONMMUT031883.2 indukuje apoptozę spermatogoniów
Komórki GC-1 poddano transfekcji sh-lncRNA w celu wyciszenia ekspresji lncRNA NONMMUT031883.2. W porównaniu z komórkami transfekowanymi sh-NC, poziom transkrypcyjny lncRNA NONMMUT031883.2 był wyraźnie obniżony po transfekcji sh-lncRNA, co potwierdziło skuteczne wyciszenie (Rycina 2A). Po wyciszeniu lncRNA NONMMUT031883.2 żywotność komórek GC-1 uległa znacznemu zmniejszeniu (Rycina 2...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Nabyta dysfunkcja spermatogenezy indukowana chemioterapią jest istotną przyczyną męskiej niepłodności32,33,34. Jednakże specyficzne mechanizmy molekularne nie są jeszcze w pełni poznane. Wyniki niniejszego badania wykazują, że kapsułki Yangjing (YC) w sposób zależny od dawki poprawiają nieprawidłowości w poziomach hormonów płciowych, uszkodzenia histopatologiczne jąder oraz upośledzenie płodności u samców myszy indukowane cyklof...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak finansowych i niefinansowych konfliktów interesów.
Podziękowania
Niniejsza praca była wspierana przez National Natural Science Foundation of China (grant nr 82374257), czwartą edycję Peak Academic Talent Training Program of Jiangsu Provincial Hospital of Chinese Medicine (grant nr k2026yrc74) oraz Projekty Badań Naukowych nad Tradycyjną Medycyną Chińską i Zintegrowaną Medycyną Chińską i Zachodnią w Prowincji Jiangsu (grant nr CYTF2026019).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Actinomycin D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Inhibitor transkrypcji stosowany w analizach stabilności RNA |
| AMV odwrotna transkryptaza | Takara, Tokyo, Japan | 2621 | Enzym do syntezy komplementarnego DNA |
| Zestaw detekcyjny Annexin V-APC/PI | BioLab Technology, Beijing, China | KFS191 | Zestaw do analizy apoptozy metodą cytometrii przepływowej |
| Medium montażowe Antifade | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Medium montażowe do zachowania fluorescencji |
| Przeciwciało pierwotne przeciw Bax | Affinity Biosciences, OH, USA | AF0120 | Przeciwciało pierwotne do detekcji Bax |
| Zestaw BCA | Macklin, Shanghai, China | B917925 | Zestaw do oznaczania stężenia białek |
| Przeciwciało pierwotne przeciw Bcl-2 | Affinity Biosciences, OH, USA | AF0769 | Przeciwciało pierwotne do detekcji Bcl-2 |
| Swojowa albumina serum (BSA) | BioLab Technology, Beijing, China | BTN131070 | Odczynnik blokujący |
| Zestaw detekcyjny Calcein/PI | Beyotime, Shanghai, China | C2015M | Zestaw do barwienia żywych i martwych komórek |
| Zestaw do oznaczania aktywności kaspazy-3 | BioLab Technology, Beijing, China | QN2866 | Zestaw do pomiaru aktywności kaspazy-3 |
| Przeciwciało pierwotne przeciw kaspazie-3 | Abcam, MA, USA | ab184787 | Przeciwciało pierwotne do detekcji kaspazy-3 |
| Odczynnik CCK-8 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Odczynnik do oceny żywotności komórek |
| Przeciwciało pierwotne przeciw ciętej kaspazie-3 | Abcam, MA, USA | ab32042 | Przeciwciało pierwotne do detekcji ciętej kaspazy-3 |
| Cykluheksymid | Macklin, Shanghai, China | H823111 | Inhibitor syntezy białek stosowany w analizach stabilności białek |
| Cyklofosfamid | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Stosowany do indukowania dysfunkcji spermatogenezy |
| Odczynnik DAPI | Beyotime, Shanghai, China | C1006 | Barwnik przeciwjądrowy |
| Pożywka DMEM | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | Pożywka do hodowli komórek GC-1 |
| Gotowy roztwór ECL | Solarbio, Beijing, China | SW2030 | Substrat chemiluminescencyjny do detekcji prążków białkowych |
| Etopozyd | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Agent indukujący apoptozę |
| Cytometr przepływowy | BD Biosciences, CA, USA | BD FACSCalibur | Urządzenie do analizy apoptozy |
| Oprogramowanie FlowJo | BD Biosciences, CA, USA | v10.8 | Oprogramowanie do analizy danych z cytometrii przepływowej |
| Mikroskop fluorescencyjny | Leica, Heidelberg, Germany | DM3000 | Urządzenie do obrazowania fluorescencyjnego |
| Fluorescencyjne przeciwciało wtórne IgG | Servicebio, Wuhan, China | GB22303 | Przeciwciało wtórne do detekcji immunofluorescencyjnej |
| Zestaw ELISA do hormonu folikulotropowego (FSH) | Huamei Biotech, Wuhan, China | CSB-E06871m | Zestaw do pomiaru stężenia hormonu folikulotropowego w surowicy |
| Przeciwciało pierwotne przeciw GAPDH | Affinity Biosciences, OH, USA | T0004 | Przeciwciało kontrolne do Western blottingu |
| Komórki GC-1 | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | Linia komórkowa spermatogonialna myszy |
| System obrazowania żeli | Jinpeng Analysis Instrument, Shanghai, China | JP-2880 | System obrazowania do wizualizacji żeli i blotów |
| System obrazowania żeli | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | System obrazowania chemiluminescencyjnego dla Western blotów |
| Kozie przeciwciało anty-królicze IgG | Servicebio, Wuhan, China | GB23303 | Przeciwciało wtórne do Western blottingu |
| Roztwór hematoksyliny | BioLab Technology, Beijing, China | YT165 | Barwnik jądrowy do analizy histologicznej |
| Roztwór różnicujący z etanolu i kwasu solnego | Beyotime, Shanghai, China | C0163S | Odczynnik różnicujący do barwienia hematoksyliną |
| Oprogramowanie ImageJ | National Institutes of Health, USA | 1.54h | Oprogramowanie do kwantyfikacji obrazów |
| Bufor do lizy komórek IP | Beyotime, Shanghai, China | P0013 | Bufor do lizy stosowany w immunoprecypitacji i ekstrakcji białek |
| Przeciwciało pierwotne przeciw Ki67 | Affinity Biosciences, OH, USA | AF0198 | Przeciwciało pierwotne do detekcji Ki67 |
| Zestaw do analizy cytotoksyczności LDH | Beyotime, Shanghai, China | C0016 | Zestaw do pomiaru uwalniania dehydrogenazy mleczanowej i uszkodzeń komórkowych |
| Mikroskop świetlny | Olympus, Tokyo, Japan | CKX53 | Stosowany do liczenia plemników i obserwacji morfologicznej |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Odczynnik do transfekcji |
| Czytnik mikropłytek | Molecular Devices, CA, USA | SpectraMax Mini | Urządzenie do pomiarów absorbancji |
| Zestaw ELISA do hormonu luteinizującego myszy | Huamei Biotech, Wuhan, China | CSB-E12770m | Zestaw do pomiaru stężenia hormonu luteinizującego w surowicy |
| Zestaw ELISA do testosteronu myszy | Huamei Biotech, Wuhan, China | CSB-E05101m | Zestaw do pomiaru stężenia testosteronu w surowicy |
| Guma neutralna | BioLab Technology, Beijing, China | QN1253 | Medium montażowe do przekrojów histologicznych |
| Przeciwciało pierwotne przeciw p38 | Affinity Biosciences, OH, USA | AF6456 | Przeciwciało pierwotne do detekcji całkowitego białka p38 |
| Paraformaldehyd | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Utrwalacz do komórek i tkanek |
| Zestaw PARIS | Invitrogen, Carlsbad, CA, USA | AM1921 | Zestaw do frakcjonowania RNA jądrowego i cytoplazmatycznego |
| System PCR | ABI, CA, USA | ABI PRISM 7300 | Urządzenie do PCR w czasie rzeczywistym |
| Przeciwciało pierwotne przeciw p-p38 | Affinity Biosciences, OH, USA | AF3455 | Przeciwciało pierwotne do detekcji fosforylowanego białka p38 |
| Roztwór proteinazy K | Beyotime, Shanghai, China | ST532 | Odczynnik do permeabilizacji tkanek przed barwieniem TUNEL |
| Membrany PVDF | Millipore, MA, USA | ISEQ00010 | Membrany do transferu białek w Western blottingu |
| Przeciwciało pierwotne przeciw QKI-5 | Abcam, MA, USA | ab126742 | Przeciwciało pierwotne do detekcji QKI-5 |
| Bufor wiążący RNA | Invitrogen, Carlsbad, CA, USA | 65040D | Bufor do reakcji wiązania RNA-białko |
| Bufor do ładowania SDS | Beyotime, Shanghai, China | P0286 | Bufor do ładowania próbek w SDS-PAGE |
| Magnetyczne kulki streptawidynowe | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Kulki magnetyczne do wychwytywania sond RNA znakowanych biotyną |
| Zestaw TB Green FAST qPCR | Takara, Tokyo, Japan | CN830S | Zestaw odczynników do ilościowego PCR |
| Triton X-100 | Macklin, Shanghai, China | T824275 | Odczynnik permeabilizujący |
| Odczynnik TRIzol | Invitrogen, Carlsbad, CA, USA | 15596018CN | Odczynnik do ekstrakcji całkowitego RNA |
| Roztwór detekcyjny TUNEL | Beyotime, Shanghai, China | C1086 | Odczynnik do detekcji fragmentacji DNA |
| Ksylen | Macklin, Shanghai, China | X821391 | Odczynnik do usuwania parafiny i przejrzystości tkanek |
Bibliografia
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.