Niniejsze badanie wykazuje, że miR-1298 jest ściśle powiązany z inwazją i migracją w CRC i może pełnić funkcję supresora nowotworu poprzez hamowanie progresji CRC, co podkreśla jego potencjał jako nowego celu terapeutycznego w leczeniu CRC.
Artykuł badawczy
Rola osi miR-1298/białko morfogenetyczne kości 7 w raku jelita grubego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Zapadalność na raka jelita grubego (CRC) wzrosła w ostatnich latach. Zbadaliśmy znaczenie kliniczne i mechanizmy molekularne miR-1298 w CRC. Do badania włączono łącznie 85 pacjentów z CRC. Wszystkie poziomy genów oceniano za pomocą RT-qPCR. W komórkach CRC poziomy miR-1298 i białka morfogenetycznego kości 7 (BMP7) regulowano za pomocą transfekcji komórkowej. Cel miR-1298 przewidziano za pomocą analizy bioinformatycznej i zidentyfikowano przy użyciu dwulucyferazowego systemu reporterowego. Funkcje komórek CRC oceniano z wykorzystaniem testu CCK-8, testu Transwell oraz cytometrii przepływowej. Korelację między miR-1298 a BMP7 w tkankach CRC analizowano przy użyciu korelacji Pearsona. Poziom miR-1298 był znacznie obniżony w CRC i wiązał się ze złośliwymi cechami kliniczno-patologicznymi. W komórkach CRC miR-1298 hamował proliferację, migrację i inwazję oraz zwiększał apoptozę. BMP7 był celem downstream miR-1298 i korelował z nim ujemnie. Nadekspresja BMP7 częściowo znosiła efekt hamujący miR-1298 na proliferację, migrację i inwazję w komórkach CRC, a także jego wpływ na promowanie apoptozy. miR-1298 był związany z inwazją i migracją i może hamować progresję CRC. BMP7 może być potencjalnym mediatorem funkcjonalnym miR-1298 w CRC.
Wprowadzenie
Rak jelita grubego (CRC) stanowi znaczne obciążenie dla zdrowia publicznego na całym świecie, będąc jedną z głównych przyczyn zgonów z powodu nowotworów w skali globalnej1. CRC wywodzi się z komórek nabłonkowych okrężnicy i odbytnicy, zazwyczaj rozwijając się stopniowo poprzez wieloetapowy proces znany jako progresja od gruczolaka do raka, która trwa kilka lat2. Konsekwencje CRC są dalekosiężne i wieloaspektowe. Oprócz ryzyka zgonu, CRC może mieć znaczący wpływ na codzienne życie pacjentów. Leczenie zazwyczaj wymaga rozległej operacji, która może prowadzić do powikłań, takich jak stała kolostomia, zaburzenia funkcji jelit lub dysfunkcje seksualne i moczowe3. Ponadto obciążenie finansowe związane z chemioterapią, terapią celowaną i długoterminowym monitorowaniem stanowi znaczne obciążenie zarówno dla pacjentów, jak i systemu opieki zdrowotnej. Dlatego badanie mechanizmów molekularnych leżących u podstaw CRC pozostaje kluczowym priorytetem w dziedzinie zdrowia publicznego.
W CRC dysregulacja specyficznych mikroRNA (miRNA) jest charakterystyczną cechą tumorigennezy i wpływa na kluczowe procesy4. Identyfikacja tych różnicowo ekspresyjnych miRNA nie tylko pogłębia naszą wiedzę na temat patogenezy CRC, ale także stwarza potencjalne możliwości opracowania nowych biomarkerów diagnostycznych i celów terapeutycznych. Wśród wielu miRNA związanych z nowotworami, miR-1298 stał się kluczowym obiektem badań. Obecne dowody sugerują, że miR-1298 często pełni rolę supresora nowotworowego w różnych typach raka. Na przykład w niedrobnokomórkowym raku płuca (NSCLC) hamuje on wzrost i inwazję komórek poprzez celowanie w kluczowe szlaki onkogenne5. Podobnie w guzach mózgu jego obniżona ekspresja wiąże się z rozwojem nowotworu, podczas gdy jego przywrócenie hamuje progresję choroby6. Biorąc pod uwagę jego udokumentowaną rolę supresora nowotworowego w innych typach raka, specyficzna rola miR-1298 w kancerogenezie jelita grubego — w szczególności jego cele downstream oraz skutki funkcjonalne w CRC — pozostaje w dużej mierze niezagospodarowana. Ta luka w wiedzy jest znacząca, biorąc pod uwagę odmienne uwarunkowania molekularne CRC w porównaniu z innymi nowotworami złośliwymi.
BMP7 jest wydzielaną, funkcjonalnie wszechstronną cytokiną należącą do superrodziny czynników wzrostu przekształcającego typ β (TGF-β)7. W CRC BMP7 odgrywa przede wszystkim rolę pronowotworową. BMP7 jest powszechnie upregulowany w tkankach i komórkach CRC8. BMP7 zwiększa zdolność do inwazji, migrację oraz właściwości macierzyste komórek rakowych, prawdopodobnie poprzez aktywację proinwazyjnych kaskad sygnałowych i modulowanie mikrośrodowiska guza w celu promowania migracji9. W różnych typach nowotworów zidentyfikowano specyficzne miRNA jako bezpośrednie posttranskrypcyjne represory BMP7. Na przykład miR-137 celuje w BMP7 w NSCLC w celu hamowania wzrostu komórek10. W świetle tych odkryć wysunęliśmy hipotezę, że BMP7 może być zaangażowany w CRC. Jednak to, czy miR-1298 bezpośrednio celuje w BMP7 w CRC, nie zostało jeszcze zweryfikowane eksperymentalnie. Ponadto żadne badanie nie scharakteryzowało kompleksowo osi miR-1298/BMP7 w CRC poprzez integrację walidacji mechanistycznej, fenotypowania funkcjonalnego i korelacji klinicznej.
W związku z tym postawiliśmy sobie za cel: (1) zbadanie wzorca regulacji miR-1298 w CRC oraz jego związku z cechami kliniczno-patologicznymi; (2) funkcjonalną charakterystykę wpływu miR-1298 na proliferację, apoptozę, inwazję i migrację komórek CRC; (3) eksperymentalną walidację BMP7 jako celu miR-1298 w CRC; oraz (4) ocenę wartości diagnostycznej i prognostycznej miR-1298 u pacjentów z CRC. Poprzez zintegrowanie tych komplementarnych podejść dążyliśmy do kompleksowego zrozumienia osi miR-1298/BMP7 w CRC oraz do odkrycia nowych biomarkerów i celów terapeutycznych w tej chorobie.
Protokół
Badanie to zostało zatwierdzone przez Komisję Etyczną Szpitala Mózgowego w Wuhan (numer zatwierdzenia: 20220826). Wszyscy uczestnicy wyrazili pisemną świadomą zgodę przed włączeniem do badania. Badanie zostało przeprowadzone zgodnie z Deklaracją Helsińską. Od wszystkich uczestników, których dane zostały uwzględnione, uzyskano zgodę na publikację. Szczegółowe informacje dotyczące odczynników, zestawów, przeciwciał, linii komórkowych, plazmidów i sprzętu użytych w tym badaniu, w tym ich producentów i numery katalogowe, znajdują się w Tabeli materiałów.
Pacjenci i próbki
Od maja 2022 do sierpnia 2024 roku pobrano od 85 pacjentów z CRC sparowane próbki tkanek nowotworowych oraz sąsiadujących tkanek nieznowotworowych. Żaden z uczestników nie miał w wywiadzie nowotworów, chemioterapii ani radioterapii. Ponadto do badania włączono 71 zdrowych ochotników poddawanych badaniu lekarskiemu.
Rokowanie
Wartości krytyczne dla grup o wysokiej i niskiej ekspresji miR-1298 określono na podstawie mediany poziomu ekspresji w próbkach tkanek CRC. Okres obserwacji wynosił 12 miesięcy, a nadzór realizowano telefonicznie lub poprzez ponowne badania. Punktem końcowym był zgon. spośród 85 pacjentów w okresie obserwacji odnotowano 14 zgonów; nie było pacjentów ocenzurowanych.
Hodowla i transfekcja komórek
Pozyskano linię komórkową normalnych komórek okrężnicy człowieka FHC, a także linie komórkowe raka jelita grubego (CRC) człowieka SW480 i HCT-116. Komórki hodowano w pożywce DMEM (Dulbecco's Modified Eagle Medium) uzupełnionej o 10% płodowej surowicy bydlęcej (FBS). Mimik lub inhibitor miR-1298 transfekowano do komórek SW480 i HCT-116 przy użyciu Lipofectamine 3000. Następnie mimik miR-1298 oraz wektor pcDNA3.1-BMP7 (OE-BMP7) lub wektor pcDNA3.1 (OE-NC) kotransfekowano do komórek SW480 i HCT-116. Szczegółowa procedura przebiegała następująco: komórki hodowano w temperaturze 37 °C w atmosferze 5% CO₂ do osiągnięcia 70%–80% konfluencji. Komórki wysiano w zagęszczeniu 5 x 10⁴ komórek na dołek w płytce 24-dołkowej i inkubowano przez noc. Przygotowano mieszaninę do transfekcji zawierającą 250 µL Opti-MEM, 1,25 µL Lipofectamine 3000, 1,5 µL P3000, 50 nM miRNA oraz 1 µg plazmidu, którą inkubowano przez 15 min przed dodaniem do komórek. Po 6 h wymieniono pożywkę na pełną DMEM, a próbki pobrano po 48 h.
Analiza bioinformatyczna
Cel miR-1298 został przewidziany przy użyciu bazy danych TargetScan 8.0 (https://www.targetscan.org/vert_80/). Następnie zidentyfikowano przewidywane miejsce wiązania między miR-1298 a BMP7.
Test reporterowy z użyciem podwójnej lucyferazy
Typ dziki i mutant 3′Sekwencje 3'-UTR BMP7 zawierające przewidywane miejsce wiązania miR-1298 sklonowano do wektora reporterowego podwójnej lucyferazy pmirGLO w celu wygenerowania odpowiednio plazmidów reporterowych BMP7 Wt oraz BMP7 Mut. Do analizy lucyferazy komórki SW480 i HCT-116 poddano kotransfekcji plazmidem BMP7 Wt lub BMP7 Mut wraz z mimikiem miR-1298, inhibitorem lub odpowiadającymi im kontrolami negatywnymi. Szczegółowe kroki były następujące: Komórki wysiano w płytkach 24-dołkowych w zagęszczeniu 4 x 10⁴ komórek na dołek. Każdy dołek poddano kotransfekcji za pomocą 0.8 µg plazmidu reporterowego, 50 nM mimetyku miR-1298, inhibitora lub odpowiadającego im kontroli negatywnej oraz Lipofectamine 3000. Po 8 h odessano pożywkę hodowlaną, a komórki poddano lizie poprzez dodanie 100 µL buforu do lizy pasywnej (PLB) przez 15 min. A 20 µL alikwot lizatu przeniesiono do białej płytki do analiz, 50 µL dodano LAR II, a następnie zmierzono aktywność lucyferazy świetlika. Dodatkowo 50 µL Zatrzymaj&Dodano odczynnik Glo w celu pomiaru aktywności Renilli. Na koniec przeprowadzono normalizację danych.
RT-qPCR
RNA wyekstrahowano z hodowli komórkowych, surowicy oraz zamrożonych tkanek CRC przy użyciu odczynnika TRIzol. W skrócie, komórki lizowano bezpośrednio w 1 mL TRIzol na szalkę 10 cm; fragmenty tkanek homogenizowano w TRIzol na lodzie. Po separacji faz chloroformem i precypitacji izopropanolem, osady RNA przemyto 75% etanolem, wysuszono na powietrzu i rozpuszczono w wodzie wolnej od RNaz. Czystość i stężenie RNA określono za pomocą spektrofotometru mikropojemnościowego (A260/A280 = 1,8–2,1, A260/A230 > 2,0). Do analizy mRNA usunięto pozostałości genomowego DNA za pomocą gDNA Eraser, a 500 ng RNA poddano odwrotnej transkrypcji z użyciem PrimeScript RT Reagent Kit z oligo(dT) i randomowymi heksamerami (37 °C przez 15 min oraz 85 °C przez 5 s). Do analizy miRNA 100 ng RNA poddano odwrotnej transkrypcji z użyciem primera typu stem-loop specyficznego dla miR-1298-5p lub U6, stosując Mir-X miRNA First-Strand Synthesis Kit (16 °C przez 30 min, 42 °C przez 30 min oraz 85 °C przez 5 s). W każdym przebiegu uwzględniono kontrole No-RT oraz bez matrycy (no-template). cDNA odpowiednio rozcieńczono i przechowywano w temperaturze −80 °C do czasu wykonania qPCR. Poziomy miR-1298 i BMP7 oznaczono ilościowo z wykorzystaniem chemii SYBR Green. U6 i GAPDH wykorzystano odpowiednio jako kontrole endogenne do normalizacji miRNA i mRNA. Względną ekspresję obliczono metodą porównawczą 2−ΔΔCt. Sekwencje primerów (5′–3′) były następujące: miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; oraz GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT. Warunki reakcji qPCR były następujące: 95 °C przez 2 min, 35 cykli: 95 °C przez 30 s, 60 °C przez 30 s oraz 72 °C przez 60 s. Matryce cDNA rozcieńczano szeregowo (5-krotnie) w celu wygenerowania krzywych wzorcowych. Wydajność amplifikacji E obliczono według wzoru E = (10-1/slope-1) x 100%. Wydajność amplifikacji primerów obliczono następująco: EmiR-1298 = 102,1%, EBMP7 = 96,3%, EGAPDH = 100,3%, EU6 = 99,8%. Wszystkie primery mieściły się w dopuszczalnym zakresie wydajności 90–110%. Wszystkie eksperymenty RT-qPCR obejmowały trzy niezależne powtórzenia biologiczne, z których każde wykonano w 3 powtórzeniach technicznych. Stabilność U6 i GAPDH oceniono za pomocą algorytmu geNorm. Wartości M obu genów znajdowały się poniżej zalecanego progu 1,5, co potwierdziło ich przydatność.
Test CCK-8 (Cell counting kit-8)
Komórki SW480 i HCT-116 wysiano do płytek 96-dołkowych w zagęszczeniu 2 x 10³ komórek/dołek w 100 µL kompletnego medium DMEM i inkubowano przez 24 h. Po 48 h od transfekcji płytki inkubowano przez 1 h w temperaturze 37 °C. Absorbancję przy 450 nm zmierzono za pomocą czytnika mikropłytek. W każdej grupie wykorzystano sześć powtórzeń, a od wyników odjęto wartość tła (próbka zawierająca medium i odczynnik CCK-8 bez komórek).
Cytometria przepływowa
Apoptozę oceniono metodą cytometrii przepływowej z wykorzystaniem zestawu do wykrywania apoptozy Annexin V-FITC/PI Apoptosis Detection Kit. Po 48 h od transfekcji komórki SW480 oraz HCT-116 zebrano poprzez trypsynizację, przemyto dwukrotnie zimnym PBS i zawieszono ponownie w 1x binding buffer w stężeniu 1 x 10⁶ komórek/ml. Alikwoty 1 x 10⁵ komórki przeniesiono do probówek do FACS, a następnie zabarwiono za pomocą 5 µL anneksyny V-FITC i 5 µL PI przez 15 min w temperaturze pokojowej w ciemności, a następnie rozcieńczono za pomocą 400 µL buforu wiążącego przed akwizycją. W celu kompensacji i ustawienia bram do analizy zastosowano kontrole pozytywne: niebarwione, barwione pojedynczo oraz traktowane staurosporyną. Dane analizowano przy użyciu oprogramowania FlowJo (FlowJo 10.2).
Migracja i inwazja komórek
Migrację i inwazję komórek oceniano z użyciem 24-dołkowych komór Transwell z membranami PET o rozmiarze porów 8 µm. W przypadku testów inwazyjności górną membranę pokryto wcześniej 50 µL Matrigelu w temperaturze 37 °C przez 2 h, a następnie rehydratowano w bezserowatym DMEM przez 30 min przed wysianiem komórek; w testach migracji pominięto ten etap pokrywania. Transfekowane komórki SW480 i HCT-116 poddano głodzeniu w bezserowatym DMEM przez 12 h, po czym do górnej komory wysiano 2 x 10⁴ komórek w 100 µL bezserowatego DMEM zawierającego 0,1% BSA. Dolna komora została wypełniona 600 µL DMEM z dodatkiem 10% FBS jako chemoatraktanta. Po 24 h (migracja) lub 48 h (inwazja) w temperaturze 37 °C komórki, które nie migrowały i znajdowały się na górnej powierzchni, usunięto za pomocą patyczka bawełnianego. Komórki na dolnej powierzchni utrwalono 4% paraformaldehydem przez 15 min, zabarwiono 0,1% fioletem krystalicznym przez 20 min, wypłukano i wysuszono na powietrzu. Pięć losowych pól na membranę zobrazowano przy powiększeniu 200x za pomocą mikroskopu odwróconego, a następnie policzono ręcznie przez dwóch niezależnych obserwatorów.
Western blot
Całkowite białka komórkowe wyekstrahowano poprzez homogenizację komórek w buforze lizującym RIPA z dodatkiem koktajlu inhibitorów proteaz. Stężenia białek określono za pomocą zestawu BCA Protein Assay Kit. Równoważne ilości lizatów białkowych (50 µg) rozdzielono metodą 10% SDS-PAGE, a następnie przeniesiono na membrany PVDF. Po zablokowaniu niespecyficznych miejsc wiązania 2% BSA, membrany inkubowano z przeciwciałami pierwszorzędowymi przeciwko BMP7 (1:1 000) i GAPDH (1:2 000) przez 90 min w 37 °C. Po trzykrotnych przemyciach w PBST membrany inkubowano z przeciwciałem drugorzędowym sprzężonym z peroksydazą chrzanową (HRP). Prążki białkowe wizualizowano przy użyciu odczynnika chemiluminescencyjnego ECL.
Analiza statystyczna
Dane analizowano przy użyciu programu SPSS 27.0. Wszystkie wartości przedstawiono jako średnia ± odchylenie standardowe (SD), chyba że zaznaczono inaczej. Do sprawdzenia rozkładu normalnego zastosowano test Shapiro-Wilka. Różnice międzygrupowe pomiędzy dwiema grupami określono za pomocą nieparzystego obustronnego testu t Studenta. Porównanie ekspresji miR-1298 w tkankach guza CRC oraz w sąsiednich tkankach niezwyrodniałych przeprowadzono za pomocą parzystego testu t Studenta. Przed przeprowadzeniem testu parametrycznego wykorzystano test Levene'a do oceny jednorodności wariancji. W przypadku porównań wielogrupowych dane parametryczne analizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA), a do ponownych porównań między parami zastosowano test HSD Tukeya. Korelację między miR-1298 a BMP7 w tkankach CRC oceniano za pomocą analizy korelacji Pearsona. Za istotne statystycznie uznano wartość p < 0,05.
Wyniki
Poziom miR-1298 był znacznie obniżony w CRC
W tkankach CRC poziomy miR-1298 były niższe niż w sąsiadujących tkankach niezwyrodniałych (Rycina 1A). Analiza przerzutów do węzłów chłonnych wykazała, że poziomy miR-1298 były niższe u pacjentów z przerzutami do węzłów chłonnych niż u pacjentów bez przerzutów (Rycina 1B). U pacjentów z CRC, u których wielkość guza wynosiła > 5 cm, poziom miR-1298 był znacząco niższy niż u pacjentów z guzem o wielkości ≤ 5 cm (p = 0,017; Rycina 1C). Poziom miR-1298 spadał wraz z zaawansowaniem stopnia złośliwości guza, z istotnymi różnicami między stopniem 1 a stopniem 3 (p = 0,047) oraz między stopniem 1 a stopniem 4 (p = 0,009; Rycina 1D). W surowicy pacjentów z CRC poziom miR-1298 był znacznie obniżony (Rycina 1E), a analiza krzywej ROC wykazała AUC na poziomie 0,889, przy czułości 78,82% i swoistości 83,10% (Rycina 1F).
Na podstawie medianowego poziomu ekspresji miR-1298 pacjentów z CRC podzielono na grupy o niskiej i wysokiej ekspresji. U pacjentów z CRC miR-1298 był ściśle powiązany ze stopniem TNM (p < 0,001), wielkością guza (p = 0,003), przerzutami do węzłów chłonnych (p = 0,003) oraz stopniem zróżnicowania guza (p = 0,035). Jednakże miR-1298 nie był powiązany z wiekiem (p = 0,832) ani płcią (p = 0,165) (Tabela 1). Analiza Kaplan–Meier wykazała, że pacjenci z CRC z niską ekspresją miR-1298 mieli krótszy czas przeżycia całkowitego niż pacjenci z wysoką ekspresją miR-1298 (log-rank p = 0,039; Rysunek 1G). Analiza regresji Coxa wskazała, że obniżona ekspresja miR-1298 może być potencjalnym wskaźnikiem prognostycznym u pacjentów z CRC (p = 0,035, Tabela 2).
miR-1298 hamował proliferację i stymulował apoptozę w komórkach CRC
W komórkach SW480 transfekcja mimikiem lub inhibitorem miR-1298 skutecznie zmieniła ekspresję miR-1298, wykazując istotną różnicę między grupą inhibitor NC a grupą inhibitora miR-1298 (p = 0,005; Rycyna 2A). Nadekspresja miR-1298 zmniejszyła żywotność komórek i stymulowała apoptozę, podczas gdy supresja miR-1298 zwiększyła żywotność komórek i zmniejszyła apoptozę; poziom apoptozy różnił się istotnie między grupą inhibitor NC a grupą inhibitora miR-1298 (p = 0,008; Rycyna 2B,C). W komórkach HCT-116 transfekcja w podobny sposób zmieniła ekspresję miR-1298 (p = 0,002; Rycyna 2D), a istotne różnice między grupą inhibitor NC a grupą inhibitora miR-1298 zaobserwowano w odniesieniu do żywotności komórek (p = 0,007; Rycyna 2E) oraz apoptozy (p = 0,005; Rycyna 2F).
miR-1298 hamował migrację i inwazję komórek CRC
Nadekspresja miR-1298 zmniejszyła liczbę migrujących i inwazyjnych komórek SW480 oraz HCT-116, podczas gdy inhibicja miR-1298 zwiększyła migrację i inwazję komórek (Rycyna 3A–D). W komórkach SW480 liczba komórek inwazyjnych była znacznie niższa w grupie z mimikiem miR-1298 niż w grupie mimic NC (p = 0,004; Rycina 3B).
BMP7 był celem miR-1298 w CRC
Analiza TargetScan wykazała, że BMP7 może być celem miR-1298 (Rycina 4A). Testy reporterowe z podwójną lucyferazą w liniach komórkowych SW480 i HCT-116 wykazały, że nadekspresja lub inhibicja miR-1298 zmienia aktywność lucyferazy reportera BMP7 Wt, ale nie reportera BMP7 Mut (Rycina 4B,C). W komórkach HCT-116 aktywność lucyferazy reportera BMP7 Wt była znacznie niższa w grupie z mimikiem miR-1298 niż w grupie kontrolnej mimic NC (p = 0,002; Rycina 4C). W tkankach CRC poziom BMP7 był znacznie podwyższony (Rycina 4D). Ponadto BMP7 i miR-1298 wykazywały korelację ujemną (Rycina 4E). W komórkach SW480 i HCT-116 nadekspresja miR-1298 hamowała BMP7 zarówno na poziomie RNA, jak i białka, natomiast inhibicja miR-1298 prowadziła do upregulacji BMP7 (Rycina 4F,G).
miR-1298 może wywierać efekt supresorowy w CRC poprzez regulację BMP7
W komórkach SW480 potwierdzono skuteczną modulację ekspresji BMP7 (Rycina 5A). Nadekspresja BMP7 częściowo odwróciła spadek żywotności komórek oraz wzrost apoptozy wywołany nadekspresją miR-1298, natomiast wyciszenie BMP7 dodatkowo zmniejszyło żywotność komórek i zwiększyło apoptozę (Rycina 5B,C). W komórkach HCT-116 również potwierdzono skuteczną modulację ekspresji BMP7 (Rycina 5D), co wiązało się z odpowiadającymi temu efektami w zakresie żywotności komórek i apoptozy (Rycina 5E,F). W komórkach SW480 ekspresja BMP7 oraz żywotność komórek były znacząco niższe w grupie miR-1298 mimic + si-BMP7 niż w grupie miR-1298 mimic + si-NC (p = 0,002 i p = 0,005 odpowiednio; Rycina 5A,B). Apoptoza różniła się znacząco pomiędzy grupami miR-1298 mimic + OE-BMP7 a miR-1298 mimic + OE-NC (p = 0,001; Rycina 5C). W komórkach HCT-116 żywotność komórek była znacząco niższa w grupie miR-1298 mimic + si-BMP7 niż w grupie miR-1298 mimic + si-NC (p = 0,002; Rycina 5E). Wysoka ekspresja BMP7 częściowo odwróciła hamujące działanie miR-1298 na migrację i inwazję komórek CRC, podczas gdy wyciszenie BMP7 nasiliło te efekty hamujące (Rycina 6A–D). W komórkach SW480 wyciszenie BMP7 znacząco zmniejszyło liczbę komórek migrujących i inwazyjnych w porównaniu z grupą si-NC (p = 0,003 i p = 0,020 odpowiednio; Rycina 6A,B). W komórkach HCT-116 nadekspresja BMP7 znacząco zmieniła liczbę komórek migrujących w porównaniu z grupą OE-NC (p = 0,030; Rycina 6C), natomiast wyciszenie BMP7 znacząco zmniejszyło liczbę komórek inwazyjnych w porównaniu z grupą si-NC (p = 0,007; Rycina 6D).
Dostępność danych:
Dane potwierdzające wyniki niniejszego badania są dostępne jako plik uzupełniający.
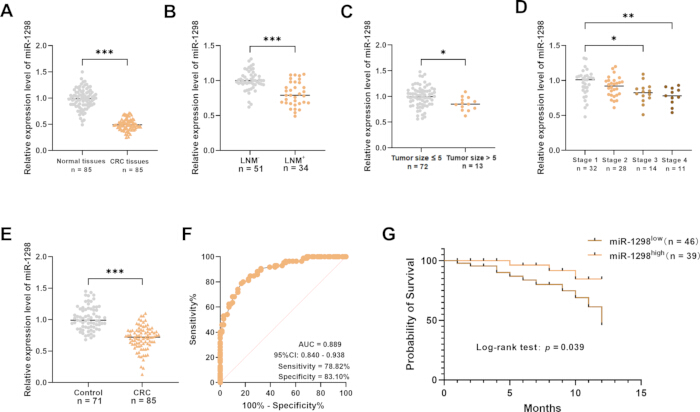
Rysunek 1: Ekspresja miR-1298 w tkankach CRC. (A) Względna ekspresja miR-1298 w tkankach CRC i sąsiednich tkankach niezwyrodniałych. (B) Względna ekspresja miR-1298 w tkankach CRC u pacjentów z przerzutami do węzłów chłonnych (LNM+) i bez przerzutów do węzłów chłonnych (LNM−). (C) Względna ekspresja miR-1298 w tkankach CRC w zależności od wielkości guza. (D) Względna ekspresja miR-1298 w tkankach CRC w zależności od stadium guza. (E) Względna ekspresja miR-1298 w surowicy u pacjentów z CRC i zdrowych osób kontrolnych. (F) Krzywa charakterystyki operacyjnej odbiornika (ROC) dla miR-1298 w surowicy w rozróżnianiu pacjentów z CRC od zdrowych osób kontrolnych. (G) Krzywe przeżycia całkowitego Kaplana–Meiera dla pacjentów z CRC w zależności od niskiej i wysokiej ekspresji miR-1298. *p < 0.05; **p < 0.01; ***p < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
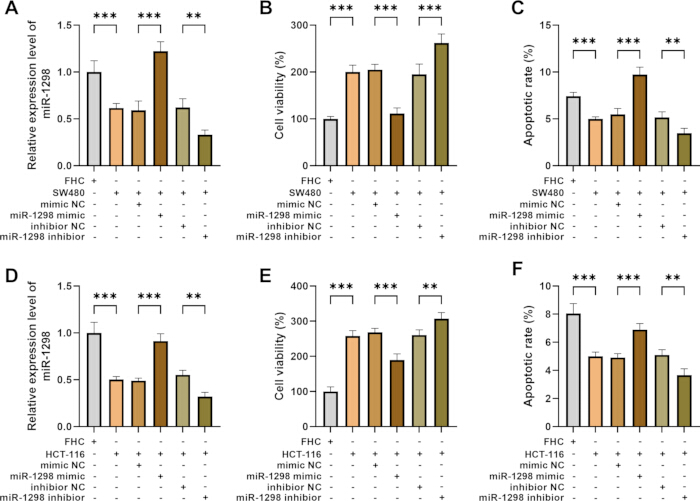
Rycina 2: Wpływ miR-1298 na proliferację i apoptozę komórek CRC. (A) Względna ekspresja miR-1298 w komórkach FHC i SW480 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (B) Żywotność komórek SW480 po nadekspresji lub inhibicji miR-1298. (C) Apoptoza komórek SW480 po nadekspresji lub inhibicji miR-1298. (D) Względna ekspresja miR-1298 w komórkach FHC i HCT-116 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (E) Żywotność komórek HCT-116 po nadekspresji lub inhibicji miR-1298. (F) Apoptoza komórek HCT-116 po nadekspresji lub inhibicji miR-1298. Dane przedstawiono jako średnia ± SD. Słupki błędów reprezentują SD. **p < 0.01; ***p < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
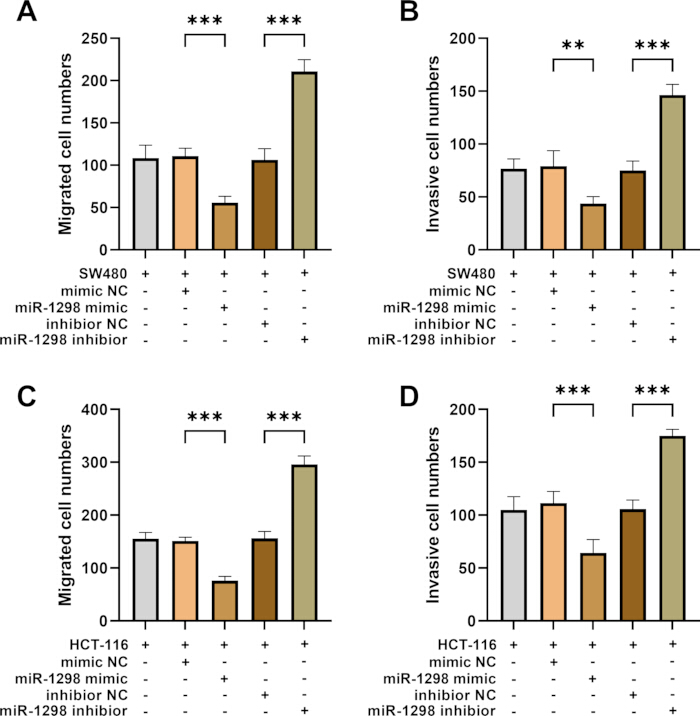
Rycina 3: Wpływ miR-1298 na migrację i inwazję komórek CRC. (A) Liczba migrujących komórek SW480 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (B) Liczba komórek inwazyjnych SW480 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (C) Liczba migrujących komórek HCT-116 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (D) Liczba komórek inwazyjnych HCT-116 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. Dane przedstawiono jako średnia ± SD. Słupki błędu reprezentują SD. **p < 0.01; ***p < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
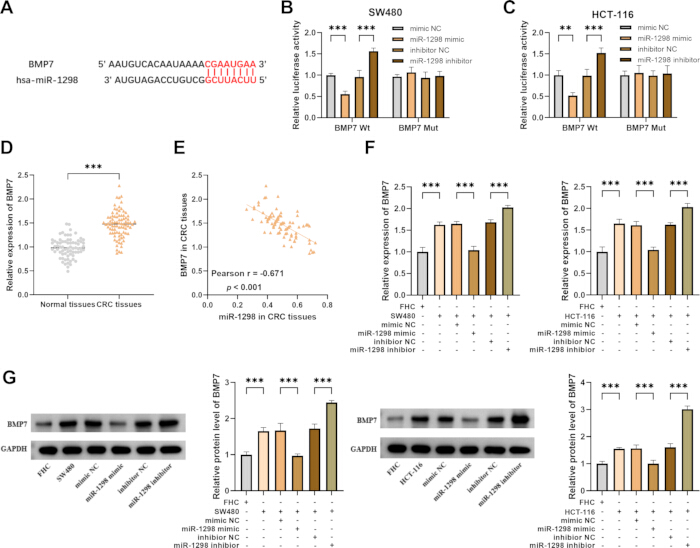
Rysunek 4: Relacja docelowa między miR-1298 a BMP7. (A) Przewidywane miejsce wiązania między miR-1298 a regionem 3′ UTR BMP7. (B) Względna aktywność lucyferazy reporterów BMP7 Wt i BMP7 Mut po nadekspresji lub inhibicji miR-1298 w komórkach SW480. (C) Względna aktywność lucyferazy reporterów BMP7 Wt i BMP7 Mut po nadekspresji lub inhibicji miR-1298 w komórkach HCT-116. (D) Względna ekspresja BMP7 w tkankach CRC i sąsiednich tkankach niezwyrodniałych. (E) Korelacja między ekspresją miR-1298 a BMP7 w tkankach CRC. (F) Względna ekspresja BMP7 w komórkach SW480 i HCT-116 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. (G) Względne poziomy białka BMP7 w komórkach SW480 i HCT-116 po transfekcji mimikiem miR-1298, mimic NC, inhibitorem miR-1298 lub inhibitor NC. **p < 0.01; ***p < 0.001. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
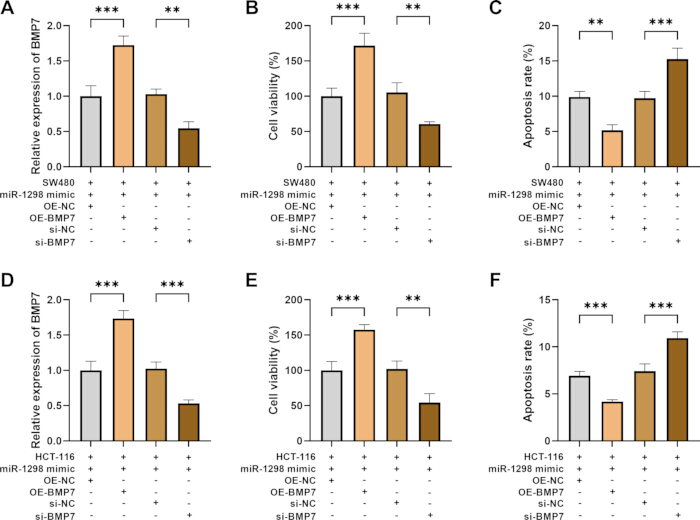
Rysunek 5: Współregulacja miR-1298 i BMP7 w zakresie proliferacji i apoptozy w komórkach CRC. Komórki SW480 i HCT-116 poddano kotransfekcji mimikiem miR-1298 oraz OE-NC, OE-BMP7, si-NC lub si-BMP7. (A) Względna ekspresja BMP7 w komórkach SW480. (B) Żywotność komórek SW480. (C) Apoptoza w komórkach SW480. (D) Względna ekspresja BMP7 w komórkach HCT-116. (E) Żywotność komórek HCT-116. (F) Apoptoza w komórkach HCT-116. Dane przedstawiono jako średnia ± SD. Słupki błędów reprezentują SD. **p < 0.01; ***p < 0.001. Skróty: OE-NC = negatywna kontrola nadekspresji; OE-BMP7 = nadekspresja BMP7; si-NC = negatywna kontrola małego interferującego RNA; si-BMP7 = małe interferujące RNA celowane w BMP7. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
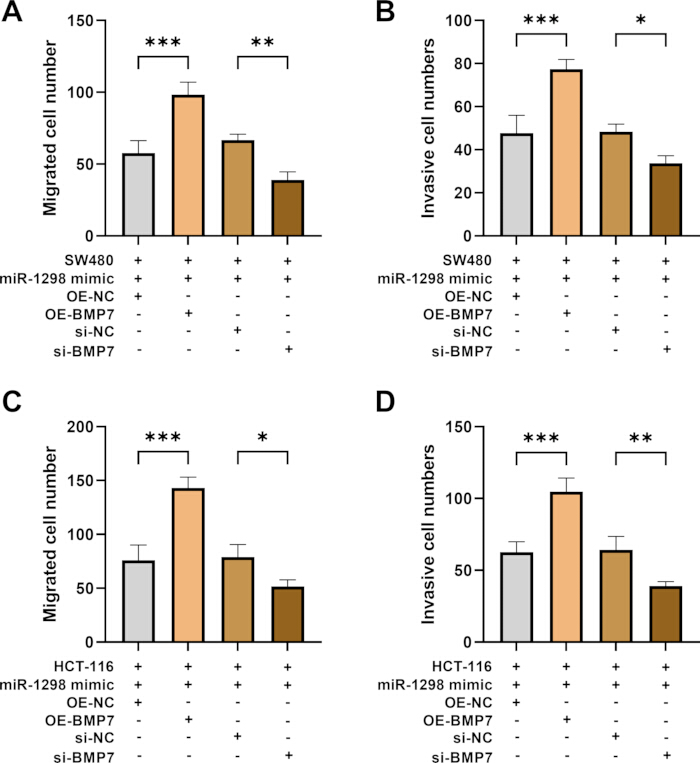
Rysunek 6: Współregulacja miR-1298 i BMP7 w zakresie migracji i inwazji komórek CRC. Komórki SW480 i HCT-116 poddano kotransfekcji mimikiem miR-1298 oraz OE-NC, OE-BMP7, si-NC lub si-BMP7. (A) Liczba komórek migrujących w linii SW480. (B) Liczba komórek inwazyjnych w linii SW480. (C) Liczba komórek migrujących w linii HCT-116. (D) Liczba komórek inwazyjnych w linii HCT-116. Dane przedstawiono jako średnia ± SD. Słupki błędu reprezentują SD. *p < 0.05; **p < 0.01; ***p < 0.001. Skróty: OE-NC = negatywna kontrola nadekspresji; OE-BMP7 = nadekspresja BMP7; si-NC = negatywna kontrola małego interferującego RNA; si-BMP7 = małe interferujące RNA skierowane przeciwko BMP7. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Zmienna | Suma | miR-1298 | p wartość | |
| (n = 85) | Niska (n = 46) | Wysoka (n = 39) | ||
| Wiek (lata) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Płeć (samiec/samica) | ||||
| Samiec | 44 | 27 | 17 | 0.165 |
| Kobieta | 41 | 19 | 22 | |
| stopień według klasyfikacji TNM | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| Wielkość guza (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| Przerzuty do węzłów chłonnych | ||||
| Tak | 34 | 25 | 9 | 0.003** |
| Nie | 51 | 21 | 30 | |
| Różnicowanie nowotworu | ||||
| Niski stopień złośliwości | 53 | 24 | 29 | 0.035* |
| Wysoki stopień złośliwości | 32 | 22 | 10 | |
Tabela 1: Zależność między cechami kliniczno-patologicznymi a poziomami ekspresji miR-1298 u pacjentów z CRC. Pacjentów podzielono na grupy z niską (n = 46) i wysoką (n = 39) ekspresją miR-1298, a następnie oceniono związki między ekspresją miR-1298 a charakterystyką kliniczno-patologiczną. *p < 0.05; **p < 0.01; ***p < 0.001. Skróty: CRC = rak jelita grubego; TNM = klasyfikacja guza, węzłów chłonnych i przerzutów.
| Zmienna | Wskaźnik hazardu | 95% CI | p wartość | |
| Niższy | Górny | |||
| Wiek | 0.776 | 0.186 | 3.242 | 0.728 |
| Płeć | 0.614 | 0.152 | 2.474 | 0.492 |
| stopień zaawansowania według klasyfikacji TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Wielkość guza | 8.078 | 1.833 | 35.587 | 0.006** |
| Przerzuty do węzłów chłonnych | 6.584 | 1.134 | 38.245 | 0.036* |
| Różnicowanie nowotworu | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabela 2: Analiza regresji Coxa czynników prognostycznych u pacjentów z CRC. Analizę regresji Coxa przeprowadzono w celu oceny związku cech kliniczno-patologicznych i ekspresji miR-1298 z rokowaniem u pacjentów z CRC. *p < 0,05; **p< 0,01. Skróty: CI = przedział ufności; CRC = rak jelita grubego; TNM = klasyfikacja stopnia zaawansowania nowotworu (guz, węzły chłonne, przerzuty).
Plik uzupełniający. Aby pobrać ten plik, kliknij tutaj.
Dyskusja
CRC stanowi znaczne obciążenie dla osób chorych i społeczeństwa ze względu na wysoką zapadalność oraz wysoką śmiertelność. Pomimo programów przesiewowych, takich jak kolonoskopia, u wielu pacjentów z CRC wciąż diagnozuje się chorobę w stadium zaawansowanym, co podkreśla pilną potrzebę opracowania bardziej skutecznych, nieinwazyjnych biomarkerów do wczesnego wykrywania11. Co więcej, rokowania w przypadku przerzutowego CRC pozostają złe, a oporność na leki i nawroty choroby są stosunkowo częste12. Dlatego też gruntowne zrozumienie mechanizmów molekularnych leżących u podstaw powstawania, progresji i przerzutowania CRC jest niezbędne dla opracowania nowych terapii celowanych i przełamania oporności na leczenie. CRC charakteryzuje się wysoką heterogennością, co oznacza, że guzy wyglądające podobnie mogą wykazywać znaczące różnice w przebiegu choroby13. Trwające badania są zatem kluczowe dla usprawnienia wczesnego wykrywania, rozwoju spersonalizowanego leczenia i ostatecznie poprawy przeżywalności pacjentów z CRC.
Nieprawidłowości w obrębie miRNA są zaangażowane w rozwój, określanie stopnia zaawansowania oraz rokowania w przypadku CRC14. Ze względu na ich stabilność w płynach ustrojowych, miRNA wykazują również ogromny potencjał jako nieinwazyjne biomarkery diagnostyczne i prognostyczne15. W niniejszym badaniu stwierdzono obniżenie poziomu miR-1298 w tkankach CRC, a jego ekspresja była skorelowana ze stopniem zaawansowania TNM oraz przerzutami do węzłów chłonnych, co sugeruje potencjalną rolę w progresji CRC. Co istotne, nasze badanie jest pierwszym, które kompleksowo charakteryzuje ekspresję miR-1298 w klinicznej kohorcie pacjentów z CRC i wykazuje jej związek z kluczowymi parametrami kliniczno-patologicznymi, w tym ze stopniem TNM, przerzutami do węzłów chłonnych oraz stopniem zróżnicowania guza.
Zaburzenia podstawowych procesów komórkowych — w tym proliferacji, apoptozy, migracji i inwazji — stanowią fundamentalny czynnik rozwoju nowotworów i śmiertelności związanej z chorobami nowotworowymi16. Niekontrolowana proliferacja umożliwia komórkom nowotworowym początkową ekspansję klonalną. Jednocześnie unikanie apoptozy pozwala tym komórkom przetrwać i gromadzić się mimo wewnętrznych uszkodzeń lub zewnętrznych czynników stresowych. Połączenie tych zjawisk prowadzi do wzrostu guza pierwotnego17,18. W związku z tym terapie celowane, skierowane na molekularne czynniki odpowiedzialne za te cechy, są kluczowe dla opracowania skutecznych metod leczenia CRC. miRNA przyczyniają się do rozwoju nowotworu poprzez regulację złośliwego fenotypu komórek rakowych19. Jednym z takich miRNA jest miR-1298. Na przykład obniżenie poziomu miR-1298-5p sprzyja progresji raka żołądka20. Zwiększona ekspresja miR-1298 hamuje proliferację komórek raka piersi, indukuje apoptozę i powoduje zatrzymanie cyklu komórkowego21. Ponadto miR-1298-5p działa również jako supresor nowotworowy w raku pęcherza moczowego22. Wyniki niniejszego badania wykazały, że nadekspresja miR-1298 hamuje proliferację, migrację oraz inwazję i zwiększa apoptozę, co sugeruje, że może on tłumić złośliwy fenotyp CRC. Co ważne, nasze badanie rozszerzyło zakres poprzednich doniesień poprzez systematyczną ocenę głównych złośliwych fenotypów w komórkach CRC, zapewniając bardziej pełną charakterystykę funkcjonalną miR-1298 w tym konkretnym typie nowotworu.
W odniesieniu do jego efektów pronowotworowych, BMP7 może promować proliferację komórek nowotworowych poprzez regulację szlaków sygnałowych, takich jak PI3K/AKT23. Poprzez modulowanie poziomu czynników antyapoptotycznych, takich jak Bcl‑2, BMP7 nadaje komórkom nowotworowym oporność na apoptozę24. Ponadto BMP7 przede wszystkim zwiększa migrację i inwazję komórek nowotworowych poprzez indukcję przejścia epitelialno-mezenchymalnego (EMT)25. Udział BMP7 w promowaniu nowotworzenia jest zgodny z naszym odkryciem, że poziom BMP7 był podwyższony w tkance CRC. Analiza bioinformatyczna zasugerowała, że BMP7 może być celem miR-1298, i zidentyfikowała przewidywane miejsce wiązania między miR-1298 a BMP7. Co więcej, eksperymenty z przywracaniem funkcji (rescue experiments) wskazały, że BMP7 prawdopodobnie działa jako funkcjonalny mediator miR-1298 w CRC. Biorąc pod uwagę szlaki sygnałowe związane z BMP7 w nowotworach, wysunęliśmy dalszą hipotezę, że oś miR-1298/BMP7 reguluje dolne szlaki sygnałowe (SMAD, PI3K/AKT, EMT), które kontrolują zachowanie komórek CRC. Co kluczowe, zweryfikowaliśmy eksperymentalnie tę przewidywanie za pomocą testów z reporterem lucyferazy, potwierdzając bezpośrednie wiązanie miR-1298 z 3′ UTR BMP7. Ponadto eksperymenty z przywracaniem funkcji wykazały, że przywrócenie BMP7 częściowo odwróciło efekty supresji nowotworu wywołane nadekspresją miR-1298, dostarczając dowodów funkcjonalnych na to, że BMP7 jest dolnym mediatorem miR-1298 w CRC. Z naszej wiedzy jest to pierwsze badanie ustanawiające oś regulacyjną miR-1298/BMP7 w raku jelita grubego.
Oprócz wglądów w mechanizmy działania, nasze badanie dostarczyło dowodów translacyjnych wspierających użyteczność kliniczną miR-1298. Analiza krzywej ROC wykazała, że miR-1298 może mieć wartość diagnostyczną w raku jelita grubego (CRC). Analiza przeżycia ujawniła ponadto, że niska ekspresja miR-1298 była powiązana z gorszym rokowaniem, a analiza regresji Coxa wykazała, że obniżony poziom miR-1298 może być czynnikiem prognostycznym dla CRC, co potwierdza potencjalną wartość miR-1298 jako biomarkera diagnostycznego i prognostycznego w raku jelita grubego.
Niniejsze badanie posiada pewne ograniczenia. W odniesieniu do próbek klinicznych, ze względu na to, że w badaniu wykorzystano głównie dane z jednego ośrodka, konieczne są przyszłe wieloośrodkowe badania walidacyjne, aby bardziej wiarygodnie potwierdzić rolę supresyjną miR-1298 w CRC. Badanie skupiało się na eksperymentach komórkowych in vitro, które nie oddały w pełni złożoności mikrośrodowiska nowotworowego in vivo. Brak modeli ksenoprzeszczepów guzów był jednym z ograniczeń tego badania. Przyszłe badania powinny obejmować walidację in vivo, aby dokładniej wyjaśnić rolę osi miR-1298/BMP7 w mikrośrodowisku nowotworowym. Ponadto w przyszłych eksperymentach można by dalej walidować szlaki upstream i downstream osi miR-1298/BMP7 poprzez predykcje bioinformatyczne oraz eksperymenty in vitro i in vivo. Okres obserwacji był stosunkowo krótki, co ograniczyło dojrzałość szacunków przeżycia długoterminowego. Mimo przeprowadzenia analizy metodą Kapitana–Meiera oraz analizy regresji Coxa, wyniki mogły zostać wpłynięte przez stosunkowo krótki czas obserwacji. Obecnie trwa przedłużona obserwacja w celu weryfikacji wartości prognostycznej miR-1298 w CRC. Co więcej, downstreamowe szlaki sygnalizacyjne (SMAD, PI3K/AKT, EMT) regulowane przez oś miR-1298/BMP7 w kontrolowaniu zachowania komórek CRC nie zostały w tym badaniu zweryfikowane eksperymentalnie i wymagają dalszej eksploracji. W badaniu nie przeprowadzono eksperymentów z odwróconym ratowaniem (inhibitor miR-1298 + siRNA BMP7). Takie eksperymenty dostarczyłyby uzupełniających dowodów na to, czy wyciszenie BMP7 mogłoby odwrócić pronowotworowe efekty inhibicji miR-1298. Brak tego typu eksperymentu ratującego osłabia nasze wnioski dotyczące mechanizmu działania. Niezbędne są przyszłe badania uwzględniające ten projekt eksperymentu z odwróconym ratowaniem oraz walidację in vivo, aby w pełni ustalić funkcję osi miR-1298/BMP7 w CRC.
Podsumowując, miR-1298 może być powiązany z progresją CRC. Pod względem funkcjonalnym miR-1298 może hamować proliferację, inwazję i migrację komórek CRC. BMP7 może być potencjalnym mediatorem funkcjonalnym miR-1298 w CRC.
Oświadczenia
Autorzy nie mają żadnych istotnych interesów finansowych ani niefinansowych do ujawnienia.
Podziękowania
Autorzy oświadczają, że podczas przygotowywania niniejszego manuskryptu nie otrzymali żadnych funduszy, grantów ani innego wsparcia.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,1% roztwór fioletu krystalicznego | Sigma-Aldrich | C0775 | |
| Zestaw do 10% SDS-PAGE | Epizyme | PG112 | |
| 4% paraformaldehyd | Sigma-Aldrich | P6148 | |
| płytka hodowlana 6-dołkowa | Corning | 3516 | |
| płytka do hodowli komórkowych z 96 dołkami | Corning | 3599 | |
| Zestaw do wykrywania apoptozy Annexin V-FITC/PI | Różne (np. Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) lub 556547 (BD) | |
| przeciw-BMP7 | Abcam | ab176707 | |
| anty-GAPDH | Abcam | ab181602 | |
| Zestaw BCA | Sangon | C503021 | |
| Mutant 3 BMP7‘plazmid reporterowy UTR | Własna konstrukcja (sklonowana do pmirGLO) | Niestandardowy | |
| startery BMP7 | Sangon Biotech (Szanghaj, Chiny) | Synteza na zamówienie | |
| BMP7 typu dzikiego 3‘plazmid reporterowy -UTR | Własnej konstrukcji (sklonowanej do pmirGLO) | Niestandardowy | |
| Zestaw do liczenia komórek-8 (CCK-8) | Dojindo (Japonia) | CK04 | |
| Flask do hodowli komórkowych (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘środek DMEM (Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Płytkowa surowica bydlęca (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| linia komórkowa FHC (normalne komórki nabłonka jelita grubego człowieka) | ATCC | CRL-1831 | |
| Cytometr przepływowy | BD Biosciences | FACSCanto™ II | |
| Oprogramowanie FlowJo V10 | FlowJo, LLC | — | |
| startery GAPDH (kontrola endogenna dla mRNA) | Sangon Biotech (Szanghaj, Chiny) | Synteza na zamówienie | |
| linia komórkowa HCT-116 (ludzki rak jelita grubego) | ATCC | CCL-247 | |
| przeciwciało wtórne sprzężone z HRP | Beyotime | A0208 | |
| Mikroskop odwrócony | Nikon (lub odpowiednik) | Eclipse Ts2 | |
| Odczyn do transfekcji Lipofectamine 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| System testowy lucyferazy | Promega | E1500 | |
| Matrigel Basement Membrane Matrix | Corning | 354230 | |
| Czytnik mikropłytek | BioTek (Agilent) | Synergia H1 | |
| inhibitor miR-1298 | GenePharma (Szanghaj, Chiny) | Dostosowane (syntetyzowane na zamówienie) | |
| mimetyk miR-1298 | GenePharma (Szanghaj, Chiny) | Niestandardowe (syntetyzowane na zamówienie) | |
| startery do miR-1298 | Sangon Biotech (Szanghaj, Chiny) | Synteza na zamówienie | |
| Zestaw do syntezy pierwszej nici miRNA Mir-X | Takara Bio | 638313 | |
| OE-NC | GenePharma (Szanghaj, Chiny) | Niestandardowy (syntetyzowany na zamówienie) | |
| Opti-MEM | Gibco | 31985070 | |
| Bufor do lizy pasywnej | Promega | E194A | |
| wektor pcDNA3.1 (kontrolny wektor pusty) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (plazmid nadekspresyjny OE-BMP7) | GenePharma (Szanghaj, Chiny) | Dostosowane (syntetyzowane na zamówienie) | |
| Wektor ekspresyjny celu miRNA pmirGLO Dual-Luciferase | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| Zestaw odczynników PrimeScript RT (Perfect Real Time) | Takara (Japonia) | RR037A | |
| Zestaw odczynników PrimeScript RT z gDNA Eraser | Takara Bio | RR047A | |
| Koktajl inhibitorów proteaz | Thermo | 78429 | |
| PVDF | Absynt | abs935 | |
| RIPA | Abcam | ab156034 | |
| Probówki do mikrocentryfugi wolne od RNaz (1,5 ml) | Axygen (Corning) | MCT-150-C | |
| końcówki do pipet wolne od RNaz | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Szanghaj, Chiny) | Niestandardowe (syntetyzowane na zamówienie) | |
| si-NC | GenePharma (Szanghaj, Chiny) | Dostosowany (syntetyzowany na zamówienie) | |
| Staurosporyna (pozytywna kontrola apoptozy) | Sigma-Aldrich | S5921 | |
| linia komórkowa SW480 (ludzki gruczolakorak jelita grubego) | ATCC | CCL-228 | |
| Gotowa mieszanina do qPCR z SYBR Green | Takara (Japonia) | RR036A | |
| komora Transwell (24-dołkowa, 8.0 µm wielkość porów) | Corning (Costar) | 3422 | |
| Odczynnik TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| primery U6 (kontrola endogenna dla miRNA) | Sangon Biotech (Szanghaj, Chiny) | Synteza na zamówienie |
Bibliografia
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.