Niniejszy artykuł przedstawia szybki i powtarzalny schemat modelowania deficytów pamięci rozpoznawczej wywołanych deprywacją snu u myszy, łączący łagodną deprywację snu, test rozpoznawania nowych obiektów oraz analizę biomarkerów hipokampa u tych samych zwierząt w ramach 10-dniowego procesu, z ustrukturyzowanym rejestrowaniem interwencji i zdefiniowanymi kryteriami kontroli jakości.
Artykuł metodologiczny
Szybki schemat postępowania w modelowaniu deficytów pamięci rozpoznawczej indukowanych deprywacją snu u myszy z wykorzystaniem testu rozpoznawania nowych obiektów oraz biomarkerów hipokampa
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Niedostateczny sen przyczynia się do pogorszenia funkcji poznawczych i może przyspieszać procesy neurodegeneracyjne. Niniejszy artykuł przedstawia szybki i powtarzalny schemat postępowania służący do modelowania deficytów pamięci rozpoznawczej indukowanych deprywacją snu u myszy, łącząc wyniki behawioralne z molekularnymi zmianami w hipokampie. Protokół wykorzystuje paradygmat 5-godzinnej deprywacji snu metodą łagodnego obchodzenia się (gentle handling), stosowany bezpośrednio po standaryzowanej, 10-minutowej sesji zapoznania z nowym obiektem (NOR). Pamięć rozpoznawcza jest oceniana za pomocą 5-minutowego testu NOR po precyzyjnie określonym, 5-godzinnym odstępie retencji, a następnie następuje natychmiastowy pobór tkanek hipokampa od tych samych zwierząt w celu ilościowego oznaczenia cytokin prozapalnych, w tym interleukiny-1 beta (IL-1β), interleukiny-6 (IL-6) oraz czynnika martwicy nowotworów alfa (TNF-α), a także markerów stresu oksydacyjnego, w tym dysmutazy ponadtlenkowej (SOD), peroksydazy glutationowej (GPx) i malondialdehydu (MDA). Główny postęp metodologiczny nie polega na poszczególnych technikach behawioralnych lub biochemicznych, które są dobrze ugruntowane, lecz na ich operacyjnej standaryzacji w ramach jednego, powiązanego schematu pracy. Protokół wymaga ustrukturyzowanego, mierzalnego rejestru interwencji z zakresu łagodnego obchodzenia się, przypisuje trening i deprywację do stałego punktu czasu okołodobowego, zachowuje powiązania na poziomie osobniczym między zapisami NOR a próbkami tkanek oraz precyzyjnie określa kryteria kontroli jakości i analizy. Procedura została zaprojektowana tak, aby zminimalizować fizyczne krępowanie i wymuszony wysiłek fizyczny, może zostać ukończona w krótkim oknie eksperymentalnym i jest proponowana jako referencyjny schemat postępowania, który poszczególne laboratoria mogą wykorzystać do benchmarkingu własnej implementacji deprywacji snu metodą łagodnego obchodzenia się, oczekując na niezależną replikację.
Wprowadzenie
Sen jest fundamentalnym procesem fizjologicznym, niezbędnym dla funkcjonowania mózgu, uczenia się oraz konsolidacji pamięci1. Niedobór snu wiąże się z dysfunkcją poznawczą, zaburzeniami nastroju oraz progresją chorób neurodegeneracyjnych2. Eksperymentalna deprywacja snu (SD) u gryzoni jest powszechnie stosowana do badania neurobiologicznych skutków ostrego braku snu. Hipokamp, obszar mózgu kluczowy dla pamięci deklaratywnej i przestrzennej, jest szczególnie podatny na deprywację snu3.
W celu wywołania deprywacji snu u gryzoni dostępnych jest kilka procedur. Zmodyfikowana metoda wielu platform może skutecznie ograniczyć fazę snu REM, lecz może ona powodować znaczny stres i wyczerpanie fizyczne4. W przeciwieństwie do niej, delikatna stymulacja (GH – gentle handling) podtrzymuje stan czuwania poprzez łagodną stymulację sensoryczną, taką jak opukiwanie klatki, niepokojenie ściółki lub podawanie nowego materiału do budowy gniazda w momencie pojawienia się oznak snu. Krótki okres GH zastosowany bezpośrednio po nauce może zakłócać zależną od hipokampa konsolidację pamięci, unikając jednocześnie wielu czynników zakłócających związanych z długotrwałymi paradygmatami deprywacji5. Ponieważ interwencje w niniejszym protokole są wyzwalane przez postawę ciała i behawioralne oznaki czuwania, a nie przez detekcję fazy REM potwierdzoną za pomocą EEG, GH w tutaj zastosowanej formie stanowi uznaną metodę całkowitej deprywacji snu, a nie technikę specyficzną dla fazy REM, i jest stosowana w tej formie od kilku dekad6.
Test rozpoznawania nowych obiektów (NOR) jest powszechnie stosowanym badaniem pamięci rozpoznawczej. Opiera się on na naturalnej tendencji gryzoni do częstszego eksplorowania nowego obiektu niż obiektu znanego, bez konieczności stosowania nagrody, kary czy rozbudowanego treningu7,8. Wykazano, że ostra deprywacja snu (SD) upośledza rozróżnianie nowych obiektów, zapewniając tym samym efektywny behawioralny wskaźnik zaburzeń konsolidacji pamięci9. Na poziomie molekularnym brak snu może wywołać neurostan zapalny w hipokampie oraz stres oksydacyjny, w tym zwiększenie poziomu cytokin prozapalnych i produktów peroksydacji lipidów, przy jednoczesnym obniżeniu zdolności antyoksydacyjnych10,11.
Wyzwanie w zastosowaniu tego modelu nie polega na dostępności jego poszczególnych elementów, lecz na braku spójności operacyjnej między badaniami. O delikatnym obchodzeniu się ze zwierzętami często wspomina się bez ustrukturyzowanego zapisu intensywności interwencji; punkty końcowe behawioralne i molekularne są często gromadzone w osobnych kohortach, a kryteria kontroli jakości dla zachowań eksploracyjnych oraz planowanie wielkości próby nie zawsze są jasno określone. Ogólnym celem niniejszego artykułu jest przedstawienie zstandaryzowanego schematu postępowania w celu modelowania deficytów pamięci rozpoznawczej wywołanych deprywacją snu, przy jednoczesnym powiązaniu wyników behawioralnych z molekularnymi pomiarami w hipokampie u tych samych zwierząt. Metoda ta niweluje te luki w powtarzalności poprzez połączenie 5-godzinnego okna GH po treningu, dziennika intensywności interwencji, pobierania tkanek i przeprowadzania testów behawioralnych w tej samej kohorcie oraz zdefiniowanych kryteriów analitycznych w ramach jednego 10-dniowego procesu (Rysunek 1). Brak standaryzacji w implementacji GH był wcześniej odnotowany w literaturze dotyczącej metodologii badań nad snem6.
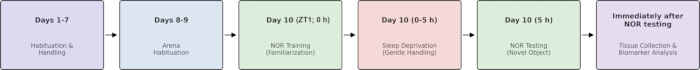
Rycina 1. Schematyczny przebieg procesu eksperymentalnego. Protokół trwa 10 dni i obejmuje obsługę oraz habituację, po których następuje kluczowy dzień testowy obejmujący 10 min fazę zapoznania z NOR, 5 h deprywacji snu GH, 5 min test NOR oraz natychmiastowe pobranie tkanki hipokampa od tych samych zwierząt w celu analizy biomarkerów. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Protokół
Wszystkie procedury z udziałem zwierząt zostały przeanalizowane i zatwierdzone przez Komitet ds. Dobrostanu i Etyki Zwierząt Laboratoryjnych AILIMO (Zhejiang AILIMO Biotechnology Co., Ltd.) na wniosek Szpitala Nanjing Drum Tower (Główny Badacz: Yuan Liu), numer zatwierdzenia AP CODE: ALM202605070, zatwierdzone 7 maja 2026 r. (ważne przez 4 lata), zgodnie z obowiązującymi przepisami instytucjonalnymi i krajowymi. W protokole opisanym poniżej należy wykorzystać dorosłe samce myszy C57BL/6J (w wieku 8–12 tygodni).
1. Przygotowanie i habituacja zwierząt
- Utrzymuj myszy domowe w standardowych warunkach laboratoryjnych w temperaturze 22°C ± 1°C i wilgotności 50%–60% przy 12-godzinnym cyklu światło/ciemność (światło zapalone o 07:00, zdefiniowane jako ZT0). Zapewnij dostęp ad libitum do standardowej karmy dla gryzoni i wody.
- Oswajaj każdą mysz poprzez manipulację przez 3–5 min dziennie przez co najmniej 7 kolejnych dni przed rozpoczęciem testów.
UWAGA: Procedura ta minimalizuje stres wywołany manipulacją, który mógłby zaburzyć zachowania eksploracyjne. - Przygotuj kwadratową, nieprzezroczystą arenę NOR o wymiarach 40 cm × 40 cm × 40 cm z nierefleksyjnymi ściankami. Wybierz kolor areny kontrastujący z kolorem futra zwierząt.
- Wybierz obiekty NOR, które są wystarczająco ciężkie, aby zapobiec ich przesuwaniu, i wykonane z materiału nieporowatego. Użyj obiektów różniących się kształtem i teksturą, ale o zbliżonej wielkości całkowitej.
UWAGA: Rysunek 2 przedstawia konfigurację treningową i testową. - W dniach 8 i 9 przenieś myszy do pomieszczenia testowego na 1 h przed habituacją. Umieść każdą mysz w pustej arenie na 10 min, a następnie zwróć ją do klatki macierzystej.
- Przecieraj arenę i obiekty 70% etanolem pomiędzy zwierzętami. Pozostaw etanol do wyschnięcia przez około 3–5 min przy normalnej wentylacji laboratoryjnej przed wprowadzeniem kolejnego zwierzęcia.
OSTRZEŻENIE: Etanol jest wysoce łatwopalny. Zapewnij odpowiednią wentylację i przechowuj go z dala od źródeł zapłonu.
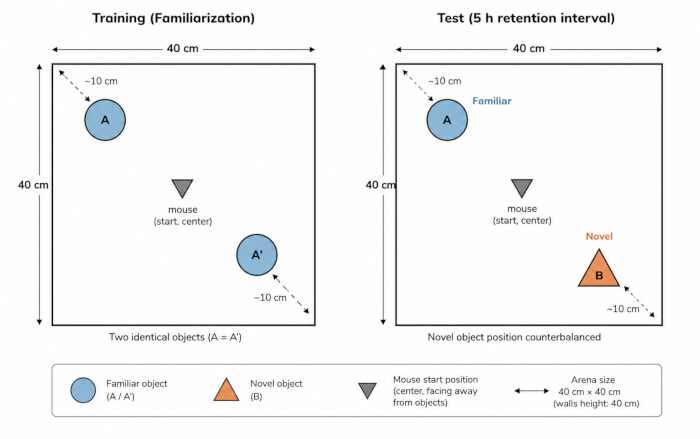
Rysunek 2. Schemat aparatury do testu rozpoznawania nowych obiektów oraz projekt eksperymentu. Podczas fazy zapoznania należy umieścić dwa identyczne obiekty (A i A′) w przeciwległych narożnikach areny. Podczas fazy testowej, po 5 h interwale retencyjnym, jeden z obiektów znanych należy zastąpić nowym obiektem (B). Aby zminimalizować błąd wynikający z preferencji przestrzennych, należy zrównoważyć położenie nowego obiektu (lewe i prawe) pomiędzy zwierzętami, tak aby około połowa zwierząt w każdej grupie otrzymała nowy obiekt w każdej z tych pozycji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Trening NOR (Zapoznanie)
- W 10. dniu rozpocząć trening NOR w ZT1 (08:00 zgodnie z określonym harmonogramem oświetlenia). Utrzymać tę godzinę rozpoczęcia we wszystkich kohortach, aby zminimalizować zmienność okołodobową.
- Przenieść myszy do pomieszczenia testowego na 1 h przed rozpoczęciem sesji treningowej. Umieścić dwa identyczne obiekty (A i A′) w przeciwległych rogach areny, w odległości około 10 cm od ścian.
- W razie potrzeby przymocować obiekty do podłoża.
- Umieścić mysz w centrum areny, tyłem do obiektów. Pozostawić mysz do swobodnej eksploracji przez 10 min.
- Rejestrować zachowanie za pomocą systemu wideo-trackingu zamontowanego nad areną. Eksplorację aktywną zdefiniować jako kierowanie nosem w stronę obiektu z odległości ≤2 cm, węszenie przy obiekcie lub dotykanie go nosem.
UWAGA: Siedzenia na obiekcie lub wspinania się na niego bez aktywnego węszenia nie należy zaliczać do eksploracji obiektu. - Rejestrować i oceniać zachowanie NOR za pomocą oprogramowania EthoVision XT wersja 17.5 z kamerą nadzorczą Basler acA1300-60gm. Skonfigurować oprogramowanie do trackingu, ustawiając strefę detekcji punktu nosa w odległości ≤2 cm od każdego obiektu w celu oceny eksploracji aktywnej, zgodnie z kryteriami zdefiniowanymi w kroku 2.5.
- Po zakończeniu 10-minutowej sesji zapoznawczej natychmiast usunąć mysz z areny.
- Dokładnie oczyścić arenę i obiekty 70% ethanolem przed wprowadzeniem kolejnego zwierzęcia.
3. Deprywacja snu poprzez delikatne manipulowanie
- Przed sesją treningową w 10. dniu przypisz każdemu zwierzęciu unikalny kod identyfikacyjny. Używaj tego samego kodu identyfikacyjnego podczas rejestracji zachowań oraz pobierania tkanek.
- Przypisz zwierzęta do grup SD i NSD w stosunku 1:1, wykorzystując losowe liczby wygenerowane komputerowo za pomocą funkcji RAND w programie Excel.
- Bezpośrednio po treningu NOR należy przenieść myszy NSD do ich klatek macierzystych i pozostawić je w spokoju na 5 h. Zwierzęta SD i NSD należy utrzymywać w identycznych warunkach środowiskowych oraz w tym samym oknie czasu okołodobowego.
- Bezpośrednio po treningu NOR należy rozpocząć deprywację snu metodą GH u myszy z grupy SD. Należy utrzymywać stan czuwania przez 5 kolejnych godzin w klatce domowej.
- Należy stale monitorować zwierzęta. Należy interweniować, gdy mysz przyjmie postawy związane ze snem, takie jak zwijanie się, zamknięcie oczu lub przedłużający się brak ruchu.
- Stymulację należy wprowadzać stopniowo, zaczynając od delikatnego stukania w klatkę. W razie potrzeby można lekko poruszyć ściółkę, wprowadzić nowy, czysty przedmiot, taki jak papierowa rurka, lub delikatnie dotknąć zwierzęcia miękkim pędzlem.
- Należy unikać unieruchamiania fizycznego, wymuszania ruchu oraz stymulacji awersyjnej lub bolesnej.
- Uzupełnij dziennik interwencji w Tabela 1 dla każdej klatki w ciągu 5-godzinnego okresu GH. Należy odnotować przybliżoną liczbę interwencji na godzinę, dominujący rodzaj interwencji oraz wszelkie odchylenia od protokołu lub zastrzeżenia dotyczące dobrostanu.
- Należy stosować ten sam szablon dziennika interwencji we wszystkich kohortach.
OSTRZEŻENIE: Nie należy stosować unieruchomienia fizycznego, wymuszonego wysiłku ani bodźców bólowych, ponieważ mogą one samodzielnie wpływać na pamięć, stres oraz wyniki stanu zapalnego.
| Id klatki/kohorty | H1 | H2 | H3 | H4 | H5 | Dominujący rodzaj interwencji | Odchylenie lub obserwacja dobrostanu |
| Id wpisu | Liczba wpisów H1 | Liczba wpisów H2 | Liczba wpisów H3 | Liczba wpisów H4 | Liczba wpisów H5 | Stukanie / ściółka / nowy obiekt / miękka szczoteczka | Zarejestruj w przypadku wystąpienia |
Tabela 1: Szablon dziennika interwencji polegających na delikatnym obchodzeniu się ze zwierzętami. Należy zapisywać ID klatki lub kohorty, liczbę interwencji polegających na delikatnym obchodzeniu się w każdej godzinie 5-godzinnego okresu deprywacji snu (H1–H5), dominujące typy interwencji oraz wszelkie odchylenia od protokołu lub obserwacje dotyczące dobrostanu.
4. Faza testu NOR
- Dokładnie 5 h po zakończeniu treningu NOR rozpocznij fazę testową NOR, aby zachować stały 5-godzinny odstęp czasu na retencję.
- Umieść w arenie jeden znany obiekt (A) i jeden nowy obiekt (B).
- Zrównoważ pozycję nowego obiektu pomiędzy zwierzętami, naprzemiennie umieszczając go po lewej i prawej stronie, tak aby około połowa zwierząt w każdej grupie miała nowy obiekt po lewej stronie, a druga połowa po prawej.
- Umieść mysz w centrum areny. Pozostaw mysz do swobodnej eksploracji przez 5 min.
- Nagraj sesję, używając tego samego systemu wideotrzymania z widokiem z góry, który był stosowany podczas oswajania. Zastosuj definicję eksploracji określoną w kroku 2.5.
- Przed każdym zwierzęciem oczyść arenę i obiekty przy użyciu 70% etanolu.
5. Pobieranie tkanek z tej samej kohorty i wycinanie hipokampa
- Bezpośrednio po teście NOR zidentyfikuj zwierzę poddane testom behawioralnym w celu pobrania tkanek.
- Uśmierć zwierzę poprzez dekapitację bez znieczulenia, zgodnie z zatwierdzonym protokołem dotyczącym zwierząt, aby uniknąć potencjalnych efektów zakłócających działania środków znieczulających na biomarkery zapalne i zależne od fosforylacji. Pobierz tkankę mózgową natychmiast po uśmierceniu.
- Zachowaj unikalny identyfikator rejestracji zachowania zwierzęcia na wszystkich probówkach z próbkami i w dokumentacji, aby zapewnić bezpośredni związek każdej próbki molekularnej z wynikiem testu NOR danego zwierzęcia.
- Szybko wyizoluj mózg i umieść go na sterylnej, schłodzonej do temperatury lodu powierzchni do sekcji.
- Rozdziel półkule cięciem wzdłużn samym środkiem (mid-sagittal). Wypreparuj hipokamp z każdej półkuli, używając schłodzonych mikrospatułek.
- Szybko zamroź wypreparowane hipokampy w ciekłym azocie. Przechowuj próbki w temperaturze −80°C do czasu analizy.
UWAGA: Ciekły azot może spowodować poważne obrażenia spowodowane zimnem. Należy stosować odpowiedni kriogeniczny sprzęt ochronny.
6. Ilościowe oznaczenie biomarkerów hipokampa
- Uzupełnić lodowaty bufor lizujący RIPA koktajlem inhibitorów proteaz i fosfataz w stężeniu roboczym 1× (10 µL na mL buforu lizującego z roztworu zapasowego 100×).
- Zhomogenizować tkankę hipokampa w stosunku tkanki do buforu 1:10 (m/v) w uzupełnionym lodowatym buforze lizującym RIPA (10 µL buforu lizującego na mg tkanki). Dla typowej masy tkanki hipokampa wynoszącej około 25–30 mg na półkulę, należy użyć około 250–300 µL buforu lizującego na półkulę lub około 500–600 µL dla około 50–60 mg bilateralnej tkanki hipokampa.
- Odwirować homogenat RIPA z prędkością 14 000 × g przez 15 min w temperaturze 4°C i zebrać nadsącz. Nadsączu należy użyć do oznaczania całkowitej zawartości białka oraz do trzech testów ELISA na cytokiny.
UWAGA: W przypadku testów SOD, GPx i MDA należy stosować bufory do homogenizacji specyficzne dla danego zestawu, zgodnie z zaleceniami producenta w celu zachowania aktywności enzymatycznej. - Przygotować oddzielny 10% (m/v) homogenat hipokampa do pomiarów SOD, GPx i MDA w stosunku tkanki do buforu 1:9, stosując odpowiedni bufor do homogenizacji specyficzny dla zestawu zamiast buforu lizującego RIPA.
- Wyznaczyć całkowite stężenie białka za pomocą testu białkowego BCA.
- Oznaczyć poziom IL-1β, IL-6, TNF-α, SOD, GPx oraz MDA, korzystając ze specyficznych dla danego celu zestawów ELISA lub zestawów do analiz biochemicznych wymienionych w Tabeli materiałów. Należy postępować zgodnie z instrukcjami producenta dla każdego testu.
- Przygotować standardy w odpowiednim buforze do analizy. Próbki należy rozcieńczyć tak, aby wartości gęstości optycznej mieściły się w liniowej części krzywej wzorcowej.
- Próbki hipokampa do testów ELISA na cytokiny rozcieńczyć około 1:5 w odpowiednim rozcieńczalniku do analizy. W razie potrzeby dostosować rozcieńczenie w zakresie 1:2–1:10, aby uzyskać wartości gęstości optycznej w liniowej części krzywej wzorcowej.
- Nadsączów 10% (m/v) homogenatów hipokampa opisanych w kroku 6.4 użyć bezpośrednio do testów SOD, GPx i MDA. W przypadku tych trzech testów nie stosować schematu rozcieńczania dla ELISA na cytokiny opisanego w kroku 6.8.
- W testach ELISA na IL-1β, IL-6 i TNF-α dodać 100 µL standardu lub odpowiednio rozcieńczonej próbki hipokampa do każdego dołka w dwóch powtórzeniach i inkubować w temperaturze 37°C przez 90 min. Dodać 100 µL biotynilowanego przeciwciała detekcyjnego i inkubować w temperaturze 37°C przez 60 min.
- Dodać 100 µL koniugatu HRP do każdego dołka testu ELISA na cytokiny i inkubować w temperaturze 37°C przez 30 min. Rozwinąć reakcję z substratem TMB w temperaturze 37°C w ciemności przez około 15 min.
- W teście SOD zmieszać 20 µL nadsączu homogenatu hipokampa z 20 µL roboczego roztworu enzymu i 200 µL roztworu substratu. Inkubować w temperaturze 37°C przez 20 min i zmierzyć absorbancję przy 450 nm.
- W teście GPx połączyć 200 µL nadsączu homogenatu hipokampa z mieszaniną reakcyjną zawierającą GSH i inkubować w temperaturze 37°C przez 5 min. Przerwać reakcję i odwirować mieszaninę z prędkością 3500 × g przez 10 min w temperaturze 4°C. Poddać nadsącz rozwojowi barwnemu przez około 15 min i zmierzyć absorbancję przy 412 nm, używając 200 µL nadsączu z reakcji.
- W teście MDA zmieszać 100 µL nadsączu homogenatu hipokampa z 1,0 mL odczynnika roboczego MDA i inkubować w łaźni wodnej o temperaturze 95°C przez 40 min. Schłodzić i odwirować mieszaninę. Przenieść około 250 µL nadsączu na mikropłytkę i zmierzyć absorbancję przy 532 nm.
- W testach ELISA na cytokiny odczytać absorbancję przy długości fali określonej w instrukcji zestawu, zazwyczaj 450 nm, stosując korekcję długością fali referencyjnej, jeśli jest dostępna.
- Wygenerować krzywą wzorcową przy użyciu odpowiedniego modelu, np. regresji logistycznej czteroparametrowej. Znormalizować każdy pomiar biomarkera do całkowitej zawartości białka.
- Stężenia cytokin podać w pg/mg białka, aktywność enzymów przeciwutleniających w U/mg białka, a MDA w nmol/mg białka, o ile jest to zgodne z wybranym zestawem.
7. Analiza danych i kontrola jakości
- Wyznacz czas eksploracji skierowany na znany obiekt (Tznany) oraz nowego obiektu (Tnowy) podczas fazy testu NOR.
- Oblicz wskaźnik różnicujący (DI) w następujący sposób:
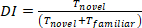 .
UWAGA: Wartość DI powyżej 0,5 wskazuje na preferencję nowego obiektu. - Wyklucz zwierzę z analizy NOR, jeżeli całkowity czas eksploracji obiektów (Tnowy + Tznajomy) wynosi mniej niż 10 s. Kryterium to należy zastosować przed analizą na poziomie grupy i zgłosić wszystkie przypadki wykluczenia.
- Oceń normalność rozkładu dla każdej grupy za pomocą testu Shapiro-Wilka oraz jednorodność wariancji za pomocą testu Levene’a. Dla każdej grupy oceń DI w stosunku do poziomu przypadkowego 0,5, stosując obustronny jednopróbkowy test t; jeśli założenie o normalności rozkładu nie zostanie spełnione, zastosuj zamiast niego jednopróbkowy test znaków Wilcoxona w stosunku do wartości 0,5.
- Przyjmij poziom istotności alfa wynoszący 0,05 dla wszystkich testów statystycznych, chyba że określono inaczej.
- Porównaj DI pomiędzy niezależnymi grupami NSD i SD, stosując dwustronny nieparzysty test t w przypadku spełnienia założeń o normalności i jednorodności wariancji. W przeciwnym razie zastosuj test U Manna–Whitneya.
- Przeanalizuj czas eksploracji obiektów znanych w porównaniu do nowych, stosując dwuczynnikową analizę wariancji z powtarzanymi pomiarami, przyjmując Grupę oraz Typ Obiektu jako czynniki. Wykonaj post hoc porównania parzyste z poprawką Sidaka oraz podaj 95-procentowe przedziały ufności dla wszystkich szacunków porównań między grupami.
- Porównaj każdy biomarker hipokampa pomiędzy niezależnymi grupami NSD i SD, stosując dwustronny nieparzysty test t w przypadku spełnienia założeń o normalności rozkładu i jednorodności wariancji. W przeciwnym razie zastosuj test U Manna–Whitneya.
- Podczas oceny wielu biomarkerów z tej samej kohorty należy kontrolować poziom błędnych odkryć (FDR) dla całego panelu biomarkerów, stosując procedurę Benjamini-Hochberga. Należy raportować zarówno nominalne, jak i skorygowane pod kątem FDR wartości p.
- Przeprowadzić analizę mocy a priori przy użyciu programu G*Power w wersji 3.1 dla dwustronnego porównania prób niezależnych, przyjmując indeks dyskryminacji NOR jako główny punkt końcowy. Oczekiwaną wielkość efektu oprzeć na opublikowanych wcześniej badaniach wykazujących wyraźne upośledzenie preferencji nowych obiektów po deprywacji snu następującej po uczeniu się.
- Przeprowadzić analizę mocy a priori, wykorzystując ustandaryzowany poziom efektu według Cohena. d = 1,35, dwustronny poziom istotności alfa wynoszący 0,05, moc testu 80% oraz stosunek alokacji 1:1. Parametry te pozwalają obliczyć minimalną wielkość próby wynoszącą 10 zwierząt na grupę.
UWAGA: Wielkość efektu oszacowano na podstawie wcześniej opublikowanych danych dotyczących rozpoznawania obiektów9Palchykova i wsp. zgłosili istotny efekt grupowy w czasie eksploracji nowego obiektu podczas fazy testowej (F(1,16) = 8.26, p < 0,007) dla myszy poddanych deprywacji snu bezpośrednio po treningu w porównaniu z grupą kontrolną o odpowiadającym czasie badania (n = 9 na grupę), co odpowiada wskaźnikowi Cohena d ≈ 1.36. Znormalizowana wielkość efektu wynosząca d W związku z tym do a priori analizy mocy przyjęto wartość = 1,35. - Zwiększyć planowaną wielkość próby o 20% do 12 zwierząt na grupę (łącznie 24 zwierzęta), aby uwzględnić z góry określone wykluczenia behawioralne lub techniczne. Zdefiniować z góry całkowity czas eksploracji obiektów. <10 s podczas testu NOR, wykluczenia ze względu na dobrostan zwierząt, nieużyteczne nagrania wideo oraz błędy techniczne analiz tkanek/próbek jako kryteria wykluczenia.
- Nie należy wykluczać zwierząt na podstawie kierunku lub wielkości zaobserwowanego efektu terapeutycznego.
- Analizy statystyczne należy przeprowadzić przy użyciu języka Python w wersji 3.12, biblioteki SciPy w wersji 1.17 do weryfikacji hipotez i obliczeń wielkości efektu oraz biblioteki statsmodels w wersji 0.14 do korekty współczynnika fałszywych odkryć według metody Benjamini-Hochberga.
- Podczas stosowania niniejszego protokołu w celu wygenerowania formalnego zbioru danych należy podać wielkości efektu (np. d Cohena) d (do porównań grupowych) wraz z wartościami p dla wszystkich testów statystycznych określonych w krokach 7.4–7.9.
Wyniki
Prawidłowa implementacja niniejszego protokołu powinna przynieść spójny wzorzec wyników behawioralno-molekularnych, nie wymagający interpretacji pojedynczego odczytu w izolacji. Pełna sekwencja eksperymentalna została przedstawiona na Rysunku 1, a aparatura NOR oraz projekt eksperymentalny pokazano na Rysunku 2. W grupie NSD myszy powinny wykazać wyraźną preferencję do nowego obiektu, co odzwierciedla wartość DI powyżej poziomu przypadku 0,5. Myszy poddane protokołowi GH 5 h po treningu powinny wykazać osłabioną preferencję do nowego obiektu i niższy DI niż kontrole NSD. Całkowita eksploracja obiektów powinna pozostać porównywalna między grupami; ogólny spadek eksploracji sugerowałby zakłócenia motoryczne, lękowe lub proceduralne, a nie selektywny deficyt pamięci rozpoznawczej. W obecnej kohorcie (NSD, n = 12; SD, n = 12, z czego jedno zwierzę zostało wykluczone zgodnie z predefiniowanym progiem całkowitej eksploracji w kroku 7.3, co pozostawiło n = 11 do analizy NOR; wykluczenie to zastosowano spójnie zarówno w analizach indeksu dyskryminacji, jak i całkowitego czasu eksploracji opisanych poniżej), myszy NSD wykazały średni DI wynoszący 0,70 ± 0,05 (średnia ± SD), co jest wartością istotnie powyżej poziomu przypadku 0,5 (test t dla jednej próby, t(11) = 15,21, p < 0,0001), podczas gdy myszy SD wykazały średni DI wynoszący 0,51 ± 0,05, co nie różniło się istotnie od poziomu przypadku (t(10) = 0,49, p = 0,638). DI różnił się istotnie między grupami (test t dla prób niezależnych, t(21) = 9,28, p < 0,0001; d Cohen'a = 3,87; różnica średnich = 0,19, 95% CI [0,15, 0,23]) (Rysunek 3A). Całkowity czas eksploracji nie różnił się istotnie między grupami (NSD: 33,5 ± 8,7 s; SD: 29,9 ± 6,2 s; t(21) = 1,13, p = 0,272) (Rysunek 3B), co jest zgodne z selektywnym efektem w zakresie pamięci rozpoznawczej, a nie z ogólnym spadkiem zachowań eksploracyjnych.
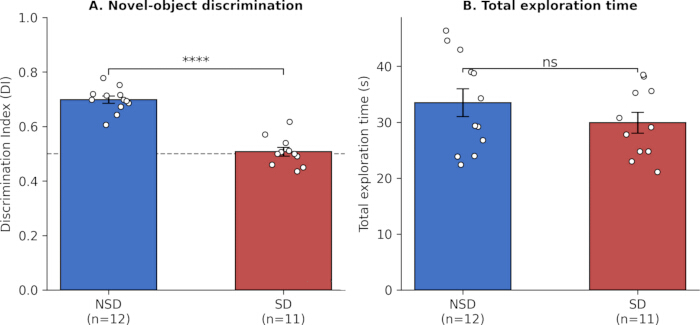
Rysunek 3. Wyniki testu rozpoznawania nowego obiektu. (A) Indeks dyskryminacji (DI) dla grup NSD (n = 12) i SD (n = 11; jedno zwierzę zostało wykluczone zgodnie z wcześniej określonym progiem całkowitego czasu eksploracji). Linia przerywana oznacza poziom szansy 0.5. (B) Całkowity czas eksploracji obiektów podczas fazy testowej dla grup NSD (n = 12) i SD (n = 11; to samo wykluczenie co w panelu A). Słupki przedstawiają średnią ± SEM; otwarte okręgi przedstawiają poszczególne zwierzęta. ****p < 0.0001; ns, brak istotności (dwustronny nieparowany test t). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dziennik interwencji (Tabela 1) powinien wykazać, że stan GH utrzymywano za pomocą łagodnych, eskalujących interwencji sensorycznych, a nie poprzez unieruchomienie lub wymuszony ruch. Znaczne różnice w godzinnej liczbie interwencji między kohortami powinny skłonić do przeglądu warunków w klatkach, spójności obserwatorów oraz praktyk obchodzenia się ze zwierzętami przed interpretacją różnic behawioralnych. W 12 kohortach zarejestrowanych w niniejszym badaniu godzinna liczba interwencji w ciągu 5-godzinnego okna GH wahała się od 1 do 6 na godzinę, polegając głównie na opukiwaniu klatki i niepokojeniu ściółki, podczas gdy interwencje z użyciem miękkiego pędzla i nowych obiektów były stosowane rzadziej; żadna klatka nie wymagała fizycznego unieruchomienia ani wymuszonego ruchu i nie zaobserwowano żadnych odchyleń w zakresie dobrostanu.
Pomiary biochemiczne pobrane od tych samych zwierząt powinny zapewnić kontekst molekularny dla fenotypu behawioralnego. Oczekuje się, że skuteczny model SD wykaże skoordynowany wzorzec wyższego obciążenia hipokampa cytokinami prozapalnymi, zmniejszonej aktywności enzymów przeciwutleniających oraz zwiększonej liczby markerów peroksydacji lipidów w stosunku do dopasowanych kontroli NSD. Powiązanie każdej próbki tkanki z odpowiadającym jej zapisem NOR umożliwia ocenę zgodności behawioralnej i molekularnej na poziomie pojedynczego zwierzęcia, unikając jednocześnie zmienności między partiami, która występuje przy stosowaniu oddzielnych kohort do badań behawioralnych i biochemicznych. W obecnej kohorcie (NSD, n = 12; SD, n = 12) wszystkie sześć biomarkerów hipokampa różniło się istotnie między grupami w oczekiwanym kierunku i wszystkie pozostały istotne po korekcie FDR według metody Benjamini–Hochberga dla panelu sześciu markerów: IL-1β (NSD 43,4 ± 7,5 vs. SD 58,6 ± 5,3 pg/mg białka; t(22) = −5,73, wartość nominalna p < 0,0001, po korekcie FDR p < 0.0001, d = −2,34), IL-6 (57,8 ± 8,1 vs 71,8 ± 7,4 pg/mg; Proszę podać tekst źródłowy do tłumaczenia.(22) = −4,42, nominalny p = 0,0002, po korekcie FDR p = 0.0002, d = −1,81), TNF-α (40.5 ± 7,8 vs. 55,1 ± 7,8 pg/mg; t(22) = −4,60, nominalnie p = 0,0001, po korekcie FDR p = 0.0002, d = −1,88), SOD (18,0 ± 2,0 vs. 14,0 ± 1,8 U/mg; t(22) = 5,16, wartość nominalna p < 0,0001, po korekcie FDR p < 0.0001, d = 2,11), GPx (13,2 ± 0,9 vs. 10,8 ± 1,4 U/mg; Ponieważ nie dostarczono tekstu źródłowego do przetłumaczenia, proszę o przesłanie materiału, który ma zostać przełożony na język polski.(22) = 4,92, nominalne p < 0,0001, po korekcie FDR p < 0.0001, d = 2,01) oraz MDA (3,5 ± 0,3 vs 4,9 ± 0,8 nmol/mg; t(22) = −5,59, nominalne p < 0,0001, skorygowane o FDR p < 0.0001, d = −2,28). Dane te przedstawiono w Rycina 4Poszczególne punkty danych przedstawione w Rysunek 3 i Rycina 4 stanowią one rzeczywiste pomiary eksperymentalne uzyskane w tej kohorcie, a wszystkie raportowane wartości średnie, wielkości efektu, wartości p oraz przedziały ufności zostały obliczone bezpośrednio z tych samych danych bazowych.
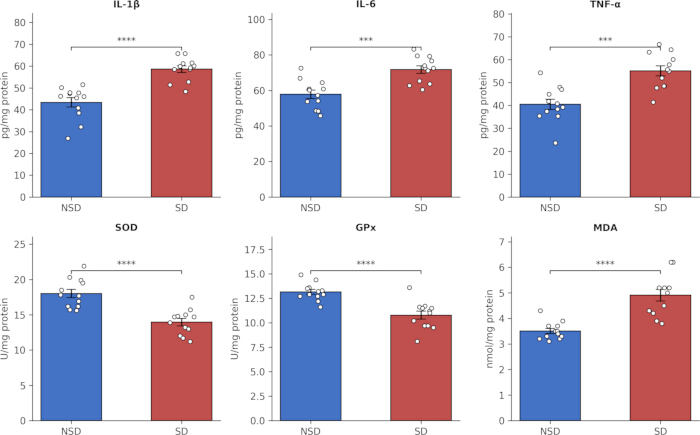
Rysunek 4. Biomarkery hipokampa u myszy NSD w porównaniu z myszami SD. Poziomy IL-1β, IL-6 i TNF-α (cytokin prozapalnych), SOD i GPx (enzymów przeciwutleniających) oraz MDA (markeru peroksydacji lipidów) w hipokampie myszy NSD (n = 12) i SD (n = 12). Słupki przedstawiają średnią ± SEM; puste kółka oznaczają poszczególne zwierzęta. Markery istotności odzwierciedlają wartości p skorygowane metodą FDR Benjamini–Hochberg dla panelu sześciu markerów. ***p < 0,001 i ****p < 0,0001 po korekcie FDR (dwustronne nieparzyste testy t). Aby wyświetlić ten rysunek w większym rozmiarze, kliknij tutaj.
Jeśli myszy NSD nie wykazują preferencji do nowego obiektu, jeśli całkowity czas eksploracji spadnie poniżej zdefiniowanego progu lub jeśli wariancja biomarkerów jest nieoczekiwanie duża, należy przeprowadzić analizę problemów w zakresie habituacji, doboru obiektów, spójności interwencji, identyfikacji próbek oraz czasu przetwarzania tkanek przed powtórzeniem badania na kohorcie, zgodnie z podsumowaniem w Tabeli 2. Wyniki te reprezentują nieoptymalne rezultaty eksperymentalne, które wymagają rozwiązania problemów przed ich interpretacją. W obecnej kohorcie jedno zwierzę SD (M19) zostało wykluczone z analizy NOR zgodnie z wcześniej określonym progiem całkowitej eksploracji (8,7 s; Krok 7.3), co ilustruje rodzaj nieoptymalnego wyniku uwzględniony w tym kryterium; żadne zwierzę NSD nie wykazało braku preferencji do nowego obiektu, a żadna kohorta nie wykazała nieoczekiwanie dużej wariancji biomarkerów, która wymagałaby powtórzenia kohorty w tym zbiorze danych.
| Problem | Możliwa przyczyna | Roztwór |
| Niska ogólna eksploracja w teście rozpoznawania nowych obiektów (NOR) | Niewystarczająca habituacja, wysoki poziom lęku lub nadmierne zakłócenia środowiskowe | Wydłużyć codzienną obsługę zwierząt; potwierdzić, że pomieszczenie testowe jest ciche i słabo oświetlone; zweryfikować habituację do areny przed rozpoczęciem treningu. |
| Brak preferencji do nowego obiektu u kontroli NSD | Obiekty różnią się wrodzoną preferencją lub nie są wystarczająco rozróżnialne | Przeprowadź wstępną selekcję obiektów na naiwnych zwierzętach; użyj obiektów o wyraźnie różnych teksturach/kształtach, lecz o zbliżonej wielkości i dostępności. |
| Znaczna zmienność liczby interwencji GH | Niespójne progi obserwatora lub warunki w klatkach | Przeszkol obserwatorów w zakresie stosowania tych samych kryteriów czuwania; stosuj ten sam dziennik interwencji; ustandaryzuj ściółkę, wzbogacenie klatek oraz warunki środowiskowe. |
| Wysoka zmienność pomiarów biomarkerów | Opóźniona sekcja, niespójna tożsamość próbek lub degradacja próbek | Zachować powiązanie między identyfikatorami zachowań a próbkami; ustandaryzować czas sekcji; bezzwłocznie zamrozić w ciekłym azocie; przechowywać próbki w lodzie podczas homogenizacji. |
| Myszy SD wykazują wyraźne oznaki stresu | Zbyt intensywne obchodzenie się z próbkami | Stosować wyłącznie łagodne interwencje sensoryczne; w przypadku zaobserwowania stresu należy przerwać procedurę i postępować zgodnie z zatwierdzonymi procedurami dobrostanu zwierząt. |
Tabela 2: Rozwiązywanie problemów. Typowe problemy występujące podczas procedury NOR, delikatnego pozbawiania snu oraz analizy biomarkerów hipokampa, wraz z możliwymi przyczynami i zalecanymi działaniami korygującymi.
Dyskusja
Niniejszy artykuł przedstawia szybkie i powtarzalne ramy badawcze do analizy deficytów pamięci rozpoznawczej oraz molekularnych zmian w hipokampie indukowanych ostrą deprywacją snu. Poprzez zastosowanie 5 h delikatnej manipulacji bezpośrednio po zestandaryzowanej, 10-minutowej fazie uczenia się, procedura ta celuje w określone okno konsolidacji po uczeniu i została zaprojektowana w celu zmniejszenia obciążenia fizycznego związanego z modelami przedłużonej deprywacji lub procedurami opartymi na wymuszonym ruchu4,5. Niemniej jednak, niniejsza publikacja nie obejmuje bezpośrednich pomiarów hormonów stresu w celu potwierdzenia niższej reakcji stresowej fizjologicznie, co omówiono poniżej w sekcji dotyczącej ograniczeń metody.
Najbardziej krytycznymi czynnikami technicznymi są habituacja, konsekwentny dobór obiektów, stały czas 5 h przerwy retencyjnej oraz ciągłe, lecz nieawersyjne monitorowanie podczas GH. Ponieważ NOR opiera się na spontanicznej eksploracji, resztkowy lęk lub niewystarczająca habituacja z areną mogą hamować eksplorację obiektów i maskować efekty związane z pamięcią8. Precyzyjnie określone kryterium wykluczenia czasu eksploracji oraz dziennik interwencji stanowią praktyczne kontrole jakości, które pomagają odróżnić nieudany test behawioralny od rzeczywistego fenotypu pamięciowego. W sytuacjach, gdy ogólna eksploracja jest niska, preferencja nowego obiektu nie występuje w grupach kontrolnych NSD, liczba interwencji GH znacząco się różni, pomiary biomarkerów wykazują wysoką zmienność lub myszy SD wykazują wyraźny stres, badacze powinni zapoznać się z odpowiednimi procedurami rozwiązywania problemów w Tabeli 2 przed powtórzeniem lub interpretacją eksperymentu.
Zamiast stanowić zwykłe zestawienie wcześniej opracowanych technik, przyrostowy wkład niniejszego protokołu polega na czterech konkretnych elementach operacyjnych, których celem jest zapewnienie powtarzalności, a nie dostępności technicznej. Po pierwsze, obowiązkowy dziennik interwencji (Protokół, krok 3 oraz Tabela 1) wprowadza mierzalny, porównywalny zapis służący do standaryzacji intensywności GH w różnych kohortach i badaniach. Sama technika ma ugruntowaną historię, natomiast obecny protokół kładzie nacisk na operacyjną standaryzację jej wdrażania. Jest to zgodne z uznaną historią GH jako techniki całkowitej deprywacji snu oraz wcześniej odnotowanym brakiem standaryzacji jej stosowania w badaniach6. Po drugie, protokół wymusza zastosowanie projektu z jedną kohortą, w którym punkty końcowe behawioralne i molekularne są zbierane od identycznych, indywidualnie śledzonych zwierząt w ramach jednego, 10-dniowego cyklu; taki projekt ma na celu zmniejszenie zmienności związanej z gromadzeniem danych behawioralnych i biochemicznych w oddzielnych kohortach. Po trzecie, protokół przypisuje okno treningowe i deprywacyjne do określonego punktu zakotwiczenia okołodobowego (ZT1, Protokół, krok 2) i wymaga, aby kohorty NSD i SD były utrzymywane w identycznych warunkach fazy świetlnej (Protokół, krok 3), kontrolując tym samym czas okołodobowy w obrębie procesu. Po czwarte, protokół określa a priori kryteria kontroli jakości i analizy, w tym minimalny próg czasu eksploracji (Protokół, krok 7), przejrzyste raportowanie wykluczeń, prospektywne planowanie mocy statystycznej, testowanie DI względem poziomu przypadkowego 0,5, weryfikację założeń, korektę dla wielokrotnych porównań biomarkerów oraz raportowanie wielkości efektu. Razem elementy te przekształcają indywidualnie opracowane metody w jawny, przenaszalny schemat postępowania, który proponuje się jako kandydujące ramy referencyjne, względem których poszczególne laboratoria mogą porównać własne wdrożenia, w oczekiwaniu na niezależne przyjęcie i replikację, a nie jako raport z konkretnego odkrycia biologicznego.
Przebieg pracy posiada kilka ograniczeń. GH jest pracochłonne i wymaga ciągłej uwagi eksperymentatora, co ogranicza przepustowość. Ponadto GH podtrzymuje stan czuwania, ale samo w sobie nie pozwala na ilościowe określenie architektury snu. Przyszłe zastosowania mogą obejmować pilotażową walidację EEG/EMG w celu udokumentowania stanów czujności i weryfikacji stopnia deprywacji snu wywołanej procedurą GH przed zastosowaniem tego schematu u pełnej kohorty eksperymentalnej. Przyszłe zastosowania mogą również uwzględniać pomiary kortykosteronu w celu oceny efektów interwencji związanych ze stresem. Pomiary te nie są częścią obecnego protokołu, a zatem nie powinny być interpretowane jako walidacja przeprowadzona w niniejszym badaniu. NOR jest czuły na pamięć rozpoznawczą, ale nie ocenia kompleksowo nawigacji przestrzennej ani pamięci roboczej; w przypadku potrzeby uzyskania szerszego profilu poznawczego można dodać uzupełniające testy, takie jak labirynt Y, labirynt Barnesa lub inne zadania jednorazowe. Zmodyfikowana metoda wielu platform stanowi alternatywne podejście do eksperymentalnego indukowania deprywacji snu i była stosowana do ilościowego określania utraty oraz odzyskiwania snu4; w przeciwieństwie do niej, obecny schemat GH kładzie nacisk na łagodną interwencję sensoryczną bez wymuszania lokomocji. Jednakże, ponieważ w tym protokole nie mierzono bezpośrednio fizjologicznych markerów stresu, nie można tutaj wyciągnąć wniosku, że GH wywołuje niższą fizjologiczną odpowiedź stresową.
Metodę tę należy zatem postrzegać raczej jako zestandaryzowaną platformę wejściową niż kompletny model wszystkich cognitive consequences deprywacji snu. Jej wartość polega na wyraźnym powiązaniu kontrolowanej interwencji GH po uczeniu, odczytu behawioralnego zaprojektowanego tak, aby zminimalizować manipulacje fizyczne w porównaniu z paradygmatami wymuszonej lokomocji, pobraniem hipokampa od tych samych zwierząt oraz przejrzystej kontroli jakości. NOR stanowi dobrze ugruntowane podejście jednopróbowe do oceny pamięci rozpoznawczej7,8, a deprywacja snu była wcześniej wiązana z upośledzeniem rozpoznawania obiektów9, zmianami neurozapalnymi w hipokampie10 oraz stresem oksydacyjnym i deficytami pamięci w hipokampie11. Odpowiednio, ten schemat może ułatwić porównania między kohortami i zapewnić praktyczną podstawę dla badań mechanistycznych oraz przesiewowych interwencji mających na celu łagodzenie upośledzenia poznawczego związanego z deprywacją snu; wcześniejsze prace badały również interwencje ukierunkowane na upośledzenie poznawcze i neurozapalenie związane z deprywacją snu12. Zgodnie z tym zakresem, niniejsza publikacja koncentruje się na ustanowieniu i standaryzacji odtwarzalnego przepływu pracy, dostarczając jednocześnie reprezentatywnych danych demonstrujących wydajność protokołu; bardziej kompleksowy zestaw danych i szersza interpretacja biologiczna mogą zostać przedstawione osobno w przyszłych pracach.
Oświadczenia
Autorzy oświadczają, że nie stwierdzono konfliktów interesów.
Podziękowania
Praca ta była wspierana przez Fundusz Kształcenia Młodzieży Szpitala Nanjing Drum Tower, Narodową Fundację Nauk Naturalnych Chin (Grant nr 82502706) oraz Podstawowy Program Badawczy prowincji Jiangsu (Grant nr BK20250258). Podczas przygotowywania i poprawiania tekstu rękopisu wykorzystano narzędzia wspomagane przez AI, w tym do redagowania i dopracowywania treści oraz tworzenia i udoskonalania schematów.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 70% etanol | dowolny dostawca | N/A | Czyszczenie areny i obiektów w teście rozpoznawania nowych obiektów (NOR) |
| Dorosłe samce myszy C57BL/6J (8–12 tygodni) | Zhejiang AILIMO Biotechnology Co., Ltd. | Brak danych | Zwierzęta doświadczalne |
| Zestaw do oznaczania białka metodą BCA | Thermo Fisher Scientific (Pierce) | 23225 | Oznaczanie i normalizacja całkowitej zawartości białka |
| Oprogramowanie do analizy behawioralnej | Noldus Information Technology B.V. | EthoVision XT wersja 17.5 | Punktacja i analiza eksploracji w teście rozpoznawania obiektów (NOR) |
| Wirówka umożliwiająca osiągnięcie 14 000 g × g at 4 °C | Eppendorf | Wirówka 5424 R; Kat. 5404000610 | Klarowanie homogenatów hipokampa |
| Czyste probówki papierowe | Dowolny dostawca | N/A | Interwencja z zastosowaniem delikatnego obchodzenia |
| Kriogeniczne środki ochrony osobistej | Dowolny dostawca | Nie dotyczy | Bezpieczne obchodzenie się z ciekłym azotem |
| Zestaw do oznaczania peroksydazy glutationowej | Abcam | ab102530 | Oznaczanie ilościowe GPx |
| Homogenizator tkanki hipokampa | IKA-Werke GmbH & Co. KG | T 10 basic ULTRA-TURRAX; Kat. 0003737000 | Homogenizacja tkanki hipokampa w buforze lizującym |
| ciekły azot | Dowolny dostawca | Brak danych | Błyskawiczne zamrażanie wypreparowanych hipokampów |
| Zestaw do oznaczania MDA | Sigma-Aldrich | MAK085 | Oznaczanie ilościowe MDA |
| Czytnik płytek mikrotitracyjnych | Agilent Technologies / BioTek | Spektrofotometr do mikropłytek BioTek Epoch 2 | Pomiar absorbancji przy długościach fal określonych w zestawie |
| Mikroszpatułki | Dowolny dostawca | N/A | Wyobcowanie hipokampa; użyte schłodzone |
| Mysia IL-1β Zestaw ELISA | R&Systemy D | MLB00C | IL-1β ilościowe oznaczenie |
| Zestaw ELISA do oznaczania IL-6 u myszy | R&Systemy D | M6000B | Oznaczanie ilościowe IL-6 |
| Mysi TNF-α Zestaw ELISA | R&Systemy D | MTA00B | TNF-α ilościowe oznaczenie |
| Zestawy obiektów A/A′ oraz B | Dowolny dostawca | N/D | Fazy zapoznawcze i testowe NOR |
| Nieprzezroczysta arena NOR (40 cm × 40 cm × 40 cm) | Dowolny dostawca | Nie dotyczy | Badania behawioralne |
| System nadzorczego nagrywania wideo | Basler AG | acA1300-60gm | Nagranie wideo sesji zapoznawczej i testowej w badaniu rozpoznawania nowych obiektów (NOR) |
| Koktajl inhibitorów proteaz i fosfataz | Thermo Fisher Scientific (Thermo Scientific) | 78440 | Dodano do buforu lizującego w 1× stężenie robocze (10 µL/mL z 100× roztwór zapasowy) |
| Bufor do lizy RIPA | Thermo Fisher Scientific | 89900 | Homogenizacja tkanki hipokampa |
| Probówki do próbek odpowiednie do przechowywania kriogenicznego | Thermo Fisher Scientific (Nunc) | Nunc CryoTube, 1,8 ml; Kat. 375418 | Utrzymanie specyficznych dla zwierząt identyfikatorów próbek oraz przechowywanie wypreparowanej tkanki hipokampa |
| Miękki pędzel | Dowolny dostawca | N/A | Interwencja polegająca na delikatnym obchodzeniu się |
| Zestaw do oznaczania aktywności SOD | Sigma-Aldrich | 19160 | Oznaczanie ilościowe SOD |
| Oprogramowanie do analizy statystycznej i mocy testów | G*Power; Python Software Foundation | G*Power wersja 3.1; Python wersja 3.12 (SciPy 1.17; statsmodels 0.14) | Analiza mocy a priori oraz analizy statystyczne opisane w sekcji 7 protokołu |
| Standardowa karma dla gryzoni | Jiangsu Xietong Pharmaceutical Bio-engineering Co., Ltd. | Dieta utrzymująca dla napromieniowanych szczurów/myszy; XTI01WC-010 | Karmienie zwierząt ad libitum |
| −80 °C zamrażarka | Haier Biomedical | DW-86L626 | Długoterminowe przechowywanie błyskawicznie zamrożonej tkanki hipokampa |
Bibliografia
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.