W niniejszym badaniu przeanalizowano poziomy ekspresji miR-3619-5p w surowicy pacjentów z cukrzycą typu 2 oraz zbadano rolę regulacyjną tej cząsteczki w trzustce β-funkcję komórek. Poziom miR-3619-5p jest obniżony w przypadku T2DM i może on brać udział w regulacji trzustkowej βfunkcja komórki poprzez celowanie w MTA3.
Artykuł badawczy
Znaczenie kliniczne ekspresji miR-3619-5p u pacjentów z cukrzycą typu 2 oraz jej wpływ na regulację proliferacji komórek β trzustki
W tym artykule
Podsumowanie
Streszczenie
Główną cechą patologiczną cukrzycy typu 2 (T2DM) jest niewydolność komórek β trzustki; dlatego identyfikacja skutecznych krążących biomarkerów i celów molekularnych regulujących homeostazę komórek β trzustki ma istotne znaczenie praktyczne. Jako kluczowe cząsteczki regulacyjne ekspresji genów, miRNA odgrywają ważną rolę w proliferacji, apoptozie i wydzielaniu insuliny przez komórki β trzustki. Celem niniejszego badania jest analiza wzorców ekspresji i wartości klinicznej miR-3619-5p w surowicy osób z T2DM oraz wyjaśnienie jego roli regulacyjnej w proliferacji komórek β trzustki. Do wykrywania ekspresji miR-3619-5p oraz MTA3 wykorzystano metodę RT-qPCR. Do oceny wydajności diagnostycznej zastosowano krzywe ROC. W celu walidacji zależności cel-ligand wykorzystano bioinformatykę oraz testy dual-luciferase. Proliferację komórek mierzono za pomocą testu CCK-8, natomiast apoptozę badano metodą cytometrii przepływowej. Poziomy wydzielania insuliny mierzono za pomocą testu ELISA. Wyniki wykazały, że ekspresja miR-3619-5p i MTA3 była obniżona u pacjentów z T2DM oraz w komórkach β trzustki. miR-3619-5p może być biomarkerem w diagnostyce T2DM; jego nadekspresja promuje proliferację komórek, hamuje apoptozę i zwiększa wydzielanie insuliny. miR-3619-5p jest celem i reguluje MTA3, a oba te elementy są znacząco skorelowane dodatnio. Mimik miR-3619-5p może odwrócić uszkodzenia funkcji komórek β trzustki spowodowane przez si-MTA3. Podsumowując, poziom miR-3619-5p jest obniżony w T2DM i posiada on wartość diagnostyczną. miR-3619-5p może uczestniczyć w regulacji funkcji komórek β trzustki poprzez celowanie w MTA3.
Wprowadzenie
Przewlekła zaburzenie metaboliczne, jakim jest cukrzyca typu 2 (T2DM), objawia się głównie insulinoopornością połączoną z postępującą utratą funkcji wydzielniczej insuliny i odpowiada za ponad 80% wszystkich przypadków cukrzycy1. Jej patogeneza jest złożona i obejmuje kombinację czynników genetycznych i środowiskowych, a także nieprawidłowości w regulacji komórkowej i molekularnej2,3. Biorąc pod uwagę, że komórki β trzustki są głównymi komórkami odpowiedzialnymi za wydzielanie insuliny, nieprawidłowy spadek ich zdolności proliferacyjnej jest kluczową przyczyną niewystarczającego wydzielania insuliny w T2DM4. Obecnie diagnoza kliniczna T2DM opiera się głównie na tradycyjnych wskaźnikach, takich jak poziom glukozy we krwi i hemoglobina glikowana (HbA1c); jednak ich czułość w zakresie wczesnego przesiewu i przewidywania progresji choroby jest ograniczona5. Istnieje pilna potrzeba zidentyfikowania czułych, specyficznych biomarkerów oraz kluczowych celów regulacyjnych, aby opracować nowe strategie precyzyjnej diagnostyki i leczenia T2DM.
Pod wpływem glukotoksyczności wywołanej przedłużoną hiperglikemią proliferacja komórek β trzustki jest ograniczona, a apoptoza wzrasta, co prowadzi do stopniowej utraty zależnego od glukozy wydzielania insuliny; proces ten jest kluczowym czynnikiem napędzającym dalszy postęp choroby6,7. MikroRNA (miRNA) są zaangażowane w różnorodne procesy fizjologiczne w komórkach8 i wywierają kluczowy wpływ regulacyjny na procesy fizjologiczne, w tym na proliferację komórek wysepek trzustkowych, apoptozę oraz wydzielanie insuliny9,10. Liczne badania wykazały, że różne miRNA są nieprawidłowo eksponowane w cukrzycy typu 2 (T2DM) i są ściśle powiązane z patogenezą tej choroby11,12,13. miR-3619-5p bierze udział w procesach biologicznych, w tym w proliferacji i apoptozie komórek, a obecne badania nad nim koncentrują się głównie na dziedzinie onkologii14,15. Nieprawidłową ekspresję miR-3619-5p zaobserwowano w nowotworach złośliwych, w tym w raku płaskonabłonkowym skóry, raku płuca, raku jelita grubego i raku żołądka, gdzie reguluje on geny docelowe, wpływając na proliferację, przerzutowanie i apoptozę komórek nowotworowych16,17,18,19. Niemniej jednak nadal istnieje wyraźna luka w badaniach dotyczących klinicznej charakterystyki ekspresji, znaczenia klinicznego oraz mechanizmów regulacji funkcji trzustki przez miR-3619-5p w T2DM.
Jako główny członek rodziny MTA, MTA3 pośredniczy w oddziaływaniach białko-białko oraz regulacji transkrypcji genów i bierze szeroki udział w kluczowych procesach fizjologicznych, w tym w proliferacji komórek, apoptozie i metabolizmie20. Obecne badania nad MTA3 koncentrowały się głównie na onkologii21,22,23, przy ograniczonym udziale badań nad jego rolą w chorobach metabolicznych, w szczególności w T2DM. Niektóre badania wykazały, że MTA3, jako gen powiązany z cukrzycą, uczestniczy w regulacji włóknienia wątroby indukowanego przez hiperglikemię24. Sugeruje to, że MTA3 może być zaangażowany w progresję T2DM; jednak to, czy jest on regulowany przez miR-3619-5p w kontekście T2DM, pozostaje do potwierdzenia.
Podsumowując, dotychczasowe badania nad miR-3619-5p ograniczały się głównie do modeli nowotworowych i zapalnych; jego profil ekspresji klinicznej w T2DM oraz rola w homeostazie komórek β trzustki i zaburzeniach metabolizmu glukozy pozostają nieznane. W związku z tym celem niniejszej pracy jest zweryfikowanie zależności docelowej między miR-3619-5p a MTA3 poprzez ocenę ekspresji i znaczenia klinicznego miR-3619-5p w surowicy pacjentów z T2DM oraz zbadanie jego roli regulacyjnej w proliferacji komórek β trzustki, co dostarczy nowej podstawy teoretycznej do badań nad patogenezą T2DM oraz do diagnostyki i leczenia klinicznego.
Protokół
Badanie to zostało zatwierdzone przez Komisję Etyki Medycznej TongzhouBay People's Hospital (numer zatwierdzenia 2024122001). Procedury zastosowane w tym badaniu są zgodne z zasadami Deklaracji Helsińskiej. Od wszystkich uczestników włączonych do badania uzyskano świadomą zgodę. Od każdej osoby, której dane zostały zawarte w badaniu, uzyskano zgodę na publikację.
Badani
W niniejszym badaniu retrospektywnie wybrano 102 pacjentów z T2DM zdiagnozowanych w naszym szpitalu między styczniem 2022 a czerwcem 2023 roku. Kryteria kwalifikacji obejmowały rozpoznanie T2DM na podstawie poziomu glukozy we krwi na czczo ≥7.0 mmol/L oraz poziomu glukozy we krwi 2 h po posiłku ≥11.1 mmol/L, brak leczenia insuliną lub przeciwcukrzycowymi lekami nowej generacji w ciągu ostatnich 3 miesięcy, brak ciężkich powikłań dotyczących serca, wątroby, nerek lub innych narządów, brak w wywiadzie nowotworów złośliwych, chorób autoimmunologicznych lub chorób zakaźnych oraz posiadanie pełnej dokumentacji klinicznej. Z badania wykluczono pacjentów z cukrzycą typu 1 lub innymi specyficznymi typami cukrzycy, osoby w stanie stresu spowodowanego ciężką infekcją, urazem, zabiegiem chirurgicznym lub innymi przyczynami, osoby stosujące glikokortykosteroidy, leki immunosupresyjne lub podobne preparaty w ciągu ostatnich 3 miesięcy oraz kobiety w ciąży lub karmiące piersią. Włączono również grupę kontrolną składającą się z 80 osób przechodzących rutynowe badania kontrolne w naszym szpitalu w tym samym okresie.
Pobieranie próbek
Wszyscy uczestnicy badania pozostawali na czczo przez co najmniej 8–12 h; rano pobrano 5 mL krwi żylnej i przeniesiono ją do probówek EP wolnych od RNaz, a następnie odwirowano (3000 × g, 10 min) w celu oddzielenia surowicy i przechowywano w temperaturze -80 °C do późniejszego wykorzystania.
Hodowla i traktowanie komórek
Linię komórek β wysp trzustkowych szczura INS-1 hodowano w medium RPMI 1640 zawierającym 10% FBS i 1% penicyliny-streptomycyny. Komórki INS-1 hodowano w medium zawierającym 25 mM glukozy w celu ustanowienia modelu uszkodzeń komórkowych indukowanych wysokim stężeniem glukozy (HG)25. W grupie nietraktowanej komórki INS-1 hodowano w medium RPMI 1640 (zawierającym 11,1 mM glukozy).
Transfekcję przeprowadzono przy użyciu zestawu do transfekcji z mimikami miR-3619-5p, kontrolą miRNA (miR-NC), si-MTA3 oraz kontrolą pustą (si-NC). Mimik miR-3619-5p, inhibitor miR-3619-5p, siRNA oraz odpowiadające im kontrole negatywne zostały zakupione w firmie RiboBio. Stężenie mimiku miRNA: 50 nM; stężenie inhibitora miRNA: 100 nM; stężenie siRNA: 50 nM. Dalsze eksperymenty przeprowadzono 48 h po transfekcji. Odpowiednie sekwencje przedstawiono w Tabeli uzupełniającej 1.
Ilościowa reakcja łańcuchowa polimerazy z odwrotną transkrypcją (RT-qPCR)
Do ekstrakcji całkowitego RNA z surowicy wykorzystano odczynnik TRIzol, natomiast do ekstrakcji całkowitego RNA z komórek użyto zestawu miRNeasy Mini Kit. W celu wykrycia miR-3619-5p przeprowadzono odwrotną transkrypcję z zastosowaniem zestawu do odwrotnej transkrypcji; po syntezie cDNA użyto zestawu do ilościowego oznaczania miRNA, przyjmując U6 jako kontrolę wewnętrzną. W celu wykrycia MTA3 przeprowadzono odwrotną transkrypcję do cDNA przy użyciu zestawu do odwrotnej transkrypcji mRNA, a następnie wykonano RT-qPCR z zastosowaniem zestawu do ilościowego oznaczania mRNA, przyjmując GAPDH jako kontrolę wewnętrzną. Zmiany w ekspresji miR-3619-5p i MTA3 analizowano metodą 2-ΔΔCt. Sekwencje starterów przedstawiono w Tabeli uzupełniającej 1.
Podwójny test reporterowy lucyferazy (DLR)
Regiony 3'-UTR typu dzikiego (WT) i zmutowane (MUT) MTA3 zawierające miejsce wiązania miR-3619-5p sklonowano do wektora pmirGLO. Wektor współtransfekowano do komórek 293T wraz z mimikiem miR-3619-5p i inhibitorem miR-3619-5p przy użyciu odczynników do transfekcji. Grupy kontrolne transfekcji obejmowały: grupę z pustym plazmidem reporterowym (Kontrola) oraz grupę z negatywną kontrolą transfekcji miRNA (miR-NC). Po 48 h zmierzono względną aktywność lucyferazy za pomocą podwójnego systemu reporterowego lucyferazy, przyjmując aktywność lucyferazy Renilla jako kontrolę wewnętrzną. Każda grupa obejmuje trzy niezależne powtórzenia biologiczne, a każde powtórzenie biologiczne składa się z trzech powtórzeń technicznych.
Test proliferacji komórek
Przesiać transfekowane komórki do płytki 96-dołkowej. Po inkubacji przez odpowiednio 0 h, 24 h, 48 h i 72 h, dodać 10 μL odczynnika CCK-8 do każdego dołka, inkubować w temperaturze 37 °C przez 2 h, a następnie zmierzyć absorbancję przy 450 nm za pomocą czytnika mikropłytek.
Analiza apoptozy
Przemyć komórki trzykrotnie buforem PBS, a następnie resuspendować je w 200 μL buforu wiążącego zawierającego 10 μL Annexin V-FITC i 5 μL PI. Inkubować przez 15 min w temperaturze pokojowej w ciemności. Dodać 300 μL buforu wiążącego, a następnie niezwłocznie przeanalizować komórki za pomocą cytometru przepływowego w celu obliczenia stopnia apoptozy.
Test immunoenzymatyczny (ELISA)
Transfekowane komórki wysiano do płytki 96-dołkowej i pozostawiono na noc w warunkach głodzenia w temperaturze 37 °C. Pożywkę hodowlaną zastąpiono roztworem zawierającym 25 mM glukozy i inkubowano komórki przez 1 h; następnie zebrano pożywkę z traktowanych komórek INS-1 w celu pomiaru wydzielania insuliny. Komórki INS-1 resuspendowano w zakwaszonym metanolu, poddano sonikacji, a następnie zebrano nadsącz, aby oznaczyć całkowitą zawartość insuliny. Wykorzystano zestaw Rat Insulin ELISA Kit, a analizę przeprowadzono zgodnie z instrukcją producenta. W badaniu wykorzystano dostarczone w zestawie standardy referencyjne do skonstruowania krzywej kalibracyjnej; bezwzględne stężenie insuliny obliczono na podstawie wartości absorbancji próbek, przyjmując jednostkę stężenia μIU/mL. Ostatecznie zdolność wydzielania insuliny oceniono poprzez normalizację poziomów insuliny zmierzonych w pożywce względem całkowitej wewnątrzkomórkowej zawartości insuliny. Dane na wykresach statystycznych przedstawiono jako krotność zmiany (fold change), obliczoną względem grupy kontrolnej.
Western blot
Komórki przetransfekowane z każdej grupy zebrano i dodano bufor lizujący RIPA. Całkowite stężenie białka określono metodą BCA. 50 μg całkowitego białka zmieszano z 5× buforem do ładowania i gotowano przez 10 min. Po elektroforezie w 10% żelu SDS-poliakrylamidowym przeniesiono białka na membranę z polifluorku winylidenu. Membranę blokowano 5% mlekiem odtłuszczonym przez 1 h; następnie dodano przeciwciała pierwszorzędowe MTA3 (1:1000) oraz GAPDH (1:1000) i inkubowano przez noc w temperaturze 4 °C; membranę przemyto buforem TBST, a następnie dodano znakomione HRP przeciwciała wtórne kozie anty-królicze IgG (1:1000) i inkubowano w temperaturze pokojowej przez 1 h; wizualizację przeprowadzono metodą chemiluminescencji ECL.
Analiza statystyczna
Dane ilościowe przedstawiono jako średnia ± odchylenie standardowe. Przed przeprowadzeniem analizy statystycznej wykorzystano test Shapiro-Wilka do weryfikacji normalności rozkładu danych oraz test Levene'a do oceny jednorodności wariancji, aby określić zasadność zastosowania testów parametrycznych. Wyniki tych testów wykazały, że wszystkie dane ilościowe w niniejszym badaniu miały rozkład normalny i spełniały założenie o jednorodności wariancji; w związku z tym do analizy statystycznej zastosowano testy parametryczne. Do analizy danych z dwóch grup wykorzystano test t-Studenta dla prób niezależnych, natomiast do porównań między wieloma grupami zastosowano jednoczynnikową analizę wariancji (ANOVA) z testem post-hoc Tukeya. Wykresy rozrzutu posłużyły do oceny liniowych zależności między zmiennymi. Analizę korelacji Pearsona zastosowano w przypadkach, gdy spełnione zostały założenia normalności i liniowości. Analiza korelacji Pearsona objęła wszystkich 102 uczestników; nie wykluczono żadnych wartości odstających. Grupowanie punktów zaobserwowane na wykresie rozrzutu wynika z nakładania się obserwacji próbek. Wszystkie eksperymenty obejmowały trzy próbki powtórzone, a każdy eksperyment powtórzono trzykrotnie. Wartość p < 0,05 uznano za statystycznie istotną.
Wyniki
Porównanie charakterystyki demograficznej i klinicznych parametrów metabolicznych uczestników badania
Wyniki porównania wykazały, że poziomy FBG i HbA1c były znacznie podwyższone u pacjentów z T2DM (P < 0.001), natomiast w przypadku pozostałych parametrów nie stwierdzono istotnych różnic (P > 0.05) (Tabela 1).
Ekspresja i znaczenie kliniczne miR-3619-5p
Analiza RT-qPCR wykazała, że ekspresja miR-3619-5p w surowicy pacjentów z T2DM była znacząco obniżona (P < 0,001; Rycina 1A). Analiza krzywej ROC wykazała, że AUC dla miR-3619-5p w diagnostyce T2DM wyniosło 0,871 (95% CI: 0,820–0,922) (Rycina 1B). Ponadto wyniki analizy korelacji Pearsona przeprowadzonej u 102 pacjentów z T2DM wykazały, że ekspresja miR‑3619‑5p była wyraźnie i odwrotnie skorelowana z FBG (Rycina 1C) oraz HbA1c (Rycina 1D).
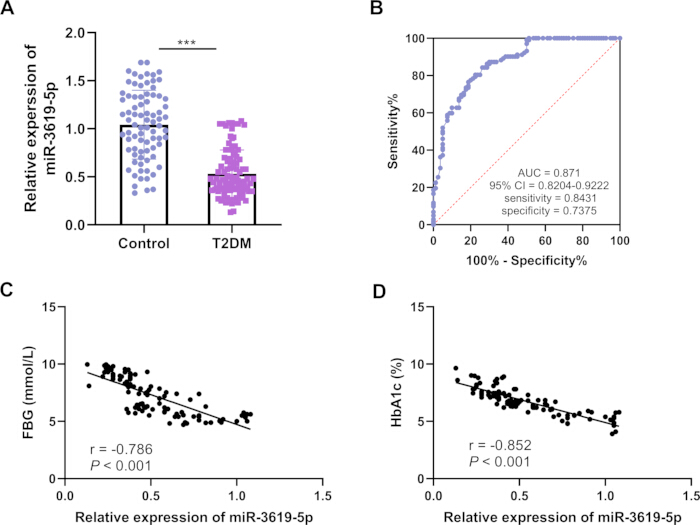
Rysunek 1: Ekspresja i znaczenie kliniczne miR-3619-5p. (A) Analiza RT-qPCR ekspresji miR-3619-5p w surowicy pacjentów z T2DM. (B) Krzywa ROC dla diagnostyki T2DM z wykorzystaniem miR-3619-5p. (C) Analiza korelacji Pearsona pomiędzy względną ekspresją miR-3619-5p a glikemią na czczo (FBG). (D) Analiza korelacji Pearsona pomiędzy względną ekspresją miR-3619-5p a HbA1c. Słupki błędów reprezentują odchylenie standardowe (SD); Grupa kontrolna, n = 80; T2DM, n = 102. ***P < 0.001 Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Wpływ miR-3619-5p na funkcję komórek β trzustki
Przeprowadziliśmy testy funkcjonalne komórek na komórkach β trzustki INS-1 traktowanych HG w celu odwzorowania progresji T2DM. Wyniki wykazały, że ekspresja miR-3619-5p była znacząco obniżona po traktowaniu HG (P < 0.001), natomiast transfekcja mimikiem miR-3619-5p wyraźnie zwiększyła jej ekspresję (P < 0.01; Rysunek 2A). W odniesieniu do proliferacji i apoptozy komórek, traktowanie HG wyraźnie hamowało proliferację i promowało apoptozę (P < 0.001), podczas gdy mimik miR-3619-5p promował proliferację i hamował apoptozę po traktowaniu HG (P < 0.01; Rysunek 2B,C). Wyniki testu ELISA wykazały, że sekrecja insuliny była znacząco obniżona po traktowaniu HG (P < 0.001), natomiast mimik miR-3619-5p zwiększył sekrecję insuliny po traktowaniu HG (P < 0.01; Rysunek 2D).
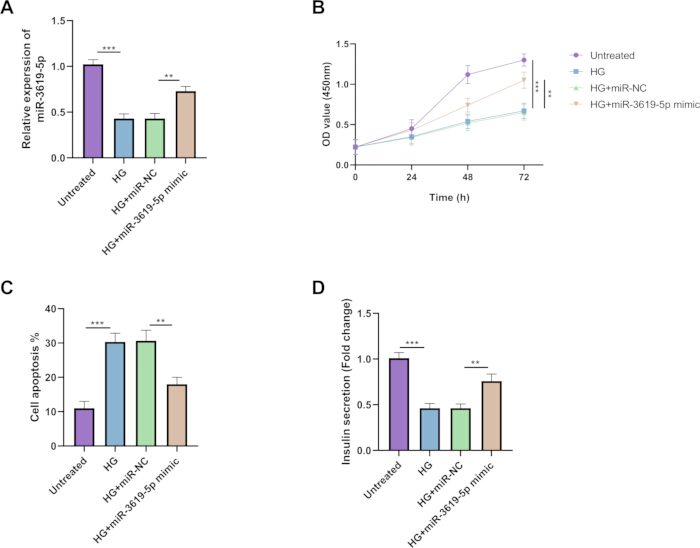
Rysunek 2: Wpływ miR-3619-5p na funkcję komórek β trzustki. Komórki β trzustki INS-1 poddano działaniu HG w celu symulacji progresji T2DM. (A) Do wykrywania ekspresji miR-3619-5p w komórkach zastosowano RT-qPCR. (B) Proliferację komórek oceniono za pomocą testu CCK-8. (C) Do oceny apoptozy komórek wykorzystano cytometrię przepływową. (D) Do pomiaru poziomu sekrecji insuliny (znormalizowanego względem całkowitej wewnątrzkomórkowej zawartości insuliny) zastosowano test ELISA. Słupki błędów reprezentują odchylenie standardowe (SD), n = 3. ***P < 0.001; **P < 0.01 Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Walidacja celów miR-3619-5p
Przewidywania bioinformatyczne ujawniły łącznie 174 geny docelowe w czterech bazach danych (Rycyna 3A), a miejsce wiązania MTA3 wykazuje wysoki stopień konserwacji (wynik Context++: -0,31; centyl wyniku Context++: 98). Zidentyfikowano komplementarne miejsce wiązania pomiędzy miR-3619-5p a regionem 3'-UTR MTA3 (Rycyna 3B). Wyniki DLR wykazały, że względna aktywność lucyferazy MTA3 WT była znacznie zwiększona w grupie mimic miR-3619-5p, co wskazuje, że miR-3619-5p może wiązać się z MTA3 (Rycyna 3C).
Ekspresja MTA3 była wyraźnie obniżona w surowicy pacjentów z T2DM (Rysunek 3D); jego ekspresja była również znacząco obniżona w komórkach INS-1 traktowanych HG, podczas gdy mimik miR-3619-5p zwiększył ekspresję MTA3 (Rycina 3E). Wyniki analizy Western blot wykazały, że mimik miR-3619-5p zwiększył poziom białka MTA3, natomiast inhibitor miR-3619-5p znacząco obniżył jego ekspresję (Rycina uzupełniająca 1). Analiza korelacji Pearsona wykazała istotną dodatnią korelację między poziomami miR-3619-5p a MTA3 w surowicy 102 pacjentów z T2DM (Rysunek 3F). Wyniki te dodatkowo potwierdzają pozycyjną rolę regulacyjną miR-3619-5p w stosunku do MTA3.
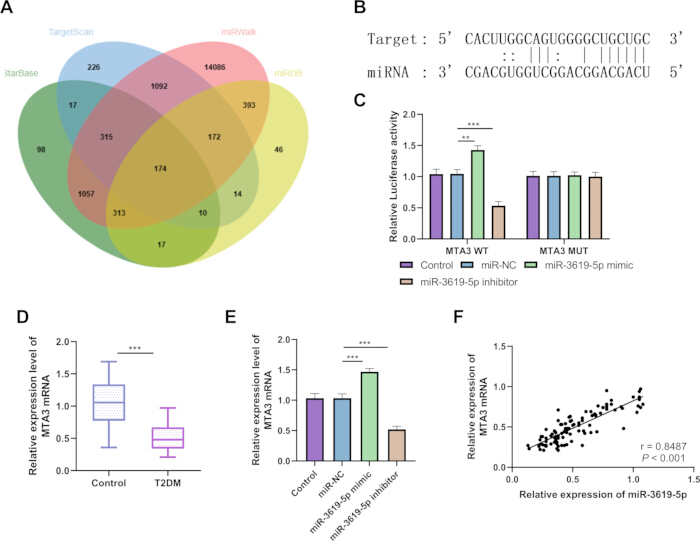
Rycina 3: Walidacja celów miR-3619-5p. (A) Wspólne geny docelowe miR-3619-5p zidentyfikowane w czterech bazach danych: TargetScan, miRWalk, StarBase i miRDB. (B) Miejsce wiązania miR-3619-5p do 3’-UTR MTA3. (C) Test DLR (n = 3). (D) Analiza RT-qPCR ekspresji MTA3 w surowicy pacjentów z T2DM (Kontrola, n = 80; T2DM, n = 102). (E) Analiza RT-qPCR ekspresji MTA3 w komórkach (n = 3). (F) Analiza korelacji Pearsona dla ekspresji miR-3619-5p i MTA3 w surowicy pacjentów z T2DM (Kontrola, n = 80; T2DM, n = 102). Słupki błędu reprezentują odchylenie standardowe (SD). ***P < 0.001; **P < 0.01 Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Wpływ MTA3 na funkcję komórek β trzustki
Wyniki wykazały, że si-MTA3 dodatkowo obniżyło ekspresję MTA3 po traktowaniu HG, natomiast kotransfekcja z mimikiem miR-3619-5p odwróciła ten efekt (Rycina 4A). si-MTA3 dodatkowo hamowało proliferację komórek traktowanych HG, promowało apoptozę i nasilało zaburzenia wydzielania insuliny; tymczasem kotransfekcja z mimikiem miR-3619-5p odwróciła wyżej wymienione fenotypy komórkowe pośredniczone przez si-MTA3, przywracając proliferację komórek, redukując apoptozę i łagodząc hamowanie wydzielania insuliny (Rycina 4B–D).
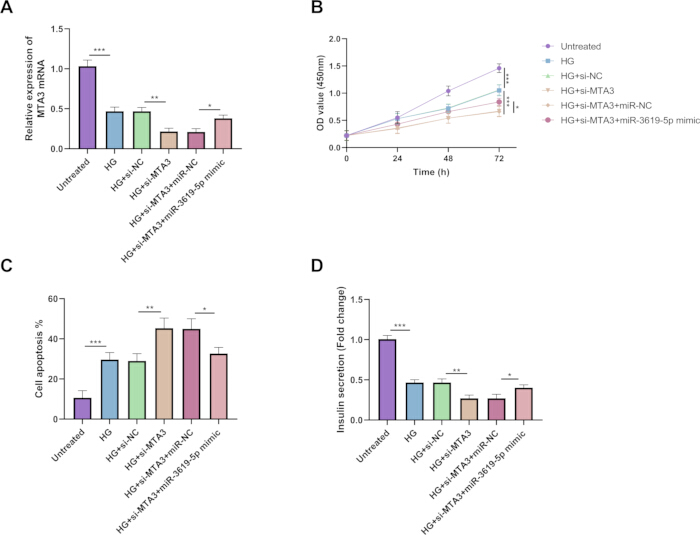
Rycina 4: Wpływ MTA3 na funkcję komórek β trzustki. W celu dalszego zbadania wpływu MTA3 na funkcję komórek β trzustki do komórek przetransfekowano si-MTA3 oraz mimik miR-3619-5p. (A) Analiza RT-qPCR ekspresji MTA3 w komórkach. (B) Proliferację komórek oceniono za pomocą testu CCK-8. (C) Stopień apoptozy określono metodą cytometrii przepływowej. (D) Poziomy wydzielania insuliny zmierzono testem ELISA (znormalizowane względem całkowitej wewnątrzkomórkowej zawartości insuliny). Słupki błędów reprezentują odchylenie standardowe (SD), n = 3. ***P < 0.001; **P < 0.01; *P < 0.05 Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Podsumowując, wyniki uzyskane z próbek klinicznych wykazują, że ekspresja miR-3619-5p w surowicy jest znacznie obniżona u pacjentów z T2DM oraz że poziom miR-3619-5p jest istotnie skorelowany z FBG i HbA1c; eksperymenty na liniach komórkowych potwierdziły, że miR-3619-5p może specyficznie regulować MTA3, wpływając tym samym na żywotność i funkcję wydzielniczą insuliny w komórkach β trzustki szczura INS-1. Wspólnie wyniki te sugerują, że miR-3619-5p bierze udział w regulacji funkcji komórek β trzustki, co w sposób wstępny realizuje cel badawczy niniejszej pracy, jakim było zbadanie roli miR-3619-5p w cukrzycy typu 2 oraz jego potencjalnych mechanizmów regulacyjnych.
DOSTĘPNOŚĆ DANYCH:
Wszystkie surowe i przetworzone zestawy danych wspierające wnioski z niniejszego badania zostały przesłane jako Supplementary File 1.
| Wskaźniki | Grupa kontrolna (n = 80) | grupa T2DM (n = 102) | wartość p |
| Wiek (lata) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| Płeć (męska/żeńska) | 43/37 | 54/48 | 0.914 |
| BMI (kg/m²)2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| TC (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| TG (mmol/L) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| HDL-C (mmol/L) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| LDL-C (mmol/L) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| FBG (mmol/L) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
Tabela 1: Porównanie parametrów klinicznych wśród badanych. T2DM, cukrzyca typu 2; BMI, wskaźnik masy ciała; TC, cholesterol całkowity; TG, triglicerydy; HDL, lipoproteiny o wysokiej gęstości; LDL, lipoproteiny o niskiej gęstości; FBG, poziom glukozy we krwi na czczo; HbA1c, hemoglobiny glikowana.
Tabela uzupełniająca 1: Sekwencje starterów i odczynników użytych w niniejszym badaniu.Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 1: Ekspresja białka MTA3. Analiza poziomu białka MTA3 za pomocą metody Western blot. (A) Poziomy białka MTA3. (B) Surowe obrazy Western blot dla MTA3. (C) Surowe obrazy Western blot dla GAPDH. Słupki błędów reprezentują odchylenie standardowe (SD), n = 3. ***P < 0.001; **P < 0.01Proszę kliknąć tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Surowe dane.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Główne cechy patologiczne T2DM to insulinooporność oraz dysfunkcja komórek β trzustki, przy czym zmniejszona zdolność do proliferacji i zredukowana liczba komórek β trzustki są kluczowymi czynnikami zaburzeń wydzielania insuliny oraz głównymi motorami progresji choroby26. Identyfikacja kluczowych cząsteczek, które mogą regulować proliferację komórek β trzustki i poprawiać ich funkcję, ma ogromne znaczenie dla precyzyjnej diagnostyki i leczenia T2DM.
Jako kluczowe cząsteczki regulacyjne ekspresji genów, miRNA pełnią krytyczną funkcję w proliferacji, apoptozie i sekrecji insuliny w komórkach β trzustki. Liczne miRNA są ściśle powiązane z patogenezą T2DM27,28,29. Song i wsp. stwierdzili, że wyciszenie miR-3619-5p hamuje migrację komórek w raku jelita grubego30. Inne badania wykazały, że miR-3619-5p wykazuje obniżoną ekspresję u pacjentów z cukrzycą poddawanych dializie otrzewnowej31. Jednakże rola i mechanizmy miR-3619-5p w T2DM nie zostały jeszcze opisane. W niniejszym badaniu stwierdzono, że ekspresja miR-3619-5p w surowicy pacjentów z T2DM była znacząco niższa niż w grupie kontrolnej osób zdrowych, co jest zgodne z wynikami Costa i wsp.31, wskazując, że obniżona ekspresja miR‑3619‑5p może być ściśle powiązana z inicjacją i rozwojem T2DM. Analiza korelacji wykazała, że ekspresja miR-3619-5p była ujemnie skorelowana z FBG i HbA1c, co wskazuje, że niższa ekspresja miR-3619-5p wiąże się z gorszą kontrolą glikemii u pacjentów. Potwierdza to ponadto, że miR-3619-5p może być zaangażowany w proces rozregulowania metabolicznego w T2DM, a jego poziom ekspresji może odzwierciedlać stopień zaawansowania choroby; jest to zgodne z wynikami Chen i wsp., którzy zgłosili, że różnicowo eksponowane RNA mogą być zaangażowane w metabolizm lipidów, sekrecję insuliny i regulację glukozy32. Wyniki analizy krzywej ROC sugerują, że może on stanowić biomarker w diagnostyce T2DM, rekompensując brak czułości w wczesnej diagnozie związany z tradycyjnymi wskaźnikami glikemii we krwi.
Nieprawidłowy spadek w trzustce βzdolność proliferacyjna komórek stanowi centralny element niewydolności wysepek trzustkowych w cukrzycy typu 2; promowanie trzustkowej βProliferacja komórek i zwiększenie ich liczby są kluczowe dla poprawy funkcji wydzielania insuliny33,34Badanie to wykazało w eksperymentach komórkowych, że miR-3619-5p wyraźnie stymuluje proliferację komórek INS-1 i hamuje apoptozę, zwiększając tym samym wydzielanie insuliny. Sugeruje to, że miR-3619-5p może poprawiać funkcję wydzielania insuliny poprzez promowanie trzustkowego β-proliferacji komórek i hamowaniu apoptozy, uczestnicząc tym samym w patogenezie cukrzycy typu 2 (T2DM). Jest to zgodne z mechanizmami regulacyjnymi miRNA w trzustce βproliferacja komórek opisana w poprzednich badaniach, takich jak miR-26a-5p i miR-765, które promują trzustkowe βproliferacja i różnicowanie komórek poprzez regulację ekspresji genów docelowych35,36.
W niniejszym badaniu wykorzystano przewidywania bioinformatyczne oraz analizy DLR, aby potwierdzić, że MTA3 jest genem docelowym dla miR-3619-5p. Jako białko związane z przerzutowaniem, MTA3 bierze szeroki udział w kluczowych procesach fizjologicznych, takich jak proliferacja komórek, apoptoza i metabolizm20. Badania wykazały, że MTA3 uczestniczy w regulacji włóknienia wątroby indukowanego wysokim stężeniem glukozy24. Supresja MTA3 indukowana przez T2DM jest powiązana ze zwiększonym stresem oksydacyjnym w jądrach37. W tym badaniu MTA3 był obniżony w komórkach traktowanych HG. Biorąc pod uwagę wyniki testów proliferacji komórek, wysunięto hipotezę, że si-MTA3 może przyczyniać się do patogenezy T2DM poprzez hamowanie proliferacji komórek β trzustki, podczas gdy miR-3619-5p może łagodzić to hamowanie poprzez regulację ekspresji MTA3, poprawiając tym samym funkcję komórek β trzustki. Wyjaśnienie tego mechanizmu dodatkowo uszczegóławia sieć molekularną regulacji proliferacji komórek β trzustki przez miRNA i dostarcza nowej perspektywy w badaniach nad patogenezą T2DM.
Wyniki niniejszego badania mają potencjalną wartość kliniczną i translacyjną. Serum miR-3619-5p można wykryć w obwodowej krwi żylnej; jeśli zostanie to potwierdzone w kolejnych wielkoskalowych badaniach kohortowych, może ono służyć jako pomocniczy marker biologiczny wspierający klinicystów w identyfikacji osób zagrożonych dysfunkcją komórek β trzustki, co umożliwi wcześniejszą stratyfikację ryzyka. miR-3619-5p może łagodzić uszkodzenia komórek β trzustki wywołane hiperglikemią poprzez celowanie i regulację szlaku MTA3 w celu utrzymania przeżywalności komórek β i sekrecji insuliny. Sugeruje to, że oś miR-3619-5p/MTA3 ma potencjał, aby stać się nowym celem ochrony wysepek trzustkowych w cukrzycy, dostarczając fundamentalnych informacji eksperymentalnych dla późniejszego opracowania leków opartych na kwasach nukleinowych lub inhibitorów małocząsteczkowych w celu ochrony funkcji wysepek.
W niniejszym badaniu należy odnotować kilka ograniczeń: Po pierwsze, nasze badania zostały przeprowadzone w jednym ośrodku; może występować błąd selekcji, a zmienność międzyosobnicza wśród uczestników jest stosunkowo ograniczona. Przyszłe analizy powinny objąć większą próbę i zostać przeprowadzone w wielu ośrodkach w celu zweryfikowania profilu ekspresji oraz wartości klinicznej miR‑3619‑5p. Po drugie, w badaniu tym zwalidowano funkcję regulacyjną miR-3619-5p w proliferacji komórek β trzustki wyłącznie na poziomie komórkowym i nie przeprowadzono dalszej walidacji w eksperymentach na zwierzętach. Przyszłe badania powinny opierać się na modelu zwierzęcym T2DM, aby dokładniej zbadać mechanizmy działania in vivo. Po trzecie, cząsteczki miRNA wykazują zazwyczaj cechy wielofunkcyjne, a miR-3619-5p może regulować również szereg powiązanych genów. Jednocześnie systemy transfekcji in vitro z użyciem mimetyków lub inhibitorów miRNA są podatne na potencjalne efekty off-target; interwencja sztuczna w wysokich dawkach może nieswoiście aktywować lub hamować wiele szlaków sygnalizacyjnych, co utrudnia pełne odtworzenie sposobu działania obserwowanego w warunkach fizjologicznych. Przyszłe badania wymagają bardziej kompleksowego screeningu celów w całym transkryptomie, aby odróżnić specyficzną regulację celowaną od nieswoistych efektów biologicznych wynikających z efektów off-target. Po czwarte, mimo że w in vitro modelu wysokiego stężenia glukozy zastosowano interwencję z użyciem 25 mM glukozy, nie utworzono kontrolnej grupy osmotycznej z mannitolem; w konsekwencji nie było możliwe pełne rozróżnienie między specyficznymi efektami metabolicznymi glukozy a efektami wynikającymi ze stresu osmotycznego. Przyszłe eksperymenty powinny uwzględniać kontrolę osmotyczną, aby dalej wyjaśnić mechanizm, w jaki sposób wysokie poziomy glukozy wpływają na komórki INS-1. Wreszcie, istnieje rozbieżność gatunkowa między próbkami klinicznymi a modelami komórkowymi in vitro; choć komórki INS-1 są klasycznym modelem in vitro do badania dojrzewania funkcjonalnego komórek β trzustki, mechanizmy regulacyjne obserwowane w komórkach szczura nie mogą być bezpośrednio utożsamiane z rzeczywistymi procesami biologicznymi u ludzi. Dlatego należy zachować ostrożność przy interpretowaniu zidentyfikowanej w niniejszym badaniu na poziomie komórkowym in vitro relacji regulacyjnej miR-3619-5p/MTA3 w kontekście zastosowań klinicznych. Przyszłe badania będą wymagały wykorzystania ludzkich modeli komórek β trzustki lub ludzkich wyizolowanych wysepek w celu dalszej walidacji konserwacji gatunkowej tego szlaku.
Poziom miR-3619-5p jest obniżony w surowicy oraz w komórkach β trzustki u pacjentów z T2DM; poprzez celowanie w MTA3, miR-3619-5p może łagodzić dysfunkcję komórek β trzustki wywołaną hiperglikemią, promować proliferację komórek β trzustki, hamować apoptozę oraz poprawiać sekrecję insuliny. Niniejsze badanie sugeruje, że miR-3619-5p może być przydatny w wspomaganiu stratyfikacji ryzyka cukrzycy, a oś miR-3619-5p/MTA3 stanowi potencjalny cel dla ochrony wysepek trzustkowych. W przyszłości przeprowadzimy badanie kohortowe na większą skalę, aby potwierdzić jego wartość kliniczną, oraz wykonamy funkcjonalną walidację in vivo z wykorzystaniem modeli zwierzęcych cukrzycy; jednocześnie przeprowadzimy szczegółową analizę szlaków sygnałowych downstream MTA3, które pośredniczą w zmianach funkcji wysepek, i dalej ocenimy potencjał translacyjny tego celu w terapii ochrony wysepek.
Oświadczenia
Autorzy nie mają żadnych istotnych interesów finansowych ani niefinansowych do ujawnienia.
Podziękowania
Niniejsze badanie było wspierane przez projekt Strategie zapobiegania dla pacjentów z cukrzycą i infekcjami dróg moczowych (nr MSZ2025119).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Annexin V-FITC/PI Apoptosis Detection Kit | Roche, Switzerland | 11684795910 | Barwienie Annexin V-FITC (10 µL) i PI (5 µL); inkubacja przez 15 min w ciemności |
| Cell Counting Kit-8 (CCK-8) | Dojindo, Japan | CK04 | Kolorymetryczny test żywotności komórek; 10 µL na studzienkę, inkubacja przez 2 h, pomiar OD450 |
| D-Glukoza | Sigma-Aldrich | G7021 | Dodana do pożywki w stężeniu 25 mM w celu stworzenia modelu uszkodzeń komórkowych indukowanych wysokim stężeniem glukozy (HG) |
| Dual-Luciferase Reporter Assay System | Promega, USA | E1910 | Sekwencyjny pomiar aktywności lucyferazy świetlika i Renilla |
| Płodowa surowica bydlęca (FBS) | Gibco, USA | 10437028 | Suplement w końcowym stężeniu 10% |
| Cytometr przepływowy | Beckman Coulter, USA | CytoFLEX | Analiza cytometrii przepływowej do obliczenia wskaźnika apoptozy |
| Przeciwciało GAPDH | Abcam, UK | ab181602 | Western blot |
| Primery GAPDH | Sangon Biotech, China | Custom synthesis | Gen referencyjny do normalizacji mRNA |
| Kozie przeciwciało przeciwko króliczym IgG H&L (HRP) | Abcam, UK | ab6721 | Western blot |
| Linia komórkowa HEK293T | ATCC, USA | CRL-3216 | Ludzkie komórki embrionalnej nerki; wysoka wydajność transfekcji dla testów lucyferazowych |
| Linia komórkowa INS-1 | Sunncell, China | SNL-332 | Szczurza linia komórkowa insulinoma; hodowana w RPMI 1640 z 10% FBS i 1% penicyliny i streptomycyny |
| System Real-Time PCR LightCycler 480 II | Roche, Switzerland | 5015278001 | Amplifikacja Real-time PCR; format płytki 96- lub 384-dołkowej |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | Odczynnik do transfekcji oparty na lipidach |
| Czytnik mikropłytek | BioTek, Agilent | Synergy H1 | Pomiar absorbancji; stężenia próbek interpolowane z krzywych wzorcowych |
| Inhibitory miR-3619-5p | RiboBio, China | miR20017999-1-5 | Chemicznie syntetyzowane jednoniciowe RNA do hamowania funkcji miR-3619-5p |
| Mimetyki miR-3619-5p | RiboBio, China | miR10017999-1-5 | Chemicznie syntetyzowane dwuniciowe RNA do nadekspresji miR-3619-5p |
| Primery miR-3619-5p | Sangon Biotech, China | Custom synthesis | Specyficzne primery do detekcji miR-3619-5p |
| miR-NC (kontrola ujemna miRNA) | RiboBio, China | miR2N0000001-1-5 | Niecelująca kontrola ujemna do eksperymentów z mimetykami/inhibitorami miRNA |
| miRNeasy Mini Kit | Qiagen, Germany | 217004 | Ekstrakcja całkowitego RNA z próbek komórkowych |
| miScript II RT Kit | Qiagen, Germany | 218160 | Transkrypcja odwrotna miRNA; wykorzystuje dołączanie ogona poly(A) i inicjację oligo-dT |
| miScript SYBR Green PCR Kit | Qiagen, Germany | 218073 | qPCR oparty na SYBR Green do detekcji miRNA |
| Przeciwciało MTA3 | Invitrogen, USA | PA5-100022 | Western blot |
| Primery MTA3 | Sangon Biotech, China | Custom synthesis | Specyficzne primery do detekcji mRNA MTA3 |
| Spektrofotometr NanoDrop 2000 | Thermo Fisher Scientific, USA | ND-2000 | Ocena stężenia i czystości RNA |
| Penicylina-Streptomycyna | Gibco, USA | 15140122 | Roztwór antybiotyku w stężeniu 1% w celu zapobiegania kontaminacji bakteryjnej |
| Wektor ekspresyjny celu miRNA pmirGLO Dual-Luciferase | Promega, USA | E1330 | Wektor reporterowy dual-lucyferaza do walidacji celu miRNA; zawiera geny lucyferazy świetlika i Renilla |
| PrimeScript RT Reagent Kit with gDNA Eraser | TaKaRa, Japan | RR047A | Transkrypcja odwrotna z etapem eliminacji genomowego DNA |
| Zestaw ELISA do insuliny szczura | Invitrogen, USA | ERINS | Ilościowe oznaczanie insuliny wydzielanej przez komórki INS-1 do pożywki hodowlanej |
| Pożywka RPMI 1640 | Gibco, USA | 11875093 | Podstawowa pożywka hodowlana; uzupełniona o 10% FBS i 1% penicyliny i streptomycyny |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | Krótkie interferujące RNA celujące w MTA3 w celu wyciszenia genu |
| si-NC (kontrola ujemna siRNA) | RiboBio, China | siB06525141922-1-5 | Niecelująca kontrola siRNA |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | Amplifikacja qPCR oparta na SYBR Green |
| Odczynnik TRIzol | Invitrogen, USA | 15596026 | Ekstrakcja całkowitego RNA z próbek surowicy |
| Primery U6 | Sangon Biotech, China | Custom synthesis | Endogenna referencja do normalizacji miRNA |
Bibliografia
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.