Celem niniejszego badania jest zbadanie potencjalnych mechanizmów molekularnych leżących u podstaw przeciwutleniającego i przeciwzapalnego działania amygdaliny w modelu alopecia areata u myszy C3H/HeJ oraz w modelu uszkodzenia pierwotnych ludzkich melanocytów naskórka wywołanym przez H2O2.
Artykuł badawczy
Amygdalina reguluje sygnalizację FOXO3a w celu hamowania stresu oksydacyjnego i łagodzenia łysienia plackowatego u myszy
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Celem niniejszej pracy jest zbadanie mechanizmu działania terapeutycznego amigdaliny (AMG) w leczeniu łysienia plackowatego (AA). Do zbadania hepatorenalnej toksyczności AMG wykorzystano barwienie hematoksyliną i eozyną. Po stworzeniu modelu AA u myszy C3H/HeJ i H2O2-uszkodzone ludzkie pierwotne melanocyty naskórka (HPEMs), a po interwencji AMG monitorowano zawartość reaktywnych form tlenu (ROS) oraz poziomy białka i genu forkhead box O3A (FOXO3a). Zestawy biochemiczne lub test immunoenzymatyczny (ELISA) wykorzystano do oznaczenia zawartości dysmutazy ponadtlenkowej (SOD), katalazy (CAT), peroksydazy glutationowej 4 (GPX-4), malondialdehydu (MDA), interleukiny 15 (IL-15) oraz interferonu gamma (IFN-γ), i interleukinę 6 (IL-6). Wykonano analizę Western blot w celu oceny poziomów MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6 i IL-15. Przeprowadzono analizę ChIP-PCR w celu oceny wzbogacenia AMG w obrębie promotorów SOD, CAT i GPX-4 w FOXO3a. Jednocześnie zbadano poziom ROS, apoptozę oraz poziomy białek i genów FOXO3a, SOD, CAT i GPX-4 w HPEM o niskiej ekspresji FOXO3a. AMG nie wykazuje potencjalnej toksyczności wobec wątroby ani nerek i może zmniejszać ekspresję białek MHC I oraz IL-15 w skórze, a także poziom IL-15 w surowicy. AMG może zwiększać ekspresję białka i genu FOXO3a w skórze, a także poziomy SOD, CAT i GPX-4, jednocześnie redukując poziomy ROS i MDA. AMG może hamować MHC I, IFN-γ, IL-6 i IL-15, MDA, apoptozę oraz produkcję RFT w HPEM, a także zwiększyć zawartość SOD, CAT i GPX-4. Co istotne, AMG może zwiększyć ekspresję genów i białek FOXO3a, SOD, CAT i GPX-4 oraz wzbogacić obecność FOXO3a w promotorach SOD, CAT i GPX-4. Dane te sugerują, że AMG może promować ekspresję FOXO3a oraz hamować stres oksydacyjny i odpowiedzi zapalne, poprawiając tym samym AA u myszy C3H/HeJ.
Wprowadzenie
Alopecia areata (AA), będąca schorzeniem autoimmunologicznym charakteryzującym się nagłą utratą włosów bez powstawania blizn, występuje na świecie u około 2–3% populacji, a w samych Chinach odnotowano ponad 30 milionów pacjentów1. Dane epidemiologiczne wskazują, że choroba może dotyczyć osób w każdym wieku, jednak wykazuje wyższą rozpowszechnioność wśród młodych dorosłych – około 60% pacjentów doświadcza pierwszego wystąpienia objawów przed 20. rokiem życia, przy niemal równym stosunku mężczyzn do kobiet1,2. W skali globalnej roczna zapadalność na AA wynosi około 0,2–0,3%, z czego 40% stanowią przypadki AA jednoplastrowej, 35% AA wieloplastrowej, 5% całkowita łysiność oraz 2% alopecia universalis3,4,5. Jeśli chodzi o powikłania, około 30% pacjentów wykazuje wgłębienia płytki paznokciowej, bruzdy podłużne oraz inne uszkodzenia, a współczynnik współistnienia chorób autoimmunologicznych, takich jak zaburzenia tarczycy i bielactwo, przekracza poziomy obserwowane w populacji ogólnej6,7. Pod kątem szkodliwości AA wpływa nie tylko na wygląd, ale ma również tendencję do wywoływania problemów psychologicznych, takich jak depresja i lęk; około 70% pacjentów z nowo zdiagnozowaną chorobą doświadczyło poważnych stresów w ciągu 3 miesięcy przed wystąpieniem objawów8,9. Brak długotrwałego leczenia może prowadzić u pacjentów do całkowitej łysiności lub alopecia universalis, co w znacznym stopniu wpływa na ich funkcjonowanie społeczne i jakość życia10.
Obecnie medycyna zachodnia w leczeniu AA stosuje głównie połączenie leków miejscowych, preparatów doustnych, fizjoterapii oraz przeszczepu włosów11,12. Leczenie miejscowe obejmuje przede wszystkim roztwór minoksydylu i kortykosteroidy (takie jak krem z propionianem flutykazonu), które stymulują mieszki włosowe i hamują miejscowe reakcje immunologiczne, aby pobudzić wzrost włosów, jednak długotrwałe stosowanie może prowadzić do działań niepożądanych, takich jak zanik skóry13,14. U pacjentów z postacią postępującą doustne leki immunosupresyjne (takie jak prednizon i cyklosporyna) mogą skutecznie regulować systemową odpowiedź immunologiczną, lecz wymagają one regularnego monitorowania funkcji wątroby i nerek12,15. W ramach fizjoterapii promieniowanie ultrafioletowe w wąskim paśmie średniofalowym oraz laseroterapia niskiej energii poprawiają mikrokrążenie, wspomagając wzrost włosów, jednak wymagane są wielokrotne zabiegi, a efekt jest zróżnicowany w zależności od pacjenta16,17. W przypadkach opornych zabieg przeszczepu włosów pozwala na przeniesienie zdrowych mieszków włosowych w obszar łysienia, istnieje jednak ryzyko niepowodzenia przeszczepu, a metoda ta wymaga dalszego podtrzymywania farmakologicznego18. Zalety leczenia medycyną zachodnią polegają na szybkim początku działania i wysokiej standaryzacji, szczególnie w przypadku wczesnego, miejscowego AA19. Do wad należą natomiast skłonność do nawrotów przy stosowaniu leków hormonalnych, znaczne działania niepożądane immunosupresantów oraz ich ograniczona skuteczność u pacjentów z całkowitą utratą włosów/alopecją całkowitą20,21. Ponadto cykl leczenia jest długi (zazwyczaj 3–6 miesięcy), a koszty wysokie (np. roczny koszt inhibitorów JAK i leków biologicznych przekraczający 100 000 juanów), co również ogranicza ich szerokie zastosowanie19,22. Z licznych wymienionych wyżej powodów autorzy dążą do pilnego opracowania nowych leków celowanych.
Stres oksydacyjny w znacznym stopniu przyczynia się do mechanizmu patogennego AA. W procesie syntezy pigmentu przez melanocyty powstaje duża ilość nadtlenku wodoru (H2O2)23,24. W normalnych warunkach może on być neutralizowany przez enzymy antyoksydacyjne (takie jak dysmutaza ponadtlenkowa (SOD) i katalaza (CAT))25. Niemniej jednak u osób z AA aktywność enzymów antyoksydacyjnych jest często obniżona, co prowadzi do akumulacji produktów utleniania, powodując uszkodzenia DNA i apoptozę komórek26,27. Stan stresu oksydacyjnego będzie dalej aktywować odpowiedź zapalną, uwalniając mediatory prozapalne (takie jak TNF-α i IFN-γ), tworząc błędne koło stresu oksydacyjnego i stanu zapalnego28. Odpowiedź zapalna atakuje mieszki włosowe za pośrednictwem limfocytów T, co powoduje przejście mieszków włosowych w fazę spoczynku i ich wypadanie29. Badania kliniczne wykazały, że pacjenci z AA często cierpią na inne choroby autoimmunologiczne (takie jak choroby tarczycy)30, co sugeruje, że systemowa dysregulacja immunologiczna stanowi krytyczny czynnik wyzwalający. Ponadto stres oksydacyjny i stan zapalny wspólnie promują apoptozę komórek mieszków włosowych, a zaburzenia sygnałów apoptotycznych będą dalej uszkadzać zdolność regeneracyjną mieszka włosowego, zapobiegając odrostowi włosów31. Dlatego leczenie AA musi uwzględniać działania antyoksydacyjne, przeciwzapalne oraz regulację szlaków apoptotycznych, aby przerwać to błędne koło.
Amygdalina (AMG) jest naturalnie występującym związkiem z grupy glikozydów cyjanogennych, zawartym głównie w nasionach roślin z rodziny Rosaceae (takich jak pestki moreli, migdałów, brzoskwiń oraz nasiona nisznicy)32,33,34. Wcześniejsze badania wykazały, że AMG może poprawiać stan łuszczycy poprzez wzmacnianie funkcji barierowej skóry35. Jednocześnie przeciwapoptotyczne i przeciwutleniające działanie AMG umożliwia jej zastosowanie w leczeniu AA36,37. Poprzednie dowody potwierdziły również, że AMG może hamować odpowiedź zapalną w celu złagodzenia objawów AA u myszy C3H/HeJ38. Jednak mechanizm molekularny, poprzez który AMG hamuje stan zapalny i łagodzi stres oksydacyjny w celu mitygacji AA, nie został jeszcze dobrze opisany. Niniejsze badanie demonstruje głównie zdarzenia związane ze stresem oksydacyjnym pośredniczone przez szlak sygnałowy forkhead box O3A (FOXO3a) w wyniku interwencji z użyciem AMG w leczeniu modelu AA u myszy C3H/HeJ oraz w modelu uszkodzenia ludzkich pierwotnych melanocytów naskórka (HPEMs) indukowanym przez H2O2.
Protokół
Zatwierdzenie etyczne i zgoda na udział
Protokoły eksperymentalne dotyczące zwierząt zostały zatwierdzone przez Komitet Etyczny firmy Scientist Biotechnology Co., Ltd. (Numer pozwolenia etycznego: SYST-2024-014), zgodnie z wytycznymi ARRIVE 2.0 oraz NIH Guide for the Care and Use of Laboratory Animals. Oraz przez Komitet Etyczny Syczuańskiego Komitetu Ludowego’szpital wydał zgodę na etyczne wykorzystanie ludzkich próbek klinicznych do in vitro eksperymenty (Numer pozwolenia etycznego: 2024103). Od wszystkich dawców tkanek uzyskano świadomą zgodę. Wszystkie handlowe informacje dotyczące odczynników i sprzętu użytych w tym badaniu podano w sekcji Spis materiałów.
Budowa modelu AA u myszy C3H/HeJ oraz podawanie AMG
Na podstawie wcześniejszych doniesień literaturowych wywołano model AA u myszy C3H/HeJ i leczono go za pomocą AMG38,39. Krótko mówiąc, trzydzieści samic myszy linii C3H/HeJ (6–8 tygodni) poddano jednotygodniowemu okresowi aklimatyzacji przed losowym przydziałem do pięciu różnych grup: kontrolnej, AA, AMG-L, AMG-M oraz AMG-H. Z wyjątkiem grupy kontrolnej, model AA w pozostałych czterech grupach został wywołany poprzez naniesienie 0,05 g kremu z imikwimodem na skórę grzbietową myszy. Nakładanie to przeprowadzano trzy razy w tygodniu, łącznie dziewięć dawek. Obszar skóry, na który nanoszono lek, wynosił 1,5 cm × 1,5 cm. Myszom z obu grup, kontrolnej i z indukowanym AA, podawano codziennie 0,02 mL/g izotonicznego roztworu chlorku sodu przez żołądek. Myszom z grup AMG podawano natomiast dożołądkowo 60, 90 i 120 mg/kg na dobę. Okres podawania trwał 21 dni. W celu ogólnej obserwacji i oceny modelu AA stwierdzono dobrze zdefiniowane okrągłe plamy łysienia ≥ średnicy 1 cm, bez blizn i ciężkiego stanu zapalnego oraz z pękniętymi trzonami włosów. Myszom wykazującym rozlanych utratę włosów na całym ciele, ciężkie owrzodzenie skóry lub samoistny szybki przyrost włosów nie poddaje się dalszych badań.
HPEM-y
Zgodnie z poprzednią metodą40, wyselekcjonowano zdrowe tkanki skórne od pacjentów, którzy przeszli okcyzję w szpitalu, i zanurzono je w 75% alkoholu przez 5 min. Następnie tkanki skórne przemywano wielokrotnie roztworem PBS zawierającym ampicylinę (100 U/mL) oraz siarczan streptomycyny (100 mg/mL) i inkubowano w roztworze dispazy II w temperaturze 4°C na noc w celu trawienia. Oddzielone i wyizolowane warstwy naskórka zostały pokrojone i przefiltrowane przez membranę sterylną w celu uzyskania zawiesiny komórkowej. Po wirowaniu zebrano komórki osadu z dolnej warstwy, a następnie zawieszono je ponownie w pożywce do melanocytów 254 bez surowicy i ponownie posiano w gęstości około 5 × 10⁵ w fiolkach do hodowli i hodowane w CO2 inkubator. Po trzech przesiewach czyste melanocyty zostały wykorzystane do kolejnych eksperymentów.
Ustanowienie H2O2- wywołany model uszkodzenia oksydacyjnego melanocytów ludzkich i interwencja AMG
Melanocyty ludzkie o stopniu zjednoczenia od 60% do 80% podzielono na grupę kontrolną oraz grupy z różnymi stężeniami H2O2 (200, 400, 600, 800 i 1000 µM). Po 24-godzinnym hodowaniu żywotność komórek była oceniono metodą CCK-8. Następnie optymalne stężenie H2O2 zastosowano do stworzenia modelu stresu oksydacyjnego melanocytów, a następnie dodano różne stężenia AMG (0,1; 0,25; 0,5; 1; 2,5; 5 i 10 mg/mL) i hodowano przez 24 godziny. Żywotność komórek wybrano następnie do oceny i doboru stężenia AMG.
Badanie HE
Tkanki wątroby i nerek myszy utrwalano w 4% paraformaldehydzie przez 24 godziny, a następnie wlepiono w parafinę, po czym przeprowadzono proces odwodnienia w następujących etapach: 70% etanol przez 4 godziny, 80% etanol przez 2 godziny, 90% etanol przez 2 godziny, 95% etanol przez 2 godziny, bezwodny etanol – dwa razy po 1 godzinie; ksylen – dwa razy po 30 minut38,39,41. Następnie, 4-µm przekrojach parafinowych przeprowadzono H&E, były odwadniane, klarowane i montowane za pomocą kleju neutralnego. Przekroje tkankowe zescyfrowano za pomocą skanera 3D HISTECH, a obrazy w powiększeniu 20× i 40× przechwycono powiększenia.
Test immunoenzymatyczny (ELISA) i wykrywanie biochemiczne
Tkanki skórne rozdrobniono w roztworze buforowym w stosunku 1:9 (w/v), a następnie poddano wirowaniu przy 1006–1789 × g przez 10 min. Po oznaczeniu stężenia białka w surowicy, ekstraktach tkanki skórnej oraz supernatantach komórkowych metodą BCA, poziomy MDA, IL-6, IL-15 oraz IFN-γ zbadano za pomocą odpowiednich zestawów ELISA. Aktywność enzymatyczną SOD, CAT oraz GPX-4 oznaczono zgodnie z instrukcjami odpowiednich zestawów biochemicznych.
Cytofluorymetria do wykrywania aktywnych form tlenu (ROS)
Środowisko hodowlane pozbawione surowicy zostało użyte do rozcieńczenia 10µM DCFH-DA w stosunku 1:1000. Następnie tkanki skóry myszy lub ludzkie melanocyty przygotowano w postaci zawiesiny komórkowej o stężeniu 1–20×106 komórek/mL, używając 10µM DCFH-DA. Komórki inkubowano w 37°C przez 20 min. W tym czasie komórki były wstrząsane i mieszane co 3–5 min. Po trzykrotnym przemyciu medium pozbawionym surowicy poziomy ROS wewnątrzkomórkowych zostały określone za pomocą cytometrii przepływowej, przy długościach fali wzbudzenia i emisji wynoszących odpowiednio 488 nm i 525 nm42,43.
Pomiar immunofluorescencji
Pierwotne przeciwciało anty-FOXO3a (1:1000) inkubowano z 4-µm przekroje tkanki naskórka lub ustalone HPEM na całą noc w 4°C. Następnie próbki poddano działaniu przeciwciał wtórnych znakowanych fluoroforami Alexa Fluor oraz dodano barwienie kontrastowe roztworem DAPI. Ostatecznie przekroje obserwowano i dokumentowano za pomocą mikroskopii fluorescencyjnej. W przypadku obrazowania fluorescencyjnego z ROS, 4-µm mrożoną sekcję tkanki skóry lub szkiełka HPEM odgrzewano w temperaturze pokojowej i wysuszono. Wokół tkanki rysowano koło za pomocą pióra histochemicznego. Szkiełka traktowano roztworem wygaszającym autofluorescencję przez 5 min, a następnie przemywano bieżącą wodą przez 10 min. Nakładano roztwór barwiący ROS i inkubowano w ciemności w 37°C przez 30 min. Przecięcia poddano trzem pięciominutowym przemywkom w buforze PBS za pomocą wstrząsarki do odbarwiania. Następnie naniesiono roztwór barwiący DAPI i inkubowano przez 10 minut w warunkach ciemności i w temperaturze pokojowej. Przedmioty zostały zamknięte za pomocą środka wygaszającego fluorescencję. Następnie próbki obserwowano, a obrazy zbierano przy użyciu mikroskopu fluorescencyjnego. Profile wzbudzenia/emisji wynoszą 330–380/420 nm dla DAPI i 510–560/590 nm dla Cy3.
Western blot
Dla tkanki naskórka myszy lub ludzkich melanocytów, 50 mg tkanki naskórka lub 2 × 10⁵ komórki i 1 mL buforu lizy RIPA wzbogaconego inhibitorami proteaz zostały przeniesione do probówki mikrocentryfugowej o pojemności 1,5 mL. Po 30-minutowym wytrzymaniu na lodzie przeprowadzono 5-minutową centrifugację przy 12 000 g w celu zebrania frakcji nadosadowej. Po wyznaczeniu stężenia białka metodą BCA roztwór białka i 5× Bufor ładujący SDS został zmieszany w stosunku objętościowym 4:1, a następnie gotowany w łaźni metalowej w temperaturze 95°C °C przez 5 min. Po przeprowadzeniu elektroforezy w 10% żelu SDS-PAGE przy 80 V lub 120 V białka zostały przeniesione elektrycznie na membranę 0,22-µm błonie PVDF przy stałym prądzie 200 mA przez 1 h44,45Membrany były następnie blokowane w temperaturze pokojowej na wstrząsarce wirnikowej przez 1 godzinę za pomocą 5% odtłuszczonego mleka (przygotowanego w buforze TBST). Następnie membrany inkubowano z przeciwciałami pierwotnymi specyficznymi dla główny zespół zgodności tkankowej klasy I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β– aktyna (1:1000), SOD (1:1000), CAT (1:1000), glutation peroksydaza 4 (GPX-4) (1:1000) i FOXO3a (1:1000) w 4 °C °w nocy. Następnie membrany inkubowano z przeciwciałem wtórnym (1:10000) przez 1 h w temperaturze pokojowej. Do wywołania i zarejestrowania obrazów zastosowano chemiluminescencyjny odczynnik ECL przy użyciu urządzenia ChemiScope 6100.
Ilościowa reakcja transkrypcji odwrotnej w kaskadzie polimerazy (qRT-PCR)
Po pierwsze, RNA z próbki tkanki skóry myszy lub ludzkich melanocytów uzyskano zgodnie z zaleceniami producenta’zgodnie z instrukcją zestawu do izolacji całkowitego RNA. Zgodnie z instrukcją zestawu do transkrypcji odwrotnej, parametry instrumentu PCR ustawiono na 25°C przez 10 min, 42°C przez 15 min i 85°C przez 5 min, aby uzyskać próbki cDNA. Podobnie, parametry ustawienia instrumentu do PCR były następujące, aby uzyskać wystarczającą liczbę kopii DNA: wstępną denaturację: 95°C przez 5 min, 1 cykl; Denaturacja: 95°C przez 10 s, 40 cykli; Renaturacja i elongacja: 60°C przez 30 s, 40 cykli. Znormalizowane wyrażenie genu badanego jest obliczane za pomocą następującego wzoru: 2‑ΔΔCq (ΔΔCq = Cqcel‑Cqβ‑Aktyna)46,47. Informacja dotycząca sekwencji starterów genów do qRT-PCR jest przedstawiona w Tabela 1.
Analiza ChIP-PCR
Analizę ChIP-PCR przeprowadzono zgodnie z wcześniejszym protokołem48Najpierw komórki utwardzono 1% roztworem formaldehydu przez 10 minut, a następnie dodano roztwór glicyny w celu zakończenia reakcji utwardzania. Po przemywce zimnym roztworem PBS zawierającym PMSF, komórki lizowano buforem lizującym SDS zawierającym PMSF. Następnie chromatynę DNA rozdrobniono za pomocą ultradźwiękowego rozdrabniacza komórek na fragmenty o długości głównie od 200 do 1000 par zasad, a wielkość fragmentów zweryfikowano metodą elektroforezy w żelu agarozowym. Próby rozdrobnionej chromatyny zawieszono ponownie w buforze rozcieńczającym do ChIP zawierającym PMSF, a następnie pobrano 20µL próbki został użyt jako grupa kontrolna „input”. Pozostałe próbki zostały wstępnie przetworzone za pomocą białka A+G agarose/łososiowego DNA plemnika. Następnie 0,5µg pierwotnego przeciwciała zostało nałożone, po czym nastąpiła inkubacja w ciągu nocy w temperaturze 4°C z powolnym mieszaniem. Grupę kontrolną ujemną poddano działaniu równych ilości IgG królika. Następnego dnia dodano kulki agarozowe białka A+G w celu wychwycenia kompleksów antygen–przeciwciało, a następnie kompleksy przemywano kolejno buforem do przemywania kompleksów immunoprecypitacyjnych o niskim stężeniu soli, buforem o wysokim stężeniu soli, buforem LiCl oraz buforem TE. Kompleksy uzyskane w immunoprecypitacji eluowano buforem elucyjnym, a następnie produkty elucji oraz próbki z grupy kontrolnej „input” poddano inkubacji w 65°inkubować przez 4 h w celu rozbicia wiązań poprzecznych. Po trawieniu białek za pomocą proteinazy K, DNA wyizolowano metodą fenolowo-chloroformową, a następnie wytrącono etanolem. Oczyszczone DNA rozpuszczono w buforze TE i poddano dalszej analizie metodą qRT-PCR. Informacje dotyczące sekwencji genów stosowanych w analizie ChIP-PCR przedstawiono w Tabela 2.
Wybrane miejsca genomowe do analizy ChIP-PCR zostały określone drogą predykcji in silico przy użyciu bazy danych JASPAR (https://jaspar.elixir.no/). W szczególności badacze uzyskali sekwencje promotorowe obejmujące 2000 pz w kierunku wstępującym od miejsca startu transkrypcji (TSS) genu CAT, SOD, oraz GPX4 geny. Sekwencje te zostały przeskanowane pod kątem motywów wiązania FOXO3a przy użyciu odpowiedniej macierzy wag pozycyjnych. Aby zrównoważyć czułość i specyficzność, autorzy ustalili próg względnej oceny profilu na poziomie >80%. Spośród wszystkich przewidzianych motywów spełniających ten kryterium autorzy wybrali dwa miejsca o najwyższym wyniku dla każdego genu jako regiony kandydujące do weryfikacji metodą ChIP-PCR. Na przykład, w CAT gen, wybrane miejsca znajdowały się w pozycjach -733 pz i -1259 pz względem miejsca startu transkrypcji (TSS). Przeciwciało anty-FOXO3a użyte w tym badaniu to komercyjnie dostępne przeciwciało o jakości nadającej się do ChIP. W celu zapewnienia swoistości, autorzy zastosowali dwa niezależne kontrole ujemne w każdym teście ChIP-PCR: izotyp IgG oraz negatywny locus genomowy. Kontrolę izotypu IgG przeprowadzono w postaci równoległych immunoprecypitacji z wykorzystaniem niemianego IgG pochodzącego z tego samego gatunku. W przypadku negatywnego locus genomowego autorzy zaprojektowali parę starterów skierowanych przeciwko regionowi niebędącemu miejscem wiązania i pozbawionemu przewidywanego motywu konsensusowego FOXO3a. Ten region kontrolny pozwolił autorom wykluczyć wzbogacenie wynikające z losowego ścinania chromatyny lub nieswoistego wzmacniania w reakcji PCR. Wzbogacenie wyrażone jako wielokrotność (fold enrichment) obliczono przy zastosowaniu strategii trzystopniowej normalizacji.
Krok 1: Wprowadź znormalizowane ΔCt ΔCt [unormowany IP] = Ct[IP]-(Ct[Input]-log₂(DF) (1)
ΔCt [unormowany IgG] = Ct[IgG] - (Ct[Input] - log₂(DF). (2)
DF = czynnik rozcieńczenia próbki wejściowej; w eksperymencie DF = 10, ponieważ zastosowano 10% próbki wejściowej.
Krok 2: ΔΔCt pomiędzy IP a IgG:
ΔΔCt [IP/IgG] =ΔCt [znormalizowane IP]ΔCt [unormowany IgG] (3)
Krok 3: Wzbogacenie w krotności = 2(-ΔΔCt [IP/IgG]. (4)
Analiza statystyczna
Dane podano jako średnia ± odchylenie standardowe na podstawie co najmniej trzech niezależnych eksperymentów. Analizy statystyczne przeprowadzono za pomocą oprogramowania GraphPad Prism (wersja 6.0). Porównanie danych między wieloma grupami, spełniającymi założenia normalności rozkładu i jednorodności wariancji, oceniano za pomocą jednokierunkowej analizy wariancji (ANOVA), a następnie testem Tukeya’s testem potocznym. Istotność statystyczną ustalono na poziomie p < 0.05.
Wyniki
AMG nie wykazuje toksyczności hepatorenalnej u prawidłowych myszy C3H/HeJ
Aby z perspektywy eksperymentalnej jednoznacznie określić potencjalną toksyczność AMG dla wątroby i nerek, badacze podali prawidłowym myszom C3H/HeJ drogą zgłębnika trzy wcześniej badane dawki (60, 90 i 120 mg/kg) 38. Jak pokazano na Rysunku 1, po podaniu AMG w trzech dawkach drogą dokarmiania przez 21 dni, architektura zrazików wątrobowych była wyraźna, a hepatocyty ułożone w uporządkowany sposób. Tkanki kory i rdzenia nerki były prawidłowe, a w kłębuszkach i kanalikach nerkowych nie zaobserwowano uszkodzeń ani zmian chorobowych. W okresie podawania AMG żadna z myszy nie wykazywała nieprawidłowych objawów behawioralnych. Rzeczywiście, w niniejszej pracy nie przetestowano danych dotyczących toksyczności biochemicznej/masy ciała, co może wpływać na zasadność stwierdzenia o braku toksyczności AMG dla wątroby i nerek. Jednakże, w oparciu o wyniki badania histopatologicznego wątroby i nerek, dane te częściowo sugerują, że leczenie AA za pomocą AMG w dawkach ustalonych przez autorów jest uzasadnione.
AMG hamuje występowanie i rozwój AA, a także generowanie ROS
W pierwszej kolejności zmierzono wskaźniki MHC I oraz IL-15, które są nierozerwalnie związane z wystąpieniem i progresją AA. Jak pokazano w Rycina 2A–Cw warunkach patologicznych symulacji AA ilość białek MHC I i IL-15 w tkankach skóry myszy C3H/HeJ uległa znacznemu zwiększeniu (p < 0,001). Natomiast traktowanie AMG-M i AMG-H znacząco obniżyło poziom ekspresji tych dwóch białek (p < 0,01 lub p < 0.001). Analogicznie, trzy dawki leczenia AMG znacząco obniżyły poziom IL-15 w surowicy (p < 0.001, Rycina 2D). Ponadto wyniki immunofluorescencji wskazały na obecność dużej ilości ROS w skórze myszy z grupy AA, podczas gdy interwencja z użyciem AMG znacząco zredukowała ekspresję ROS w porównaniu z grupą AA (p < 0.001, Rycina 2E or F). Zgodnie z tym wyniki cytometrii przepływowej wykazały, że poziomy ROS w tkankach skóry grupy AA były istotnie podwyższone w porównaniu z grupy kontrolnej. Jednak w porównaniu z grupą AA, interwencja AMG odwróciła wzrost poziomu ROS (p < 0.001, Rycina 2G i H).
AMG stymulował ekspresję białka i genu FOXO3a
Aby zbadać wpływ AMG na FOXO3a, autorzy przetestowali poziomy jego ekspresji zarówno na poziomie białka, jak i genów. Wyniki immunofluorescencji wykazały, że w grupie AA nastąpił znaczny spadek ekspresji białka FOXO3a, podczas gdy AMG stymulowało poziom białka FOXO3a w tkance skórnej myszy C3H/HeJ (p < 0.001, Rycina 3A i B). Dalsze dane z qRT-PCR wskazują, że AMG znacząco zwiększyło ekspresję genu FOXO3a (p < 0.001; Rycina 3C). Podobnie eksperyment Western blot wykazał, że AMG znacznie zwiększone ekspresja białka FOXO3a (p < 0,05 lub p < 0.001, Rycina 3D i E).
AMG hamowało procesy stresu oksydacyjnego w tkankach skóry myszy z AA
Patologiczna progresja AA stymulowana przez stres oksydacyjny prowadzi do pogorszenia stanu tkanek. Wyniki testów biochemicznych przedstawione na Rysunku 4 pokazują, że w porównaniu z grupą kontrolną, wskaźniki przeciwutleniające SOD, CAT oraz GPX-4 w tkankach skóry myszy z grupy AA były istotnie zahamowane (p < 0,001, Rysunek 4A i B), podczas gdy wskaźnik prooksydacyjny MDA uległ znacznemu wzrostowi (p < 0,001, Rysunek 4C). Zgodnie z oczekiwaniami, badacze stwierdzili, że po zastosowaniu leczenia AMG wskaźniki przeciwutleniające istotnie wzrosły, natomiast wskaźniki prooksydacyjne znacząco spadły (p < 0,001; Rysunek 4A–C). Podobnie, dane z analizy Western blot sugerowały, że interwencja z użyciem AMG znacząco zwiększyła poziomy ekspresji białek wskaźników przeciwutleniających SOD, CAT i GPX-4 (p < 0,001; Rysunki 4D i 4E).
AMG obniżył poziom apoptozy i zdarzeń zapalnych w HPEM indukowanych H2O2
Wyniki przedstawione na Rysunku 5A wskazują, że zwiększające się stężenia H2O2 (200–1000 µM) stopniowo pogarszały żywotność HPEM (p < 0,001). spośród nich stężenie 600 µM H2O2 okazało się najbardziej odpowiednie do obniżenia żywotności komórek HPEM (p < 0,001). Ponadto autorzy stwierdzili, że w warunkach stymulacji komórek HPEM stężeniem 600 µM H2O2, AMG w dawkach 0,1–10 mg/mL mógł znacząco zwiększyć żywotność komórek (p < 0,05 lub p < 0,001, Rysunek 5B). Zgodnie z wynikami eksperymentów na zwierzętach, autorzy odkryli również, że AMG znacząco hamował indukowaną przez H2O2 apoptozę w HPEM, co wykazano za pomocą cytometrii przepływowej do detekcji apoptozy na Rysunku 5C i D (p < 0,001). W przypadku wskaźnika MHC I, analiza Western blot dodatkowo wykazała, że AMG wyraźnie tłumił ekspresję białek w HPEM poddanych uszkodzeniu indukowanemu przez H2O2 (p < 0,05 lub p < 0,01; Rysunki 5E i 5F). W badaniu czynników zapalnych wyniki testu ELISA wskazały, że AMG znacząco zmniejszył poziom cytokin prozapalnych, w tym IFN-γ, IL-6 i IL-15, w HPEM indukowanych H2O2 (p < 0,001; Rysunek 5G). Ponadto hamowanie tych trzech białek prozapalnych przez AMG zostało dodatkowo potwierdzone analizą Western blot, przedstawioną na Rysunku 5H i I (p < 0,01 lub p < 0,001).
AMG obniżył poziomy ROS w HPEM indukowane przez H2O2
W porównaniu z komórkami HPEM, które nie były traktowane H2O2 oraz AMG, stymulacja 600 µM H2O2 znacząco zwiększyła produkcję ROS, co potwierdziły wyniki eksperymentów z immunofluorescencji (p < 0,001, Rycina 6A i B) oraz cytometrii przepływowej (p < 0,001, Rycina 6C i D). Co ciekawe, AMG znacząco zredukował ilość ROS (p < 0,001, Rycina 6).
AMG ograniczył zdarzenie stresu oksydacyjnego w HPEM indukowane przez H2O2
Podobnie autorzy ocenili, w jaki sposób AMG wpływa na stres oksydacyjny w HPEM wywołany przez H2O22O2W porównaniu z grupą kontrolną, H2O2 stymulacja doprowadziła do spadku aktywności SOD, CAT i GPX-4 (p < 0.001, Rycina 7A i B), przy jednoczesnym znaczącym zwiększeniu poziomów MDA (p < 0.001, Rycina 7C). Co zaskakujące, interwencja z użyciem AMG znacząco zwiększyła aktywność SOD, CAT i GPX-4 (p < 0.001, Rycina 7A i B), jednocześnie obniżając poziom MDA (p < 0.001, Rycina 7C). Dalsze wyniki analizy Western blot potwierdziły również, że interwencja AMG znacząco zwiększyła ekspresję białek SOD, CAT i GPX-4 (p < 0,05 lub p < 0.01, Rysunek 7D i E).
AMG zwiększył poziom FOXO3a oraz regulowane przez FOXO3a poziomy SOD, CAT i GPX-4 w HPEM indukowanych przez H2O2
W porównaniu z grupą kontrolną stymulacja H2O2 doprowadziła do wyraźnego zmniejszenia ekspresji genu FOXO3a (p < 0,001, Rysunek 8A), podczas gdy interwencja AMG znacząco złagodziła ten efekt (p < 0,05, Rysunek 8A). Dalsze analizy Western blot (p < 0,05, Rysunek 8B i C) oraz immunofluorescencji (p < 0,05, Rysunek 8D i E) potwierdziły również, że zastosowanie AMG istotnie zwiększyło ekspresję białka FOXO3a. Eksperyment ChIP-PCR potwierdził, że AMG może zwiększyć poziomy ekspresji SOD (p < 0,001), CAT (p < 0,01) i GPX-4 (p < 0,01), co pokazano na Rysunku 8F–I, a także poziom wzbogacenia FOXO3a w promotorach SOD (p < 0,001), CAT (p < 0,001) i GPX-4 (p < 0,001) (Rysunek 8J–L).
AMG hamuje zależne od FOXO3a zjawiska stresu oksydacyjnego i apoptozy w komórkach HPEM indukowane przez H2O2
W pierwszej kolejności badacze opracowali linię HPEM o niskiej ekspresji FOXO3a, która charakteryzowała się znacznym spadkiem poziomów ekspresji białka (p < 0.001, Rycyna 9A i B) oraz genu (p < 0.001, Rycyna 9C) FOXO3a. Wyniki cytometrii przepływowej dodatkowo wykazały, że w porównaniu z grupą H2O2, AMG wyraźnie zredukowało poziomy ROS oraz apoptozę komórek HPEM o niskiej ekspresji FOXO3a (p < 0.001, Rycyna 9D–G). Jednocześnie AMG znacząco zwiększyło ekspresję białka i genu FOXO3a (p < 0.01, Rycyna 9H–J) oraz poziomy ekspresji białek SOD, CAT i GPX-4 regulowanych przez FOXO3a (p < 0.05, p < 0.01 lub p < 0.001, Rycyna 9H, K–O) i odpowiednich genów w komórkach HPEM o niskiej ekspresji FOXO3a.
DOSTĘPNOŚĆ DANYCH:
Wszystkie surowe dane są dostępne w publicznym repozytorium danych pod następującym adresem URL https://doi.org/10.5281/zenodo.22090466.
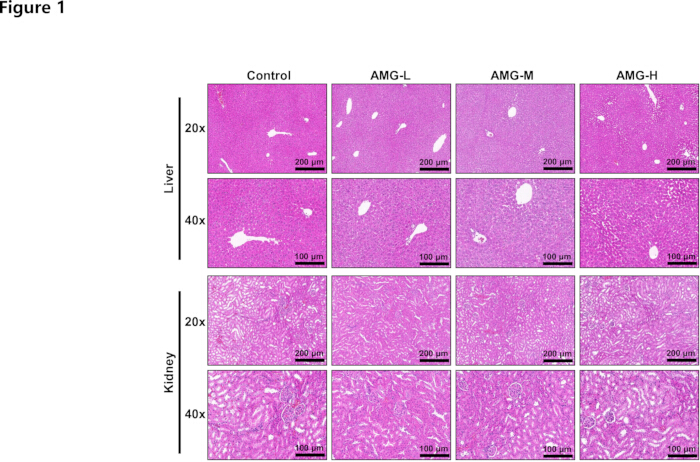
Rysunek 1: Barwienie HE. Barwienie HE zostało wykorzystane do oceny toksyczności zależnej od dawki AMG (60, 90 i 120 mg/kg) w wątrobie i nerkach zdrowych myszy C3H/HeJ. Przy powiększeniu 20× (200 µm) i 40× (100 µm) nie zaobserwowano specyficznych uszkodzeń patologicznych wątroby i nerek. n = 6. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
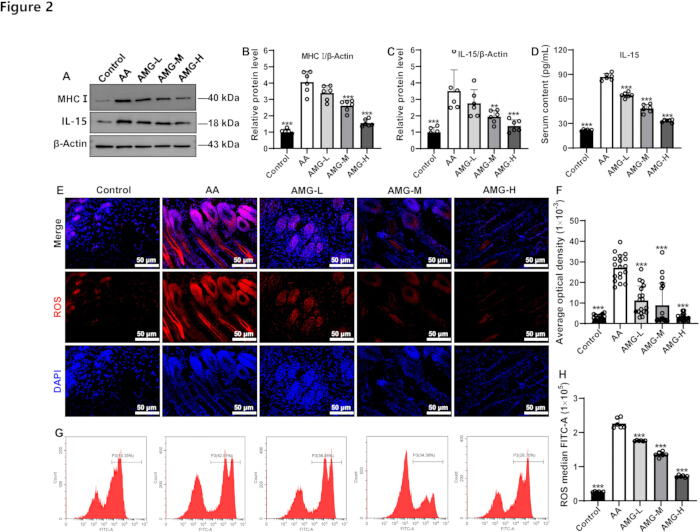
Rycina 2Wpływ AMG na MHC I, IL-15 i ROS w próbkach skóry myszy z AA. (A–C), AMG obniżył poziom ekspresji białek MHC I oraz IL-15, co oceniono za pomocą metody Western blot. (D), obniżone AMG Poziomy IL-15 w surowicy myszy.E i F), AMG obniżył poziomy ROS w próbkach skóry mysiej, co wykryto za pomocą testu IF. (G i H), AMG obniżył poziomy ROS w próbkach skóry mysiej, co określono za pomocą cytometrii przepływowej. Wyniki eksperymentalne przedstawiono w formie średniej ± SD. **p < 0,01 oraz ***p < 0,001 w porównaniu z grupą AA; n = 6. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
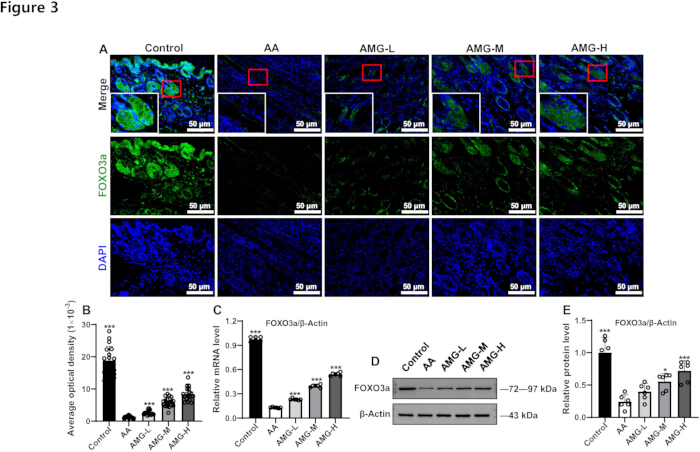
Rycina 3: Wpływ AMG na poziomy białka i genu FOXO3a w próbkach skóry myszy z AA. (A) AMG zwiększyło poziomy białka FOXO3a, ocenione za pomocą testu IF. (B) Wyniki ilościowe testu IF. (C) AMG zwiększyło ekspresję genu FOXO3a. (D) AMG zwiększyło ekspresję białka FOXO3a, wykrytą metodą Western blot. (E) Wyniki ilościowe analizy Western blot. Wyniki eksperymentalne przedstawiono jako średnia ± SD. *p < 0.05 oraz ***p < 0.001 w stosunku do grupy AA; n = 6. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
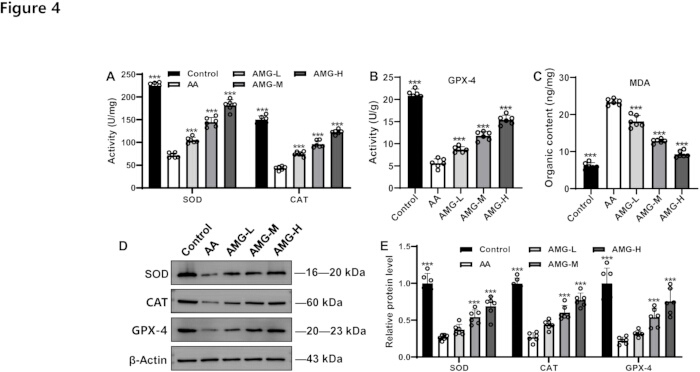
Rysunek 4: Wpływ AMG na wskaźniki stresu oksydacyjnego w próbkach skóry myszy AA. (A) AMG stymulowało poziomy SOD i CAT, oceniane przy użyciu biochemicznego zestawu testowego. W (B) i (C) AMG zwiększyło poziomy GPX-4 i obniżyło poziomy MDA. (D) reprezentatywne prążki białkowe SOD, CAT i GPX-4. (E) ilościowe wyniki ekspresji białek SOD, CAT i GPX-4. Wyniki eksperymentalne przedstawiono w formie średnia ± SD. ***p < 0.001 vs. grupa AA; n = 6. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
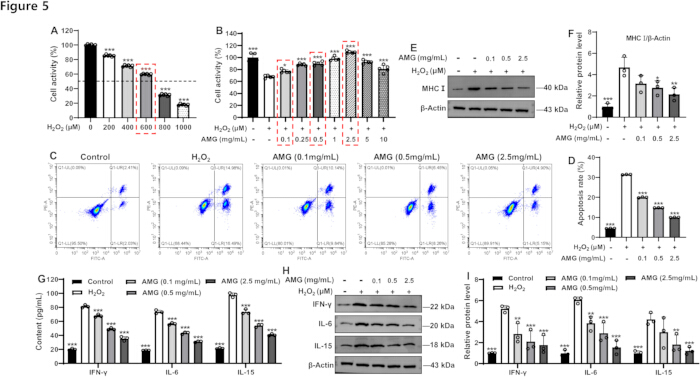
Rycina 5: Wpływ AMG na wskaźniki apoptozy i stanu zapalnego w komórkach HPEM indukowanych przez H2O2. (A) wpływ różnych stężeń H2O2 na żywotność komórek HPEM (n = 6). (B) Wpływ różnych stężeń AMG na przeżywalność komórek HPEM indukowanych bodźcami H2O2 (n = 6). (C) Analiza cytometryczna przepływowa została zastosowana w celu oceny apoptozy indukowanej przez H2O2 w komórkach HPEM pod wpływem AMG. (D) Wyniki statystyczne apoptozy komórek. (E) Prążki Western blot dla MHC I. (F) Wynik ilościowy względnej ekspresji białka MHC I. (G) wpływ AMG na IFN-γ, IL-6 i IL-15 w komórkach HPEM indukowanych bodźcami H2O2. (H) Prążki Western blot dla IFN-γ, IL-6 i IL-15. (I) Wynik ilościowy względnego poziomu białek IFN-γ, IL-6 i IL-15. Wyniki eksperymentalne przedstawiono w formie średniej ± SD. *p < 0.05, **p < 0.01 oraz ***p < 0.001 względem grupy H2O2; n = 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
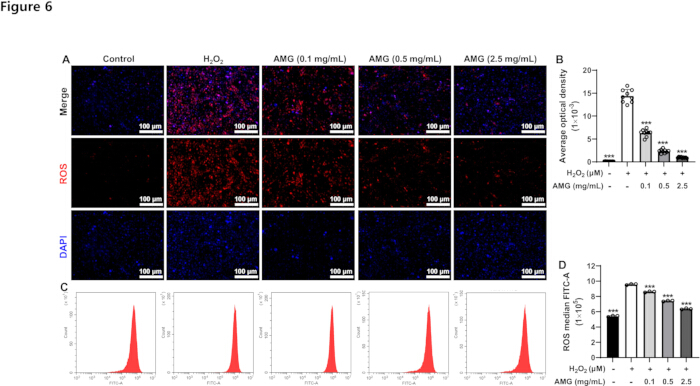
Rysunek 6: Wpływ AMG na ROS w HPEMs indukowanych H2O2. (A) Obraz fluorescencyjny ROS. (B) Ilościowe statystyczne wyniki fluorescencji ROS. (C) Obraz ROS uzyskany metodą cytometrii przepływowej. (D) Ilościowe statystyczne wyniki cytometrii przepływowej ROS. Wyniki eksperymentalne przedstawiono w formie średnia ± SD. ***p < 0.001 vs. grupa H2O2; n = 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
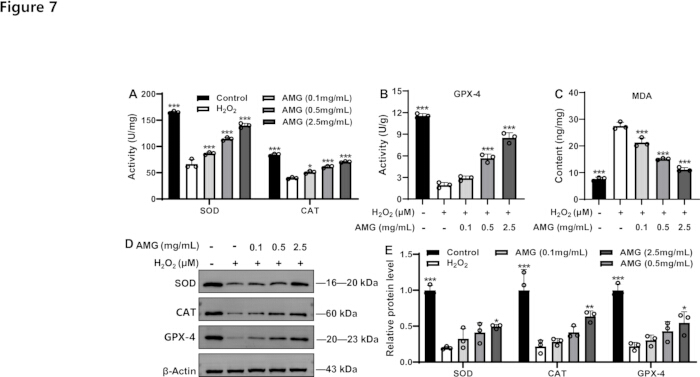
Rycina 7: Wpływ AMG na wskaźniki stresu oksydacyjnego w HPEMs indukowanego H2O2. Poziomy SOD (A), CAT (B), GPX-4 (C) oraz MDA w HPEMs zmierzono przy użyciu zestawów biochemicznych lub ELISA. Prążki Western blot dla SOD, CAT i GPX-4 (D) oraz wyniki ich analizy ilościowej (E). Wyniki eksperymentalne przedstawiono jako średnia ± SD. *p < 0.05, **p < 0.01 oraz ***p < 0.001 względem grupy H2O2; n = 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
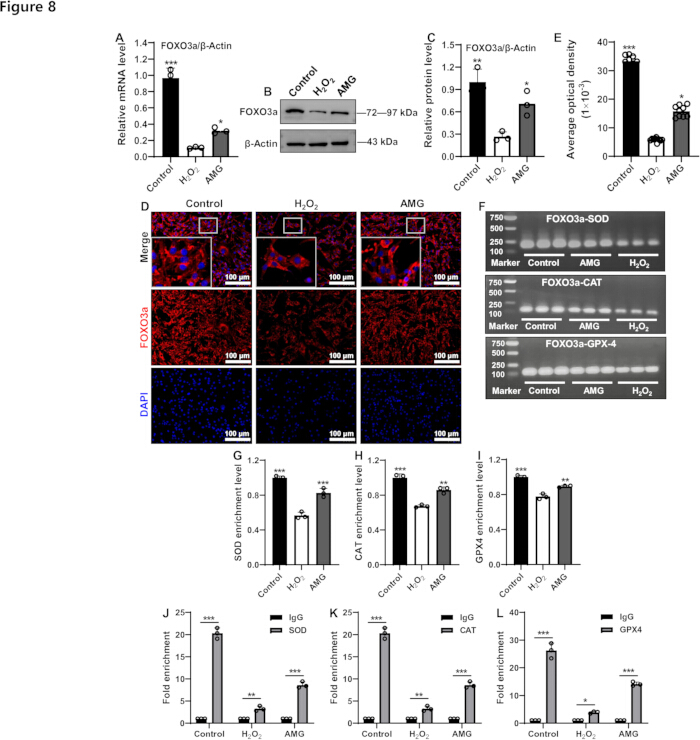
Rycina 8: Wpływ AMG na FOXO3a w HPEM indukowany przez H2O2. (A) poziom ekspresji genu FOXO3a. Prążki Western blot dla FOXO3a (B) oraz wyniki ilościowe (C). Obraz fluorescencyjny FOXO3a (D) oraz ilościowe statystyczne wyniki fluorescencji (E). (F) reprezentatywne wzory elektroforetyczne ChIP-PCR dla FOXO3a-SOD, FOXO3a-CAT i FOXO3a-GPX-4. Analiza ilościowa wartości szarości prążków ChIP-PCR dla SOD (G), CAT (H) i GPX-4 (I). Poziomy wzbogacenia FOXO3a w promotorach SOD (J), CAT (K) i GPX-4 (L) określone za pomocą ChIP-PCR. Wyniki eksperymentalne przedstawiono w formie średniej ± SD. *p < 0.05, **p < 0.01 oraz ***p < 0.001 względem grupy H2O2 lub względem wskazanych grup; n = 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
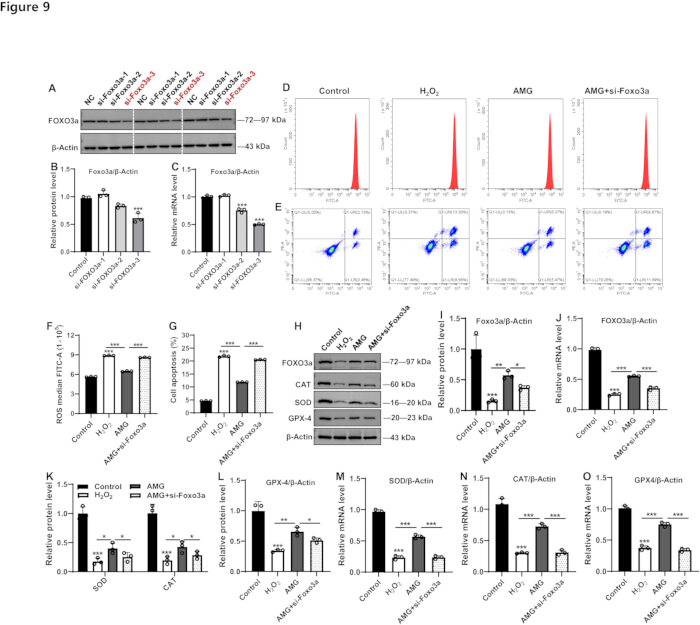
Rycina 9: Wpływ AMG na stres oksydacyjny i apoptozę w komórkach HPEM o niskiej ekspresji FOXO3a po stymulacji H2O2. (A) Prążki western blot dla FOXO3a oraz wynik ilościowy (B). (C) Wynik ilościowy ekspresji mRNA FOXO3a. (D) Wykres cytometrii przepływowej dla ROS i apoptozy komórek (E). Powiązane analizy statystyczne (F i G). (H) Prążki western blot dla FOXO3a, SOD, CAT i GPX-4. (I) Wynik ilościowy ekspresji białka FOXO3a. (J) Wynik ilościowy ekspresji mRNA FOXO3a. (K i L) Wyniki ilościowe ekspresji białek SOD, CAT i GPX-4. Wyniki ilościowe ekspresji genów SOD (M), CAT (N) i GPX-4 (O). Wyniki eksperymentalne przedstawiono jako średnia ± SD. *p < 0.05, **p < 0.01 oraz ***p < 0.001 w stosunku do grupy kontrolnej lub wskazanych grup; n = 3. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
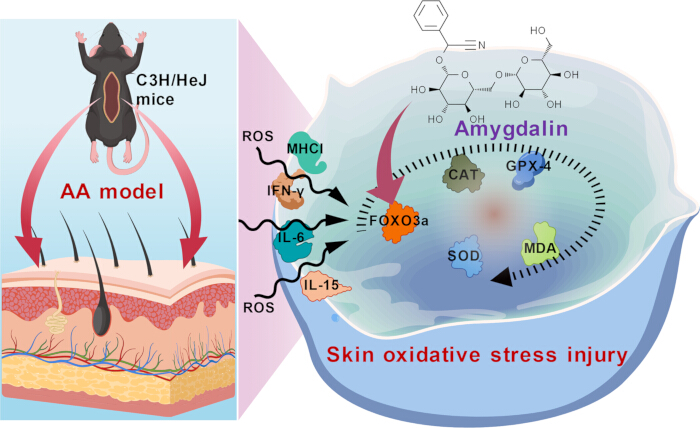
Rysunek 10: Schemat. Ten schemat ilustruje mechanizm, za pomocą którego AMG stymuluje ekspresję FOXO3a, hamując tym samym stres oksydacyjny i stan zapalny oraz poprawiając AA. Został on stworzony przez autorów przy użyciu BioGDP.com i nie wiążą się z nim żadne kwestie dotyczące praw autorskich. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
| Geny | Gatunki | Sekwencje (5' - 3') | Długość (bp) |
| FOXO3a | Mysz | Forward: GCAAGCCGTGTACTGTGGA | 116 |
| Odwrócona: CCTATTGTAGCGAGCGGGC | |||
| FOXO3a | Człowiek | Forward: CGGACAAACGGCTCACTCT | 150 |
| Odwrócona: TAGTCAAGCTAGTAACGC CCAG | |||
| dysmutaza ponadtlenkowa | Człowiek | Forward: AAAGATGGTGTGGCCGATGT | 167 |
| Odwrócona sekwencja: CGCACTTCAGCAACCGAACG | |||
| CAT | Człowiek | Forward: CTATCCTGACACTCACCGCC | 129 |
| Odwrotna: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Człowiek | Forward: GCAAGGGCATCCTGGGAAAT | 84 |
| Odwrócona: GTTCTTGTCGATGAGGAACTGTG | |||
| β-aktyna | Człowiek | Forward: AATCTGGCACCACACCTTCTACAA | 172 |
| Odwrócona: GGATAGCACAGCCTGGATAGCAA | |||
| β-Aktyna | Mysz | Forward: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Odwrócona: CCTACCATTCAGGA CACCGTA |
Tabela 1: Informacje o sekwencjach genów do qRT-PCR.Startery użyte do qRT-PCR.
| Geny | Gatunki | Sekwencje (5' - 3') | Długość (bp) |
| dysmutaza ponadtlenkowa | Człowiek | Forward: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Rewers: ATCCGCCCACAGACACGAGAG | |||
| Katalaza | Człowiek | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Odwrócona: CCTTTCCCTCTTAGTTGGTGGG | |||
| GPX-4 | Człowiek | Forward: TGGCACATTTTGGGGTTGGAAC | 103 |
| Odwrotna: TGAACGCTCCTCCTCCTTAAACG |
Tabela 2: Informacje o sekwencjach genów dla ChIP-PCR. Startery użyte do ChIP-PCR.
Dyskusja
Sama amygdalina (AMG) nie wykazuje bezpośredniej toksyczności. Jest ona hydrolizowana przez enzymy mikroflory jelitowej lub kwas żołądkowy, co prowadzi do powstania i uwolnienia wysoce toksycznego cyjanowodoru49. Cyjanowodór jest następnie szybko wchłaniany z przewodu pokarmowego do krwiobiegu i rozprzestrzenia się w tkankach organizmu, wywołując hipoksję w tkankach układu nerwowego, układu sercowo-naczyniowego oraz układu oddechowego50. Pod względem mechanizmu, cyjanowodór wiąże się z jonami żelaza w oksydazie cytochromowej, blokując łańcuch oddechowy komórki, co skutkuje hipoksją tkankową i zaburzeniami metabolicznymi komórek oraz wywołuje ostre zatrucie51. Objawy toksyczności obejmują ból głowy, nudności, wymioty i trudności w oddychaniu49,52. W ciężkich przypadkach może dojść do niewydolności oddechowej i śmierci49,52. Dlatego zapewnienie bezpiecznego zakresu dawek AMG jest warunkiem wstępnym badania jej efektów farmakologicznych. W niniejszym badaniu autorzy potwierdzili najpierw w badaniu patomorfologicznym, że zastosowane dawki (60, 90 i 120 mg/kg) nie wywołały toksyczności wątroby ani nerek u zdrowych myszy C3H/HeJ, co stanowi podstawę do dalszych badań nad leczeniem alopecia areata za pomocą AMG.
IFN-γ pełni rolę kluczowego czynnika zapalnego podczas rozwoju AA, będąc wydzielanym głównie przez aktywowane limfocyty T CD4+/CD8+53,54,55. Zaburza on przywilej immunologiczny mieszków włosowych (np. poprzez hamowanie niskiej ekspresji MHC I), co skłania autoreaktywne limfocyty T do ataku na melanocyty mieszków włosowych, prowadząc do wakuolizacji macierzy włosa i nieprawidłowej keratynizacji cebulki włosa56,57. Eksperymenty na zwierzętach wykazały, że myszy z niedoborem genu IFN-γ wykazują oporność na AA58. IL-6 i IL-15 mogą wzmacniać odpowiedzi immunologiczne typu Th1 poprzez aktywację kaskady przekazywania sygnału JAK/STAT i promowanie uwalniania IFN-γ 59. Ponadto IL-15 może stymulować proliferację komórek NK i limfocytów T, nasilając naciek zapalny wokół struktur mieszków włosowych60. Prawidłowe cebulki włosów unikają nadzoru immunologicznego dzięki niskiej ekspresji MHC I, podczas gdy u pacjentów z AA ekspresja MHC I jest nieprawidłowo podwyższona, co czyni melanocyty mieszków włosowych celem ataku limfocytów T61. W niniejszym badaniu autorzy zauważyli, że leczenie AMG znacząco obniżyło poziomy białek MHC I i IL-15 w skórze myszy C3H/HeJ. Poprzednie eksperymenty na zwierzętach potwierdziły również, że AMG może hamować poziomy IFN-γ i IL-6 u myszy z AA38. W przypadku uszkodzenia HPEMs wywołanego przez H2O2, ekspresja MHC I, a także cytokin prozapalnych, w tym IFN-γ, IL-6 i IL-15, została znacznie ograniczona po zastosowaniu AMG. Dane te sugerują, że potencjał AMG w leczeniu AA może być związany z utrzymaniem równowagi między odpornością a stanem zapalnym.
Nierównowaga między systemem enzymów przeciwutleniających (SOD, CAT i GPX-4) a markerami peroksydacji lipidów, takimi jak MDA i ROS, odgrywa kluczową rolę w patogenezie AA62. SOD redukuje stres oksydacyjny, katalizując konwersję O2·⁻ do H2O2, podczas gdy CAT i GPX-4 dalej rozkładają H2O2 do H2O, zapobiegając akumulacji ROS. Dowody sugerują, że nadmiar ROS może wywołać peroksydację lipidów, prowadząc do podwyższonego poziomu MDA i bezpośredniego uszkadzania komórek mieszków włosowych63. U pacjentów z AA zdolność do usuwania ROS w mieszkach włosowych spada, a akumulacja MDA nasila śmierć apoptotyczną komórek brodawki włosa, co skutkuje przedwczesnym przejściem mieszków włosowych w fazę spoczynku63. Ponadto stres oksydacyjny może promować uwalnianie czynnika prozapalnego IFN-γ, co dodatkowo pogarsza atak immunologiczny i degenerację mieszków włosowych64. W niniejszym badaniu naukowcy wykazali, że interwencja z użyciem AMG zmniejszyła nadekspresję ROS w skórze myszy z AA oraz ograniczyła uszkodzenia komórek HPEM indukowane przez H2O2. Jednocześnie badania eksperymentalne in vivo i ex vivo wykazały, że leczenie AMG znacząco zwiększyło wskaźniki przeciwutleniające (SOD, CAT i GPX-4), osłabiając jednocześnie prooksydacyjny wskaźnik MDA. Dowody te wskazują, że utrzymanie równowagi stresu oksydacyjnego jest mechanizmem działania AMG w przypadku AA. Biorąc pod uwagę, że upośledzona aktywność GPX-4 prowadzi do niekontrolowanego generowania MDA, może to wywołać proces ferroptozy. Procesy molekularne te mogą również przyczyniać się do zaostrzenia AA i stanowić potencjalny mechanizm działania leczenia AMG. Wszystkie te zależności wymagają w przyszłości dalszej weryfikacji eksperymentalnej.
Jako kluczowy czynnik transkrypcyjny, FOXO3a może uczestniczyć w patogenezie AA zarówno poprzez stres oksydacyjny, jak i szlaki regulacji immunologicznej65Może ono translokować do jądra komórkowego w warunkach stresu oksydacyjnego, co prowadzi do zwiększenia ekspresji kluczowych enzymów przeciwutleniających, takich jak SOD i CAT, w celu usunięcia nadmiaru ROS i zmniejszenia uszkodzeń oksydacyjnych tkanki skóry głowy. Poprzez łagodzenie lokalnego obciążenia oksydacyjnego, FOXO3a może stabilizować przywilej immunologiczny mieszków włosowych i hamować atak autoimmunologiczny, który prowadzi do niebliznowicowego wypadania włosów. W zakresie regulacji stresu oksydacyjnego, aktywacja FOXO3a może zwiększać ekspresję enzymów przeciwutleniających, takich jak SOD i CAT, oraz hamować akumulację ROS.65Jednak upośledzona funkcja FOXO3a może prowadzić do zwiększonej generacji MDA, kluczowego produktu peroksydacji lipidów, co w konsekwencji nasila apoptozę komórek 66. Na poziomie regulacji immunologicznej FOXO3a wywołuje ataki autoimmunologiczne poprzez regulację antygenów ograniczonych przez MHC I.67W badaniu tym wykazano, że AMG gwałtownie zwiększyło poziom białka i genu FOXO3a w tkance skórnej myszy C3H/HeJ oraz w komórkach HPEM indukowanych H2O2. Ponadto AMG obniżyło poziom ROS i apoptozę komórek, jednocześnie podnosząc ekspresję FOXO3a oraz poziomy regulowanych przez FOXO3a enzymów SOD, CAT i GPX-4 w komórkach HPEM o niskiej ekspresji FOXO3a. Wspólnie wyniki te wskazują, że efekt terapeutyczny AMG w przypadku AA jest ściśle powiązany z regulowaną przez FOXO3a równowagą między stresem oksydacyjnym a apoptozą komórkową. Biorąc pod uwagę związek przyczynowy między indukowanym przez AMG białkiem FOXO3a a poprawą w AA, w przyszłych badaniach konieczne jest przeprowadzenie nadekspresji FOXO3a lub hamowania farmakologicznego w warunkach interwencji z użyciem AMG. Ponadto kwestia tego, czy indukowane przez AMG białko FOXO3a może łagodzić stres oksydacyjny i modulować odpowiedzi zapalne, aby chronić macierzyste komórki mieszka włosowego przed uszkodzeniami indukowanymi przez ROS oraz destrukcją immunologiczną, pozostaje do zbadania. Innym punktem wartym odnotowania jest to, czy AMG wykazuje swój efekt przeciwutleniający poprzez bezpośrednie przeciwdziałanie toksyczności H₂O₂ lub poprzez regulację wewnątrzkomórkowej transdukcji sygnału pozostaje w tych badaniach kwestią nierozstrzygniętą.
Podsumowując, niniejsze badanie potwierdziło w pierwszej kolejności, że AMG nie wykazuje potencjalnej toksyczności wobec wątroby i nerek w przetestowanych dawkach. Ponadto na poziomie molekularnym wykazano, że AMG może promować ekspresję FOXO3a, tym samym aktywując transkrypcyjnie ekspresję SOD, CAT i GPX-4 oraz hamując reakcje zapalne i zdarzenia apoptotyczne w leczeniu AA (Rysunek 10). Niemniej jednak, pewne ograniczenia istniejące w tym badaniu wymagają dalszego zbadania i wyjaśnienia w przyszłych pracach. Po pierwsze, wyjaśnienie długoterminowej toksyczności i właściwości farmakokinetycznych AMG u zwierząt z AA stanowi podstawę i warunek wstępny do pogłębionych badań nad jego efektami farmakologicznymi i mechanizmami molekularnymi. Po drugie, efekty farmakologiczne AMG w leczeniu AA wciąż wymagają potwierdzenia w wielkoskalowych badaniach na wielu modelach zwierzęcych oraz w badaniach klinicznych. W odniesieniu do mechanizmu molekularnego konieczne jest przeprowadzenie eksperymentów z ratowaniem (rescue experiments), aby dodatkowo potwierdzić, czy to FOXO3a pośredniczy w działaniu farmakologicznym AMG. Kwestia tego, czy jest to bezpośrednia aktywność przeciwutleniająca AMG, czy efekt przeciwutleniający wywierany przez indukowany przez AMG białko FOXO3a, wymaga dalszych badań.
Oświadczenia
Autorzy nie zgłaszają żadnych konfliktów interesów.
AUTORZY’ WKŁAD:
Xun He: Dochodzenie, Metodologia, Pisanie – oryginalny projekt. Jingsong Liu, Jiawei Wang i Zhe Dai: korekcja danych. Yugang Gong, Wei Lu i Xiaowei Sha: oprogramowanie, wizualizacja i weryfikacja. Xun He: koncepcja, pisanie – Recenzja & Edycja, pozyskiwanie środków i nadzór.
Podziękowania
Praca ta była wspierana przez Sichuan Provincial Cadres Healthcare Committee (2024-221).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 5×All-In-One MasterMix (z zestawem do usuwania genomowego DNA AccuRT) | Applied Biological Materials Inc., Jiangsu, Chiny | G492 | |
| β-Przeciwciało przeciwko aktynie | Affinity Biosciences Co., Ltd., Wuhan, Chiny | AF7018 | |
| Amygdalina | Chengdu Herbpurify Co., Ltd., Chengdu, Chiny | K-001-181216 | |
| Przeciwciało przeciwko katalazie | Proteintech, Wuhan, Chiny | 66765-1-Ig | |
| Zestaw do oznaczania katalazy | Elabscience, Wuhan, Chiny | E-BC-K031-M | |
| myszy C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, Chiny | N000190 | |
| Zestaw do analizy ChIP | Beyotime Biotechnology, Szanghaj, Chiny | P2078 | |
| pożywka hodowlana 254 | Gibco, Thermo Fisher Scientific, USA | M-254-500 | |
| odczyn do barwienia DAPI | Servicebio, Wuhan, Chiny | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Szanghaj, Chiny | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-bez barwnika | Applied Biological Materials Inc., Jiangsu, Chiny | MasterMix-ES | |
| Fast Black HB | Sangon Biotech Co., Ltd., Szanghaj, Chiny | A602008-0025 | |
| Płodowa surowica bydlęca | Każdy zielony | 13011-8611 | |
| Mikroskop fluorescencyjny | SOPTOP | CX40 | |
| przeciwciało przeciwko FOXO3a | Proteintech, Wuhan, Chiny | 10849-1-AP | |
| Mikrotom kriostatowy | Thermo | Kriotom E | |
| Przeciwciało przeciwko peroksydazie glutationowej 4 | Proteintech, Wuhan, Chiny | 67763-1-Ig | |
| Zestaw do oznaczania peroksydazy glutationowej 4 | Elabscience, Wuhan, Chiny | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| Krem z imikimodem | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, Chiny | H20030129 | |
| Przeciwciało przeciwko interferonowi gamma | Proteintech, Wuhan, Chiny | 15365-1-AP | |
| Zestaw do oznaczania interferonu gamma | Elabscience, Wuhan, Chiny | E-EL-H0108 i E-EL-M0048 | |
| Przeciwciało przeciwko interleukinie 6 | Proteintech, Wuhan, Chiny | 21865-1-AP | |
| Zestaw do oznaczania interleukiny 6 | Elabscience, Wuhan, Chiny | E-EL-H6156 oraz E-EL-M0044 | |
| Przeciwciało przeciwko interleukinie 15 | Affinity Biosciences Ltd., Wuhan, Chiny | DF2521 | |
| Zestaw do oznaczania interleukiny 15 | Elabscience, Wuhan, Chiny | E-EL-H0222 i E-EL-M0728 | |
| Zestaw do oznaczania malondialdehydu | Elabscience, Wuhan, Chiny | E-EL-0060 | |
| przeciwciało przeciwko MHC | Affinity Biosciences Ltd., Wuhan, Chiny | DF8558 | |
| Mikroskop optyczny | ZEISS | Primo Star | |
| Mikrotom do parafiny | Thermo Scientific | HM325 | |
| Oprogramowanie do skanowania patomorfologicznego | 3DHISTECH (Węgry) | Przeglądarka slajdów 2.5.0 | |
| roztwór penicyliny i synthroidu | Biosharp, Pekin, Chiny | BL505A | |
| królicze IgG | Beyotime Biotechnology, Szanghaj, Chiny | A7016 | |
| zestaw do oznaczania ROS | Beyotime Biotechnology, Szanghaj, Chiny | S0033M | |
| Przeciwciało przeciwko dysmutazie ponadtlenkowej 1 | Proteintech, Wuhan, Chiny | 10269-1-AP | |
| Stacja do zatapiania tkanek | Wuhan Junjie Electronics Co., Ltd., Wuhan, Chiny | JB-P5 | |
| Hydroekstraktor do tkanek | Thermo Scientific | STP420 ES | |
| Zestaw do izolacji całkowitego RNA | Foregene, Chengdu, Chiny | RE-03014 | |
| Zestaw do oznaczania całkowitej dysmutazy ponadtlenkowej | Elabscience, Wuhan, Chiny | E-BC-K020-M | |
| Wazelina biała | Shanghai Aladdin Biochemical Technology Co., Ltd., Szanghaj, Chiny | P434227 |
Bibliografia
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.