Elektroakupunktura łagodzi przewlekłą niewydolność serca i patologiczne przebudowy mięśnia sercowego poprzez przywrócenie aktywności neuronalnej w obrębie jądra tractus solitarius. Ta terapeutyczna centralna neuromodulacja wiąże się z upregulacją czynnika transkrypcyjnego YY1, będącego potencjalnym celem biologicznym.
Artykuł badawczy
Centralne mechanizmy elektroakupunktury w przewlekłej niewydolności serca: wnioski z ilościowej proteomiki jądra tractus solitarius
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Przewlekła niewydolność serca (CHF) jest jedną z głównych przyczyn śmiertelności sercowo-naczyniowej na świecie, napędzaną przez dysregulację autonomiczną i nadaktywność układu współczulnego. Chociaż elektroakupunktura (EA) wykazuje działanie kardioprotekcyjne poprzez centralną neuromodulację, jej specyficzne cele molekularne w obrębie jądra tractus solitarius (NTS), kluczowego ośrodka integracji autonomicznej, pozostają niejasne. Aby to zbadać, model CHF u szczurów ustanowiono poprzez podwiązanie lewej przedniej zstępującej tętnicy wieńcowej. Szczury otrzymywały EA w obustronnych punktach akupunktury HT7 przez siedem kolejnych dni. Funkcję serca i uszkodzenie mięśnia sercowego oceniono za pomocą echokardiografii, testów immunoenzymatycznych (ELISA) oraz barwień histologicznych. Aktywność neuronalną NTS oceniono za pomocą immunofluorescencji c-Fos oraz elektrofizjologii in vivo. Mechanizmy molekularne badano przy użyciu proteomiki ilościowej i bioinformatyki, a kluczowe cele zweryfikowano za pomocą ilościowej PCR oraz Western blottingu. EA poprawiła frakcję wyrzutową lewej komory, złagodziła włóknienie mięśnia sercowego i zmniejszyła poziom markerów niewydolności serca w surowicy. Jednocześnie EA przywróciła spontaniczną częstotliwość wyładowań neuronalnych, energię lokalnego potencjału polowego oraz ekspresję c-Fos w NTS. Profilowanie proteomiczne zidentyfikowało 85 kluczowych białek o różnej ekspresji modulowanych przez EA. Stratyfikacja funkcjonalna 58 białek o obniżonej i 27 białek o podwyższonej ekspresji wykazała ich udział odpowiednio w organizacji macierzy zewnątrzkomórkowej oraz w zależnym od ATP przebudowie chromatyny. Podejście polegające na stopniowym przesiewie, integrujące mapowanie sieci topologicznej, analizę wzbogacenia szlaków oraz profilowanie ekspresji tkankowej, zidentyfikowało czynnik transkrypcyjny YY1 jako wysoce responsywny cel kandydujący. Walidacja in vivo potwierdziła, że EA zwiększyła ekspresję YY1. Podsumowując, EA złagodziła patologiczne przebudowy serca i przywróciła aktywność neuronalną NTS. YY1 został zidentyfikowany jako potencjalny cel związany z tą centralną neuromodulacją, co dostarcza wglądu molekularnego w mechanizmy leżące u podstaw efektów EA w CHF.
Wprowadzenie
Przewlekła niewydolność serca (CHF) jest powszechnie uznawana za stadium końcowe różnorodnych patologii sercowo-naczyniowych i pozostaje jedną z głównych przyczyn śmiertelności z przyczyn sercowo-naczyniowych na całym świecie, stanowiąc ogromne obciążenie dla globalnych systemów opieki zdrowotnej1. Progresja patofizjologiczna CHF jest napędzana przede wszystkim przez dysregulację autonomicznego układu nerwowego, charakteryzującą się utrwaloną nadaktywnością współczulną i wycofaniem aktywności przywspółczulnej2. Przywrócenie homeostazy autonomicznej jest zatem uważane za kluczową strategię terapeutyczną mającą na celu łagodzenie patologicznego przebudowy serca i poprawę ogólnej funkcji serca3.
Elektroakupunktura (EA) stanowi nowoczesny rozwój tradycyjnej akupunktury i zyskała szerokie uznanie ze względu na swoją skuteczność kliniczną w leczeniu schorzeń sercowo-naczyniowych4. Szeroko zakrojone badania, w tym nasze poprzednie analizy, wykazały, że terapia ta wykazuje znaczące działanie kardioprotekcyjne, głównie poprzez modulację centralnego autonomicznego układu nerwowego. W szczególności wykazaliśmy, że EA w punkcie akupunkturowym Shenmen (HT7) może skutecznie hamować nadmierny odpływ sympatyczny i przywracać równowagę sympatykowagalną poprzez ukierunkowane centralne mechanizmy neuronalne, łagodząc tym samym patologiczny przebieg CHF5,6,7,8.
Jądro pasma samotnego (NTS), zlokalizowane w rdzeniu przedłużonym, jest kluczowym ośrodkiem integracyjnym odpowiedzialnym za utrzymanie centralnej równowagi autonomicznej. Pełni ono rolę głównej stacji przekaźnikowej dla odruchów sercowo-naczyniowych i obwodowych sygnałów sensorycznych, regulując dynamiczną równowagę między napięciem współczulnym a błędnym9. Pomimo jego anatomicznego i funkcjonalnego znaczenia, specyficzne zmiany molekularne w tym krytycznym ośrodku pnia mózgu podczas leczenia CHF za pomocą EA pozostają w dużej mierze nieznane. Zaawansowana proteomika wysokoprzepustowa w połączeniu z analizą bioinformatyczną stanowi potężne narzędzie do bezstronnego mapowania złożonych sieci białkowych i kaskad sygnalizacyjnych zaangażowanych w ten centralny proces neurobiologiczny10.
W związku z tym celem niniejszego badania było zbadanie wpływu elektroakupunktury (EA) w punkcie akupunkturowym HT7 na funkcję serca oraz aktywność neuronów NTS w przypadku CHF, a także charakterystyka zmian molekularnych w NTS związanych z leczeniem EA. Poprzez zintegrowanie elektrofizjologii in vivo z ilościową proteomiką, analizą bioinformatyczną i walidacją molekularną, badanie to miało na celu zidentyfikowanie potencjalnych celów molekularnych związanych z centralną neuromodulacją indukowaną przez EA w przebiegu CHF.
Protokół
Wszystkie metody z udziałem kręgowców zostały przeprowadzone zgodnie z wytycznymi Komitetu ds. Opieki i Wykorzystania Zwierząt Uniwersytetu Medycyny Chińskiej w Anhui, z numerem zatwierdzenia AHUCM-rats-2024145. Wykorzystane odczynniki i sprzęt wymieniono w Tabeli materiałów.
Przygotowanie i grupowanie zwierząt
Do wszystkich eksperymentów wykorzystano samce szczurów Sprague-Dawley klasy czystej, w wieku 8 tygodni i o masie od 20 do 250 g. Zwierzęta przetrzymywano w kontrolowanym środowisku przy temperaturze 24 ± 2 °C i wilgotności względnej 50%–60%, w standardowym 12-godzinnym cyklu światło-ciemność. Wszystkie szczury miały ad libitum dostęp do pożywienia i wody oraz przeszły 1-tygodniowy okres aklimatyzacji przed rozpoczęciem jakichkolwiek procedur eksperymentalnych.
W Eksperymencie I, w którym oceniano funkcjonalną i centralną aktywność neuronów, 24 szczury randomly podzielono na cztery grupy po sześć zwierząt każda: grupę Sham, CHF, EA oraz Sham EA (Rycina 1A). W Eksperymencie II, służącym do oceny celów molekularnych i proteomiki wysokoprzepustowej, 36 szczurów randomly przydzielono do trzech grup po 12 osobników: Sham, CHF oraz EA. Wielkość próby określono na podstawie metody równania zasobów (Resource Equation Method), aby przestrzegać etyki dobrostanu zwierząt i zasady redukcji, zapewniając jednocześnie poprawność statystyczną (wartość E = 20 dla Eksperymentu I; wartość E = 3 dla Eksperymentu II)1. Strategia doboru wielkości próby była spójna z protokołami stosowanymi w poprzednich badaniach nad EA w chorobach układu sercowo-naczyniowego8,12. Analizy mocy post hoc wykazały, że moc statystyczna przekraczająca 0,90 potwierdza zasadność takiego przydziału. Grupę Sham EA wykluczono z Eksperymentu II, ponieważ wstępne oceny funkcjonalne wskazały na brak skuteczności terapeutycznej.
Utworzenie modelu przewlekłej niewydolności serca
Szczury poddano 12-godzinnej głodówce przed operacją, zapewniając im swobodny dostęp do wody. Znieczulenie wprowadzono za pomocą 3% izofluranu i utrzymywano na poziomie 1,5%–2% izofluranu podczas zabiegu. Ponieważ izofluran jest anestetykiem lotnym, zastosowano odpowiedni system odprowadzania gazów, a procedurę przeprowadzono w dobrze wentylowanym pomieszczeniu, aby zapobiec ekspozycji zawodowej.
Standardowo rejestrowano w sposób ciągły elektrokardiogramy (EKG) kończyn. Wykonano lewostronną torakotomię w celu odsłonięcia serca, a lewą tętnicę wieńcową zstępującą (LAD) podwiązano trwale 2 do 3 mm poniżej uszka lewego przedsionka, używając niewchłanialnej nici chirurgicznej 7-013. Skuteczność niedokrwienia potwierdzono poprzez identyfikację uniesienia odcinka ST o co najmniej 0,2 mV w EKG (Rysunek 1B). Aby zapobiec infekcji i złagodzić ból, przez trzy kolejne dni po operacji podawano codziennie dożylne iniekcje penicyliny (20 0 U/mL) oraz podskórne iniekcje karprofenu (5 mg/kg).
W grupie kontrolnej (sham) przeprowadzono identyczną procedurę torakotomii, a następnie wykonano powierzchowne wprowadzenie igły w odpowiadającym lokalizacji anatomicznej miejscu, bez podwiązania tętnicy wieńcowej LAD. Zapewniono taką samą opiekę i monitorowanie pooperacyjne. Ocenę echokardiograficzną przeprowadzono 4 tygodnie po operacji. Model uznano za pomyślnie ustanowiony, gdy frakcja wyrzutowa lewej komory (LVEF) wynosiła ≤45%8 (Rycina 1C). Systematycznie wykluczano zwierzęta, które nie spełniały tych kryteriów, wykazywały przedoperacyjne nieprawidłowości w zapisie EKG lub u których wystąpiła przedwczesna śmiertelność. Dodatkowe szczury poddano identycznym protokołom chirurgicznym, aby niezwłocznie zastąpić wykluczone zwierzęta i utrzymać jednolitą wielkość próby.
Interwencja z użyciem elektroakupunktury
Zgodnie z uznanymi protokołami anatomii porównawczej14, obustronne punkty akupunkturowe HT7 na południku Serca (Hand-Shaoyin Heart Meridian) zlokalizowano na stronie dłoniowej poprzecznej zmarszczki nadgarstka w pobliżu krawędzi łokciowej, bezpośrednio w zagłębieniu promieniowym ścięgna mięśnia zginacza nadgarstka łokciowego. Obszar lokalny poddano rutynowej dezynfekcji. Dwie sterylne jednorazowe igły do akupunktury (0,25 x 25 mm) wprowadzono prostopadle do obszaru każdego punktu HT7 na głębokość docelową od 2 do 3 mm, zachowując odstęp około 1 mm, aby pozostać ściśle w obrębie tego samego punktu akupunkturowego. Na potrzeby dokumentacji wideo głębokość wkłucia zweryfikowano wizualnie poprzez uprzednie zaznaczenie trzonu igły w pozycji 3 mm przed wprowadzeniem.
Jedną igłę przymocowano do terminala katody aparatury EA, a sąsiednią igłę do terminala anody w celu utworzenia lokalnego obwodu elektrycznego (Rycyna 1D). Ciągły przebieg sygnału elektrycznego był dostarczany z częstotliwością 2 Hz i natężeniem 1 mA, skalibrowany tak, aby wywoływać widoczne, lecz łagodne drżenia mięśni w odpowiadających im kończynach, przez 30 min dziennie przez siedem kolejnych dni w znieczuleniu izofluranem.
W celu uwzględnienia niespecyficznych reakcji somatosensorycznych w kohorcie z interwencją pozorowaną zastosowano minimalny protokół nakłuwania15,16. Sterylne igły wprowadzano powierzchownie na głębokość 0,5–1 mm w tych samych lokalizacjach HT7, bez podłączania przewodów elektrycznych i bez podawania prądu, zachowując 30-minutowy czas trwania znieczulenia. Grupy kontrolne Sham oraz CHF w stanie bazowym były poddawane identycznej codziennej ekspozycji na izofluran (1,5%–2% izofluranu przez 30 min dziennie przez siedem kolejnych dni) bez nakłuwania ani stymulacji elektrycznej. Procedura ta ustandaryzowała poziom bazowy znieczulenia we wszystkich kohortach eksperymentalnych i pozwoliła kontrolować potencjalne artefakty neurosupresyjne lub kardioprotekcyjne wywołane powtarzającą się anestezją lotną.
Ocena echokardiograficzna i eutanazja zwierząt
Po interwencji szczury zanieczulono izofluranem w stężeniu 3% podczas indukcji i 1% w celu utrzymania znieczulenia, a następnie unieruchomiono w pozycji grzbietnej na platformie dla zwierząt. Sierść z klatki piersiowej ostrożnie usunięto za pomocą preparatu do depilacji, a na odsłoniętą skórę równomiernie nałożono żel sprzęgający. Funkcję serca oceniono za pomocą cyfrowego systemu ultrasonograficznego wyposażonego w przetwornik echo o częstotliwości 18 MHz. Wykonano echokardiografię w trybie M w celu pomiaru LVEF oraz frakcyjnego skrócenia lewej komory (LVFS), a do końcowej analizy obliczono wartość średnią z 3 powtórzeń technicznych.
Krew pobrano z aorty brzusznej, podczas gdy zwierzęta pozostawały pod wpływem znieczulenia, aby zapobiec późniejszej utracie krwi i koagulacji oraz zapewnić odpowiednią jakość próbek do testu ELISA (enzyme-linked immunosorbent assay). Szczury uśmiercono natychmiast poprzez ciągłą indukcję 5% izofluranem aż do ustania akcji serca i oddechu.
Próbki tkanek zostały następnie przydzielone zgodnie z planem doświadczalnym. W Eksperymencie I wykorzystano 3 szczury na grupę w celu pobrania serca do barwienia hematoksyliną i eozyną (HE)/Massonem oraz mózgu do immunofluorescencji c-Fos. Pozostałe trzy szczury przydzielono do badań elektrofizjologicznych in vivo. W Eksperymencie II tkanki obustronnego NTS pobrano od sześciu szczurów na grupę do analiz proteomicznych. Tkanki od pozostałych sześciu szczurów pobrano w celu weryfikacji molekularnej: trzy wykorzystano do Western blottingu i qPCR, a trzy wyłącznie do qPCR.
Test immunoenzymatyczny (ELISA)
Zebrane próbki krwi pozostawiono do naturalnego krzepnięcia w temperaturze 4 °C przez 10–20 min. Próbki wirowano przy 1,0 x g przez 15 min w temperaturze 4 °C w celu oddzielenia surowicy, a następnie zebrano nadsączniki. W przypadku braku możliwości natychmiastowej analizy, próbki surowicy przechowywano w temperaturze −80 °C do czasu użycia. Stężenia N-końcowego propeptydu natriuretycznego mózgu (NT-proBNP) oraz troponiny T serca (cTnT) w surowicy oznaczono przy użyciu specyficznych zestawów ELISA zgodnie ze standardowymi instrukcjami. Zmierzono wartości absorbancji, a poziomy biomarkerów obliczono na podstawie krzywych wzorcowych.
Barwienie histologiczne i immunofluorescencyjne
Pobrane tkanki serca przepłukano w schłodzonym 0,9% roztworze chlorku sodu, przecięto 5 mm powyżej wierzchołka i zatopiono w parafinie. Przekroje tkankowe poddano deparafinizacji i rehydratacji. Barwienie HE wykonano poprzez zastosowanie hematoksyliny przez 10 min, a następnie przeciwbarwienie eozyną przez 2,5 min. Barwienie Massona wykonano poprzez zastosowanie hematoksyliny przez 60 s oraz trichromu Massona przez 30–60 s. Przekroje zróżnicowano w 6%–8% kwasie fosforowym i przeciwbarwiono jasną zielenią przez 5 min. W celu oceny włóknienia mięśnia sercowego wyznaczono ułamkową objętość kolagenu (CVF).
Pobrane tkanki mózgu utrwalono w 4% paraformaldehydzie, odwodniono w roztworach sacharozy o rosnącym stężeniu i pocięto na skrawki o grubości 30 µm. Ponieważ paraformaldehyd jest toksyczny i podejrzewany o działanie rakotwórcze, prace z nim prowadzono w dygestorium chemicznym przy użyciu odpowiednich środków ochrony osobistej. Skrawki zablokowano buforem zawierającym 0,5% Triton X-10 i 3% albuminy surowicy bydlęcej, a następnie inkubowano przez noc w temperaturze 4 °C z przeciwciałem pierwszorzędowym przeciwko c-Fos. Następnie skrawki przemyto solą fizjologiczną w buforze fosforanowym i inkubowano z odpowiednimi przeciwciałami wtórnymi przez 2 h w temperaturze pokojowej w ciemności. Skrawki zamontowano z użyciem roztworu wygaszającego fluorescencję zawierającego 4',6-diamidino-2-phenylindole (DAPI), a następnie wykonano obrazowanie neuronów wykazujących ekspresję c-Fos.
Elektrofizjologia in vivo
Szczury znieczulono izofluranem w stężeniu 3% w celu indukcji oraz 1% w celu podtrzymania znieczulenia, a następnie unieruchomiono w aparacie stereotaksycznym do mózgu. Skórę głowy ogolono i zdezynfekowano. Wykonano cięcie w linii środkowej, aby odsłonić bregma, a następnie usunięto oponę twardą. W czaszce, powyżej obszaru NTS, precyzyjnie wywiercono otwór w oparciu o następujące współrzędne stereotaksyczne względem bregma: przednio-tylne (AP) ±12.6 mm, przyśrodkowo-boczne (ML) ±0.9–2.1 mm oraz grzbietowo-brzuszne (DV) ±7.6–8.1 mm.
Po zakończeniu rejestracji elektrofizjologicznej zweryfikowano dokładną lokalizację stereotaksyczną końcówki elektrody. Do elektrody rejestrującej przez 10 s przyłożono krótko prąd stały o natężeniu 1 mA w celu utworzenia niewielkiej implantacji elektrolitycznej. Po zakończeniu eksperymentu pnie mózgu poddano sekcjonowaniu, a tor uszkodzenia potwierdzono histologicznie, wykazując jego anatomiczną lokalizację w obrębie NTS.
Osiemkanałową (2 x 4) macierz mikroelektrod implantowano i powoli przesuwano do docelowego obszaru mózgu z prędkością 5 µm/s za pomocą zmotoryzowanego mikromanipulatora. Po uzyskaniu stabilnej aktywności neuronalnej rejestracje prowadzono w sposób ciągły przez 400 s. Do rejestracji wyładowań kolców neuronalnych (filtrowanych w zakresie 150–8,0 Hz, częstotliwość próbkowania 40 kHz) oraz lokalnych potencjałów polowych (LFP; filtrowanych w zakresie 0.7–40 Hz, częstotliwość próbkowania 1 kHz) wykorzystano wielokanałowy system akwizycji.
Do wyeliminowania typowych sygnałów zakłócających o wysokiej amplitudzie oraz artefaktów za pomocą korelacji wzajemnej kształtu impulsów wykorzystano oprogramowanie do sortowania impulsów (spike-sorting). Następczą analizę sygnałów neuronalnych przeprowadzono przy użyciu oprogramowania do analizy neuronalnej. Neurony klasyfikowano jako aktywne tylko wtedy, gdy wykazywały spontaniczną średnią częstotliwość wyładowań >2 Hz i utrzymywały stabilny stosunek sygnału do szumu >3:1. Próg 2 Hz wybrano na podstawie ustalonych cech fizjologicznych neuronów NTS związanych z układem autonomicznym; pozwoliło to skutecznie wykluczyć komórki głównie milczące oraz niskoczęstotliwościowe serie wyładowań o rytmie oddechowym, zapewniając tym samym, że analiza skupiła się na neuronach tonicznie aktywnych, pośredniczących w podstawowej regulacji sercowo-naczyniowej17,18,19,20. Na podstawie tych kryteriów wygenerowano średnią częstotliwość wyładowań neuronalnych oraz wykresy rastrowe wyładowań impulsowych. W celu oceny charakterystyki energii oscylacji neuronalnych sporządzono spektrogramy energii 2D LFP oraz topografie gęstości widmowej mocy (PSD) 3D.
Po zakończeniu rejestracji nacięcie zaszyto, a szczury monitorowano do czasu pełnego wybudzenia z narkozy. Podawano penicylinę w iniekcji doszytnej oraz karprofen (5 mg/kg, s.c.) codziennie przez trzy kolejne dni.
Ilościowa analiza proteomiczna z wykorzystaniem pozyskiwania danych niezależnego od danych (DIA)
Całkowite białko wyekstrahowano za pomocą buforu lizującego, a następnie oznaczono ilościowo metodą kwasu bicinchoninowego. Białka poddano denaturacji, alkilacji redukcyjnej oraz trawieniu trypsyną w temperaturze 37 °C przez 2 h. Otrzymane peptydy odsolono przy użyciu kolumny C18, zagęszczono w temperaturze 45 °C i resuspenderowano w celu przeprowadzenia dalszej analizy spektrometrią mas.
Peptydy naniesiono na kolumnę pułapkową (5 µm C18, 30 µm x 5 mm) równoważoną 96% buforem A (0,1% kwasu mrówkowego w wodzie). Peptydy rozdzielono na analitycznej kolumnie do wysokoprzepustowej ultra-wysokosprawnej chromatografii cieczowej, stosując rygorystycznie zoptymalizowany gradient buforu A i buforu B (0,1% kwasu mrówkowego w 80% acetonitrylu).
Spektrometrię mas przeprowadzono w trybie niezależnego od danych pozyskiwania jonów (DIA) w trybie dodatnim, przy napięciu rozpylania elektrosprayowego wynoszącym 1,9 kV. Pełne skany spektrometru mas uzyskano w zakresie mas od 380 do 980. m/z przy rozdzielczości 240 0, z wartością docelową automatycznej kontroli wzmocnienia (AGC) wynoszącą 50% i maksymalnym czasem wtrysku 3 ms. Widma MS/MS pozyskano przy rozdzielczości 80 00 (wartość docelowa AGC: 50%; maksymalny czas wtrysku: 3 ms; amplituda soczewki RF: 40%). Jony prekursorowe fragmentowano za pomocą dysocjacji kolizyjnej o wyższej energii (HCD) przy oknie izolacji 2 Th i znormalizowanej energii kolizyjnej 25% przy zdefiniowanym czasie cyklu 0,6 s.
Surowe dane z spektrometrii masowej przetworzono przy użyciu oprogramowania DIA-NN. Bibliotekę spektralną wygenerowano za pomocą wewnętrznego algorytmu uczenia głębokiego, a funkcję match-between-runs zastosowano do kwantyfikacji względem bazy danych proteomu referencyjnego Rattus norvegicus, przyjmując trawienie trypsyną i do 2 pominiętych miejsc cięcia. Końcową macierz ilościową białek przefiltrowano, stosując rygorystyczny próg współczynnika fałszywych odkryć (FDR) na poziomie 1% zarówno dla jonów prekursorowych, jak i dla białek.
Analiza bioinformatyczna i poszukiwanie genów hubowych
Analizy bioinformatyczne i wizualizacje danych przeprowadzono głównie w środowisku programistycznym R wraz ze specjalistycznym oprogramowaniem do wizualizacji sieci. Aby zapewnić przejrzystość metodologiczną i powtarzalność, wszystkie niestandardowe skrypty R wykorzystane w tych procesach analitycznych udostępniono w Pliku uzupełniającym 1. Wstępną kontrolę jakości danych i ocenę ogólnego rozkładu wykonano przy użyciu pakietu ropls. Opracowano statystyki przeglądowe dotyczące identyfikacji i kwantyfikacji białek; przeprowadzono analizę dyskryminacyjną metodą cząstkowych najmniejszych kwadratów (PLS-DA) dla trzech grup; przeprowadzono ortogonalną analizę dyskryminacyjną metodą cząstkowych najmniejszych kwadratów (OPLS-DA) dla porównań parzystych; a mapy ciepła korelacji próbek wygenerowano przy użyciu pakietu pheatmap.
Kluczowe białka o różnym poziomie ekspresji wyselekcjonowano, stosując progi obejmujące wartość p <0,05, krotność zmiany (fold change) >1,2 oraz wskaźnik ważności zmiennych w projekcji (VIP score) >1,0. Wykresy typu double volcano wygenerowano za pomocą pakietu ggplot2, przecięcia zidentyfikowano przy użyciu pakietu ggVennDiagram, a mapy ciepła z klastrowaniem hierarchicznym sporządzono za pomocą pakietu pheatmap w celu wizualizacji wspólnych białek. Analizy wzbogacenia według Gene Ontology (GO) oraz Kyoto Encyclopedia of Genes and Genomes (KEGG) przeprowadzono oddzielnie dla białek o zwiększonej i zmniejszonej ekspresji, wykorzystując pakiet enrichR w oparciu o bazę danych Enrichr.
Wszystkie białka o zróżnicowanej ekspresji zmapowano w bazie danych STRING z progiem ufności 0,4 w celu skonstruowania sieci oddziaływań białko-białko. Dane o oddziaływaniach zaimportowano do oprogramowania do wizualizacji sieci. Wykorzystano wtyczkę cytoHubba do obliczenia wyników topologicznych, a następnie wyłoniono 18 genów z najwyższymi wynikami na podstawie głębokości koloru węzłów. W odniesieniu do 18 kandydujących genów hub przeprowadzono analizę wzbogacenia szlaków, a 10 najbardziej znaczących białek wybrano w celu oceny poziomów ich ekspresji w tkankach ludzkich przy użyciu bazy danych Genotype-Tissue Expression (GTEx). Najbardziej krytyczny gen hub zidentyfikowano na podstawie poziomów ekspresji w ludzkim mózgu oraz wyników topologicznych sieci. Przeglądarkę Cistrome Data Browser wykorzystano do przewidywania czynników transkrypcyjnych oraz modyfikacji histonów w dół strumienia, związanych z konkretnym genem hub.
Western blot i ilościowa reakcja polimerazy łańcuchowej
Całkowite białko wyekstrahowano z tkanek NTS przy użyciu mieszaniny lizującej zawierającej bufor do lizy z fluorkiem fenylometanosulfonylu, PMSF oraz inhibitory fosfataz. Próbki homogenizowano za pomocą ultradźwiękowego rozbijacza komórek i wirowano przy 13 80 x g przez 20 min w temperaturze 4 °C w celu zebrania nadsączów. Stężenia białka określono za pomocą zestawu do oznaczania białek kwasem bicincninowym. Łącznie 20 µg białka z każdej próbki rozdzielono za pomocą 10% elektroforezy w żelu poliakryloamidowym z dodecylosiarczanem sodu, a następnie przeniesiono na membrany z polifluorku winylidenu.
Membrany blokowano 5% mlekiem odtłuszczonym w buforze Tris-saline z dodatkiem Tween (TBST) przez 1 h w temperaturze pokojowej, a następnie inkubowano przez noc w 4 °C ze specyficznymi przeciwciałami pierwszorzędowymi przeciwko Yin Yang 1 (YY1) oraz β-actin jako białkiem referencyjnym. Membrany przemywano TBST przez 5 min trzykrotnie, a następnie inkubowano z przeciwciałem drugorzędowym sprzężonym z peroksydazą chrzanową przez 1,5 h w temperaturze pokojowej. Prążki docelowe wizualizowano przy użyciu zestawu do wzmocnionej chemiluminescencji, obrazowano za pomocą systemu obrazowania i kwantyfikowano w stosunku do β-actin.
Całkowity RNA wyekstrahowano z tkanek NTS przy użyciu odczynnika do ekstrakcji RNA. Stężenie i czystość RNA zmierzono spektrofotometrem, a pierwszą nicią cDNA zsyntetyzowano przy użyciu zestawu do odwrotnej transkrypcji. Ilościową reakcję łańcuchową polimerazy (qPCR) przeprowadzono z użyciem zestawu SYBR Green PCR w systemie Real-Time PCR. Sekwencje specyficznych starterów użytych do amplifikacji, wraz z ich odpowiednimi numerami dostępu w bazie NCBI Reference Sequence, były następujące: YY1 (NM_0102271.1), starter forward 5'-AGCGTTCGTTGAGAGCTCAA-3' i reverse 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_01014264.1), starter forward 5'-TGTGATGACTGTGACCGTGG-3' i reverse 5'-TCCAAACAGGTGGCAACT-3'; DMAP1 (NM_0107705.1), starter forward 5'-GGTGTGACATTACGGAGCCA-3' i reverse 5'-TCCAGCAGCATCTGTTCCAG-3'; oraz dehydrogenaza glikolowo-3-fosforanowa (GAPDH) (NM_01708.4), starter forward 5'-GGCACAGTCAAGGCTGAGAATG-3' i reverse 5'-ATGGTGGTGAAGACGCCAGTA-3'. Względne poziomy ekspresji mRNA obliczono przy użyciu metody 2-ΔΔCt metodą i znormalizowano względem wewnętrznego genu referencyjnego GAPDH.
Analiza statystyczna
Wszystkie dane eksperymentalne przeanalizowano przy użyciu oprogramowania statystycznego i przedstawiono jako średnią ± odchylenie standardowe (SD). Normalność rozkładu oceniono za pomocą testu Shapiro-Wilka, a jednorodność wariancji za pomocą testu Browna-Forsytha.
Do porównań między dwiema niezależnymi grupami, w przypadku danych spełniających kryteria normalności, stosowano test t Studenta lub sparowany test t. Dane, które nie spełniały założeń o rozkładzie normalnym, analizowano przy użyciu testu U Manna-Whitneya lub testu znaków Wilcoxona. W przypadku porównań wielu grup, gdy spełnione były założenia normalności i jednorodności, stosowano jednoczynnikową analizę wariancji, a następnie test post hoc Holma-Sidaka. Gdy założenia te nie były spełnione, stosowano test H Kruskala-Wallisa, a następnie test post hoc Dunna.
Korelacje oceniono przy użyciu współczynnika korelacji Pearsona, obliczonego za pomocą pakietu Hmisc w środowisku R. Odpowiednie wartości p skorygowano metodą kontroli odsetka fałszywych odkryć Benjamini-Hochberg za pomocą pakietu stats, aby kontrolować zwiększone ryzyko błędu I rodzaju wynikające z wielokrotnego testowania. Ogólną istotność statystyczną określono jako p <0,05.
Wyniki
Elektroakupunktura poprawia funkcję serca i łagodzi uszkodzenia mięśnia sercowego u szczurów z przewlekłą niewydolnością serca
W celu oceny wpływu EA na CHF utworzono model szczura poprzez podwiązanie tętnicy wieńcowej LAD, po czym zastosowano interwencje w postaci EA lub Sham EA. Przeprowadzono systematyczne oceny, w tym echokardiografię, analizy biochemiczne oraz barwienia histologiczne (Rysunek 2A). Pod względem funkcjonalnym w grupie CHF stwierdzono rozszerzenie komór oraz upośledzenie kurczliwości. Leczenie EA złagodziło spadki LVEF i LVFS obserwowane u szczurów z CHF, podczas gdy w grupie Sham EA poziom funkcji serca był porównywalny z poziomem w grupie CHF (Rysunek 2B i Rysunek 2C).
Ponadto EA obniżyło poziomy NT-proBNP i cTnT w surowicy, co wskazuje na zmniejszenie obciążenia serca i złagodzenie uszkodzenia mięśnia sercowego. W przeciwieństwie do tego, w grupie Sham EA zaobserwowano parametry biochemiczne podobne do tych w grupie CHF (Rycyna 2E,F). Analiza histologiczna wykazała, że w grupie CHF wystąpiły strukturalne uszkodzenia mięśnia sercowego oraz włóknienie. Leczenie EA poprawiło architekturę mięśnia sercowego i zmniejszyło CVF, podczas gdy w grupie Sham EA utrzymywały się zmiany patologiczne i poziomy CVF podobne do tych w grupie CHF (Rycina 2D). Podsumowując, EA wykazalo działanie kardioprotekcyjne przeciwko CHF, podczas gdy interwencja Sham EA nie przyniosła podobnych efektów terapeutycznych.
Elektroakupunktura aktywuje neurony w jądrze pasma samotnego u szczurów z przewlekłą niewydolnością serca
Aby ustalić, czy NTS pośredniczy w centralnej odpowiedzi na leczenie EA, oceniono aktywację neuronalną poprzez barwienie na c-Fos, marker pobudzenia neuronalnego. Obrazowanie immunofluorescencyjne (Rysunek 3A>) oraz ilościowe zliczanie komórek (Rysunek 3B>) wykazały, że liczba neuronów c-Fos-dodatnich w NTS była niższa w grupie CHF w porównaniu z grupą Sham. Jednak leczenie EA zwiększyło ekspresję c-Fos do poziomów porównywalnych z poziomem bazowym w grupie Sham. Równolegle z obwodowymi efektami funkcjonalnymi, grupa Sham EA wykazała poziomy ekspresji c-Fos podobne do grupy CHF.
Aby ocenić stan funkcjonalny tych neuronów NTS, zarejestrowano sygnały elektrofizjologiczne in vivo. Ślady wyładowań impulsowych (Rycina 3C) oraz ilościowa średnia częstotliwość wyładowań (Rycina 3D) były zgodne z wynikami histologicznymi. Spontaniczna częstotliwość wyładowań neuronów NTS była obniżona w warunkach CHF. Z kolei interwencja EA podniosła częstotliwość wyładowań neuronalnych, podczas gdy procedura Sham EA nie wywoła takich zmian elektrofizjologicznych.
Ten wzorzec aktywacji neuronalnej został potwierdzony przez analizę lokalnego potencjału polowego. Jak pokazano na dwuwymiarowych spektrogramach kolorystycznych LFP oraz trójwymiarowych mapach gęstości widma mocy (Rysunek 3E), energia oscylacji neuronalnych w obrębie NTS była osłabiona w stanie CHF. Po zastosowaniu EA odnotowano wzrost intensywności mocy w całym widmie częstotliwości neuronalnych, co wskazuje na aktywację sieci, która nie wystąpiła w grupie Sham EA.
Aby zbadać fizjologiczne znaczenie tej centralnej aktywacji, przeprowadzono analizę korelacji Pearsona, integrując obwodowe wskaźniki kardiologiczne z aktywnością neuronów w centralnym jądrze tractus solitarii (NTS) (Rysunek 3F). Analiza wykazała, że średnia częstotliwość wyładowań oraz ekspresja białka c-Fos w NTS były dodatnio skorelowane z LVEF. Odwrotnie, wskaźniki centralnej aktywności neuronalnej wykazywały ujemną korelację z surowiczym markerem niewydolności serca NT-proBNP. Korelacje te wskazują, że aktywacja neuronalna NTS modulowana przez EA jest powiązana z jej obwodową skutecznością kardioprotekcyjną.
Elektroakupunktura zmienia globalny profil proteomiczny w jądrze pasma samotnego
Ze względu na brak skuteczności terapeutycznej zaobserwowany w grupie Sham EA podczas poprzednich ocen funkcjonalnych, faza proteomiczna objęła jedynie grupy Sham, CHF i EA. Przed pobraniem tkanek 12 szczurów z każdej grupy poddano ocenie echokardiograficznej w celu zbadania efektów terapeutycznych EA, a wyniki te przedstawiono na Rysunku uzupełniającym 1A. Po tej ocenie 6 powtórzeń biologicznych z każdej grupy poddano ilościowej analizie proteomicznej opartej na spektrometrii mas.
W celu oceny niezawodności i ogólnego rozkładu danych proteomicznych przeprowadzono kontrolę jakości oraz analizy wielowymiarowe. Całkowita liczba zidentyfikowanych białek wyniosła 5 914 w grupie Sham, 5 980 w grupie CHF i 5 836 w grupie EA, co wskazuje na porównywalną detekcję białek we wszystkich trzech grupach eksperymentalnych (Rycina 4A oraz Tabela uzupełniająca 1). Analiza dyskryminacyjna metodą najmniejszych kwadratów cząstkowych wykazała wyraźny podział pomiędzy grupy Sham, CHF i EA, co wskazuje na odmienne globalne profile proteomiczne powiązane ze stanem chorobowym oraz interwencją EA (Rycina 4B).
Kolejna analiza dyskryminacyjna ortogonalnych cząstkowych najmniejszych kwadratów (OPLS-DA) w parach wykazała separację między grupą Sham a grupą CHF (Rysunek 4C) oraz między grupą CHF a grupą EA (Rysunek 4D). Odpowiednie testy permutacyjne potwierdziły wiarygodność poszczególnych modeli. Ponadto mapa cieplna korelacji Pearsona wykazała wysoką korelację wewnątrzgrupową oraz wyraźne wzorce międzygrupowe w próbkach proteomicznych, co potwierdza powtarzalność replikatów biologicznych (Rysunek 4E). Wspólnie te analizy wielowymiarowe i kontrola jakości wskazały, że zbiór danych proteomicznych był wystarczająco solidny do późniejszej identyfikacji i analizy bioinformatycznej białek różnicowo ekspresyjnych.
Elektroakupunktura moduluje kluczowe białka o różnym poziomie ekspresji oraz szlaki sygnałowe w jądrze pasma samotnego
W celu zbadania molekularnych celów EA przeanalizowano zmiany w białkach. Wykresy wulkaniczne przedstawiły rozkład białek o zwiększonej i zmniejszonej ekspresji w porównaniach grupy Sham względem CHF oraz grupy CHF względem EA (Rycina 5A, Tabela uzupełniająca 2 oraz Tabela uzupełniająca 3). Aby zidentyfikować cele terapeutyczne, przeprowadzono analizę części wspólną. Jak pokazano na diagramach Venna, zidentyfikowano 58 białek o zwiększonej ekspresji w grupie CHF, których ekspresja uległa zmniejszeniu po zastosowaniu EA, a także 27 białek o zmniejszonej ekspresji w grupie CHF, których ekspresja wzrosła w wyniku interwencji EA (Rycina 5B oraz Tabela uzupełniająca 4). Przesiewanie to pozwoliło na wyłonienie łącznie 85 kluczowych białek o zróżnicowanej ekspresji. Mapa ciepła z klastrowaniem hierarchicznym wykazała, że interwencja EA zmodyfikowała nieprawidłowe wzorce ekspresji tych 85 białek, przesuwając ich profile w stronę poziomu bazowego grupy Sham (Rycina 5C).
Aby określić funkcje biologiczne tych głównych celów, przeprowadzono oddzielne analizy wzbogacenia GO i KEGG dla dwóch różnych podzbiorów białek. Dla podzbioru 58 białek o obniżonej ekspresji pod wpływem EA, wykres bąbelkowy GO wykazał istotne wzbogacenie w procesach biologicznych, w tym organizację macierzy zewnątrzkomórkowej i organizację struktur zewnątrzkomórkowych, a także w komponentach komórkowych, takich jak zewnętrzna struktura otaczająca i trimer kolagenu, oraz funkcjach molekularnych, w tym wiązaniu kolagenu i wiązaniu receptorów glutaminianu (Rycina 5D oraz Tabela uzupełniająca 5). Następująca analiza ścieżek KEGG, zwizualizowana za pomocą diagramów chord i Sankey, ujawniła, że te 58 białek uczestniczy w kaskadach obejmujących trawienie i wchłanianie białek, cytoszkielet w komórkach mięśniowych oraz ścieżkę sygnalizacyjną TGF-β (Rycina 5E oraz Tabela uzupełniająca 6). Te wizualizacje topologiczne wyróżniły konkretne białka, w tym COL3A1, COL14A1, MYH11, DCN i DPF2, jako kluczowe węzły łączące wiele ścieżek patologicznych.
Z kolei adnotację funkcjonalną przeprowadzono dla podzbioru 27 białek wykazujących zwiększoną ekspresję w wyniku interwencji EA. Analiza wzbogacenia GO wskazała na zaangażowanie w procesy biologiczne, takie jak regulacja wzrostu komórek i pozytywna regulacja elongacji transkrypcji matrycyzowanej przez DNA, a także funkcje molekularne, w tym zależne od wapnia wiązanie białek oraz wiązanie tetrapiroli (Rysunek 5F oraz Tabela uzupełniająca 7). Odpowiadające im diagramy chord i Sankey w bazie KEGG przypisały te białka do kluczowych szlaków, w tym do ATP-zależnego przebudowywania chromatyny i represyjnego kompleksu polycomb (Rysunek 5G oraz Tabela uzupełniająca 8). Co istotne, to mapowanie sieci wyodrębniło kluczowe białka, takie jak YY1, E2F2 i ENTPD5, łączące te centralne sieci sygnalizacyjne. Ta kompleksowa stratyfikacja funkcjonalna stworzyła strukturalną podstawę do późniejszej walidacji głównych celów.
Topologia sieci i profilowanie ekspresji identyfikują YY1 jako potencjalny cel związany z efektami interwencji z użyciem elektroakupunktury
Aby wyłonić geny centralne spośród 85 białek o różnej ekspresji, skonstruowano sieć oddziaływań białko-białko. Analiza topologiczna zidentyfikowała 18 węzłów o wysokich wskaźnikach łączności (Rysunek 6A oraz Tabela uzupełniająca 9). Następnie przeprowadzono analizę szlaków KEGG specjalnie dla tych 18 białek centralnych. Odpowiednie diagramy chordowe i Sankeya odwzorowały złożone relacje między tymi węzłami a wzbogaconymi kaskadami sygnalizacyjnymi, w tym przebudową chromatyny zależną od ATP, represyjnym kompleksem polycomb oraz szlakiem sygnalizacyjnym TGF-β (Rysunek 6A oraz Tabela uzupełniająca 10). Na podstawie tego profilowania funkcjonalnego wybrano 10 białek o najwyższym stopniu wzbogacenia do dalszego przesiewu. Ponieważ cel terapeutyczny EA znajduje się w ośrodkowym układzie nerwowym, te 10 kandydatów oceniono z wykorzystaniem bazy danych ekspresji tkanek ludzkich GTEx (Rysunek 6B oraz Rysunek uzupełniający 1B–J). Wyniki wykazały, że tylko YY1 (Rysunek 6B), DMAP1 (Rysunek uzupełniający 1C) oraz DPF2 (Rysunek uzupełniający 1D) były ekspresjonowane w tkankach mózgu.
Aby wyizolować wysoce responsywny potencjalny cel EA, przeprowadzono eksperymenty molekularne in vivo z wykorzystaniem tkanek NTS. Do oceny responsywności transkrypcyjnej trzech kandydatów występujących obficie w mózgu wykorzystano ilościową reakcję PCR w czasie rzeczywistym. Ekspresja mRNA YY1 była obniżona w warunkach CHF i podwyższona po zastosowaniu EA, podczas gdy poziomy ekspresji mRNA DPF2 i DMAP1 nie wykazały statystycznie istotnych zmian w grupach eksperymentalnych (Rycina 6C). Ta analiza transkrypcyjna wykluczyła DPF2 i DMAP1 z dalszej walidacji i wskazała YY1 jako główny responsywny kandydat. Następująca analiza Western blot wykazała, że poziomy białka YY1 były obniżone w grupie CHF w stosunku do poziomu bazowego w grupie Sham, podczas gdy interwencja EA przeciwdziałała temu trendowi, zwiększając ekspresję białka YY1 (Rycina 6D oraz Rycina 6E). Wyniki tych eksperymentów wskazują, że EA zwiększa ekspresję YY1 w obrębie NTS.
Aby zbadać mechanizmy regulacyjne typu upstream kontrolujące ekspresję YY1, przeanalizowano powiązane z nią modyfikacje histonów oraz czynniki transkrypcyjne. Należy zauważyć, że wyniki te opierają się wyłącznie na obliczeniowych przewidywaniach bioinformatycznych pochodzących z Cistrome Data Browser i nie stanowią bezpośredniej walidacji eksperymentalnej metodą ChIP-seq. Przewidywania epigenetyczne wskazały na modyfikacje histonów, w tym H3K27ac, H3K27me3 oraz H3K4me3, z wysokimi wynikami potencjału regulacyjnego dla locus YY1 (Rysunek 6F). Jednocześnie ocena potencjału regulacyjnego zidentyfikowała czynniki transkrypcyjne, takie jak CDK9, PRDM1 i ELL2, jako regulatory upstream YY1 (Rysunek 6G). Te przewidywania bioinformatyczne zarysowują potencjalne sieci epigenetyczne i transkrypcyjne kontrolujące ekspresję YY1 w NTS.
Podsumowując, przedstawione dane wykazują, że interwencja EA skutecznie poprawia ogólnoustrojową funkcję serca i łagodzi uszkodzenia mięśnia sercowego u szczurów z CHF. Efektom tym, działającym obwodowo w charakterze kardioprotekcyjnym, towarzyszy centralnie przywrócenie aktywności wyładowań neuronalnych oraz energii oscylacji neuronalnych w obrębie NTS. Ponadto ilościowy screening proteomiczny zidentyfikował 85 kluczowych białek o różnej ekspresji i wskazał czynnik transkrypcyjny YY1 jako wysoce responsywny cel potencjalny. Wspólnie wyniki te sugerują, że skuteczność terapeutyczna EA w leczeniu CHF jest ściśle powiązana z przywróceniem funkcji neuronalnej NTS, a upregulacja YY1 może być zaangażowana w ten centralny proces neurobiologiczny.
Dostępność danych
Wszystkie dane wygenerowane i przeanalizowane w celu potwierdzenia wyników niniejszego badania zostały zawarte w manuskrypcie oraz w Pliku uzupełniającym 1. Aby spełnić wymóg publicznej dostępności danych, wszystkie dostępne surowe dane stanowiące podstawę tych badań zostały złożone w publicznym repozytorium Zenodo i są swobodnie dostępne pod następującym linkiem: https://doi.org/10.5281/zenodo.22030720. Dodatkowe dane wspierające są dostępne u autorów korespondencyjnych na uzasadnioną prośbę.
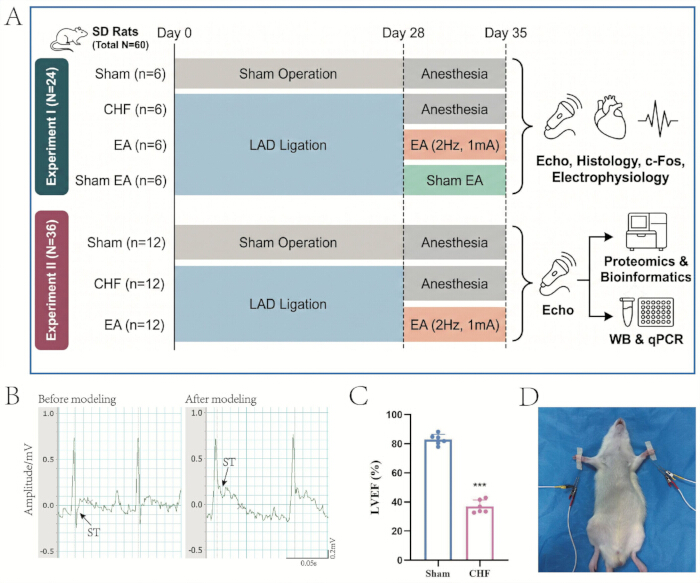
Rysunek 1: Schemat doświadczenia, opracowanie szczurzego modelu przewlekłej niewydolności serca oraz interwencja w postaci elektroakupunktury. (A) Ogólny schemat blokowy eksperymentu, zawierający oś czasu i przydział do grup dla dwóch niezależnych serii doświadczalnych. (B) Reprezentatywne zapisy elektrokardiograficzne przed i po podwiązaniu tętnicy wieńcowej LAD, gdzie strzałki wskazują uniesienie odcinka ST potwierdzające niedokrwienie mięśnia sercowego. (C) Analiza ilościowa LVEF 4 tygodnie po operacji w celu potwierdzenia prawidłowego opracowania modelu (powtórzenia biologiczne n = 6, średnia ± SD). ***p < 0.01 w porównaniu z grupą Sham. (D) Interwencja EA w obustronnych punktach akupunkturowych HT7. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
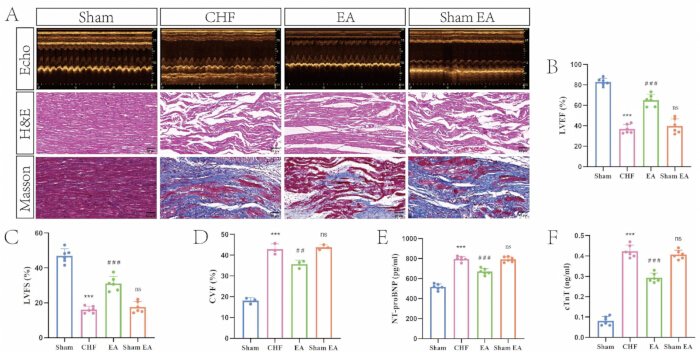
Rysunek 2: Elektroakupunktura poprawia funkcję serca i łagodzi uszkodzenie mięśnia sercowego u szczurów z przewlekłą niewydolnością serca. (A) Reprezentatywne echokardiogramy w trybie M obok obrazów tkanek mięśnia sercowego barwionych hematoksyliną i eozyną oraz trichromem Massona w 4 grupach eksperymentalnych (pasek skali = 50 µm). (B) Analiza ilościowa LVEF w grupach (powtórzenia biologiczne n = 6, średnia ± SD). ***p < 0,01 vs. grupa Sham; ###p < 0,01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (C) Analiza ilościowa LVFS w grupach (powtórzenia biologiczne n = 6, średnia ± SD). ***p < 0,01 vs. grupa Sham; ###p < 0,01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (D) Analiza ilościowa CVF w grupach (powtórzenia biologiczne n = 3, średnia ± SD). ***p < 0,01 vs. grupa Sham; ##p < 0,01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (E) Analiza ilościowa poziomów NT-proBNP w surowicy w grupach (powtórzenia biologiczne n = 6, średnia ± SD). ***p < 0,01 vs. grupa Sham; ###p < 0,01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (F) Analiza ilościowa poziomów cTnT w surowicy w grupach (powtórzenia biologiczne n = 6, średnia ± SD). ***p < 0,01 vs. grupa Sham; ###p < 0,01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
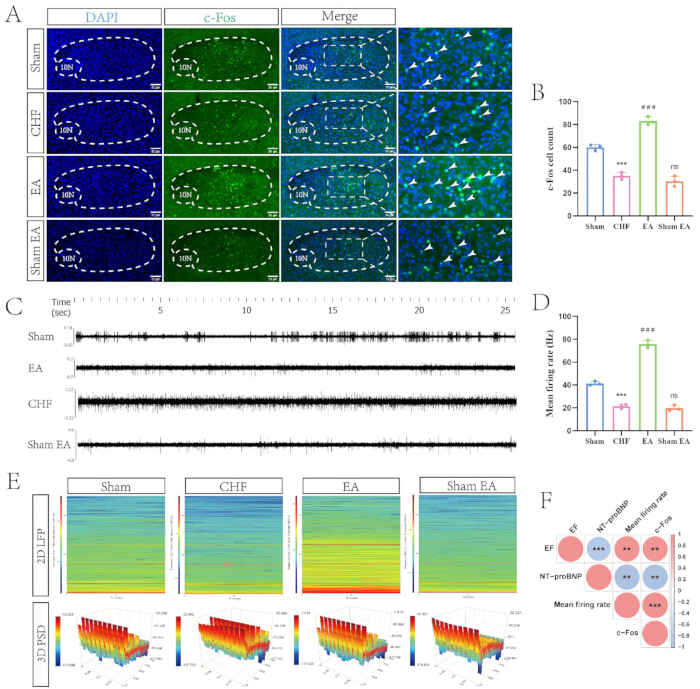
Rysunek 3: Elektroakupunktura przywraca aktywność neuronalną w jądrze pasma samotnego u szczurów z przewlekłą niewydolnością serca. (A) Reprezentatywne obrazy immunofluorescencyjne ekspresji c-Fos w NTS w poszczególnych grupach. Jądra komórkowe są barwione kontrastowo DAPI, a komórki c-Fos-dodatnie są zabarwione na zielono. Linie przerywane wyznaczają region anatomiczny, a białe groty strzałek wskazują reprezentatywne neurony c-Fos-dodatnie (pasek skali = 30 µm). (B) Analiza ilościowa liczby komórek c-Fos-dodatnich w poszczególnych grupach (powtórzenia biologiczne n = 3, średnia ± SD). ***p < 0.01 vs. grupa Sham; ###p < 0.001 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (C) Reprezentatywne zapisy wyładowań impulsowych (spike discharge) w badaniu elektrofizjologicznym in vivo w NTS w poszczególnych grupach. (D) Analiza ilościowa średniej częstotliwości wyładowań neuronalnych w poszczególnych grupach (powtórzenia biologiczne n = 3, średnia ± SD). ***p < 0.01 vs. grupa Sham; ###p < 0.01 vs. grupa CHF; ns, brak istotności statystycznej vs. grupa CHF. (E) Reprezentatywne 2D spektrogramy lokalnych potencjałów polowych oraz 3D topografie gęstości widmowej mocy ilustrujące energię oscylacji neuronalnych w obrębie NTS. (F) Macierz korelacji oceniająca zależności pomiędzy obwodowymi fenotypami sercowo-naczyniowymi a parametrami centralnej aktywności neuronalnej. Czerwone i niebieskie okręgi wskazują odpowiednio korelacje dodatnie i ujemne. **p < 0.01; ***p < 0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
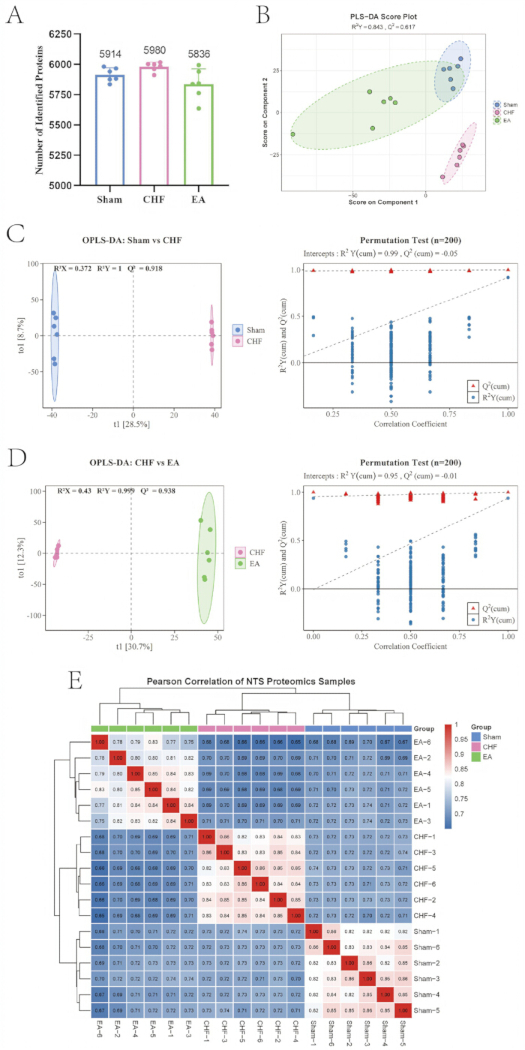
Rysunek 4: Kontrola jakości i wielowymiarowa ocena statystyczna profili proteomicznych w jądrze pasma samotnego. (A) Ilościowy przegląd zidentyfikowanych białek w 3 grupach eksperymentalnych (powtórzenia biologiczne n = 6). (B) Wykres wyników analizy dyskryminacyjnej metodą cząstkowych najmniejszych kwadratów (PLS-DA), ilustrujący ogólny rozkład przestrzenny i separację między grupami. (C) Wykres wyników ortogonalnej analizy dyskryminacyjnej metodą cząstkowych najmniejszych kwadratów (OPLS-DA) oraz odpowiadający mu test permutacji walidujący wiarygodność modelu dla porównania grupy Sham względem CHF (20 permutacji). (D) Wykres wyników ortogonalnej analizy dyskryminacyjnej metodą cząstkowych najmniejszych kwadratów (OPLS-DA) oraz odpowiadający mu test permutacji walidujący wiarygodność modelu dla porównania grupy CHF względem EA (20 permutacji). (E) Mapa ciepła z hierarchiczną klastracją współczynników korelacji Pearsona, oceniająca powtarzalność wewnątrzgrupową i wariancję międzygrupową we wszystkich próbkach proteomicznych. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
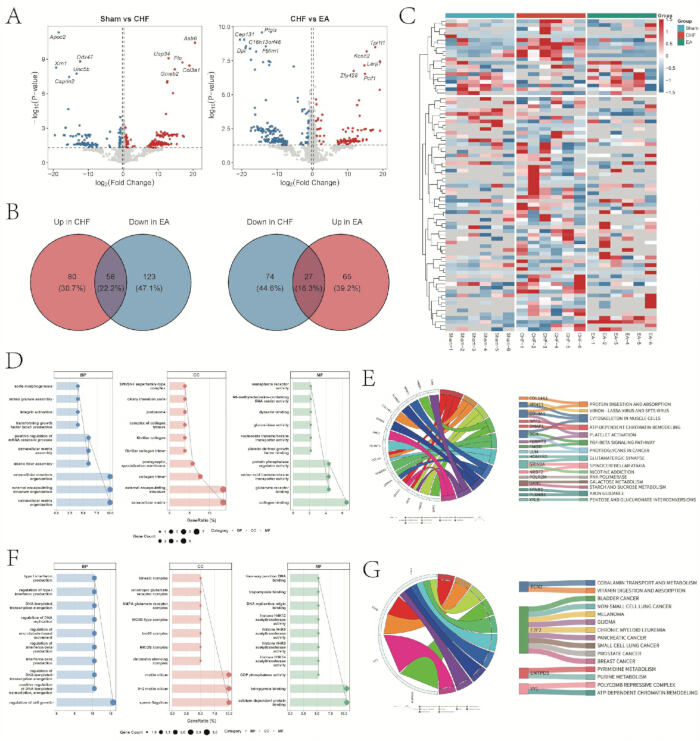
Rycina 5: Identyfikacja i analiza wzbogacenia funkcjonalnego kluczowych białek o zróżnicowanej ekspresji modulowanych przez elektroakupunkturę w jądrze pasma samotnego. (A) Wykresy wulkaniczne ilustrujące rozkład białek o zwiększonej i zmniejszonej ekspresji w porównaniach Sham versus CHF oraz CHF versus EA. (B) Diagramy Venna przedstawiające analizę przecięć w celu zidentyfikowania kluczowych białek o zmniejszonej i zwiększonej ekspresji po interwencji EA. (C) Mapa ciepła z klastrowaniem hierarchicznym profili ekspresji kluczowych białek o zróżnicowanej ekspresji. (D) Pęcherzykowe wykresy GO szczegółowo przedstawiające wzbogacone procesy biologiczne, komponenty komórkowe i funkcje molekularne dla podzbioru białek o zmniejszonej ekspresji. (E) Chordowe i Sankeyowskie diagramy KEGG mapujące ścieżki sygnalizacyjne wzbogacone przez białka o zmniejszonej ekspresji. (F) Pęcherzykowe wykresy GO szczegółowo przedstawiające wzbogacone procesy biologiczne, komponenty komórkowe i funkcje molekularne dla podzbioru białek o zwiększonej ekspresji. (G) Chordowe i Sankeyowskie diagramy KEGG mapujące ścieżki sygnalizacyjne wzbogacone przez białka o zwiększonej ekspresji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
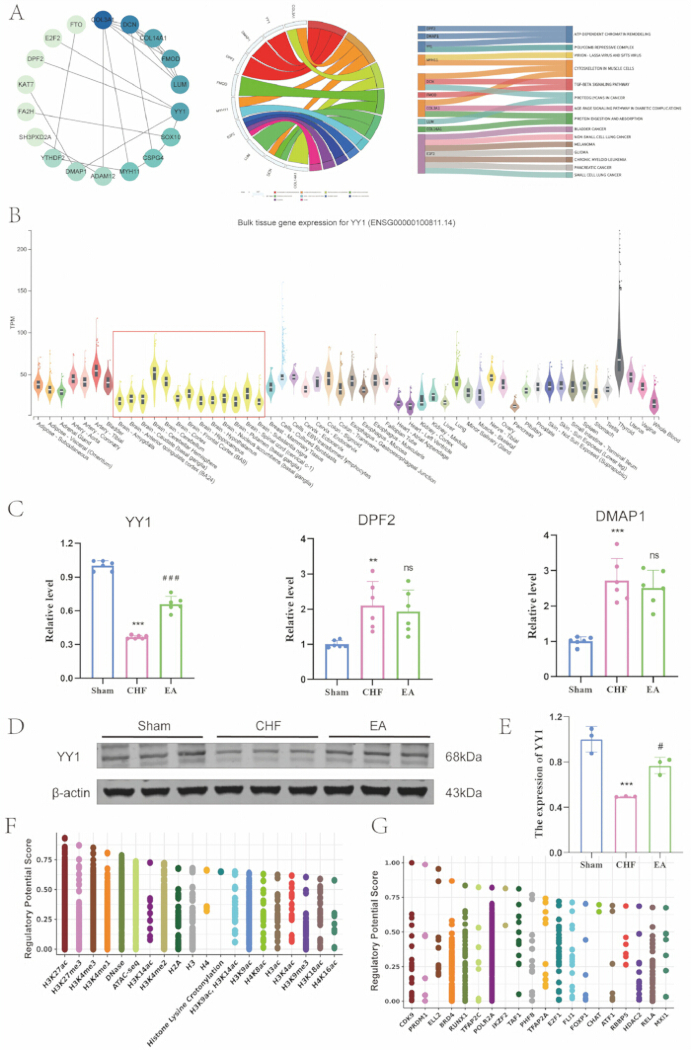
Rycina 6: Topologia sieci, profilowanie ekspresji w tkankach oraz walidacja molekularna identyfikują YY1 jako kandydata na cel powiązany z elektroakupunkturą. (A) Sieć oddziaływań białko-białko, diagram chordowy i diagram Sankeya zidentyfikowanych białek hubowych. (B) Profil ekspresji YY1 w tkankach ludzkich pochodzący z bazy danych GTEx, gdzie czerwona ramka wyróżnia tkanki mózgowe. (C) Analiza ilościowa ekspresji mRNA YY1, DPF2 i DMAP1 w NTS w poszczególnych grupach (powtórzenia biologiczne n = 6, średnia ± SD). **p < 0,01, ***p < 0,01 vs grupa Sham; ###p < 0,001 vs grupa CHF; ns, brak istotności statystycznej vs grupa CHF. (D) Reprezentatywne prążki Western blot dla YY1 i β-actin w NTS w poszczególnych grupach. (E) Analiza ilościowa ekspresji białka YY1 w poszczególnych grupach (powtórzenia biologiczne n = 3, średnia ± SD). ***p < 0,01 vs grupa Sham; #p < 0,05 vs grupa CHF. (F) Bioinformatyczna predykcja epigenetycznych modyfikacji histonowych regulujących locus YY1 na podstawie wyników potencjału regulacyjnego. (G) Bioinformatyczna predykcja czynników transkrypcyjnych upstream regulujących locus YY1 na podstawie wyników potencjału regulacyjnego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
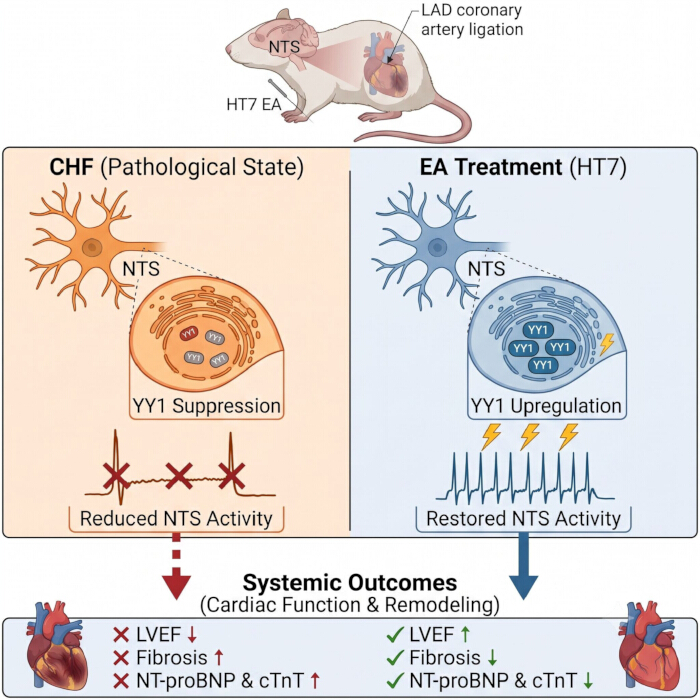
Rycina 7: Proponowany model związku między elektroakupunkturą w punkcie HT7, zwiększoną ekspresją YY1, przywróceniem aktywności neuronalnej w jądrze pasma samotnego a poprawą w przebiegu przewlekłej niewydolności serca. (Lewo) Stan patologiczny: W modelu CHF indukowanym przez podwiązanie lewej tętnicy wieńcowej (LAD) aktywność neuronalna w NTS jest zmniejszona, co towarzyszy supresji czynnika transkrypcyjnego YY1. Ta centralna inhibicja neuronalna wiąże się z patologicznym przebudową serca, przejawiającą się obniżeniem LVEF, zwiększoną włóknieniem mięśnia sercowego oraz podwyższonym poziomem markerów niewydolności serca w surowicy. (Prawo) Leczenie EA: Interwencja EA w punkcie akupunkturowym HT7 zwiększa ekspresję YY1 w NTS i przywraca pobudliwość neuronalną. Ta centralna neuromodulacja wykazuje działanie kardioprotekcyjne, łagodząc patologiczną przebudowę i poprawiając ogólnoustrojową funkcję serca. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Rysunek uzupełniający 1: Ocena funkcji serca w kohorcie proteomicznej oraz profile ekspresji w tkankach ludzkich dla kandydujących genów hub. (A) Analiza ilościowa LVEF i LVFS w poszczególnych grupach (powtórzenia biologiczne n = 12, średnia ± SD). ***p < 0.01 vs. grupa Sham; ###p < 0.001 vs. grupa CHF. (B-J) Profile ekspresji w tkankach ludzkich dla kandydujących genów hub pochodzących z bazy danych GTEx, w tym COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH1 (F), E2F2 (G), LUM (H), DCN (I) oraz COL14A1 (J).Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Kompleksowa macierz identyfikacji i kwantyfikacji globalnego proteomu w jądrze pasma samotnego.Tabela ta przedstawia pełny zestaw danych proteomicznych z analizy ilościowej dla wszystkich kohort eksperymentalnych. Ważne kolumny obejmują Protein ID (numer akcesyjny UniProt), Gene (symbol genu), First.Protein.Description (adnotacja funkcjonalna) oraz znormalizowane wartości intensywności białek dla każdej repliki biologicznej w grupach Sham, CHF i EA (n = 6 na grupę).Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Wartości istotności zmiennych w projekcji (VIP) w modelu OPLS-DA dla białek w porównaniu grupy Sham z grupą CHF.Tabela ta wymienia cechy, które odróżniają grupy Sham i CHF zgodnie z modelem OPLS-DA. Kluczowe kolumny obejmują cechę (reprezentującą identyfikator konkretnego białka/genu) oraz wartość VIP_value (Variable Importance in Projection), która wskazuje wkład każdej cechy w rozdzielenie grup (próg VIP > 1.0).Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 3: Wyniki wskaźnika istotności zmiennych (VIP) w modelu OPLS-DA dla białek w porównaniu CHF i EA.Tabela ta wymienia cechy różnicujące grupy CHF i EA w oparciu o model OPLS-DA. Podobnie jak w Tabeli S2, zawiera ona kolumnę cech oraz odpowiadającą im wartość VIP_value, wyróżniając cechy najbardziej reaktywne na interwencję EA.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 4: Szczegółowa lista 85 kluczowych białek o różnej ekspresji modulowanych przez elektroakupunkturę.Tabela ta przedstawia część wspólną białek, których poziom uległ znaczącej zmianie w przebiegu CHF, a następnie został przywrócony przez interwencję EA. Ważne kolumny obejmują Protein_ID, Gene, log2FC (log2 Fold Change wskazujący zmienność ekspresji), P_value dla istotności statystycznej (próg p < 0,05) oraz VIP_value oceniający wkład w model.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 5: Analiza wzbogacenia Gene Ontology dla podzbioru obniżonych białek rdzeniowych. Tabela ta przedstawia adnotacje funkcjonalne Gene Ontology (GO) dla 58 białek o obniżonej ekspresji pod wpływem EA. Ważne kolumny obejmują ONTOLOGY (podzieloną na Proces Biologiczny [BP], Komponent Komórkowy [CC] oraz Funkcję Molekularną [MF]), opis funkcjonalny (Description), p.adjust (skorygowaną wartość p dla wielokrotnego testowania) oraz geneID, który odpowiada konkretnym genom wzbogaconym w każdym terminie.Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 6: Analiza wzbogacenia szlaków KEGG (Kyoto Encyclopedia of Genes and Genomes) dla podzbioru obniżonych białek rdzeniowych.Tabela ta przedstawia wzbogacone kaskady sygnalizacyjne dla 58 białek o obniżonej ekspresji. Kluczowe kolumny obejmują nazwę szlaku (Term), skorygowaną wartość p wskazującą na istotność statystyczną wzbogacenia oraz konkretne przecinające się geny zaangażowane w każdy szlak.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 7: Analiza wzbogacenia ontologii genów (Gene Ontology) dla podzbioru nadekspresyjnych białek kluczowych.Tabela ta przedstawia adnotacje funkcjonalne Gene Ontology (GO) dla 27 białek wykazujących nadekspresję pod wpływem EA. Format i definicje kolumn (ONTOLOGY [BP, CC, MF], Description, p.adjust, geneID) są identyczne z tymi szczegółowo opisanymi w tabeli S5.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 8: Analiza wzbogacenia szlaków Kyoto Encyclopedia of Genes and Genomes dla podzbioru nadrzędnych białek rdzeniowych.Tabela ta przedstawia wzbogacone kaskady sygnalizacyjne dla 27 nadrzędnych białek. Format i definicje kolumn (Term, Adjusted p-value, Genes) są identyczne z tymi szczegółowo opisanymi w Tabeli S6.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 9: Wyniki łączności topologicznej 18 białek hub wyznaczonych z sieci oddziaływań białko-białko.Tabela ta podsumowuje topologiczne parametry sieci wykorzystane do identyfikacji kluczowych genów hub. Główne kolumny obejmują nazwę genu oraz centralne metryki sieci, takie jak stopień (Degree), centralność pośrednictwa (Betweenness Centrality) i centralność bliskości (Closeness Centrality), które określają względne znaczenie i łączność każdego węzła w sieci biologicznej.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 10: Analiza wzbogacenia szlaków Kyoto Encyclopedia of Genes and Genomes dla 18 białek centralnych sieci.Tabela ta przedstawia specyficzne szlaki sygnalizacyjne wzbogacone wyłącznie przez 18 zidentyfikowanych białek centralnych. Kluczowe kolumny obejmują nazwę szlaku (Term), skorygowaną wartość p określającą istotność oraz odpowiednie geny odpowiedzialne za wzbogacenie funkcjonalne.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Skrypty R wykorzystane do analizy i wizualizacji danych oraz nieprzycięte obrazy Western blot.Plik uzupełniający zawiera skrypty R wykorzystane do analizy korelacji Pearsona, generowania podwójnych wykresów wulkanicznych (volcano plot) i identyfikacji białek o odwróconej ekspresji w EA, analizy wzbogacenia Gene Ontology (GO), generowania map ciepła z klastrowaniem hierarchicznym, wizualizacji wzbogacenia Kyoto Encyclopedia of Genes and Genomes (KEGG), ortogonalnej analizy dyskryminacyjnej metodą najmniejszych kwadratów częściowych (OPLS-DA) i testowania permutacyjnego, analizy dyskryminacyjnej metodą najmniejszych kwadratów częściowych (PLS-DA), generowania mapy ciepła korelacji próbek proteomicznych oraz analizy diagramów Venna.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Niniejsze badanie analizowało centralne mechanizmy elektrowstemplowania (EA) w punkcie akupunktury HT7 w szczurzym modelu niewydolności serca (CHF). Dane fizjologiczne i histologiczne wykazały, że EA poprawiło frakcję wyrzutową lewej komory (LVEF) i złagodziło włóknienie mięśnia sercowego. Równolegle do tych zmian obwodowych, rejestracje elektrofizjologiczne in vivo oraz mapowanie neuronalne potwierdziły, że EA przywróciło częstotliwość wyładowań neuronów w obrębie jądra tractus solitarii (NTS). Za pomocą proteomiki opartej na spektrometrii mas zmapowano krajobraz molekularny NTS i zidentyfikowano 85 białek o różnej ekspresji, których nieprawidłowe wzorce ekspresji zostały zmodyfikowane przez zastosowaną interwencję. Następcza analiza topologiczna i profilowanie ekspresji tkankowej wyodrębniły czynnik transkrypcyjny YY1 jako potencjalny cel biologiczny. Walidacja molekularna wykazała, że EA zwiększa ekspresję YY1. Wyniki te budują centralną sieć molekularną dla EA i sugerują, że YY1 jest potencjalnym celem neurobiologicznym łączącym centralną regulację autonomiczną z poprawą przebiegu CHF. Kompleksowe mechanizmy centralne zostały podsumowane na Rysunku 7.
NTS służy jako centrum integracji dla centralnych odruchów sercowo-naczyniowych i regulacji autonomicznej21,2. W kontekście chorób sercowo-naczyniowych, CHF wiąże się z trwałym zaburzeniem równowagi autonomicznej, charakteryzującym się nadaktywnością współczulną i wycofaniem aktywności nerwu błędnego23. Podczas progresji patofizjologicznej tego stanu czułość obwodowych baroreceptorów spada, co zmniejsza pobudzające sygnały aferentne do NTS24. W konsekwencji to tłumienie neuronalne prowadzi do zmniejszonej aktywacji brzuszno-bocznej części rdzenia przedłużonego (caudal ventrolateral medulla) i następującego po niej zniesienia hamowania rostralnej części brzuszno-bocznej rdzenia przedłużonego (rostral ventrolateral medulla), co kulminuje w nadmiernym centralnym odpływie współczulnym25. Równolegle do tych mechanizmów dane elektrofizjologiczne i histologiczne wykazały, że spontaniczna częstotliwość wyładowań oraz ekspresja c-Fos w neuronach NTS były obniżone w stanie CHF. Jako ukierunkowane podejście neuromodulacyjne, sygnały aferentne somatosensoryczne generowane przez EA są teoretycznie przekazywane przez nerwy obwodowe do rogów tylnych rdzenia kręgowego, a następnie wstępują do struktur pnia mózgu, w tym do NTS26. Wyniki wykazały, że interwencja EA w punkcie akupunktu HT7 zwiększyła energię oscylacji neuronalnych i przywróciła częstotliwość wyładowań neuronów w tym obszarze mózgu. Fizjologicznie przywrócona aktywność neuronalna NTS ułatwia aktywację inhibicyjnych interneuronów w rdzeniu przedłużonym, hamując tym samym nadaktywne neurony premotoryczne współczulne, przy jednoczesnym wzmocnieniu eferentnych sygnałów przywspółczulnych27. Łącząc te centralne mechanizmy neuronalne z obwodowymi fenotypami sercowo-naczyniowymi, analiza korelacji potwierdziła, że ta centralna aktywacja neuronalna była dodatnio skorelowana z LVEF i ujemnie skorelowana z obwodowym markerem niewydolności serca NT-proBNP. Wyniki te wskazują, że EA może wywierać obwodowe działanie kardioprotekcyjne poprzez łagodzenie patologicznego hamowania neuronów NTS i promowanie centralnej homeostazy autonomicznej.
Aby wyjaśnić molekularne szlaki leżące u podstaw tej centralnej neuromodulacji, przeanalizowano krajobraz proteomiczny NTS. Proteomika oparta na spektrometrii mas zidentyfikowała 85 białek, których wzorce ekspresji uległy modulacji pod wpływem interwencji. Stratyfikacja funkcjonalna wykazała, że podzbiór 58 białek o obniżonej ekspresji po zastosowaniu EA jest istotnie zaangażowany w organizację macierzy zewnątrzkomórkowej oraz szlak sygnalizacyjny transforming growth factor β. Macierz zewnątrzkomórkowa w ośrodkowym układzie nerwowym tworzy zorganizowaną sieć, w tym sieci perineuronalne, które fizycznie otaczają terminale synaptyczne i regulują lokalną homeostazę jonową28. W warunkach chronicznego stresu patologicznego, takiego jak niewydolność serca, aberracyjna depozycja macierzy zewnątrzkomórkowej tworzy restrykcyjne mikrośrodowisko w pniu mózgu29. To przebudowanie strukturalne fizycznie utrudnia plastyczność strukturalną synaps i utrzymuje obwody neuronalne w stanie nadaktywności współczulnej30. Poprzez modulację ekspresji białek strukturalnych, takich jak COL3A1 i COL14A1 wraz z DCN, EA przebudowuje tę patologiczną barierę zewnątrzkomórkową. Jednocześnie wzbogacenie powiązanych kaskad sygnalizacyjnych — sklasyfikowanych w ramach szlaku KEGG „cytoskeleton in muscle cells”, co wskazuje na ogólne zmiany strukturalne i zapośredniczone przez integryny, a nie na faktyczną obecność miocytów w NTS — sugeruje, że zmiany zewnątrzkomórkowe są przenoszone do kompartymentu wewnątrzkomórkowego31. Ta sygnalizacja mechanotransdukcyjna przywraca dynamiczny obrót kolców dendrytycznych oraz reguluje przekaźnictwo i skuteczność synaptyczną w autonomicznym łuku odruchowym32.
Poza zewnątrzkomórkową reorganizacją strukturalną, adnotacja funkcjonalna 27 białek o zwiększonej ekspresji w wyniku interwencji wskazała na zaangażowanie ATP-zależnego remodelowania chromatyny. Utrwalona nierównowaga autonomiczna układu sercowo-naczyniowego jest podtrzymywana przez restrykcje epigenetyczne, w których skondensowana chromatyna ogranicza dostępność regionów promotorowych genów regulujących inhibicję neuronalną3. Kompleksy ATP-zależnego remodelowania chromatyny wykorzystują energię z hydrolizy ATP do przesuwania lub usuwania nukleosomów, otwierając tym samym loci genomiczne dla aktywnej transkrypcji34. Wzbogacenie tej ścieżki, wraz z pozytywną regulacją elongacji transkrypcji matrycyzowanej przez DNA, wskazuje, że EA działa na poziomie epigenetycznym w celu przebudowy związanej z chorobą pamięci transkrypcyjnej35. Strukturalne rozluźnienie zewnątrzkomórkowego mikrośrodowiska przekłada się na jądrowe modyfikacje epigenetyczne, ułatwiając skoordynowaną transkrypcję neuroprotekcyjnych sieci genów łączonych przez kluczowe białka, takie jak YY1 i E2F236,37. Aby systematycznie wyizolować cel biologiczny pośredniczący w skuteczności terapeutycznej EA, zastosowano strategię przesiewania etapowego. 85 białek o zróżnicowanej ekspresji przefiltrowano za pomocą mapowania sieci topologicznych i analizy wzbogacenia ścieżek, aby zidentyfikować 10 głównych kandydatów na węzły sieci (huby). Następne profilowanie ekspresji tkankowej potwierdziło, że w ludzkich tkankach mózgowych ekspresjonowane są jedynie YY1 i DPF2, a także DMAP1. Walidacja molekularna in vivo pozwoliła dodatkowo wykluczyć DPF2 i DMAP1 ze względu na brak odpowiedzi transkrypcyjnej, co potwierdziło YY1 jako wysoce responsywny cel kandydujący. YY1 jest czynnikiem transkrypcyjnym z palcem cynkowym, który sprawuje kontrolę nad rozwojem ośrodkowego układu nerwowego i plastycznością neuronalną38. W dojrzałych obwodach neuronalnych YY1 funkcjonuje jako regulator neuroprotekcyjny poprzez utrzymywanie homeostazy mitochondrialnej i łagodzenie stresu oksydacyjnego39. Podczas patologicznej progresji CHF, utrzymujący się stres hemodynamiczny i zapalenie obwodowe indukują dysfunkcję metaboliczną i uszkodzenia strukturalne w neuronach pnia mózgu40. Dane eksperymentalne wykazały, że ekspresja YY1 jest tłumiona w NTS w warunkach CHF, podczas gdy interwencja EA przeciwdziałała temu patologicznemu tłumieniu. W oparciu wyłącznie o obliczeniowe przewidywania bioinformatyczne, a nie o walidację empiryczną, wysunięto hipotezę, że YY1 oddziałuje z aktywnymi modyfikacjami histonów, takimi jak H3K27ac i H3K4me3, aby koordynować transkrypcję w dół neuroprotekcyjnych sieci genów 41. Przywrócenie aktywności YY1 może ułatwić naprawę neuronalnych ścieżek metabolicznych i promować integralność strukturalną połączeń synaptycznych. W konsekwencji, zmodyfikowane neurony NTS poprawiają swoją zdolność do przetwarzania obwodowych sygnałów barorefleksyjnych i sprawują kontrolę hamującą nad zstępującymi przedmotorycznymi ścieżkami współczulnymi, co łagodzi pogorszenie stanu układu sercowo-naczyniowego związane z CHF42.
Pomimo tych odkryć, kilka ograniczeń metodologicznych wymaga rygorystycznego rozważenia. Po pierwsze, obecny projekt eksperymentalny opierał się na korelacyjnych badaniach omicznych i profilowaniu ekspresji bez bezpośrednich dowodów funkcjonalnych. Przyszłe badania muszą obejmować celowane manipulacje genetyczne, takie jak wyciszenie lub nadekspresja za pomocą wektorów wirusowych w obrębie NTS, wraz z empirycznymi analizami ChIP-seq lub CUT&Tag, aby jednoznacznie ustalić przyczynową rolę YY1 i zwalidować jego downstreamowe sieci epigenetyczne. Po drugie, wykluczenie kohorty Sham EA z fazy proteomiki ogranicza naszą zdolność do definitywnego wykluczenia sygnatur molekularnych indukowanych nieswoistą stymulacją somatosensoryczną. Jednak porównanie grup CHF i EA w odniesieniu do linii bazowej Sham uznaje się za wystarczające do wyizolowania specyficznych dla EA zmian molekularnych w obecnym projekcie. Wynika to z faktu, że wszystkie kohorty bez interwencji, a konkretnie grupy Sham i CHF, zostały poddane ścisłej standaryzacji bazowej w zakresie codziennej ekspozycji na znieczulenie izofluranem, co skutecznie zminimalizowało najistotniejsze nieswoiste czynniki zakłócające związane ze stresem neurologicznym. Co więcej, nasze wstępne dane funkcjonalne wykazały, że Sham EA nie wywołało znaczącej aktywacji sercowo-naczyniowej ani neuronalnej w porównaniu z grupą CHF, co sugeruje, że powierzchowna stymulacja somatosensoryczna bez prądu elektrycznego nie osiąga progu wymaganego do wywołania istotnego centralnego przeprogramowania molekularnego. Po trzecie, w badaniu zabrakło standardowych grup kontrolnych dla punktów nieakupunkturowych, co uniemożliwia definitywne potwierdzenie specyficzności punktu akupunkturowego HT7. Ponadto zaproponowane aferentne drogi neuronalne z HT7 do NTS pozostają w sferze spekulacji bez bezpośredniego śledzenia neuronalnego lub walidacji za pomocą blokady nerwów. Wreszcie, elektrofizjologia in vivo oceniała globalną aktywność NTS w pojedynczym punkcie czasowym, nie rozróżniając specyficznych pobudzających i hamujących subpopulacji neuronów ani nie oceniając długoterminowej plastyczności neuronalnej. Kolejne badania muszą uzupełnić te krytyczne luki, aby doprecyzować centralne mechanizmy neurobiologiczne.
Ostatecznie, poprzez zintegrowanie tych wyników przy jednoczesnym uznaniu ich korelacyjnego charakteru, niniejsze badanie dostarcza cennych podstaw molekularnych wskazujących, że EA łagodzi patologiczne przebudowy serca poprzez przywrócenie funkcji neuronów NTS. Dane te wskazują na YY1 jako wysoce responsywny cel w centralnej neuromodulacji sercowo-naczyniowej, oferując nowe spostrzeżenia neurobiologiczne dla klinicznego zastosowania akupunktury w leczeniu niewydolności serca.
Oświadczenia
Wszyscy autorzy oświadczają, że nie występują żadne konflikty interesów. Autorzy oświadczają również, że na żadnym etapie procesu przygotowania manuskryptu nie wykorzystano narzędzi sztucznej inteligencji.
Podziękowania
Pragniemy wyrazić naszą szczera wdzięczność wszystkim badaczom, którzy przyczynili się do niniejszego badania, oraz z szacunkiem uznać poświęcenie zwierząt doświadczalnych. Praca ta była wspierana przez National Key Research and Development Program of China (grant nr 202YFC35050 oraz 202YFC350502) oraz Xu Nenggui University-Level Talent Support Program (grant nr DT24022). Podmioty finansujące nie brały udziału w projektowaniu badania, zbieraniu i analizie danych, decyzji o publikacji ani w przygotowaniu manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Dorosłe samce szczurów linii Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | Nr SCXK (LIAO) 2025-01 | RGD_70508 |
| Igły do akupunktury | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Medium montażowe antyblaknące z DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Przeciwciało pierwszorzędowe anty-YY1 | Proteintech Group, Inc | 6281-1-Ig | AB_288164 |
| Przeciwciało pierwszorzędowe przeciwko beta-aktynie | 609-1-Ig | AB_2687938 | |
| Sery albuminy wołowej (BSA) | Sigma Odellie Trading Co., Ltd. | V9093 | — |
| Zestaw do oznaczenia białka metodą BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P012S | — |
| przeciwciało królika mAb przeciwko c-Fos (9F6) | Sai Xin Tong Biological Reagents Co., Ltd. | 250S | AB_247211 |
| Cytoscape | Konsorcjum Cytoscape | wersja 3.2.1 | SCR_03032 |
| Uniwersalna mieszanina ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q71-02 | — |
| Aparat do elektroakupunktury | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-20A | — |
| Ośmiokanałowy (2 × 4) matryca mikroelektrod | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| zestaw ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| zestaw ELISA (cTnT) | MM-0795R2 | — | |
| Zestaw do wzmocnionej chemiluminescencji | Proteintech Group, Inc | PK101 | — |
| Przeciwciało kozie przeciwko IgG królika | Aimee Technology Co., Ltd. | 111-545-003 | AB_238046 |
| przeciwciało wtórne kozie anty-mysie IgG koniugowane z HRP | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | Nie dotyczy |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| oprogramowanie ImageJ | National Institutes of Health | wersja 4.0 | SCR_03070 |
| System obrazowania | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Wielokanałowy aparat do znieczulania małych zwierząt | RWD Life Science Co., Ltd | R510-2-10 | — |
| Mikroskop | Olympus Optical Co., Ltd. | DP72 | — |
| oprogramowanie NeuroExplorer | Beijing Plexon Technology Co., Ltd. | wersja 5.0 | SCR_01818 |
| oprogramowanie Offline Sorter | Beijing Plexon Technology Co., Ltd. | wersja 4.7.2 | SCR_0012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Przewód Powerlab standard limb II system | AD Instruments International Trading Co., Ltd. | ML18 | — |
| Kolumna pułapkowa PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Inhibitory fosfataz | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| oprogramowanie R | — | wersja 4.5.2 | SCR_01905 |
| bufor lizujący RIPA | Yeasen Biotechnology Co., Ltd. | 2015ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Cyfrowy system ultrasonograficzny dla małych zwierząt | Feiyino Technology Co., Ltd. | Laboratorium VINNO6 | — |
| Oprogramowanie statystyczne | Oprogramowanie GraphPad | Wersja 8.0 | SCR_02798 |
| Wielokanałowa akwizycja OmniPlex system | Beijing Plexon Technology Co., Ltd. | wersja 1.20.0 | — |
| Triton X-10 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| system UHPLC Vanquish Neo | Thermo Fisher Scientific | — | — |
| µPAC kolumna Neo High Throughput | Thermo Fisher Scientific | — | — |
Bibliografia
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.