Osimiotygodniowy wysiłek fizyczny na bieżni wiązał się ze zmianami transkrypcyjnymi w sercu, barierze jelitowej oraz związanymi z Nlrp3, a także ze zmianami w mikrobiocie jelitowej, w szczególności ze zwiększoną liczbą Akkermansia muciniphila, u myszy z cukrzycą.
Artykuł badawczy
Ćwiczenia na bieżni wiążą się ze zmianami w barierze jelitowej i ekspresji genu Nlrp3 w sercu u myszy z cukrzycą
W tym artykule
Podsumowanie
Streszczenie
W niniejszym badaniu zbadano powiązania między ćwiczeniami fizycznymi, ekspresją genów związanych z barierą jelitową a ekspresją genów związanych z inflamasomem Nlrp3 w sercu w modelu mysim z cukrzycą. Dysregulację metaboliczną u samców myszy C57BL/6J wywołano za pomocą diety wysokotłuszczowej w połączeniu z niską dawką streptozotocyny, po czym zastosowano 8-tygodniowy trening na bieżni (nachylenie 5°, 12 m/min, 20–50 min/dzień, 5 dni/tydzień). W porównaniu z siedzącymi myszami z cukrzycą, myszy ćwiczące wykazywały niższy poziom glukozy na czczo, mniejszą insulinooporność i niższy poziom lipidów w surowicy, a także wyższą ekspresję mRNA Occludin w okrężnicy (ekspresja względna: 0,38 ± 0,04 u myszy z cukrzycą vs 0,79 ± 0,05 u myszy ćwiczących, P < 0,001), niższą ekspresję mRNA Nlrp3, IL-1β, TNF-α, Col1a1 i Tgfb1 w sercu oraz niższy stosunek mRNA Bax/Bcl-2 (3,06 ± 0,19 vs 1,48 ± 0,10, P < 0,001). Analiza qPCR kału sześciu wybranych taksonów wykazała, że ćwiczenia wiązały się ze zwiększoną względną licznością Akkermansia muciniphila (z 0,31 ± 0,04 do 0,84 ± 0,07) i Lactobacillus (z 0,48 ± 0,05 do 1,01 ± 0,07) oraz zmniejszoną licznością Escherichia coli (z 3,84 ± 0,33 do 1,68 ± 0,13, P < 0,01). U myszy ćwiczących liczność A. muciniphila była ujemnie skorelowana z ekspresją mRNA Nlrp3 w sercu (R = −0,81, P = 0,0046). Te korelacyjne wyniki wskazują na powiązania między ćwiczeniami, zmianami transkrypcyjnymi w sercu i jelitach a wybranymi taksonami drobnoustrojów jelitowych u myszy z cukrzycą, lecz nie ustanawiają związków przyczynowo-skutkowych. Wszystkie wyniki molekularne ograniczają się do zmian na poziomie mRNA i nie demonstrują funkcji bariery jelitowej, aktywacji inflamasomu, włóknienia mięśnia sercowego, apoptozy ani innych efektów funkcjonalnych lub na poziomie białka.
Wprowadzenie
Cukrzyca jest narastającym globalnym zagrożeniem dla zdrowia, a cukrzycowe powikłania kardiologiczne pozostają poważnymi schorzeniami o ograniczonych możliwościach terapii celowanej1,2,3,4. Trening fizyczny może poprawić funkcję serca w zwierzęcych modelach cukrzycy5,6, jednak mechanizmy leżące u podstaw tego procesu, zwłaszcza te związane z mikrobiotą jelitową i barierą jelitową, nie są jeszcze w pełni poznane.
Mikrobiota jelitowa reguluje metabolizm i odporność gospodarza7. W cukrzycy dysbioza jelitowa i upośledzona integralność bariery mogą zwiększać translokację lipopolisacharydu (LPS), promować zapalenie zapośredniczone przez TLR4 i pogarszać uszkodzenia mięśnia sercowego8,9. To pochodzące z jelit obciążenie zapalne może przyczyniać się do progresji powikłań cukrzycowych, w tym dysfunkcji serca. Liczba pożytecznych bakterii, takich jak Akkermansia i Faecalibacterium, może być zmniejszona, podczas gdy bakterie takie jak E. coli mogą ulegać zwiększeniu10,11. Takie zmiany mikrobiologiczne mogą przyczyniać się do lokalnego zapalenia jelit i systemicznej endotoksemii, potencjalnie wpływając na odległe organy, w tym na serce. Inflamasom NLRP3 jest ważnym mediatorem zapalenia serca w patologii serca w cukrzycy, a jego aktywacja może być modulowana przez metabolity mikrobiologiczne jelit12,13. Niektóre produkty mikrobiologiczne, w szczególności krótkołańcuchowe kwasy tłuszczowe i LPS, mają przeciwstawne działanie na priming i składanie NLRP3, co sugeruje potencjalny związek między środowiskiem mikrobiologicznym jelit a stanem zapalnym mięśnia sercowego.
Ćwiczenia fizyczne mogą zmieniać mikrobiotę jelitową i poprawiać funkcję bariery jelitowej14,15, jednak powiązania między ćwiczeniami, ekspresją genów związanych z barierą jelitową a ekspresją genów związanych z inflamasomem NLRP3 w sercu w modelach cukrzycy nie są jeszcze w pełni zrozumiałe. Nabłonek jelitowy stanowi interfejs między mikrobami w świetle jelita a krążeniem systemowym, a zatem może przyczyniać się do zależności między zmianami w mikrobiocie jelitowej a zapalnymi odpowiedziami serca. Brakuje jednak bezpośrednich dowodów eksperymentalnych ustanawiających związek przyczynowo-skutkowy między indukowanymi ćwiczeniami zmianami w barierze jelitowej, aktywacją inflamasomu NLRP3 a ochroną serca w modelach cukrzycy.
Zatem postawiono hipotezę, że ćwiczenia na bieżni będą wiązać się ze zmianami transkrypcyjnymi w sercu, zmianami w wybranych taksonach mikrobioty jelitowej, zachowaniem ekspresji genów związanych z barierą jelitową oraz obniżeniem ekspresji genów związanych z inflamasomem NLRP3 w sercu u myszy z cukrzycą. Model myszy z cukrzycą utworzono z zastosowaniem diety wysokotłuszczowej w połączeniu z niską dawką streptozotocyny, po czym przeprowadzono 8-tygodniową interwencję w postaci ćwiczeń na bieżni. Oceny obejmowały parametry metaboliczne, ekspresję mRNA okludyny w okrężnicy, ekspresję genów związanych z inflamasomem NLRP3 w sercu oraz markery ekspresji genów zapalnych, włóknistych i apoptotycznych. Ilościowo określono również wybrane taksony mikrobioty jelitowej, aby ocenić zmiany w mikrobiomie jelitowym związane z ćwiczeniami. Analizy korelacji wykorzystano do zbadania powiązań między wybranymi taksonami mikrobioty jelitowej, ekspresją genów związanych z barierą jelitową a markerami transkrypcyjnymi serca. Analizy te zostały zaprojektowane w celu zidentyfikowania korelacji, a nie w celu ustalenia przyczynowego mechanizmu bariera jelitowa-NLRP3.
Protokół
Wszystkie procedury z udziałem zwierząt zostały przeprowadzone w ośrodku dla zwierząt akredytowanym przez międzynarodową organizację ds. akredytacji opieki nad zwierzętami laboratoryjnymi. Protokół został przejrzany i zatwierdzony przez Instytucjonalną Komisję ds. Opieki i Użytkowania Zwierząt (IACUC; numer zatwierdzenia: VS212500103) danej placówki. Eksperymenty przeprowadzono w zatwierdzonym ośrodku zewnętrznym, ponieważ instytucja macierzysta nie dysponowała licencjonowanym ośrodkiem dla zwierząt odpowiednim dla tego konkretnego modelu.
Ustanowienie modelu myszy z cukrzycą
Samce myszy C57BL/6J (w wieku 8 tygodni, wolne od określonych patogenów, masa ciała 20–22 g) aklimatyzowano przez 1 tydzień w kontrolowanych warunkach (22 ± 2 °C, 50 ± 10% wilgotności względnej, 12-godzinny cykl światła/ciemności) z ad libitum dostępem do standardowej karmy i wody.
Po aklimatyzacji myszy zostały losowo przydzielone za pomocą tablicy liczb losowych do grupy kontrolnej (Control, n = 10) lub grupy indukcji cukrzycy. Procedury eksperymentalne oraz pomiary wyników były przeprowadzane przez badaczy, którzy nie znali przydziału zwierząt do grup. Zwierzęta utrzymywano po cztery w klatce w standardowych klatkach poliwęglanowych z wzbogaconym ściółką w warunkach wolnych od określonych patogenów (SPF). Aby zminimalizować potencjalną zmienność związaną z cyklami rujowymi oraz ze względu na to, że model z dietą wysokotłuszczową/STZ generował bardziej spójne fenotypy metaboliczne u samców, wykorzystano wyłącznie myszy samce.
Myszy poddawane indukcji cukrzycy otrzymywały dietę wysokotłuszczową (60% kcal z tłuszczów) przez 4 tygodnie, po czym przez 5 kolejnych dni podawano im dożylnie streptozotocynę (STZ; 30 mg/kg masy ciała). STZ rozpuszczano bezpośrednio przed użyciem w 0,1 mol/L buforze cytrynianowym (pH 4,5), chroniono przed światłem i podawano w ciągu 15 min od przygotowania. Myszy kontrolne otrzymywały równoważne objętości buforu cytrynianowego. Tydzień po ostatnim wstrzyknięciu, po 6 h głodzenia, zmierzono poziom glukozy we krwi na czczo (FBG) z krwi pobranej z końcówki ogona. Za cukrzycowe uznano myszy z FBG ≥ 11,1 mmol/L. Myszy te utrzymywano na diecie wysokotłuszczowej przez dodatkowe 4 tygodnie, aby umożliwić rozwój zmian w ekspresji genów związanych z cukrzycą.
Łącznie 35 myszy poddano indukcji modelu, z czego 28 spełniło kryteria cukrzycy. Masę ciała i spożycie pokarmu monitorowano co tydzień, jednak nie stosowano ich jako kryteriów wykluczenia. Żadne zwierzę nie padło ani nie zostało wykluczone podczas fazy modelowania lub interwencji. Myszy z pomyślnie wyindukowanym modelem randomly podzielono na grupę z cukrzycą (DM, n = 10) oraz grupę z interwencją w postaci ćwiczeń (DM+Ex, n = 10). Końcowa liczebność próby wynosiła n = 10 na grupę we wszystkich analizach, przyjmując każdą mysz jako jednostkę eksperymentalną.
Interwencja w postaci ćwiczeń na bieżni
Myszy w grupie DM+Ex wykonywały ćwiczenia na bieżni przy nachyleniu 5° i prędkości 12 m/min, 5 dni w tygodniu przez 8 tygodni. Wszystkie sesje ćwiczeń odbywały się między godziną 9:00 a 11:00. Przed interwencją myszy były aklimatyzowane do biegania na bieżni przez 3 dni przy prędkości 6 m/min przez 5 min/dzień przy nachyleniu 0°. Każda sesja ćwiczeń obejmowała 5-minutową rozgrzewkę przy 6 m/min oraz 5-minutową fazę schładzania przy 6 m/min. W celu zachęcenia do biegu stosowano delikatne popychanie; nie wykorzystywano stymulacji elektrycznej.
Codzienny czas biegu wynosił 20 min w tygodniu 1, 25 min w tygodniu 2, 30 min w tygodniu 3, 35 min w tygodniu 4, 40 min w tygodniu 5, 45 min w tygodniu 6 oraz 50 min w tygodniach 7–8. Myszy z grupy kontrolnej i grupy DM były umieszczane na stacjonarnych bieżniach przez analogiczny czas w celu kontroli wpływu obsługi i ekspozycji na środowisko. Predefiniowanym kryterium wykluczenia był brak ukończenia więcej niż 80% zaplanowanych sesji ćwiczeń. Żadne zwierzę nie spełniło tego kryterium; wszystkie zwierzęta ukończyły zaplanowane sesje ćwiczeń i nie zaobserwowano żadnych zdarzeń niepożądanych.
Pobieranie próbek
Dwanaście godzin po ostatniej sesji ćwiczeń myszy poddano 6-godzinnej głodówce i znieczulono poprzez inhalację izofluranem (indukcja 3% i podtrzymanie 1,5–2% w 100% O₂ przy przepływie 1 L/min). Około 500 µL krwi pobrano z splotu żylnego zaocznego, pozostawiono do skrzepnięcia w temperaturze pokojowej przez 30 min, a następnie odwirowano przy 3,000 × g przez 15 min w temperaturze 4 °C. Otrzymane serum przechowywano w temperaturze −80 °C.
Myszy uśmiercono następnie poprzez zwichnięcie stawów szyjnych w głębokiej narkozie. Serca szybko wycięto i przemyto lodowatym roztworem PBS (bufor fosforanowy). Wyizolowano tkankę lewej komory; jedną część zamrożono błyskawicznie w ciekłym azocie i przechowywano w temperaturze −80 °C do ekstrakcji RNA, a pozostałą tkankę utrwalono w 4% paraformaldehydzie. Pobrano około 1 cm tkanki dystalnej części okrężnicy, przemyto ją roztworem PBS, zamrożono błyskawicznie i przechowywano w temperaturze −80 °C. Świeże próbki kału pobrano bezpośrednio z odbytnicy między godziną 9:00 a 10:00, aby zminimalizować zanieczyszczenie z klatki, przeniesiono do sterylnych probówek i przechowywano w temperaturze −80 °C w ciągu 15 min od pobrania.
Biochemiczne pomiary surowicy
FBG mierzono za pomocą systemu pomiaru glukozy we krwi. Poziom insuliny w surowicy określono za pomocą enzymatycznego testu immunosorpcyjnego (ELISA), natomiast całkowity poziom cholesterolu i tryglicerydów zmierzono przy użyciu automatycznego analizatora biochemicznego. Insulinooporność obliczono zgodnie z modelem oceny homeostazy: HOMA-IR = FBG (mmol/L) × insulina (mIU/L)/22,5.
Izolacja RNA i ilościowa PCR w czasie rzeczywistym z tkanki mięśnia sercowego
Około 30 mg tkanki lewej komory homogenizowano w odczynniku do ekstrakcji RNA opartym na fenolu i guanidynium, a całkowite RNA wyekstrahowano zgodnie z protokołem dołączonym do odczynnika. Stężenie i czystość RNA oceniono spektrofotometrycznie, przyjmując za akceptowalny stosunek A260/A280 w zakresie 1,8–2,0. Całkowite RNA (1 µg) poddano odwrotnej transkrypcji do komplementarnego DNA (cDNA).
Ilościową reakcję PCR (qPCR) przeprowadzono w 20 µL mieszaniny reakcyjnej zawierającej fluorescencyjny master mix do qPCR wiążący DNA, po 0,4 µmol/L starterów forward i reverse oraz 2 µL matrycy cDNA. Warunki amplifikacji obejmowały 95 °C przez 30 s, a następnie 40 cykli składających się z 95 °C przez 5 s i 60 °C przez 34 s. Analizę krzywej topnienia przeprowadzono w zakresie 65–95 °C w celu weryfikacji specyficzności amplifikacji. Wszystkie reakcje przeprowadzono w duplikacie, uwzględniając kontrole bez matrycy (no-template) oraz bez odwrotnej transkrypcji (no-reverse-transcription). Efektywność amplifikacji dla wszystkich par starterów mieściła się w zakresie 90–105%. Startery dla Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 oraz Gapdh wymieniono w Tabeli 1. Względną ekspresję genów obliczono metodą 2−ΔΔCt i wyrażono jako krotność zmiany względem grupy kontrolnej.
Ekstrakcja DNA z mikrobioty kałowej i kwantyfikacja metodą qPCR
Całkowite DNA mikrobiologiczne wyekstrahowano z próbek kału przy użyciu protokołu ekstrakcji DNA z kału. Względną liczebność sześciu wybranych taksonów bakteryjnych — Faecalibacterium prausnitzii, Akkermansia muciniphila, rodzaju Lactobacillus, rodzaju Bifidobacterium, Escherichia coli oraz rodzaju Desulfovibrio — określono za pomocą qPCR, wykorzystując specyficzne dla taksonów startery wymienione w Tabeli 1. Uniwersalne bakteryjne startery 16S rRNA posłużyły jako referencja dla całkowitej liczebności bakterii.
Względną obfitość obliczono metodą 2−ΔΔCt, przyjmując całkowitą ilość bakteryjnego 16S rRNA jako referencję i normalizując wyniki względem grupy kontrolnej. Dla każdego celu wygenerowano krzywe wzorcowe, wykorzystując seryjne rozcieńczenia plazmidowego DNA o znanych stężeniach w celu weryfikacji wydajności amplifikacji. Wszystkie reakcje przeprowadzono w dubletach z analizą krzywej topnienia. Ze względu na różnice w liczbie kopii genu 16S rRNA między taksonami bakteryjnymi, wyniki przedstawiono jako względną obfitość 2−ΔΔCt, a nie jako bezwzględną liczbę kopii.
Ocena ekspresji okludyny w jelicie grubym
Około 30 mg tkanki okrężnicy poddano obróbce w celu ekstrakcji całkowitego RNA i syntezy cDNA zgodnie z powyższym opisem. Ekspresję mRNA Occludin zmierzono za pomocą qPCR, stosując następujące primery: forward, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; reverse, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Jako wewnętrzną referencję wykorzystano Gapdh, a ekspresję względną obliczono metodą 2−ΔΔCt.
Analiza statystyczna
Dane przedstawiono jako średnią ± odchylenie standardowe (SD). Normalność rozkładu oceniano za pomocą testu Shapiro-Wilka, a jednorodność wariancji za pomocą testu Levene'a. Dane międzygrupowe spełniające założenia parametryczne analizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA), a następnie testu Tukey'a (HSD) w celu przeprowadzenia post hoc porównań parowych. Porównania dwóch grup przeprowadzono za pomocą nieparzystego dwustronnego testu t Studenta t-test.
Do oceny powiązań między zmiennymi wykorzystano korelację rang Spearmana. Dla mapy ciepła korelacji obliczono cząstkowe korelacje Spearmana z kontrolą grupy eksperymentalnej. Wartości P skorygowano pod kątem wielokrotnych porównań przy użyciu procedury Benjamini-Hochberga dla fałszywego odkrycia (FDR), a za statystycznie istotne uznano skorygowaną wartość P (FDR) < 0.05. W stosownych przypadkach podano wielkości efektu (wskaźnik f Cohena dla ANOVA oraz r dla korelacji) oraz 95% przedziały ufności dla kluczowych różnic średnich. Wszystkie analizy statystyczne przeprowadzono przy użyciu oprogramowania do obliczeń statystycznych (wersja 4.2.0).
Wyniki
Ćwiczenia na bieżni wiązały się z poprawą nieprawidłowości metabolicznych u myszy z cukrzycą
W porównaniu z grupą kontrolną, myszy z cukrzycą wykazywały istotnie wyższy poziom glukozy w krwi na czczo (18,23 ± 0,61 vs. 6,03 ± 0,21 mmol/L, P < 0,001), insuliny w surowicy (16,30 ± 1,04 vs. 8,23 ± 0,38 mIU/L, P < 0,001), wskaźnik HOMA-IR (13,19 ± 1,18 vs. 2,21 ± 0,17, P < 0,001), cholesterol całkowity (4,62 ± 0,23 vs. 2,01 ± 0,09 mmol/L, P < 0,001) oraz trójglicerydy (2,12 ± 0,15 vs. 0,80 ± 0,08 mmol/L, P < 0,001). Po 8-tygodniowej interwencji w postaci ćwiczeń na bieżni parametry te uległy obniżeniu odpowiednio do 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L oraz 1,20 ± 0,14 mmol/L w porównaniu z myszami z cukrzycą (P < 0,01 lub P < 0,001); jednak większość wartości pozostała wyższa niż w grupie kontrolnej (Rycina 1A–E). Jednoczynnikowa analiza wariancji ANOVA wykazała istotne efekty grupowe dla wszystkich parametrów (wszystkie F(2,27) > 25,0, P < 0,001).
Trening fizyczny wiązał się z wyższą ekspresją mRNA okludyny w jelicie grubym oraz niższą ekspresją genów związanych z inflamasomem w sercu
U myszy z cukrzycą ekspresja mRNA Occludin w okrężnicy była o około 62% niższa niż w grupie kontrolnej (0,38 ± 0,04 vs 1,00 ± 0,06, P < 0,001). Jednocześnie ekspresja mRNA Nlrp3, Il1b oraz Tnfa w sercu wzrosła odpowiednio 5,6-krotnie, 6,5-krotnie i 5,1-krotnie w stosunku do wartości kontrolnych (wszystkie P < 0,001). Po interwencji w postaci ćwiczeń fizycznych ekspresja mRNA Occludin wzrosła do 0,79 ± 0,05 (P < 0,001 vs myszy z cukrzycą), natomiast ekspresja mRNA Nlrp3, Il1b i Tnfa spadła odpowiednio do 2,30 ± 0,21, 2,66 ± 0,25 i 2,14 ± 0,17 (wszystkie P < 0,001 vs myszy z cukrzycą; Rycina 2A–D).
Ćwiczenia fizyczne wiązały się z niższą ekspresją genów związanych z włóknieniem i apoptozą mięśnia sercowego
W grupie z cukrzycą zaobserwowano zwiększoną ekspresję w sercu genów związanych z włóknieniem Col1a1 (4,46 ± 0,29-krotny wzrost, P < 0,001) oraz Tgfb1 (4,17 ± 0,24-krotny wzrost, P < 0,001), wraz z wyższym stosunkiem mRNA Bax/Bcl2 (3,06 ± 0,19, P < 0,001) w porównaniu z grupą kontrolną. Po treningu fizycznym ekspresja mRNA Col1a1 i Tgfb1 spadła odpowiednio do 2,02 ± 0,16 i 1,92 ± 0,16 (dla obu P < 0,001 vs. myszy z cukrzycą), a stosunek mRNA Bax/Bcl2 spadł do 1,48 ± 0,10 (P < 0,001 vs. myszy z cukrzycą; Rycyna 3A–C).
Ćwiczenia fizyczne wiązały się ze zmianami w wybranych taksonach mikrobioty jelitowej u myszy z cukrzycą
W porównaniu z grupą kontrolną, u myszy z cukrzycą stwierdzono znacznie niższą względną liczebność czterech wybranych taksonów bakteryjnych: F. prausnitzii (0,25 ± 0,03 vs. 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 vs. 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 vs. 0,99 ± 0,04) oraz Bifidobacterium (0,56 ± 0,06 vs. 1,00 ± 0,06; wszystkie P < 0,001). Z kolei względna liczebność E. coli (3,84 ± 0,33 vs. 0,99 ± 0,08) i Desulfovibrio (3,07 ± 0,26 vs. 0,99 ± 0,07) była znacznie wyższa (oba P < 0,001). Interwencja w postaci ćwiczeń fizycznych wiązała się ze znacznie wyższą względną liczebnością F. prausnitzii, A. muciniphila, Lactobacillus i Bifidobacterium (P < 0,01 lub P < 0,001), przy czym wartość dla A. muciniphila osiągnęła 0,84 ± 0,07. Jednocześnie względna liczebność E. coli i Desulfovibrio spadła odpowiednio do 1,68 ± 0,13 i 1,52 ± 0,08 (oba P < 0,001 w porównaniu z myszami z cukrzycą; Rycina 4A–F).
Wybrane zmiany mikrobiologiczne skorelowano z ekspresją genów w sercu i okrężnicy
Przeprowadzono analizę korelacji Spearmana w celu oceny powiązań między względną licznością wybranych taksonów mikrobowych a markerami ekspresji genów w tkankach serca i okrężnicy (Rysunek 5A). Względna liczność A. muciniphila była ujemnie skorelowana z mRNA Nlrp3 w sercu (R = −0.81, P = 0.0046) oraz mRNA Tnfa w sercu (R = −0.80, P = 0.0054). Względna liczność E. coli była dodatnio skorelowana z ekspresją mRNA Occludin w okrężnicy (R = 0.66, P = 0.036; Rysunek 5B–D). Wyniki te wykazały powiązania między wybranymi taksonami mikrobowymi jelit a markerami transkrypcyjnymi serca i okrężnicy, lecz nie ustanowiły związków przyczynowo-skutkowych.
DOSTĘPNOŚĆ DANYCH:
Zbiory danych wygenerowane i/lub analizowane w ramach niniejszego badania są dostępne u autora korespondencyjnego na uzasadnioną prośbę.
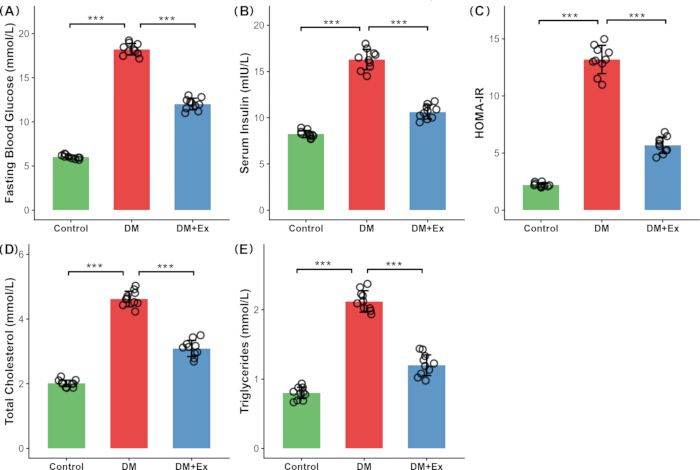
Rycina 1: Wpływ ćwiczeń na bieżni na parametry metaboliczne u myszy z cukrzycą. (A) Glikemia na czczo. (B) Insulina w surowicy. (C) HOMA-IR. (D) Cholesterol całkowity. (E) Triglicerydy w grupach Control, DM oraz DM+Ex. Dane przedstawiono jako średnia ± SD (n = 10 na grupę), z naniesionymi na każdy słupek indywidualnymi punktami danych. Porównania między grupami przeprowadzono za pomocą jednoczynnikowej analizy wariancji ANOVA, a następnie testu post hoc Tukeya. *P < 0.05, **P < 0.01, ***P < 0.001; ns = brak istotności statystycznej. Skróty: DM = model cukrzycy; Ex = ćwiczenia; HOMA-IR = homeostatyczna ocena insulinooporności; SD = odchylenie standardowe. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
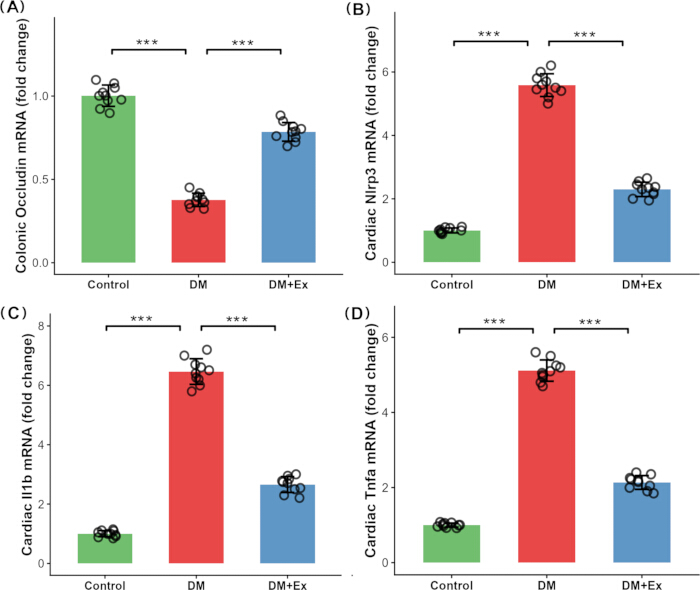
Rycina 2: Wpływ ćwiczeń na bieżni na ekspresję genów związanych z barierą jelitową oraz inflamasomem sercowym u myszy z cukrzycą. (A) Względna ekspresja mRNA Occludin w okrężnicy. (B) Względna ekspresja mRNA Nlrp3 w sercu. (C) Względna ekspresja mRNA Il1b w sercu. (D) Względna ekspresja mRNA Tnfa w sercu. Ekspresję genów znormalizowano względem Gapdh i przedstawiono jako zmianę krotności (fold change) w stosunku do grupy kontrolnej. Dane przedstawiono jako średnia ± SD (n = 10 na grupę). *P < 0,05, **P < 0,01, ***P < 0,001. Skróty: IL-1β = interleukina-1β; TNF-α = czynnik martwicy nowotworów-α; SD = odchylenie standardowe. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
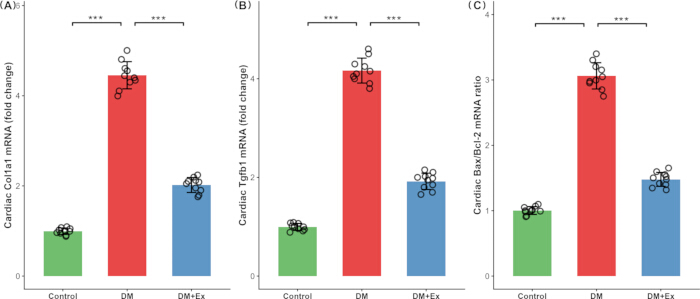
Rysunek 3: Wpływ ćwiczeń na bieżni na ekspresję genów związanych z włóknieniem mięśnia sercowego i apoptozą u myszy z cukrzycą. (A) Względna ekspresja mRNA Col1a1 w sercu. (B) Względna ekspresja mRNA Tgfb1 w sercu. (C) Stosunek mRNA Bax/Bcl2. Ekspresję genów znormalizowano względem Gapdh i przedstawiono jako krotność zmiany w stosunku do grupy kontrolnej. Stosunek Bax/Bcl2 obliczono na podstawie wartości względnej ekspresji mRNA. Dane przedstawiono jako średnia ± SD (n = 10 na grupę), z naniesionymi na każdy słupek indywidualnymi punktami danych. *P < 0.05, **P < 0.01, ***P < 0.001. Skróty: Col1a1 = kolagen typu I alfa 1; Tgfb1 = transformujący czynnik wzrostu-β1; Bax = białko X związane z BCL2; Bcl2 = chłoniak komórek B 2; SD = odchylenie standardowe. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
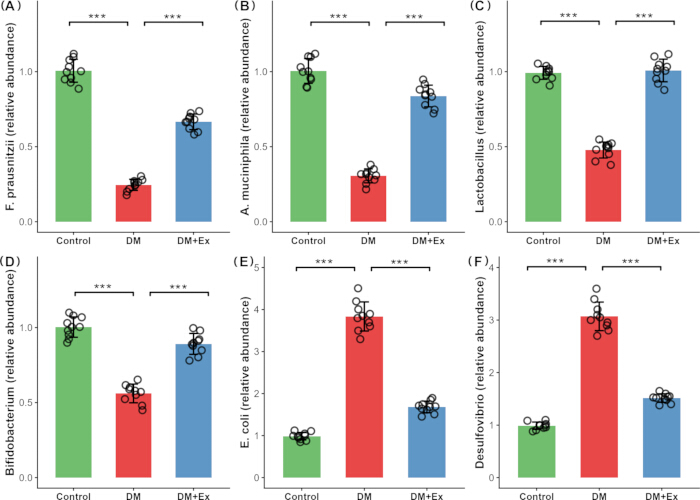
Rycina 4: Wpływ ćwiczeń na bieżni na względną liczebność wybranych taksonów mikrobioty jelitowej u myszy z cukrzycą. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Względną liczebność określono metodą qPCR, wykorzystując specyficzne dla taksonów sekwencje docelowe 16S rRNA w stosunku do całkowitego bakteryjnego 16S rRNA i normalizując wyniki względem grupy kontrolnej. Dane przedstawiono jako średnia ± SD (n = 10 na grupę). *P < 0.05, **P < 0.01, ***P < 0.001. Skrót: SD = odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
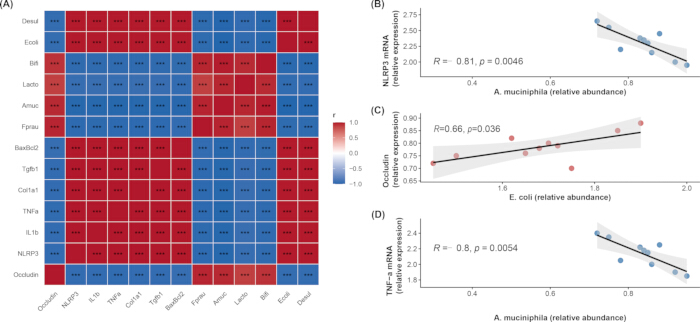
Rycina 5: Analiza korelacji między wybranymi taksonami mikrobioty jelitowej a parametrami ekspresji genów w sercu i okrężnicy. (A) Mapa ciepła przedstawiająca współczynniki korelacji Spearmana między wybranymi taksonami bakteryjnymi a mRNA Occludin w okrężnicy, mRNA Nlrp3, Il1b i Tnfa w sercu, mRNA Col1a1 i Tgfb1 oraz stosunkiem mRNA Bax/Bcl2. Korelacje obliczono na podstawie danych z trzech grup (n = 30) jako cząstkowe korelacje Spearmana z kontrolą grupy eksperymentalnej. Skala kolorystyczna obejmuje zakres od niebieskiego dla korelacji ujemnych do czerwonego dla korelacji dodatnich. Gwiazdki na mapie ciepła oznaczają istotność po korekcie FDR (*P < 0.05, **P < 0.01, ***P < 0.001). (B) Korelacja między względną licznością A. muciniphila a ekspresją mRNA Nlrp3 w sercu w grupie DM+Ex. (C) Korelacja między względną licznością E. coli a ekspresją mRNA Occludin w okrężnicy w grupie DM+Ex. (D) Korelacja między względną licznością A. muciniphila a ekspresją mRNA Tnfa w sercu w grupie DM+Ex. Każdy punkt reprezentuje pojedynczą mysz. Linie regresji liniowej i 95% przedziały ufności zostały przedstawione w celu wizualizacji. Skróty: DM = model cukrzycy; Ex = ćwiczenia; FDR = stopień fałszywych odkryć. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Gen/mikrob | Starter forward | Starter reverse |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Całkowita liczba bakterii (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabela 1: Sekwencje starterów użyte do ilościowej PCR w czasie rzeczywistym.
Dyskusja
W niniejszym badaniu wykorzystano model myszy z cukrzycą indukowaną dietą wysokotłuszczową w połączeniu z niską dawką STZ, aby ocenić metaboliczne, jelitowe, sercowe i mikrobiologiczne zmiany związane z wysiłkiem fizycznym. Osiem tygodni ćwiczeń na bieżni wiązało się z poprawą parametrów metabolicznych, wyższą ekspresją mRNA Occludin w okrężnicy, niższą ekspresją genów związanych z inflamasomem Nlrp3 w sercu oraz niższą ekspresją genów związanych z zapaleniem mięśnia sercowego, włóknieniem i apoptozą. Wysiłek fizyczny wiązał się również ze zmianami w względnej liczności wybranych taksonów mikrobioty jelitowej. Wspólnie wyniki te sugerują, że związane z wysiłkiem fizycznym zmiany transkrypcyjne w sercu mogą być powiązane ze zmianami w ekspresji genów związanych z barierą jelitową oraz wybranych taksonów mikrobioty jelitowej, choć nie ustalono związku przyczynowo-skutkowego.
Zgodnie z oczekiwaniami dla modelu cukrzycy, u myszy rozwinęły się wyraźne zaburzenia metaboliczne, w tym hiperglikemia, hiperinsulinemia, insulinooporność oraz dyslipidemia, co jest zgodne z uznanym paradygmatem patologicznym16,17. 8-tygodniowy program ćwiczeń wiązał się z redukcją poziomu glukozy na czczo o około 34% oraz wskaźnika HOMA-IR o 57%, co wskazuje na częściową poprawę insulinooporności. Na poziomie mięśnia sercowego ćwiczenia wiązały się z 40%–60% redukcją ekspresji markerów mRNA prozapalnych (Tnfa, Il1b), profibrotycznych (Tgfb1, Col1a1) oraz związanych z apoptozą (Bax/Bcl2), co jest spójne z wcześniejszymi badaniami łączącymi ćwiczenia aerobowe z aktywacją AMPK i hamowaniem NF-κB18,19. Jednak żaden z tych parametrów nie powrócił do poziomów grupy kontrolnej, co wskazuje, że 8-tygodniowa interwencja była niewystarczająca do normalizacji utrwalonego fenotypu transkrypcyjnego związanego z cukrzycą, co może wynikać z trwałych efektów pamięci glikemicznej20.
Ekspresja mRNA Occludin w jelicie grubym była o około 62% niższa u myszy z cukrzycą, co sugeruje obniżoną ekspresję genów związanych z barierą jelitową. Jednocześnie ekspresja mRNA Nlrp3, Il1b i Tnfa w sercu wzrosła odpowiednio 5,6-krotnie, 6,5-krotnie i 5,1-krotnie. Inflamasom NLRP3 jest ważnym sensorem wrodzonego układu odpornościowego i jest zaangażowany w patologię serca w przebiegu cukrzycy. Hiperglikemia może zwiększać ekspresję genu Nlrp3 w mięśniu sercowym poprzez szlaki reaktywnych form tlenu (ROS) i białka oddziałującego z tioredoksyną (TXNIP), co wywołuje późniejsze efekty w obrębie sygnalizacji zapalnej związanej z IL-1β i IL-1821,22. Zwiększona systemowa translokacja lipopolisacharydu (LPS) wtórna do zaburzenia bariery jelitowej była również opisywana jako bodziec upstream dla primingu NLRP323. LPS może zwiększać ekspresję Nlrp3 i pro-Il1b poprzez oś sygnalizacyjną TLR4/MyD88/NF-κB, dostarczając pierwszego sygnału niezbędnego do primingu inflamasomu24. W obecnym modelu cukrzycy zaobserwowano zwiększoną względną liczebność E. coli, wraz ze zmniejszoną ekspresją mRNA Occludin w jelicie grubym i zwiększoną ekspresją genów związanych z inflamasomem w sercu. Te równoległe zmiany są zgodne z możliwą ścieżką zapalną związaną z jelitami, jednak nie wykazują zwiększonej translokacji LPS ani przyczynowego mechanizmu oś jelito-serce.
Interwencja w postaci ćwiczeń była powiązana ze wzrostem ekspresji mRNA Occludin w okrężnicy do około 79% wartości w grupie kontrolnej, podczas gdy ekspresja mRNA Nlrp3, Il1b i Tnfa w sercu spadła odpowiednio do około 2,3-, 2,7- i 2,1-krotności wartości w grupie kontrolnej. Wyniki te wskazują na związek między wyższą ekspresją genów związanych z barierą jelitową a niższą ekspresją genów zapalnych w sercu po ćwiczeniach. Wcześniejsze badania sugerowały, że ćwiczenia mogą wspierać funkcję bariery jelitowej poprzez zwiększoną produkcję śluzu, regulację białek połączeń ścisłych oraz poprawę perfuzji jelitowej25,26,27,28. Jednakże, obecne dane ograniczały się do pomiarów mRNA, a zatem nie potwierdziły tych mechanizmów funkcjonalnych.
Celowana analiza mikrobioty jelitowej wykazała, że ćwiczenia fizyczne wiązały się z częściowym odwróceniem zmian związanych z cukrzycą w względnej liczności wybranych taksonów, w szczególności ze wzrostem liczności A. muciniphila i spadkiem liczności E. coli. Te wzajemne zmiany są zgodne z wcześniej opisanymi powiązaniami między tymi taksonami a utrzymaniem bariery jelitowej oraz procesami związanymi z endotoksynami29,30,31. Jednakże, ponieważ ilościowo określono tylko wybrane taksony, wyniki należy interpretować jako zmiany związane z ćwiczeniami we względnej liczności specyficznych bakterii, a nie jako kompleksowe przebudowanie mikrobioty jelitowej.
Analiza korelacji pozwoliła dodatkowo zidentyfikować powiązania między wybranymi taksonami drobnoustrojów a markerami transkrypcyjnymi. W grupie poddanej interwencji w postaci ćwiczeń fizycznych obfitość A. muciniphila była ujemnie skorelowana z ekspresją mRNA Nlrp3 (R = −0.81, P = 0.0046) oraz Tnfa (R = −0.80, P = 0.0054) w sercu. W przeciwieństwie do tego, obfitość E. coli była dodatnio skorelowana z ekspresją mRNA Occludin w jelicie grubym (R = 0.66, P = 0.036; Rycina 5C). Dodatnie powiązanie między E. coli a mRNA Occludin było sprzeczne z początkową hipotezą i wskazuje, że relacja między wybranymi taksonami mikroflory jelitowej a ekspresją genów związanych z barierą jelitową nie została wyjaśniona przez prosty model liniowy. Korelacje te były spójne z powiązaniami między ćwiczeniami, wybranymi taksonami drobnoustrojów a markerami transkrypcyjnymi gospodarza, lecz nie ustanowiły związku przyczynowo-skutkowego. Wcześniejsze dowody wykazujące, że ubytek A. muciniphila może zwiększać przepuszczalność jelitową i endotoksemię metaboliczną32, wraz z dowodami wskazującymi na udział NLRP3 w patologii serca w cukrzycy33, stanowią biologiczny kontekst dla tych powiązań. Niemniej jednak, niniejsze badanie nie wykazało bezpośrednio, że zwiększona obfitość A. muciniphila poprawiła funkcję bariery śluzowej, zmniejszyła translokację LPS lub złagodziła zapalenie serca zależne od TLR4/NLRP3.
Badanie to miało kilka ograniczeń. Po pierwsze, do ilościowego oznaczenia sześciu reprezentatywnych taksonów bakteryjnych zastosowano ukierunkowaną reakcję qPCR 16S rRNA zamiast sekwencjonowania amplikonów 16S lub sekwencjonowania metagenomicznego. W konsekwencji nie osiągnięto kompleksowej oceny struktury i potencjału funkcjonalnego mikrobiomu jelitowego, a szersze przesunięcia w obrębie społeczności lub szlaki funkcjonalne nie mogły zostać ocenione. Wyniki opisano zatem jako zmiany w względnej liczebności wybranych taksonów, a nie jako przebudowę mikrobioty jelitowej. Po drugie, poziomy krążącego LPS, stężenia SCFA w osoczu oraz przepuszczalność jelitowa nie były mierzone bezpośrednio, co ograniczyło interpretację mechanistyczną. Po trzecie, badanie opierało się głównie na danych o ekspresji mRNA. Nie przeprowadzono walidacji na poziomie białka ani funkcjonalnej walidacji integralności bariery, aktywacji inflamasomu, włóknienia i apoptozy. W związku z tym wnioski ograniczono do zmian transkrypcyjnych i nie ustalono efektów na poziomie funkcjonalnym lub białkowym. Po czwarte, zbadano tylko jeden schemat intensywności i czasu trwania wysiłku fizycznego, co ogranicza wnioski dotyczące optymalnej recepty ćwiczeń w kontekście zmian transkrypcyjnych w sercu związanych z cukrzycą. Po piąte, badaniem objęto wyłącznie samce myszy, a wyniki mogą nie być uogólnialne na samice. Po szóste, brak zdrowej grupy kontrolnej ćwiczącej ograniczył możliwość odróżnienia odpowiedzi specyficznych dla cukrzycy od fizjologicznych efektów wysiłku fizycznego. Po siódme, nie wykonano echokardiografii ani histopatologii serca; dlatego model opisano jako model myszy z cukrzycą, a nie potwierdzony model kardiomiopatii cukrzycowej, a wszystkie ustalenia dotyczące serca ograniczono do zmian transkrypcyjnych. Wreszcie, niektóre zaobserwowane korelacje mogły odzwierciedlać podział na grupy, a nie biologiczne zależności wewnątrz grup, choć w celu zminimalizowania tego problemu zastosowano analizę korelacji cząstkowej z kontrolą grupy.
Podsumowując, 8 tygodni ćwiczeń na bieżni wiązało się z poprawą metaboliczną oraz zmianami transkrypcyjnymi w sercu i okrężnicy u myszy z cukrzycą. Zmiany te wystąpiły równocześnie ze zmianami w względnej liczności wybranych taksonów mikrobioty jelitowej, w szczególności ze wzrostem liczebności A. muciniphila i spadkiem liczebności E. coli. Zaobserwowane korelacje uzasadniają dalsze badanie zależności między ćwiczeniami fizycznymi, wybranymi taksonami mikrobioty jelitowej, ekspresją genów związanych z barierą jelitową a transkrypcją związaną z inflamasomem serca. Przyszłe badania obejmujące szersze profilowanie mikrobiomu, kwantyfikację SCFA, testy przepuszczalności jelitowej oraz walidację na poziomie białek lub histologiczną będą niezbędne do przetestowania proponowanych mechanizmów i ustalenia związków przyczynowo-skutkowych. Dodatkowe badania interwencyjne z wykorzystaniem przeszczepu mikrobioty fekalnej, suplementacji A. muciniphila lub inhibicji NLRP3 byłyby konieczne, aby określić, czy zaobserwowane korelacje odzwierciedlają ścieżki przyczynowe.
Oświadczenia
Autorzy oświadczają, że nie istnieją żadne konkurencyjne interesy finansowe ani relacje osobiste, które mogłyby wpłynąć na prace przedstawione w niniejszym artykule. W przygotowaniu rękopisu ani rycin nie wykorzystano narzędzi AI.
WKŁAD AUTORÓW:
H.H. i G.Z. opracowali koncepcję i zaprojektowali badanie. H.H., G.Z. i Y.X. przeprowadzili eksperymenty na zwierzętach i pobrali próbki. H.H. i G.Z. przeprowadzili eksperymenty z zakresu biologii molekularnej i zgromadzili dane. H.H. i Y.X. wykonali analizę statystyczną. H.H. przygotował szkic manuskryptu. H.W. krytycznie zrewidował manuskrypt pod kątem istotnej treści intelektualnej. Wszyscy autorzy przeczytali i zatwierdzili ostateczną wersję manuskryptu
Podziękowania
Badanie to nie otrzymało żadnego konkretnego grantu z agencji finansujących w sektorze publicznym, komercyjnym ani non-profit.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Glukometr Accu-Chek i paski testowe | Roche | Accu-Chek Active | Stosowany do pomiaru glukozy we krwi na czczo |
| Automatyczny analizator biochemiczny | Hitachi | 7180 | Stosowany do pomiarów biochemicznych surowicy |
| Myszy C57BL/6J (samce, 8 tygodni) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Zwierzęta doświadczalne wykorzystane do stworzenia modelu myszy z cukrzycą |
| Bufor cytrynianowy (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | Stosowany do przygotowania roztworu streptozotocyny |
| Zestaw do testu ELISA dla insuliny mysiej | Wuhan HuaMei Biotech | CSB-E05070m | Stosowany do pomiaru poziomu insuliny w surowicy |
| Dieta wysokotłuszczowa (60% kcal z tłuszczów) | Research Diets | D12492 | Stosowana do indukcji i utrzymania modelu cukrzycy |
| Izofluran | RWD Life Science | R510-22-10 | Stosowany do znieczulenia wziewnego |
| Mikrowirówka | Eppendorf | 5424 R | Stosowana do wirowania próbek |
| Spektrofotometr NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Stosowany do oceny stężenia i czystości RNA |
| Paraformaldehyd (4%, w PBS) | Servicebio | G1101 | Stosowany do utrwalania próbek tkanek |
| Fosforanowy bufor solny (PBS) | Servicebio | G0002 | Stosowany do płukania i przemywania próbek tkanek |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Stosowany do ilościowej PCR w czasie rzeczywistym |
| PrimeScript RT Reagent Kit (do qPCR) | TaKaRa (Takara Bio) | RR037A | Stosowany do odwrotnej transkrypcji RNA do cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Stosowany do ekstrakcji mikrobiologicznego DNA z próbek kału |
| Oprogramowanie R | R Foundation | 4.2.0 | Stosowane do analizy statystycznej |
| System PCR w czasie rzeczywistym (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Stosowany do amplifikacji i detekcji w ilościowej PCR w czasie rzeczywistym |
| Streptozotocyna (STZ) | Sigma-Aldrich | S0130 | Stosowana wraz z dietą wysokotłuszczową do indukcji modelu myszy z cukrzycą |
| Zestaw do oznaczania cholesterolu całkowitego (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Stosowany do pomiaru poziomu cholesterolu całkowitego w surowicy |
| Bieżnia (motorowa, z regulacją nachylenia) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Stosowana do interwencji w postaci ćwiczeń na bieżni |
| Zestaw do oznaczania triglicerydów (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Stosowany do pomiaru poziomu triglicerydów w surowicy |
| Odczynnik TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Stosowany do ekstrakcji całkowitego RNA z próbek tkanek |
Bibliografia
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.