Os níveis da molécula inflamatória de sinalização celular óxido nítrico (NO) são comumente testados usando o reagente de Griess. Neste protocolo, criamos um ensaio de Griess modificado utilizando tecido cerebral vivo de Drosophila para detectar a secreção de NO em um método simples, quantificável e altamente repetível.
Artigo de método
Novo ensaio quantitativo de tecido total dos níveis de óxido nítrico na resposta neuroinflamatória de Drosophila
Neste artigo
Resumo
Resumo
A neuroinflamação é uma resposta imune inata complexa vital para a função saudável do sistema nervoso central (SNC). Em condições normais, uma intrincada rede de indutores, detectores e ativadores responde rapidamente a danos nos neurônios, infecções ou outras infrações imunológicas. Essa inflamação das células imunes está intimamente associada à patologia de distúrbios neurodegenerativos, como a doença de Parkinson (DP), a doença de Alzheimer e a ELA. Em estados de doença comprometidos, a inflamação crônica, destinada a minimizar os danos aos neurônios, pode levar a uma superexcitação das células imunológicas, resultando na exacerbação da progressão da doença. Por exemplo, a perda de neurônios dopaminérgicos no mesencéfalo, uma marca registrada da DP, é acelerada pela ativação excessiva da resposta inflamatória. Embora a causa da DP seja amplamente desconhecida, a exposição a toxinas ambientais tem sido implicada no aparecimento de casos esporádicos. O herbicida paraquat, por exemplo, demonstrou induzir patologia semelhante à parkinsonina em vários modelos animais, incluindo Drosophila melanogaster. Aqui, usamos a resposta imune inata conservada em Drosophila para desenvolver um ensaio capaz de detectar níveis variados de óxido nítrico, uma molécula de sinalização celular crítica para a ativação da cascata de resposta inflamatória e morte de neurônios direcionados. Usando danos neuronais induzidos por paraquat, avaliamos o impacto desses insultos imunológicos na estimulação neuroinflamatória por meio do uso de um novo ensaio quantitativo. Cérebros inteiros são totalmente extraídos de moscas expostas a neurotoxinas ou de genótipos que elevam a suscetibilidade à neurodegeneração e depois incubados em meios de cultura de células. Então, usando os princípios da reação do reagente de Griess, somos capazes de detectar pequenas alterações na secreção de óxido nítrico em meios de cultura de células, essencialmente criando um modelo primário de tecido vivo em um procedimento simples. A utilidade deste modelo é amplificada pela robusta complexidade genética e molecular de Drosophila melanogaster, e este ensaio pode ser modificado para ser aplicável a outros tecidos de Drosophila ou mesmo a outros pequenos modelos de inflamação de todo o organismo.
Introdução
A neuroinflamação é uma resposta imune intrincada que demonstrou estar intimamente associada à patologia de uma ampla gama de doenças, a maioria das quais são distúrbios neurodegenerativos. Em condições basais, essa rede multifacetada de células imunes peripatéticas mantém a saúde dos tecidos por meio de sua rápida resposta a infecções, placas ou lesões1,2. Uma resposta neuroinflamatória do sistema nervoso central dos mamíferos pode ser desencadeada devido a pequenos insultos, como estresse oxidativo celular associado ao envelhecimento normal, ou grandes agressões, como danos nos neurônios decorrentes da exposição aguda a uma toxina química. Quando essa indução ocorre, as células de vigilância fagocíticas conhecidas como microglia são ativadas e migram para o local do dano celular neuronal. Essas células imunes semelhantes a necrófagos, que são semelhantes às células de macrófagos que existem na periferia, iniciam uma sofisticada cascata de sinalização com o neurônio danificado, bem como com os astrócitos, apoiando as células gliais que atuam ao lado da microglia para a resposta microglial tipicamente robusta3-7. Uma vez ativada, a microglia inicia um processo de inflamação para estimular o sistema imunológico e promover o reparo tecidual1,8.
Em condições de insulto sustentado, como em doenças neurodegenerativas como a doença de Parkinson (DP), doença de Alzheimer e esclerose lateral amiotrófica, a inflamação crônica também causa danos significativos ao tecido saudável. Estudos recentes mostraram que essa resposta persistente e agressiva do sistema imunológico pode, de fato, estar levando a uma reação superexcitatória que exacerba o estado da doença em vez de melhorar a condição9-11.
Em Drosophila melanogaster, a resposta imune inata é geneticamente bem conservada. Embora não tenha uma verdadeira rede imune adaptativa, a Drosophila mantém um sofisticado sistema imunológico inato contendo uma classe de fagócitos conhecidos como hemócitos. Essas células imunes foram previamente identificadas como células semelhantes a macrófagos que migram para o local da lesão12,13 e sofrem fagocitose durante choque séptico14, introdução de um parasita15 ou infecção viral16.
É importante ressaltar que, como os macrófagos de mamíferos, os hemócitos fagocíticos expressam óxido nítrico sintase (NOS) e produzem óxido nítrico (NO), um componente crítico de sinalização da imunidade da Drosophila 15,16. Todos esses estudos, no entanto, só foram capazes de demonstrar respostas de hemócitos durante o desenvolvimento embrionário e em larvas.
Nosso laboratório observou uma neuroinflamação robusta mediada por hemócitos em cérebros adultos de Drosophila, um fenômeno até então desconhecido17. Essa resposta foi induzida por meio da exposição ao tóxico paraquat. Estudos epidemiológicos do National Institutes of Health identificaram o herbicida amplamente utilizado como um potencial fator de risco no aparecimento de DP em humanos18. Pesquisas que investigaram o tratamento com paraquat em modelos de mamíferos já haviam validado suas propriedades neurotóxicas e mostrado que o herbicida resultava em sintomas parkinsonianos, como anormalidades motoras e perda seletiva de neurônios19-21. Em Drosophila, o tratamento com paraquat leva a uma ampla gama de fenótipos comportamentais parkinsonianos, bem como à morte de neurônios dopaminérgicos consistentes com a patologia da DP22. Embora os mecanismos e fatores genéticos associados a essa resposta neuroinflamatória ainda não tenham sido totalmente elucidados em Drosophila, observamos uma indução conservada de NOS durante a neurodegeneração.
Usando este método, detectamos adicionalmente uma resposta neuroinflamatória semelhante, embora menos dramática, usando genótipos mutantes com sensibilidade neurotóxica conhecida. Codificada pelo gene Punch, a GTP ciclohidrolase é a primeira proteína limitante da taxa na biossíntese de BH4, que então atua como um cofator necessário para a NOS23,24. A mutação de perda de função PuZ22 causa um declínio na resposta inflamatória e aumento da suscetibilidade ao paraquat25. Com este protocolo, fomos capazes de quantificar modificações relativamente sutis dos níveis de óxido nítrico induzidas por esta variação genética.
Para detectar NO em nossas amostras, usamos o reagente Griess, um método colorimétrico amplamente aceito para medir os níveis de NO. Este reagente mede indiretamente a abundância relativa de NO, detectando a presença de nitritos, um dos dois produtos finais da produção de óxido nítrico. Os protocolos de detecção de nitrito existentes usando o reagente de Griess foram aplicados principalmente para análises in vitro ou em cultura de células, onde o NO se difunde no meio de cultura. Inicialmente, desenvolvemos um método baseado em reagente de Griess para detectar NOS em homogeneizados brutos de cabeça de Drosophila 25. No entanto, descobrimos que o método é um pouco variável com condições alteradas, presumivelmente devido à instabilidade, alta reatividade e baixa concentração relativa de NO em tecidos inteiros da cabeça. Portanto, buscamos desenvolver um método baseado em protocolos de cultura de células que permitisse maior sensibilidade e confiabilidade na quantificação da atividade da NOS. Aqui descrevemos um método conceitualmente semelhante a um empregado anteriormente para detectar NOS em túbulos malpighianos larvais de Drosophila 26. Neste procedimento, utilizamos cérebros inteiros que foram dissecados imediatamente após um tratamento com toxinas para induzir a resposta inflamatória. Em seguida, incubamos essas amostras em meio de cultura de insetos para preservar a integridade do tecido e aumentar a sensibilidade e a confiabilidade de um ensaio baseado em reagente de Griess.
Prevemos que, com o uso das sofisticadas ferramentas genéticas disponíveis, este modelo tem a capacidade de servir como uma utilidade promissora para investigar a rede dinâmica de inflamação/neurodegeneração. Com a capacidade de quantificar com precisão a ativação e a intensidade relativa da resposta neuroinflamatória, este novo ensaio cria uma cultura de tecido primário capaz de detectar marcadores neuroinflamatórios secretados. Este método oferece aos modelos de inflamação de pequenos organismos uma técnica barata e altamente sensível para analisar rapidamente amostras de organismos inteiros ou de tecido vivo onde antes faltavam.
Protocolo
1. Exposição ao Paraquat
- Manter as culturas das moscas de ensaio em meio de cultura padrão de Drosophila a 25 °C em densidades de cultura equivalentes constituídas por cerca de 35 fêmeas e 15 machos.
- Para preparar as câmaras de alimentação, coloque uma pequena quantidade de algodão absorvente no fundo de um frasco vazio com papel de filtro diretamente acima do algodão.
- Anestesie moscas machos adultas 3-5 dias após a eclosão usando coma frio ou CO2. Para os experimentos descritos aqui, use machos do genótipo y w1118.
- Para a separação do coma frio, bata nos frascos de alimentação contendo moscas e, em seguida, remova rapidamente a rolha e transfira as moscas diretamente para um frasco limpo e vazio, certificando-se de rotular corretamente.
- Assim que as moscas forem transferidas com sucesso para frascos de comida vazios, bata nos frascos e coloque imediatamente no balde de gelo por 5 min ou até que as moscas sejam eliminadas.
nota: Não mergulhe completamente o frasco no gelo. Isso pode fazer com que água ou umidade entrem no frasco e afoguem as moscas. Como outra precaução, use gelo fresco em vez de gelo derretido em baldes de gelo.
nota: Preste muita atenção ao número de moscas necessárias para cada ensaio e, quando possível, adicione moscas adicionais a cada grupo como precaução em caso de erro humano, por exemplo, moscas que escapam durante a alimentação ou transferência. O ensaio de detecção de óxido nítrico, por exemplo, requer 20 cérebros de moscas por conjunto de amostras, portanto, considere o nível de habilidade e eficiência da dissecção ao se alimentar (ou seja, os novatos devem configurar mais de 20 moscas em caso de erros de transferência ou dissecação).
- Assim que as moscas estiverem anestesiadas, transfira cada grupo para o frasco de alimentação correspondente, conforme preparado acima.
- Depois que as moscas estiverem totalmente acordadas em frascos de alimentação, deixe-as morrer de fome por 1,5 hora e, enquanto isso, prepare as soluções descritas abaixo:
- Prepare uma solução-mãe de sacarose a 5% (solução de controlo) adicionando 5 g de sacarose a 100 ml de água bidestilada Agitar até dissolver completamente e conservar a 4 °C.
nota: Use solução estoque de sacarose a 5% como solvente para todas as soluções de alimentação subsequentes. - Preparar estoques de solução estoque de paraquat a 10 mM usando sacarose a 5% como diluente e armazenados a 4 °C. Preparar todas as outras concentrações usando diluições seriadas conforme necessário.
CUIDADO: O PARAQUAT É EXTREMAMENTE TÓXICO. CONSULTE A MSDS PARA OBTER DIRETRIZES DE SEGURANÇA E MANUSEIO/DESCARTE ADEQUADO. - Preparar soluções-mãe a 10 mM de cloridrato de éster metílico de N-nitro-L-arginina (L-NAME), cloridrato de éster metílico de N-nitro-D-arginina (D-NAME) utilizando sacarose a 5% como diluente e conservar a 4 °C. Para coincubações de L-NAME ou D-NAME com paraquat, administrar cada composto na proporção de 1:1 com a concentração de paraquat. Preparar todas as outras concentrações utilizando diluições em série, conforme necessário.
nota: Filtrar todas as soluções imediatamente após a preparação. Os estoques de paraquat, D-NAME e L-NAME devem ser usados dentro de uma semana após a preparação para garantir a consistência experimental. - Pipetar 150 μl por dia (ou menos, dependendo da duração da alimentação) da solução de alimentação para o papel de filtro, tomando cuidado para não afogar as moscas nem deixá-las escapar.
- Prepare uma solução-mãe de sacarose a 5% (solução de controlo) adicionando 5 g de sacarose a 100 ml de água bidestilada Agitar até dissolver completamente e conservar a 4 °C.
2. Ensaio de Sobrevivência/Mortalidade
- Configure as câmaras de alimentação conforme descrito anteriormente.
nota: Use pelo menos 3 camadas de papel de filtro por frasco para evitar a dessecação. - Coloque 10 moscas machos 3-5 dias após a eclosão em cada frasco e alimente conforme as instruções acima, tomando cuidado para não deixar o papel de filtro secar durante a noite.
nota: Mantenha os frascos em temperatura ambiente, longe da luz solar direta para evitar a evaporação acelerada das soluções. - A partir do dia seguinte (designado "Dia 1"), número recorde de moscas mortas por frasco duas vezes ao dia durante 10 dias consecutivos.
nota: Regule a pontuação e a alimentação em horários específicos todos os dias para diminuir a variação e fornecer maior consistência. - Calcule a sobrevida média usando pelo menos três replicações independentes de todos os grupos.
3. Dissecando cérebros de moscas adultas e incubação
- Antes das dissecações, pipete 50 μl de meio de inseto de Grace no número apropriado de poços (um poço para cada conjunto de amostras + um para o "branco"/controle) em uma placa de microtitulação de 96 poços e rotule adequadamente. Cubra com a tampa do prato até o uso.
nota: Alternativamente, tubos de centrífuga estéreis também podem ser usados, se preferir. - Anestesiar moscas de um conjunto de amostras usando coma frio, conforme descrito nas etapas 1.3.1-1.3.2.
- Assim que as moscas estiverem totalmente anestesiadas, coloque várias moscas em uma lâmina de microscópio
nota: Comece com um pequeno subconjunto de moscas se não tiver experiência com dissecações. - Decapite as cabeças das moscas sob um microscópio de dissecação usando uma pinça e uma lâmina cirúrgica ou duas pinças, descartando os corpos das moscas quando terminar.
- Use uma pequena quantidade de PBS como tampão de dissecação; a dessecação deve ser evitada.
- Extraia o cérebro inteiro seguindo o método de Williamson & Hiesinger (2010)27, removendo cuidadosamente as partículas da cutícula e qualquer tecido não cerebral (por exemplo, tecido pigmentar dos olhos) (ver Figura 1).
- Transfira o cérebro dissecado para o poço devidamente marcado e repita até que haja um mínimo de 20 cérebros por poço.
- Mantenha as placas no gelo durante o período de dissecção e não exceda mais de 20-30 min de tempo total entre o início da dissecação e o início do ensaio.
nota: Mais de 20 cérebros podem ser usados, desde que cada grupo tenha o mesmo número em cada poço. O número mínimo de cérebros para obter uma leitura precisa pode variar (consulte a seção Discussão para obter mais detalhes). - Quando o conjunto de trabalho estiver concluído, deixe os cérebros incubarem por 6 horas a 25 ° C com leve agitação.
- Siga as etapas 1.2-1.6 para todos os grupos restantes.
nota: Registre e ajuste a hora de término da incubação dependendo dos diferenciais entre quando cada conjunto de amostras foi concluído.
4. Preparação durante o período de incubação
- Prepare o reagente de Griess modificado conforme indicado pelo fabricante (consulte a tabela) e mantenha no escuro até o uso. A quantidade de reagente necessária depende da quantidade de amostras. Por exemplo, o reagente de Griess será adicionado em uma proporção de 1:1 ao Meio de Grace (etapa 5.5). Portanto, 50 μl por conjunto de amostras + 50 μl para o controle em branco devem ser preparados.
- Construa uma curva padrão de nitrito usando nitrito de sódio em uma diluição seriada variando de 0,78125-100 mM de nitrito para um total de 8 concentrações.
nota: Isso deve ser feito para cada experimento para garantir consistência e precisão na concentração da amostra e na atividade do reagente de Griess. - Além disso, prepare e rotule tubos de centrífuga estéreis de 0,5 ml, dois tubos para cada grupo de tratamento e dois para o controle.
5. Detecção de níveis de nitrito
- Terminado o período de incubação, transferir o Meio de Grace (pelo menos 45 μl) dos poços de microtitulação para o primeiro conjunto de tubos de centrífuga correspondente a cada grupo.
nota: Conforme observado anteriormente, certifique-se de levar em conta as diferenças nos períodos de incubação devido ao tempo gasto entre cada conjunto de dissecações. - Etapa opcional: Adicione nitrato redutase e NADPH nesta etapa para converter nitratos em nitritos. (Esta etapa não foi realizada nos resultados apresentados)
nota: Pode ser efectuado um ensaio de nitrato/nitrito, se desejado, com uma alíquota de sobrenadante de amostra, tal como descrito nos kits de ensaio. - Centrifugue suavemente (cerca de 8.175 x g) por 2 min para pulverizar quaisquer partículas cerebrais ou teciduais que possam ter sido aspiradas dos poços.
- Pipetar 30 μl do sobrenadante do primeiro conjunto de tubos de centrifugação para o segundo conjunto de tubos correspondentes, certificando-se de não perturbar o pellet depois de centrifugar as amostras.
- Adicione o reagente de Griess na proporção de 1:1, incube por 5-10 min e analise usando o espectrofotômetro NanoDrop a 548 nm de absorbância dentro de 30 min.
Nota: As amostras também podem ser analisadas usando um leitor de microplacas em um comprimento de onda de absorbância de 540 nm com comprimento de onda de referência de 620 nm. - Repita cada leitura no mínimo três vezes e calcule a média das leituras.
nota: Certifique-se de "apagar" a máquina entre cada 6 a 10 leituras e, antes da conclusão, execute o controle em branco (Grace's Medium mais reagente Griess sem cérebro) como uma amostra para usar como desvio padrão. - Use a curva padrão de nitrito gerada na etapa 4.2 para calcular os níveis relativos de nitrito de cada amostra.
- Para calcular concentrações desconhecidas, primeiro plote os valores das concentrações conhecidas da curva padrão usando absorbância (ou seja, densidade óptica) no eixo y e concentração no eixo x.
- Depois que todos os valores da curva padrão forem representados graficamente, encontre a inclinação da linha de melhor ajuste e resolva a equação para x.
nota: Se as diluições seriadas forem feitas corretamente, a linha de melhor ajuste deve ser linear ou muito próxima a ela. Se este não for o caso, reconstrua a curva padrão. Se os problemas persistirem, verifique todas as soluções, meios e reagentes quanto à validade e certifique-se de que o equipamento esteja funcionando corretamente e dentro de sua faixa de detecção. - Em seguida, basta substituir os valores de absorbância por y e resolver por x, que representa a concentração.
Para obter informações adicionais sobre o uso do equipamento NanoDrop, consulte Desjardins et al. 2009 e Desjardins & Conklin, 201028,29.
6. Western Blot
- Alimente 30 moscas por condição, conforme descrito acima, e decapite as cabeças, de preferência usando nitrogênio líquido e vórtice.
- Homogeneizar cabeças inteiras em gelo em tampão RIPA de 60 μl com 2 mM de ditiotreitol (DTT) e 1x coquetel inibidor de protease adicionado imediatamente antes do uso.
- Reduza as amostras por 5 min a 8.175 x g em 4 °C.
- Transfira o sobrenadante para novos tubos de centrífuga.
- Misture as amostras suavemente e pipete 17 μl de sobrenadante em tubos de centrífuga contendo 6,5 μl de tampão de amostra LDS 4x e 2,5 μl 500 mM DTT.
nota: Amostra restante congelada rapidamente em azoto líquido e conservada a -20 °C até à utilização. - Misture bem as amostras e aqueça a 70 °C por 10 min, misturando uma vez no meio da incubação.
- Durante o aquecimento, monte o aparelho de eletroforese em gel de poliacrilamida (PAGE) usando minigel NuPage Bis-Tris pré-moldado a 4-12%, tampão de corrida MOPS SDS com 500 μl de antioxidante na câmara interna.
- Centrifugação rápida das amostras e deixe esfriar.
- Carregue 25 μl em cada pista.
- Execute a eletroforese em gel a 200 V no gelo ou a 4 °C durante 45 min ou até que o gel esteja completo.
- Quando a eletroforese estiver concluída, transfira proteínas separadas do gel para as membranas de nitrocelulose usando iBlot Transfer Stacks e detecte o sinal usando o Western Blot Detection Kit.
nota: Os anticorpos utilizados são os seguintes: anticorpos primários de camundongo α-nNOS (1:250), camundongo α-sintaxe (1:200); anticorpos secundários (1:250) fornecidos no Kit de Detecção de Western Blot (camundongo). - Detecte o sinal quimioluminescente usando o sistema de imagem western blot ou filme de raios-X.
Nota: Qualquer método padrão de detecção e quantificação de immunoblot pode ser usado para análise de blot.
Resultados
Demonstrou-se que o paraquat induz degeneração neurológica consistente com patologia semelhante à de Parkinson em diversos modelos animais, como camundongos19, ratos20 e moscas-das-frutas22. Anteriormente, relatamos que o antibiótico anti-inflamatório minociclina, quando administrado em conjunto com o paraquat, resulta em sobrevida prolongada, redução da produção de espécies reativas de oxigênio e prevenção da morte de neurônios dopaminérgicos25. Assim, como a minociclina atua suprimindo a inflamação, iniciamos a investigação da NOS, uma proteína fundamental na ativação da resposta inflamatória, e de seu papel na modulação da toxicidade do paraquat.
Foi realizada uma curva de toxicidade da paraquat para estabelecer uma dose letal eficaz e uma faixa de tratamento tóxico, utilizando concentrações de paraquat entre 1,25 e 10 mM (Figura 2A). Também avaliamos os efeitos de concentrações de paraquat de 20 mM e 40 mM, mas verificamos que a toxicidade foi excessivamente aguda nessas concentrações mais altas, impossibilitando a avaliação precisa das respostas celulares a esse agente de estresse oxidativo; portanto, os resultados para essas concentrações não foram incluídos neste relatório. Utilizando L-NAME, um inibidor competitivo da NOS, e D-NAME, o isômero inativo do NAME, realizamos tratamento conjunto de moscas adultas machos com paraquat e um dos isômeros do NAME. O tratamento conjunto das moscas com paraquat e L-NAME resultou em uma significativa recuperação do encurtamento da longevidade causado pela ingestão de paraquat, enquanto as moscas tratadas conjuntamente com paraquat e D-NAME não apresentaram melhora na sobrevivência (Figura 2B), o que apoia a hipótese de que a supressão da inflamação por meio da inibição da NOS aumenta a sobrevivência de moscas tratadas com paraquat.
Como validação adicional de uma resposta ao paraquat mediada por NOS, detectamos alterações nos níveis da proteína NOS imediatamente após a exposição ao paraquat. Os níveis da proteína NOS aumentaram de maneira dependente da concentração de paraquat (Figura 3A). Ao tratar moscas com paraquat 10 mM durante períodos de exposição variando de 6 a 30 horas, observamos um aumento inicial, seguido por uma diminuição com o prolongamento do tempo de exposição (Figura 3B), padrão consistente com os níveis de nitrito observados em nossa versão do ensaio de Griess (Figura 5B). Esses resultados são compatíveis com nossos relatos de que o tratamento com paraquat induz a NOS e que a inibição da NOS ou o tratamento com L-NAME ou minociclina proporcionam proteção parcial17,25.
Figura 4A demonstra uma relação linear entre o aumento da concentração de paraquat e a magnitude da resposta inflamatória, definida pela secreção e detecção de NO. Em níveis basais, os mutantes heterozigotos Punch secretaram níveis ligeiramente mais baixos de NO, uma variação demasiado sutil para ser determinada por métodos anteriores de detecção. Quando alimentados com paraquat, observou-se um aumento acentuado nos níveis de NO nos mutantes Punch, entretanto, significativamente menor do que nas moscas selvagens tratadas (Figura 4B). Os valores relativos das moscas selvagens e Punch podem ser quantificados com precisão e reprodutibilidade, embora a variação nos níveis não tratados tenha sido extraordinariamente sutil.
Ao trabalhar com toxinas ou produtos químicos, é fundamental estabelecer tanto uma curva de tempo de exposição quanto uma curva de toxicidade baseada na concentração, já que essas condições podem alterar drasticamente a sensibilidade do ensaio. Por exemplo, o tratamento com 5 mM de paraquat resulta na detecção máxima de NO após 24 horas de exposição (Figura 5A), enquanto a exposição a 10 mM de paraquat resulta em indução mais rápida (níveis máximos em 12 horas), mas também em decaimento mais rápido da atividade durante exposições prolongadas (Figura 5B). Embora uma concentração mais alta com indução rápida possa parecer preferível, uma resposta maximizada acelera a morte de neurônios e possivelmente de hemócitos ao ponto de tornar a reprodutibilidade difícil.
As moléculas de NO são instáveis e altamente reativas. Um ensaio bem-sucedido deve, portanto, incluir condições de incubação que proporcionem um equilíbrio ideal entre a indução contínua de NOS e o rápido turnover de NO. A fim de definir condições ideais de incubação, avaliamos o efeito do tempo de incubação dos cérebros dissecados no meio de cultura antes da adição do reagente de Griess. Descobrimos que uma incubação de 6 horas à temperatura ambiente produziu níveis máximos de nitrito na reação subsequente de Griess (Figura 5C). Espera-se que variações no período de incubação possam ser necessárias para otimizar a detecção em diversos modelos de inflamação. O estabelecimento cuidadoso de todos os parâmetros ideais para o organismo, genótipo e tecido específicos em análise será essencial para obter resultados confiáveis e precisos, uma vez que o processo é altamente dinâmico. Em particular, espera-se que variantes genéticas e modelos de expressão de transgenes exijam otimização substancial, especialmente em relação ao estágio de desenvolvimento ou à idade dos adultos.
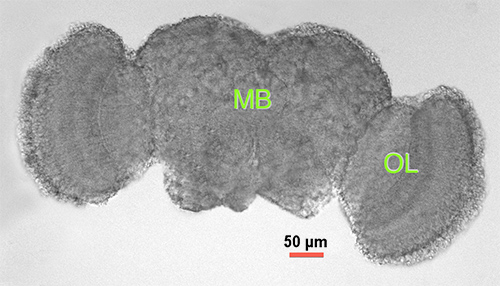
Figura 1. Cérebro adulto de Drosophila. Microscopia de luz de cérebro de macho adulto dissecado, 2-3 dias após a eclusão. MB = mesencéfalo (córtex central), OL = lobo óptico.
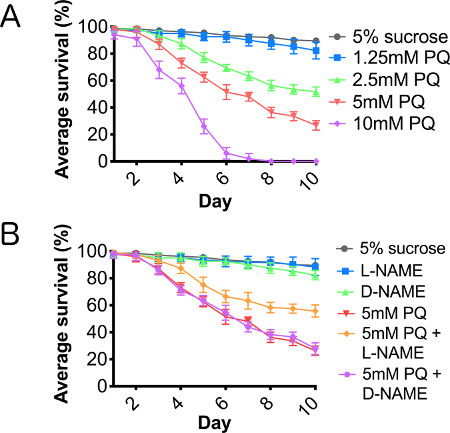
Figura 2. O paraquat resulta em uma redução dependente da dose na longevidade, mediada pela óxido nítrico sintase. Moscas machos selvagens alimentadas com (A) sacarose a 5% (controle) e diluições seriadas de paraquat variando de 1,25 a 10 mM em sacarose a 5%, e (B) paraquat coadministrado com L-NAME ou D-NAME por 10 dias consecutivos. N = 3 grupos de 10. Barras de erro = erro padrão da média.
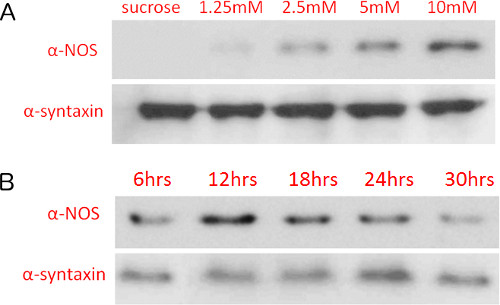
Figura 3. Os níveis de proteína da óxido nítrico sintase aumentam com a concentração de paraquat e com a duração da exposição. Detecção por imunoblot dos níveis de óxido nítrico sintase em moscas tratadas com diferentes concentrações de paraquat (A) (exposição de 12 horas) e com paraquat 10 mM por diferentes períodos de exposição (B). Os níveis proteicos foram detectados em membranas de nitrocelulose utilizando quimioluminescência e exposição em filme radiográfico.
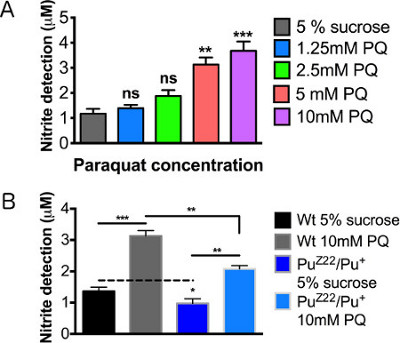
Figura 4. Níveis de detecção de óxido nítrico após exposição ao paraquat. Moscas machos do tipo selvagem (WT) com 2-3 dias pós-emergência foram analisadas após 12 horas de alimentação. (A) Curva de concentração de paraquat. (B) Machos mutantes heterozigotos para Punch alimentados com controle de sacarose e paraquat 10 mM. N = 20 cérebros/grupo. Os resultados representam três replicações por grupo. Barras de erro = erro padrão da média (SEM). As análises estatísticas foram realizadas utilizando ANOVA unidirecional com teste pós-hoc de comparação múltipla de Dunnett (*, p < 0,05; **, p < 0,01; ***, p < 0,001).

Figura 5. Otimização da detecção da produção de óxido nítrico mediante alteração da duração da exposição ao paraquat e do tempo de incubação do tecido. Níveis relativos de óxido nítrico em cérebros de machos com 2-3 dias pós-emergência após tratamento de 12 h com (A) paraquat 5 mM e (B) paraquat 10 mM. (C) Curva de NO utilizando diferentes períodos de incubação do tecido após alimentação com paraquat 10 mM por 12 h. Os valores de significância foram calculados em relação aos seguintes controles: (A, B) controles de sacarose a 5% para cada tempo de exposição (não mostrados no gráfico), (C) controles de sacarose a 5% para cada tempo de incubação (não mostrados no gráfico). N = 20 cérebros/grupo. Os resultados representam 3 replicações por grupo. Barras de erro = erro padrão da média (SEM). As análises estatísticas foram realizadas utilizando ANOVA unidirecional com teste pós-hoc de comparação múltipla de Dunnett (*, p<0,05; **, p<0,01; ***, p<0,001).
Discussão
Este método, embora de abordagem simples, fornece um método econômico, altamente repetível e extremamente sensível para quantificar os níveis de neuroinflamação mediada por NOS. Conforme mostrado na seção Resultados, existem muitas variáveis que podem ser ajustadas para melhorar ou otimizar a resposta em diferentes modelos ou organismos de indução. Como este é um sistema altamente sensível, no entanto, essas variáveis também podem resultar em resultados altamente variáveis se todos os aspectos do protocolo não forem tratados com cuidado. Ao testar pela primeira vez usando qualquer modelo, recomendamos configurar os parâmetros por variáveis de teste, que incluem concentração química (Figura 4A), duração da exposição (Figuras 5A e 5B) e duração da incubação (Figura 5C). Esteja atento a outras variáveis, como o número de amostras de cérebro/tecido necessárias para atingir o limiar de detecção e a consistência, mesmo ao aplicar esse método a modelos semelhantes de Drosophila . Além disso, em modelos genéticos de inflamação dependentes da idade, será necessária uma otimização prolongada do ponto de tempo.
Como mencionado acima, devido à natureza sensível do ensaio, inconsistências no protocolo podem produzir resultados não confiáveis. Com isso em mente, todos os equipamentos e materiais foram esterilizados antes do uso. Devido ao curto tempo de incubação, nenhum antibiótico foi adicionado aos meios de cultura nesses experimentos. No entanto, se o protocolo for adaptado para tempos de incubação mais longos ou se for observado crescimento bacteriano em culturas ou meios, antibióticos típicos de cultura, como penicilina-estreptomicina, devem ser adicionados e o equipamento deve ser reesterilizado. Como em qualquer experimento de tratamento químico, deve-se ter cuidado para garantir que todos os grupos sejam criados em condições bem controladas, com sexo e idade pareados, e todos os grupos recebam exatamente as mesmas condições de alimentação. Alguns exemplos de condições de alimentação a serem consideradas incluem variações nas concentrações, disponibilidade e acesso à fonte de alimentação, duração da alimentação e hora do dia em que a alimentação é administrada. Registros detalhados para todas as condições experimentais e muita atenção aos padrões naturais de alimentação do seu modelo ajudarão a minimizar a variabilidade. Se cepas mutantes ou transgênicas que afetam os circuitos neurais ou padrões comportamentais forem empregadas, um controle importante incluiria o monitoramento do comportamento alimentar.
Mais uma vez, embora protocolos semelhantes estejam disponíveis em cultura de células e lisados, uma grande vantagem desse método é que a integridade do tecido é mantida, permitindo que praticamente todas as relações celulares dentro do cérebro permaneçam intactas. Este sistema representa um estado relativamente natural e in vivo de sinalização neuroinflamatória e secreção celular. Estabelecida em Drosophila, essa técnica pode ser facilmente adaptada a outros pequenos organismos modelo e não se limita ao sistema nervoso central, como demonstrado por uma aplicação semelhante para sinalização de NO em um modelo de túbulo de Malpighi para função renal26. A vantagem mais significativa, de longe, deste protocolo é a capacidade de manipular e adaptar este ensaio para atender às necessidades e interesses do pesquisador ou sistema modelo.
Através do uso de abordagens químico-genéticas combinadas, este ensaio tem o potencial de aumentar significativamente a capacidade de pequenos sistemas modelo de investigar os mecanismos, componentes genéticos e moduladores químicos da inflamação.
Divulgações
Os autores declaram não haver interesses financeiros concorrentes.
Agradecimentos
Agradecemos ao Dr. Guy e ao Dr. Kim Caldwell pelo uso de seu espectrofotômetro NanoDrop durante o desenvolvimento deste ensaio e a J. Gavin Daigle por seus comentários e sugestões críticas. O desenvolvimento deste método foi financiado por uma doação do National Institutes of Health (NS-078728) para J.M.O.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Câmaras de Alimentação | |||
| Frasco vazio de Drosophila | Genesee Scientific | #32-116 | |
| Algodão | Qualquer produto padrão pode ser usado. | ||
| Papel de filtro | Fisher | #09-802-1B | |
| Paraquat exposure | |||
| Sacarose | Sigma-Aldrich | #S0389 | |
| Paraquat (hidrato de dicloreto de metilviologênio | Sigma-Aldrich | #856177 | Tóxico. Manuseie com cuidado e dentro das diretrizes da MSDS |
| L-NAME (N-Nitro-L-arginina metil éster cloridrato) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginina metil éster hidrocloro | Sigma-Aldrich | #N4770 | |
| Dissecando cérebros e incubação de moscas adultas | |||
| GraceInvitrogen | #11605-094 | O meio de Grace também pode ser substituído por Sf-900 II SFM ou Sf-900 III SFM Medium para maior consistência de lote para lote. | |
| Placa de 96 poços | Corning | #3596 | Qualquer produto padrão pode ser usado. |
| Lâmina | Qualquer produto padrão pode ser usado. | ||
| Lâmina cirúrgica | Feather | #0197 | Qualquer produto padrão pode ser usado. |
| Pinças Médicas 5 | Dumont | EMS #72877-D | Qualquer produto padrão pode ser usado. |
| 10x tampão PBS | OmniPur | #6508 | |
| Detecção de níveis de nitrito | |||
| Reagente Griess modificado | Sigma-Aldrich | #4410 | |
| Nitrito de sódio | Sigma-Aldrich | #S2252 ou #237213 | |
| Kit de ensaio de proteína | Bio-Rad | 500-0001 | |
| Cuvetes | Qualquer produto padrão pode ser usado. | ||
| Nitrato redutase | opcional | ||
| NADPH | opcional | ||
| Western Blot Analysis | |||
| RIPA tampão de lise | Amresco | 97063-270 | |
| ditiotreitol (DTT)- Agente redutor | Novex | B0009 | |
| Coquetel inibidor de protease | Amresco | 97063-082 | |
| 4x tampão de amostra LDS | Novex | B0007 | |
| Pré-moldado 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS tampão de corrida | Novex | B0001 | |
| Antioxidante | NuPage | NP0005 | |
| iBlot Transfer Stacks (Nitrocelulose) | Invitrogen | IB301002 | |
| Western blot kit de detecção | Invitrogen | IB711002 | |
| Mouse α-nNOS | BD Biosciences | 611853 | |
| Mouse α-sintaxina | DSHB | 8C3 |
Referências
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Reimpressões e permissões
