O presente protocolo descreve como blotting e imunocitoquímica combinada com a inibição de enzimas lisossomais ocidental pode ser utilizado para demonstrar a regulação negativa da neurotrófico ciliar do Receptor do Factor-α (CNTFRa), que é transportado pela interacção entre citocinas como factor-1 (CLF-1 ) e o receptor endocítico sorLA.
Artigo de método
SorLA e CLC: Downregulation CLF-1 dependente de CNTFRa como demonstrado por Western Blotting, inibição da Lisossomal Enzimas e Imunocitoqu�ica
Neste artigo
Resumo
Resumo
A citoquina heterodimérica-Cardiotrofina como citocinas: Cytokine-like factor-1 (CLC: CLF-1) tem como alvo a glicosilfosfatidilinositol (GPI) ancorada CNTFRa para formar um complexo trimérico que subsequentemente recrutas glicoproteína 130 / Factor Inibidor da Leucemia Receptor-β (gp130 / LIFRp) para a sinalização. Ambos CLC e CNTFRa são necessários para a sinalização, mas até agora CLF-1 só tem sido conhecida como um mediador putativo de secreção CLC. No entanto, recentemente, tem sido mostrado que CLF-1 contém três locais de ligação: um para CLC; um para CNTFRa (que podem promover a montagem do complexo trimérico); e um para o receptor endocítico sorLA. Este último local fornece a ligação de CLF-1, CLC alta afinidade: CLF-1, bem como a trimérica (CLC: CLF-1: CNTFRa) complexo para sorLA, e em células sorLA que expressam os ligandos solúveis CLF-1 e CLC : CLF-1 são tomadas rapidamente para cima e internalizado. Em células co-expressando CNTFRa e sorLA, CNTFRa liga primeira CLC: CLF-1 para formarum complexo trimérico associada a membrana, mas também conecta a sorLA através do local de ligação sorLA livre em CLF-1. Como resultado, CNTFRa, que não tem capacidade para endocitose por si só, é puxou ao longo e internalizado por endocitose mediada por sorLA de CLC: CLF-1.
O presente protocolo descreve os procedimentos experimentais utilizados para demonstrar i) a sorLA-mediada e CLC: downregulation CLF-1-dependente de expressão CNTFRa-superfície da membrana; ii) a endocitose e direccionamento lisossomal de CNTFRa sorLA mediada; e iii) a resposta celular reduzido para CLC: CLF-1-estimulação sobre a regulação negativa sorLA-mediada de CNTFRa.
Introdução
O CLC e CLF-1 constituem as duas subunidades da CLC citocina heterodimérica: CLF-1 1-3. Para a indução do sinal celular, a CLC: CLF-1 primeiros alvos a CNTFRa, seu receptor primário e ancoradas a GPI, de modo a formar um complexo trimérico ligada à membrana. O CLC: CLF-1: CNTFRa complexo posteriormente recruta gp130 / LIFRp que medeia a sinalização trans através das quinases Janus / transdutores de sinal e activadores de transcrição 3 (JAK / STAT3) pathway 4. Os ratinhos deficientes em qualquer uma das três subunidades exibir um e o mesmo fenótipo e morrem dentro de 24 horas após o nascimento devido a uma redução do número de neurónios faciais e insuficiente sucção 5-8. Achados em humanos da mesma forma sublinhar a coerência funcional dos três subunidades. Assim, mutações humanas (homozigotas ou compostos) causando disfunção da CVX: CLF-1 ou CNTFRa, resultam em síndrome da chamada transpiração induzida pelo frio / Crisponi, um estado caracterizado por sintomas tais como impaisucção vermelho e deglutição, várias características dismórficas, picos de temperatura, e paradoxal e Perfundir suando a baixas temperaturas 9-11.
In vitro, a combinação de CLC e CNTFRa é necessário e suficiente para a interacção com gp130 / LIFRp e a indução de sinalização em células 12. O papel de CLF-1 por outro lado, é menos claro. Ele não está directamente envolvido na sinalização, e tem sido considerado como um apêndice que serve principalmente para facilitar a secreção celular de CVX 1. No entanto, descobertas recentes mostram que CLF-1 tem funções adicionais e mais importantes que implicam tanto a sinalização e volume de negócios de CLC e CNTFRa. Assim, parece que CLF-1 contém três locais de ligação independentes: um para a sua bem conhecida ligação a CLC; um que medeia a ligação directa para o CNTFRa; e um terceiro local (elevada afinidade) para a interacção com o receptor de endocitose sorLA. Como ambos CLC e CLF-1 parecem & #160; a meta CNTFRa com uma afinidade mais baixa considerável do que a CLC: Complexo CLF-1, é concebível que CLF-1 (através do seu sítio de ligação CNTFRa) promove a unificação da CLC e CNTFRa e, assim, facilita a sinalização 13.
A interação de CLF-1 com sorLA, a questão principal da presente apresentação, desempenha um papel completamente diferente. SorLA é um dos receptores de cinco tipo 1 que constituem a família de receptores de Vps10p-domínio 14. É expresso numa variedade de tecidos, mas em particular no cérebro e tecidos neuronais 15. Semelhante a outros membros da família sorLA transporta uma ligação Vps10p-ligando de domínio N-terminal, mas, além disso, que também compreende outros tipos de domínio, incluindo os elementos de ligação de ligandos encontrados em membros da família de baixa densidade do receptor de lipoproteína de 15. Sua cauda citoplasmática interage com diversas proteínas adaptadoras, por exemplo, proteína-1 adaptador e -2, e sorLA transmite endocytos eficientesÉ bem como triagem intracelular e transporte de proteínas ligadas 16-18. O Vps10p-domain compreende um grande dez lâminas β-hélice 19,20, que liga uma série de ligantes independentes, incluindo CLF-1 (mas notavelmente, não CLC) 13. O local de ligação no CLF-1 é acessível, mesmo após a formação do complexo com CLC e CNTFRa o que significa que sorLA liga não só livre CLF-1, mas também CLC: CLF-1 eo trimérico CLC complexo: CLF-1: CNTFRa 13. SorLA transmite rápida endocitose de CLF-1 e CLC: CLF-1, mas estes são proteínas solúveis enquanto que CNTFRa é fixado à superfície da membrana por uma âncora GPI. A questão é, por conseguinte, se a ligação de CLC: CLF-1: CNTFRa permite sorLA para internalizar todo o complexo e, assim, alterar a expressão à superfície da membrana de CNTFRa (e a subsequente susceptibilidade celular à CLC: CLF-1 indução de sinal), e / ou o volume de negócios CNTFRa.
As experiências descritas no presenterelatório foram projetados para esclarecer as seguintes questões:
Será sorLA mediar CLC: downregulation CLF-1 dependente da superfície da membrana CNTFRa? Para esclarecer isso, foi inicialmente tentaram determinar o volume de negócios CNTFRa (na ausência e presença de sorLA) por meio de rotulagem e pulse-chase experimentos metabólicos como descrito no 21. No entanto, as tentativas de rotular CNTFRa utilizando uma mistura de [S 35] cistea e [35 S] -metionina revelou uma fraca incorporação de radioactividade. Isto sugeriu um grau muito baixo de novo-síntese, que com toda a probabilidade seria incapaz de compensar a perda súbita e significativa de receptores. Para determinar se CNTFRa foi reprimidos quando interligados através CLC: CLF-1 para sorLA, foi, portanto, decidiu que simplesmente medir (utilizando Western blot) da piscina celular total de CNTFRa antes e depois da exposição a CLC: CLF-1 - e comparar resultados em células transf ectadas ou não transfectadas comsorLA.
Será sorLA alvo CNTFRa para lisossomos? Para responder a esta pergunta, a localização de CNTFRa - internalizada através do seu CLC: CLF-1 mediada por ligação a sorLA - foi examinada usando imunocitoquímica e marcação com anticorpos dirigidos para CNTFRa e do late-endosome / lisossoma marcador Lisossomal-associados proteína de membrana 1 (LAMP-1). A experiência foi realizada em células tratadas como não tratadas bem como com inibidores de enzimas lisossomais. A ideia era de curso que se CNTFRa foi degradada em lisossomas, as células tratadas com inibidores da enzima iria apresentar-CNTFRa coloração acumulando em LAMP-1 vesículas positivas, enquanto que as células não tratadas que apresentam pouca ou nenhuma coloração para CNTFRa.
Será CNTFRa downregulation diminuir a resposta celular ao CLC: CLF-1 de estimulação? O complexo trimérico consistindo de CVX, CLF-1, e os sinais de CNTFRa através da gp130 / heterodímero LIFRp usando o JAK / STAT3via. Por conseguinte, a capacidade das células para responder a CLC: CLF-1 sinalização sobre a regulação negativa de CNTFRa foi explorada por detecção de mancha de Western e de quantificação do nível de fosfo-STAT3 STAT3 (pSTAT3) / Total em transfectantes sorLA.
Protocolo
1. Western Blotting de CNTFRa lisados
- Expresso de comprimento completo sorLA e marcada com myc CNTFRa construções de rim embrionário humano 293 (HEK293) que utilizam células pcDNA3.1 / zeo (-) e pcDNA3.1 / Hyg (-), respectivamente. Transfectar as células HEK293 com as construções usando um reagente de transfecção comercial acordo com o protocolo MANUFACTURER'S. Seleccionar clones estáveis em meio contendo 150 ug / ml de zeocina e / ou 500 ug / ml de higromicina B Gold 13.
- Semente números iguais de células HEK293 transf ectantes que expressa quer CNTFRa-Myc ou que co-expressam CNTFRa-Myc / sorLA em duas placas de 4 poços como mostrado na Figura 1. Cultura das células em Dulbecco modificado por Eagle's Médium (DMEM) suplementado com 10% de fetal de soro de bovino (FBS), 100 U / mL de penicilina, e 100 ug / ml de estreptomicina (meio completo) numa incubadora de dióxido de carbono a 5% a 37 ° C.
- Espere até que as células são 50 - 80% confluentes.
- Remover o meio a partir daWells, lavar uma vez com Dulbecco salina tamponada com fosfato (DPBS) e adicionar meio fresco completo com ou sem (controlo) 10 nM CLC: CLF-1, tal como indicado na Figura 1. Incubar as células a 37 ° C.
- Após 0 e 5 horas de incubação, recuperar a médio e armazená-lo a 4 ° C em tubos de 1,5 ml. Em seguida, adicionar 1% de tampão Triton X-100 de lise (20 mM de Tris-HCl, 10 mM de EDTA, pH 8,0) suplementado com um cocktail inibidor de proteinase a cada poço (1 min, 4 C). Subsequentemente, transferir os lisados de células para tubos de 1,5 mL (4 C).
- Gire os tubos contendo o lisado médio e celular (3.000 x g, 3 min, 4 ° C) e transferir o sobrenadante para tubos de 1,5 mL (4 C). Descartar o sedimento. Transferir 5 uL de cada sobrenadante de lisado celular para novos tubos de 1,5 mL - usá-los para medir o teor de proteína posterior (passo 1.7). Imediatamente, adicionar tampão de amostra não redutor LDS para todos os sobrenadantes e as amostras vortex.
- Use as alíquotas de 5 ul para medir a protconteúdo ein nos sobrenadantes de lisados de células utilizando um ensaio de proteínas comerciais de acordo com o protocolo do fabricante.
- Aquecer as amostras a 95 durante 5 min.
- Sujeito de uma quantidade igual de proteína de cada amostra para SDS-PAGE redutora 13 e Western blotting 13 e visualize o conteúdo da sorLA, β-actina, e CNTFRa-Myc na forma e nos lisados de células utilizando anticorpo de coelho anti-sorLA 16 (5 ug / ml), de ratinho anti-β-actina (0,4 ug / mL), e de murganho anti-Myc (/ mL) de 1 ug de anticorpos e os anticorpos secundários ligados a HRP apropriado (1: 2000).
- Quantificar as bandas por densitometria de acordo com o protocolo do fabricante.
2. Imunocitoqu�ica em combinação com inibidores Lisossomal
- Semear as células HEK293 transfectadas de forma estável com CNTFRa-Myc / sorLA em lâminas de cobertura de uma placa de 4 bem como mostrado na Figura 2. Cultura das células em meio completo como acima.
- Espere até a confluência celular é de 20 - 40%.
- Remover o meio dos poços e adicionar meio completo com ou sem 50 ug / mL de leupeptina e de pepstatina A (Leu / pep) (inibe hidrolases lisossomais) para as células, tal como indicado na Figura 2. Incubar as células a 37 ° C. O meio deve ser substituído a cada 6 h durante as seguintes 24 h de incubação.
- Após 24 h de incubação, uma vez mais substituir o meio (com ou sem Leu / PEP) e este tempo, adicionar 10 nM CLC: CLF-1. Incubar as células a 37 ° C durante 5 h.
- Lavar as células uma vez em PBS e corrigi-los em paraformaldeído a 4%, pH 7 durante 15 min à temperatura ambiente.
Atenção: O paraformaldeído é altamente tóxico, evitar o contacto com a pele, olhos e mucosas. Luvas e óculos de segurança deve ser usado e soluções dentro de um exaustor. - Lavar as células uma vez em PBS e permeabilizar as células durante 5 min à temperatura ambiente em saponina diluída em PBS (0,5% de saponina).
- Dilui-se anticorpo de cabra anti-CNTFRa (1 ug / mL) (nomeadamentenão o rato anti-myc utilizado para a transferência de Western) e de rato anti-anticorpos de LAMP-1 (15 ug / ml) em 0,5% de saponina e incubar as células com os anticorpos durante 2 h à RT.
- Lava-se a células de 4x (5 min) em 0,5% de saponina e incubar as células com burro anti-cabra Alexa 488- e de burro anti-rato Alexa 568-anticorpos secundários conjugados (6 ug / ml) durante 2 h à TA.
- Lava-se a células de 4x (5 min) em 0,5% de saponina, duas vezes em água desionizada (1 min), e montar as lâminas de cobertura em lâminas de microscópio, utilizando meios de montagem.
- Analisar o anticorpo de coloração das células por microscopia confocal utilizando um microscópio laser confocal de varrimento com um C-63X Apochromat objectiva de imersão em água, NA 1.2.
3. Transferência de Western de detecção do nível pSTAT3
- Semente células HEK293-sorLA (que expressam os níveis endógenos de CNTFRa) numa placa de 4 bem como mostrado na Figura 3. Cultura das células em meio completo como acima.
- Aguarde até que oAs células são 50 - 80% confluentes.
- Remover o meio dos poços, lavar uma vez com PBS, e adicionar meio fresco completo com ou sem 10 nM CLC: CLF-1 para as células, tal como indicado na Figura 3. Incubar as células a 37 ° C durante 5 h.
- Remover o meio, lavar as células duas vezes em DMEM sem suplementos (meio em branco, sem FBS e antibióticos), e, em seguida, reincubate as células durante 90 min (37 ° C) em meio em branco.
- Mais uma vez, remover o meio e adicionar meio fresco em branco com ou sem 5 nM CLC: CLF-1 (para iniciar a fosforilação STAT3), como indicado na Figura 3. Incubar durante 15 min a 37 ° C.
- remover rapidamente a forma e lisar as células (1 min, 4 ° C) através da adição de 1% de tampão de lise Triton X-100 (Tris-HCl 20, 10 mM de EDTA, pH 8,0) suplementado com um cocktail inibidor de proteinase e um inibidor de fosfatase coquetel a cada poço. Subsequentemente, transferir os lisados de células para tubos de 1,5 mL (4 C).
- Transferir 5 uL óf cada sobrenadante para novos tubos de 1,5 mL - usá-los para medir o teor de proteína posterior (passo 3.8). Imediatamente, adicionar tampão de amostra não redutor LDS para todos os sobrenadantes e as amostras vortex.
- Medir o teor de proteína das aliquotas de 5 uL utilizando um ensaio de proteínas comerciais de acordo com o protocolo do fabricante.
- Sonicar cada amostra à temperatura ambiente até que já não viscosa (aproximadamente 1 minuto) e, subsequentemente, são os aquecer a 95 C durante 5 min.
- Sujeito de uma quantidade igual de proteína de cada amostra para SDS-PAGE a 13 e Western blotting 13 e visualize o conteúdo da pSTAT3 e STAT3 total nos lisados de células utilizando anticorpo de coelho anti-pSTAT3 (1: 2000) e de ratinho anti-STAT3 (1: 1000 ) anticorpos eo rato ligado a HRP e do coelho de anticorpos secundários apropriados (1: 2.000).
- Quantificar as bandas por densitometria de acordo com o protocolo do fabricante.
Resultados
A Figura 1 mostra uma representação esquemática da inoculação das células e CLC: CLF-1 de incubação no protocolo 1. A Figura 2 mostra uma representação esquemática da inoculação das células e Leu / PEP e CLC: CLF-1 no protocolo de incubação 2. A Figura 3 mostra uma representação esquemática da inoculação das células e CLC: CLF-1 e estimulação de incubação no protocolo 3. a Figura 4 mostra a CLC-sorLA mediada: downregulation CLF-1-dependente de CNTFRa. A Figura 5 mostra o lisossomal endocitose e sorLA mediada segmentação de CNTFRa. A Figura 6 mostra a resposta inferior a CLC: CLF-1 de estimulação após CNTFRa downregulation.
Note-se que as bandas significando CNTFRa-Myc tem densidade semelhante ao tempo zero, enquanto que a regulação negativa da CNTFRa-Myc é demonstrado pela banda mais fraca nos transfectantes sorLA afteR 5 h (Figura 4). A Figura 5 mostra que CNTFRa-Myc acumulou em LAMP-1 de células positivas vesículas Leu / pep tratada. Em contraste, nenhuma acumulação de CNTFRa-Myc é visto em células não submetidas ao tratamento Leu / pep. Isso demonstra que CNTFRa-Myc é classificada à lisossomos e degradadas. Como pode ser visto na Figura 6, o nível de pSTAT3 é significativamente reduzida em células pré-estimulado em comparação com o nível em células que não tenha sido exposto a CLC: CLF-1. Isto está de acordo com o observado downregulation sorLA-mediada de CNTFRa nas células pré-estimuladas (Figura 4).
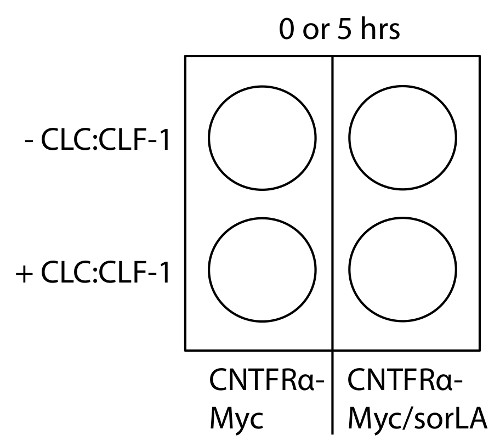
Figura 1: Representação esquemática da célula-semeadura e CLC: CLF-1 de incubação no protocolo 1. As sementes de células HEK293-CNTFRa-Myc e HEK293-CNTFRa-Myc / sorLA em dois 4-bem placas (0 e 5 h) e incubar as células com CLC: CLF-1, tal como indicado. Por favor clique aqui para ver uma versão maior desta figura.
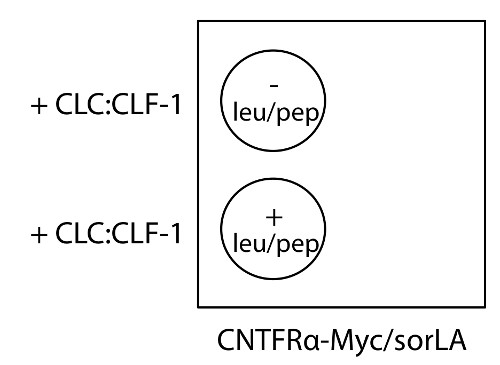
Figura 2: Representação esquemática da célula-semeadura e leu / pep e CLC: CLF-1 incubação em protocolo 2. Seed células HEK293-CNTFRa-Myc / sorLA em lâminas de cobertura em uma placa de 4 bem e incubar as células com ou sem leu / pep e CLC: CLF-1, como indicado. Por favor clique aqui para ver uma versão maior desta figura.
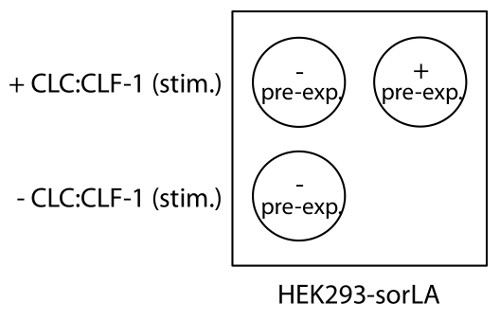
Figura 3: Representação esquemática da célula-semeadura e CLC: CLF incubação e estimulação no protocolo 3. Seed células HEK293-sorLA em uma placa de 4 bem e células com ou sem CLC incubar: (. pré-exp) CLF-1 para regular negativamente a CNTFRa seguido por CLC: CLF-1 de estimulação (. STIM) para iniciar a fosforilação STAT3, como indicado. Por favor clique aqui para ver uma versão maior desta figura.
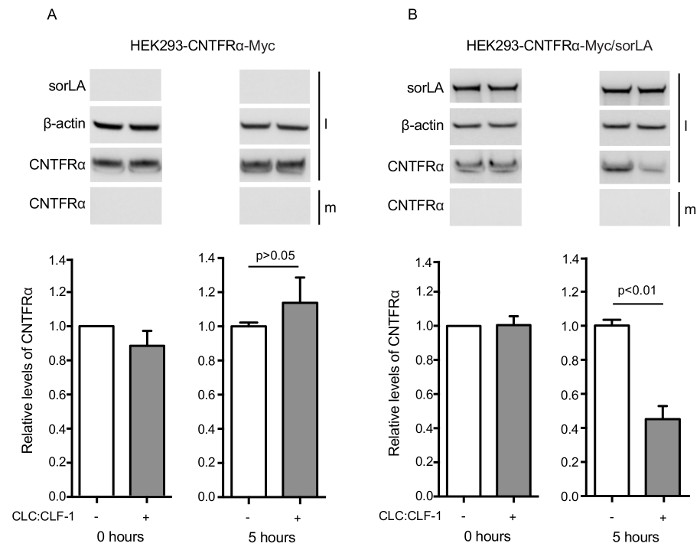
Figura 4: Resultados que mostram que SorLA medeia CLC: downregulation CLF-1 dependente de CNTFRa. (A) As células (B) HEK293-CNTFRa-Myc / sorLA HEK293-CNTFRa-Myc e foram incubadas na ausência (colunas a branco) ou na presença (colunas cinzentas) de 10 nM CLC: CLF-1. Após 0 e5 h, a incubação foi interrompida e o conteúdo de CNTFRa-Myc na forma (m) e nos lisados celulares (L) foi detectado através de Western blotting e quantificado por densitometria. Os painéis superiores mostram resultados de Western blot a partir de experiências representativas, e os painéis inferiores mostram os níveis detectados de CNTFRa-Myc encontrados nos lisados celulares. Os níveis são apresentados em relação ao nível CNTFRa-Myc nos transfectantes simples e dupla a 0 h. Cada coluna representa a média ± SEM (n = 3). os valores de p calculados utilizando o teste t. Reproduzida após a figura 13 originais. Por favor clique aqui para ver uma versão maior desta figura.
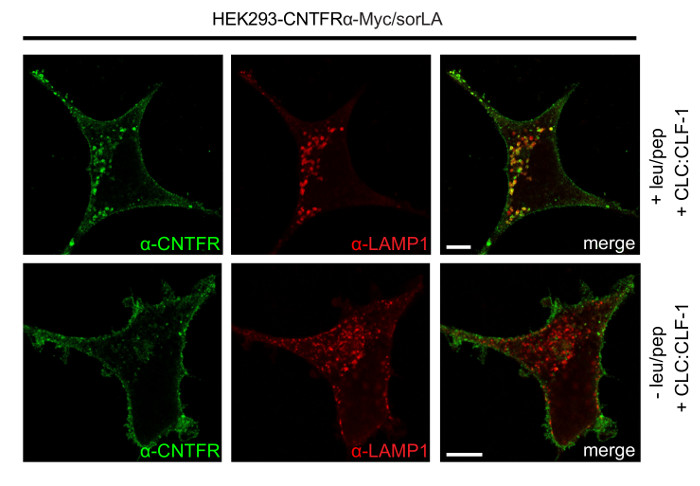
Figura 5:Os resultados mostram que SorLA medeia a endocitose e direccionamento lisossomal de CNTFRa. células HEK293-CNTFRa-Myc / sorLA foram tratados com ou sem Leu / PEP, incubadas com 10 nM de CLC: CLF-1 durante 5 h, fixo, e, finalmente, coradas utilizando anti-CNTFRa e anti LAMP-1 de anticorpos, como descrito no protocolo 2. barras de escala: 5 um. Reproduzida após a figura 13 originais. Por favor clique aqui para ver uma versão maior desta figura.
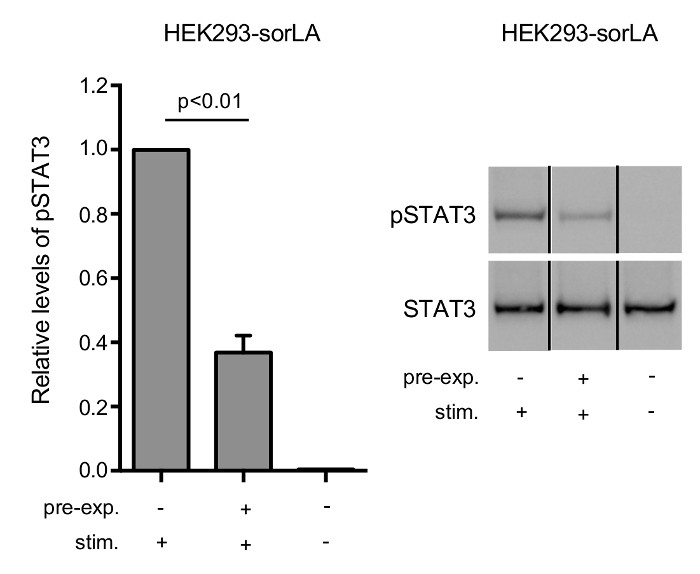
Figura 6: downregulation SorLA-mediada de CNTFRa é acompanhada por uma resposta celular reduzido para CLC: CLF-1 de estimulação.
células HEK293-sorLA foram pré-incubados na ausência ou na presença de 10 nM de CLC: (. pré-exp) CLF-1 durante 5 h, em fome blank meio durante 90 minutos, e estimuladas com 5 nM CLC: (. STIM) CLF-1 durante 15 min. (Esquerda) As colunas mostram os níveis relativos de pSTAT3 nas células. Cada coluna representa a média ± SEM (n = 3) em relação ao nível pSTAT3 em células pré-incubadas na ausência de CLC: CLF-1 mas estimuladas com CLC: CLF-1. valor de p calculado pelo teste t. (Direita) O Western blot mostra a resposta de pSTAT3 e STAT3 obtido numa experiência representativa. Reproduzida após a figura 13 originais. Por favor clique aqui para ver uma versão maior desta figura.
Discussão
O protocolo aqui descrito pode ser utilizado especificamente para demonstrar a CLC-sorLA mediada: downregulation CLF-1-dependente e de direccionamento lisossomal de CNTFRa, bem como a resposta enfraquecida que acompanha a CLC: CLF-1 de estimulação.
A linha celular HEK293 que é bem adequado para este protocolo, uma vez que tem apenas uma menor expressão endógena de CNTFRa e sorLA, são fáceis de transfectar, expressa gp130 / LIFRp, e tem uma grande massa de células, o que é adequado para imunocitoquímica. No entanto, em teoria, qualquer linha de células com propriedades semelhantes devem funcionar tão bem.
O protocolo tem dois passos críticos. A primeira diz respeito a etapa 2.3, em que o meio de Leu / PEP deve ser substituído aproximadamente a cada 6 h durante 24 h. Não fazer isso pode resultar em enzimas lisossomais ativos e menos ou nenhuma acumulação detectável de proteína nos lisossomos. O segundo passo crítico (3.4) preocupações de lavagem mediante pré-incubação com CLC: CLF-1. É importante para remover qualquer ligando não ligado, e para permitir que o tempo para recuperar células (evitando a estimulação contínua) em DMEM sem suplementos (meio em branco). Isso irá garantir um baixo nível de fundo de pSTAT3 durante a posterior re-estimulação com CLC: CLF-1 (passo 3.5).
Nomeadamente, a Figura 6 demonstra que a resposta celular (pSTAT3) diminui em paralelo com o downregulation sorLA-mediada de CNTFRa. Deve sublinhar-se no entanto, que, apesar de uma resposta reduzida é de acordo com o (e que se espera em cima) uma redução da piscina CNTFRa, não prova que a expressão de baixo CNTFRa só por si representa a resposta celular reduzida. Assim, as mudanças - resultantes da pré-estimulação ou transfecção - em qualquer um dos elementos funcionais da via de sinalização a montante de pSTAT3 pode ter contribuído para a resposta alterada.
O conceito básico do protocolo não está limitada a esta particusistema receptor lar. (. Isto é, uma outra linha celular, outros anticorpos, outros ligandos, etc), modificando o protocolo pode ser utilizado para determinar a regulação negativa induzida pelo ligando de outros receptores, bem como - independentemente de envolvimento sorLA's. No entanto, deve notar-se que a análise da regulação negativa do receptor-por transferência de Western é adequado principalmente para os receptores, por exemplo, receptores ancoradas por GPI, que apresentam um volume de negócios lento e um baixo grau de nova síntese em células não estimuladas. Assim, em receptores que mostram um alto nível de síntese nova, a regulação negativa induzida pelo ligando podem ser compensados por síntese de novos receptores. Sob estas circunstâncias, a regulação negativa do receptor de piscina pode em vez disso ser determinada por meio de rotulagem e pulse-chase experiências metabólicas tal como descrito em 21. Alternativamente, os anticorpos (de preferência iodados Fc fragmentos) que não interferem com a ligação ao receptor pode ser utilizado para "marcar" o ectodomínio do receptou, e a regulação negativa esperada pode ser então determinada por contagem radioactiva de sedimento de células e meio.
Por razões logísticas que transfectadas nossas células com um CNTFRa construir carregando uma Myc-tag, e no presente protocolo foi utilizado um anticorpo anti-Myc mouse para o blot de detecção ocidental do receptor. Em contraste, foi utilizado um anticorpo anti-cabra CNTFRa por imunocitoquímica e a dupla marcação de LAMP-1 foi detectada por um anticorpo de ratinho - e, obviamente, da utilização de dois anticorpos primários de ratinho resultaria em (sobreposição) coloração não específica com anticorpos secundários. Note-se que uma vez que o anticorpo de cabra anti-CNTFRa também funciona em Western blotting (não mostrado), o protocolo pode ser facilmente modificada e aplicado a células transfectadas com CNTFRa não marcado.
Finalmente, foi recentemente mostrado que também o sortilina receptor endocítico liga CLC: CLF-1 com alta afinidade 22. Assim, é concebível que sortilina, comosorLA, interliga a CLC: CNTFRa via CLF-1 e é capaz de mediar a endocitose e lisossomal de CNTFRa também. Usando sortilin vez de sorLA, o presente protocolo pode ser usado para esclarecer esta questão.
Divulgações
Os autores não têm nada para revelar.
Agradecimentos
Os autores não têm agradecimentos.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Hygromycin B Gold | InvivoGen | ant-hg-1 | |
| FuGENE 6 Reagente de Transfecção | Placas de 4 poços Roche | 11 815 091 001 | |
| (Superfície Delta Nunclon) | Tubos Safe-Lock Thermo Scientific | 176740 | |
| Eppendorf | 0030 120.086 | ||
| Dulbecco Modified Eagle´ s Medium (DMEM) | Lonza | BE12-604F/U1 | |
| Fetal Bovine Serum (FBS) | Thermo Scientific | 10270106 | |
| Penicilina/Estreptomicina | Thermo Scientific | 15140122 | |
| Dulbecco Phosphate Buffered Saline (DPBS) | HyClone | SH30028.02 | |
| CLC: CLF-1 | R& D Systems | 1151-CL/CF | |
| Mouse anti-LAMP-1 | DSHP | H4A3 | |
| Rabbit anti-sorLA | Reference 16 | ||
| Mouse anti-b-actin | Sigma | A2228 | |
| Mouse anti-Myc | Genscript | A00704 | |
| Cabra anti-CNTFRa | R& D Systems | AF-303 | |
| Coelho anti-pSTAT3 | Tecnologia de sinalização celular | 9145s | |
| Mouse anti-STAT3 | Tecnologia de sinalização celular | 9139s | |
| Anticorpo anti-rato ligado a HRP | Tecnologia de sinalização celular | 7076s | |
| Anticorpo anti-coelho ligado a HRP | Tecnologia de sinalização celular | 7074s | |
| Anticorpo anti-cabra ligado a HRP | Dako | P0160 | |
| Anticorpo secundário anti-cabra burro, conjugado Alexa Fluor 488 | Invitrogen | A11055 | |
| Anticorpo secundário anti-rato de burro, conjugado Alexa Fluor 568 | Invitrogen | A10037 | |
| Leupeptina | Sigma | L8511-5MG | |
| Pestatina A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1.082.191.000 | |
| EDTA: Titriplex III | Merck | 1.084.180.250 | |
| cOmplete mini EDTA-free | Roche | 11836170001 | |
| PhosSTOP | Roche | 04 906 837 001 | |
| LDS amostra Buffer (4x) | Novex | NP0007 | |
| Bio-Rad Protein Assay | Bio-Rad | 500-0006 | |
| 4% paraformaldeído (PFA) | VWR | 97,135,000 | |
| Saponina | Sigma | S7900-100G | |
| Mídia de Montagem | Dako | S3023 |
Referências
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
Reimpressões e permissões
