Os detalhes são apresentados sobre como o mapeamento de QTL com um mapa genético baseado em seqüências genômicas inteiras pode ser usado para identificar um gene de resistência a drogas em Toxoplasma gondii e como isso pode ser verificado com o sistema CRISPR / Cas9 que edita eficientemente um alvo genômico, neste caso o Gene de resistência a drogas.
Artigo de método
Mapeamento QTL e edição CRISPR / Cas9 para identificar um gene de resistência a medicamentos em
Neste artigo
Resumo
Resumo
O conhecimento científico está intrinsecamente ligado às tecnologias e métodos disponíveis. Este artigo apresentará dois métodos que permitiram a identificação e verificação de um gene de resistência ao fármaco no parasita de Apicomplexan Toxoplasma gondii , o método de mapeamento quantitativo de locus de traço (QTL) usando um mapa genético baseado em Seqüência de Genoma Inteiro (WGS) e o método De repetições palindromicas curtas em intervalos regulares e irregulares (CRISPR) / edição de genes com base em Cas9. A abordagem do mapeamento QTL permite testar se existe uma correlação entre uma (s) região (s) genômica e um fenótipo. Dois conjuntos de dados são necessários para executar um exame QTL, um mapa genético baseado na progênie de uma cruz recombinante e um fenótipo quantificável avaliado em cada uma das progênies dessa cruz. Esses conjuntos de dados são então formatados para serem compatíveis com o software R / qtl que gera uma varredura QTL para identificar locus significativos correlacionados com o fenótipo. Embora isso possa reduzir muito a pesquisa wIndependentemente de possíveis candidatos, as QTLs abrangem regiões que contêm uma série de genes dos quais o gene causal precisa ser identificado. Ter WGS da progênie foi crítico para identificar a mutação causal de resistência ao medicamento no nível do gene. Uma vez identificada, a mutação candidata pode ser verificada por manipulação genética de parasitas sensíveis a fármacos. O método mais fácil e eficiente para modificar geneticamente T. gondii é o sistema CRISPR / Cas9. Este sistema compreendeu apenas 2 componentes ambos codificados em um único plasmídeo, um RNA de guia único (gRNA) contendo uma sequência de 20 pb complementar ao alvo genômico e a endonuclease Cas9 que gera uma ruptura de DNA de dupla cadeia (DSB) no alvo, Cujo reparo permite a inserção ou exclusão de seqüências ao redor do local de quebra. Este artigo fornece protocolos detalhados para usar as ferramentas de edição de genoma baseadas em CRISPR / Cas9 para verificar o gene responsável pela resistência à sinefungina e para construir parasitas transgênicos.
Introdução
O intervalo de hospedagem determina a extensão da prevalência de parasitas. Alguns parasitas possuem requisitos de host muito específicos que limitam a área a partir da qual são encontrados, outros são generalistas. Um desses generalistas é Toxoplasma gondii ( T. gondii) . Este parasita é encontrado em todo o mundo, pois pode infectar todos os mamíferos e muitas aves. Os seres humanos também são suscetíveis e estima-se que cerca de 1/3 da população global tenha sido infectada. Felizmente, uma resposta imune robusta normalmente controla o crescimento do parasita, mas em situações onde o sistema imunológico está comprometido, o parasita pode crescer sem controle e causar doenças, muitas vezes encefálicas. Além disso, este parasita pode causar doenças congênitas se as mulheres previamente não infectadas estiverem infectadas durante a gravidez, pois não possuem memória imune para limitar rapidamente a disseminação do parasita. Além disso, há uma carga de toxoplasmose ocular que pode resultar em perda de visão 1 . Para estes reasoNs T. gondii tornou-se um foco de estudo, e devido aos muitos métodos moleculares desenvolvidos para o seu estudo, um modelo para parasitas Apicomplexan. Dois métodos que serão discutidos aqui são o mapeamento do Locus de Traço Quantitativo (QTL) e as Repetições de Palindromus Curto (CRISPR) / Cas9 Regularmente Interspaced Clustered Regularmente (CRISPR) / Cas9. O mapeamento QTL e a edição CRISPR / Cas9 são, respectivamente, abordagens genéticas diretas e reversas que foram utilizadas em estudos anteriores para identificar e / ou caracterizar os genes de virulência de T. gondii . Aqui, esses métodos são combinados para identificar e confirmar a função de um gene de resistência a sinefungina (SNF r ), TgME49_290860 e seus orthologs (anotado como SNR1 ) 2 .
Embora T. gondii possa infectar uma grande variedade de hospedeiros intermediários, ele deve passar e infectar as células epiteliais intestinais de um felino para completar o ciclo de vida. Os gatos são os anfitriões definitivos do parasita onde o sSão produzidos estágios exuais e a recombinação genética via meiosis ocorre. Para realizar um estudo QTL, é necessário criar uma cruz genética e, no caso do Toxoplasma, isso significa passar por duas cepas parasitárias diferentes que diferem em um traço fenotípico, as manchas parentais, através de um gato para produzir progênies recombinantes 3 . Antes de serem alimentados com gatos, as cepas parentais são resistentes a drogas separadas para permitir uma identificação mais eficiente de recombinantes por seleção de drogas duplas da progênie 4 . Três drogas foram usadas em T. gondii para esse propósito; Fluorodeoxirribose (FUDR) para o qual a uracilo fosforibosil transferase ( UPRT ) é o gene de resistência 5 , adenosina arabinósido (ARA) para o qual a adenosina quinase ( AK ) é o gene de resistência 6 e a sinefungina (SNF) para a qual o gene de resistência era desconhecido 7 . Várias cruzes genéticas foramCriado para T. gondii , mas apenas a progênie 24 da cruz ME49-FUDR r X VAND-SNF r foram genotipadas usando seqüenciamento do genoma completo (WGS) 8 . Isso abriu a possibilidade de mapear e identificar o gene de resistência SNF usando esta cruz, pois o pai VAND foi feito resistente a sinefungina por mutagênese química da cepa VAND (VAND-SNF s ) sensível a fármaco e o genoma de referência VAND foi sequenciado utilizando o VAND- Estirpe de SNF, permitindo assim a identificação de todos os polimorfismos entre a progênie WGS e o genoma de referência do VAND-SNF, incluindo a mutação VAND-SNF r herdada que resultou em alguma resistência à sinefungina da progênie.
Para identificar o polimorfismo causal de nucleotídeo único (SNP) na progênie SNF r , vários recursos de fonte aberta baseados em computação podem ser usados para analisar os dados. Para criar o mapa genético para ME49-FUDR r X VAND-SNF r cruzou o conjunto de software REDHORSE 9, que usa os alinhamentos do WGS dos pais e progênies para detectar com precisão as posições genômicas de crossoversos genéticos. Esta informação de mapeamento pode então ser combinada com os dados fenotípicos (SNF r na progênie) para formatar um conjunto de dados compatível com o pacote 'qtl' 10 no software de programação estatística R onde uma varredura QTL pode ser executada para revelar loci significativo correlacionado com o Fenótipo. Para identificar o SNP causal localizado dentro do locus QTL, as leituras WGS da progênie podem ser alinhadas individualmente ao genoma VAND sensível ao sinefungina usando o programa de alinhamento Bowtie 2 11, do qual os SNPs podem ser chamados usando o programa variador do VarScan mpileup2snp 12 . Usando estes SNPs, o locus QTL pode então ser escaneado para polimorfismos que estão presentes no SNF r, mas nãoNa progênie do SNF. Com o SNP causal identificado na região de codificação de um gene, a modificação genética do gene SNF r candidato pode ser realizada em uma estirpe SNF para verificar a função de resistência ao fármaco.
O sistema de edição do genoma CRISPR / Cas9 foi recentemente estabelecido no Toxoplasma 13 , que adicionou ferramentas importantes para a exploração da biologia complexa desse parasita, particularmente para estudos genéticos em estirpes não laboratoriais adaptadas. Devido à atividade altamente ativada de união de extremidade não homóloga (NHEJ) em células de WT Toxoplasma , a modificação de genoma direcionada é difícil de conseguir, uma vez que o DNA introduzido de forma exógena é integrado aleatoriamente ao genoma em alta freqüência 14 . Para aumentar a taxa de sucesso da modificação específica do locus, foram utilizadas diferentes abordagens para aumentar a eficiência da recombinação homóloga e / ou diminuirE atividade do NHEJ 15 , 16 . Uma dessas abordagens é o sistema CRISPR / Cas9. Comparado com outros métodos, o sistema CRISPR / Cas9 é eficiente na introdução de modificações específicas do site e é fácil de desenhar 13 , 17 , 18 . Além disso, pode ser usado em qualquer estirpe de Toxoplasma sem modificação extra ao parasita 13 , 19 .
O sistema CRISPR / Cas9 originou-se do sistema imune adaptativo de Streptococcus pyogenes , que o usa para defender a invasão de elementos genéticos móveis, como os fagos 20 , 21 , 22 . Este sistema utiliza a enzima endonuclease de DNA guiada por RNA Cas9 para introduzir a ruptura de DNA de duas vertentes (DSB) no alvo, que é subsequentemente reparadoEnvolvidos pelo NHEJ propenso a erros para inativar genes alvo através de mutações curtas de indel, ou por recombinação direta de homologia para alterar o locus alvo exatamente como projetado 23 , 24 . A especificidade do alvo é determinada por uma molécula de RNA pequena chamada ARN de guia único (gRNA), que contém uma seqüência de 20 nt projetada individualmente que possui 100% de homologia com o DNA alvo 22 . A molécula de gRNA também contém assinaturas reconhecidas por Cas9 que orientam a nuclease para o site alvo, que inclui um Motivo Adjacente Protospacer especial (PAM, sequência é 'NGG') 25 , 26 . Portanto, a molécula de gRNA e a sequência PAM trabalham em conjunto para determinar o local de clivagem Cas9 no genoma. Pode-se mudar facilmente a sequência gRNA para segmentar diferentes sites para clivagem.
Quando o sistema CRISPR / Cas9 foi desenvolvido pela primeira vez em ToxopLasma, um único plasmídeo que expressa a nuclease Cas9 e a molécula de ARNt foi usado para introduzir DSB no local de direcionamento 13 , 17 . Demonstrou-se que o sistema CRISPR / Cas9 aumenta drasticamente a eficiência da modificação do genoma específico do local, não apenas por recombinação homóloga, mas também a integração não homóloga do DNA exógeno 13 . Ele faz isso em cepas de tipo selvagem que contêm atividade de NHEJ. Portanto, esse sistema pode ser usado essencialmente em qualquer estirpe Toxoplasma para a edição eficiente do genoma. Num experimento típico, o plasmídeo CRISPR específico do alvo e o fragmento de DNA utilizado para modificar o alvo são co-transfectados em parasitas. Se o fragmento de DNA usado para modificar o alvo contém sequências homólogas para o locus alvo, a recombinação homóloga pode ser usada para reparar o DSB introduzido por CRISPR / Cas9 para permitir uma modificação precisa do alvo. Por outro lado, se o intO fragmento de DNA roduzido não contém sequência homóloga, ainda pode ser integrado no site de segmentação CRISPR / Cas9. Este último é usado frequentemente para interromper genes por inserção de marcadores selecionáveis ou complementar mutantes em loci que permitem a seleção negativa 13 . Aqui o locus SNR1 serve como um exemplo para mostrar como CRISPR / Cas9 pode ser usado para a ruptura de genes e a geração de parasitas transgênicos.
Protocolo
1. Avalie SNF r na Progênie do ME49-FUDR r x VAND-SNF r Cruz
NOTA: T. gondii é um parasita intracelular obrigatório e o estágio do taquizoide cresce prontamente na cultura de tecidos.
- Para cultivar o parasita de T. gondii , mantê-los em cultura de monocamada de Fibroblastos de Prepúcio Humano confluente (HFF) semeada em frascos T25 com meio de DMEM (Meio Modificado de Águia Modificada de Dulbecco) suplementado com 10% de Soro de Bovino Fetal (FBS) (meio D10) a 37 ° C e 5% de CO 2 .
NOTA: Consulte o Protocolo 1.1 Nota no Arquivo Complementar 1 . - Para testar os clones de progênies individuais para a resistência à sinefungina, cresça cada clone para a alta densidade do parasita em um balão de cultura TBR de HFF durante 2-3 d, até que a maioria dos parasitas comece a liar as células hospedeiras.
- Raspe a monocamada com um raspador de células e passe a solução de parasita através de uma seringa de 10 mL / agulha brusca de 22 G 2-3x tLise as células hospedeiras liberando parasitas. A solução pode ser puxada para trás na seringa para múltiplas passagens de agulhas.
- Filtre a solução parasitária em um novo tubo cônico através de uma membrana com tamanho de poro de 3 μm para remover células HFF e detritos celulares.
- Contar os parasitas em um hemocitómetro e determinar o número de parasitas por mL.
- Usando um pipeteador, passe 2,5 x 10 5 parasitas para um novo balão de cultura TBR HFF contendo meio D10 com 0,3 μM de concentração de trabalho da droga sinefungina.
- Cresça os parasitas a 37 ° C e 5% de CO 2 para 7-10 d.
- Avalie a progênie para o fenótipo de crescimento em drogas de sinefungina. Observe a monocamada sob um microscópio de contraste de fase invertido e ponha 0 para nenhum crescimento (sensível à sinefungina), pontuação 1 para crescimento e lise de monocamada (resistente a sinefungina).
NOTA: Consulte o Protocolo 1.8 Nota no arquivo complementar 1 .
2. RUma verificação QTL do fenótipo SNF r em qtl
NOTA: veja o Protocolo 2 Nota no arquivo complementar 1 .
- Instale o software de linguagem de programação R em um computador local. Veja 27 .
- Execute R e instale o pacote 'qtl'. Ou faça isso a partir da opção de interface R GUI 'Pacotes-> Instalar pacote (s)', ou execute o seguinte comando a partir da linha de comando R (o primeiro símbolo ">" em cada exemplo denota o início de um comando para não ser Copiado):
> Install.packages ("qtl")
NOTA: Uma vez que R e o pacote 'qtl' foram instalados, existem duas maneiras de executar R / qtl, a partir da linha de comando R ou usando um programa de interface gráfica do usuário (GUI) chamado J / qtl 28 : veja 29 para baixar J / Qtl. Este protocolo fornecerá a sintaxe da linha de comando R / qtl com referência ocasional à função equivalente em J / qtl. - Carregue o pacote 'qtl':
> Biblioteca (qtl)
NOTA: Consulte o Protocolo 2.3 Nota no Arquivo Complementar 1 para o formato do arquivo de dados e downloads. - Carregue o arquivo de conjunto de dados em R / qtl.
- Para o formato "csv" (veja: Arquivo de dados 1):
> SNFR <- read.cross (format = "csv", file = "$ PATH / Rqtl-SNFR.csv", genótipos = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Ou para o formato "gary" (veja: Arquivo de dados 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genótipo. Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
Onde $ PATH é o caminho do diretório para o (s) arquivo (s) contendo o conjunto de dados qtl. Por exemplo: / Usuários / HotDiggityDog / QTLfiles
NOTA: os arquivos também podem ser carregadosEd em J / qtl com os comandos anteriores usando a opção 'Inserir Comentário ou Comando' ou carregar os dados com a opção GUI 'Arquivo-> Carregar Dados Cruzados'.
- Para o formato "csv" (veja: Arquivo de dados 1):
- Calcule probabilidades para o mapa:
> SNFR <- calc.genoprob (SNFR, passo = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Execute uma única varredura usando uma distribuição binária do fenótipo de resistência a senofungina em todos os cromossomos:
> SNFR.scan <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb" "," VIII "," IX "," X "," XI "," XII "), pheno.col = c (1), model =" binário ", método =" em ")
NOTA: Se o fenotipo VIR usar a opção de distribuição 'modelo = "normal"'. - Execute 1000 permutações para calcular limites de significância e depois attrPermita as permutações para a variável SNFR.scan:
> SNFR.scan.permutations <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" "VIIb", "VIII", "IX", "X", "XI", "XII"), pheno.col = c (1), model = "binário", método = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
NOTA: Os Passos 2.5 a 2.7 podem ser executados em J / qtl com a opção 'Análise-> Varredura Principal-> Executar Um QTL Genoma Scan'. - Traçar os resultados da verificação:
> Trama (SNFR.scan, gap = 0, bandcol = "grey")
NOTA: O gráfico produzido em J / qtl é interativo.- Trace os resultados da varredura apenas para o cromossomo IX, o cromossomo com o pico mais alto:
> Plot (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "gray", show.marker.names = TRUE)
- Trace os resultados da varredura apenas para o cromossomo IX, o cromossomo com o pico mais alto:
- Mostre todas as posições do marcador e as pontuações LOD a partir da única verificação:
> SNFR.scan - Mostre os resultados limiar do teste de permutação:
> Resumo (SNFR.scan.permutations) - Mostre apenas os marcadores maiores que o valor alfa = 0,05 (extraído da saída anterior):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - Mostre os marcadores com maior pontuação LOD em cada cromossomo:
> Resumo (SNFR.scan) - Mostre os marcadores que possuem o valor máximo de pontuação LOD (retirado da saída anterior):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
NOTA: Consulte o Protocolo 2.13 Nota no Arquivo Complementar 1 .
3. Identifique a mutação causal do SNF usando leituras WGS da Progênie
NOTA: veja o Protocolo 3 Nota no Arquivo Complementar 1 .
- Alinhar leituras WGS da progênie individual ao VAND sensível ao sinefungina(VAND-SNF s ) genoma parental.
NOTA: Faça o download do genoma de referência VAND (SNF s ) da montagem NCBI AEYJ00000000.2 e o WGS lê (arquivos .sra) para a progênie 24 do NCBI SRA PRJNA258152. Além disso, baixe os seguintes programas: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 e MUMmer 31 .- Crie um índice compatível com Bowtie 2 do arquivo FASTA do genoma de referência VAND usando o programa bowtie2-build, aqui nomeando o índice "VAND":
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Converta os arquivos de leitura WGS formatados SRA em arquivos FASTQ usando fastq-dump com a opção --split-files para leituras emparelhadas (o arquivo SRR1555372.sra para a progênie P1_14VB será usado como exemplo):
> Fastq-dump --split-files SRR1555372.sra
NOTA: Execute este e todos os seguintes comandos no Protocolo 3.1 para todos os 24Progênie. - Alinhe as leituras WGS ao genoma de referência usando bowtie2 com saída para um arquivo SAM (.sam) e a opção - end-to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - fim-a-fim - Converta o arquivo .sam em um arquivo BAM (.bam):
> Visão de samtools -bS SRR155372.sam> SRR155372.bam - Classifique o arquivo .bam:
> Samtools tipo SRR155372.bam SRR155372.sort - Indexar o arquivo .bam ordenado:
> Índice samtools SRR155372.sort.bam
- Crie um índice compatível com Bowtie 2 do arquivo FASTA do genoma de referência VAND usando o programa bowtie2-build, aqui nomeando o índice "VAND":
- Chamar SNPs para a progênie usando VarScan
NOTA: Consulte o Protocolo 3.2 Nota no arquivo complementar 1 .- Converta todos os arquivos BAM (.sort.bam) indexados em um arquivo formatado stackup usando o samtools mpileup com o arquivo de referência do genoma VAND, todos os arquivos .sort.bam da progênie e saída para um arquivo chamado AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Ligue para todos os SNPs usando o programa VarScan mpileup2snp usando o arquivo AllProgeny-mpileup.txt, cobertura mínima de leitura de 5, freqüência variável mínima em leituras de .8, um p-valor de .01 e saída para um nome de arquivo AllProgeny-SNPs. TXT:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-coverage 5 --min-var-freq .8 --p-value .01> AllProgeny-SNPs.txt
NOTA: O arquivo AllProgeny-SNPs.txt é um arquivo de texto delimitado por guia que será usado no Protocolo 3.4 para localizarO SNP causal.
- Converta todos os arquivos BAM (.sort.bam) indexados em um arquivo formatado stackup usando o samtools mpileup com o arquivo de referência do genoma VAND, todos os arquivos .sort.bam da progênie e saída para um arquivo chamado AllProgeny-mpileup.txt:
- Encontre coordenadas do genoma VAND que correspondem às coordenadas do locus QTL baseado em ME49
NOTA: Consulte o Protocolo 3.3 Nota no arquivo complementar 1 .- Use o programa NUMMER MUMmer para alinhar o genoma ME49 (disponível para download a partir de ToxoDB.org 32 ) e o arquivo genoma de referência VAND (saída vai para o arquivo out.delta):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Use o programa MUMmer show-coords para obter as coordenadas dos dois alinhamentos do genoma, saída para um arquivo chamado ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
NOTA: O arquivo ME49vsVAND-coords.txt pode ser usado para encontrar os contigs VAND e as posições que correspondem ao locus QTL; Marcadores MV359 a MV366 localizados no cromossomo IX ME49 entre 3.187.537 e 4.202.258 pb. Existem dois contigs VAND que abrangem o correspLoco QTL; KN044604.1: 657,441-1 pb e KN042501.1: 430,910-41,870 pb (ambos contigs alinham o reverso ao cromossomo ME49).
- Use o programa NUMMER MUMmer para alinhar o genoma ME49 (disponível para download a partir de ToxoDB.org 32 ) e o arquivo genoma de referência VAND (saída vai para o arquivo out.delta):
- Avalie os SNP de progênies localizados dentro do locus QTL para SNPs herdados apenas na progênie SNF r
NOTA: Consulte o Protocolo 3.4 Nota no Arquivo Complementar 1 .- Revise o Arquivo de Dados 3 para identificar a mutação causal localizada dentro do locus QTL. Digitalize os dados para um padrão em que a progênie do SNF tenha um SNP e os SNFs não (viável porque os SNP da progênie foram obtidos em comparação com o genoma de referência do VAND-SNF s ). Isso só deve resultar em uma posição com este padrão, posição 348130 em VAND contig KN042501.1.
- Veja a linha 6604 no Arquivo de Dados 3 ( Figura 3 ).
NOTA: Consulte o Protocolo 3.4.2 Nota no Arquivo Complementar 1 .
4. Verificação de Hits Identificados por CRISPR / Cas9-Iniciativa de genes mediada.
NOTA: Para confirmar o SNP causal identificado pelo mapeamento QTL e a análise WGS SNP, as alterações genéticas correspondentes devem ser feitas em um fundo WT SNF e o fenótipo resultante examinado. No caso da resistência à sinefungina, a mutação responsável resulta na inativação do gene SNR1 pela rescisão antecipada 2 . Portanto, a interrupção do SNR1 pode ser usada para confirmação. Aqui, um protocolo detalhado é fornecido para o uso de mutações indel induzidas por CRISPR / Cas9 para interromper o SNR1 , para demonstrar seu envolvimento na resistência à senofungina ( Figura 4 ).
- Construção de plasmídeo CRISPR específica para SNR1
NOTA: Consulte o Protocolo 4.1 Nota no Arquivo Complementar 1 para obter plasmídeos e mapas.- Obtenha a sequência genômica para o gene alvo ( SNR1 , TGME49_290860) do ToxoDB 32 .
- Use ferramentas on-line como o E-CRISP 33 para projetar gRNAs específicas de destino. Não inclua a sequência PAM (NGG) no gRNA.
NOTA: Consulte o Protocolo 4.1.2 Nota no Arquivo Complementar 1 . - Sintetizar primers para construir o plasmídeo CRISPR específico alvo.
- De acordo com o desenho a partir do passo 4.1.2, sintetizar dois iniciadores para alterar o UPRT visando o gRNA no plasmídeo CRISPR original para a sequência de ARNm selecionada por mutagênese dirigida ao local.
NOTA: As sequências destes dois iniciadores são as seguintes: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNNTTTAGAGCTAGAAATAGC (N20 é a sequência de gRNA específica do alvo) e gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- De acordo com o desenho a partir do passo 4.1.2, sintetizar dois iniciadores para alterar o UPRT visando o gRNA no plasmídeo CRISPR original para a sequência de ARNm selecionada por mutagênese dirigida ao local.
- Realize as reações de mutagênese direcionadas ao site.
- Usando o UPRT que visa o plasmídeo CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) como modelo e os dois iniciadores listados acima, execute reações de mutagênese direcionadas ao siteDe acordo com as instruções do fabricante.
NOTA: Utilize as seguintes condições de ciclagem para PCR: 98 ° C durante 1 min, seguido de 25 ciclos de 98 ° C durante 10 s, 55 ° C durante 30 s e 72 ° C durante 5 min, seguido de extensão final por 2 min. A 72 ° C.
- Usando o UPRT que visa o plasmídeo CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) como modelo e os dois iniciadores listados acima, execute reações de mutagênese direcionadas ao siteDe acordo com as instruções do fabricante.
- Transforme os produtos de mutagênese contendo os plasmídeos CRISPR específicos de GOI para células competentes de E. coli por transformação química de acordo com o protocolo do fornecedor (ver Tabelas de Materiais ). Cresça os transformantes em placas de caldo de lisogenia (LB) contendo ampicilina (100 μg / mL) a 37 ° C. Posteriormente, escolha 2-4 clones e crie-os individualmente em 5 mL de meio LB suplementado com 100 μg / mL de ampicilina por 12-16 h.
- Extraia plasmídeos das culturas usando um kit de isolamento de DNA e analise-os por eletroforese em gel de DNA para verificar o tamanho dos plasmídeos (o tamanho plasmídico esperado é de 9674 pb, use o plasmídeo CRISPR original como cOntrol). Use o iniciador M13-Rev (5'-CAGGAAACAGCTATGACC) para seqüenciar os plasmídeos para confirmar a sequência específica de gRNA alvo.
- Uma vez que os clones positivos são identificados, armazene o DNA do plasmídeo a -20 ° C e a cultura bacteriana correspondente a -80 ° C para uso futuro.
NOTA: O plasmídeo CRISPR a ser utilizado para transfecção deve ser dissolvido em água desionizada e a concentração determinada por espectrofotometria ou um método alternativo.
- Uma vez que os clones positivos são identificados, armazene o DNA do plasmídeo a -20 ° C e a cultura bacteriana correspondente a -80 ° C para uso futuro.
- Extraia plasmídeos das culturas usando um kit de isolamento de DNA e analise-os por eletroforese em gel de DNA para verificar o tamanho dos plasmídeos (o tamanho plasmídico esperado é de 9674 pb, use o plasmídeo CRISPR original como cOntrol). Use o iniciador M13-Rev (5'-CAGGAAACAGCTATGACC) para seqüenciar os plasmídeos para confirmar a sequência específica de gRNA alvo.
- Transfecção por parasita.
NOTA: métodos gerais para cultivar T. gondii em células HFF em meio D10 foram descritos anteriormente 34 .- Dois a três dias antes da transfecção, adicione parasitas suficientes a um balão T25 contendo uma monocamada confluente de células HFF (0,5-1 x 10 6 para cepas de tipo 1, 1-2 x 10 6 para outras estirpes) para atingir 70 a 80% de células HFF Lise dentro de 2-3 d.
- ExamiA cultura sob um microscópio de contraste de fase invertida, quando a monocamada HFF é de 70-80% lisada pelos parasitas. Retire suavemente o meio com uma pipeta e lave as células da superfície do balão com 5 mL de tampão de citomele (KCl 120 mM, CaCl2 a 0,15 mM, K2 HPO 4 10 mM / KH2PO4 10 mM pH = 7,6, HEPES 25 mM, 2 MM de EDTA, 5 mM de MgCl2, pH = 7,6). Posteriormente, transfira a solução parasitária para um tubo cônico de 15 mL.
NOTA: Consulte o Protocolo 4.2.2 Nota no Arquivo Complementar 1 . - Passe a solução de parasita através de uma seringa de 10 mL / agulha 22 g com agulha 2-3x.
- Filtre a solução parasitária em um novo tubo cônico através de uma membrana com tamanho de poro de 3 μm para remover células HFF e detritos celulares.
- Granular os parasitas filtrados por centrifugação a 400 xg durante 10 min.
- Despeje o sobrenadante e ressuspenda os parasitas granulados com 10 mL de tampão de cittomix, pegue uma alíquota de 10 μL para detArminar a concentração parasitária com um hemocitómetro e sedimentar o resto por centrifugação a 400 × g durante 10 min.
- Remova o sobrenadante e ressuspenda o grânulo em tampão de citomele para obter uma densidade de 4 x 10 7 parasitas / mL.
- Em uma cubeta de intervalo de 4 mm, misture 250-300 μL de solução parasitária (1-1.3 x 10 7 parasitas) com 7,5 μg de plasmídeo CRISPR, 6 μL de ATP (100mM) e 6 μL de glutationa (GSH) (250 mM).
- Electroporar os parasitas 35 . Inclua uma eletroporação separada como um controle negativo em que um plasmídeo CRISPR segmenta em outros lugares, como o UPRT que visa o plasmídeo CRIPSR.
NOTA: As configurações de eletroporação dependem do dispositivo. Para o eletroporador listado nos Materiais utilize as cuvetes de 4 mm de intervalo. Recomenda-se o seguinte protocolo: 1.700 V, 176 μs de comprimento de pulso, 2 pulsos com intervalo de 100 ms.
- Determine a freqüência do resista de sinefunginaDepois da segmentação CRISPR.
- Células HFF de sementes para lamínulas colocadas em placas de 24 poços 3-4 d antes da eletroporação, de modo que estejam confluentes no momento de realizar a transfecção em 4.2.
- Tripsilize as células HFF de um balão T25 confluente e, posteriormente, adicione 12 mL de meio D10 e misture bem.
- Adicione um lamínula a cada poço de uma placa de 24 poços e uma solução alíquota de 500 μL de células HFF para cada poço. Incubar a placa a 37 ° C durante 3 4 d para permitir que as células cresçam até confluir.
NOTA: As células de um balão T25 são suficientes para semear uma placa de 24 poços. - Adicione 50 μL de solução de parasita eletroporada do passo 4.2.9 em um poço de placa de 24 poços contendo uma lamínula semeada com células HFF confluentes. Transfira o resto da solução parasitária eletroporada para um balão T25 semeado com células HFF confluentes.
- Avalie a eficiência da transfecção.
- Cresça as células na placa de 24 poços por 24 hE posteriormente consertar as células (células hospedeiras e parasitas) com 500 μl de formaldeído a 4% para verificar a expressão de Cas9-GFP por ensaio imunofluorescente (IFA).
- Sonda as células com um anticorpo anti-GFP e um anticorpo específico Toxoplasma (como anti-TgALD) para rotular parasitas totais. Veja a folha do produto de anticorpos para a diluição recomendada (geralmente, 1: 1000 é suficiente para IFAs). Se os anticorpos não são conjugados, use dois anticorpos secundários diferentes conjugados com corantes fluorescentes para rotular os anticorpos primários.
- Observe as células rotuladas em um microscópio fluorescente com filtros apropriados para os corantes secundários fluorescentes. Obtenha eficiência de transfecção dividindo o número de parasitas GFP positivos pelo número de parasitas totais.
NOTA: Os dois anticorpos utilizados para IFA devem ser provenientes de duas espécies hospedeiras diferentes, por exemplo, usando a combinação de anti-GFP de mouse e anti-TgALD de coelho.
- Determine o fResistência à sinefungina em parasitas transfectados.
- Para os parasitas transfectados cultivados em frascos T25, crie-os por 2-3 dias até a saída natural. Em seguida, colete os parasitas, agulha sem corte, lie células hospedeiras para libertar parasitas intracelulares e purifiquem-nas por filtração através de membranas com tamanho de poro de 3 μm. Conte os parasitas com um hemocitómetro para estimar a densidade.
- Adicione parasitas purificados em placas de 6 poços semeadas com células HFF confluentes: para a primeira fila (3 poços), adicione 200 parasitas / poço e cresça-as em meio D10 regular (2 mL / poço); Para a segunda fila, adicione 5000 parasitas / poço e cresça-os em meio D10 contendo 0,3 μM de sinefungina.
- Coloque as placas em uma incubadora de CO 2 a 5% e aumente os parasitas a 37 ° C 8-10 d sem perturbações para permitir a formação de placas. Corrija as amostras com 70% de etanol (2 mL / poço) e coloque a monocamada com 0,1% de violeta de cristal (2 mL / poço). Lave os poços com água para visualizarAs placas (zonas claras) formadas pelo crescimento do parasita.
NOTA: O controle negativo deve ser processado da mesma maneira lado a lado.
- Calcule a taxa de resistência a sinefungina induzida pelo CRISPR.
- Obtenha o número médio (X) de placas de poços que não contenham nenhum medicamento e calcule a viabilidade do parasita como X / 200. Obtenha o número médio (Y) de placas de poços contendo sinefungina para calcular a taxa de resistência a sinefungina induzida pelo CRISPR como segue:
Taxa de resistência induzida por CRISPR = 200 × Y / (eficiência de transfecção 5000 × X ×)
NOTA: A eficiência da transfecção é obtida a partir de 4.3.2.
- Obtenha o número médio (X) de placas de poços que não contenham nenhum medicamento e calcule a viabilidade do parasita como X / 200. Obtenha o número médio (Y) de placas de poços contendo sinefungina para calcular a taxa de resistência a sinefungina induzida pelo CRISPR como segue:
- Células HFF de sementes para lamínulas colocadas em placas de 24 poços 3-4 d antes da eletroporação, de modo que estejam confluentes no momento de realizar a transfecção em 4.2.
- Examine as mutações indel induzidas por CRISPR / Cas9
- Cultive os parasitas eletroporados da seção 4.2.9 em um balão T25 semeado com células HFF durante 2 dias a 37 ° C. Em seguida, substitua o meio com 5 mL de meio D10 contendo 0,3 μM de sinefungina (meio de seleção).
- Mantenha os parasitas em meio de seleção para pelo menos 3 passagens até o grupo resistente ficar estável (indicado pela ausência de crescimento de parasitas no grupo de controle negativo, mas crescimento robusto do parasita no grupo experimental).
- Subclone o conjunto resistente à sinefungina para obter cepas clonais.
- Recolher parasitas recentemente escoados, purificar por filtração de membrana de 3 μm e subclone em placas de 96 poços semeadas com células HFF confluentes em 150 μL de meio D10. Crescer as culturas de subclonagem em uma incubadora de CO 2 a 37 ° C durante 7 a 10 d sem perturbar as placas.
NOTA: Consulte o Protocolo 4.4.2.1 Nota no arquivo 1 da Upplementary .
- Recolher parasitas recentemente escoados, purificar por filtração de membrana de 3 μm e subclone em placas de 96 poços semeadas com células HFF confluentes em 150 μL de meio D10. Crescer as culturas de subclonagem em uma incubadora de CO 2 a 37 ° C durante 7 a 10 d sem perturbar as placas.
- Verifique as placas de 96 poços sob um microscópio inverso de contraste de fase para procurar poços que contenham apenas uma placa. Marque esses poços e, posteriormente, transfira as células de cada poço para placas de 24 poços semeadas com células HFF usando uma pipeta.
- Quando 80-90% das células HFF em um poço são lisadas, colher os parasitas (cerca de 500 μL) e passar 50 μL de solução parasitária para um novo poço para manter a tensão. Use o resto (≈ 450 μL) para extrair DNA genômico para amplificação por PCR.
- Para o isolamento de DNA genômico do clone SNF r , pellet os parasitas (pequenas quantidades de contaminação celular HFF é tolerável) a 1000 xg durante 10 min. Lavar os parasitas em peletes com solução salina tamponada com fosfato (PBS) uma vez e pellet-los novamente. Isolar DNA genômico a partir de células sedimentadas usando um kit comercial ou por ferver. Ressuspender parasitas em 50-100 μL de PBS.
NOTA: Execute a PCR para obter um fragmento do gene SNR1 para seqüenciamento. Use os seguintes iniciadores para amplificar o locus 2 SNR1: SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC e SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Use polimerases de DNA de alta fidelidade. Amplifique o locus WT para fins de controle.
- Para o isolamento de DNA genômico do clone SNF r , pellet os parasitas (pequenas quantidades de contaminação celular HFF é tolerável) a 1000 xg durante 10 min. Lavar os parasitas em peletes com solução salina tamponada com fosfato (PBS) uma vez e pellet-los novamente. Isolar DNA genômico a partir de células sedimentadas usando um kit comercial ou por ferver. Ressuspender parasitas em 50-100 μL de PBS.
- Executar tEle PCR com 20 μL de volume de reação e executá-lo com o seguinte programa: 98 ° C durante 1 min, seguido de 30 ciclos de 98 ° C durante 10 s, 55 ° C durante 30 s e 72 ° C durante 2,5 min, seguido por Extensão final por 2 minutos a 72 ° C.
NOTA: Seqüência os produtos de PCR usando os seguintes iniciadores: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC e SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Compare as sequências do gene SNR1 de mutantes resistentes a sinefungina à da estirpe WT usando uma ferramenta de alinhamento de seqüência.
NOTA: Consulte o Protocolo suplementar 2 Protocolo 2 para detalhes sobre a utilização da seleção negativa no locus SNR1 para complementação genética ou construção de deformação transgênica.
- Cultive os parasitas eletroporados da seção 4.2.9 em um balão T25 semeado com células HFF durante 2 dias a 37 ° C. Em seguida, substitua o meio com 5 mL de meio D10 contendo 0,3 μM de sinefungina (meio de seleção).
Resultados
Este artigo descreve detalhadamente vários métodos que podem ser usados em sucessão para identificar um gene responsável pela resistência aos medicamentos ( Figura 1 ). A progênie 24 do cruzamento ME49-FUDR r X VAND-SNF r foi avaliada quanto à resistência ao fármaco sinefungina como descrito no Protocolo 1. Usando o mapa genético e o fenótipo SNF r da progênie, uma varredura QTL foi administrada em R / Qtl - Protocolo 2 ( Figura 2 ). Isso resultou em um pico significativo no cromossomo IX que abrange aproximadamente 1 Mbp. É nessa região que a mutação causal está localizada.
Para identificar a mutação causal, as leituras WGS da progênie foram alinhadas ao genoma de referência do VAND-SNF usando Bowtie2 - Protocolo 3.1, os SNPs foram chamados usando VarScan mpileup2snp - Protocolo 3.2 e o locus QTL no genoma VAND foi identificado usando MUMmer - ProtocOl 3.3. Os SNPs de progênie dentro do locus QTL foram extraídos e escaneados para um padrão em que a progênie do SNF possui SNP e SNFs não, o que é viável porque os SNP de progênie foram obtidos em comparação com o genoma de referência do VAND-SNF ( Figura 3 ) . Apenas um SNP corresponde a este padrão que resulta em um codão de parada precoce em um gene transportador de aminoácidos putativo chamado SNR1 .
A confirmação de que SNR1 é o gene da resistência SNF foi realizada usando o sistema CRISPR / Cas9. Um novo plasmídeo CRISPR / Cas9 projetado para a edição de genes de T. gondii foi feito contendo um gRNA visando o gene SNR1 perto da mutação SNF r identificada na progênie - Protocolo 4 ( Figura 4A ). O plasmídeo CRISPR / Cas9 de SNR1 foi submetido a electroporação em uma estirpe de parasita WT de SNF e foram obtidos mutantes resistentes quando o cultoEm 0,3 μM de sinefungina. Nenhum parasita SNF foi obtido quando eletroporizado com o UPRT visando o plasmídeo CRISPR / Cas9. Vários mutantes SNF r CRISPR foram clonados e a região em torno do alvo SNR1 gRNA foi sequenciada. Cada mutante tinha um indel que interrompeu a sequência de codificação do gene SNR1 ( Figura 4B ). Este método também pode ser usado para inserir uma construção de segmentação no locus SNR1 via NHEJ ( Figura 5), ou por HR ( Figura 6 ) - Arquivo Suplementar 2 .
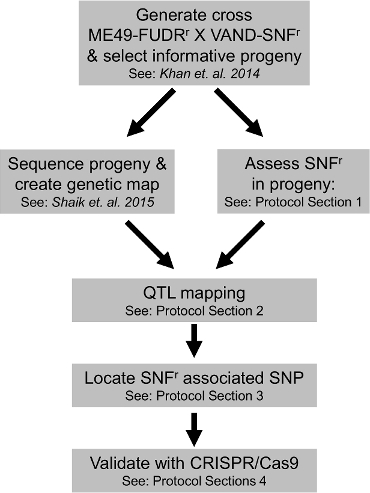
Figura 1: Fluxo de trabalho esquemático para experiências descritas nos protocolos. Os principais passos na identificação e confirmação do gene SNF r usando a cruz ME49-FUDR r X VAND-SNF r são mostrados com referência aos protocolos apropriados descritos em tSeu artigo. Clique aqui para ver uma versão maior desta figura.
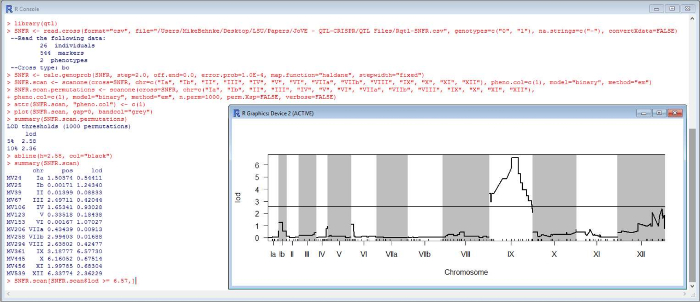
Figura 2: Comandos R / qtl para executar o QTL Scan no fenótipo SNF r . Os comandos descritos no Protocolo 2 foram executados em R usando o pacote qtl. Os comandos representativos e o enredo são mostrados. Clique aqui para ver uma versão maior desta figura.
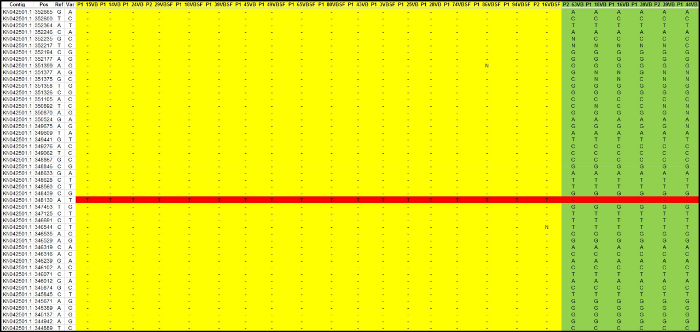
Figura 3: Localização do SNP causal. Progênie As leituras WGS foram alinhadas ao genoma de referência do VAND-SNF com Bowtie 2, os SNPs foram chamados com VarScan e os correspondentes Localizador VAND QTL identificado com MUMmer. Os SNP localizados dentro do locus QTL foram importados para uma planilha e o SNP causal foi identificado. SNF r progênie (amarelo), SNF s progênie (verde), SNF r SNP (vermelho) (consulte o Arquivo de Dados 3 ). Clique aqui para ver uma versão maior desta figura.
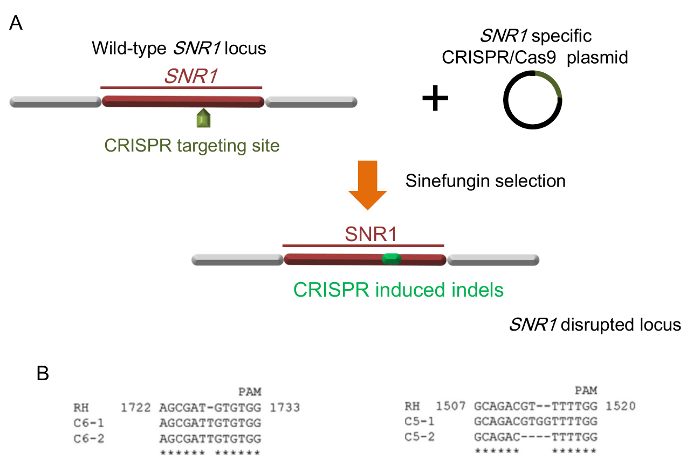
Figura 4: Confirmação de SNR1 como SNF r Gene usando CRISPR / Cas9. ( A ) mutações indel induzidas por CRISPR / Cas9 (verde) no locus SNR1 . ( B ) Indels representativos em SNR1 causados por dois plasmídeos CRISPR específicos de SNR1 (C5 e C6, respectivamente). RH é a estirpe WT e C5 e C6 são mutantes SNF r . (B é retirado da referênciaS = "xref"> 2). Clique aqui para ver uma versão maior desta figura.
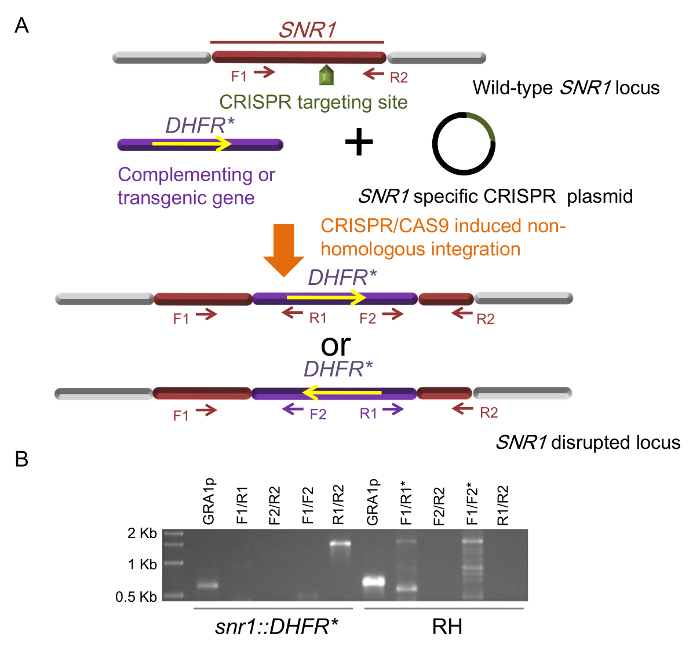
Figura 5. Mutagênese Insertiva usando CRISPR / Cas9. ( A ) Inserção de genes complementares ou transgênicos no locus SNR1 pela integração com o site mediado pelo CRISPR / Cas9. Duas possíveis orientações do mini gene DHFR * inserido e os iniciadores utilizados para identificação, F1 / 2 e R1 / 2 representam os locais de iniciação de oligos utilizados em PCRs de diagnóstico. ( B ) PCRs de diagnóstico de um clone snr1 :: DHFR * , RH é usado como um controle WT. O PCR do GRA1p é incluído como um controle que verifica a qualidade do DNA genômico como modelos. Os asteriscos indicam pistas com bandas inespecíficas (a Figura 5B é retirada da referênciaCe 2 ). Clique aqui para ver uma versão maior desta figura.
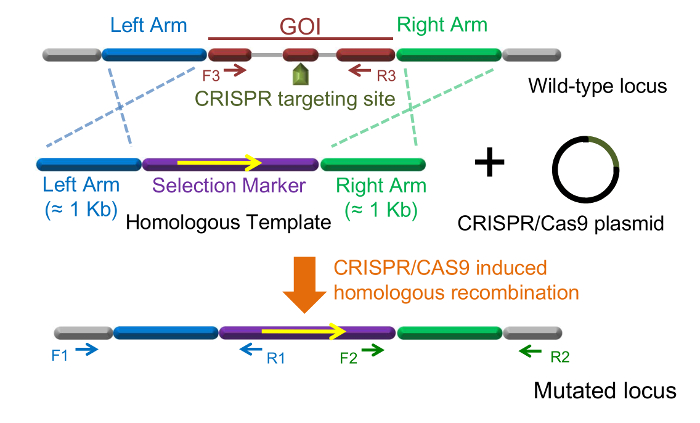
Figura 6: Knockout de genes usando CRISPR / Cas9. Um design clássico para CRISPR / Cas9 mediada em substituição de genes homólogos em T. gondii . A orientação do transgene inserido é fixada neste caso. F1 / R1, F2 / R2 e F3 / R3 representam os locais de iniciação de oligos utilizados em PCRs de diagnóstico. Clique aqui para ver uma versão maior desta figura.
Arquivo de dados 1: ME49-FUDR r X VAND-SNF r Arquivo cruzado fOu use em formato R / qtl, "csv". Um arquivo .csv que pode ser carregado em R / qtl com a opção format = "csv". Clique aqui para baixar este arquivo.
Arquivo de dados 2: (chrid txt, genotype txt, markerpos.txt, mname.txt, phenonames.txt e phenos.txt). ME49-FUDR r X VAND-SNF r Arquivos cruzados para uso no formato R / qtl, "gary". Seis arquivos .txt que podem ser carregados em R / qtl com a opção format = "gary". Clique aqui para baixar este arquivo.
Arquivo de dados 3. Folha de cálculo com SNP de progênie através do SNF r QTL Locus. Contém uma planilha com SNP de progênies e uma segunda planilha com os dados fenotípicos dos pais e progenitura da cruz. Clique aqui para baixar este arquivo.
Arquivo suplementar 1: Detalhes adicionais do protocolo. Clique aqui para baixar este arquivo.
Arquivo Suplementar 2: Protocolo 5 - Utilização de Seleção Negativa no Locus SNR1 para Complementação Genética ou Construção de Cotações Transgênicas. Clique aqui para baixar este arquivo.
Discussão
Estes protocolos apresentam vários métodos que, quando combinados, permitem a identificação de um gene de resistência a fármacos em T. gondii . Dois em particular eram parte integrante do projeto, o método relativamente temperado de mapeamento QTL e o método recentemente desenvolvido de edição de genes CRISPR / Cas9. Lander e Botstein publicaram seu papel influente em 1989, demonstrando mapeamento QTL que correlaciona loci genéticos com fenótipos 36 . Mais recentemente, em 2012, Dounda e Charpentier descreveram o sistema de edição CRISPR / Cas9 em Streptococcus pyogenes 22 que foi rapidamente adaptado como uma ferramenta genética em muitos modelos diferentes, incluindo T. gondii 13 , 17 . Ambos os métodos foram úteis aqui, onde o mapeamento QTL definiu o locus que contém a mutação de resistência ao fármaco que foi finalmente identificada usando a detecção SNP baseada em WGS, e a edição CRISPR / Cas9 forneceu o eu Para confirmar SNR1 é o gene de resistência a fármacos de sinefungina.
O ME49-FUDR r X VAND-SNF r cross 8 foi desenvolvido originalmente para interrogar um fenótipo de virulência 19 , mas as cepas parentais também tiveram uma diferença fenotípica adicional para a qual o gene causal não era conhecido, a resistência à senofungina no pai VAND. Isso destaca um benefício de cruzamentos na medida em que eles podem ser repurposados quando diferenças fenotípicas adicionais nos pais são observadas. Este foi o caso de outra cruz de Toxoplasma , tipo 2 x tipo 3, onde vários genes envolvidos em virulência foram encontrados pelo mapeamento de múltiplos fenótipos 37 , 38 , 39 , 40 . Até à data, quatro cruzamentos diferentes de T. gondii foram descritos e utilizados para mapear genes responsáveis por fenótiposSs = "xref"> 8 , 37 , 41 , 42 , todos os quais podem ser reutilizados para mapear novos fenótipos para os quais a base genética é desconhecida. Nessa linha, os genomas para 62 cepas de T. gondii que representam a diversidade genética global conhecida foram sequenciados 43 . Novas cruzes poderiam ser feitas a partir deste grupo para cepas que diferem em fenótipos interessantes. Tendo exalado as vantagens do mapeamento QTL, é preciso dizer que gerar uma cruz não é uma empresa menor. Existem outros métodos que podem ser usados para identificar genes causais. Uma técnica poderosa usa mutagênese química para criar mutantes que podem ser rastreados para fenótipos. Para encontrar o gene causal, os mutantes podem ser complementados com bibliotecas de cosmídeos 44 ou os métodos de reséquitância do genoma podem ser usados para encontrar a mutação causal 45 . Por moVeja isso, veja dois artigos JoVE de Coleman et al. E Walwyn et al. Que descrevem essas abordagens 46 , 47 .
Muitas das etapas que conduzem à identificação da mutação SNF causal (Protocolos 2 e 3) dependem de métodos computacionais realizados com software livremente disponível para uso acadêmico. Os comandos detalhados para cada passo são fornecidos e, quando executados com os arquivos adequados, o usuário poderá recriar os conjuntos de dados necessários para encontrar SNF causal SNP. Tenha em mente que algumas das sintaxe nos comandos referem-se a nomes de arquivos ou estrutura de diretório ($ PATH) que podem ser modificados para a preferência do usuário. Embora os comandos fornecidos aqui certamente não esgrimem as formas em que se pode analisar uma cruz com análise QTL e identificação SNP baseada em WGS, eles são suficientemente abrangentes para repetir a experiência descrita neste artigo e devem permitir que o usuário se torne m Saiba como essas abordagens são utilizadas de forma gradual.
Embora o mapeamento QTL e a detecção de SNP baseada em seqüência WGS fossem suficientes para identificar um gene SNF r candidato, são necessárias experiências adicionais para confirmar seu papel na resistência a medicamentos. Isso pode ser demonstrado de forma convincente através de técnicas de interrupção do gene ou knockout, ambas as quais podem ser alcançadas usando a edição de genes CRISPR / Cas9. Métodos detalhados para usar CRISPR / Cas9 para gerar mutações de indel ou inserir construções transgênicas em um gene alvo em T. gondii são fornecidos. A especificidade de segmentação que o CRISPR / Cas9 fornece aumenta a eficiência da edição de genes em relação aos métodos tradicionais. Além disso, isso aumentou de forma eficiente possibilitou a utilização de estirpes não laboratoriais adaptadas para estudos genéticos que anteriormente eram difíceis de modificar 13 . Embora em sua infância, CRISPR / Cas9 já foi usado para fazer interrupções de genesLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , marcam os genes 17 e fazem os knockouts de genes 16 , 19 , 50 , 51 , 52 , 53 , 54 em T. gondii , prometendo ser uma ferramenta útil Para muitos outros estudos no futuro.
A descoberta de que a inativação de SNR1 leva à resistência a sinefungina torna o locus SNR1 um site promissor para inserção de transgenes ou complementação genética. Para maximizar o sucesso da utilização da segmentação gênica mediada por CRISPR / Cas9 para direcionar a integração do transgene no locus SNR1 , os seguintes aspectos devem ser consideradosVermelho durante o desenho experimental. Primeiro, recomenda-se que um marcador de seleção seja incluído na construção transgênica para aumentar a eficiência da construção da deformação. Se um marcador de seleção estiver incluído, pode-se usar seleção positiva e negativa, resultando em quase 100% dos parasitas duplamente selecionados sendo transgênicos com o GOI integrado no locus SNR1 . Em contraste, se a construção transgênica não contém traços selecionáveis adicionais e depende da seleção negativa no locus SNR1 , a eficiência da transgênese bem sucedida depende em grande parte da eficiência da cotransfecção do plasmídeo CRISPR e da construção transgênica.
Em segundo lugar, embora a integração direta do local mediada pelo CRISPR / Cas9 de um fragmento de DNA não homólogo seja freqüentemente utilizada para a complementação e transgênese, deve-se notar que a orientação da inserção não pode ser garantida em casos tais que qualquer direção seja possível. Isso pode representar problemasMs para algumas aplicações. Por exemplo, para complementar um mutante com diferentes alelos de genes, é difícil garantir que todos os alelos sejam inseridos na mesma orientação e discrepâncias na orientação podem causar diferenças de expressão. Para este tipo de aplicação, são recomendadas construções de DNA com sequências homólogas ao locus SNR1 , o que conduzirá a orientação de integração adequada ( Figura 6 ).
Em terceiro lugar, durante a transfecção, a relação entre o plasmídeo CRISPR e a molécula de DNA transgênico é crítica para o sucesso da construção de deformação transgênica. Essa relação precisa ser ajustada de acordo com as estratégias de seleção. Recomenda-se as seguintes diretrizes: 1) Se a construção transgênica contém um marcador resistente ao medicamento e a droga correspondente é a única seleção usada para gerar parasitas transgênicos, ou seja , a sinefungina não é utilizada, a proporção molar sugerida entre a construção transgênica e o plasmídeo CRISPRId é 1: 5. O uso de mais plasmídeo CRISPR neste caso aumenta a probabilidade de que os parasitas que recebem a construção transgênica também receberão o plasmídeo CRISPR, portanto, os parasitas resistentes a fármacos são mais propensos a ter o marcador inserido no site de direcionamento CRISPR. Se a razão for invertida, a maioria dos parasitas que receberão a construção transgênica não receberá o plasmídeo CRISPR. Como conseqüência, a grande maioria dos parasitas resistentes aos fármacos obtém a construção transgênica por meio de integração aleatória não associada à inserção específica do site mediada por CRISPR / CAS9. 2) Se a construção transgênica contém um marcador resistente ao fármaco e o medicamento correspondente é usado junto com a sinefungina para selecionar parasitas transgênicos, a proporção molar sugerida entre a construção transgênica e o plasmídeo CRISPR é de 1: 1. Esta estratégia fornece a maior eficiência de construção de deformação transgênica. 3) Se a construção transgênica não contiver um criador selecionável, dependendo da seleção negativaPor sinefungin sozinho para obter parasitas transgênicos, a proporção molar sugerida entre a construção transgênica e o plasmídeo CRISPR é de 5: 1. O raciocínio para este projeto é o mesmo que na primeira diretriz acima. Uma vez que tanto a pirimetamina quanto a sinefungina foram utilizadas para seleção no Protocolo 5, a proporção entre o mini-gene DHFR * e o plasmídeo CRISPR visando SNR1 foi estabelecida como 1: 1.
Em conjunto, os métodos descritos aqui têm um nível de detalhe que não foi possível transmitir na publicação original que identificou SNR1 2 . Esses protocolos; Especificamente, a sintaxe da linha de comando, o layout seqüencial dos programas utilizados e o uso de CRISPR / Cas9 devem ajudar futuros esforços para identificar novos genes responsáveis por fenótipos.
Divulgações
Os autores declaram que não têm interesses financeiros concorrentes.
Agradecimentos
Gostaríamos de agradecer L. David Sibley e Asis Khan por sua contribuição para a publicação original sobre a qual esses protocolos se baseiam. Este trabalho foi financiado pelo National Institutes of Health grant AI108721.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Frascos T25 | Corning | 430639 | |
| Fibroblastos do Prepúcio Humano (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 cepa | ATCC | 50840 | |
| T. gondiiVAND cepa | ATCC | PRA-344 | |
| DMEM (Sem Bicarbonato de Sódio) | Ciências da Vida | 12800017 | |
| Bicarbonato de Sódio | Sigma | Aldrich S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Soro Fetal Bovino (FBS) Grau Premium | VWR International | 97068-085 | |
| L-Glutamina 200 | mM Sigma Aldrich | G7513 | |
| Gentamicina (10 mg/mL) | Life Technologies | Raspador de | |
| Células 15710064 para Frascos | VWR International | 10062-904 | |
| Seringa 10 mL | BD | 309604 | |
| Agulhas rombas 22 G x 1" | Produtos BRICO | BN2210 | |
| Filtro de Nucleporos 3.0 µ m, 25 mm | de | GE Healthcare | |
| 25 mm | Propper de | 420200 | |
| MFG | 90001 | ||
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | A Fundação R | https://www.r-project.org/ | |
| J/qtl | O Grupo Churchill | http://churchill.jax.org/software/jqtl.shtml | |
| Gravata Borboleta2 | Universidade John Hopkins | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Instituto Wellcome Trust Sanger | http://www.htslib.org/ | |
| VarScan | Universidade de Washington, St Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii Plasmídeo CRISPR para cortar o gene UPRT |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii Plasmídeo CRISPR para cortar o gene TG*_290860 SNR1 |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | Modelo para DHFR* mini gene |
| Q5 Site-Directed Mutagenesis Kit | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Caldo | Fisher Scientific | DF0446-07-5 | |
| Cloreto de potássio | Sigma Aldrich | P9541 | |
| Cloreto de cálcio | Sigma Aldrich | 746495 | |
| Fosfato de potássio monobásico | Sigma Aldrich | P9791 | |
| Fosfato de potássio dibásico | Sigma Aldrich | P5504 | |
| EDTA | Sigma | Aldrich E5134 | |
| Cloreto de magnésio | Sigma Aldrich | M1028 | |
| Trilossato de adenosina (ATP) | Sigma Aldrich | A6419 | |
| L-glutationa (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Sistema de Eletroporação | BTX | 45-0002 | |
| Cubeta de Eletroporação 4 mm | Harvard Apparatus | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| Placa TC de 6 poços | Corning | 353046 | |
| Placa TC de 24 poços | Corning | 353935 | |
| Vidro de cobertura redondo de 12 mm | VWR International | 89015-724 | |
| Placa TC de 96 poços | Corning | 353075 | |
| Kit de Clonagem de Montagem Gibson (Multi-fragmento) | New England Biolabs | E5510S | |
| Q5 Polimerase de Alta Fidelidade | New England Biolabs | M0491S | |
| Pirimetamina | TCI AMÉRICA | P2037-1G | Use cuation ao usar parasitas resistentes à pirimetamina - consulte o protocolo |
Referências
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Reimpressões e permissões
