Condicionamento de rastreamento eyeblink clássico (ECC) foi utilizado para avaliar aprendizagem associativa de hipocampo-dependente em ratos adultos que foram administrados uma alta concentração (11,9% v/v) de álcool durante o desenvolvimento cerebral neonatal precoce. Em geral, procedimentos ECC são som ferramentas de diagnóstico para a detecção de disfunção cerebral em muitas configurações psicológicas e biomédicas.
Artigo de método
O uso do condicionamento de rastreamento Eyeblink clássico para avaliar disfunção Hippocampal em um modelo do rato de transtornos do espectro do álcool Fetal
Neste artigo
Resumo
Resumo
Foram administrados a ratos neonatais relativamente alta concentração de álcool etílico (11,9% v/v) durante dias pós-natal 4-9, quando o cérebro do feto passa por rápida mudança organizacional e é semelhante ao acelerado alterações cerebrais que ocorrem durante o terceiro trimestre em seres humanos. Este modelo de transtornos do espectro do álcool fetal (FASDs) produz danos cerebrais graves, imitando a quantidade e o padrão de esporádico que ocorre em algumas gestantes alcoólicas. Nós descrevemos o uso de rastreamento eyeblink condicionamento clássico (ECC), uma variante de ordem superior de aprendizagem associativa, para avaliar a disfunção hippocampal a longo prazo que é normalmente vista na prole adulta expostas ao álcool. Com 90 dias de idade, roedores foram cirurgicamente preparados com gravação e eletrodos estimulantes, que medida eletromiográfica (EMG) piscarem a atividade do músculo da pálpebra esquerda e entregues leve choque posterior para o olho esquerdo, respectivamente. Após um período de recuperação de 5 dias, eles foram submetidos a 6 sessões de rastreamento ECC para determinar as diferenças de aprendizagem associativa entre álcool-expostos e ratos controlam. Rastreamento de ECC é um dos muitos procedimentos ECC possíveis que podem ser facilmente modificados usando o mesmo equipamento e software, para que podem avaliar diferentes sistemas neurais. ECC procedimentos em geral, podem ser usados como ferramentas de diagnóstico para a detecção de patologia neural no cérebro de diferentes sistemas e diferentes condições que insultar o cérebro.
Introdução
É bastante difícil imaginar que, nos dias atuais, com melhores cuidados médicos e acesso a serviços de saúde, o abuso de álcool ainda permaneça como uma grande preocupação para a saúde global. Infelizmente, demonstrou-se que uma mãe grávida que consome uma grande quantidade de álcool pode ter um filho com graves danos cerebrais e transtornos neurodesenvolvimentais que duram a vida inteira, como evidenciado nos casos de síndrome alcoólica fetal (SAF)1,2,3. Em mulheres com algum histórico confirmado de consumo materno de álcool, o feto em desenvolvimento também é suscetível a pequenas quantidades de álcool ou a diferentes padrões de consumo que produzem variações nas concentrações sanguíneas de álcool. Nesse último caso, embora as crianças possam não apresentar as graves alterações morfológicas ou neurocomportamentais observadas na SAF, ainda podem exibir deficiências cognitivas e distúrbios emocionais ao longo da vida, variando de leves a graves3,4. Em conjunto, a SAF e formas menos graves de distúrbios pré-natais mediados pelo álcool constituem um conjunto de transtornos do espectro alcoólico fetal (TEAF). Não é surpresa que os TEAF sejam completamente preveníveis, mas, surpreendentemente, estimativas indicam que em populações onde o abuso de álcool é bastante comum, eles continuam sendo a principal causa não genética de deficiência neural e cognitiva, afetando cerca de 2% a 5% das crianças jovens nos Estados Unidos e em países europeus como França e Suécia. Com relação à incidência apenas da SAF nos Estados Unidos, a prevalência é de 2 a 7 casos por 1.000 nascidos vivos5, o que implica que a incidência geral dos TEAF seja muito maior do que a da SAF.
Estudos de neuroimagem realizados em crianças com TEAF mostraram que elas apresentam anormalidades cerebrais, como um corpo caloso mais fino6, um vermis cerebelar anterior menor7 e um hipocampo menor8. Essas anormalidades cerebrais são responsáveis por algumas das alterações neurocognitivas de longo prazo observadas em crianças com TEAF. As conexões exatas que relacionam as variações nas alterações cerebrais mediadas pelo álcool materno e as variações no perfil (ou seja, tipo, extensão) de determinados prejuízos neurocognitivos ainda não foram claramente determinadas. No entanto, como ponto de partida, o hipocampo é um excelente candidato para determinar sua suscetibilidade aos efeitos pré-natais do álcool. De fato, crianças com TEAF exibem déficits em comportamentos mediados pelo hipocampo, como aprendizado de localização9,10 e recordação tardia de objetos11.
Modelos de roedores para TEAF demonstraram ser inestimáveis para elucidar os mecanismos que levam às perturbações neurocognitivas observadas em crianças com TEAF. Um modelo bem estabelecido de exposição aguda que adotamos envolve a administração de álcool a ratos durante os dias pós-natais 4-912,13, um período em que o cérebro passa por uma rápida formação de sinapses e contatos dendríticos, comparável à semana fetal 24 em humanos e que se estende até o 3º trimestre14,15,16,17. Esse modelo específico induz perda significativa de neurônios no hipocampo18,19 e em diversas outras regiões cerebrais, como o cerebelo12,13,14,15,16,17,18,19,20,21,22,23, acompanhada por graves prejuízos em funções cognitivas que abrangem diferentes domínios21,24,25. A perturbação cognitiva decorrente da exposição precoce ao álcool em ratos pode ser avaliada de diversas formas, particularmente por meio do condicionamento clássico da piscada palpebral (CCPP). O CCPP é um paradigma utilizado há mais de um século para investigar cientificamente as bases fundamentais da aprendizagem26,27 e, como tal, fornece um método útil para compreender melhor as consequências neurocognitivas adversas resultantes da exposição fetal ao álcool. Trata-se de um paradigma muito flexível que permite aos pesquisadores utilizar uma variedade de procedimentos diferentes de CCPP, cada um dos quais pode ser examinado em diversas espécies de mamíferos ao longo da escala filogenética (de camundongos a humanos) e em diferentes fases do desenvolvimento cerebral28,29,30,31. Além disso, os circuitos neurais fundamentais que medeiam a aprendizagem associativa nesse paradigma são respaldados por relatos experimentais e neuropsicológicos nessas mesmas espécies26,32,33,34,35,36,37.
Uma forma de ECC, a ECC de traço, é demonstrada neste artigo (Figura 1). Para fornecer contexto, ela é comparada com a forma mais tradicional — a ECC de atraso. O paradigma de ECC foi modelado com base no condicionamento clássico com cães, primeiramente realizado pelo fisiologista vencedor do Prêmio Nobel, Ivan Pavlov. Pavlov descobriu que certos estímulos, como tons, não provocam naturalmente a salivação, mas quando precedem e se sobrepõem à apresentação de alimento, a resposta salivar pode ser fortalecida por apresentações repetidas dos dois estímulos, desde que essa contingência entre o tom e o alimento seja mantida. Este é um exemplo de ECC de atraso, com a ideia de que a força associativa é mediada pela contiguidade temporal imediata entre os dois estímulos, tornando assim as condições de aprendizagem ideais para um animal. Ele também testou outras variações da contingência entre o tom e o alimento, como desligar o tom e deixar um período de "traço" antes de apresentar o alimento. Quando esses dois estímulos eram suficientemente descontíguos, tornava-se muito mais difícil para os cães emitirem respostas de salivação antes da apresentação do alimento. A descontiguidade entre o desligamento do tom e a apresentação do alimento é, portanto, um exemplo de ECC de traço. Como roedores não salivam naturalmente diante da presença de alimento, estímulos mais relevantes para a espécie, como choques leves, são utilizados em seu lugar; eles também não emitem naturalmente respostas defensivas de piscar os olhos em resposta a tons. Nesse contexto, os procedimentos de ECC em roedores envolvem a apresentação de um tom em um determinado nível de decibéis e o emparelhamento desse tom, de alguma forma, com um choque leve no músculo da pálpebra (orbicularis oculi) ou no músculo temporalis para provocar uma resposta de piscar. O tom é considerado um estímulo condicionado (EC), enquanto o choque é considerado um estímulo incondicionado (EI). Na ECC de atraso, o EC é apresentado primeiro; esse estímulo permanece ativo por uma duração determinada. Em seguida, o EI é aplicado. Esses dois estímulos se sobrepõem por um período específico e, depois, ambos terminam simultaneamente; a resposta de piscar resultante provocada pelo EI é considerada uma resposta incondicionada (RI). Nesse procedimento, os roedores aprendem a emitir respostas de piscar algum tempo após a apresentação do EC, mas logo antes do EI, a fim de antecipar esse estímulo aversivo. A resposta de piscar aprendida é denominada resposta condicionada (RC). Na ECC de traço, o EC e o EI são separados por um período de tempo livre de estímulos, conhecido como intervalo de traço; eles não se sobrepõem no tempo, como ocorre na ECC de atraso. Durante esse intervalo, o animal deve resolver os requisitos associativos entre os estímulos. Semelhante à ECC de atraso, a aprendizagem ocorre quando o animal emite consistentemente uma resposta de piscar após o desligamento do EC, mas imediatamente antes da aplicação do EI. Após certo número de sessões de aquisição (EC emparelhado com EI), curvas de aprendizagem (ou seja, baseadas em diferentes medidas de RC) se desenvolvem. Estudos com lesões e neuroimagem mostram que a aprendizagem bem-sucedida na ECC de atraso depende da integridade da rede neurocircuitória cerebelo-troncoencefálica38,39,40, enquanto a ECC de traço é um procedimento de ordem superior que exige o envolvimento adicional do hipocampo41,42,43,44 e de outras estruturas corticais45,46. Devido aos requisitos relacionados ao tempo necessários para adquirir com sucesso RCs de traço, esta tarefa também é mais difícil de aprender (mesmo para indivíduos normais).
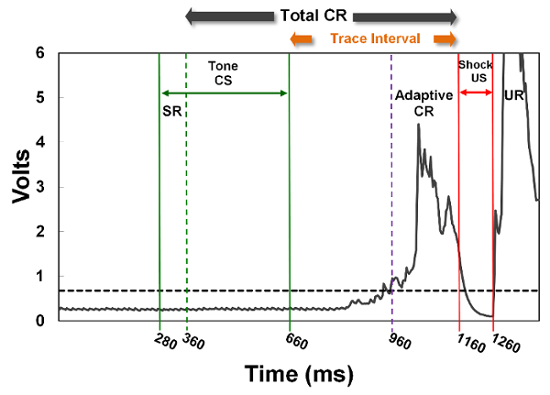
Figura 1: Condicionamento clássico traço do reflexo palpebral. É mostrada uma forma de onda real representativa de uma rata adulta no grupo controle sem entubação (UC). Primeiro, o estímulo condicionado (EC) de tom (85 dB, 2,8 kHz) é apresentado por 380 ms. Em seguida, ocorre um intervalo traço de 500 ms, durante o qual não há estímulos. Depois, é aplicado o estímulo incondicionado (EI) de choque (1,6 mA) por 100 ms. A aprendizagem bem-sucedida nesta tarefa ocorre quando a frequência (%) ou amplitude (em volts) dos piscamentos durante a janela de tempo da resposta condicionada (RC) (período total de RC) aumenta ao longo de muitas sessões de treinamento. Em particular, roedores com hipocampo intacto geralmente emitem mais RCs bem sincronizadas (RCs adaptativas) logo antes do início do EI de choque (dentro de uma janela de 200 ms). As respostas de sobressalto (RS) durante os primeiros 80 ms após o início do EC de tom e as respostas incondicionadas (RI) também são medidas. As RS não associativas são tipicamente baixas ou inexistentes em roedores bem treinados, enquanto as RI são esperadas ser altas em frequência e amplitude. Esta tarefa exige que o roedor aprenda a associar o fim do EC com o início do EI (durante o intervalo traço), tornando-a inerentemente mais difícil de adquirir em comparação com o condicionamento clássico de atraso (ECC). Clique aqui para visualizar uma versão maior desta figura.
Aqui demonstramos as consequências funcionais adversas da exposição ao álcool na fase neonatal administrada de forma semelhante a episódios de embriaguez aguda, avaliadas por meio de um procedimento de ECC com intervalo (trace ECC), que apresenta um condicionado sonoro (CS) de 85 dB (2,8 kHz) mantido por 380 ms, seguido por um estímulo não condicionado de choque (US) de 1,6 mA mantido por 100 ms, com um intervalo de 500 ms entre esses estímulos. Já relatamos a utilidade desse ensaio comportamental em estudos anteriores que examinaram a intervenção com colina e a suplementação com ferro na mitigação dos efeitos da exposição neonatal ao álcool18,47. De fato, o ECC com intervalo pode ser usado como uma ferramenta diagnóstica para avaliar a patologia hipocampal induzida pelo álcool na fase neonatal. A vantagem em relação ao ECC de atraso é que ele é mais sensível na detecção de distúrbios na função hipocampal, que está comprometida em humanos com TEA.
A demonstração da ECC vai muito além do campo do álcool fetal. Muitas variantes da ECC (por exemplo, com atraso, com traço, composta, reversão) podem ser utilizadas para elucidar as diferenças ontogenéticas na aprendizagem ao longo do desenvolvimento, a base neurobiológica da aprendizagem associativa em mamíferos normais, bem como as vulnerabilidades de diferentes sistemas cerebrais frente a diversos desafios, incluindo (mas não se limitando a) teratógenos, toxinas ambientais, lesão cerebral traumática, doenças neurodegenerativas e condições psiquiátricas.
Protocolo
OBSERVAÇÃO: Todos os procedimentos foram aprovados e realizados de acordo com as políticas estabelecidas pelo IACUC da East Carolina University. Ratos Long-Evans foram gerados a partir de fêmeas acasaladas com machos reprodutores. Filhotes dos três grupos de tratamento (ver 1.1) foram gerados dentro de uma ninhada proveniente da mesma mãe. Foram produzidas cinco ninhadas, e cada ninhada foi reduzida para 8 filhotes no terceiro dia pós-natal (DPN 3). Os dois filhotes restantes de cada ninhada foram designados para experimentos separados. Descendentes machos e fêmeas (um por grupo de exposição) foram incluídos no estudo. Um total de N = 27 descendentes adultos foram examinados neste estudo; 3 ratos foram excluídos devido a cabos de fio 3T quebrados (ver 3.1.1), os quais eram irreparáveis no Dia 1 do treinamento ECC.
1. Preparação dos Grupos, Materiais e Soluções
- No PD 3, retire as crias da mãe e coloque-as sobre uma almofada térmica com aquecimento de água para mantê-las aquecidas. Utilize um procedimento de seleção aleatória para distribuir as crias de rato em um dos três grupos: (1) intubadas com álcool (IA); (2) controle com intubação simulada (IS); ou (3) controle não intubado (CN). Realize procedimentos aprovados para identificação, como tatuagem com tinta [não tóxica] nas patas usando uma agulha 30G x 1/2 in, seguindo um esquema numérico. Devolva as crias à mãe após concluir a tatuagem.
- Prepare um ou mais tubos para intubação intragástrica utilizando tubo de polietileno (PE) tamanho 50 e 10. O comprimento total deste tubo depende do usuário e pode ser ajustado conforme necessário.
- Use tesoura de dissecação microcirúrgica para cortar um pedaço de 7,6 cm de tubo PE-50 e um pedaço de 15,2 cm de tubo PE-10.
- Conecte cuidadosamente o tubo PE-50 a uma agulha hipodérmica estéril 22G x 1 in.
- Insira uma das extremidades do tubo PE-10 na extremidade aberta do tubo PE-50. Pode ser necessário fazer um corte diagonal na ponta do tubo PE-10 para direcioná-lo corretamente dentro do tubo PE-50.
- Corte um pequeno pedaço de tubo PE-50 (cerca de 2-3 mm) e insira-o na extremidade aberta do tubo PE-10. Isso servirá como um limitador visual.
- Guarde o tubo completo de intubação intragástrica em álcool isopropílico a 70% fresco para mantê-lo estéril.
- Realize procedimentos assépticos para preparar uma solução estoque de leite em frascos de 50 mL. A solução estoque de leite baseia-se numa fórmula dietética inicialmente estabelecida por West et al. (1984)48. Armazene os frascos a -18 °C até o momento do uso. Descongele dois frascos de leite com água morna antes do uso.
- Aspire 7,16 mL de álcool etílico a 95% (USP) usando uma seringa estéril e adicione-o a um frasco de 50 mL de leite. Isso produz uma solução de álcool a 11,9% v/v, que será administrada às crias de rato nas duas primeiras alimentações do dia (ver 2.1.1); a dose diária total de álcool é de 5,25 g/kg/dia. A solução é formulada para fornecer o álcool em um volume (0,0278 mL/g por alimentação) dentro de uma solução de leite enriquecido.
NOTA: Esta quantidade pode ser ajustada com base no tamanho da ninhada e no uso esperado ao longo de 3-4 dias. A quantidade de álcool adicionada também deve ser ajustada para obter uma solução a 11,9% v/v. - Agite bem este frasco e rotule-o adequadamente (ou seja, Álcool Etílico 11,9% v/v em Leite).
- Rotule o segundo frasco de leite (sem álcool adicionado) adequadamente (por exemplo, Apenas Leite) e use-o para alimentações suplementares conforme indicado no item 2.1.1.
- Armazene ambos os frascos de leite na geladeira.
- Aspire 7,16 mL de álcool etílico a 95% (USP) usando uma seringa estéril e adicione-o a um frasco de 50 mL de leite. Isso produz uma solução de álcool a 11,9% v/v, que será administrada às crias de rato nas duas primeiras alimentações do dia (ver 2.1.1); a dose diária total de álcool é de 5,25 g/kg/dia. A solução é formulada para fornecer o álcool em um volume (0,0278 mL/g por alimentação) dentro de uma solução de leite enriquecido.
2. Exposição ao álcool na fase neonatal (dias pós-natais 4-9)
- Administre aos filhotes AI e SI um total de 4 intubações por dia a partir do PD 4. Separe cada intubação por 2 h. Como os filhotes AI são intubados com uma solução real, cada uma de suas intubações é considerada uma alimentação.
- Intube os filhotes AI com a solução de Álcool Etílico 11,9% v/v em Leite durante as duas primeiras alimentações do dia e, em seguida, intube-os com a solução Apenas Leite nas duas últimas alimentações do dia para suplementar seu crescimento.
- Intube os filhotes SI quatro vezes sem nenhuma solução a cada duas horas, garantindo a mesma duração de exposição ao tubo PE-10 que os filhotes AI suportam. O grupo UC não recebe nenhuma intubação.
- Retire os filhotes da mãe e coloque-os sobre uma placa aquecida com água termorregulada para mantê-los aquecidos. Pese cada filhote e registre seu peso corporal (em g). Consulte uma tabela de alimentação pré-elaborada para determinar o volume de intubação para cada filhote AI e anote em uma ficha de registro.
- Coloque a solução de Álcool Etílico 11,9% v/v em Leite em banho-maria e agite bem.
- Procedimento de intubação intragástrica:
- Lave bem o tubo de intubação intragástrica, que foi armazenado em álcool isopropílico 70%, com água morna.
- Retire a quantidade correta de solução usando uma seringa estéril de 1 mL.
- Mergulhe a ponta do tubo de intubação (extremidade PE-10) em óleo de milho fresco (isso facilita a inserção).
- Meça o comprimento do tubo PE-10 da boca do filhote até o estômago. Ajuste o limitador PE-50 para servir como guia do ponto de parada.
- Insira cuidadosamente o tubo PE-10 na boca do filhote, seguindo pelo esôfago, passando ligeiramente pelo esfíncter gastroesofágico e entrando no estômago. Examine o filhote, estabilize-o e pressione o êmbolo da seringa para administrar a solução. Faça isso em um ritmo lento.
NOTA: Para evitar inserir acidentalmente o tubo na traqueia, direcione-o inicialmente de modo que se curve e entre em contato com o palato mole antes de avançar. Use o palato como guia, pois o tubo naturalmente desviará dessa região e será direcionado para o esôfago. Qualquer desvio substancial da ponta em direção ventral pode fazê-lo entrar na traqueia. O ideal é remover o tubo e não prosseguir com a intubação se houver dúvida sobre sua posição de entrada – reinsira o tubo corretamente na tentativa seguinte. - Remova cuidadosamente o tubo PE-10 e examine o filhote quanto a refluxo da solução, sangramento ou lesão física. Devolva o filhote aos irmãos se estiver bem. Todo o procedimento de intubação leva aproximadamente menos de 1 min por filhote e cerca de 4 min no total para os 4 filhotes submetidos à intubação em cada ninhada (2 AI, 2 SI).
- Procedimento de intubação intragástrica para filhotes SI: siga o mesmo procedimento de inserção do PE-10 usado para filhotes AI, mas sem nenhuma solução e pela mesma duração (1 min).
- Devolve todos os filhotes à mãe imediatamente após concluir os procedimentos com o último filhote da ninhada. Devolva a mãe ao biotério até a próxima sessão de alimentação (em 2 h).
- Lave o tubo de intubação intragástrica com água morna estéril e devolva-o ao álcool isopropílico 70% para armazenamento. Lave bem o tubo com água antes de cada sessão de alimentação.
- Repita os itens 2.2 (exceto pesar os filhotes) a 2.2.2.9 para a segunda sessão de alimentação. Nas duas últimas alimentações, intube os filhotes AI com a solução Apenas Leite, usando os mesmos volumes de intubação determinados no item 2.2.
- Pese os ratos em intervalos regulares, como no PD 15 (quando os olhos se abrem), PD 21 (desmame), PD 30, PD 60 e PD 90 (cirurgia), para obter curvas de crescimento representativas.
3. Fabricação e Modificação de Eletrodos
- Construa um "estágio de cabeça" eletromiográfico (EMG) para cada rato (Figura 2). O estágio de cabeça permite o registro de respostas de piscar dos olhos por meio do sistema de piscamento (Figura 4).
- Monte um estágio de cabeça composto por dois fios de aço inoxidável revestidos com politetrafluoretileno (PTFE) tamanho 3T (5 cm cada), um fio de aço inoxidável revestido com PTFE tamanho 10T (5 cm), três pinos de contato macho e um isolador de soquete microfita cortado para 3 furos (veja 3.1.4).
- Remova o revestimento de PTFE do fio 10T segurando o centro com uma pinça serrilhada de alta precisão e retirando o revestimento em ambas as direções com uma pinça lisa de alta precisão. Certifique-se de que todos os vestígios do revestimento tenham sido removidos desse fio.
- Prenda uma extremidade do fio 10T a um pino de contato com uma alicate dental de plataforma serrilhada; este servirá como fio de terra. Segure cuidadosamente um fio 3T com a pinça lisa de alta precisão a 1 a 1,5 mm de uma extremidade. Remova o revestimento de PTFE de 1 a 1,5 mm, mantendo o restante do revestimento intacto. Prenda um pino de contato à extremidade exposta do fio 3T.
- Repita os mesmos procedimentos com o segundo fio 3T. Ambos os fios servirão como os terminais positivo e negativo dos eletrodos de registro EMG.
- Realize testes de tração em todos os fios para garantir que estejam firmemente presos aos pinos. Tenha cuidado para não dobrar ou danificar os fios.
- Corte um segmento de uma tira isoladora de soquete para 3,5 furos (corte o centro do quarto furo) com a lâmina cortante de um descascador de fios. Reduza esse segmento para apenas 3 furos completos e lixe ambos os lados, se necessário. Isso ajuda a garantir que 3 furos completos estejam disponíveis. Insira as unidades pino-fio nos três furos da microfita até que as extremidades prensadas fiquem alinhadas com a borda inferior do segmento isolador. O conjunto 10T deve estar em um dos furos externos da microfita, e não no meio.
- Modifique os eletrodos estimuladores bipolares (Figura 2).
- Forneça um eletrodo estimulador bipolar para cada rato. Este eletrodo aplica uma pequena quantidade de corrente elétrica por meio de um isolador de estímulo (veja sistema de piscamento) como o estímulo aversivo (US) durante a ECC. Os eletrodos são adquiridos de um fabricante em forma trançada e são blindados.
- Desenrole os dois fios metálicos 2 a 3 vezes para formar um formato em V (abertura de 5 mm) e, em seguida, use a pinça lisa de alta precisão para endireitar cada "ponta" o máximo possível. Remova com uma lâmina de barbear 1 mm do revestimento de cada ponta (em toda a volta). Inspecione cada ponta quanto a irregularidades e dobras, e corrija, se necessário, sem remover revestimento adicional.
- Remova o óleo de fabricação e detritos estranhos dos estágios de cabeça EMG e dos eletrodos bipolares lavando-os em álcool etílico a 95%. Deixe-os secar e, em seguida, autóclave-os.
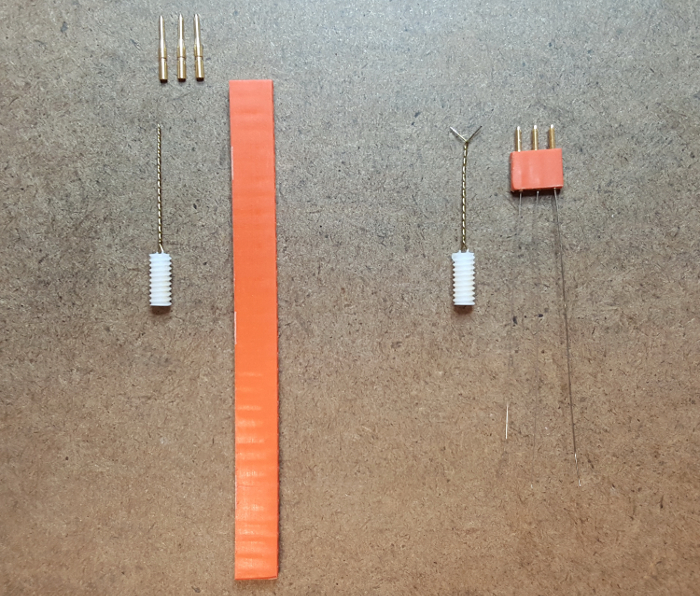
Figura 2: Eletrodos de gravação eletromiográfica (EMG) e eletrodo bipolar. O estágio inicial EMG acabado (à direita, laranja) é construído a partir de três pinos de contato macho, dois fios revestidos com PTFE de tamanho 3T, um fio revestido com PTFE de tamanho 10T e uma microfita modificada. Os três fios têm aproximadamente 5 cm cada e são prensados nos pinos de contato. O eletrodo bipolar acabado (à direita, branco) é desembaraçado, reendireitado e moldado em forma de V (divisão de 5 mm). O revestimento de blindagem é removido das pontas dos dois terminais. Clique aqui para visualizar uma versão maior desta figura.
4. Procedimento Cirúrgico de Pálpebra (Dia Pós-Natal 90)
- Preparação de materiais (consulte Materiais para informações detalhadas sobre suprimentos), animais, áreas cirúrgicas e não cirúrgicas:
- Esterilize os instrumentos e suprimentos cirúrgicos em autoclave – o número entre parênteses ( ) indica aproximadamente a quantidade necessária por rato adulto ou medida: instrumentos cirúrgicos (1 conjunto para cada 4 ratos, conforme aprovado pelo ECU IACUC), compressas de gaze (3-4), cotonetes (5-6), embalagem 20 x 20 (4 por sessão cirúrgica), cadinho de porcelana (1), espátula microcirúrgica de aço inoxidável (1), solução salina 0,9% (1 frasco lavador), placa de Petri (1) e parafusos de aço inoxidável 0-80 (3 por rato).
- Outros suprimentos estéreis necessários: lâmina cirúrgica tamanho 10 (1 para cada 4 ratos), campo cirúrgico (1 por rato), pomada oftálmica veterinária, poviodine (1 frasco lavador), agulha hipodérmica 26G x 3/8" (2), pinça de broca niquelada com broca #55, chave de fenda niquelada tipo chave de ourives (lâmina de 1,8-2 mm).
- Prepare uma área estéril de armazenamento para todos os instrumentos e suprimentos cirúrgicos utilizando um desinfetante aprovado de grau médico/científico. Coloque os materiais nesse espaço quando a área estiver pronta.
- Prepare um espaço cirúrgico estéril utilizando um desinfetante aprovado de grau médico/científico. Este espaço contém um tapete térmico com aquecimento de água, aparelho estereotáxico equipado com máscara de anestesia para rato, esterilizador de contas de vidro e vaporizador de gás isoflurano (para anestesia). O vaporizador possui tubos conectados à máscara de anestesia e a uma câmara de indução localizada em um espaço separado para procedimentos de preparação não estéril dos animais; cada tubo é controlado por uma válvula própria.
- Lave cuidadosamente as mãos e os braços com sabão antimicrobiano. Sem tocar o interior, pré-abra quaisquer itens que tenham sido embalados em envelopes ou panos de esterilização. Use luvas estéreis seguindo procedimento asséptico e transfira todos os itens relevantes para a área cirúrgica. Ajuste a broca à profundidade correta na pinça de broca (~ 2 mm) e prepare a chave de fenda. Cubra os materiais estéreis com um pano estéril até que a cirurgia esteja pronta para começar.
- Prepare um espaço não estéril com balança, aparador elétrico de pelos, seringas estéreis de 1 mL com agulhas 26G x 3/8 pol. (1 por rato), registro cirúrgico e buprenorfina (concentração de 0,03 mg/mL), administrada em 0,1 mL/100 gramas.
ATENÇÃO: A buprenorfina é um opioide semissintético da lista III da DEA e deve ser armazenada sob chave e registrada adequadamente. - Verifique o vaporizador de isoflurano quanto ao nível adequado de gás; adicione mais gás se estiver baixo. Mantenha os botões de fluxo e mistura desligados por enquanto. Ligue o tanque de O2 e verifique se haverá gás suficiente para todas as cirurgias.
- Pese cada rato e registre seu peso corporal no registro cirúrgico. Use uma tabela de injeção de buprenorfina para determinar o volume correto da injeção.
- Ligue a válvula do vaporizador para a câmara de indução e mantenha a válvula para a máscara cirúrgica desligada. Ajuste a mistura para 3 e o fluxo para 3 (3% de isoflurano com 100% de O2 como gás transportador, a um volume de 3 L/min).
- Coloque um rato na câmara de indução e permita que ele atinja o plano anestésico adequado (respiração lenta, ausência de reflexo podal, ausência de reflexo de piscar). Remova o rato da câmara assim que atingir o plano anestésico.
- Depile a cabeça com o aparador de pelos, expondo uma área suficiente de pele para o local da incisão e para a pálpebra esquerda. Se necessário, coloque-o novamente na câmara de indução para reatingir o plano anestésico antes de continuar o corte.
- Desinfete a pele exposta aplicando alternadamente álcool isopropílico e poviodine três vezes. Se necessário, coloque-o novamente na câmara de indução para reatingir o plano anestésico antes de transferi-lo para a mesa cirúrgica.
- Cirurgia
- Ligue a válvula do vaporizador para a máscara de anestesia e feche a válvula para a câmara de indução. Ajuste a mistura para 2,5 e o fluxo para 2 (2,5% de isoflurano com 100% de O2 como gás transportador, a um volume de 2 L/min). Transfira o rato para o aparelho estereotáxico e siga os procedimentos padrão para fixar sua cabeça à barra incisiva e às barras auriculares (consulte Geiger et al., 200849 para um exemplo).
- Administre ao rato uma injeção pré-cirúrgica de buprenorfina (SC) e descarte cuidadosamente a agulha (sem recobrir) em um recipiente para objetos perfurocortantes. Coloque um campo cirúrgico estéril sobre o rato, expondo apenas a área cirúrgica e isolando-a do restante do corpo.
- Use máscara cirúrgica, touca cirúrgica, avental cirúrgico, óculos de proteção e quaisquer outros equipamentos de proteção individual exigidos pelo IACUC. Lave e esfregue cuidadosamente as mãos e os braços com sabão antimicrobiano. Use luvas estéreis seguindo procedimento estéril.
- Aplique uma pequena quantidade de pomada oftálmica em ambos os olhos usando um cotonete para evitar que sequem.
- Prossiga com a cirurgia quando o rato apresentar o plano anestésico adequado. Monitore continuamente o rato durante toda a cirurgia e verifique periodicamente o nível de isoflurano. Ajuste os botões de fluxo e mistura conforme necessário durante a cirurgia, com base na resposta do rato à anestesia.
- Realize uma incisão ântero-posterior na linha média do crânio com uma lâmina de bisturi. Esta incisão deve expor uma área suficiente à frente dos olhos (isto é, expondo o osso frontal) e ligeiramente atrás da sutura lambdoide.
- Remova cuidadosamente o periósteo da parte superior do crânio, evitando sangramento excessivo. Limpe o tecido conjuntivo e o sangue em excesso com um cotonete.
- Faça um orifício usando a broca com auxílio da pinça de broca, começando diretamente atrás da sutura coronal em um dos ossos parietais. Remova qualquer sangue e detritos ósseos com um cotonete. Segure um parafuso 0-80 pela rosca com pinça de espinho e fixe-o ao orifício com a chave de fenda de ourives; aperte o parafuso o suficiente sem danificar o tecido cortical cerebral (geralmente 3-4 voltas completas).
- Siga os mesmos procedimentos descritos em 4.2.8 para fixar mais dois parafusos 0-80 ao crânio, um diretamente atrás da sutura coronal do osso parietal oposto e outro diretamente à frente da sutura lambdoide direita. Verificou-se que 3 parafusos são suficientes para ancorar o cimento dental (veja 4.2.18) ao crânio, pois um quarto parafuso (à frente da sutura lambdoide esquerda) impediria a colocação do eletrodo bipolar.
- Retire um estágio de cabeça EMG da placa de Petri. Posicione o estágio de forma que o fio 10T fique no lado direito do rato. Dobre o fio 10T para cima, tornando-o paralelo à borda inferior da microfita. Dê-lhe uma leve curvatura para o lado direito para que o fio possa contornar os parafusos 0-80 anterior e posterior. Coloque-o de lado, mas próximo o suficiente para alcançá-lo.
- [Assumindo que se é destro] Coloque a pinça de curativo de 3 pol. na mão esquerda e a pinça de curativo de 4 pol. na mão direita. Segure a pele superior no local da incisão do olho esquerdo com a pinça de curativo de 4 pol. e direcione a pinça de curativo de 3 pol. para o canto desse olho; segure a pele nesse canto. Mantenha o aperto com a pinça de 3 pol. enquanto solta a pinça de 4 pol.
- Pegue uma agulha 26G x 3/8 pol. e insira-a no canto da pálpebra; gire a agulha de modo que o bisel fique voltado para cima. Use a pinça microcirúrgica com plataforma para inserir o fio 3T central no orifício da agulha. Empurre-o alguns centímetros pelo orifício sem ir completamente para baixo; este fio é o polo negativo.
- Realize os procedimentos descritos em 4.2.11 e 4.2.12 para inserir o fio 3T externo na porção média da pálpebra; este fio é o polo positivo.
- Segure ambas as agulhas com uma mão enquanto segura o estágio de cabeça com a outra mão (ou com pinça). Puxe as agulhas para longe da pálpebra enquanto guia o estágio de cabeça na mesma direção em um único movimento contínuo. Se necessário, gire o estágio de cabeça de modo que o fio 10T fique voltado para o olho direito do animal; não permita que os fios 3T se cruzem. Use pinça de ponta fina para verificar se o polo positivo está no meio da pálpebra.
- Ajuste o estágio de cabeça para que fique centralizado entre os olhos e em posição ideal sobre o osso frontal, anterior aos parafusos inseridos bilateralmente. Segure o estágio de cabeça com uma mão e segure a pinça de curativo de 3 pol. com a outra mão. Enrole o fio 10T em um ou ambos os parafusos no lado do 10T.
- Coloque a pinça de curativo de 3 pol. em uma mão e a pinça de curativo de 4 pol. na outra. Use a pinça de 3 pol. para segurar a pele no local da incisão em direção à têmpora esquerda. Use a pinça de 4 pol. para criar um pequeno "bolso" separando a pele (isto é, fáscia superficial) do músculo temporal. Use a tesoura de íris para remover mais tecido conjuntivo, trabalhando em direção ao canto do olho esquerdo, para aumentar o tamanho desse bolso. Tenha cuidado para não ir muito fundo ou cortar vasos sanguíneos.
- Pegue um eletrodo bipolar e modele os fios condutores de modo que possam ser ajustados ao longo da curvatura do músculo temporal, enquanto as duas pontas estão posicionadas (dorsal e ventral) posterior ao olho esquerdo (veja o vídeo), e a extremidade inferior do eletrodo bipolar possa ser posicionada diretamente sobre o crânio. Deixe uma distância suficiente entre o estágio de cabeça e este eletrodo para que os conectores do cabo comutador (Figura 3) possam ser conectados sem impedimento.
- Despeje o pó de cimento dental no cadinho – comece com cerca de 1/3 do cadinho e depois ajuste a quantidade conforme necessário. Adicione o componente líquido até que a consistência fique aquosa e misture os componentes com a espátula. Quando a consistência do cimento ficar mais viscosa, aplique-o no local da incisão – cobrindo todas as bordas da pele com bordas de pelo menos 1/8 pol.
- Aplique cimento suficiente para reforçar o estágio de cabeça e o eletrodo bipolar sem impedir que o rato feche ambos os olhos. Limpe rapidamente qualquer cimento que escorra para áreas indesejadas do pelo do rato.
- Garanta que pelo menos 4-5 roscas do eletrodo bipolar permaneçam sem cimento para que o conector bipolar possa ser rosqueado (Figura 3). Remova o excesso de cimento do estágio de cabeça – a parte superior da microfita e os três pinos de contato devem estar limpos. O cimento endurece rapidamente e pode facilmente impedir o acoplamento completo de qualquer um desses eletrodos aos conectores do cabo comutador. Use pinça de espinho para remover o excesso de cimento que já tenha endurecido parcialmente.
- Aguarde o endurecimento do cimento; ele fica transparente. Use a tesoura microcirúrgica para cortar o excesso de comprimento dos dois fios 3T, deixando alguns centímetros de folga para manuseio.
- Segure a pinça microcirúrgica com plataforma na mão esquerda enquanto segura a pinça microcirúrgica de ponta fina na mão direita. Segure um fio 3T com a pinça esquerda ligeiramente à frente da pálpebra. Com a pinça direita, empurre a pálpebra para cima para expor mais do fio 3T e segure-a nessa posição. Solte a pinça esquerda e use a mão esquerda para segurar o estágio de cabeça (garantindo que ele esteja firme nesse momento). Use a pinça direita para remover parte do revestimento de PTFE, permitindo que o fio entre em contato com o músculo orbicularis oculi.
NOTA: Tenha cuidado para não puxar com muita força um fio 3T, pois ele pode se soltar do pino de contato. Se um fio se soltar, não será possível substituir o pino de contato, pois o cimento endurecido não se soltará livremente do crânio sem causar fratura óssea. - Realize os passos em 4.2.21 para remover o excesso de PTFE do segundo fio 3T.
- Segure as duas pinças microcirúrgicas conforme descrito em 4.2.21 (com plataforma na esquerda, pontas finas na direita). Posicione a pinça esquerda ligeiramente à frente de um fio 3T, deixando espaço para a pinça direita ser posicionada diretamente à frente da pálpebra. Segure o fio com ambas as pinças.
- Crie um "gancho" mantendo a pinça direita imóvel e girando a pinça esquerda para cima e em torno da pálpebra; faça isso em um único movimento. Solte cuidadosamente a pinça direita e depois a esquerda.
NOTA: Prender os eletrodos nas pálpebras ajuda a minimizar a possibilidade de eles esfregarem na córnea. Isso também reduz a possibilidade de rompimento do fio em qualquer momento da fase de testes comportamentais. Embora o gancho não impeça completamente o contato do fio com a córnea em todos os animais, eles geralmente não apresentam sinais de danos oculares, conforme indicado pelas altas amplitudes de piscar (medidas pelo osciloscópio digital em 5.1.7) e pelas observações diárias de saúde pós-cirúrgica (lacrimejamento excessivo, fechamento parcial da pálpebra, falta de mobilidade devido a danos oculares). Se um rato apresentar sinais iniciais de desconforto, ele é anestesiado com isoflurano (veja 4.1.10) e seus eletrodos são reexaminados e/ou reposicionados. Pomada oftálmica é aplicada para evitar o ressecamento da córnea. O rato é observado diariamente quanto a complicações oculares pós-procedimento e, se persistirem, deve-se procurar atendimento veterinário. Ratos que apresentem complicações oculares graves que não possam ser corrigidas com o reposicionamento dos eletrodos ou com tratamento veterinário são eutanasiados humanamente de acordo com os procedimentos operacionais padrão do ECU IACUC.
- Crie um "gancho" mantendo a pinça direita imóvel e girando a pinça esquerda para cima e em torno da pálpebra; faça isso em um único movimento. Solte cuidadosamente a pinça direita e depois a esquerda.
- Realize os passos em 4.2.23 para o segundo fio 3T. Corte o excesso de fio com a tesoura microcirúrgica.
- Use uma mão para soltar o rato das barras auriculares enquanto apoia seu corpo com a outra mão. Inspecione sua cabeça em busca de sangue ou detritos, limpe se necessário e administre uma injeção pós-operatória de buprenorfina.
- Coloque o rato em um recipiente de recuperação que tenha uma fonte de calor (como um tapete térmico com aquecimento de água) para auxiliar na recuperação. Registre no log cirúrgico o horário final da cirurgia e quaisquer observações relevantes sobre o rato durante a cirurgia. Monitore o rato quanto à respiração adequada e, quando apresentar decúbito esternal ou começar a se movimentar, ele pode ser devolvido à sua gaiola de origem.
- Reesterilize os instrumentos (exceto as pinças microcirúrgicas – pois podem ser danificadas) usando o esterilizador de contas e garanta que a área cirúrgica permaneça asséptica, repetindo os procedimentos assépticos se várias cirurgias de pálpebra forem realizadas.
5. Procedimento de Condicionamento Clássico de Pisar com Traço
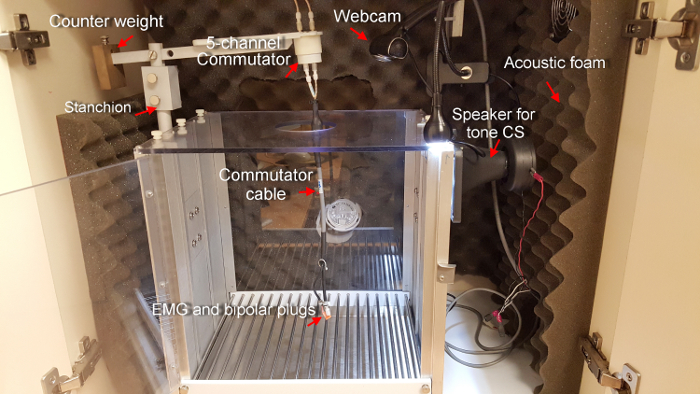
Figura 3: Caixa de condicionamento operante modificada para o condicionamento do reflexo palpebral. Os ratos são mamíferos de movimentação livre e, portanto, utiliza-se um comutador rotativo para manter o contato do sinal elétrico dos eletrodos de EMG e dos conectores bipolares fixados na cabeça. O comutador é preso ao braço do suporte, que é contrapesado para aliviar a pressão sobre o rato. Um tweeter piezoelétrico (alto-falante) emite um tom de 2,8 kHz a 85 dB, e esses valores são calibrados regularmente. A espuma acústica auxilia na atenuação de ruídos ambientais. Clique aqui para visualizar uma versão maior desta figura.
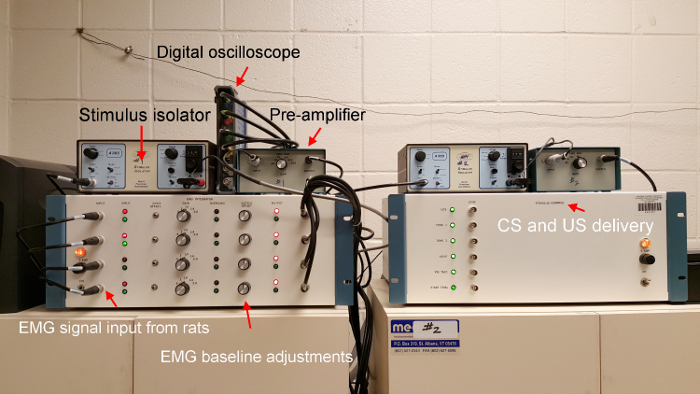
Figura 4: Sistema de condicionamento do reflexo palpebral. Este sistema personalizado é composto por uma unidade integradora de EMG que filtra e amplifica os sinais recebidos dos ratos, uma unidade de controle de estímulo que fornece diversos estímulos além de tons e choques, um pré-amplificador para cada caixa operante para aumentar o ganho do sinal de EMG e um isolador de estímulo para cada caixa operante; ele fornece níveis variáveis de choque (em mA). Um osciloscópio digital (não incluído no sistema padrão de reflexo palpebral) é utilizado para fins diagnósticos durante a habituação e a aquisição. Clique aqui para visualizar uma versão maior desta figura.
- Inicie a habituação e o treinamento de aquisição 5 dias após a cirurgia. Dê a cada rato um dia de manipulação e habituação ao aparato de treinamento — consistindo em uma caixa de condicionamento operante modificada alojada em uma câmara maior com atenuação de som (Figura 3) — e siga com 6 dias de treinamento de aquisição. Realize as sessões de habituação e aquisição usando um sistema personalizado de piscar de olhos (Figura 4).
- Crie um arquivo de registro de treinamento e imprima-o para uso no controle diário. Esse registro deve ter os grupos de ratos pré-designados pseudoaleatoriamente (ou por outro método de randomização) às suas caixas de treinamento.
- Ligue o sistema de piscar de olhos, o computador e execute o software de piscar de olhos. Esta versão do software possui diferentes módulos (ou aplicações) que funcionam independentemente. Execute o módulo Animal para criar um arquivo *.RAT que contenha informações do sujeito (número da sessão, identificação do animal, sexo, peso e número da caixa). Um único arquivo RAT gerencia até quatro ratos, o que compõe um grupo de sujeitos. Insira os valores conforme apropriado e salve o arquivo. Crie um arquivo RAT separado para cada grupo de ratos a ser treinado.
- Transfira os ratos do seu biotério para a sala de testes e feche a porta. Manipule cada rato por 5 min.
- Transfira um rato para sua caixa designada e conecte os conectores EMG e bipolar do cabo comutador ao estágio de cabeça EMG correspondente e ao eletrodo bipolar na cabeça do animal.
NOTA: Na primeira exposição ao cabo comutador, um rato pode se debater e mostrar sinais de estresse. Manipule o animal com cuidado e permita pausas entre tentativas malsucedidas de conexão para aliviar seu estresse. - Utilize um comutador que gira 360° mantendo a transmissão/recepção do sinal elétrico enquanto o rato se move livremente dentro da caixa. Ele possui 5 canais (3 para os eletrodos EMG, 2 para os eletrodos bipolares) que se conectam à unidade Integradora EMG, que filtra e amplifica o sinal bruto.
- Verifique se o rato está se movendo livremente e se não está impedido pelo peso do conjunto do cabo comutador ou do braço do suporte. Ajuste o contrapeso na parte traseira do suporte, se necessário. Verifique se todos os conectores estão firmes e, em seguida, feche a porta da caixa. Realize o mesmo procedimento de conexão/verificação para todos os ratos.
- Use um osciloscópio para observar a atividade EMG em busca de sinais anormais (por exemplo, atividade elétrica de alta frequência e/ou alta amplitude) e um sistema de vigilância por vídeo para verificar seu estado (por exemplo, atividade motora, sensibilidade ao ambiente, sinais de dor), se disponível. Anote quaisquer problemas observados no registro de treinamento.
- Permita que os ratos se habituem às suas câmaras por 10 min e, em seguida, devolva-os às suas gaiolas de origem.
- Limpe e desinfecte as caixas operantes, varra o chão e limpe a(s) mesa(s). Realize esses procedimentos após cada sessão.
- O treinamento de aquisição ocorre durante 6 dias consecutivos (sessões).
- Dia 1: Transfira um rato para sua caixa designada e conecte os conectores EMG e bipolar do cabo comutador ao estágio de cabeça EMG correspondente e ao eletrodo bipolar na cabeça do animal. Realize os mesmos procedimentos indicados nos itens 5.1.6 e 5.1.7.
- Ligue os isoladores de estímulo e ajuste a corrente para ser entregue em 0,4 mA (4% de 10 mA, conforme mostrado no vídeo). Os isoladores entregam corrente elétrica de forma alternada (ou seja, de tentativa em tentativa), entre as pontas dorsal e ventral do eletrodo bipolar. Isso ajuda a reduzir a fadiga das fibras musculares (em cada local muscular) ao longo de entregas repetidas de estímulo.
- Observe todas as respostas de piscar de olhos emitidas e as tolerâncias exibidas em cada tentativa para todos os ratos. Após a cada segunda tentativa, aumente a intensidade do estímulo aversivo (US) em 0,4 mA para cada rato, até atingir 1,6 mA (nas tentativas 7 e 8). Verifique se todos os ratos estão respondendo normalmente em suas caixas, se todos os ajustes de amplificação e ganho estão constantes e se os sinais elétricos são adequados (ou seja, ruído EMG baixo ou mínimo). Utilize uma intensidade de estímulo aversivo de 1,6 mA em todos os dias do treinamento de aquisição.
NOTA: Se um rato exibir dor em um determinado nível de choque (por exemplo, pular alto no chão, subir nas paredes, correr em volta), a tentativa é pausada e ele retornará ao nível anterior de mA (0,4 mA abaixo) por duas tentativas. Depois disso, o rato receberá novamente o valor de choque mais alto que não tolerou; se mostrar tolerância, receberá valores crescentes até atingir 1,6 mA. Se não puder tolerar nenhum valor, então o próximo valor mais baixo (em incrementos de 0,4 mA) no qual ele tolera será usado durante todo o treinamento. - Use um osciloscópio para observar a atividade EMG em busca de sinais anormais (por exemplo, atividade elétrica de alta frequência e/ou alta amplitude) e um sistema de vigilância por vídeo para verificar seu estado (por exemplo, atividade motora, sensibilidade ao ambiente, sinais de dor).
NOTA: Explicação do ECC em traço: Uma época representativa de tentativa com formas de onda EMG capturadas é ilustrada na Figura 1 e o procedimento ECC em traço é explicado em detalhes no vídeo. O arquivo de treinamento de condicionamento em traço é configurado para entregar 100 tentativas (90 tentativas pareadas CS-US e 10 tentativas apenas com CS a cada 10a tentativa), com um intervalo médio entre tentativas de 30 segundos. Toda a sessão de treinamento dura aproximadamente 52 minutos (assumindo nenhuma interrupção). Todos os ratos são ingênuos na Sessão 1 e desenvolverão curvas de aprendizado diferencial (determinadas pela expressão de RCs) à medida que avançam por vários dias de treinamento. - Inicie o treinamento: Execute o módulo de software Blink. Quando solicitado, selecione o arquivo RAT correto e o arquivo de treinamento para condicionamento de piscar de olhos em "traço".
- Anote a hora de início e o nome do experimentador no registro de treinamento. Neste momento, monitore toda a atividade: sinais EMG adequados, boas respostas de piscar ao estímulo aversivo (ou seja, URs altas/frequentes), estado de saúde dos animais e funcionamento adequado do equipamento. Anote quaisquer observações relevantes no registro de treinamento.
- A coleta de dados é capturada automaticamente pelo software como arquivos RAW (um por rato, por dia). Os arquivos RAW contêm amplitude EMG (em volts), contagens de frequência, latência e dados de área para respostas de sobressalto (SRs), URs e RCs (totais e adaptativas). O artefato de choque obscurece os primeiros 100 ms do período de UR; portanto, apenas os últimos 140 ms do período de UR contêm dados de UR.
- No final do treinamento, o software será fechado automaticamente. Remova todos os ratos de suas caixas de treinamento e devolva-os ao biotério.
- Repita os passos 5.2.5 a 5.2.6 para todos os dias subsequentes de treinamento. Antes de iniciar o módulo Blink em um determinado dia, atualize o número da sessão dentro do arquivo RAT. Isso permite a criação de novos arquivos RAW para todos os ratos naquele dia. Cada rato deve ter 6 arquivos RAW, assumindo que nenhum tenha sido removido do treinamento.
- Processe os arquivos RAW e crie um arquivo que tenha sido filtrado para análise estatística.
- Execute o módulo de Análise. Revise cada sessão de cada rato, tentativa por tentativa, em busca de tentativas problemáticas. Isso é feito para identificar tentativas que possam estar comprometidas por várias razões (por exemplo, atividade de linha de base excessiva antes do CS, movimento excessivo, desprendimento do eletrodo, problemas nos cabos/fios). O software possui algoritmos que auxiliam o experimentador na detecção e remoção de "tentativas ruins" do conjunto de dados filtrado.
- Importe os dados filtrados para um programa de planilha eletrônica e realize as análises estatísticas pertinentes.
Resultados
O software eyeblink é capaz de fornecer um grande e abrangente conjunto de dados para vários tipos de medições. Por questões de brevidade, relatamos neste estudo, representante os resultados para a aprendizagem e desempenho medidas que incluem adaptável porcentagem de CR, adaptável amplitude de CR, percentagem de UR e amplitude de UR. O período adaptativo de CR foi escolhido como ele representa a aquisição de respostas eyeblink bem-cronometrada sobre treinamento repetido, como resultado de maior plasticidade sináptica no hipocampo durante rastreamento ECC50,,51,52. As medidas de UR foram escolhidas para elucidar se os défices de aprendizagem neonatal induzida pelo álcool em rastrear ECC foram devido a perturbações na aprendizagem associativa ou interrupções na resposta ao choque nos - o que pode indicar diferenças motivacionais ou motor, em vez de aprender as diferenças entre os grupos de tratamento. Os dados para cada medida foram analisados usando 2 (sexo), x 3 (grupo Neonatal), x 6 (sessão) misturado ANOVAs, com sessão como o fator de medidas repetidas. Significativos efeitos principais para tratamento neonatal foram analisados usando testes post hoc de Tukey e interações significativas foram analisadas usando testes de efeitos simples. Todas as análises estatísticas foram realizadas utilizando um nível mínimo de alfa de 0,05 e resultados em gráficos são média ± SEM.
Começando com a medida de porcentagem de CR adaptável, a ANOVA indicou um significativo efeito principal do grupo neonatal, F(2,21) = 11,69, p < 0.001, mas nenhum significativo efeito principal do sexo (p = 0,71) ou interação significativa entre esses fatores (p = 0.20). Como esperado, percentagem de CR adaptável aumentou durante as seis sessões de treinamento, F(5, 105) = 81.15, p < 0,001 e as diferenças entre os grupos neonatais eram dependentes de algum nível de sessão, F(10, 105) = 4,58, p < 0.001. Não havia nenhuma outras interações significativas que envolvem o fator de sessão. Da mesma forma para amplitude de CR adaptável, houve novamente um significativo efeito principal do grupo neonatal, F(2,21) = 22.32, p < 0.001, mas nenhum significativo efeito principal do sexo (p = 0,21) ou interação significativa entre esses fatores (p = 0,48). Amplitude de CR também aumentou significativamente ao longo das seis sessões de treinamento, F(5, 105) = 59.27, p < 0,001 e as diferenças entre os grupos neonatais eram dependentes de algum nível de sessão, F(10, 105) = 4.31, p < 0.001. Em geral, as duas medidas de CR mostraram diferenças significativas entre os meios do grupo e estes meios separados significativamente em diferentes sessões de treinamento. Para confirmar que os grupos diferiam significativamente, testes post hoc de Tukey mostraram que os ratos (AI) álcool-intubado realizada significativamente pior em ambas as medidas CR do que o unintubated-controle (UC) e ratos de (SI) de Souza-intubado (p < 0,01 para porcentagem de CR; p < 0.001 por amplitude CR), que não diferiram entre si (pdo > 0,05). Efeitos simples testes realizados no grupo Neonatal significativa x interações de sessão para as duas medidas de CR, confirmadas que os ratos AI foram mais significativamente afectados em adquirir CRs começando na sessão 2 e continuando a sessão 6 em comparação com ratos tanto UC e SI (todos os p< 0.05), que não diferiram entre si ao longo de seis sessões. A única exceção foi a amplitude de CR adaptável para ratos de SI não começou diferir significativamente dos ratos AI até sessão 3. Estes resultados são mostrados na Figura 5A, 5B.
Não havia diferenças significativas nas medidas UR devido ao sexo, grupo neonatal ou interações desses fatores com o fator de sessão. Estes resultados negativos indicaram que cada grupo era capaz de emitir respostas eyeblink ao choque-nos igualmente, que os défices de aprendizagem observados nos ratos AI não foram influenciados pelas diferenças motivacionais ou motor em piscar (figura 6A, 6B).
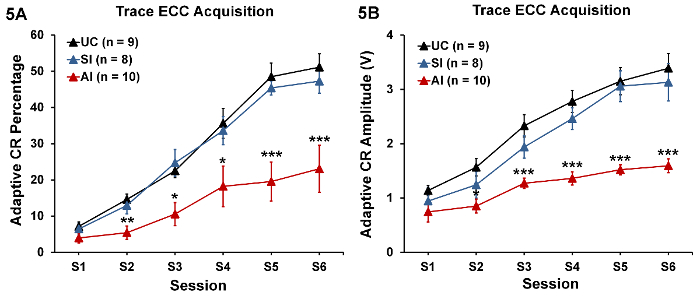
Figura 5 : Aquisição de rastreamento condicionado responder (média ± SEM). Exposição precoce de álcool (Grupo AI) afetado significativamente a aquisição de percentuais adaptável resposta condicionada (CR) (A) e amplitude (B). Rastreamento de ECC é inerentemente difícil de adquirir, portanto, as medidas são relativamente mais baixas para todos os grupos - com atraso ECC, percentagens podem chegar a 80-85% em modelos de roedores de FASD21,53. No entanto, o rastreamento de procedimento ECC é mais desgastante para o hipocampo, que é suscetível aos efeitos do álcool durante o desenvolvimento precoce do cérebro. * = p < 0.05, * * = p < 0,01, * * * = p < 0.001 entre ratos UC e AI; tamanhos de amostra são fornecidos em parênteses. Clique aqui para ver uma versão maior desta figura.
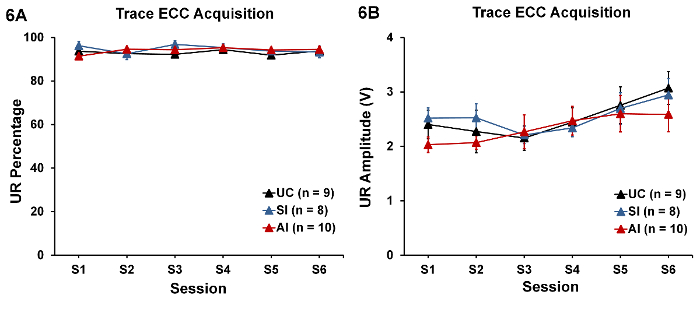
Figura 6 : Aquisição de respostas unconditioned (média ± SEM). Desempenho eyeblink (percentagem de UR e UR amplitude) não foi significativamente diferente entre os grupos. A falta de diferenças indicam que a intensidade do choque utilizada durante o treinamento de aquisição não alterou diferencialmente motivação nos ratos AI ou sua capacidade de produzir defensiva piscar respostas ao choque, em comparação com os dois grupos de controle (UC e SI). Tamanhos de amostra são fornecidos em parênteses. Clique aqui para ver uma versão maior desta figura.
Discussão
Filhotes de rato neonatal que receberam álcool etílico durante dias pós-natal 4-9 exibiram rastreamento eyeblink condicionado deficiências na idade adulta. Estes resultados suportam a ideia de que o álcool é um teratógeno com suportando os efeitos prejudiciais sobre a função do hipocampo. Globalmente, condicionado a responder no processo de rastreamento foi menor para os ratos expostos ao álcool em comparação com ratos em ambos os grupos de controle. As deficiências de aprendizagem associativa em ratos expostos a álcool não foram influenciadas pelas diferenças motivacionais ou motor (i. e., sem diferenças de piscar a intensidade do choque U.S.).
Enquanto traço ECC é uma ferramenta de diagnóstico útil para elucidar induzida pelo desafio hippocampal neuropatologia, os resultados deste método devem ser colocados no contexto adequado. Em primeiro lugar, os principais elementos processuais nesta demonstração envolveram a entrega específica de álcool durante uma conhecida janela de vulnerabilidade para o cérebro em desenvolvimento, fabricação de hardware de eléctrodo que permite a gravação da atividade eletromiográfica e entrega de choque, através da implantação cirúrgica do hardware acima e subsequentes ensaios em animais usando um paradigma de aprendizagem que avalia uma função cognitiva de interesse. Em cada fase do processo, deve-se tomar cuidado para não causar danos desnecessários/não-intencionais para os temas de roedores e monitorar seus sinais de saúde regularmente. Seus resultados comportamentais fornecem a "janela" para a cognição, uma construção psicológica que é somente com precisão descrito quando sua saúde não seja comprometida por erros experimentais englobando a dosagem de álcool, defeitos de hardware ou implantação cirúrgica. Assim, cada elemento processual no processo de investigação deve ser implementado de forma som para garantir que os resultados do ECC podem ser extrapolados para achados em seres humanos. Em segundo lugar, o paradigma ECC oferece uma visão sobre a natureza da aprendizagem associativa, mas deve ter cuidado para não estender conclusões usando esta abordagem e amplamente atribui-los para outros domínios cognitivos - como memória de trabalho, as memórias de curto/longo prazo e consciência - a menos que um incorporou algumas facetas destes domínios dentro de um estudo ECC pelo delineamento experimental. Por exemplo, esta demonstração analisou a fase de aquisição da aprendizagem do ECC de rastreamento, mas não examinar a retenção da memória nos ratos após eles completaram o treinamento. Memória é, portanto, um processo psicológico independente deve ser avaliadas, além de aprender. Por design, pode-se incorporar um intervalo de retenção de memória para avaliar qualquer capacidade de memória de curto prazo ou a longo prazo. Em terceiro lugar, o reconhecimento de que há memória paralelo sistemas54 que podem funcionar simultaneamente, juntamente com fatores motivacionais, experienciais e hormonais que contribuem para o comportamento, é essencial para compreensão associatividade (durante ECC) é mas um dos muitos processos que revelam o que é "bom" ou "pobres" sobre aprendizagem. Por último, rastreamento ECC não é uma tarefa puramente hipocampo-dependente, como outras regiões do cérebro podem mediar entre algum componente do CR. Assim, uma compreensão das interacções entre os diferentes circuitos neurais e/ou o tipo de estímulo de parâmetros que são utilizados em um estudo, deve ser tomado em consideração quando fazendo implicações com base nos resultados discretos. O cerebelo, por exemplo, também contribui para rastreamento ECC, onde influencia as características topográficas do CR e CR timing, particularmente quando o ISI é curto em duração. Rastreamento ECC não é afetado em humanos com danos Cerebelares, que são testados com um intervalo de tempo de rastreamento (1.000 ms), mas é afetado em quem recebe o rastreamento mais curto intervalo (400 ms)34. Além disso, lesões bilaterais do córtex pré-frontal medial dorsal (mPFC) que se destinam as regiões agranular medial e cingulado anterior em ratos, evitar aquisição de rastreamento CRs55, enquanto a destruição do mPFC caudal em coelhos produz semelhante resultados46. Esses achados também destacam a importância de considerar as diferenças de espécie no pré-frontal contribuições Cerebelares-cérebro-tronco conduzida aprendizagem associativa, como rastreamento de ECC. Enquanto exposição neonatal álcool durante a aquisição de 4-9 prejudicados PD de 500 ms rastreamento CRs para adulto ratos neste estudo e outros47,56, isto não é o mesmo caso para neonatais ratos expostas ao álcool que experimentam um intervalo de rastreamento de 300 ms, mesmo quando desafiado em uma dose relativamente alta de álcool (5 g/kg)57, sugerindo que a deficiência de rastreamento em ratos expostos a álcool é dependente da duração do intervalo de rastreamento.
Neste estudo, o hipocampo foi enfatizado como sendo extremamente importante para mediar rastreamento ECC e quando desafiados pela exposição de álcool neonatal, exposições dano neural, como refletido por deficiências na aquisição de rastreamento CRs. Isso deve advertiu, no entanto, que os circuitos de haste de cérebro-cerebelo, particularmente o núcleo interpositus, são essencial para muitas facetas do ECC, incluindo a aquisição, expressão e características topográficas do CR, dependendo do tipo de tarefa ECC, incluindo rastreamento ECC36,40,55,58,59. Com efeito, este circuito neural interage com o hipocampo para dirigir a expressão de Sir durante formulários de ordem superior do ECC, como rastreamento ECC60. Se a exposição de álcool durante o desenvolvimento precoce do cérebro afecta especificamente hippocampal função em rastreamento ECC não está inteiramente claro. Muitas regiões cerebrais diferentes são vulneráveis ao insulto de álcool precoce, incluindo o mPFC, cerebelo e hipocampo18,19,23,,47,61,62, e é muito provável que o álcool perturba o funcionamento dessas estruturas em diferentes graus e para variar, mas funcionalmente importantes diferenças em muitos procedimentos ECC. Apesar das armadilhas quanto à interpretação dos resultados de estudos de rastreamento ECC, aquisição bem sucedida de rastreamento CRs foi mostrada para contar pelo menos com um hipocampo intacto, como suportado por lesão animais estudos42,44,63,64,65. Este procedimento assim continua a ser uma abordagem altamente valiosa para demonstrar as ligações entre a exposição do desenvolvimento do álcool para rastreamento condicionado a responder porque os circuitos neurais subjacentes, é muito melhor entendido do que a de outras tarefas, hipocampo-dependente, como lugar de aprendizagem no labirinto de água Morris, reconhecimento de objetos novos e contextuais e rastreamento de medo condicionado.
ECC como um método comportamental a "ensaiar" cognição, tem aplicabilidade generalizada no campo do desenvolvimento neuroteratology. Com efeito, descobertas recentes de nosso laboratório de apoiar a noção de que o hipocampo em desenvolvimento é altamente sensível aos efeitos do álcool, que podem ser atenuados por diferentes estratégias intervencionista18,47. A principal vantagem aqui é que com uma melhor compreensão dos défices de aprendizagem ECC de rastreamento induzida pelo álcool, elas podem ser preditivas de outros problemas em funções hippocampal baseado fora de aprendizagem associativa - particularmente aqueles conhecidos ser mediado pelo mesmo neurocircuitos hippocampal.
Aplicativo de rastreamento ECC e suas variantes (por exemplo, atraso, reversão, discriminação, composta) para elucidar os mecanismos neurobiológicos e sistemas neurais envolvidos na aprendizagem associativa, pode ser estendido além do campo de pesquisa do álcool fetal. Por exemplo, este paradigma tem recebido muita atenção em casos humanos e modelos animais de condições psiquiátricas como esquizofrenia66,67, doenças neurodegenerativas, como a doença de Alzheimer68,69e drogas de abuso70,,71,72. Seus benefícios como um método de pesquisa para avaliar disfunção e função neurocognitive são, portanto, evidentes em muitas disciplinas psicológicas e biomédicas, incluindo neurociência.
Divulgações
Os autores não têm nada para divulgar.
Agradecimentos
Este trabalho foi financiado por um subsídio para TDT de álcool bebida médica Research Foundation (ABMRF).
Materiais
| Nome | Empresa | Número de catálogo | Comentários | |||
|---|---|---|---|---|---|---|
| Exposição ao Álcool Neonatal | ||||||
| Álcool Etílico à Prova de 190 (USP) | Pharmco-AAPER | 225-36000 [ECU Medical Storeroom] | Pode ser substituído; deve ser USP; evite usar Recipiente/Cesta de Álcool Etílico à prova de 200 | |||
| para Filhotes | Qualquer | |||||
| Óleo de Milho | Qualquer | |||||
| Bomba de Terapia de Água Aquecida de Grau Alimentício w/ Almofadas | Gaymar | TP-500 | Para manter os filhotes aquecidos; pode ser substituído. | |||
| Agulhas Hipodérmicas 22G x 1 in, Estéril | Qualquer | |||||
| Agulha Hipodérmica 30G x 1/2 in, Estéril | Qualquer | |||||
| Álcool Isopropílico 70% | EMD Millipore | PX1840-4 [Fisher Scientific] | Pode ser substituído; grau de reagente www.fishersci.com | |||
| Ratos Long-Evans (Criadores Femininos e Masculinos) | Charles River Laboratories | N/A [ECU Dept. of Comparative Medicine] | Idade e peso precisam ser especificados; o preço varia de acordo com estes fatores www.criver.com | |||
| Tesoura de Microdissecação, 3,5 pol., Lâminas de 23 mm Instrumentos de | Pesquisa Biomédica | 11-2200 | Para cortar tubos de PE brisurgical.com | |||
| Polietileno 10 Tubos (0,011 pol. Identificação; 0,024 pol. O.D.) | BD Diagnostic Systems | 22-204008 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Tubulação de Polietileno 50 (0.023 pol. Identificação; 0,038 pol. O.D.) | BD Diagnostic Systems | 22270835 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Aquecedor de água regulado ou aquecedor de mamadeiras para bebês | Qualquer | Opcional; ajuda no aquecimento de soluções de leite frio | ||||
| Seringas de tuberculina, estéreis, 1,0 ml | Qualquer | |||||
| seringa de tuberculina, estéril, 10 ml | qualquer | Pode ser usado para extrair álcool etílico ou usar micropipeta de tamanho apropriado | ||||
| Balança de pesagem | Qualquer | Deve ter boa resolução (em unidades de grama) | ||||
| < forte > Nome< / forte > | < forte > Empresa < / forte > | < forte > Número de catálogo< / forte > | < forte > Comentários < / forte > | |||
| forte <> forte EMG Fabricação de estágio e eletrodo bipolar Modificação< / forte> | ||||||
| Eletrodo bipolar, 2 canais SS Twisted | Plastics One, Inc. | MS303/2-B/SPC ELEGER SS 2C TW .008" | Deve especificar o comprimento personalizado de 20 mm abaixo do pedestal www.plastics1.com | |||
| Centi-Loc Strip Socket Insulator (aka, Micro Strip) | ITT Cannon / ITT Interconnect Solutions | CTA4-IS-60* ou CTA4-1S-60* | *Depende do fornecedor; consulte www.onlinecomponents.com ou www.avnetexpress.avnet.com | |||
| Alicate Dental, Serrilhado | CMF Medicon | 390.20.05 | Pode ser substituído; use para crimpar fios em pinos de contato macho www.medicon.de | |||
| Tesoura de Micro Dissecação, Lâminas de 3,5 pol., 23 mm | Instrumentos de Pesquisa Biomédica | 11-2200 | Use apenas para cortar fios 3T; cortar fios 10T danificará a lâmina - use a lâmina do descascador de fios em vez disso Fio de Aço Inoxidável Revestido com PTFE brisurgical.com/">brisurgical.com, 10T (Diâmetro Nu .010 in) | Sigmund Cohn-Medwire | 316SS10T | www.sigmundcohn.com |
| Fio de Aço Inoxidável Revestido com PTFE, 3T (Diâmetro Nu 0.003 in) | Sigmund Cohn-Medwire | 316SS3T | www.sigmundcohn.com | |||
| Lâmina de Barbear | Qualquer | Para descascar 1 mm dos pinos do eletrodo bipolar | ||||
| Pino de Contato do Soquete Relia-Tac, Interconexão Macho | Cooper | 220-P02-100 | Veja Allied Electronics Cat # 70144761 www.alliedelec.com | |||
| Pinças, Alta Precisão, Serrilhadas, 4 3/4 pol | Ciências de Microscopia Eletrônica | 78314-00D | Para agarrar o fio 10T firmemente enquanto descasca PTFE com pinças lisas | |||
| > www.emsdiasum.com Pinças, Alta Precisão, Lisas, 4 3/4 pol | Pinças de Microscopia Eletrônica Sciences | 78313-00B | www.emsdiasum.com | |||
| , Pontas Ultra Finas, 4 3/4 pol | Ciências de Microscopia Eletrônica | 78510-0 | Para descascar 1 mm de PTFE de uma extremidade do fio 3T; agarre a parte blindada com pinças lisas www.emsdiasum.com | |||
| Descascador de fios, 16-26 AWG | Qualquer | Use a extremidade da lâmina para cortar micro tiras | ||||
| Nome | Empresa | Número de catálogo | Comentários | |||
| Cirurgia de pálpebras | ||||||
| Instrumentos Cirúrgicos (Aço Inoxidável de Alta Qualidade) | ||||||
| 2 x Pinças de Curativo, 4 in Instrumentos de | Pesquisa Biomédica | 30-1205 | Podem ser substituídos; pinças extras para agarrar eletrodos/parafusos fora da bandeja de cirurgia brisurgical.com | |||
| Pinças de Curativo, 3 in Instrumentos de | Pesquisa Biomédica | 30-1200 | Pode ser substituído brisurgical.com | |||
| Bandeja de Instrumentos | Instrumentos de Pesquisa Biomédica | 24-1355 | Pode ser substituído brisurgical.com | |||
| Cabo de Faca No. 3, 5 in | Instrumentos de Pesquisa Biomédica | 26-1000 | Pode ser substituído brisurgical.com | |||
| Pinça de Micro Dissecação, 3.5 in, Fine Points | Instrumentos de Pesquisa Biomédica | 10-1630 | Pode ser substituído brisurgical.com | |||
| Pinça de Micro Dissecação, 3.5 in, Plataforma Lisa (0.3 x 5 mm) | Instrumentos de Pesquisa Biomédica | 10-1720 | brisurgical.com | |||
| Tesoura de Micro Dissecação, 3.5 pol., Lâminas Extremamente Delicadas, 15 mm Instrumentos de | Pesquisa Biomédica | 11-2000 | Pode ser substituído brisurgical.com | |||
| Pinça de Estilhaçamento Simples, 3.5 pol | Instrumentos de Pesquisa Biomédica | 30-1600 | Pode ser substituído brisurgical.com | |||
| #10 Lâmina Cirúrgica de Aço Inoxidável para Cabo #3, Estéril | Qualquer | Pode ser substituído | ||||
| 0-80 x 0.125 in Parafusos de Aço Inoxidável | Plastics One, Inc. | 0-80 x 0,125 | Pode ser substituído www.plastics1.com | |||
| Almofadas de preparação de álcool, estéreis | Fisher Scientific | 22-363-750 [Fisher Scientific | Pode ser substituído www.fishersci.com | |||
| Betadine Povidona-Iodo | Purdue Frederick Co. | 6761815101 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Betadine Povidona-Iodo Almofadas de Preparação Moore | Medical | 19-898-946 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Cotonetes, Autoclaváveis | Qualquer | Normalmente 7,6 cm ou 15,2 cm de comprimento | ||||
| Broca para Pino Vise, #55 (0,052 pol) | Qualquer | Metal deve resistir à ferrugem e corrosão | ||||
| Almofadas de Gaze, 2 in x 2 in | Fisher Scientific | 22-362-178 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Luvas de Látex/Nitrilo/Vinil de Propósito Geral | Qualquer | |||||
| Esterilizador de Esferas de Vidro | Qualquer | Esterilize instrumentos entre as cirurgias | ||||
| Bomba de Terapia com Água Aquecida com Almofadas x 2 | Gaymar | TP-500 | Pode ser substituído; bombas separadas são recomendadas - 1 para cirurgia, 1 para recuperação | |||
| Agulhas Hipodérmicas 26G x 3/8 in, Estéril | Qualquer | |||||
| Isoflurano | Vedco | NDC 50989-150-12 | O fabricante pode ser substituído; pode ser necessária aprovação veterinária | |||
| Sistema Vaporizador de Isoflurano, Mesa, Não-Rebreathing | Parkland Scientific | V3000PK | Pode ser substituído www.parklandscientific.com | |||
| Chave de Fenda para Joalheiros com Lâmina de 1,8-2 mm | Qualquer | Metal deve resistir à ferrugem e corrosão | ||||
| Pacote BCA Ortho-Jet (Cimento Dental) | Lang Dental | B1334 | Contém pó (1 lb) e líquido www.langdental.comTanque de | |||
| Oxigênio com Regulador de Pressão, Grande | Fornecedor local | |||||
| Cadinho de Porcelana, Formato Alto, Envidraçado, 10 ml | CoorsTek, Inc. | 07-965C [Fisher Scientific] | Pode ser substituído por Fisher FB-965-I Wide-Form Crucible www.fishersci.com | |||
| Puralube Veterinary Ophthalmic Ointment, Sterile | Henry Schein Company | NC0144682 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Quatricide PV-15 | Desinfetante | PV-15 | ; pode ser substituído www.pharmacal.com | |||
| Máscaras de Anestesia com Gás de Rato para Cirurgia Estereotáxica | Stoelting Company | 51610 | www.stoeltingco.com | |||
| Aparelho Estereotáxico de Rato com Barras de Ouvido (45 Graus) | Qualquer | barra de 45 graus é recomendada para evitar danos aos tímpanos | ||||
| Roboz Instrumento Cirúrgico Leite | Roboz NC9358575 Cirúrgica | [Fisher Scientific] | Pode ser substituído; para instrumentos de lubrificação durante a autoclavagem www.fishersci.com | |||
| Aparador de pêlos para roedores | Qualquer | |||||
| cloreto de sódio | Fisher Scientific | S641-500 [Fisher Scientific] | Para fazer solução salina a 0,9%; grau de reagente; USP www.fishersci.com | |||
| Microespátula de Aço Inoxidável (Lâmina: 0,75 L x 0,18 pol. W) | Fisher Scientific | 21-401-15 [Fisher Scientific] | Pode ser substituído www.fishersci.com | |||
| Starrett Pin Vise, 0.000 in - 0.055 in | Qualquer | niquelado ou equivalente recomendado para resistir à ferrugem e corrosão | ||||
| Luvas Cirúrgicas Estéreis | Qualquer | |||||
| Wraps de Esterilização, 20 in x 20 in, Autoclavável | Propper Manufacturing | 11-890-8C [Fisher Scientific] | Útil para embrulhar suprimentos autoclaváveis e em campo estéril durante a cirurgia www.fishersci.com | |||
| Campo cirúrgico, estéril/autoclavável | Qualquer | pode precisar cortar no tamanho certo para ratos | ||||
| Bata cirúrgica | Qualquer | *Se exigido pela Máscara Cirúrgica IACUC | ||||
| Qualquer | ||||||
| seringa de tuberculina, estéril, 1,0 ml | Qualquer | |||||
| balança de pesagem | Qualquer | deve ter boa resolução (em unidades de grama) | ||||
| Nome | Empresa | Número de catálogo | Comentários | |||
| Sistema e componentes de piscar de olhos (assumindo sistema de 4 roedores) | ||||||
| 5 canais x 4 | Plastics One, Inc. | SL2 + 3C | www.plastics1.com | |||
| Cabo de Eletrodo Bipolar, Dual 305 x 4 | Plastics One, Inc. | 305-305 80CM TT2 (C) | Fornece extremidade de plugue para eletrodo bipolar no rato e para o comutador; deve ser modificado www.plastics1.com< / a> | |||
| Cabo, 5 canais, blindado, 26 AWG x 4 | Qualquer | Para fabricar cabo comutador; isso deve ser feito do zero | ||||
| Câmara para caixa de teste operante (Dentro: 24 H x 23 W x 14 D in) x 4 | Med-Associates | Pode ser substituído; as dimensões internas devem caber confortavelmente na caixa de teste operante, com espaço para espuma acústica; caber com ventilador - 55-60 dB www.med-associates.com | ||||
| Eyeblink Sistema e Software | JSA Designs | N/A | Proprietário e personalizado para laboratório | |||
| de pesquisaTubo Termo Retrátil (3/16 pol, 1/4 pol, 3/8 pol, 1/2 pol de Diâmetro) | Para | proteger as extremidades e emendas soldadas do cabo comutador modificado | ||||
| Espuma Acústica de Pico Triplo de Melamina com Hypalon Preto (24 x 48 pol) | McMaster-Carr | 9162T5 | Pode ser substituído; cortado para caber em 4 câmaras de alojamento www.mcmaster.com | |||
| Caixa de Teste Operante (Exterior 12.5 L x 10 W x 13.5 in H), Completa x 4 | Med-Associates | ENV-007 Pacote Personalizado | Com piso de grade de aço inoxidável e tampo personalizado (3 no centro do furo para cabo do comutador) www.med-associates.com | |||
| Osciloscópio (Opcional) | Qualquer | Especificações mínimas recomendadas: largura de banda analógica de 200 MHz, amostragem em tempo real de 1 GS/s, 4 canais; veja www.picotech.com /td> | ||||
| Piezo Tweeters (Alto-falantes) x 4 (7 x 3 pol) | MCM Electronics | 53-805 | Deve corresponder às especificações de faixa de frequência para o sistema de piscar de olhos (2500 Hz - 25 KHz) www.mcmelectronics.com | |||
| Estação de Solda, Solda, Fluxo, Tinner | Qualquer | Para soldar cabos 26 AWG a soquetes fêmeas (que se encaixam em pinos de contato relia-tac masculinos) e plugues bipolares | ||||
| Isoladores de Estímulo x 4 | WPI International | A365 | Estas unidades funcionam com baterias alcalinas de 16-9V; uma versão recarregável adequada (A365R) está disponível www.wpiinc.com | |||
| Cabo de Eletrodo Tripolar para Comutador SL3C x 4 | Plásticos Um, Inc. | 335-335 80cm TT3 C | Fornece a extremidade do plugue para o headstage EMG no rato e para o comutador; deve ser modificado www.plastics1.com | |||
| USB Luzes LED x 4 | Quaisquer | luzes baseadas em USB não causam "ruído" elétrico com os sinais EMG dos ratos www.plastics1.com | ||||
| Webcams x 4, Software de Vigilância | Qualquer | |||||
| PC Computador Executando o Sistema Operacional MS Windows | Qualquer |
Referências
- Jones, K. L., Smith, D. W. Recognition of the fetal alcohol syndrome in early infancy. Lancet. 2, 999-1001 (1973).
- Stratton, K. R., Howe, C. J., Battaglia, F. C. Fetal alcohol syndrome: Diagnosis, epidemiology, prevention, and treatment. , National Academy Press. (1996).
- Streissguth, A. P., Barr, H. M., Martin, D. C., Herman, C. S. Effects of maternal alcohol, nicotine, and caffeine use during pregnancy on infant mental and motor development at eight months. Alcohol Clin Exp Res. 4 (2), 152-164 (1980).
- Streissguth, A. P., O'Malley, K. Neuropsychiatric implications and long-term consequences of fetal alcohol spectrum disorders. Semin Clin Neuropsychiatry. 5 (3), 177-190 (2000).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15 (3), 176-192 (2009).
- Sowell, E. R., et al. Mapping callosal morphology and cognitive correlates: Effects of heavy prenatal alcohol exposure. Neurology. 57 (2), 235-244 (2001).
- Sowell, E. R., et al. Abnormal development of the cerebellar vermis in children prenatally exposed to alcohol: Size reduction in lobules I-V. Alcohol Clin Exp Res. 20 (1), 31-34 (1996).
- Autti-Ramo, I., et al. MRI findings in children with school problems who had been exposed prenatally to alcohol. Dev Med Child Neurol. 44 (2), 98-106 (2002).
- Hamilton, D. A., Kodituwakku, P., Sutherland, R. J., Savage, D. D. Children with Fetal Alcohol Syndrome are impaired at place learning but not cued-navigation in a virtual Morris water task. Behav Brain Res. 143 (1), 85-94 (2003).
- Uecker, A., Nadel, L. Spatial but not object memory impairments in children with fetal alcohol syndrome. Am J Ment Retard. 103 (1), 12-18 (1998).
- Uecker, A., Nadel, L. Spatial locations gone awry: object and spatial memory deficits in children with fetal alcohol syndrome. Neuropsychologia. 34 (3), 209-223 (1996).
- Goodlett, C. R., Lundahl, K. R. Temporal determinants of neonatal alcohol-induced cerebellar damage and motor performance deficits. Pharmacol Biochem Behav. 55 (4), 531-540 (1996).
- Goodlett, C. R., Kelly, S. J., West, J. R. Early postnatal alcohol exposure that produces high blood alcohol levels impairs development of spatial navigation learning. Psychobiol. 15, 64-74 (1987).
- Bayer, S. A., Altman, J., Russo, R. J., Zhang, X. Timetables of neurogenesis in the human brain based on experimentally determined patterns in the rat. Neurotoxicol. 14 (1), 83-144 (1993).
- Dobbing, J., Sands, J. Quantitative growth and development of human brain. Arch Dis Child. 48 (10), 757-767 (1973).
- West, J. R. Fetal alcohol-induced brain damage and the problem of determining temporal vulnerability: A review. Alcohol Drug Res. 7 (5-6), 423-441 (1987).
- Zecevic, N., Rakic, P. Differentiation of Purkinje cells and their relationship to other components of developing cerebellar cortex in man. J Comp Neurol. 167, 27-48 (1976).
- Rufer, E. S., et al. Adequacy of maternal iron status protects against behavioral, neuroanatomical, and growth deficits in fetal alcohol spectrum disorders. PLoS One. 7 (10), e47499(2012).
- Tran, T. D., Kelly, S. J. Critical periods for ethanol-induced cell loss in the hippocampal formation. Neurotoxicol Teratol. 25 (5), 519-528 (2003).
- Pierce, D. R., Goodlett, C. R., West, J. R. Differential neuronal loss following early postnatal alcohol exposure. Teratology. 40 (2), 113-126 (1989).
- Tran, T. D., Jackson, H. J., Horn, K. H., Goodlett, C. R. Vitamin E does not protect against neonatal ethanol-induced cerebellar damage or deficits in eyeblink classical conditioning in rats. Alcohol Clin Exp Res. 29 (1), 117-129 (2005).
- Goodlett, C. R., Peterson, S. D., Lundahl, K. R., Pearlman, A. D. Binge-like alcohol exposure of neonatal rats via intragastric intubation induces both Purkinje cell loss and cortical astrogliosis. Alcohol Clin Exp Res. 21 (6), 1010-1017 (1997).
- Green, J. T., Tran, T. D., Steinmetz, J. E., Goodlett, C. R. Neonatal ethanol produces cerebellar deep nuclear cell loss and correlated disruption of eyeblink conditioning in adult rats. Brain Res. 956, 302-311 (2002).
- Cronise, K., Marino, M. D., Tran, T. D., Kelly, S. J. Critical periods for the effects of alcohol exposure on learning in rats. Behav Neurosci. 115 (1), 138-145 (2001).
- Tran, T. D., Cronise, K., Marino, M. D., Jenkins, W. J., Kelly, S. J. Critical periods for the effects of alcohol exposure on brain weight, body weight, activity and investigation. Behav Brain Res. 116 (1), 99-110 (2000).
- Steinmetz, J. E. Brain substrates of classical eyeblink conditioning: A highly localized but also distributed system. Behav Brain Res. 110 (1-2), 13-24 (2000).
- Thompson, R. F. The neurobiology of learning and memory. Science. 233 (4767), 941-947 (1986).
- Ivkovich, D., Eckerman, C. O., Krasnegor, N. A., Stanton, M. E. Eyeblink classical conditioning: Vol. 1 Applications in humans. Woodruff-Pak, D. S., Steinmetz, J. E. , Kluwer Academic Publishers. 119-142 (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume I - Applications in humans. , Kluwer Academic Publishers. (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume II - Animal models. , Kluwer Academic Publishers. (2000).
- Kishimoto, Y., et al. Implicit Memory in Monkeys: Development of a Delay Eyeblink Conditioning System with Parallel Electromyographic and High-Speed Video Measurements. PLoS One. 10 (6), e0129828(2015).
- Chen, L., Bao, S., Lockard, J. M., Kim, J. K., Thompson, R. F. Impaired classical eyeblink conditioning in cerebellar-lesioned and Purkinje cell degeneration (pcd) mutant mice. J Neurosci. 16 (8), 2829-2838 (1996).
- Freeman, J. H. Jr, Carter, C. S., Stanton, M. E. Early cerebellar lesions impair eyeblink conditioning in developing rats: Differential effects of unilateral lesions on postnatal day 10 or 20. Behav Neurosci. 109 (5), 893-902 (1995).
- Gerwig, M., et al. Trace eyeblink conditioning in patients with cerebellar degeneration: Comparison of short and long trace intervals. Exp Brain Res. 187 (1), 85-96 (2008).
- LaBar, K. S., Disterhoft, J. F. Conditioning, awareness, and the hippocampus. Hippocampus. 8 (6), 620-626 (1998).
- McCormick, D. A., Steinmetz, J. E., Thompson, R. F. Lesions of the inferior olivary complex cause extinction of the classically conditioned eyeblink response. Brain Res. 359 (1-2), 120-130 (1985).
- Clark, R. E., Zola, S. Trace eyeblink classical conditioning in the monkey: a nonsurgical method and behavioral analysis. Behav Neurosci. 112 (5), 1062-1068 (1998).
- Anderson, B. J., Steinmetz, J. E. Cerebellar and brainstem circuits involved in classical eyeblink conditioning. Rev Neurosci. 5 (3), 251-273 (1994).
- Thompson, R. F., Krupa, D. J. Organization of memory traces in the mammalian brain. Annu Rev Neurosci. 17, 519-549 (1994).
- Miller, M. J., et al. fMRI of the conscious rabbit during unilateral classical eyeblink conditioning reveals bilateral cerebellar activation. J Neurosci. 23 (37), 11753-11758 (2003).
- Geinisman, Y., et al. Remodeling of hippocampal synapses after hippocampus-dependent associative learning. J Comp Neurol. 417 (1), 49-59 (2000).
- Ivkovich, D., Stanton, M. E. Effects of early hippocampal lesions on trace, delay, and long-delay eyeblink conditioning in developing rats. Neurobiol Learn Mem. 76 (3), 426-446 (2001).
- Moyer, J. R. Jr, Deyo, R. A., Disterhoft, J. F. Hippocampectomy disrupts trace eye-blink conditioning in rabbits. Behav Neurosci. 104 (2), 243-252 (1990).
- Solomon, P. R., Vander Schaaf, E. R., Thompson, R. F., Weisz, D. J. Hippocampus and trace conditioning of the rabbit's classically conditioned nictitating membrane response. Behav Neurosci. 100 (5), 729-744 (1986).
- Kronforst-Collins, M. A., Disterhoft, J. F. Lesions of the caudal area of rabbit medial prefrontal cortex impair trace eyeblink conditioning. Neurobiol Learn Mem. 69 (2), 147-162 (1998).
- Weible, A. P., McEchron, M. D., Disterhoft, J. F. Cortical involvement in acquisition and extinction of trace eyeblink conditioning. Behav Neurosci. 114 (6), 1058-1067 (2000).
- Thomas, J. D., Tran, T. D. Choline supplementation mitigates trace, but not delay, eyeblink conditioning deficits in rats exposed to alcohol during development. Hippocampus. 22 (3), 619-630 (2012).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1 (3), 213-222 (1984).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Christian, K. M., Thompson, R. F. Neural substrates of eyeblink conditioning: acquisition and retention. Learn Mem. 10 (6), 427-455 (2003).
- Kishimoto, Y., Nakazawa, K., Tonegawa, S., Kirino, Y., Kano, M. Hippocampal CA3 NMDA receptors are crucial for adaptive timing of trace eyeblink conditioned response. J Neurosci. 26 (5), 1562-1570 (2006).
- Shors, T. J., et al. Neurogenesis in the adult is involved in the formation of trace memories. Nature. 410 (6826), 372-376 (2001).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning of short and long CS-US intervals in rats. Dev Psychobiol. 49 (6), 589-605 (2007).
- Mizumori, S. J., Yeshenko, O., Gill, K. M., Davis, D. M. Parallel processing across neural systems: Implications for a multiple memory system hypothesis. Neurobiol Learn Mem. 82 (3), 278-298 (2004).
- Siegel, J. J., et al. Trace Eyeblink Conditioning in Mice Is Dependent upon the Dorsal Medial Prefrontal Cortex, Cerebellum, and Amygdala: Behavioral Characterization and Functional Circuitry(1,2,3). eNeuro. 2 (4), (2015).
- Murawski, N. J., Jablonski, S. A., Brown, K. L., Stanton, M. E. Effects of neonatal alcohol dose and exposure window on long delay and trace eyeblink conditioning in juvenile rats. Behav Brain Res. 236 (1), 307-318 (2013).
- Lindquist, D. H. Hippocampal-dependent Pavlovian conditioning in adult rats exposed to binge-like doses of ethanol as neonates. Behav Brain Res. 242, 191-199 (2013).
- Ivarsson, M., Svensson, P. Conditioned eyeblink response consists of two distinct components. J Neurophysiol. 83 (2), 796-807 (2000).
- Woodruff-Pak, D. S., Lavond, D. G., Thompson, R. F. Trace conditioning: abolished by cerebellar nuclear lesions but not lateral cerebellar cortex aspirations. Brain Res. 348 (2), 249-260 (1985).
- Takehara-Nishiuchi, K. The Anatomy and Physiology of Eyeblink Classical Conditioning. Curr Top Behav Neurosci. , (2016).
- Mattson, S. N., Schoenfeld, A. M., Riley, E. P. Teratogenic effects of alcohol on brain and behavior. Alcohol Res Health. 25 (3), 185-191 (2001).
- Goodfellow, M. J., Abdulla, K. A., Lindquist, D. H. Neonatal Ethanol Exposure Impairs Trace Fear Conditioning and Alters NMDA Receptor Subunit Expression in Adult Male and Female Rats. Alcohol Clin Exp Res. 40 (2), 309-318 (2016).
- Beylin, A. V., et al. The role of the hippocampus in trace conditioning: Temporal discontinuity or task difficulty? Neurobiol Learn Mem. 76 (3), 447-461 (2001).
- Port, R. L., Romano, A. G., Steinmetz, J. E., Mikhail, A. A., Patterson, M. M. Retention and acquisition of classical trace conditioned responses by rabbits with hippocampal lesions. Behav Neurosci. 100 (5), 745-752 (1986).
- Weiss, C., Bouwmeester, H., Power, J. M., Disterhoft, J. F. Hippocampal lesions prevent trace eyeblink conditioning in the freely moving rat. Behav Brain Res. 99 (2), 123-132 (1999).
- Brown, S. M., et al. Eyeblink conditioning deficits indicate timing and cerebellar abnormalities in schizophrenia. Brain Cogn. 58 (1), 94-108 (2005).
- Sears, L. L., Steinmetz, J. E. Effects of haloperidol on sensory processing in the hippocampus during classical eyeblink conditioning. Psychopharmacology. 130 (3), 254-260 (1997).
- Kronforst-Collins, M. A., Moriearty, P. L., Schmidt, B., Disterhoft, J. F. Metrifonate improves associative learning and retention in aging rabbits. Behav Neurosci. 111 (5), 1031-1040 (1997).
- Woodruff-Pak, D. S., Finkbiner, R. G., Sasse, D. K. Eyeblink conditioning discriminates Alzheimer's patients from non-demented aged. Neuroreport. 1 (1), 45-48 (1990).
- Oristaglio, J., Romano, A. G., Harvey, J. A. Amphetamine influences conditioned response timing and laterality of anterior cingulate cortex activity during rabbit delay eyeblink conditioning. Neurobiol Learn Mem. 92 (1), 1-18 (2009).
- Scavio, M. J., Clift, P. S., Wills, J. C. Posttraining effects of amphetamine, chlorpromazine, ketamine, and scopolamine on the acquisition and extinction of the rabbit's conditioned nictitating membrane response. Behav Neurosci. 106 (6), 900-908 (1992).
- Fortier, C. B., et al. Delay discrimination and reversal eyeblink classical conditioning in abstinent chronic alcoholics. Neuropsychology. 22 (2), 196-208 (2008).
Reimpressões e permissões
