(Rana catesbeiana) sacculus da rã-touro americana permite o exame direto da fisiologia das células do cabelo. Aqui a dissecação e preparação de sacculus da rã-touro para estudos biofísicos é descrito. Mostramos experimentos representativos dessas células ciliadas, incluindo o cálculo da relação força-deslocamento de um bundle e medição do seu movimento não forçada.
Artigo de método
Preparação fisiológica das células ciliadas do sáculo da Bullfrog americano (
Neste artigo
Resumo
Resumo
O estudo da audição e equilíbrio repousa sobre insights extraídos de estudos biofísicos de sistemas modelo. Um desses modelos, o sacculus da rã-touro americana, tornou-se um dos pilares da pesquisa auditivo e vestibular. Estudos deste órgão revelaram como sensorial células ciliadas pode detectar activamente os sinais a partir do ambiente. Devido a estes estudos, agora entendemos melhor o gating mecânica e localização de canais de transdução de uma célula de cabelo, o papel do cálcio na adaptação mecânica, bem como a identidade das correntes de células ciliadas. Este órgão altamente acessível continua a fornecer informações sobre o funcionamento das células ciliadas. Aqui nós descrevemos a preparação de sacculus da rã-touro para estudos biofísicos em suas células ciliadas. Nós incluímos o procedimento de dissecção completa e fornecer protocolos específicos para a preparação do sacculus em contextos específicos. Nós, adicionalmente, incluir resultados representativos utilizando esta preparação, incluindo o cálculo dainstantânea relação força-deslocamento de uma madeixa de cabelo e medição de oscilação espontânea de um bundle.
Introdução
Os órgãos acousticolateralis de mamíferos possuem uma arquitetura complexa e se encontram dentro de um nicho anatômica que pode ser de difícil acesso. Por exemplo, a cóclea dos mamíferos compreende um labirinto em espiral e é incorporado dentro do osso temporal de espessura. Isolamento da cóclea muitas vezes provoca danos mecânicos às células sensoriais encontram-se no seu interior e, por conseguinte, tem provado ser uma tarefa difícil, uma. Os neurocientistas têm, assim, virou-se para modelar sistemas que são mais facilmente extraídos do santuário da orelha.
Um desses sistemas modelo, a sacculus da rã-touro americana (Rana catesbeiana), tem por décadas produziu uma visão generalizáveis para a função dos sistemas auditivo e vestibular. O sáculo é um órgão de função mista com funções sensoriais, tanto na audição de baixa frequência e sensação sísmica. As células sensoriais do sacculus são as suas células ciliadas, transdutores especializados que convertem energia mecânicaem sinais elétricos dentro de nossos órgãos auditivos e vestibulares. Projectam a partir da superfície apical de cada célula de cabelo é uma madeixa de cabelo mechanosensitive que compreende um tufo graduada de microvilosidades alargada denominada estereocílios. As pontas dos estereocílios adjacentes são interligados por proteínas ponta-link filamentosos que mecanicamente canais de iões de porta em resposta a estímulos mecânicos 2, 3. Apesar de os órgãos auditivo e vestibular responder aos diferentes tipos de estímulos, partilham um mecanismo de detecção comum. Esta comunhão está subjacente a muitos insights obtidos em mecanotransdução de células do cabelo através de estudos do sacculus rã-touro. Por exemplo, o processo activo da célula de cabelo tem sido estudada extensivamente neste órgão 4, 5, 6, 7, e a madeixa de cabelo emprega um processo consumidor de energia mecânica para produzirtrabalhos. Não só tem sido demonstrado que as células ciliadas gerar trabalho ativo 6, mas distintos mecanismos subjacentes ao processo ativo e características de ajuste de uma célula de cabelo foram revelados através de estudos de rã-touro acousticolateralis órgãos. Estes incluem o cabelo-bundle ativo motilidade 8 e células ciliadas ressonância elétrica 9, 10, 11 na sacculus e seletividade de freqüência na célula de cabelo sinapse fita 12 na papila anfíbio.
sacculus da rã-touro apela para neurocientistas sensoriais por vários motivos. Ao contrário da cóclea dos mamíferos, este órgão está dentro da cápsula ótica facilmente acessível. Em segundo lugar, as células ciliadas dentro deste órgão podem permanecer saudáveis por várias horas em condições adequadas 13, 14. Isto permite experimentatião nestas células durante períodos de tempo consideráveis em relação aos seus homólogos de mamífero. Em terceiro lugar, o órgão tem pouca curvatura, permitindo fácil manipulação. Em quarto lugar, cada órgão compreende um milhar ou mais de células ciliadas 15, proporcionando simultaneamente um elevado rendimento e uma elevada probabilidade de encontrar um conjunto adequado de células ciliadas para uma dada experiência. Finalmente, sacculus da rã-touro é facilmente visualizado devido à magreza deste órgão e grande porte de suas células ciliadas.
Estas propriedades oferecem grande versatilidade para o estudo de células sensoriais dentro sacculus da rã-touro. Dependendo da questão em apreço, uma das várias preparações experimentais pode ser obtido a partir do sáculo. A mais simples destas é a preparação de uma câmara. Aqui o sáculo é imobilizado numa câmara cheia de perilinfa artificial, uma solução salina ricos em sódio e cálcio de alta. Esta preparação permite que o estudo das correntes de células ciliadas e mecânica básica madeixa de cabelo. Uma segunda configuração, a preparação de duas câmaras, pode ser usado para estudar os movimentos madeixa de cabelo espontâneas. Aqui, o lado apical das células ciliadas é exposto a uma solução salina de potássio rico em cálcio e pobre em denominado endolinfa artificial, ao passo que o lado basolateral é banhada em perilinfa artificial. Estes dois compartimentos imitar o arranjo in vivo de soluções salinas e proporcionar um ambiente que permita madeixas de cabelo a oscilar espontaneamente.
Descrevemos neste trabalho a preparação de sacculus da rã-touro para estudo biofísico de suas células sensoriais ciliadas. Em primeiro lugar, fornecem uma descrição detalhada do isolamento deste órgão do ouvido interno da rã. Em seguida, descrevemos tanto a um e dois câmara preparações experimentais e incluem resultados representativos para cada configuração.
Protocolo
Declaração de Ética: Todos os procedimentos foram aprovados pelo Comitê Institucional de Animal Care and Use (IACUC) da Universidade Rockefeller.
1. Pré-experimental Prespanparation
- soluções
- Preparar a solução eugenol (2,5 g · L -1 · kg -1 rã). Preparar as soluções salinas (Tabela 1).
NOTA: Para obter uma preparação de uma câmara, preparar perilinfa artificial; para uma preparação de duas câmaras, preparar tanto perilinfa artificial e endolinfa artificial.
- Preparar a solução eugenol (2,5 g · L -1 · kg -1 rã). Preparar as soluções salinas (Tabela 1).
2. ferramentas experimentais
- Preparação das fibras de vidro estimulação
- Limite de um capilar de vidro de borosilicato com um puxador de eletrodo em um puxão de uma linha com alta temperatura e alta velocidade. Carregar o capilar puxado em um extrator orientada por solenóide.
- Traga a ponta do capilar em direção a um filamento com um talão de vidroderretido sobre ele até que os contatos capilares a contas de vidro.
- Ligue o filamento para derreter a ponta do capilar para o grânulo de vidro. Uma vez que uma ponte fina de formas de vidro entre o capilar e o talão, desligue o filamento e em torno do mesmo tempo ativar o extrator solenóide.
NOTA: Este vai puxar o capilar de vidro em um ângulo direito de seu eixo longo e criar uma fibra sólida. - Certifique-se de que o diâmetro da fibra não é superior a 0,5-1 jiM e o seu comprimento que não exceda 100-300 uM. Se o comprimento da fibra exceder esta dimensão, cortá-la com uma tesoura de íris. Use a tesoura que já estão sem brilho, para evitar danificar as ferramentas de dissecação.
- Para melhorar o contraste óptico, revestir a fibra. Use um revestidor por crepitação com uma fonte de ouro-paládio. Verticalmente carregar cada fibra em um revestidor por crepitação com a sua extremidade afunilada em direcção à fonte. Traga a ponta da fibra a uma distância de 1 - 2 cm da fonte de ouro-paládio.
- Feche osputter câmara de revestimento para formar uma vedação e ligá-lo. Repetidamente expulsar o ar ambiente através de argônio. Após a lavagem do ar, reduzir a pressão no interior da câmara a 10 Pa (70 mTorr).
- Por pulverização catódica, revestimento em 10 s pulsos com 10 s atrasos ao longo de um curso de 120 s.
NOTA: A ponta da fibra vai escurecer ao longo da duração deste protocolo se o revestimento por pulverização foi um sucesso.
- Preparação de microeléctrodos afiadas
- Puxar um capilar de vidro, com um filamento interno usando um de uma linha pull-alta calor. Os eléctrodos deverão ter uma resistência de 100-300 mohms quando cheio com 3 M de KCl. Encha cada eletrodo com 3 M KCl.
- Dobre a ponta de cada eletrodo com o microforge para torná-lo perpendicular à superfície apical da célula cabelo quando montado no headstage amplificador 16.
- Preparação de pipetas de iontoforese
- Puxar um capilar de vidro com uma internafilamento a uma ponta de 50 mohms. Encha com soluto concentrado (sulfato por exemplo, 500 mm gentamicina).
- Preparação da praça de montagem de alumínio
- Corte de 1 cm x 1 cm quadrados de papel alumínio. Perfurar a cobertura no centro com a ponta de uma haste mielotomia ou outro objeto pontiagudo. Moldar a perfuração de modo que seja circular e aproximadamente 1 mm de diâmetro.
- Preparação de vácuo seringa cheia de graxa.
- Retirar o êmbolo de uma seringa de 5 mL. Encha a seringa na parte de trás com graxa de vácuo. Substituir o êmbolo.
- Preparação de politetrafluoroetileno aplicador de cola
- Adicione a 2 mm de comprimento axial em corte da extremidade de uma vara aplicadora de madeira. A ranhura deve ser, no centro do aplicador quando visto fim-em.
- Com uma tesoura afiada ou uma lâmina de barbear, cortar a 2 mm x 4 milímetros rectângulo de politetrafluoroetileno a partir de uma folha de 1 mm de espessura.
- Use uma lâmina de barbear para diluir uma das bordas de 2 mm de comprimento do retângulo de politetrafluoretileno. Começando no meio do rectângulo, reduzir a espessura do rectângulo por corte para fora, para formar um chanfro na ponta do rectângulo.
- Inserir o rectângulo politetrafluoroetileno para o aplicador de fenda de madeira de tal modo que o bordo biselado fica virado para fora a partir da vara. Aplicar 5 min epóxi à base do retângulo politetrafluoretileno para prendê-lo no lugar. Permitir que o aplicador de cola para curar durante 1 h à temperatura ambiente.
- Preparação da metade inferior de duas câmaras de montagem
- Máquina de 3D ou imprimir a metade inferior da câmara de dois-montagem (ficheiro Suplementar 2). Identificar o diâmetro recesso círculo de 20 mm à superfície inferior da câmara.
- Aplicar uma fina camada de epóxi para as laterais mais 3 mm de círculo embutida. Aplicar uma 18 milímetros lamela de vidro circular na epóxi. Permitir epóxi para curar por 1h.
3. Extração de Órgãos do ouvido interno
- Anestesiar uma rã-touro americana, colocando-o em um pequeno balde contendo solução anestésica eugenol para 10 min. Ajuste o volume de solução para que humero-escapular do sapo mentiras conjuntas logo acima da interface líquido-ar.
- Euthanize a rã-touro anestesiados com um duplo mielotomia.
- Segure o sapo anestesiado com um dedo em cima de seu nariz e outro abaixo da mandíbula e girar a cabeça do sapo para a frente.
- Rapidamente mergulhar a vara mielotomia no crânio através do forame magno, que é encontrado na linha média entre os processos occipitais do sapo.
- Lentamente retirar e girar a haste até que a ponta sai do forame magno. Forçar a barra de caudal através do forame vertebral para destruir a medula espinhal.
- Confirmar que o sapo foi devidamente duplamente Pithed observando que suas extremidades inferiores são estendidos.
- Segure o sapo com um polegar em cima do nariz e primeiro dedo segurando os dentes vomerinos para melhoria da estabilidade. Decapitar o sapo, cortando a articulação temporomandibular bilateral e posteriormente o corte ortogonal ao eixo rostro-caudal. Para assegurar que os órgãos do ouvido interno dentro do crânio permanecem intactos, assegurar que o corte é caudal tanto tímpanos.
- Usando um microscópio de stereodissection, executar uma linha média cortar através do tecido palatino dos dentes vomerinos para a extensão mais posterior do tecido (Figura 1A).
- Sever e claro com cortes horizontais do bisturi qualquer musculares encontram-se abaixo do tecido palatal para revelar a cartilagem posterior. Depois de remover o músculo, observar a forma pirulito da cartilagem temporal, formando o limite da cápsula ótica.
- Sever do columella em seu ponto de contacto com a cartilagem da cápsula ótica.
- Repetidamente raspar as camadas finas de essa cartilagem, fazendo shallocortes horizontais w através dele. Evitar cortes profundos para evitar danos nos órgãos do ouvido interno. Isto abre a cápsula ótica encontradas dentro da estrutura da cartilagem pirulito temporal (Figura 1B). Dentro da cápsula ótica são órgãos do ouvido interno da rã (Figura 1C).
- Apare o posterior e bordas laterais da cápsula ótica, tomando cuidado para não danificar os órgãos do ouvido interno. Durante a dissecção, muitas vezes o fluxo de solução salina sobre os órgãos do ouvido interno para garantir que eles permanecem submersas e hidratado.
- Localizar as duas aberturas circulares no osso temporal na ligação medial da cartilagem à linha média. Cortar para baixo através da abertura mais medial para romper o osso temporal.
- Faça um segundo corte para baixo através da cápsula ótica em sua borda póstero-lateral. Remova o pedaço de cartilagem entre este eo corte anterior para fornecer acesso aos órgãos do ouvido interno.
- Erguer perder a cartilagem entre os cortes das etapas 3,8 and 3.9 e cortá-la para longe da cápsula ótica. Esta acção corta a mais próxima do canal semicircular, o qual pode então ser usado como um identificador para posteriores manipulações.
- Tomando cuidado para não tocar no sacculus, cortar a VIII th nervo craniano.
- Segure a ampola do canal semicircular mais próximo. Rodar suavemente o ouvido interno para expor os restantes dois canais semicirculares. Após a exposição de cada canal, cortá-la.
- Segurando o nervo ou uma ampola do canal semicircular, extrair o ouvido interno da cabeça e colocá-lo em um prato cheio com refrigerados perilinfa artificial oxigenado. A remoção do ouvido interno permite a visualização das passagens dentro do osso temporal, através do qual os canais semicirculares, uma vez passado (Figura 1D).
NOTA: Repita essas etapas para extrair a segunda orelha.
4. Preparação Uma-câmara
- Isolamento de sáculo
- Localize o sacculus, identificando a sua grande White massa de otoconia eo nervo sacular que se encontra em cima dele (Figura 1E). Tome cuidado para não traumatizar fisicamente o sacculus durante as etapas a seguir, a fim de manter a integridade das células ciliadas saculares.
- Apare os canais semicirculares para tornar o ouvido interno mais manobrável.
- Remover a cisterna perilinfática se sobrepõe ao lado neural do sáculo. Fazer cortes suaves em torno do perímetro da cisterna. A seguir cortar os pequenos pilares de tecido que ligam membrana da cisterna para o lado neural do sáculo.
- Remover o lagena e o seu nervo associada.
- Segurando o nervo sacular, levante cuidadosamente a sacculus ea atravessar a membrana fina do saco otoconial. Como derramamento otoconia para fora do saco, libertar o sacculus cortando em torno de seu perímetro.
NOTA: Após o isolamento do sacculus, os restantes órgãos do ouvido interno podem ser salvas se desejar. A remoção do sáculo facilita a identificação de outras estruturas, tais comoa papila basilar e anfíbios. - Use tesouras ou pinças para limpar cuidadosamente qualquer otoconia restante no sáculo. Tome cuidado para não tocar no sacculus durante este processo.
- Apare qualquer membrana otoconial-sac restante da borda dos sacculus. Esta membrana tende a aderir a superfícies de plástico e de vidro e a sua remoção minimiza desafios no tratamento do tecido.
- Delicadamente fluxo salino sobre o sacculus com uma pipeta Pasteur para remover qualquer otoconia restante (Figura 1F).
Nota: Repita esse procedimento para o segundo sacculus, que é uma imagem espelho do primeiro.
- Digestão e montagem
- Usando a extremidade posterior de uma pipeta de Pasteur com a ponta quebrada, transferir o sáculos isolado de uma placa de Petri contendo 3 ml de 67 mg L-1 protease ∙ XXIV na perilinfa artificial.
NOTA: Este tratamento protease digere as ligações amarrar cada lâmpada kinociliary ao otolíticamembrana, permitindo a remoção da membrana, sem danificar as madeixas de cabelo sensoriais. - Incubar o tecido durante 30 min a 22 ° C (ou 35 min a 21 ° C). Transferir cada sacculus digerido a uma câmara experimental open-faced e fixar o tecido com pinos magnéticos.
- A mácula sacular encontra-se directamente por baixo da membrana otolítica e é a porção da sáculo que contém células ciliadas. Identificá-lo e retire cuidadosamente sua membrana otolítica sobreposta usando uma multa cílios, tomando cuidado para não tocar a mácula.
- Usando a extremidade posterior de uma pipeta de Pasteur com a ponta quebrada, transferir o sáculos isolado de uma placa de Petri contendo 3 ml de 67 mg L-1 protease ∙ XXIV na perilinfa artificial.
5. Preparação duas câmaras
- Isolamento de sáculo
- Isolar o sacculus dos órgãos do ouvido interno como na Seção 4.1.
- Montagem e digestão
- Encha o bloco de montagem (arquivo Suplementar 3) com perilinfa artificial e colocar a folha de alumínio perfurado em uma abertura, usando duas manchas de vácuograxa para segurá-la no lugar e formar uma vedação fraca.
- Transferência de um sacculus para o papel alumínio e centralizá-lo em cima do buraco com a mácula virados para baixo e o coto do nervo voltado para cima.
- Remover o soro fisiológico circundante sáculo com um pedaço de tecido trançado. Wick a solução salina para secar a superfície do quadrado de alumínio em torno do sáculo.
- Usar o aplicador de politetrafluoroetileno para aplicar cola de cianoacrilato para formar uma vedação estanque ao longo da fronteira entre a borda do sáculo e o quadrado de alumínio. Assegure-se que toda a circunferência do sáculo é coberto com cola.
NOTA: Procedendo muito lentamente permite que a cola de cianoacrilato a rastejar sobre o lado neural do sáculo e, eventualmente, cobri-lo. Portanto, é imperativo para concluir esta tarefa rapidamente. - Colocar uma gota de solução salina no topo do tecido montado para curar a cola. Uma fina película de cola pode formar no topo da gota de solução salina; removê-lo com uma pinça.
- Remova cuidadosamente tele alumínio do bloco de montagem. Virar o tecido montado de forma que o lado macular do sáculo enfrenta para cima e flutuar em um cheio de perilinfa placa de Petri artificial.
- Adicionar uma gota de solução de protease XXIV em cima da mácula e incubar durante 30 min a 22 ° C (ou 35 min a 21 ° C). Encha o canal inferior do aparelho de duas câmaras (arquivo Suplementar 2) com graxa de perilinfa e local vácuo em torno da câmara central.
- Coloque o sacculus montado na folha na câmara baixa com o seu nervo de frente para a superfície da câmara. Adicionar graxa em torno do perímetro da folha.
- Coloque a câmara superior (arquivo Suplementar 1) da preparação sobre a folha, tendo o cuidado de formar uma vedação completa com a graxa de vácuo. Encha a câmara superior com endolinfa artificial bolhas e retire cuidadosamente a membrana otolítica com um cílio.
Resultados
O epitélio sensorial do sáculo da rã gigante podem ser empregues em várias configurações para sondar a fisiologia das células ciliadas. Uma vez que o tecido é relativamente plana, que pode ser montado em ambas as preparações de uma e duas câmaras. A configuração de uma câmara permite uma configuração simples para registros eletrofisiológicos e micromecânica de células ciliadas. A preparação de duas câmaras em vez simula tanto o endolinfático e compartimentos perilinfáticos sobre, respectivamente, os lados apicais e basais das células ciliadas. Estes compartimentos juntos fornecem um ambiente fisiologicamente relevante para o estudo de mecanotransdução por células ciliadas.
A sensibilidade e a transdução de células ciliadas características de subjacentes sua resposta eléctrica à estimulação mecânica. Para sondar esses recursos, nós simultaneamente gravado a partir de um cabelo individual célula a posição do seu pacote,potencial do receptor da célula (Figura 2). Em primeiro lugar, ligados, um de fibra de vidro flexíveis para a lâmpada kinociliary de uma madeixa de cabelo para aplicar pulsos de força. Em seguida, medido o deslocamento da madeixa de cabelo utilizando um sistema de dupla fotodiodo 2 (Figura 2A). Nós simultaneamente adquirindo potencialidades da célula de cabelo por empalar a célula com um microeletrodos afiada. Obtivemos uma curva de deslocamento de resposta traçando a resposta pico de tensão provocada por cada estímulo mecânico contra o deslocamento correspondente da madeixa de cabelo (Figura 2B). resposta elétrica da célula de cabelo satura tanto para extrema positiva e negativa de deslocamento. A redução do potencial de membrana com passos de deslocamento negativo indica a presença de uma corrente de repouso para dentro mecanotransdução. Esta corrente de repouso é modulada pela acção de Ca 2+ em ambos rápida e lenta adaptação 17, 18, 19, 20, 21.
O comportamento de uma célula de cabelo depende não apenas suas propriedades elétricas, mas também sobre os micromecânica de seu feixe de cabelo sensorial. Os imitadores de configuração com duas câmaras a separação da endolinfa e perilinfa in vivo, proporcionando condições ideais para o estudo da mecânica de um bundle de cabelo. Nestas condições e com a membrana otolítica removido, madeixas de cabelo pode oscilar espontaneamente 6. Aqui nós empregada na preparação de duas câmaras para avaliar os micromecânica de pacotes individuais. Gravamos as oscilações espontâneas de uma madeixa de cabelo, lançando sua sombra sobre um monitor de deslocamento dual-fotodiodo (Figura 3). Para avaliar o papel do antibiótico aminoglicósido gentamicina em mecanotransdução, que iontoforeticamente rele duziu gentamicina directamente sobre a madeixa de cabelo (Figura 3). A concentração de gentamicina libertada aumenta proporcionalmente com a corrente que passa através da micropipeta. Gentamicina inibe oscilações de um bundle de cabelo e induz um deslocamento do feixe para o seu lado de altura estática. Estes efeitos refletem o papel de gentamicina como um bloqueador de canal aberto que mantém o estado aberto de canais mecanotransdução enquanto bloqueia sua poro de permeação. A iontoforese de produtos químicos carregados permite a libertação localizada e quantificável de produtos químicos em várias concentrações, na ausência da ruptura mecânica induzida pelo fluxo de fluido e, assim, é idealmente adequado para o estudo de organelos mechanosensitive tais como a madeixa de cabelo 22.
Movimento espontâneo de uma madeixa de cabelo surge a partir da interação entre adaptação e não-linear pacote rigidez 7,refex "> 8, 23, 24. Este movimento espontâneo é uma assinatura do processo activo de uma madeixa de cabelo, que converte a energia de sinal para o trabalho mecânico para vencer o arrasto viscoso. madeixas de cabelo ter sido demonstrado que exibem rigidez instantânea não linear no vestibular 2, auditivo 25, e de linha lateral, sistemas 26.
Nós medido diretamente a rigidez instantânea de um pacote de cabelo individual de sacculus da rã-touro (Figura 4). Para conseguir isso, acoplado a ponta de uma fibra de vidro flexível para bulbo kinociliary da madeixa de cabelo (Figura 4A). Nós entregamos forças para a madeixa de cabelo deslocando base da fibra. A força exercida sobre a madeixa de cabelo pela fibra estímulo corresponde à diferença entre os deslocamentos dos bas da fibrae e ponta, multiplicado pela rigidez da fibra 2, 27. Transferência de impulsos através de uma gama de forças revela uma relação entre a força exercida sobre o pacote e deslocamento subsequente do pacote. O declive desta relação força-deslocamento corresponde a rigidez instantânea da madeixa de cabelo (Figura 4A).
Este método permitiu-nos para medir a rigidez instantânea do feixe um indivíduo como uma função da sua deformação (Figura 4B). A curva de força-deslocamento instantâneo exibe uma relação não linear, revelando uma rigidez não-linear do feixe ao longo de um intervalo de cerca de 20 nm, em torno da sua posição de repouso. Fora deste intervalo, a madeixa de cabelo se comporta como um material Hookean, a sua rigidez é linear para desvios de grande magnitude.
Estes resultados demonstavaliar a versatilidade do sacculus rã-touro no estudo da fisiologia das células do cabelo. Usando estas e outras preparações, pode-se explorar mecanotransdução em vários estágios na transmissão de informação a partir do feixe para o cérebro.
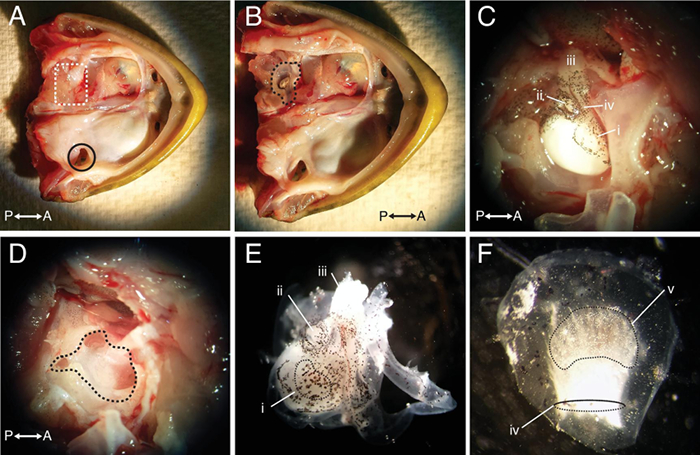
Figura 1: Dissecção da orelha interna da Bullfrog. (A) Visualizando palato superior da rã-touro do seu lado ventral permitir a identificação da trompa de Eustáquio (círculo). reflexão lateral da pele que recobre o lado direito do palato superior revela a localização do ouvido interno (caixa sombreada). (B) A remoção da cartilagem no lado ventral do osso temporal do sapo abre a cápsula ótica (linha a tracejado). (C) uma imagem exibida é maior ampliação da cápsula ótica, em que o sáculo, lagena, CN VIII, e SACC ular nervo pode ser facilmente identificado. (D) Uma vista da cápsula ótica, após remoção dos órgãos do ouvido interno revela as localizações dos canais semicirculares. (E) Depois da remoção do ouvido interno isolado, o sáculo, lagena, e VIII th nervo craniano (CN VIII) pode ser prontamente identificada. (F) A sacculus isolado possui um coto do nervo sacular e uma membrana otolítica deitada no topo de seu epitélio sensorial. Etiquetas correspondem à (i) sáculo, (ii) lagena, (iii) NC VIII, (iv) do nervo sacular, e (v) otolítica membrana. Eixo etiquetas P e A correspondem, respectivamente, às direcções anterior e posterior. As barras de escala representam 1 cm (A, B), de 1 mm (C, D, E), e 400 ^ M (F).
Por favor clique aqui para ver uma versão maior desta figura.
s "target =" _ blank "> Clique aqui para baixar uma versão vetorial desta figura.
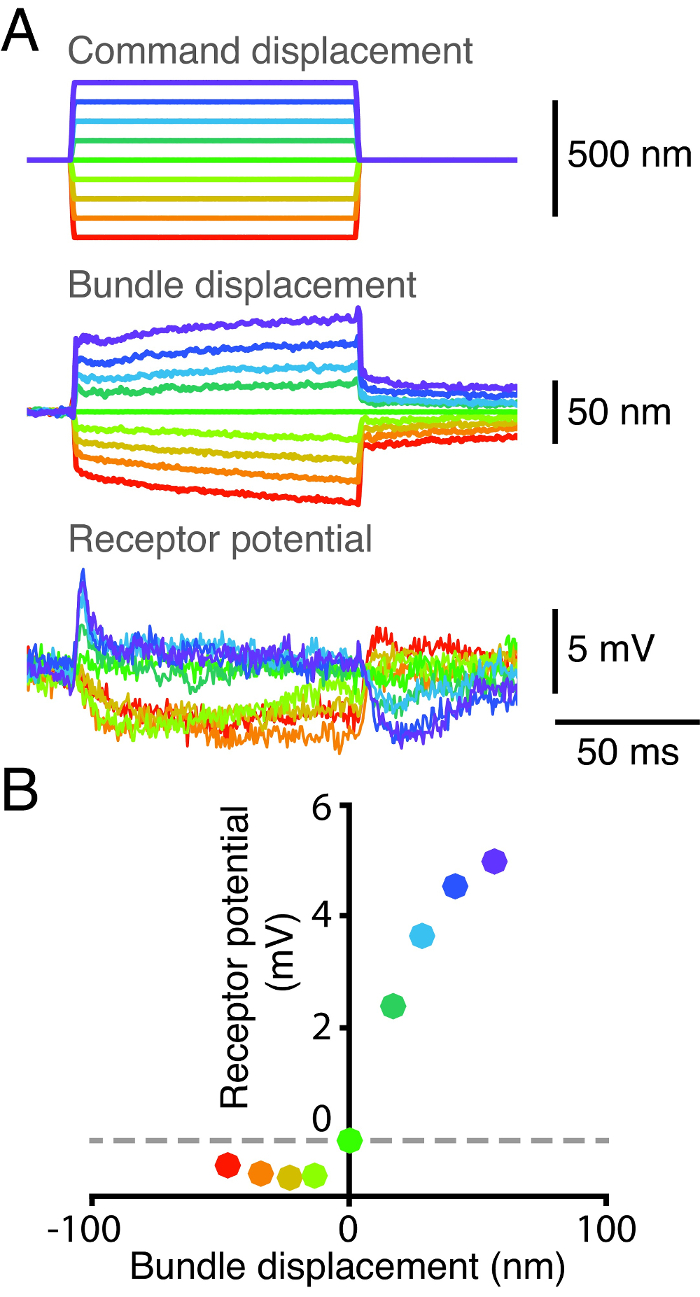
Figura 2: Curva Deslocamento-resposta para um celular único cabelo. (A) A ponta de uma fibra de vidro estímulo foi acoplado ao bulbo kinociliary de uma madeixa de cabelo e a base da fibra foi subsequentemente deslocadas em nove passos discretos. A posição do pacote foi localizado em um sistema dual-fotodiodo, e seu potencial receptor foi simultaneamente medida usando um microeletrodo cuja saída foi passada através de um amplificador em modo bridge. resistência de ponta do eletrodo foi de 95 mohms e potencial de membrana de repouso do pacote era -47 mV. (B) Um lote de receptor de potencial do feixe como uma função do seu deslocamento revela uma relação não linear entre a resposta e a do feixeposição. Cada ponto corresponde à média de deslocamento e potencial significativo ao longo de um intervalo de tempo de 2,5 ms, a partir de 2,5 ms após o início da estimulação mecânica. Cada cor representa um conjunto de séries de tempo correspondente ao mesmo pulso de deslocamento.
Por favor clique aqui para ver uma versão maior desta figura.
Por favor clique aqui para baixar uma versão vetorial desta figura.
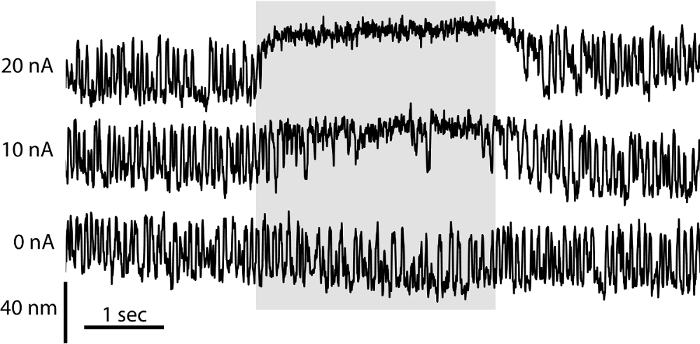
Figura 3: Efeito da gentamicina em espontânea cabelo Bundle oscilação. O movimento espontâneo de uma madeixa de cabelo numa preparação de duas câmaras foi registado utilizando um sistema de fotodiodo dupla. Na ausência de libertação iontoforética de gentamicina (0 NA), o cabelopacote exibe oscilações simétricas. À medida que a magnitude da corrente que passa através de uma pipeta iontoforético cheio com 500 mM de sulfato de gentamicina cresce (10 Na, Na 20), a frequência de passeios de cabelo com feixe desce de uma forma dependente da dose e o feixe é deslocado no sentido da sua aresta de altura por mais períodos de tempo.
Por favor clique aqui para ver uma versão maior desta figura.
Por favor clique aqui para baixar uma versão vetorial desta figura.
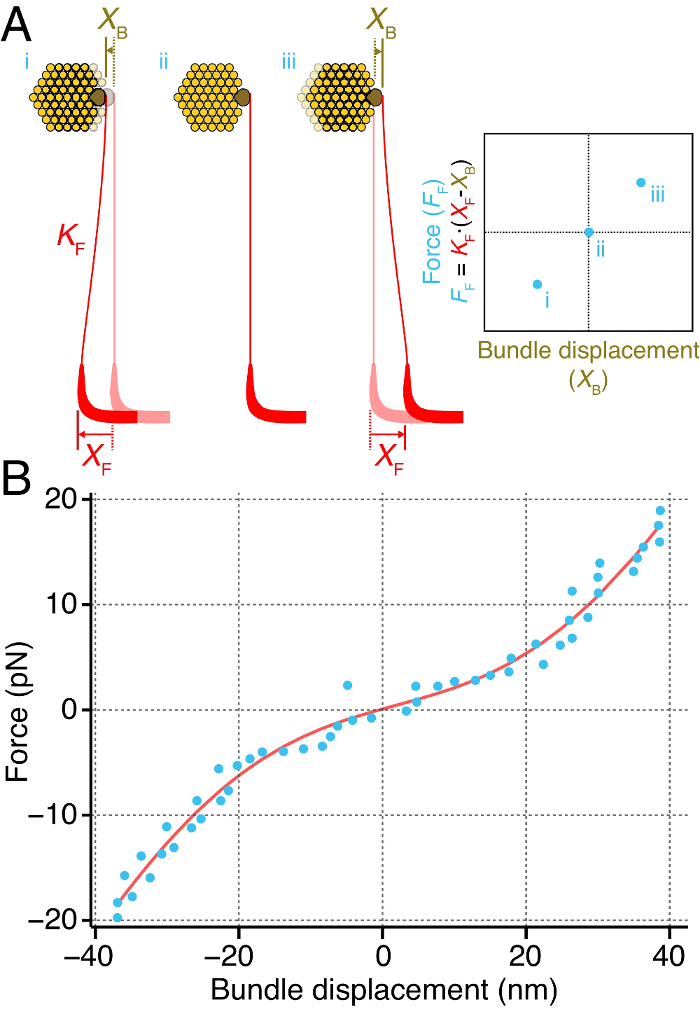
Figura 4. Calculando uma madeixa de cabelo instantânea rigidez. (A) Um estímulo de fibra (vermelho) de rigidez K F T é acopladoo bulbo kinociliary (marrom) de um feixe de cabelo individual (amarelo). O deslocamento da base da fibra de uma distância conhecida X F faz com que o feixe para mover uma distância X B. A diferença entre os deslocamentos da fibra e o feixe é proporcional à força exercida sobre o feixe de fibras pelo estímulo, F F. Repetindo este através de uma gama de forças dá uma relação força-deslocamento instantânea (à direita), cuja inclinação corresponde à rigidez instantânea da madeixa de cabelo. (B) Um feixe indivíduo foi sujeito a uma força de impulsos de amplitude crescente e o seu deslocamento dentro dos primeiros 50 ms após o início do pulso foi medida (pontos azuis). Aqui, a madeixa de cabelo exibe uma rigidez instantânea não-linear ao longo de um intervalo de cerca de 20 nm, em torno da sua posição de repouso. A curva a vermelho corresponde a um ajuste da relação F = k * X - 60 * Z * (1 / (1 + exp (- Z * (X - X 0) / (K B * t))) + F 0, em que F é a força aplicada ao pacote, X é o deslocamento do feixe, k = 790 ± 51 μN ∙ m -1 é o feixe de constante rigidez quando todos os canais estão fechados ou abertos, z = 0,43 ± 0,04 pN é a força de uma única mola gating, X 0 = 2 ± 1,9 nm é a posição do pacote em que 50% dos seus canais estão abertos, k B é de Boltzmann constante, T é a temperatura, e F 0 = 11,7 ± 1,3 pN é uma força de deslocamento. O ajuste possui um coeficiente de determinação de 0,98. A fibra tinha uma rigidez estímulo de 107 μN ∙ m -1.
Por favor clique aqui para ver uma versão maior desta figura.
es / ftp_upload / 55380 / Figure4_v5.eps "target =" _ blank "> Clique aqui para baixar uma versão vetorial desta figura.
| Soluto | Fórmula Peso (g / mol) | Adicionar a 1 L | |
| perilinfa artificial | endolinfa artificial | ||
| NaCl | 58,4 | 6,54 g | 0,117 g |
| KCl | 0,149 | 0,149 g | 8,62 g |
| CaCl 2 2H 2 O ⦁ | 147 | 2 mL de M CaCl2 Estoque 1 | 250 ul de estoque M de CaCl2 1 |
| HEPES | 238,3 | 1,19 g | 1,19 g |
| D - (+) - glucose | 180,2 | 0,541 g | 0. 541 g |
Tabela 1. Soluções para Dissecção e Experimental preparação. Apresentados nesta tabela são as receitas para perilinfa artificial e soluções endolinfa artificiais usados na dissecção e em preparações de um ou dois de câmara. As soluções deverão ser levada a pH 7,2-7,4 com cerca de 2 mL de NaOH (perilinfa) ou 2 ml de KOH (endolinfa). A força osmótica deve ler aproximadamente 230 mmol · kg -1, devido à dissociação iônica incompleto.
Discussão
Dentro sacculus da rã-touro mentir vários milhares de células sensoriais ciliadas facilmente acessíveis. Aqui demonstramos extracção e preparação do sáculo para as gravações de um e dois câmara. Estas duas preparações permitir ambos os estudos micromecânica e eletrofisiológicas das células ciliadas e seus pacotes associados. Porque o tecido pode sobreviver por várias horas com substituição frequente de solução salina oxigenado, as experiências podem continuar por longos períodos. células ciliadas nestas preparações geralmente permanecem viáveis para a gravação de microeletrodos para até 6 horas após a dissecação, enquanto madeixas de cabelo oscilar espontaneamente por até 24 h após a extração.
extração bem sucedida e montagem do sacculus as dobradiças em cima superar vários desafios comuns. Em primeiro lugar, o contacto directo com a superfície apical da mácula sacular deve ser evitada durante todo o procedimento de preparação. O nervo sacular fornece uma alça conveniente para manipu seguralação do sáculo. Uma vez libertado do restante dos órgãos do ouvido interno, o sáculo deve ser transferida utilizando uma pipeta de grande diâmetro enquanto permanece imerso no líquido para evitar danos mecânicos ao seu epitélio sensorial. A remoção de otoconia a partir da superfície macular deve ser completada sem danos mecânicos às células ciliadas. Porque o otoconia deitar diretamente sobre a mácula, células ciliadas podem ser danificados por contato acidental entre as ferramentas de dissecação e da membrana otolítica ao remover otoconia. Para evitar danos, recomendamos que a massa gelatinosa de otoconia ser realizada em um local longe da mácula e removido como uma massa única. Isto evita a fragmentação da massa otoconial em numerosos grupos, cada um dos quais seria extraído individualmente. Se os pequenos aglomerados de otoconia permanecem que pode ser removido com pressão de fluido suave emitido por uma pipeta de Pasteur. Um desafio final envolve a formação de um selo apertado entre a praça sacculus e alumínio de montagem napreparação de duas câmaras. Empregando um quadrado com uma perfuração pequeno o suficiente para permitir a sobreposição de cerca de 100 um entre o sáculo e os circundantes permite alumínio vedação completa do tecido. A cola deverá ser colocado em contacto com aproximadamente 100 um de tecido sacular em torno do perímetro da mácula, a fim de formar um vedante apertado.
A concentração de Ca 2+ livre é uma consideração importante para o estudo de células ciliadas. Ca 2+ regula a adaptação rápido e lento, determinando, assim, a cinética do aparelho mecanotransdução e as características de fenómenos do processo ativo da madeixa de cabelo, incluindo espontânea pacote de movimento 8, 23. Cálcio Endolinfática in vivo está presente em 250 mM, portanto, a cinética mais fisiologicamente relevantes são avaliados nesta concentração (Maunsell JHR, R. Jacobs, e AJ Hudspeth. Unpublisobservações HED 16). No entanto, as gravações de microeléctrodos de células ciliadas requerem uma concentração de cálcio externo e 2 mm para uma vedação adequada da membrana celular em torno do microeléctrodo. Portanto, é imperativo para usar uma solução salina de alta de cálcio para estas experiências. Finalmente, pode desejar-se estudar os efeitos do cálcio externo sobre mecanotransdução usando uma variedade de concentrações de cálcio. Nestes casos, é importante lembrar que as concentrações de cálcio abaixo de 1? M normalmente levar à ruptura ponta-link e perda irreversível de transdução de 28.
As duas preparações experimentais aqui descritos permitem uma gama de medições biofísicas em células pilosas. No entanto, as medições adicionais podem ser feitas, com ligeiras modificações a estas preparações. Na preparação sacular dobrado, madeixas de cabelo são visualizados lateralmente. Imagiologia de cabelo pacote de movimento a partir deste ponto de vista revela mot coerenteion de ambos curto e alto stereocilia 29. Aqui a mácula é primeiro separado do seu tecido subjacente e, posteriormente, dobrado ao longo do eixo definido pelo nervo sacular tal que madeixas de cabelo virada para fora e são visualizados lateralmente no vinco. Uma segunda modificação, a dissociação de células de cabelo, permite o estudo de ambos feixe da célula de cabelo e a sua soma. As células ciliadas são mecanicamente dissociadas numa lâmina de vidro para imagens e eletrofisiológicos de gravação 30. Finalmente, as células ciliadas pode ser extrudido a partir do epitélio, seguindo um protocolo de dissociação semelhante mas sem o passo de dissociação mecânica. Este tratamento resulta em células ciliadas que expulsam gradualmente para fora do epitélio, proporcionando acesso basolateral para registos electrofisiolicos, minimizando os danos mecânicos. Estas preparações e as suas muitas modificações demonstrar a versatilidade do sáculo sapo como um sistema modelo para o biofísicoestudo de células pilosas sensitivas.
Divulgações
Os autores declaram não haver interesses conflitantes.
Agradecimentos
Os autores desejam agradecer ao Dr. A. J. Hudspeth pelo financiamento e experiência no desenvolvimento das preparações descritas neste artigo. Também gostaríamos de agradecer a Brian Fabella por criar e manter grande parte dos equipamentos e softwares personalizados usados neste protocolo.
J. B. A. é apoiado por grant F30DC014215, J. D. S. é apoiado por grant F30DC013468, e tanto J. B. A. quanto J. D. S. são apoiados por grant T32GM07739 do National Institutes of Health.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Comum a ambas as preparações | |||
| Microscópio de estereo-dissecação | Leica | MZ6 | Outras fontes podem ser usadas |
| Tricaine metanossulfonato | Sigma | E10521 | Outras fontes podem ser usadas |
| Haste de tubulação de metal | Ferramentas de Fine Science | 10140-01 | |
| Tesoura de mola Vannas | Fine Science Tools | 15000-03 | |
| Dumont #5 fórceps | Fine Science Tools | 11252-20 | |
| Glass Pasteur pipeta e bulbo (x2) | Fisher Scientific | 22-042816 | |
| Cílios finos montados em uma agulha hipodérmica | Fisher Scientific | 22-557-172 | |
| Graxa a vácuo Dow-corning | Fisher Scientific | 14-635-5C | |
| Seringa para vácuo graxa | Fisher Scientific | 14-829-45 | Outras fontes podem ser usadas |
| Placa de Petri de 35 mm (x2 - 3) | Fisher Scientific | 08-772A | Outras fontes podem ser usadas |
| Extrator de micropipeta | Sutter | P-97 ou P-2000 | |
| 120 V Extrator | Feito em casa, veja a lista de peças | ||
| Revestidor de pulverização | Anatech USA | Hummer 6.2 | |
| Fonte de corrente para iontoforese | Axon Instruments | AxoClamp 2B | Outras fontes podem ser usadas |
| Atuador piezoelétrico | Piezosystem Jena | P-150-00 | |
| Amplificador para atuador piezoelétrico | Piezosystem Jena | ENV800 | |
| Capilar de vidro borossilicato | World Precision Instruments | 1B120F-3 | |
| Nome | Company | Número de catálogo | Comentários |
| Para preparação de uma câmaraAmplificador de | |||
| microeletrodos | Axon Instruments | AxoClamp 2B | Pode ser usado para gravações de iontoforese e microeletrodos simultaneamente |
| Pinos magnéticos (x2) | Feito em casa, veja a lista de peças | ||
| Câmara aberta com folha | Caseiro, consulte a lista de peças | ||
| Nome | Empresa | Número de catálogo | Comentários |
| Para preparação de duas câmaras | |||
| Câmara superior | Lima suplementar 1 | ||
| inferior côncava | Lima suplementar 2 | ||
| Folha de alumínio | Fisher Scientific | 01-213-100 | Outras fontes podem ser usadas |
| Bloco | Lima suplementar 3 | ||
| Varetas aplicadoras de madeira | Fisher Scientific | 23-400-112 | Outras fontes podem ser usadas |
| Folha de teflon | McMaster-Carr | 8545K12 | Para aplicador de teflon |
| Cola de cianoacrilato | 3M | 1469SB | |
| Tecidos de laboratório (Kimwipes) | Fisher Scientific | 06-666A | Outras fontes podem ser usadas |
| Sulfato de gentamicina | Sigma-Aldrich | G1914 | Outras fontes podem ser usadas |
| Epóxi de secagem rápida | McMaster-Carr | 7605A18 | |
| 18 lamínulas de vidro de 18 mm | Fisher Scientific | 12-546 | Outras fontes podem ser usadas |
| Nome | Empresa | Número de catálogo | Comentários |
| Componentes salinos | |||
| NaCl | Fisher Scientific | S271-3 | Outras fontes podem ser usadas |
| KCl | Sigma-Aldrich | P4504-500G | Outras fontes podem ser usadas |
| CaCl2 • 2H2O | Fisher Scientific | 10035-04-8 | Outras fontes podem ser usadas |
| HEPES | Sigma-Aldrich | H3375-100G | Outras fontes podem ser usadas |
| D-(+)-glicose | Sigma-Aldrich | G7021 | Outras fontes podem ser usadas |
| Nome | Empresa | Número de catálogo | Comentários/Descrição |
| Listas de peças para equipamentos caseiros< | |||
| strong>Extrator de solenóide | |||
| Solenóide | Guardian Electric | A420-065426-00 | Outras fontes podem ser usadas |
| Interruptor de pedal | Linemaster | T-51-SC36 | Outras fontes podem ser usadas |
| Suporte de pipeta | World Precision Instruments | MEH900R | Outras fontes podem ser usadas |
| Manipulador grosso | Narishige Group | MM-3 | Outras fontes podem ser usadas |
| Fio de platina | Alfa Aesar | 25093 | Outras fontes podem ser usadas |
| Fonte de alimentação | Leica | Z050-261 | Outras fontes podem ser usadas |
| Nome | Empresa | Número de catálogo | Comentários/Descrição |
| Pinos magnéticos | |||
| Epoxy | McMaster-Carr | 7556A33 | Outras fontes podem ser usadas |
| Alumínio de 1 mm de espessura | McMaster-Carr | 89015K45 | Outras fontes podem ser usadas |
| Alfinetes de insetos | Ferramentas de Belas Ciências | 26000-40 | Outras fontes podem ser usadas |
| Nome | Empresa< | strong>Número de Catálogo | Comentários/Descrição |
| Magnético aberto câmara | |||
| Fita magnética flexível | McMaster-Carr | 5759K75 | Outras fontes podem ser usadas |
| 1 mm de espessura de alumínio | McMaster-Carr | 89015K45 | Outras fontes podem ser usadas |
Referências
- Brandon, C. S., Voelkel-Johnson, C., May, L. A., Cunningham, L. L. Dissection of Adult Mouse Utricle and Adenovirus-mediated Supporting-cell Infection. JoVE (Journal of Visualized Experiments). (61), e3734-e3734 (2012).
- Howard, J., Hudspeth, A. J. Compliance of the hair bundle associated with gating of mechanoelectrical transduction channels in the bullfrog's saccular hair cell. Neuron. 1 (3), 189-199 (1988).
- Jaramillo, F., Hudspeth, A. J. Localization of the hair cell's transduction channels at the hair bundle's top by iontophoretic application of a channel blocker. Neuron. 7 (3), 409-420 (1991).
- Assad, J. A., Hacohen, N., Corey, D. P. Voltage dependence of adaptation and active bundle movement in bullfrog saccular hair cells. Proceedings of the National Academy of Sciences of the United States of America. 86 (8), 2918-2922 (1989).
- Benser, M. E., Issa, N. P., Hudspeth, A. J. Hair-bundle stiffness dominates the elastic reactance to otolithic-membrane shear. Hearing research. 68 (2), 243-252 (1993).
- Martin, P., Hudspeth, A. J. Active hair-bundle movements can amplify a hair cell's response to oscillatory mechanical stimuli. Proceedings of the National Academy of Sciences of the United States of America. 96 (25), 14306-14311 (1999).
- Salvi, J. D., Ó Maoiléidigh, D., Fabella, B. A., Tobin, M., Hudspeth, A. J. Control of a hair bundle's mechanosensory function by its mechanical load. Proceedings of the National Academy of Sciences. 112 (9), E1000-E1009 (2015).
- Martin, P., Bozovic, D., Choe, Y., Hudspeth, A. J. Spontaneous Oscillation by Hair Bundles of the Bullfrog's Sacculus. Journal of Neuroscience. 23 (11), 4533-4548 (2003).
- Hudspeth, A. J., Lewis, R. S. A model for electrical resonance and frequency tuning in saccular hair cells of the bull-frog, Rana catesbeiana. The Journal of physiology. 400, 275-297 (1988).
- Hudspeth, A. J., Lewis, R. S. Kinetic analysis of voltage-and ion-dependent conductances in saccular hair cells of the bull-frog, Rana catesbeiana. The Journal of physiology. , (1988).
- Fisher, J. A. N., Kowalik, L., Hudspeth, A. J. Imaging electrical resonance in hair cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (4), 1651-1656 (2011).
- Patel, S. H., Salvi, J. D., Ó Maoiléidigh, D., Hudspeth, A. J. Frequency-selective exocytosis by ribbon synapses of hair cells in the bullfrog's amphibian papilla. The Journal of neuroscience : the official journal of the Society for Neuroscience. 32 (39), 13433-13438 (2012).
- Gale, J. E., Meyers, J. R., Periasamy, A., Corwin, J. T. Survival of bundleless hair cells and subsequent bundle replacement in the bullfrog's saccule. Journal of neurobiology. 50 (2), 81-92 (2002).
- Hudspeth, A. J. Mechanoelectrical transduction by hair cells of the bullfrog's sacculus. Progress in brain research. 80, 129-135 (1989).
- Hudspeth, A. J. Integrating the active process of hair cells with cochlear function. Nature Reviews Neuroscience. 15 (9), 600-614 (2014).
- Corey, D. P., Hudspeth, A. J. Response latency of vertebrate hair cells. Biophysical journal. 26 (3), 499-506 (1979).
- Cheung, E. L. M., Corey, D. P. Ca2+Changes the Force Sensitivity of the Hair-Cell Transduction Channel. Biophysical journal. 90 (1), 124-139 (2006).
- Choe, Y., Magnasco, M. O., Hudspeth, A. J. A model for amplification of hair-bundle motion by cyclical binding of Ca2+ to mechanoelectrical-transduction channels. Proceedings of the National Academy of Sciences of the United States of America. 95 (26), 15321-15326 (1998).
- Assad, J. A., Corey, D. P. An active motor model for adaptation by vertebrate hair cells. Journal of Neuroscience. 12 (9), 3291-3309 (1992).
- Crawford, A. C., Evans, M. G., Fettiplace, R. Activation and adaptation of transducer currents in turtle hair cells. The Journal of physiology. , 405-434 (1989).
- Howard, J., Hudspeth, A. J. Mechanical relaxation of the hair bundle mediates adaptation in mechanoelectrical transduction by the bullfrog's saccular hair cell. Proceedings of the National Academy of Sciences of the United States of America. 84 (9), 3064-3068 (1987).
- Purves, R. D. The release of drugs from iontophoretic pipettes. Journal of Theoretical Biology. 66 (4), 789-798 (1977).
- Tinevez, J. Y., Jülicher, F., Martin, P. Unifying the various incarnations of active hair-bundle motility by the vertebrate hair cell. Biophysical journal. 93 (11), 4053-4067 (2007).
- Ó Maoiléidigh, D., Nicola, E. M., Hudspeth, A. J. The diverse effects of mechanical loading on active hair bundles. Proceedings of the National Academy of Sciences of the United States of America. 109 (6), 1943-1948 (2012).
- Kennedy, H. J., Crawford, A. C., Fettiplace, R. Force generation by mammalian hair bundles supports a role in cochlear amplification. Nature. 433 (7028), 880-883 (2005).
- van Netten, S. M., Khanna, S. M. Stiffness changes of the cupula associated with the mechanics of hair cells in the fish lateral line. Proceedings of the National Academy of Sciences of the United States of America. 91 (4), 1549-1553 (1994).
- Bormuth, V., Barral, J., Joanny, J. F., Jülicher, F., Martin, P. Transduction channels' gating can control friction on vibrating hair-cell bundles in the ear. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7185-7190 (2014).
- Crawford, A. C., Evans, M. G., Fettiplace, R. The actions of calcium on the mechano-electrical transducer current of turtle hair cells. The Journal of physiology. , 369-398 (1991).
- Kozlov, A. S., Risler, T., Hudspeth, A. J. Coherent motion of stereocilia assures the concerted gating of hair-cell transduction channels. Nature Neuroscience. 10 (1), 87-92 (2007).
- Lumpkin, E. A., Hudspeth, A. J. Regulation of free Ca2+ concentration in hair-cell stereocilia. Journal of Neuroscience. 18 (16), 6300-6318 (1998).
Reimpressões e permissões
