Aqui, apresentamos um protocolo para isolar a fucoxantina clorofila a/c proteínas obrigatórias (FCP) de diatomáceas e incorporá-las em lipossomas com composições de lipídios naturais para estudar a transferência de energia de excitação sobre as alterações de composição do íon.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Isolando e incorporando luz-colheita antenas de diatomáceas Cyclotella Meneghiniana em lipossomas com lipídios tilacoides
Neste artigo
Resumo
Resumo
O desempenho fotossintético de plantas, algas e diatomáceas depende fortemente do Regulamento rápido e eficiente, a colheita de luz e energia processos de transferência na membrana tilacoides de cloroplastos. A luz da colheita antena de diatomáceas, as proteínas de ligação a/c de clorofila do chamado fucoxantina (FCP), são necessários para a absorção de luz e centros de transferência eficiente para a reação fotossintética também quanto a foto-proteção contra luz em excesso. O interruptor entre essas duas funções é uma questão de longa data de pesquisa. Muitos desses estudos tenham sido realizados com FCP em micelas de detergente. Para estudos de interacção, os detergentes foram removidos, o que levou a uma agregação inespecífica de complexos do FCP. Nesta abordagem, é difícil discriminar entre artefatos e dados fisiologicamente relevantes. Portanto, informações mais valiosas sobre FCP e outro luz de membrana acoplada colheita complexos podem ser obtidas através do estudo de interações da proteína-proteína, transferência de energia e outros recursos espectroscópicos se estão inseridos em seu ambiente nativo de lipídios. A principal vantagem é que os lipossomas têm um tamanho definido e uma proporção de lipídio/proteína definidos pelo qual a extensão do FCP cluster é controlada. Além disso, alterações na composição do pH e íon que regulam a luz colheita na vivo podem ser facilmente simuladas. Em comparação com a membrana dos tilacoides, os lipossomas são mais homogêneo e menos complexo, que torna mais fácil de obter e compreender dados espectroscópicos. O protocolo descreve o procedimento de FCP isolamento e purificação, preparação de lipossomas e incorporação do FCP lipossomas com composição lipídica natural. Resulta de uma aplicação típica são dadas e discutidas.
Introdução
Organismos fotossintéticos como diatomáceas devem lidar com a constante mudança de condições de luz e responder com mecanismos sofisticados de aclimatação que sustentar alta eficiência fotossintética e protegem contra danos foto-oxidativo causado pela luz excessiva. Um processo de luz-protetores principal em eucariontes fotossintéticos é a alta energia têmpera (qE) da luz absorvida que ocorre como a principal contribuição para a não-fotoquímica têmpera (NPQ) sob condições de estresse leve1,2 ,3. Os complexos de antena colheita luz (LHC) estão envolvidos na regulação das vias de transferência de energia de excitação. Em resposta à luz alta induzidas pelo baixo pH no lúmen do cloroplasto, os interruptores do sistema de antena da luz colheita de estado para o estado de têmpera. Este estado de energia dissipativas protege fotossistemas (PS) e outros complexos na membrana tilacoides de foto-oxidação. Em eucariontes fotossintéticos, o qE é geralmente induzida por dois fatores1,2,3. Um fator é a luz especializada colheita proteína que responde ao baixo pH. A proteína PsbS induz o qE , em maior de plantas4. LhcSRs5, modulada pela atividade do PsbS, induzir o qE nas algas verdes6. Diatomáceas possuem proteínas, como Lhcx que estruturalmente relacionada com a LHCSRs7,8,9,10.
O segundo fator de qE é o ciclo da xantofila onde carotenoides da antena são convertidos em uma forma de foto-protetora por de epoxidação e revertidos por epoxidação. Plantas e algas verdes, violaxantina é convertida em zeaxantina. Diatomáceas, diadinoxantina é convertida em diatoxanthin, que em seguida se correlaciona com a extensão da NPQ11. A luz de diatomáceas colheita antena possui algumas peculiaridades, embora relacionadas com plantas e algas LHCs é evolutiva. O interruptor de luz da colheita para foto-proteção é extremamente rápido e a capacidade NPQ é superior em comparação com plantas12. Isto pode ser uma razão porque diatomáceas são muito bem sucedidas em diferentes nichos ecológicos, de forma que eles são responsáveis por até 45% da produção primária líquida oceânica13. Portanto, luz, sistemas de colheita de diatomáceas são um interessante objeto de pesquisa de fotossíntese.
Diatomáceas, como as espécies centralizado no Cyclotella meneghiniana, possuem tilacoides intrínseca luz colheita sistemas em homenagem os pigmentos eles vincular - fucoxantina, clorofila (chl) a e c, daí Light FCP. colheita de proteínas, tais como FCPs, são incorporado no sistema de membrana tilacoides, composto por várias camadas de membrana. Diatomáceas formam bandas de três contém. Este complexo situação dificulta a estudá-los no nível molecular na membrana tilacoides. Além disso, muitos componentes contribuem para a regulação da luz da colheita (veja acima). Portanto, em muitas abordagens, os complexos foram isolados a partir da membrana usando detergentes suaves, tais como n-dodecil-β-D-maltopyranoside (β-DDM), que solubilizar a membrana, mas manter os complexos FCP intacta. Muitos estudos espectroscópicos foram realizados usando o FCP solubilizado para investigar a energia intramolecular transferência14,15,16,17. No entanto, esta primeira abordagem foi limitada, desde que o Regulamento de transferência de energia precisa de excitônicas interação com outros complexos de antena ou de fotossistemas. Daí, esses tipos de estudos não podem ser realizados com solubilizado complexos porque a interação entre complexos é perdida.
Uma característica importante no Regulamento da antena é a "exclusão molecular" da antena e fotossistemas na membrana tilacoides18. Anteriormente, realizou uma abordagem simples para simular este efeito in vitro. O detergente foi removido, o que leva à agregação aleatória de complexos de antena. Embora alguns dados razoáveis foi obtidos por esta abordagem17,19, a remoção do detergente não reflete a situação na vivo e tem algumas limitações, desde que os complexos não estão interagindo em sua regular terciário estrutura.
O uso de lipossomas supera várias das limitações anteriores. A estrutura terciária ainda está totalmente intacta. A membrana do lipossoma fornece um ambiente quase nativo para os complexos de antena. A membrana separa o interior do lipossoma o ambiente exterior. Por estes meios, os lipossomas fornecem dois compartimentos de reação para estudos de gradientes iônica e pH, bem como quanto aos processos de transporte. Além disso, os parâmetros do sistema experimental podem ser controlados mais facilmente para estudos na membrana tilacoides. Os lipossomas foram já mostrou ser uma excelente ferramenta para o estudo de complexos fotossintéticos. Um grande foco no passado foi na planta LHC onde o efeito de composição de lipídios alterados foi testado no LHC II20. Em outras abordagens, a interação da proteína-proteína entre diferentes LHC II foram investigados21. Além disso, alguns em algas verdes foram realizados estudos que descrevem a aglomeração espontânea entre LHC22. Considerando a importância das diatomáceas para ecossistemas aquáticos, relativamente poucos estudos foram realizados com complexos de antena de diatomáceas. Dois estudos investigaram os complexos antena do centralizado no meneghiniana de Cyclotella, onde a aglomeração do FCP antena23 e capacidade de resposta do FCP para gradientes eletroquímicos24 foram mostrados. Assim, os lipossomas são uma excelente ferramenta para estudar a antenas de diatomáceas e sua interação e regulamento em condições quase nativos. Os lipossomas são versáteis desde muitas condições tais como a composição de lipídios, lipossomas tamanho, densidade de proteína e a fase aquosa circundante pode ser controlada. Além disso, o método requer pequenas quantidades de amostras. O sistema experimental é robusto e altamente reprodutíveis. Compartimentação dos lipossomas permite estudar o pH e gradientes de íons, que são importantes fatores na regulação dos complexos de antena.
Aqui, descrevemos o isolamento de complexos de antena FCP de c. meneghiniana e sua incorporação em lipossomas com composição lipídica de tilacoides natural. Também, fornecemos dados exemplares para a caracterização espectroscópica de FCP solubilizado e compará-los com FCP em lipossomas. O método resume o conhecimento e protocolos padronizados obtidos com as melhorias de Gundermann e Büchel 201223Natali et al 201622e Ahmad e 2017 Dietzel24.

Figura 1: representação esquemática do fluxo de trabalho. (1) refere-se ao n º 1, que descreve o crescimento celular, ruptura e isolamento de tilacoides com a seguinte separação FCP em gradientes de densidade de sacarose; C. m. -Células deCyclotella meneghiniana . (2) preparação de tilacoides natural mistura de lipídios (MGDG, Junior e SQDG) descrita no n º 2 e criação de micelas de lipídios-detergente com octylglycoside (OG). Um tamanho definido lipid-micelle é alcançado por extrusão usando membranas de um diâmetro de poro definido. FCP e micelas de lipídios são unificadas em um lipido predefinido: proporção de proteína e os detergentes OG e β-DDM são removidos através de controlada diálise formando FCP proteoliposomes. Clique aqui para ver uma versão maior desta figura.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
Nota: Complexos fotossintéticos como FCPs são altamente vulneráveis à luz e ao calor. Sempre trabalho no gelo e sob uma luz muito fraca.
1. isolamento de FCP de células
-
Isolamento de tilacoides de células de c. meneghiniana
- C. meneghiniana em cinco frascos de 500 mL que cada um preenchido com 300 mL de ASP-médio23,25 e 50 milhões de células de crescer. Conecte os frascos com uma rolha de algodão e permitir que as células a crescer para a fase de crescimento exponencial por aproximadamente uma semana num agitador a 120 rpm com 16 h luz e fase escura de 8 h a 40 µmol photons/(m²s) branco luz e uma temperatura entre 15-18 ° C. Verifique se o número de celular está entre 1,5 milhões de células/mL com uma câmara de contador de célula.
- Centrifugar as células a 4.000 x g em um rotor pré-resfriado com frascos de 500 mL centrífuga (4 ° C) por 15 min em uma centrífuga de alta velocidade. Re-suspenda as pelotas de célula em 12 mL de tampão de homogeneização (HB, tabela 1) de pipetagem.
- Transferi a suspensão para um tubo de plástico de 50ml único. Armazenar as amostras a-80 ° C ou prosseguir para a etapa 1.1.3.
- Pré-fixe o moinho de esferas e equipamentos. Encher o béquer de 50 mL do moinho do grânulo para 75% com uma mistura de grânulo de vidro e adicionar a suspensão de eritrócitos. Para rompimento da pilha, use pulsos de 7 x 45 s a toda velocidade com 30 s de resfriamento entre cada pulso. Tome 20 µ l de células rompidas para verificações de qualidade na etapa 1.1.6.
- Filtre as células rompidas sobre um funil de vidro filtro e lave por derramando o HB sobre os grânulos de vidro até que eles aparecem claros. A fração de lavagem com o filtrado de piscina. Manter o volume final inferior a 150 mL.
- Centrifugar a amostra por 15 min a 140 x g , usando três tubos de plástico de 50 mL para os detritos de célula de Pelotas. Cuidadosamente, transferir o sobrenadante para frascos de ultracentrifugação de policarbonato de 20 mL e descartar a pelota.
- Encha os frascos com HB, equilibrar o peso e centrifugue em um rotor adequado por 1h em 300.000 x g e 4 ° C para as membranas tilacoides de Pelotas.
- Use o tempo de centrifugação para verificar a proporção de células rompidas por microscopia em ampliação de X 400 com a 20 µ l da amostra tirada em 1.1.3. Calcule a relação entre o cloroplasto livre e cloroplasto que contém frustules (conchas de silicone).
Nota: Paredes celulares de diatomáceas são feitas de sílica, que é visível como altamente diffracting substância no microscópio. Cloroplastos ocorrendo pontos tão verdes devem foram liberados das células se trabalhou o rompimento da pilha. - Ressuspender o pellet de membrana com como tampão de lavagem pequena quanto possível (0,5-1 mL) usando o pincel de um pintor pequeno. Encha os frascos de ultracentrifugação de policarbonato com lavagem Reserva (tabela 1), equilibrar o seu peso e centrifugar por 20 min em 200.000 x g e 4 ° C.
- Re-suspenda as membranas lavadas com pincel de um pintor. Adicione o tampão de lavagem somente se necessário para manter a concentração de tilacoides mais alta possível. Todos contém no frasco (15 mL) de uma amostra da piscina.
- Pre-dilua as amostras usando 10 µ l da amostra com 90 µ l de acetona 100%. -Centrifugar a 12.000 x g por 5 min para proteína precipitada de Pelotas. Pegue 10 µ l da pré diluição e misturá-lo com 990 µ l de 90% de acetona.
- Medir a absorbância (ABS) da clorofila a e c em 664 nm e 630 nm em 90% de acetona. Subtrai o ABS750nm de ambos os valores. Determinar o teor de clorofila total usando a seguinte fórmula:24
1)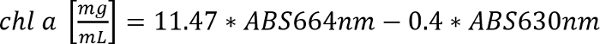
2)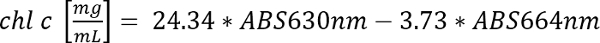
- Medir a absorbância (ABS) da clorofila a e c em 664 nm e 630 nm em 90% de acetona. Subtrai o ABS750nm de ambos os valores. Determinar o teor de clorofila total usando a seguinte fórmula:24
- Alíquota contém, em doses de 0,5 mg de clorofila total em um tubos de reação de 1,5 mL, congelá-los em nitrogênio líquido e armazená-los a-80 ° C até utilização posterior.
-
Separação e concentração de complexos FCP
- Preparar uma solução de gradiente de sacarose e encher os tubos de se até o topo, menos o volume de carga (300-500 µ l). Congele os tubos a-20 ° C até que eles são completamente congelados. Permitir que os tubos descongelar a + 4 ° C, que leva 3-4 h para um tubo de 17 mL.
- Repeti o ciclo de congelamento-descongelamento duas vezes para refinar o gradiente para melhor resolução.
- Use as amostras obtidas em 1.1.9 correspondente a 0,5 mg de clorofila e ajuste com buffer B1 (tabela 1) para um volume final de 2ml. Para solubilização, adicione n-dodecil-β-D-maltopyranoside (b-DDM) a uma concentração final de 20 mM.
- Inverter o tubo 3 vezes e coloque-o no gelo por 20 min com agitação suave para evitar espuma. Centrifugue por 5 min, a 12.000 x g em uma centrífuga de pre-cooled tabela superior a + 4 ° C.
- Carrega o sobrenadante do gradiente. Não carregue mais de 125 µ g de clorofila total por gradiente se 17 mL frascos são usados. Centrífuga para 22 h em 100.000 x g e + 4 ° C.
- Recupere as frações FCP marrons desejadas de gradiente usando uma seringa (Figura 2A). Tirar um 5 µ l alíquota e dilui-lo com 995 µ l de B1a.
- Medir o espectro de absorbância (ABS) entre 370-750 nm em um espectrofotômetro UV-VIS. Use o vidro ótico semi micro cubetas.
- Abra o software gerenciador de espectros, ir para o modo de espectro e gravar uma linha de base de 370 a 750 nm seguido por medições de amostra. Use as seguintes configurações: digitalizar velocidade, 200 nm/min; campo de dados, 0,5 nm; resposta, média.
- Medir o volume da amostra recuperada com uma micropipeta. Lave os complexos do FCP, adicionando duas vezes o volume recuperado com buffer B1 (tabela 1). Concentre-se em um concentrador de membrana com um 30 kDa corte a 1.000 x g e + 4 ° C para um ABS672nm pelo menos 20.
Nota: A concentração de b-DDM pode levantar-se devido ao enriquecimento micelle no compartimento da amostra. Isto pode levar a maior solubilização dos complexos FCP! Evite excesso de solubilização adicionando detergente buffer livre B1 se lavar mais etapas são necessárias para remover a sacarose residual. - Tome um 20 µ l de alíquota para os controles. Choque, congelar as amostras em nitrogênio líquido e armazená-los a-80 ° C.
- Preparar uma solução de gradiente de sacarose e encher os tubos de se até o topo, menos o volume de carga (300-500 µ l). Congele os tubos a-20 ° C até que eles são completamente congelados. Permitir que os tubos descongelar a + 4 ° C, que leva 3-4 h para um tubo de 17 mL.
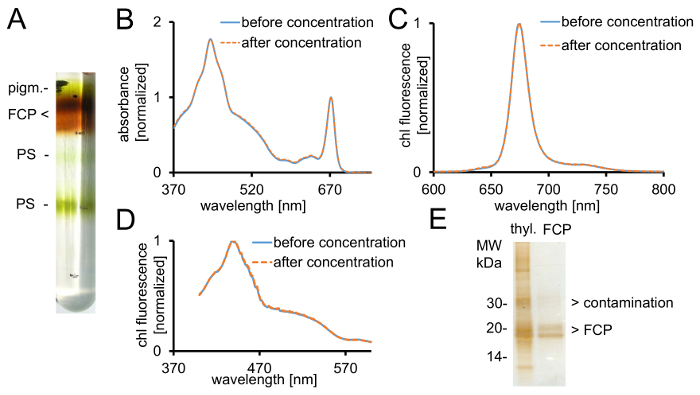
Figura 2: purificação do FCP, espectroscópicos controles e verificação de pureza. (A) aparência típica de um gradiente de densidade de sacarose após centrifugação durante a noite. Todas as bandas marrons contêm a piscina FCP consistindo de FCPa e FCPb. pigm. - desacoplado pigmentos, PS - fotossistemas espectros de absorvância (B) do FCP antes (linha azul) e depois concentração (linha tracejada laranja) usando dispositivos de filtro centrífugo com corte 30 kDa . Particularmente, carotenoides são propensas a perda do FCP, o que resultaria em absorvância inferior na região entre 500-550 nm. Gráficos são normalizados para a clorofila Qy máxima no ~ 670 nm. Espectros de emissão de clorofila a (C) com excitação de chl c (465 nm) para testar a transferência de energia de excitação funcional. Se a energia transferida da chl c para chl um é dificultada, uma banda de fluorescência adicional em ~ 640 nm (chl c) ocorreria. Gráficos são normalizados para a máximo de emissão. (D) espectros de excitação gravado no 675 nm (chl uma fluorescência máxima) para testar a transferência de energia para chl um de todos os pigmentos de absorção entre 370 nm e 600 nm. Se a energia transferida para chl um é menos eficiente, o rendimento de fluorescência diminuiria especialmente entre 465 e 550 nm. Os gráficos são normalizados para o máximo em 440 nm. Os espectros (b), (C) e (D) são praticamente idênticas, se a concentração funcionou bem. (E) verificar a pureza do FCP isolado usando um gel de Tris-tricine28. FCPa e FCPb têm subunidades entre 18-19 kDa. Todas visíveis prata manchada as proteínas maiores que 20 kDa são contaminantes. Thyl. -Contém clique aqui para ver uma versão maior desta figura.
-
Controles baseados em gel e espectroscópicos
- Registro da absorbância entre 370-750 nm de 5 µ l do FCP em 995 µ l de B1a depois passo 1.2.5. Compará-lo com o espectro obtido na etapa 1.2.4. Use a mesma instrumentação e configurações conforme descrito na etapa 1.2.4.
- Exportar dados como *. csv e importar os dados para uma planilha. Normalizar os dois espectros com o máximo de chl na banda de cerca de 672y Q nm, conforme representado na Figura 2B.
- Calcule o fator de diluição das amostras da etapa 1.2.4 e 1.3.1 dividindo o ABS medido672nm pelo desejado ABS672nm de 0,03. Diluir as amostras em conformidade com B1a e transferi-los para cubetas de fluorescência de vidro especial.
- Grave a chl um espectro de emissão de fluorescência com um spectrofluorometer para revelar a transferência de energia luz intacta de chl c a chl um (Figura 2).
- Use o software do espectrômetro e ir para o modo de medição do espectro com as seguintes configurações: modo, emissão; fenda de largura excitação e emissão, 3 nm; sensibilidade, média; velocidade de digitalização, 100 nm/min; campo de dados, 0,5 nm; comprimento de onda de excitação, 465 nm; emissão, 600-800 nm. Execute analógicos e medida.
- Grave espectros de excitação com a mesma amostra e equipamento para revelar a transferência de energia intactos, de todos os pigmentos para chl (Figura 2D). Alterar configurações para: modo, excitação; comprimento de onda de emissão, 675 nm; excitação, 370-600 nm. Grave os espectros.
- Corrija com um espectro de rodamina na mesma faixa para propriedades espectrais da lâmpada – cf. instruções no manual do usuário.
- Amostras de Mix FCP correspondente a 1 µ g de chl um com 10 µ l de tampão de carregamento SDS. Incubar durante 10 minutos a 25 ° C. Centrifugue por 5 min a 12000 x g em uma centrífuga de mesa.
- Carrega o sobrenadante em um gel de Tris-tricine28. Separá-lo por 2 h a 150 V e prata-mancha-lo após a separação de40.
Nota: As subunidades FCP separam em duas bandas de proteína proeminente entre 18-19 kDa, que são constituintes da FCPa e FCPb29 (Figura 2E).
- Carrega o sobrenadante em um gel de Tris-tricine28. Separá-lo por 2 h a 150 V e prata-mancha-lo após a separação de40.
- Registro da absorbância entre 370-750 nm de 5 µ l do FCP em 995 µ l de B1a depois passo 1.2.5. Compará-lo com o espectro obtido na etapa 1.2.4. Use a mesma instrumentação e configurações conforme descrito na etapa 1.2.4.
2. preparação de lipossomas e incorporação do FCP
-
Preparação da mistura de lipídios e detergente micelas de lipídios
Nota: lipídios são suscetíveis a aquecer temperaturas combinadas com condições oxidativas. Tente manter os lipídios refrigerados e sob uma atmosfera de2 N.- Calcule os rácios de lipídios tilacoides desejado para meneghiniana c. de acordo com Vieler et al . 200730. Consulte o exemplo dado em suplementar a tabela 1. Prepare os lipídios as soluções recomendadas pelo fabricante em um recipiente à prova de solvente.
- Pipetar a quantidade desejada de lipídios em um tubo de reação de 2 mL e evaporar o clorofórmio utilizando um fluxo suave de nitrogênio e tentar os lipídios espalhados por toda a área da base do tubo. Deixe o fluxo de2 N até que todo solvente é evaporado.
- Solubilizar a mistura de lipídios em 29 µ l da solução de β-D-glucopiranósido n-octil (OG) a 4 ° C, durante 4 h. Incubar a mistura lipídica durante 10 minutos a 30 ° C. Incubar os lipídios em banho sonicador para min 3 x 3 a 25 ° C, interrompida por 30 s no gelo.
- Adicione 221 µ l de tampão de tricine e 250 µ l de tampão de diálise x 4.
- Use uma extrusora com membranas de policarbonato 0,1 µm de diâmetro de 50-70 nm definidos em lipossomas. Monte a extrusora com o apoio da membrana e filtro. Evitar bolhas de ar e aperte o conjunto completamente.
- Encher uma seringa com buffer de diálise x 4 e pre-molhado da extrusora até que nenhuma bolha pode ser vista na segunda seringa.
- Aplicar os lipid-detergente-micelas para a extrusora e pressione a solução de uma seringa para o outro para trás e volta. Repita este passo 5 vezes até parece a solução homogênea.
Nota: Esta solução pode ser armazenada a 4 ° C por vários dias. Não congele!
-
Incorporação de FCP complexos e remoção de detergentes e agregados
Nota: Neste exemplo, usamos um lipídio/chl uma proporção de 12:1, que corresponde a uma proporção lipídio/proteína de aproximadamente 100: 1.- Adicionar o FCP igual a 20 µ g de chl um em um volume total de 500 µ l de B1a buffer para 250 μL dos lipid-micelas extrudados e 250 µ l de buffer de diálise de 4x. Incube as amostras para min 3 x 3 a 25 ° C, em um thermomixer a 1.500-3.000 rpm, interrompida por uma pausa de s 30 no gelo.
- Corte a tampa do tubo de reação de 1,5 mL quatro só em cima dando um anel que ainda se encaixa na tampa. Preparar peças de 1,5 x 1,5 cm da membrana de diálise e lavá-los em 20 mL de tampão de diálise x 1
- Preencha 250 µ l da amostra para cada tampa. Com cuidado, coloque a membrana na tampa para que o compartimento é totalmente preenchido com a amostra e sem bolhas de ar ocorrerem. Aperte o anel do tubo de reação na assembleia a fim de ter um compartimento fechado.
- Dialize as amostras em 50 mL de 1x buffer de diálise durante a noite (12-16 h) no gelo em uma coqueteleira caindo. Substitua o buffer de diálise utilizada fresca e adicionar 7 mg de grânulos adsorvente para remover os restantes detergentes para pelo menos 6 h.
- Substitua o tampão de diálise novamente e urinar para outro h 12. recuperar os lipossomas perfurando a membrana de diálise com uma ponta de micropipeta de 200 µ l e aspirar todos os lipossomas da tampa do tubo de reação.
- Passo opcional: se alta pureza (> 95%) é necessária. Prepare um gradiente descontínuo de densidade em 17 mL frascos de ultracentrifugação com etapas contendo 6%, 10%, 15% e 20% copolímero de epicloridrina de sacarose no buffer de diálise. Carrega os lipossomas em cima e se a 100.000 x g, durante 4 h em um rotor de balde oscilante.
- Recuperar a banda superior marrom com uma seringa, diluir a amostra 1:5 com DP e prossiga para a próxima etapa.
- Centrifugue os lipossomas FCP em pelo menos 2 mL de tampão de diálise por 1,5 h em 100.000 x g e 4 ° C. 1x Recupere os lipossomas, girando o tubo de centrifugação em um ângulo de 45°. Permitir que os lipossomas mover para baixo por 1 min (Figura 3A).
- Recuperar os lipossomas FCP em um volume final de 25-50 µ l. evitar perturbar o precipitado.
-
Controles 1: absorvância, espectroscopia de fluorescência
- Adicione uma alíquota de 3 µ l dos FCP-lipossomas para um volume final de 1 mL de 1x buffer de diálise e centrifugue por 5 min a 12.000 x g.
- Grave a absorbância entre 370 e 750 nm de FCP-lipossomas com o mesmo equipamento, conforme descrito em 1.2.4. Normalizar o espectro ao máximo na região dey Q da chl um (670-680 nm) e compará-lo ao espectro normalizado de solubilizado FCP (Figura 3).
- Preparar o FCP-lipossomas em 1 mL de DP com uma absorbância (ABS) = 0,03 em relação a máxima entre 670-680 nm. Ajuste o FCP solubilized detergente da etapa 1.2.6 para o ABS mesmo diluindo com B1a.
- Gravar espectros de absorvância de ambas as amostras, conforme descrito em 1.2.4. Grave a chl um espectro de emissão de fluorescência de ambas as amostras, conforme descrito em 1.3.3.
Nota: O rendimento de fluorescência é diminuído na amostra FCP-lipossoma (Figura 3D e cf. discussão.)
- Adicione uma alíquota de 3 µ l dos FCP-lipossomas para um volume final de 1 mL de 1x buffer de diálise e centrifugue por 5 min a 12.000 x g.

Figura 3: isolamento do FCP proteoliposomes seguido por controles espectroscópicos e imagem latente confocal. (A) recuperação de lipossomas FCP após a centrifugação. Ligue o tubo de centrifugação a 45° e espere aproximadamente 1 min - os lipossomas se moverá para baixo enquanto o FCP agrega que não são incorporados em lipossomas furar a parede do tubo. (B) comparação dos espectros de absorvância do FCP solubilizado em detergente (azul) e FCP em lipossomas (laranja) (C) os espectros mesmos como em (B) normalizado para chl um máximo na região vermelha (~ 670 nm - Qy pico); FCP solubilizado em detergente (azul) e FCP em lipossomas (laranja). Potencialmente, pode haver uma perda de pigmento, principalmente de carotenoides visível na região de 500-550 nm. O agrupamento de FCP nos lipossomas pode levar a uma ampliação de pico e uma ligeira mudança da chl máximo (~ 670 nm) para o vermelho. (D) espectros de emissão de FCP solubilizado em detergente e FCP em lipossomas. Cluster do FCP no lipossoma realça interações energéticas dos complexos do FCP que reduz o rendimento de fluorescência (curva de laranja) e desloca os máximos de emissão ligeiramente para o vermelho. Clique aqui para ver uma versão maior desta figura.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
O protocolo descreve o isolamento de fracção FCP total de Cyclotella meneghiniana e incorporação em lipossomas com composição lipídica nativo. O isolamento de tilacoides é altamente reprodutível, mas o rendimento de tilacoides pode mudar. O resultado é aceitável se a mais de 50% de todos os pigmentos são recuperados em etapa 1.1.4. Mais de 80% é o ideal.
A solubilização da contém é uma etapa crítica. Bem solubilized mem...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Lipossomas FCP com composição lipídica natural fornecem uma ferramenta útil, simples e reprodutível para investigar Propriedades espectroscópicas in vitro. O ambiente de lipídios em lipossomas FCP assemelha-se a situação dentro da membrana tilacoides, dando origem a resultados experimentais que aproximam-se às condições naturais.
Existem várias vantagens de usar c. meneghiniana como um sistema modelo para antena do FCP. Ele cresce relativamente rápido e é mais robusto em comp...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores não têm nada para divulgar.
Agradecimentos
Agradecemos a Rana Adeel Ahmad para assistência na purificação do FCP. Prof Claudia Büchel é reconhecido por discussões úteis e ler o manuscrito. Este trabalho foi financiado pela Fundação de pesquisa alemã para LD (DI1956-1/1) e a Fundação Humboldt para uma bolsa de Feodor Lynen para ld.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Frascos de centrífuga de 500 ml centrífuga | |||
| de alta velocidade | Heraeus | ||
| Bead Mill VI 2 | Edmund-Bü hler (edmund-buehler.de)versão | mais recente: Vibrogen-Zellmü hle Vl 6 | |
| Silibeads S 400 µ m | Sigmund-Lindner.com | 5223-7 | |
| Silibeads S 1,-1,3 mm | Sigmund-Lindner.com | 4504 | |
| Funil de filtro VitraPOR - por1 | ROBU GmbH | 21121 | |
| frascos de policarbonato ultracentrifuagtion (30 mL) para T-865 | Beranek Laborgerä te (Laborgeraete-beranek.de) | 314348 | |
| Ultracentrifuge Discovery 90SE | Sorvall | n.a.rotor | |
| T 865 | ThermoFisher Scientific (thermofisher.com) | 51411 | |
| Câmara de Contador de Células Neubauer (melhorada) | Carl Roth Laborbedarf (Carlroth.com) | T729.1 | |
| Zeiss Mikroskop Primostar (7) | Optik-Pro (optik-pro.de) | 51428 | |
| cubetas de vidro óptico (6040-OG) | Hellma Analytics (hellma-analytics.com) | "6040-10-10" | |
| V-630 UV-VIS Spectrophotometer (incl. software) | Jasco (jasco.de) | V-630 | |
| n-Dodecil-β-D-Maltopyranoside | ANATRACE (anatrace.com) | D310LA | |
| Tubos Ultra-Clear 17 ml para AH629 | Beranek Laborgerä te (Laborgeraete-beranek.de) | 344061 | |
| rotor AH629-17-mL | ThermoFisher Scientific (thermofisher.com) | 54285 | |
| Membrana concentrator_Centriprep corte de 30 | kDa Millipore (merckmillipore.com) | 4307 | |
| Biometra Minigel-Twin | Analytik Jena AG (analytik-jena.de) | 846-010-100 | |
| Silver Stain Plus Kit | Bio-Rad (bio-rad.com) | ||
| planilha de escritório livre | A fundação do documento | https://de.libreoffice.org/download/libreoffice-still/ | |
| cubetas de vidro especiais para fluorescência (101-0S) | Hellma Analytics (hellma-analytics.com) | 101-10-20 | |
| Espectrofluorômetro FP-6500 (incl. Software) | Jasco (jasco.de) | FP-6500 | |
| SDS-tampão de carregamento Roti-Load | ROTH (carlroth.com) | K929.1 | |
| n-octil β -D-glicopiranosídeo | ANATRACE (anatrace.com) | O311 | |
| Monogalactosil Diacliglicerol (MGDG) | Larodan AB (larodan.com) | 59-1300 | fazer solução de estoque em clorofórmio |
| Digalactosil Diacilglicerol (DGDG) | Larodan AB (larodan.com) | 59-1310 | fazer solução de estoque em clorofórmio |
| Sulfoquinovosil Diacilglicerol (SQDG) | Larodan AB (larodan.com) | 59-1230 | fazer solução de estoque em clorofórmio |
| L-alfa-Fosfatidilglicerol (PG) | Larodan AB (larodan.com) | 37-0150 | fazer solução de estoque em clorofórmio |
| L-&alfa;-Fosfatidilcolina | Sigma-Aldrich (sigmaaldrich.com) | P3782 SIGMA | fazer solução de estoque em banho de sonicador de clorofórmio |
| S-50TH | Sonicor (getmedonline.com | SONICOR-S-50TH | |
| mini-Extrusora | Avanti Polar Lipids (Avanti.com) | 610000 | |
| Membrana de policarbonato Nuleopore | Avanti Polar Lipids (Avanti.com) | 610005 | |
| membrana de diálise Visking 14 kDa corte ROTH | (carlroth.com) | 0653.1 | ferva em água destilada antes |
| de usar Biobeads SM2 Adsorvente | Biorad (Bio-rad.com) | 152-3920 | |
| copolímero de epicloridrina de sacarose - Ficoll 400 | Sigma-Aldrich (sigmaaldrich.com) | F4375 | |
| (2.7 mL) para TFT 80.4 | Beranek Laborgerä te (Laborgeraete-beranek.de) | 252150 | |
| rotor TFT 80.4 | Millipore (merckmillipore.com) | 54356 | |
| material listado em ordem de aparição | Para obter instruções de segurança específicas, consulte as fichas de segurança do material e os respectivos manuais. O material e as substâncias de laboratório padrão não estão listados. |
Referências
- Eberhard, S., Finazzi, G., Wollman, F. A. The Dynamics of Photosynthesis. Annual Review of Genetics. 42, 463-515 (2008).
- Li, Z. R., Wakao, S., Fischer, B. B., Niyogi, K. K. Sensing and Responding to Excess Light. Annual Review of Plant Biology. 60, 239-260 (2009).
- Niyogi, K. K., Truong, T. B. Evolution of flexible non-photochemical quenching mechanisms that regulate light harvesting in oxygenic photosynthesis. Current Opinion in Plant Biology. 16 (3), 307-314 (2013).
- Li, X. -P., et al. A pigment-binding protein essential for regulation of photosynthetic light harvesting. Nature. 403 (6768), 391-395 (2000).
- Peers, G., et al. An ancient light-harvesting protein is critical for the regulation of algal photosynthesis. Nature. 462 (7272), 518-521 (2009).
- Correa-Galvis, V., et al. Photosystem II Subunit PsbS Is Involved in the Induction of LHCSR Protein-dependent Energy Dissipation in Chlamydomonas reinhardtii. The Journal of biological chemistry. 291 (33), 17478-17487 (2016).
- Bailleul, B., et al. An atypical member of the light-harvesting complex stress-related protein family modulates diatom responses to light. Proceedings of the National Academy of Sciences of the United States of America. 107 (42), 18214-18219 (2010).
- Taddei, L., et al. Multisignal control of expression of the LHCX protein family in the marine diatom Phaeodactylum tricornutum. Journal of experimental botany. 67 (13), 3939-3951 (2016).
- Lepetit, B., et al. The diatom Phaeodactylum tricornutum adjusts nonphotochemical fluorescence quenching capacity in response to dynamic light via fine-tuned Lhcx and xanthophyll cycle pigment synthesis. New Phytologist. 214 (1), 205-218 (2017).
- Büchel, C. Evolution and function of light harvesting proteins. Journal of Plant Physiology. 172, 62-75 (2015).
- Lavaud, J., Rousseau, B., van Gorkom, H. J., Etienne, A. -L. Influence of the Diadinoxanthin Pool Size on Photoprotection in the Marine Planktonic Diatom Phaeodactylum tricornutum. Plant Physiology. 129 (3), 1398-1406 (2002).
- Ruban, A., et al. The super-excess energy dissipation in diatom algae: comparative analysis with higher plants. Photosynthesis Research. 82 (2), 165-175 (2004).
- Mann, D. G. The species concept in diatoms. Phycologia. 38 (6), 437-495 (1999).
- Papagiannakis, E., van Stokkum, I. H. M., Fey, H., Büchel, C., van Grondelle, R. Spectroscopic Characterization of the Excitation Energy Transfer in the Fucoxanthin-Chlorophyll Protein of Diatoms. Photosynthesis Research. 86 (1-2), 241-250 (2005).
- Premvardhan, L., Robert, B., Beer, A., Büchel, C. Pigment organization in fucoxanthin chlorophyll a/c2 proteins (FCP) based on resonance Raman spectroscgopy and sequence analysis. Biochimica et Biophysica Acta-Bioenergetics. 1797 (9), 1647-1656 (2010).
- Gildenhoff, N., Herz, J., Gundermann, K., Büchel, C., Wachtveitl, J. The excitation energy transfer in the trimeric fucoxanthin-chlorophyll protein from Cyclotella meneghiniana analyzed by polarized transient absorption spectroscopy. Chemical Physics. 373 (1), 104-109 (2010).
- Ramanan, C., et al. Exploring the mechanism(s) of energy dissipation in the light harvesting complex of the photosynthetic algae Cyclotella meneghiniana. Biochimica et Biophysica Acta-Bioenergetics. 1837 (9), 1507-1513 (2014).
- Haferkamp, S., Kirchhoff, H. Significance of molecular crowding in grana membranes of higher plants for light harvesting by photosystem II. Photosynthesis Research. 95 (2-3), 129-134 (2008).
- Wahadoszamen, M., et al. Stark fluorescence spectroscopy reveals two emitting sites in the dissipative state of FCP antennas. Biochimica et Biophysica Acta-Bioenergetics. 1837 (1), 193-200 (2014).
- Zhou, F., et al. Effect of monogalactosyldiacylglycerol on the interaction between photosystem II core complex and its antenna complexes in liposomes of thylakoid lipids. Photosynthesis Research. 99 (3), 185-193 (2009).
- Moya, I., Silvestri, M., Vallon, O., Cinque, G., Bassi, R. Time-resolved fluorescence analysis of the photosystem II antenna proteins in detergent micelles and liposomes. Biochemistry. 40 (42), 12552-12561 (2001).
- Natali, A., et al. Light-harvesting Complexes (LHCs) Cluster Spontaneously in Membrane Environment Leading to Shortening of Their Excited State Lifetimes. Journal of Biological Chemistry. 291 (32), 16730-16739 (2016).
- Gundermann, K., Büchel, C. Factors determining the fluorescence yield of fucoxanthin-chlorophyll complexes (FCP) involved in non-photochemical quenching in diatoms. Biochimica et Biophysica Acta-Bioenergetics. 1817 (7), 1044-1052 (2012).
- Ahmad, R. A., Dietzel, L. Relaxation of cellular K+ gradients by valinomycin induces diatoxanthin accumulation in Cyclotella meneghiniana cells and alters FCPa fluorescence yield in vitro. Physiologia Plantarum. , 171-180 (2017).
- Provasoli, L., McLaughlin, J. J. A., Droop, M. R. The development of artificial media for marine algae. Archiv für Mikrobiologie. 25 (4), 392-428 (1957).
- Jeffrey, S., Humphrey, G. New spectrophotometry equations for determining chlorophyll a, chlorophyll b, chlorophyll c-1 and chlorophyll c-2 in higher plants, algae and natural phytoplankton. Biochemie und Physiologie der Pflanzen. 167, 191-194 (1975).
- Beer, A., Gundermann, K., Beckmann, J., Büchel, C. Subunit Composition and Pigmentation of Fucoxanthin−Chlorophyll Proteins in Diatoms: Evidence for a Subunit Involved in Diadinoxanthin and Diatoxanthin Binding. Biochemistry. 45 (43), 13046-13053 (2006).
- Schägger, H., von Jagow, G. Tricine-sodium dodecyl sulfate-polyacrylamide gel electrophoresis for the separation of proteins in the range from 1 to 100 kDa. Analytical Biochemistry. 166 (2), 368-379 (1987).
- Büchel, C. Fucoxanthin-Chlorophyll Proteins in Diatoms: 18 and 19 kDa Subunits Assemble into Different Oligomeric States. Biochemistry. 42 (44), 13027-13034 (2003).
- Vieler, A., Wilhelm, C., Goss, R., Süß, R., Schiller, J. The lipid composition of the unicellular green alga Chlamydomonas reinhardtii and the diatom Cyclotella meneghiniana investigated by MALDI-TOF MS and TLC. Chemistry and Physics of Lipids. 150 (2), 143-155 (2007).
- Gundermann, K., Büchel, C. The fluorescence yield of the trimeric fucoxanthin-chlorophyll-protein FCPa in the diatom Cyclotella meneghiniana is dependent on the amount of bound diatoxanthin. Photosynthesis Research. 95 (2-3), 229-235 (2008).
- Miloslavina, Y., et al. Ultrafast fluorescence study on the location and mechanism of non-photochemical quenching in diatoms. Biochimica et Biophysica Acta-Bioenergetics. 1787 (10), 1189-1197 (2009).
- Grouneva, I., Jakob, T., Wilhelm, C., Goss, R. The regulation of xanthophyll cycle activity and of non-photochemical fluorescence quenching by two alternative electron flows in the diatoms Phaeodactylum tricornutum and Cyclotella meneghiniana. Biochimica et Biophysica Acta-Bioenergetics. 1787 (7), 929-938 (2009).
- Chukhutsina, V. U., Büchel, C., van Amerongen, H. Disentangling two non-photochemical quenching processes in Cyclotella meneghiniana by spectrally-resolved picosecond fluorescence at 77 K. Biochimica et Biophysica Acta-Bioenergetics. 1837 (6), 899-907 (2014).
- Ghazaryan, A., Akhtar, P., Garab, G., Lambrev, P. H., Büchel, C. Involvement of the Lhcx protein Fcp6 of the diatom Cyclotella meneghiniana in the macro-organisation and structural flexibility of thylakoid membranes. Biochimica Et Biophysica Acta-Bioenergetics. 1857 (9), 1373-1379 (2016).
- Darley, W. M. Biochemical composition. The biology of diatoms. 13, 198-223 (1977).
- Milsman, M. H. W., Schwendner, R. A., Weder, H. G. Preparation of large single bilayer liposomes by a fast and controlled dialysis. Biochimica Et Biophysica Acta. 512 (1), 147-155 (1978).
- Zumbuehl, O., Weder, H. G. Liposomes of controllable size in the range of 40 to 180 nm by defined dialysis of lipid-detergent-mixed micelles. Biochimica Et Biophysica Acta. 640 (1), 252-262 (1981).
- Verchere, A., Broutin, I., Picard, M. Photo-induced proton gradients for the in vitro investigation of bacterial efflux pumps. Scientific Reports. 2 (306), (2012).
- Chevallet, M., Luche, S., Rabilloud, T. Silver staining of proteins in polyacrylamide gels. Nature Protocols. 1 (4), 1852-1858 (2006).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
