a microscopia da localização da único-molécula 3D é utilizada para sondar as posições espaciais e as trajetórias do movimento de proteínas cDNAs etiquetadas em pilhas bacterianas vivas. O protocolo de análise experimental e de dados descrito neste documento determina os comportamentos diffusivos prevalentes de proteínas citosómicas baseadas em trajetórias unimoléculas agrupadas.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Microscopia de seguimento da único-molécula-uma ferramenta para determinar os Estados diffusive de moléculas cytosolic
Neste artigo
Resumo
Resumo
A microscopia da localização da único-molécula sonda a posição e os movimentos de moléculas individuais em pilhas vivas com dezenas de definição temporal espacial e milisecond do nanômetro. Estas capacidades fazem a microscopia da localização da único-molécula serida idealmente para estudar funções biológicas do nível molecular em ambientes fisiologicamente relevantes. Aqui, demonstramos um protocolo integrado para aquisição e processamento/análise de dados de rastreamento de molécula única para extrair os diferentes Estados diffusivos que uma proteína de interesse pode expor. Esta informação pode ser usada para quantificar a formação complexa molecular em células vivas. Fornecemos uma descrição detalhada de uma experiência de localização de molécula 3D baseada em câmera, bem como as etapas subseqüentes de processamento de dados que produzem as trajetórias de moléculas individuais. Essas trajetórias são então analisadas por meio de uma estrutura de análise numérica para extrair os Estados difusivos prevalentes das moléculas rotuladas fluorescentamente e a abundância relativa desses Estados. A estrutura de análise é baseada em simulações estocásticas de trajetórias de difusão brownianas intracelulares que são confinadas espacialmente por uma geometria de célula arbitrária. Com base nas trajetórias simuladas, as imagens de molécula única bruta são geradas e analisadas da mesma forma que as imagens experimentais. Dessa forma, as limitações experimentais de precisão e precisão, que são difíceis de calibrar experimentalmente, são explicitamente incorporadas ao fluxo de trabalho de análise. O coeficiente de difusão e as frações populacionais relativas dos Estados diffusivos prevalentes são determinados ajustando-se as distribuições dos valores experimentais utilizando combinações lineares de distribuições simuladas. Nós demonstramos a utilidade de nosso protocolo resolvendo os Estados difusivo de uma proteína que exiba Estados difusivo diferentes em cima de formar complexos do Homo-e do hetero-oligomeric no citosol de um micróbio patogénico bacteriano.
Introdução
Examinar o comportamento difusivo de biomoléculas fornece a introspecção em suas funções biológicas. Técnicas baseadas em microscopia de fluorescência tornaram-se ferramentas valiosas para observar biomoléculas em seu ambiente de células nativas. A recuperação da fluorescência após o photobranqueamento (Frap) e a espectroscopia da correlação da fluorescência (FCS)1 fornecem comportamentos difusivo Ensemble-calculados. Inversamente, a microscopia da localização da único-molécula permite a observação de moléculas cDNAs etiquetadas individuais com definição espacial e temporal elevada2,3,4. Observar moléculas individuais é vantajoso desde que uma proteína do interesse pode existir em Estados difusivo diferentes. Por exemplo, dois Estados difusivo prontamente distinguíveis surgem quando um regulador transcricional, tal como o cubador em Escherichia coli, difunde livremente no citosol ou se liga a uma seqüência do ADN e se torna imobilizado no temporal da medida5 . Rastreamento de molécula única fornece uma ferramenta para observar esses diferentes Estados diretamente, e análises sofisticadas não são necessárias para resolvê-los. No entanto, torna-se mais desafiador resolver vários Estados diffusivos e suas frações populacionais nos casos em que suas taxas diffusivas são mais semelhantes. Por exemplo, devido à dependência de tamanho do coeficiente de difusão, diferentes Estados de oligomerização de uma proteína se manifestam como diferentes Estados diffusivos6,7,8,9 , 10. esses casos exigem uma abordagem integrada em termos de aquisição, processamento e análise de dados.
Um fator crítico que influencia as taxas difusivo de moléculas citosólico é o efeito do confinamento pelo limite da pilha. As restrições colocadas no movimento molecular por um limite de células bacterianas causam uma taxa de difusão medida das moléculas citosómicas para parecer mais lenta do que se o mesmo movimento tivesse ocorrido em um espaço não confinado. Para moléculas muito lentamente difuso, o efeito do confinamento celular é insignificante devido à falta de colisões com o limite. Nesses casos, pode ser possível resolver com precisão os Estados diffusivos, ajustando as distribuições de deslocamentos moleculares, rou coeficientes de difusão aparente, D *, utilizando modelos analíticos baseados nas equações para o movimento browniano ( difusão aleatória)11,12,13. No entanto, para a difusão rápida de moléculas citosómicas, as distribuições experimentais já não se assemelham àquelas obtidas para o movimento browniano não confinado devido a colisões de moléculas de difusão com os limites das células. Os efeitos de confinamento devem ser contabilizados para determinar com precisão os coeficientes de difusão não confinados das moléculas rotuladas fluorescentamente. Várias abordagens foram recentemente desenvolvidas para dar conta dos efeitos de confinamento (semi-) analiticamente 5,14,15,16 ou numericamente através de simulações de Monte Carlo de Difusão Brownian6,10,16,17,18,19.
Aqui, nós fornecemos um protocolo integrado para coletar e analisar dados da microscopia da localização da único-molécula com um foco particular no seguimento da único-molécula. O objetivo final do protocolo é resolver Estados diffusivos de proteínas citosómicas rotuladas fluorescentamente no interior, neste caso, células bacterianas em forma de haste. Nosso trabalho constrói em um protocolo precedente para o seguimento da único-molécula, em que um polymerase do ADN, PolI, foi mostrado para existir em um estado encadernado e não acoplado do ADN pela análise de difusão20. Aqui, nós expandimos a análise de rastreamento de molécula única para medições 3D e executamos simulações computacionais mais realistas para resolver e quantificar vários Estados diffusivos simultaneamente presentes nas células. Os dados são adquiridos usando um microscópio de fluorescência 3D de super resolução, construído em casa, que é capaz de determinar a posição 3D dos emissores fluorescentes por imagem com a função de propagação de pontos de dupla hélice (dhpsf)21,22. As imagens RAW de molécula única são processadas usando um software escrito personalizado para extrair as localizações de molécula única 3D, que são combinadas em trajetórias de moléculas únicas. Milhares de trajetórias são agrupadas para gerar distribuições de coeficientes de difusão aparente. Em uma etapa final, as distribuições experimentais são encaixadas com distribuições numericamente geradas obtidas através de simulações de Monte-Carlo de movimento browniano em um volume confinado. Nós aplicamos este protocolo para resolver os Estados difusivo do tipo-3 proteína yscq do sistema da secreção em viver Yersinia enterocolitica. Devido à sua natureza modular, nosso protocolo é geralmente aplicável a qualquer tipo de experimento de rastreamento de única molécula ou de partículas únicas em geometrias de células arbitrárias.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
1. calibração do ponto-propagação-função da dobro-hélice
Nota: as imagens descritas neste e as secções seguintes são adquiridas através de um microscópio de fluorescência invertido personalizado, conforme descrito em rocha et al.23. O mesmo procedimento é aplicável às implementações diferentes do microscópio projetadas para a localização da único-molécula e a microscopia de seguimento2,3,4. Todos os softwares para aquisição de imagens e processamento de dados descritos neste artigo estão disponíveis (https://github.com/GahlmannLab2014/Single-Molecule-Tracking-Analysis.git).
- Preparação de almofadas do agarose para amostras de montagem em deslizamentos de tampa de vidro a ser vistos o microscópio.
- Adicionar 1.5-2% pelo peso baixo Agarose do ponto de derretimento a 5 mL do amortecedor M2G (4,9 mM na2HPO4, 3,1 mm KH2po4, 7,5 mm NH4CL, 0,5 mm mgso4, 10 μm FeSO4, 0,5 mm CAcl2 e 0,2% glicose). Microondas por vários segundos até que todo o agarose é dissolvido. Não deixe a solução ferver.
- Deixe a solução de agarose esfriar por alguns minutos (2-3 min).
- Pipetar 600 μL de solução de agarose para uma tampa de vidro (22 mm x 22 mm). Coloque suavemente um segundo deslizamento de tampa de vidro em cima do agarose. Isto cria uma almofada fina do gel do agarose (~ 0,5 milímetros) entre os dois deslizamentos da tampa de vidro.
- Deixe as almofadas do agarose sentar-se para solidificar para ~ 20 min.
- Separe delicadamente os deslizamentos da tampa de vidro. A almofada do agarose furará a um deles.
- Usando uma lâmina de barbear, corte a almofada de agarose em quatro secções quadradas de igual tamanho. Cada seção quadrada pode ser usada para uma única amostra.
- Pipete 1,5 μL de solução de cordão fluorescente para uma almofada de agarose. A solução do grânulo é uma diluição 1/100000 da solução de estoque em M2G (veja a tabela de materiais).
- Inverta a almofada do agarose e coloc em um deslizamento de tampa de vidro que seja limpado em um líquido de limpeza do ozônio por 30 minutos. O tempo da limpeza é escolhido para eliminar todas as moléculas fluorescentes aderentes aos COVERSLIP.
- Monte o vidro da tampa da amostra no suporte da amostra de um microscópio de fluorescência invertido e fixe-o no lugar usando a fita adesiva ou grampos carregados mola do suporte da amostra.
- Adicione uma gota de óleo de imersão no objetivo do microscópio.
- Coloque o suporte da amostra sobre um microscópio e fixe-o no lugar.
- Inicialize a interface gráfica do usuário (GUI) para controlar a câmera do microscópio, o estágio da amostra e os lasers de excitação. Aqui, o software de escrita personalizada no MATLAB é usado para controle de instrumentos (Figura complementar 1).
- Inicialize o software de câmera HCImage Live. Na guia capturar , na seção controle da câmera , defina o tempo de exposição para 0, 3 s. clique em Live para iniciar um feed ao vivo da câmera.
- Ligue o laser, clicando em abrir 514 nm laser na interface GUI para excitar os grânulos fluorescentes na almofada e ver a emissão de fluorescência na câmera usando o modo Live-Stream (ou seja, sem dados salvos em disco).
- Ajuste as posições X e Y do estágio do microscópio, clicando nas setas ' XY-POS ' a seção ' micro-posicionamento Stage ' da GUI para posicionar pelo menos uma pérola fluorescente no centro do campo de visão (FOV). O tamanho da etapa pode ser alterado clicando na caixa suspensa abaixo das setas.
- Ajuste a posição Z do estágio do microscópio clicando nas setas do z-pos a seção do estágio do nano-posicionamento do GUI. Ajuste a orientação do ponto-propagação-função da dobro-hélice (DHPSF) do grânulo fluorescente para ser vertical. Esta orientação vertical é definida como o ponto de partida na calibração Z. O tamanho da etapa pode ser alterado clicando na caixa suspensa abaixo das setas.
- Em HCImage Live, Capture | Modos de disparo, velocidade e registro, altere o modo de disparo do gatilho de nível interno para externo. Isso permitirá que a GUI do MATLAB controle a câmera.
- Em sequência | Configurações de digitalização, altere o número de contagens de quadros para 1200. Escolha uma pasta de destino de salvamento clicando no botão rotulado .... Finalmente clique em Iniciar. O número de contagens do quadro é ajustado a 1200 de modo que 10 frames possam ser recolhidos para cada um de 120 etapas da posição de Z.
- Digitalizar através de uma gama de posições Z (30 passos acima e abaixo da posição Z inicial em incrementos de 50 nm) e gravar 10 quadros em cada etapa usando um tempo de exposição de 0, 3 s. Inicie o processo automatizado clicando em ir a seção de calibração z a GUI.
Nota: os parâmetros para a calibração, incluindo o passo-comprimento, o número de etapas, o tempo de exposição da câmera, e o número de frames por a etapa podem ser ajustados aqui também. Cerca de 105 fótons podem ser adquiridos a partir de um cordão fluorescente em um único quadro usando 0, 3 s tempos de exposição, resultando em x, y, z localização precisões de cerca de 1 nm. - Desligue a iluminação laser, clicando em fechar 515 nm laser na GUI. Em HCImage Live, Capture | Modos de disparo, velocidade e registro, mude o modo de disparo de volta para interno. Em sequência | Configurações de digitalização altere o número de contagens de quadros para 200. Escolha uma pasta de destino de salvamento clicando no botão rotulado .... Clique em Iniciar para coletar 200 quadros de imagens escuras com um tempo de exposição de 0, 3 s.
Nota: mesmo na ausência de luz caindo sobre o detector, cada pixel irá ler um número positivo (referido como o valor de deslocamento escuro), que pode variar ligeiramente entre os pixels. O valor de deslocamento escuro pode mudar ao longo do tempo. Portanto, é necessário coletar quadros escuros para cada calibração. - Ajuste o DHPSF com um modelo Double-Gaussian usando o software Easy-DHPSF24 para obter as posições X e Y do talão, bem como uma curva de calibração Angle vs. Z.
- Inicialize o software Easy-DHPSF no MATLAB. a instalação, ajuste o canal a G e ajuste o método do encaixe a MLE com modelo da DG. G refere-se à câmera de canal verde, como a proteína fluorescente que está sendo usada para a aquisição de dados emite-se com comprimentos de onda verdes. MLE com modelo DG refere-se à estimativa de máxima verossimilhança com modelo duplo-Gaussian.
Observação: o tamanho do pixel e o ganho de conversão dependem da configuração óptica específica e podem precisar ser alterados. - Na seção calibrar DHPSF , clique em executar. Clique em OK na janela pop-up a seguir para manter as configurações padrão.
- Selecione a pilha de imagens guardada nas etapas 1.13-1.14. Em seguida, selecione a pilha de imagens com o fundo escuro guardado no passo 1,15. Por fim, selecione o arquivo. txt que foi salvo automaticamente durante a etapa 1,14. Este arquivo contém a posição Z do palco durante todo o processo de digitalização.
- Na próxima janela pop-up, se o chip de câmera completo não foi usado para o campo de visão, insira as posições x0 e y0 iniciais no chip. Caso contrário, entrada x0 = 1 e y0 = 1. esta informação pode ser encontrada em HCImage Live a seção binning e SubArrary .
- Na janela seguinte, redimensione e reposicione a caixa que aparece sobre a imagem dos grânulos fluorescentes de modo que seja aproximadamente 100 x 100 pixéis no tamanho e centrado sobre um único sinal fluorescente de DHPSF. Em seguida, clique duas vezes para continuar.
Nota: o DHPSF escolhido deve ser isolado dos outros sinais de DHPSF e idealmente ser o grânulo o mais brilhante possível. - Clique no centro do sinal DHPSF, entre os dois lóbulos, em seguida, aperte Enter. A janela a seguir mostra uma visão ampliada do DHPSF escolhido. Mais precisamente escolher a localização do centro do DHPSF, clicando.
Nota: o programa irá então caber o DHPSF, e exibir a imagem bruta e a reconstrução do ajuste. Ele também irá gerar imagens de modelo a partir da calibração Z correspondente a uma seção transversal DHPSF em diferentes posições Z. Estes serão usados mais tarde para a montagem dos dados experimentais. O programa irá gerar a posição X, Y e Z estimada em cada quadro. Em um sistema óptico bem alinhado, X e Y deve mudar muito pouco (~ 30 nm desvio) como a posição Z muda. Se a variação de saída for maior que 30 nm, a máscara de fase, localizada no plano de Fourier do sistema de imagem (Figura 1), deve ser realinhada e as etapas 1.9-1.16 repetidas. - Salve o Easy-DHPSF GUI clicando no ícone salvar no canto superior esquerdo da GUI. Isto pode mais tarde ser carregado estalando no ícone da carga no GUI.
Nota: o procedimento de calibração Z deve ser conduzido em cada dia de um experimento para dar conta das alterações de alinhamento no microscópio que podem ter ocorrido devido a flutuações de temperatura ou vibrações mecânicas.
- Inicialize o software Easy-DHPSF no MATLAB. a instalação, ajuste o canal a G e ajuste o método do encaixe a MLE com modelo da DG. G refere-se à câmera de canal verde, como a proteína fluorescente que está sendo usada para a aquisição de dados emite-se com comprimentos de onda verdes. MLE com modelo DG refere-se à estimativa de máxima verossimilhança com modelo duplo-Gaussian.
2. preparação da cultura bacteriana
- Prepare meios de cultura apoiando o crescimento de células bacterianas. Para Y. enterocolitica, use 5 ml de caldo de BHI (infusão de coração de cérebro) contendo ácido nalidixico (35 μg/ml) e ácido 2, 6-diaminopimélico (80 μg/ml). Aqui, uma cepa Y. enterocolitica é usada que tem a proteína yscq marcada com a proteína fluorescente eyfp23.
- Inoculate meios com culturas bacterianas dos estoques do congelador ou das culturas da placa.
- Cresça a cultura em 28 ° c com agitação durante a noite.
- Diluir uma pequena quantidade (~ 250 μL) de cultura saturada durante a noite a 5 mL usando meios de cultura frescos.
- Cresça a cultura em 28 ° c com agitação por 60-90 min.
- Induzir a expressão de proteína de fusão fluorescente. Para Y. enterocolitica, choque térmico as células a 37 ° c em um agitador de água para induzir o yop Regulon.
- Incubar as células por um adicional de 3 h a 37 ° c com agitação.
- Centrifugue 1 mL de cultura a 5.000 x g durante 3 min à temperatura ambiente. Descarte o sobrenadante.
- Lave o pellet 3 vezes com 1 mL de M2G Media.
- Re-suspender as bactérias peletizadas em ~ 250 μL de M2G Media.
- Adicione grânulos fluorescentes como marcadores de uma A solução fluorescente do grânulo deve ser adicionada em quantidades apropriadamente diluídas, de modo que haja somente 1-2 grânulos por o FOV quando visto no microscópio.
- Gentilmente pipeta ou Vortex a suspensão para separar células agregadas.
- Placa 1,5 μL de suspensão em uma almofada de agarose de 1,5-2% feita com M2G.
- Inverta a almofada do agarose e coloc a em um deslizamento ozônio-limpado da tampa do microscópio. O deslizamento da tampa deve ser coloc em um líquido de limpeza do ozônio por 30 minutos para reduzir todo o fundo inerente da fluorescência.
3. aquisição de dados
- Monte o vidro da tampa da amostra no suporte da amostra de um microscópio de fluorescência invertido e fixe-o no lugar usando a fita adesiva ou grampos carregados mola do suporte da amostra.
- Adicione uma gota do óleo da imersão no objetivo do microscópio, a seguir coloc o suporte da amostra no microscópio e prenda-o no lugar.
- Inicialize a interface gráfica do usuário (GUI) para controlar a câmera do microscópio, o estágio da amostra e os lasers de excitação. Aqui, o software escrito encomenda em MATLAB é usado para o controle do instrumento.
- Inicializar o software da câmera HCImage Live. Na guia capturar , na seção controle da câmera , defina o tempo de exposição para 0, 25 s. clique em Live para iniciar um feed ao vivo da câmera.
- Ajuste as posições de X e de Y do estágio do microscópio estalando as setas XY-pos a seção do estágio do micro-posicionamento do GUI para verificar em torno da amostra e encontrar um FOV com uma população apropriadamente densa de pilhas bacterianas.
Observação: para maximizar a taxa de transferência de dados, as células devem ser tão densas quanto possível, sem sobreposição ou tocando células. O FOV também deve incluir pelo menos 1 cordão fluorescente para ser usado como um marcador de sua marca, preferencialmente posicionado em um canto do FOV. - Ajuste a posição Z do estágio do microscópio clicando nas setas do z-pos a seção do estágio do nano-posicionamento do GUI, de modo que os lóbulos do dhpsf do grânulo fluorescente sejam verticais.
- Em sequência | Configurações de digitalização, altere o número de contagens de quadros para 20.000. Escolha uma pasta de destino de salvamento clicando no botão rotulado .... Finalmente clique em Iniciar para coletar até 20.000 quadros da câmera usando um curto tempo de exposição de 0, 25 s. eyfp photopiscando é iniciada usando luz de excitação de alta intensidade em 514 nm19,25.
Nota: aqui, uma intensidade do laser de ~ 350 W/cm2 no plano focal é usada para o branqueamento inicial e a imagem latente subseqüente de únicas moléculas de eyfp. A fotoativação de moléculas de eYFP em comprimentos de onda UV durante a imagem latente não foi usada. Deve haver no máximo um sinal de molécula única por célula bacteriana. Se a densidade do sinal de molécula única for muito alta inicialmente, continue a iluminar até que o fotobranqueamento suficiente ocorra antes de iniciar a aquisição de dados. - Desligue a iluminação laser, clicando em fechar 515 nm laser na GUI. Colete 200 quadros de imagens escuras usando o mesmo tempo de exposição.
- Na GUI, marque a caixa ao lado de Thorlabs LED e clique em alternar espelho para cima. Isto irá mudar o caminho da via de fluorescência para a via de contraste de fase.
- Inicializar o software de aquisição de dados IC Capture 2,4. Isso controla a câmera na via de contraste de fase. Pressione o botão iniciar/parar exibição ao vivo para ver um feed ao vivo da câmera. Clique em capturar | Salvar imagem para coletar uma imagem de contraste de fase das células no campo de exibição.
- Repita as etapas 3.5-3.10 para FOVs adicionais. Aqui, os dados adquiridos de ~ 500 células bacterianas em dez diferentes FOVs é usado para aumentar o número de trajetórias de molécula única disponíveis para análise.
Cuidado: as pilhas montadas nas almofadas do agarose por longos períodos de tempo podem comportar-se diferentemente do que pilhas recentemente montadas. Adicionalmente, a almofada do agarose pode perder sua integridade após algum tempo, que pode adversamente afetar a qualidade de dados. Tipicamente, no máximo 3 FOV (~ 30 min no microscópio) são usados por slide de amostra.
4. processamento de dados
Nota: uma versão modificada do Easy-DHPSF software24 é usado em MATLAB para a análise dos quadros de câmera RAW para extrair localizações de molécula única. Easy-DHPSF é usado especificamente para caber as localizações de DHPSF na imagem latente da único-molécula. Foram feitas alterações personalizadas para implementar a rotina de ajuste baseada em estimativa de probabilidade máxima (MLE) que representa as características de ruído dependentes de pixel das câmeras sCMOS modernas26. Ele também foi modificado para aceitar a saída do tipo de arquivo de imagem do programa HCImage Live (. dcimg). Para uma explicação mais detalhada do software e das etapas individuais, por favor, veja Lew et al.24
- Inicialize a GUI Easy-DHPSF no MATLAB (Figura complementar 2). Carregue no arquivo salvo na etapa 1.16.8.
- Determinando os valores de limiar para cada um dos 7 modelos de saída na etapa 1.16.7
- a seção de identificação de calibração SM , clique em executar. Clique em OK nas duas janelas pop-up a seguir para manter as configurações padrão.
- Abra a pilha de imagens que contém os dados do primeiro FOV quando solicitado.
- Escolha um pequeno intervalo de quadros para corresponder aos modelos. Tipicamente os frames 1001-2000 são usados para evitar sinais de sobreposição densos nos primeiros vários cem frames. Clique em OK na janela pop-up a seguir para manter as configurações padrão. Clique em Cancelar quando solicitado para o arquivo de log de sequência na janela a seguir.
- Abra a pilha de imagens com o fundo escuro guardado no passo 3,8. Clique em 'OK' na janela pop-up a seguir para deixar os parâmetros para a estimativa de plano de fundo definida como padrão. O padrão é estimar o plano de fundo usando um filtro mediano27 cobrindo 100 quadros de câmera subseqüentes em torno do quadro atual.
- Na janela seguinte, redimensione a caixa sobreposta na imagem para cobrir o FOV completo e, em seguida, clique duas vezes para continuar.
- Defina a região de interesse clicando em vários pontos na imagem para criar um polígono. A região de interesse deve incluir tanto do campo de visão quanto possível, assegurando que qualquer grânulos fluorescentes (objetos muito brilhantes) na imagem não coloque dentro do polígono, em seguida, clique duas vezes para continuar.
Observação: o software, em seguida, tentará coincidir com os modelos para a imagem e exibirá uma imagem com possíveis correspondências circulado. - Quando o software parou, ele salvará muitas imagens de correspondências de modelo encontradas e exibirá o valor de limite correspondente em uma pasta pré-definida. Um valor limite mais alto corresponde a uma melhor correspondência. Para cada número de modelo, examine as correspondências de exemplo e determine o limite mais baixo que exibe uma imagem de um DHPSF. Insira esses limiares para cada um dos 7 modelos a seção calibrar SM Identification na GUI Easy-dhpsf.
Nota: o programa tentará escolher automaticamente e os limiares de entrada, no entanto, estes são frequentemente não confiáveis e devem ser verificados manualmente. Os limiares são escolhidos de tal forma que poucos verdadeiros sinais de molécula única são perdidos, mas o número de candidatos falsos positivos para montagem permanece computacionalmente gerenciável. - Salve o Easy-DHPSF GUI novamente clicando no ícone salvar no canto superior esquerdo.
- Montagem do cordão fluorescente no FOV para uso como marcador de
- a seção dos fiduciários da trilha do Easy-dhpsf GUI, o clique executa. Clique em OK nas duas janelas pop-up a seguir para manter as configurações padrão.
- Arraste a caixa sobreposta na imagem e centralize-a sobre o sinal DHPSF do cordão fluorescente e, em seguida, clique duas vezes.
- Clique no centro do sinal DHPSF, no ponto médio entre os dois lóbulos, em seguida, aperte Enter. Clique em Cancelar quando solicitado para o arquivo de log de sequência na janela a seguir.
Nota: o software caberá o DHPSF em todos os frames da câmera, e indicará a imagem crua e a imagem reconstruída. Quando o software terminar, ele irá gerar figuras com posições X, Y e Z do cordão fluorescente durante a duração da aquisição da imagem. - Marque a caixa ao lado de usar fiduciários e salve a GUI Easy-dhpsf novamente clicando no ícone salvar no canto superior esquerdo.
- Localize e ajuste todas as localizações em todos os quadros da câmera usando os limites de modelo obtidos na etapa 4,2.
- o Localize Dhpsf SMS seção do Easy-DHPSF GUI, clique em executar. Clique em OK nas seguintes janelas pop-up para manter as configurações padrão. Clique em Cancelar quando solicitado para o arquivo de log de sequência na janela a seguir.
Observação: o software irá encontrar e ajustar o DHPSF usando um modelo Double-Gaussian se a qualidade da correspondência estiver acima do limite definido pelo usuário. Ele exibirá a imagem bruta com círculos em torno de correspondências de modelo, bem como uma imagem dos ajustes reconstruídos DHPSF. - Salve o Easy-DHPSF GUI novamente clicando no ícone salvar no canto superior esquerdo.
- o Localize Dhpsf SMS seção do Easy-DHPSF GUI, clique em executar. Clique em OK nas seguintes janelas pop-up para manter as configurações padrão. Clique em Cancelar quando solicitado para o arquivo de log de sequência na janela a seguir.
- Visualizando localizações de molécula única e filtrando localizações indesejadas ou não confiáveis
- a seção das localizações da saída DHPSF SM , clique a saída do filtro.
- Clique em OK nas três janelas a seguir para executar uma interpolação das posições de X, Y e Z de relação com o tempo. Na maioria dos casos, as opções padrão são suficientes. Se a linha interpolada preta não refletir uma interpolação razoável da linha de posição vermelha, altere os parâmetros de interpolação na janela pop-up.
Nota: a linha interpolada é usada para o estágio-deriva que corrige as localizações da único-molécula. - Abra a imagem de contraste de fase correspondente para o FOV que está sendo analisado quando solicitado. Clique em OK nas duas janelas pop-up a seguir para manter as configurações padrão.
- Nas duas janelas pop-up a seguir, altere os valores de filtro para permitir requisitos de localização de molécula única mais rigorosos ou mais lenientes e clique em OK.
- Na janela que aparece, arraste ou redimensione a caixa sobreposta nas imagens para visualizar a região de interesse desejada e clique duas vezes para continuar.
- Uma reconstrução 3D de localizações da único-molécula é indicada. Use as ferramentas de figura para manipular a reconstrução (girar, ampliar, etc). Clique em continuar para exibir outra caixa de diálogo perguntando "gostariade replotar com um conjunto de parâmetros diferente?". Se os resultados forem satisfatórios, clique em não. Se não estiverem, clique em Sim.
Observação: motivos comuns para resultados insatisfatórios incluem a imagem de contraste de fase não sendo corretamente sobreposta com os dados de localização ou os limiares iniciais do modelo foram muito baixos criando muitas localizações falsas positivas. Se Yes foi selecionado, o software retornará à etapa 4.5.4 para que novos valores de parâmetro possam ser definidos. Se não tiver sido seleccionado, os resultados serão guardados.
5. pós-processamento de dados
- Usando o software de escrita personalizada no MATLAB, recorte a imagem de contraste de fase para que apenas a região que contém células que foram fotografadas o microscópio de fluorescência permaneça. Esta etapa é necessária porque a imagem de contraste de fase abrange uma área muito maior do que a imagem de fluorescência. Recortar a imagem simplifica a próxima etapa.
- Segmentar células individuais processando a imagem de contraste de fase com o software OUFTI28 (complementar Figura 3)
- Inicialize o OUFTI no MATLAB. Carregue a imagem de contraste de fase cortada da etapa anterior clicando na fase de carga.
- Clique em arquivo para escolher e nomear um local de salvamento para o arquivo de saída.
- Selecione quadros independentes o cabeçalho de detecção e análise .
- Clique em carregar parâmetros para carregar parâmetros para detecção de células. Exemplos de parâmetros incluem área de célula aceitável, largura da célula e um limite de divisão de célula.
Observação: todos esses parâmetros devem ser ajustados para maximizar o desempenho para os tamanhos de célula específicos e a qualidade da imagem que está sendo usada. É importante ressaltar que o parâmetro Algorithm deve ser definido como subpixel para permitir a medição precisa de contornos de célula. - Clique neste quadro para iniciar a segmentação de célula. Contornos de célula aparecerá sobre a imagem de contraste de fase quando o processo é concluído.
- Usando os controles na seção manual , divida células, adicione células ou Refine contornos de célula para obter contornos para células que foram segmentadas de forma inexata durante o processo automatizado.
- Saída os contornos da célula clicando em salvar análise.
- Use o software personalizado-escrito em MATLAB para sobrepor precisamente os contornos obtidos na etapa anterior com as localizações de molécula única. As seguintes subetapas detalham as etapas do software.
- Selecione manualmente 5 pares de pontos de controle na janela pop-up, estimando e clicando sobre a posição dos pólos de células das mesmas cinco células em ambos os dados de localização de molécula única e contornos de célula, gerados na etapa anterior. A posição do pólo celular pode ser aproximadamente estimada por um desenho mentalmente um casco convexo em torno das localizações de molécula única pertencentes a uma célula e selecionando o ponto de maior curvatura (Figura complementar 4).
- Gere uma função de transformação afim 2D usando a função cp2tform no MATLAB e use-a para gerar uma sobreposição aproximada dos contornos da célula e das localizações de molécula única.
- Exclua células que contenham menos de 10 localizações e remova as células que são posicionadas parcialmente fora do campo de exibição. Exclua manualmente quaisquer células indesejadas adicionais na janela pop-up clicando dentro de seu contorno de célula (complementar Figura 5).
- Use o centro de massa para todos os contornos de célula restantes e localizações de molécula única dentro deles para formar um conjunto maior de pares de pontos de controle, re-Compute a função de transformação 2D e usá-lo para gerar uma sobreposição final dos contornos da célula e o localizações de molécula única.
- Atribua localizações que residem dentro do limite de um contorno de células para essa célula. Descarte quaisquer localizações não localizadas dentro de qualquer contorno de célula (Figura 2a, complementar Figura 6).
6. single-molécula de rastreamento
Observação: a seção a seguir é concluída usando o software de escrita personalizada no MATLAB. Esta seção descreve as etapas que o software executa.
- Para localizações atribuídas à mesma célula e em quadros de câmera subsequentes, calcule a distância euclidiana entre as localizações. Se a distância entre as localizações estiver abaixo de um limiar de 2,5 μm, vincule as localizações atribuindo-as à mesma trajetória de molécula única.
Observação: é importante apenas considerar as localizações dentro de uma única célula, para que as localizações em células adjacentes que acontecem para atender aos requisitos de limite espacial e temporal não estão vinculadas. O limiar de 2,5 μm foi escolhido como a distância máxima uma molécula muito rápida (30 μm2/s) poderia viajar no comprimento do tempo de exposição (0, 25 s) mais um tampão de 20%. - Descarte trajetórias menores que 4 localizações. Se duas ou mais localizações (ou seja, dois ou mais emissores fluorescentes) estiverem simultaneamente presentes em uma célula, descarte as trajetórias associadas. A definição do mínimo de comprimento da faixa para 4 localizações permite que várias medições de distância sejam médias produzindo uma estimativa mais precisa dos coeficientes de difusão.
- Calcule o deslocamento quadrado médio (MSD) para uma determinada trajetória:
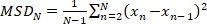 1
onde n é o número total de localizações na trajetória e xn é a posição da molécula no ponto de tempo n. - Calcule o coeficiente de difusão aparente, D * by
 2
onde m = 2 ou 3 é a dimensionalidade da medição e Δt é o tempo de exposição da câmera.
Nota: um experimento típico produzirá trajetórias de ~ 5000-100.000 no total, resultando em uma distribuição aparente do coeficiente de difusão com que muitas contagens.
7. simulação Monte-Carlo do movimento browniano em um volume confinado
Nota: Crie bibliotecas de distribuições de coeficiente de difusão aparente simuladas realizando simulações de Monte Carlo de movimento browniano confinados a um volume cilíndrico, usando 64 valores na faixa de 0,05 – 20 μm2/s como parâmetros de entrada (software disponíveis a partir dos autores, mediante pedido). Esta escala foi escolhida para cobrir a escala de coeficientes previamente estimados da difusão de proteínas fluorescentes (da fusão) nas bactérias. 64 coeficientes de difusão são utilizados para amostrar suficientemente esta gama. Esta seção é executada usando o software personalizado-escrito em MATLAB e descreve as etapas que o software toma automaticamente. As células Y. enterocolitica em forma de haste utilizadas aqui são aproximadas por um volume cilíndrico de comprimento l = 5 μm e diâmetro d = 0,8 μm.
- Inicie trajetórias individuais em uma posição aleatória no volume cilíndrico e simule suas etapas de difusão aleatórias (ou seja, Brownian) usando um intervalo de tempo de 100 NS (o intervalo de tempo deve ser muito menor do que o tempo de exposição da câmera para permitir o suficiente amostragem da posição ao longo de uma moldura da câmara). Amostra cada etapa de deslocamento para uma entrada D da função de distribuição gaussiana correspondente por rearranjo de eqn. 2 e adicioná-lo à posição anterior:
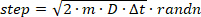 3
onde a função randn no MATLAB amostras um número aleatório de uma distribuição normal. Se uma etapa faz com que a molécula seja deslocada fora do volume do cilindro, reflita a molécula de volta dentro do cilindro em um ângulo aleatório. - Para cada intervalo de tempo, gere uma imagem DHPSF que corresponda à posição instantânea x, y, z do emissor simulado.
- Para corresponder às condições experimentais, simule imagens contendo 1.000 fótons por localização, com um fundo laser de 13 fótons por pixel e ruído de Poisson. Além disso, adicione deslocamento escuro de ~ 50 fótons por pixel e Gaussian ler ruído (σ ~ 1,5 fótons), consistente com medições de calibração de câmera experimental. Finalmente, multiplicar a imagem pelo ganho experimentalmente medido pixel-dependente da câmera sCMOS para obter a imagem em unidades de contagens de detectores.
Nota: após estas manipulações, a relação sinal-ruído da imagem final é ~ 2. - Gere imagens desfocadas em movimento que reflitam a mudança da posição das moléculas ao somar 50 imagens de DHPSF simuladas durante o tempo de exposição utilizado durante a aquisição de dados experimentais. Para limitar as despesas computacionais, apenas 50 posições amostradas periodicamente foram escolhidas para gerar uma imagem (em vez de todas as 250.000 posições amostradas durante um tempo de exposição de 0, 25 s em um intervalo de amostragem de 100 NS).
Nota: o comprimento (número de frames) das trajetórias simuladas deve corresponder ao comprimento médio das trajetórias experimentais. Nesse caso, o número de quadros por trajetória é 6.
- Para corresponder às condições experimentais, simule imagens contendo 1.000 fótons por localização, com um fundo laser de 13 fótons por pixel e ruído de Poisson. Além disso, adicione deslocamento escuro de ~ 50 fótons por pixel e Gaussian ler ruído (σ ~ 1,5 fótons), consistente com medições de calibração de câmera experimental. Finalmente, multiplicar a imagem pelo ganho experimentalmente medido pixel-dependente da câmera sCMOS para obter a imagem em unidades de contagens de detectores.
- Gere 5.000 trajetórias para cada um dos coeficientes de difusão de entrada simulados 64.
- Analise quadros de câmera simulados conforme descrito na seção processamento de dados .
- Vincule localizações em trajetórias conforme descrito na seção rastreamento de molécula única .
- Interpolar a função de distribuição cumulativa (CDF) para cada distribuição simulada usando a interpolação B-spline da ordem 25. Distribuições interpoladas são necessárias para que possam ser consultadas em pontos arbitrários.
- Interpolar as curvas B-spline resultantes ao longo do eixo d(d é o coeficiente de difusão true unconfinado que rege o movimento dos emissores simulados) usando a função SCATTEREDINTERPOLANT no MATLAB (especifique o ' método de interpolação natural). Isto fornece uma função 2D contínua de que toda a distribuição aparente do coeficiente de difusão que corresponde a um valor verdadeiro do coeficiente de difusão na escala de 0.05-20 μm2/s pode ser consultada.
8. ajuste aparente experimental da distribuição do coeficiente da difusão
Nota: ajuste as distribuições avaliadas experimentalmente de coeficientes de difusão aparente usando combinações lineares das distribuições simuladas geradas na seção anterior (simulação de Monte-Carlo do movimento browniano em um volume confinado). Esta seção é executada usando o software personalizado-escrito em MATLAB e descreve as etapas que o software toma automaticamente. Para mais informações e exemplos de aplicação, por favor, veja rocha et al.29
- Realize um ajuste linear restrito de mínimos quadrados (usando a função lsqlin no MATLAB) do CDF experimental usando uma matriz de CDFS simulada periodicamente da biblioteca criada na seção 7. A saída desta etapa é um vetor de parâmetro contendo os coeficientes de difusão e frações populacionais de Estados diffusivos prevalentes na distribuição experimental.
- Combine Estados difusivo com valores do coeficiente de difusão dentro de 20% de se em um único Estado difusivo pela média do peso baseado na fração relativa da população. Este é o vetor de parâmetro inicial.
Observação: para reduzir a complexidade do modelo, os Estados diffusivos com coeficientes de difusão abaixo de 0,5 μm2/s podem ser mantidos constantes durante todas as etapas a seguir. - Crie matrizes de vetores de parâmetro de ajuste de avaliação com diferentes números de Estados diffusivos, variando de um único Estado difuso a um número máximo definido pelo usuário de Estados.
- Usando o vetor de parâmetro inicial, combine Estados diffusivos adjacentes por meio de média ponderada e divida Estados diffusivos em dois Estados com frações populacionais iguais e coeficientes de difusão 20% acima e abaixo do valor original. Repita para todas as possibilidades de combinação e divisão do estado.
- Use cada vetor de parâmetro de ajuste de avaliação para inicializar um encaixe não linear de menos quadrado de 5 subconjuntos separados dos dados (usando a função FMINCON no MATLAB). Determine a qualidade do ajuste encontrando a soma residual dos quadrados entre o ajuste e a distribuição correspondente aos subconjuntos restantes (validação cruzada de dados).
- Use a soma residual média dos quadrados dos 5 encaixes separados para cada vetor experimental como a qualidade total do ajuste, determine o vetor experimental com a melhor qualidade do ajuste para cada número de Estados difusivo.
- Determine o número ideal de Estados identificando o vetor de avaliação para o qual a adição de um estado adicional não resulta em pelo menos uma melhoria de 5% na qualidade do ajuste.
- Use este vetor de avaliação para inicializar o ajuste de mínimos quadrados não lineares do conjunto de dados completo.
- Estimar o erro para os parâmetros individuais por reamostragem dos dados por bootstrapping e remontagem com o mesmo vetor de avaliação.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
as condições experimentais descritas aqui (20.000 frames, comprimento mínimo da trajetória de 4 localizações) e dependendo dos níveis da expressão das proteínas cDNAs etiquetadas da fusão, aproximadamente 200-3000 localizações que rendem 10-150 trajetórias podem ser geradas por célula (Figura 2a, b). Um grande número de trajetórias é necessário para produzir uma distribuição bem amostrada de coeficientes de difusão aparente. O tamanho do FOV ...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Um fator crítico para a aplicação bem sucedida do protocolo apresentado é assegurar-se de que os sinais da único-molécula estejam bem separados de se (isto é, precisam de ser esparsos no espaço e no tempo (Mov. 1 suplementar)). Se houver mais de uma molécula fluorescente em uma célula ao mesmo tempo, então a localização pode ser incorretamente atribuída à trajetória de outras moléculas. Isto é referido como o problema de ligação30. As condições experimentais, tais como os níveis d...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
Agradecemos a Alecia Achimovich e Ting Yan pela leitura crítica do manuscrito. Agradecemos a Ed Hall, cientista sênior do grupo de serviços avançados de pesquisa em informática da Universidade da Virgínia, para ajudar na configuração das rotinas de otimização utilizadas neste trabalho. O financiamento para este trabalho foi fornecido pela Universidade de Virginia.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ácido 2,6-diaminopimélico | Chem Impex International | 5411 | Necessário para o crescimento de células Y. enterocolitica usadas. |
| Lentes 4f | Thorlabs | AC508-080-A | f = 80mm, laser de 2" |
| 514 nm | Coherent | Genesis MX514 MTM | Uso para excitação de fluorescência |
| agarose | Inivtrogen | 16520100 | Usado para fazer almofadas de gel para montar amostras bacterianas líquidas no microscópio. |
| cloreto de amônio | Sigma Aldrich | A9434 | M2G ingrediente. |
| filtro passa-banda | Chroma | ET510/bp | Via de excitação. |
| Infusão de Coração Cerebral | Sigma Aldrich | 53286 | Meio de crescimento para Y. enterocolitica. |
| cloreto de cálcio | Sigma Aldrich | 223506 | ingrediente M2G. |
| fonte | de imagem | DMK 23UP031 | Câmera para imagens de contraste de fase. |
| máscara de fase dielétrica | Double Helix, LLC | N/A | Produz sinal DHPSF. |
| fosfato dissódico | Sigma Aldrich | 795410 | ingrediente M2G. |
| ácido etilenodiaminotetracético | Fisher Scientific | S311-100 | Quelatos Ca2+. Induz secreção no T3SS. |
| espelho flip | Newport | 8892-K | Permite alternar entre as vias de fluorescência e contraste de fase. |
| Esferas fluorescentes | Invitrogen | F8792 | Comprimentos de onda de exicação e emissão 540/560. Diâmetro de 40 nm. |
| lamínula de vidro | VWR | 16004-302 | #1.5, glicose de 22mmx22mm |
| Chem Impex International | 811 | M2G ingrediente. | |
| óleo de imersão | Olympus | Z-81025 | Colocado na lente objetiva. |
| sulfato de ferro (II) | Sigma Aldrich | F0518 | M2G ingrediente. |
| filtro de passagem longa | Semrock | LP02-514RU-25 | Caminho de emissão. |
| sulfato de magnésio | Fisher Scientific | S25414A | ingrediente M2G. |
| plataforma de microscópio | Mad City Labs | personalizada | para microscópio invertido. |
| nalidíxico | Sigma Aldrich | N4382 | Y. enterocolitica as células utilizadas são resistentes ao ácido nalidíxico. |
| lente objetiva | Olympus | 1-U2B991 | 60X, 1.4 NA |
| Limpador de ozônio | Novascan | PSD-UV4 | Usado para eliminar a fluorescência de fundo em lamínulas de vidro. |
| fosfato de potássio | Sigma Aldrich | 795488 | ingrediente M2G. |
| LED vermelho | Thorlabs | M625L3 | Ilumina a amostra para imagens de contraste de fase. 625nm. |
| Câmera sCMOS | Câmera Hamamatsu | ORCA-Flash 4.0 V2 | para imagens de fluorescência. |
| filtro passa-curto | Chroma | ET700SP-2P8 | Caminho de emissão. |
| Lente tubular | Thorlabs | AC508-180-A | f=180 mm, 2" |
| Yersinia enterocolitica dHOPEMTasd | N/A | /A | Cepa AD4442, eYFP-YscQ |
| placa de quarto de onda de ordem zero | Thorlabs | WPQ05M-514 | Via de excitação. |
Referências
- Kapanidis, A. N., Uphoff, S., Stracy, M. Understanding Protein Mobility in Bacteria by Tracking Single Molecules. Journal of Molecular Biology. , (2018).
- Betzig, E., et al. Imaging intracellular fluorescent proteins at nanometer resolution. Science. 313 (5793), 1642-1645 (2006).
- Hess, S. T., Girirajan, T. P. K., Mason, M. D. Ultra-high resolution imaging by fluorescence photoactivation localization microscopy. Biophysical Journal. 91 (11), 4258-4272 (2006).
- Rust, M. J., Bates, M., Zhuang, X. W. Sub-diffraction-limit imaging by stochastic optical reconstruction microscopy (STORM). Nature Methods. 3 (10), 793-795 (2006).
- Chen, T. Y., et al. Quantifying Multistate Cytoplasmic Molecular Diffusion in Bacterial Cells via Inverse Transform of Confined Displacement Distribution. Journal of Physical Chemistry B. 119 (45), 14451-14459 (2015).
- Mohapatra, S., Choi, H., Ge, X., Sanyal, S., Weisshaar, J. C. Spatial Distribution and Ribosome-Binding Dynamics of EF-P in Live Escherichia coli. mBio. 8 (3), (2017).
- Stracy, M., et al. Single-molecule imaging of UvrA and UvrB recruitment to DNA lesions in living Escherichia coli. Nature Communications. 7, 12568(2016).
- Persson, F., Lindén, M., Unoson, C., Elf, J. Extracting intracellular diffusive states and transition rates from single-molecule tracking data. Nature Methods. 10 (3), 265-269 (2013).
- Bakshi, S., Choi, H., Weisshaar, J. C. The spatial biology of transcription and translation in rapidly growing Escherichia coli. Frontiers in Microbiology. 6, 636(2015).
- Mustafi, M., Weisshaar, J. C. Simultaneous Binding of Multiple EF-Tu Copies to Translating Ribosomes in Live Escherichia coli. mBio. 9 (1), (2018).
- Michalet, X., Berglund, A. J. Optimal diffusion coefficient estimation in single-particle tracking. Physical Review E. 85 (6), (2012).
- Michalet, X. Mean square displacement analysis of single-particle trajectories with localization error: Brownian motion in an isotropic medium. Physical Review E Statistical, Nonlinear, and Soft Matter Physics. 82 (4 Pt 1), 041914(2010).
- Backlund, M. P., Joyner, R., Moerner, W. E. Chromosomal locus tracking with proper accounting of static and dynamic errors. Physical Review E Statistical, Nonlinear, and Soft Matter Physics. 91 (6), 062716(2015).
- Stracy, M., et al. Live-cell superresolution microscopy reveals the organization of RNA polymerase in the bacterial nucleoid. Proceedings of the National Academy of Sciences of the United States of America. 112 (32), E4390-E4399 (2015).
- Plochowietz, A., Farrell, I., Smilansky, Z., Cooperman, B. S., Kapanidis, A. N. In vivo single-RNA tracking shows that most tRNA diffuses freely in live bacteria. Nucleic Acids Research. 45 (2), 926-937 (2017).
- Koo, P. K., Mochrie, S. G. Systems-level approach to uncovering diffusive states and their transitions from single-particle trajectories. Physical Review E. 94 (5-1), 052412(2016).
- Uphoff, S., Reyes-Lamothe, R., Garza de Leon, F., Sherratt, D. J., Kapanidis, A. N. Single-molecule DNA repair in live bacteria. Proceedings of the National Academy of Sciences of the United States of America. 110 (20), 8063-8068 (2013).
- Bakshi, S., Bratton, B. P., Weisshaar, J. C. Subdiffraction-Limit Study of Kaede Diffusion and Spatial Distribution in Live Escherichia coli. Biophysical Journal. 101 (10), 2535-2544 (2011).
- Bakshi, S., Siryaporn, A., Goulian, M., Weisshaar, J. C. Superresolution imaging of ribosomes and RNA polymerase in live Escherichia coli cells. Molecular Microbiology. 85 (1), 21-38 (2012).
- Uphoff, S., Sherratt, D. J., Kapanidis, A. N. Visualizing Protein-DNA Interactions in Live Bacterial Cells Using Photoactivated Single-molecule Tracking. JoVE. (85), e51177(2014).
- Pavani, S. R. P., Piestun, R. Three dimensional tracking of fluorescent microparticles using a photon-limited double-helix response system. Optics Express. 16 (26), 22048-22057 (2008).
- Pavani, S. R. P., et al. Three-dimensional, single-molecule fluorescence imaging beyond the diffraction limit by using a double-helix point spread function. Proceedings of the National Academy of Sciences of the United States of America. 106 (9), 2995-2999 (2009).
- Rocha, J. M., et al. Single-molecule tracking in live Yersinia enterocolitica reveals distinct cytosolic complexes of injectisome subunits. Integrative Biology. 10 (9), 502-515 (2018).
- Lew, M. D., von Diezmann, A. R. S., Moerner, W. E. Easy-DHPSF open-source software for three-dimensional localization of single molecules with precision beyond the optical diffraction limit. Protocol Exchange. , (2013).
- Biteen, J. S., et al. Super-resolution imaging in live Caulobacter crescentus cells using photoswitchable EYFP. Nature Methods. 5 (11), 947-949 (2008).
- Huang, F., et al. Video-rate nanoscopy using sCMOS camera-specific single-molecule localization algorithms. Nature Methods. 10 (7), 653-658 (2013).
- Hoogendoorn, E., et al. The fidelity of stochastic single-molecule super-resolution reconstructions critically depends upon robust background estimation. Scientific Reports. 4, 3854(2014).
- Paintdakhi, A., et al. Oufti: An integrated software package for high-accuracy, high-throughput quantitative microscopy analysis. Molecular microbiology. 99 (4), 767-777 (2016).
- Rocha, J. M., Corbitt, J., Yan, T., Richardson, C., Gahlmann, A. Resolving Cytosolic Diffusive States in Bacteria by Single-Molecule Tracking. bioRxiv. , 483321(2018).
- Lee, A., Tsekouras, K., Calderon, C., Bustamante, C., Presse, S. Unraveling the Thousand Word Picture: An Introduction to Super-Resolution Data Analysis. Chemical Reviews. 117 (11), 7276-7330 (2017).
- Los, G. V., et al. HaloTag: A Novel Protein Labeling Technology for Cell Imaging and Protein Analysis. ACS Chemical Biology. , (2008).
- Gautier, A., et al. An Engineered Protein Tag for Multiprotein Labeling in Living Cells. Chemistry & Biology. 15 (2), 128-136 (2008).
- Bisson-Filho, A. W., et al. Treadmilling by FtsZ filaments drives peptidoglycan synthesis and bacterial cell division. Science. 355 (6326), 739-743 (2017).
- Douglass, K. M., Sieben, C., Archetti, A., Lambert, A., Manley, S. Super-resolution imaging of multiple cells by optimised flat-field epi-illumination. Nature Photonics. 10 (11), 705-708 (2016).
- Zhao, Z., Xin, B., Li, L., Huang, Z. L. High-power homogeneous illumination for super-resolution localization microscopy with large field-of-view. Optics Express. 25 (12), 13382-13395 (2017).
- Yan, T., Richardson, C. J., Zhang, M., Gahlmann, A. Computational Correction of Spatially-Variant Optical Aberrations in 3D Single Molecule Localization Microscopy. bioRxiv. , 504712(2018).
- Gahlmann, A., Moerner, W. E. Exploring bacterial cell biology with single-molecule tracking and super-resolution imaging. Nature Reviews Microbiology. 12 (1), 9-22 (2014).
- Liu, Z., Lavis, L. D., Betzig, E. Imaging live-cell dynamics and structure at the single-molecule level. Mol Cell. 58 (4), 644-659 (2015).
- Berglund, A. J. Statistics of camera-based single-particle tracking. Physical Review E. 82 (1), 011917(2010).
- Parry, B. R., et al. The bacterial cytoplasm has glass-like properties and is fluidized by metabolic activity. Cell. 156 (1-2), 183-194 (2014).
- English, B. P., et al. Single-molecule investigations of the stringent response machinery in living bacterial cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (31), E365-E373 (2011).
- Niu, L. L., Yu, J. Investigating intracellular dynamics of FtsZ cytoskeleton with photoactivation single-molecule tracking. Biophysical Journal. 95 (4), 2009-2016 (2008).
- Coquel, A. S., et al. Localization of protein aggregation in Escherichia coli is governed by diffusion and nucleoid macromolecular crowding effect. PLoS Computational Biology. 9 (4), e1003038(2013).
- Nenninger, A., Mastroianni, G., Mullineaux, C. W. Size Dependence of Protein Diffusion in the Cytoplasm of Escherichia coli. Journal of Bacteriology. 192 (18), 4535-4540 (2010).
- Dix, J. A., Verkman, A. S. Crowding effects on diffusion in solutions and cells. Annual Review of Biophysics. 37, 247-263 (2008).
- Elliott, L. C., Barhoum, M., Harris, J. M., Bohn, P. W. Trajectory analysis of single molecules exhibiting non-brownian motion. Physical Chemistry Chemical Physics. 13 (10), 4326-4334 (2011).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
Etiquetas
Microscopia de Localização 3DAnálise de Estados DifusivosMarcador Fiduciário de Esferas FluorescentesFunção de Espalhamento de Ponto em Dupla HéliceProcessamento de Dados em MATLABCoeficiente de Difusão AparenteEstrutura de Simulação EstocásticaComplexos Proteicos CitosólicosImagem de Patógenos Bacterianos
