Nós otimizamos um protocolo para isolar e purificar pericitos cardíacos murinos para pesquisa básica e investigação de sua biologia e potencial terapêutico.
Artigo de método
Isolamento e purificação de Pericytes cardíacos murinos
Neste artigo
Resumo
Resumo
Pericytes, células perivasculares de microvasos e capilares, são conhecidos por desempenhar um papel na angiogênese, estabilização de vasos e integridade da barreira endotelial. No entanto, suas funções específicas do tecido no coração não são bem entendidas. Além disso, não há atualmente nenhum protocolo que utiliza materiais prontamente acessíveis para isolar e purificar pericitos da origem cardíaca. Nosso protocolo se concentra em usar o modelo de mamíferos amplamente utilizado, o mouse, como nossa fonte de células. Usando a digestão enzimática e dissociação mecânica do tecido cardíaco, obteve-se uma mistura de células brutas que foi ainda mais purificada por fluorescência ativando a triagem celular (FACS) por uma infinidade de marcadores. Porque não há nenhum único marcador inequívoco para pericytes, nós fechados para as pilhas queeram CD31-CD34-CD45-CD140b+NG2+CD146+. Depois da purificação, estas pilhas preliminares foram cultivadas e é épocas múltiplas sem nenhumas mudanças na morfologia e na expressão do marcador. Com a capacidade de obter regularmente pericitos cardíacos murinos primários usando nosso protocolo, esperamos compreender o papel dos pericitos na fisiologia cardiovascular e seu potencial terapêutico.
Introdução
Células perivasculares conhecidas como pericitos cercam os microvasos e capilares da árvore vascular1,2. Fisiologicamente, eles são conhecidos por promover e desempenhar um papel na angiogênese, aumentar a integridade da barreira devido à sua estreita relação com as células endoteliais, bem como estabilizar e vasos maduros1,2. Além disso, a disfunção e/ou perda dessas células têm sido implicadas em doenças como a doença de Alzheimer2,3e várias doenças cardiovasculares4. Estas células são encontradas em todo o corpo, mas os números das células são dependentes do tecido. Os pericytes têm sido mais notavelmente estudados no cérebro devido à alta vascularização da barreira hematoencefálica1,2. No entanto, no coração, a biologia dos pericitos é subestudada.
Recentemente, há uns interesses aumentados no campo para pericytes cardíacos, mas não há atualmente nenhum protocolo aerodinâmico disponível para seu isolamento de uma das ferramentas as mais usadas na biologia — o rato. Existem protocolos na literatura sobre isolando pericitos do cérebro5, retina6, placenta7e músculo esquelético8,9; no entanto, poucos protocolos estão isolando os pericitos do coração. Existem vários grupos que isolaram pericytes cardíacos. Nees et al. conseguiram isolar uma quantidade abundante de pericitos cardíacos de várias espécies, incluindo o camundongo; no entanto, seus métodos utilizaram equipamentos internos específicos que diminuem a reprodutibilidade10. Avolio et al.11, Chen et al.12, e Baily et al.13 também isolaram com sucesso pericitos cardíacos do tecido cardíaco humano, mas os tecidos humanos nem sempre estão disponíveis e são difíceis de obter para alguns investigadores. Aqui, nós desenvolvemos um método de isolamento para obter pericitos cardíacos de modelos de mouse para os investigadores para estudar mais a sua biologia com materiais prontamente disponíveis.
Usando a digestão enzimática e a triagem de células ativadas por fluorescência (FACS) com marcadores de pericyte chave conhecidos14, nosso protocolo nos permite isolar e purificar uma população de pericitos que são caracterizadospor CD31-CD34-CD45- CD140b+NG2+CD146+. Nosso painel de marcadores contém marcadores de inclusão e exclusão. CD45 é usado como um marcador para excluir células hematopoiéticas. CD31 é usado como um marcador para excluir células endoteliais. CD34 é usado como um marcador para excluir pilhas hematopoietic e endothelial do progenitor. CD146 é um marcador para células perivasculares. Por último, NG2 e CD140b (também conhecido como receptor de fator de crescimento derivado da plaqueta beta — pdgfrβ) são ambos marcadores aceitos para pericitos14. A cultura primária obtida pode ser cultivada e é várias vezes sem alterações na morfologia ou expressão do marcador. Além disso, estas células podem ser cocultivadas com células endoteliais para estudar suas interações e conversa cruzada uns com os outros. Este método da isolação da pilha permitirá investigadores de estudar a biologia e a patofisiologia de pericitos cardíacos do tipo selvagem, da doença, e de modelos genetically do rato da variação.
Protocolo
Todos os animais foram alojados e utilizados em uma associação de avaliação e acreditação de laboratório animal Care International (AAALAC) instalações credenciadas e todo o trabalho animal foi conduzido supervisão veterinária adequada e o animal institucional Comité de cuidados e utilização (IACUC) aprovou o protocolo da Amgen Inc.
1. preparação de ferramentas e meios de cultura
- Autoclave cirúrgica 9 cm reta ponta fina tesoura ponto e 10 cm angular serrilhada fórceps.
- Adicionar 25 mL de 5% soro fetal bovino (FBS) e 5 mL de 1% de estreptomicina de penicilina (P/S) em uma garrafa de 500 mL de cálcio magnésio livre de fosfato de Dulbecco-tampão salino (CMF-DPBS). Coloque a solução em um banho de gelo para garantir que ele vai estar frio no momento do uso. Alíquota 50 mL em um tubo cônico de 50 mL para isolamento cardíaco. Adicionar em 250 unidades/mL de solução de sódio de heparina na alíquota de 50 mL. Isto será referido como CMF-dpbs heparinizado.
- Adicionar 20% FBS (100 mL) e 1% P/S (5 mL) em um frasco de 500 mL de glicose alta Dulbecco ' s modificado médio da águia (DMEM). Isto será referido como a mídia de cultura livre de enzimas. Alíquota 20 mL de DMEM + 20% de FBS + 1% P/S e adição em 500 μg/mL de colagenase B. Isto será referido como a solução enzimática. Mantenha ambos os meios de cultura enzima-livres e a solução da enzima morna em 37 ° c em uma incubadora ou em um banho de água.
2. preparação de animais e aquisições de tecido cardíaco
- Intraperitoneally injetar um rato com 250 unidades de solução de sódio de heparina com uma seringa de agulha de 31 G. Aguarde 10 − 15 min enquanto o rato permanece activo na sua gaiola de casa.
Nota: Os dados representativos deste estudo foram obtidos de um rato C57BL/6 masculino de 4 meses de idade. No entanto, este protocolo pode ser usado em qualquer mouse, independentemente da tensão, idade, sexo, peso, etc. - Anestesie o rato com 5% de isoflurano. Verifique a profundidade da anestesia do rato por pitada reflexo.
- Coloque o rato anestesiado em posição supina e tape os seus membros anteriores. Abra cuidadosamente a cavidade torácica e canular a aorta descendente usando uma agulha de borboleta de 25 G.
- Faça um entalhe no vestíbulo direito e perfuse o coração com pelo menos 20 ml de 250 unidades/ml heparinizado CMF-dpbs em 2 ml/min com uma bomba peristáltica do variável-fluxo. Quando o PBS sai dos átrios direito limpos, a perfusão está completa.
- Corte o coração na aorta e coloque-o na CMF-DPBS gelada.
3. dissociação do tecido cardíaco
- Transfira o coração para um prato de Petri de 15 cm x 15 cm. Corte o coração em pedaços minúsculos (1 mm/peça) usando tesouras de mola e pinça de ponto fino com solução enzimática suficiente para cobrir as peças (10 − 15 mL).
- Transfira as peças e a solução para um tubo cônico de 50 mL, sele com filme plástico de parafina e incubar a 37 ° c em um agitador orbital a 120 rpm por 75 min.
- Após a digestão da colagenase com a solução enzimática, decantar o líquido através de um filtro de células de 100 μm em um novo tubo de 50 mL, mas deixar solução suficiente para garantir que as peças não secam.
- Usando o fórceps fino do ponto, retire o tecido do tubo e coloc algumas partes em uma corrediça do microscópio. Em seguida, moer o tecido entre duas lâminas de microscópio para quebrar o tecido. Enxágüe as lâminas com meios de cultura livres da enzima em um tubo cônico novo de 50 mL.
- Repita a etapa 3,4 até que todas as partes do tecido estejam dissociadas.
- Combine as soluções das etapas 3.3 − 3.5 em um tubo. Coe a suspensão resultante através de um filtro de células de 100 μm em um novo tubo cônico 50 mL.
- Centrifugador em 220 x g, 4 ° c, por 5 min. aspirar fora da solução precedente e para Ressuspender delicadamente a pelota da pilha em meios de cultura enzima-livres frescos.
- Contar células e verificar a viabilidade usando um contador de células. Diluir pilhas a 1 x 10⁶/ml com o tampão de mancha do FACS frio que contem 500 ml de dpbs e 10 − 25 ml da albumina de soro bovina de 2 − 5% (BSA). As células estão prontas para serem manchadas e classificadas.
4. purificação de Pericytes de mistura de células brutas usando FACS
- Prepare e rotule 5 mL de tubos FACS para todos os controles e amostras de células. Aliquot para fora pilhas (1 mL das pilhas por o tubo) para uma amostra não manchada, fluorescência menos um (FMO) controla, e controles Isotype-combinados. Use as células restantes para a classificação. Todos os controles e amostras podem ser preparados e manchados ao mesmo tempo.
Nota:Um total de 13 mL em 0,5 x 10⁶as células/mL foram utilizadas para o tipo representativo de um coração. No entanto, o volume depende de quantas células o investigador obtém de seu isolamento, quantos corações eles usam, e quão bem o tecido do coração é digerido; o tamanho de cada coração é também uma variável que pode alterar o volume.- Use contas de compensação (tabela de materiais) para otimizar os controles de compensação de fluorescência. Prepare um controle de compensação para cada fluorocromo no experimento em um tubo FACS rotulado de 5 mL. Para este experimento, prepare um total de 9 controles de compensação — 2 tipos de grânulos não manchados mais 7 fluorochromes diferentes do painel do marcador que incluem NG2-FITC, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, e viabilidade-APC-Cy7 da pilha ( Tabela de materiais).
- Adicione uma gota de contas de compensação (~ 50 μL) do frasco para injetáveis de aperto a cada tubo. Em seguida, adicione 1 μL de anticorpo aos grânulos. Repita para cada anticorpo do painel do marcador. Misture vigorosamente por pulso-vortexing. Incubar por 30 min a 4 ° c protegidos da luz, excepto para os grânulos de viabilidade celular que podem ser deixados à temperatura ambiente protegida da luz.
- Em seguida, adicione 3 mL de tampão de mancha de FACS a cada tubo e centrifugue em 300 x g por 5 minutos em 4 ° c. Aspirar fora da solução e ressuscitem cada pelota do grânulo em 400 μL do tampão de mancha de FACS. Os controles de compensação estão prontos para serem usados. Mantenha o gelo.
- Use os controles FMO para otimizar a coloração de fundo devido à sobreposição espectral.
- Prepare os controles de FMO usando 1 mL das pilhas que foi aliquotadas da seção 4,1 em um tubo de 5 mL FACS e adicionando em todos os anticorpos do painel do marcador descrito na etapa 4.1.1 em uma diluição 1:100 mas excluindo um anticorpo. Por exemplo, prepare uma FMO NG2-AF488, incluindo anticorpos para CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, corante de viabilidade celular, mas não o anticorpo NG2-AF488. Misture suavemente por pulso-vortexing. Repita para cada anticorpo para um total de 7 controles. Incubar por 30 min a 4 ° c protegidos da luz.
- Em seguida, adicione 3 mL de tampão de mancha de FACS a cada tubo e centrifugue em 300 x g por 5 minutos em 4 ° c. Aspirar fora da solução e ressuscitem cada pelota da pilha em 400 μL do tampão de mancha de FACS. Os controles FMO estão prontos para serem usados. Mantenha o gelo.
- Use anticorpos de controle combinados com isotipo (tabela de materiais) para coloração não específica.
- Prepare controles de isotipo adicionando o anticorpo de controle combinado com isotipo (tabela de materiais) a 1 ml de amostra de células preparada a partir da seção 4,1 em uma diluição de 1:100 cada um em um tubo FACS de 5 ml. Misture suavemente por pulso-vortexing. Incubar por 30 min a 4 ° c protegidos da luz.
- Em seguida, adicione 3 mL de tampão de mancha de FACS a cada tubo e centrifugue em 300 x g por 5 minutos em 4 ° c. Aspirar fora da solução e ressuscitem cada pelota da pilha em 400 μL do tampão de mancha de FACS. Os controles de isotipo estão prontos para serem usados. Mantenha o gelo.
- Prepare as células para serem classificadas adicionando um coquetel de anticorpos às células recém-isoladas.
- Prepare a amostra da pilha da seção 4,1 adicionando em um cocktail do anticorpo que contem o anti-rato NG2-AF488, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7 em 1:100 diluição cada e tintura da viabilidade da pilha em 1:1000 diluição. Suavemente Vortex para misturar. Incubar amostras a 4 ° c durante 30 min protegidos da luz.
- Após a coloração, lave as células com o tampão de coloração FACS por centrifugação a 300 x g durante 5 min 4 ° c. Aspirar fora da solução e ressuspender a pelota da pilha no tampão de mancha de FACS a 0,5 x 10⁶ Cells/ml.
- Usando os tubos novos de FACS que têm as partes superiores do filtro de 35 μm, pipetam amostras manchadas da pilha nas tampas e no filtrado da gravidade para obter únicas suspensões da pilha. Mantenha o gelo.
- Use contas de compensação (tabela de materiais) para otimizar os controles de compensação de fluorescência. Prepare um controle de compensação para cada fluorocromo no experimento em um tubo FACS rotulado de 5 mL. Para este experimento, prepare um total de 9 controles de compensação — 2 tipos de grânulos não manchados mais 7 fluorochromes diferentes do painel do marcador que incluem NG2-FITC, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, e viabilidade-APC-Cy7 da pilha ( Tabela de materiais).
- Use um classificador de célula para purificar as células.
- Execute as células não manchadas no classificador de células para definir tensões e corrigir o sinal de fundo (por exemplo, definir tensões para dispersão direta para 490 − 560 e para dispersão lateral para 180 − 250).
- Execute cada amostra de talão de compensação de cor única um de cada vez para ajustar tensões para cada canal e ajustar as portas para o sinal positivo. Colete dados. Use o software para calcular a sobreposição espectral calculando a matriz de remuneração. Todas as tensões estão prontas e ajustadas.
- Execute cada controle isotipo um de cada vez e esses dados podem ser usados para ajustar os portões para vinculação não específica se houver algum.
- Execute cada amostra de FMO um no tempo e ajuste tensões para que cada canaleta corrija para o sangramento espectral completamente devido a um painel multi-color.
- Execute as amostras de células manchadas no classificador de células e colete células em 10 mL de meios de cultura livres de enzimas (DMEM + 20% FBS + 1% P/S) em um tubo de coleta cônico de 15 mL. Use a seguinte estratégia de gating: porta para únicas pilhas, porta para pilhas ao vivo, porta para CD45 pilhas negativas, porta para pilhas negativas CD34 e CD31, porta para NG2 pilhas positivas, e finalmente a porta para CD146 e CD140b pilhas positivas.
5. cultivo de Pericytes
- Cubra uma placa de 24 poços com 0,2% de gelatina por 5 min e aspirar a solução de gelatina. Sementes recém-obtidas de células da etapa 4.2.5 em DMEM + 20% FBS + 1% P/S até 2 x 10⁴ células/cm2. Células de cultura em uma incubadora de células definido em 37 ° c, 5% CO2 e 95% O2.
- Passaging de pericitos
- Uma vez que as células são 95% confluentes, células de lavagem com quente 1x DPBS, e levantar células com 200 μL de 0,1% tripsina em cada poço em temperatura ambiente para 3 − 5 min.
- Bata suavemente a placa para afrouxar as células.
- Neutralize a tripsina com 3,5 x a quantidade de meios de cultura (700 μL DMEM + 20% FBS + 1% P/S) e as duas células (P2) de passagem de semente para uma placa de 6 poços não revestida a 2 x 10⁴ células/cm2.
- Cada poço, quando confluente, pode ser movido em um único balão de T-75 como as pilhas P3 que podem então ser rachadas em uma relação 1:6.
6. caracterização de Pericytes
-
Análise de citometria de fluxo
- Use o mesmo protocolo de coloração de FACS e a estratégia de gating como descrito previamente na seção 4.
- Execute controles e amostras manchadas no cytometer do fluxo. Coletar dados e analisar dados usando o software de análise (tabela de materiais).
- Para coletar imagens do brightfield, cresça pilhas em um frasco em uma incubadora da pilha ajustada em 37 ° c, em 5% CO2 e em 95% O2. Capture imagens em um microscópio depois que as pilhas se unem à superfície.
-
Immunocytochemistry
- Cresça pilhas em uma placa 96-well até 90% confluente. Lave as células com 1x DPBS quente e fixar com 4% paraformaldeído por 30 min à temperatura ambiente.
- Lave as células 3x com 1x DPBS e Permeabilize com detergente 0,1% por 10 min à temperatura ambiente.
- Incubar células com tampão de bloqueio para 1 h à temperatura ambiente. Após o bloqueio, adicione anticorpos primários (um anticorpo por poço) diluídos 1:100 em tampão de bloqueio e incubar a 4 ° c durante a noite. Os anticorpos preliminares são: anti-NG2, anti-CD140b, anti-CD31, anti-Vimentin, anti-Desmin, e Actin do músculo liso do anti-alfa.
- No dia seguinte, lave as células 3x com tampãode lavagem (tabela de materiais). Adicionar anticorpo secundário diluído 1:1000 em tampão de bloqueio e incubar por 2 h à temperatura ambiente no escuro. O anticorpo secundário é um anti-coelho conjugado a FITC.
- Lave as células 3x com tampão de lavagem. Adicionar 300 μM de mancha nuclear diluída em 1:1000 por 5 min à temperatura ambiente.
- Lave as células 3x com 1x DPBS e monte com suportes de montagem.
- Células de imagem com um microscópio confocal.
Resultados
Após a digestão enzimática e dissociação de todo o coração e antes da purificação de FACS das células, as células são uma mistura bruta que contém muitos tipos de células diferentes do coração (Figura 1a). Após a purificação e cultivo de FACS, as células são homogêneas. São únicos nucleados, bastante lisos, e têm a morfologia Rhomboid típica do pericyte (Figura 1b).
Usando FACS, as células são purificadas para homogeney. A amostra de célula de controle não manchada é usada para mostrar a estratégia de gating (Figura 2). Primeiramente, os restos e os doublets foram fechados para fora baseados em distribuições de dispersão para diante e laterais. Então as pilhas inoperantes foram bloqueadas para fora devido a sua reação do Amine com o corante que produz um sinal maior e mais intenso do que pilhas vivos. Das células ao vivo, as células hematopoiéticas foram bloqueadas por serem CD45+. Para remover mais as pilhas hematopoietic e endothelial, CD34+ e CD31+ Cells foram fechados para fora. Finalmente, as células NG2 +e CD140b +/cd146+ foram selecionadas por serem células perivasculares com expressão de marcadores típicos de pericyte (Figura 3). O painel marcador também foi testado em células endoteliais coronárias do camundongo como controle (Figura suplementar 1). Apenas cerca de 1% da mistura de células brutas consistiu de pericitos após a triagem.
Para validar que as células eram de fato pericytes, nós é as células para caracterização adicional. As células cresceram rapidamente, uma vez que chegaram a P3 nos frascos T-75 sem alterações na viabilidade à medida que se tornaram mais velhos (suplementar Figura 2). Quando comparado com os pericytes cerebrais humanos, as células apresentaram morfologia semelhante (figura 4a). Quando comparado com o rato e as células musculares lisas humanas, as células apresentaram uma morfologia diferente (figura 4a). Também não foram observadas alterações na morfologia ou expressão do marcador em P7 quando imunocoradas ou por análise de citometria de fluxo após o de (Figura 4B,C).
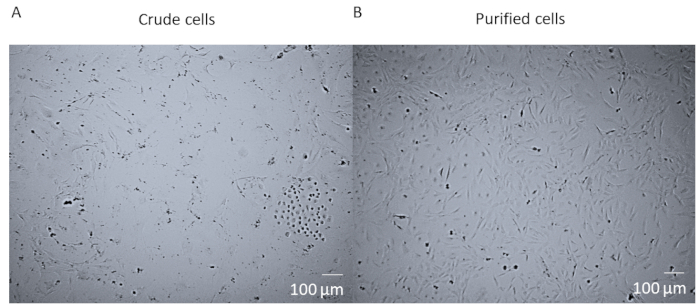
Figura 1 : Células brutas versus células purificadas. (A) a imagem brightfield de mistura de células brutas pós digestão enzimática de coração inteiro e dissociação que foi cultivada em um balão T25 por 14 dias. (B) a imagem do brightfield de uma população homogênea de pericitos cardíacos pós-triagem e cultivo após 14 dias. Barra de escala = 100 μm. por favor clique aqui para ver uma versão maior desta figura.

Figura 2 : Imagens representativas da análise de FACS de células não manchadas. Representação esquemática da estratégia de gating usada para purificar a mistura de células brutas. Porta para as pilhas que são únicas, vivem,CD45-,CD31-, CD34-, NG2+, CD146+, e CD140b+. Por favor clique aqui para ver uma versão maior desta figura.

Figura 3 : Imagens representativas da análise FACS de células brutas. Representação esquemática da triagem utilizada para obtenção de uma população homogênea de pericytes cardíacos. Aproximadamente 1% das células brutas sãoCD31-CD34-CD45-CD140b+NG2+CD146+. Por favor clique aqui para ver uma versão maior desta figura.

Figura 4 : Caracterização de pericitos cardíacos isolados primários (A) brightfield imagens de células cultivadas de cérebro humano (hPC) e corações de rato (MPC) mostram morfologia de células de pericyte semelhante, mas morfologia diferente de células musculares lisas humanas hsmc) e células musculares lisas do rato (MSMC). Barra de escala = 100 μm. (B) Caracterização fenotípica de células em P7 por imunocioquímica para marcadores de pericyte. Barra de escala = 100 μm. (C) análise por citometria de fluxo dos pericitos em P7 onde foram fechados para marcadores negativos CD31, CD34, CD45 e marcadores positivos NG2, CD140b e CD146. A população permanece homogênea. Por favor clique aqui para ver uma versão maior desta figura.
Complementar Figura 1: imagens representativas da análise de citometria de fluxo de células endoteliais utilizando painel marcador. Utilizou-se a linha celular endotelial coronária do camundongo como controle para a especificidade de ligação para os marcadores. Usando a mesma estratégia de gating que foi usada na sorte à exceção de uma porta positiva para CD31 em vez de uma porta negativa, as pilhas endothelial eram negativas para CD45, CD34, NG2, CD140b, e CD146 mas positivo para CD31 como esperado. Por favor clique aqui para baixar esta figura.
Figura complementar 2: imagens representativas da análise citométrica de fluxo de diferentes passagens de MPC. Os pericitos cardíacos isolados preliminares foram cultivados e é até a passagem 12. As células foram coradas com iodeto de propiídio e analisadas em um citometro de fluxo. A população de controle é uma mistura de células mortas e células ao vivo. Não houve diferenças significativas no número de células viáveis entre as passagens. Por favor clique aqui para baixar esta figura.
Discussão
Como estudos sobre pericitos cardíacos são relativamente novos, o papel dos pericitos na fisiologia cardiovascular e fisiopatologia ainda não foi definido. Em outros órgãos, eles têm demonstrado desempenhar papéis-chave na homeostase e perfusão dos vasos1,2. Comparado à literatura dos pericitos de outros órgãos tais como o cérebro, há significativamente menos publicações em pericitos cardíacos. O isolamento de pericitos cardíacos é crítico para a compreensão de suas características funcionais e mecanismos de sinalização. Conseqüentemente, este protocolo fornecerá investigadores uma maneira mais fácil de alcançar pericitos cardíacos de uma fonte mais prontamente disponível do tecido e de promover estudos em sua biologia. Ele vai ajudar a responder a perguntas sobre como pericitos cardíacos contribuem para a homeostase cardíaca e fisiopatologia, bem como investigar o seu potencial terapêutico.
A população de pericyte isolada do coração murino e caracterizada por CD31-CD34-CD45-CD140b+NG2+CD146+ foi é épocas múltiplas (até P12 e estava indo ainda forte), que não redução da viabilidade e propaga-se rapidamente (Figura 2 suplementar). As células também foram cryofrozen e recuperado com pelo menos 95% de viabilidade. No entanto, nós preferimos usar células P7 ou mais jovens para nossos experimentos. Comparando as imagens do brightfield de nossos pericitos com os pericitos do cérebro humano, as duas linhas de pilha têm a morfologia comparável da pilha (figura 4a) quando diferem na morfologia das pilhas de músculo liso (figura 4a). Nossas células P7 foram caracterizadas por imunocioquímica para marcadores de pericyte, algumas de nosso painel FACS (NG2 e CD140b), e algumas não no painel (vimentina, Desmin, αSMA) e descobrimos que as células expressaram marcadores de pericyte homogeneamente (Figura 4B). Adicionalmente, nossas células P7 foram analisadas por citometria de fluxo novamente com o mesmo painel de marcadores para avaliar alterações na expressão de marcadores devido ao de e constatamos que não houve alterações (Figura 4C). Conseqüentemente, ambos fenotipicamente e morfològica, nossas pilhas são pericytes.
Os estudos de Nees et al.10, avolio et al.11, Chen et al.12e Baily et al.13 demonstraram isolamentos cardíacos de pericyte bem sucedidos. No entanto, o uso de um equipamento personalizado embutido para separar os pericitos dos microvasos por Nees et al.10 envolveu duas câmaras com bombas que perfaziam a solução de protease em frente e para trás através de uma pilha de rede de malha, que era difícil de replicar à medida que não fornecer um esquema e/ou imagem do aparelho e como ele foi construído. Embora Nees et al.10 isolados com sucesso pericitos cardíacos de muitas espécies, nunca foram capazes de reproduzir o seu método. Nossa etapa do destacamento do pericyte em nosso protocolo usa simplesmente um abanador orbital (para dissociar todas as pilhas) que está disponível em a maioria, se não todos os laboratórios, com a solução do tecido e da enzima em um tubo cônico seguido por uma etapa mecânica da dissociação. Não há nenhum instrumento feito encomenda exigido. Em segundo lugar, os protocolos restantes envolvem o uso de tecidos humanos e, portanto, a aquisição de tecido humano é limitante para os investigadores. Nosso protocolo é uma modificação e otimização de protocolos atuais9,12 usando modelos de mouse (tipo Wild, geneticamente modificados, doentes) e materiais que estão prontamente disponíveis para todos os investigadores.
Como as células perivasculares em geral são sensíveis, a viabilidade das células é fundamental para obter um bom rendimento. Durante a aquisição de tecido cardíaco e coloração de células, o tecido/células precisam ser mantidos frios. Em segundo lugar, a digestão enzimática do tecido pode exigir otimização em uma base individual. Dependendo das unidades de atividade em frascos de um de enzimas, concentração e tempo de digestão pode precisar de ser otimizado. Certifique-se de que a solução enzimática é preparada fresca cada vez que de outra maneira o rendimento diminuirá. Em terceiro lugar, a mistura bruta contém um monte de células, alguns mortos e/ou morrendo, é melhor para diminuir a concentração de FBS no tampão de coloração de 5% para 2%. Se você está tendo o problema com as pilhas que obstruem o bocal durante a sorte, Enriqueça primeiramente as pilhas usando um jogo inoperante da remoção da pilha. Você pode igualmente adicionar o tampão de EDTA/HEPES ou o tratamento de DNase ao pre-Sort da pilha para impedir a aglomeração da pilha. Por último, porque o nosso painel de anticorpos é bastante grande e usa muitos fluoróforos, certifique-se de seus controles FMO e controles de compensação são feitos corretamente.
Uma limitação a este método é a quantidade de pericitos cardíacos que podem ser obtidos por coração. No nosso caso, apenas 1,1% da nossa mistura bruta de um coração de rato eram pericitos que é comparável ao percentual nas isolações cardíacas humanas, mas o número de células é significativamente menor devido à quantidade de tecido cardíaco que um rato fornece. Como o número inicial de células é tão baixo após FACS, seria melhor isolar de vários corações ao mesmo tempo. No entanto, o problema com que é o número completo de células que você precisa classificar através de um dia. Se você tiver mais de 30 milhões células, será difícil obter através da classificação sem afetar a viabilidade das células. Se o investigador tivesse vários classistas de células, isolar-se de múltiplos corações em um dia seria factível. Outra limitação éque, porquenão sabemos se existem subpopulações de pericitos no coração como se houvesse músculo esquelético15,16, não sabemos se estamos eliminando um subtipo em nossa estratégia de gating. Estamos no processo de caracterizar nossos pericitos cardíacos e, até agora, em nossos dados inéditos, eles são funcionalmente como outros pericitos na literatura.
Nosso protocolo permitirá aos investigadores responder a perguntas sobre as propriedades do pericyte cardíaco, características, funcionalidade, e outros aspectos que ajudarão a definir a sua contribuição para a homeostase cardíaca e hemodinâmica. Estas pilhas podiam ter o potencial terapêutico à doença cardiovascular uma vez que sua biologia é compreendida melhor.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
Os autores gostariam de agradecer ao núcleo da citometria do fluxo de Amgen para sua ajuda com projeto do painel do fluoróforo, Troubleshooting, e classificação da pilha.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 0,25% de tripsina-EDTA | Corning | 25-053-Cl | diluído com 1x DPBS para obter 0,1% |
| 100 μ Filtro M Cell | FisherSci | 22363549 | |
| 15 mL Tubos cônicos Falcon | BD | 352096 | |
| placa de 24 poços | Corning | CLS3527 | |
| agulha borboleta 25 G | FisherSci | 22-253-146 | |
| Seringa de agulha 31 G | FisherSci | B328446 | |
| 50 mL Tubos cônicos Falcon | BD | 352098 | |
| Placa de 6 poços | Corning | CLS3516 | |
| anti-alfa músculo liso actina coelho mAb | abcam | ab32575 | Anticorpo usado em ICC 1:100 diluição |
| anti-CD140b coelho mAb | Sinalização celular | 28E1 | Anticorpo usado em ICC diluição 1:100 |
| anti-CD31 coelho pAb | abcam | ab28364 | Anticorpo usado em ICC 1:100 diluição |
| anti-desmina coelho pAb | abcam | ab8592 | Anticorpo usado na diluição ICC 1:100 |
| anti-NG2 conjugado ao AF488 | Millipore | MAB5384A4 Anticorpo usado na diluição ICC 1:100 | |
| anti-vimentina coelho mAb | abcam | ab92547 | Anticorpo usado na diluição ICC 1:100 |
| ArC Amine Reactive Compensation bead kit | Invitrogen | A10346 | contas de compensação para corante IR vivo / morto |
| perto de campo claro Câmera de microscópio | acoplada | ||
| CD140b-PE (clone APB5) | eBioscience | 12-1402-81 | Anticorpo usado na diluição FACS 1:100 |
| CD146-BV605 (clone ME-9F1) | BD | 740434 | Anticorpo usado na diluição FACS 1:100 |
| CD31-APC (clone MEC 13.3) | BD | 551262 | Anticorpo usado na diluição FACS 1:100 |
| CD34-BV421 (clone RAM 34) | BD | 56268 | Anticorpo usado na diluição FACS 1:100 |
| CD45-PE-Cy7 (clone 30-F11) | BD | 552848 | Anticorpo usado na diluição FACS 1:100 |
| Centrífuga | eppendorf | ||
| Colagenase B | Roche | 11088815001 | 0,226 U/mg lyo. |
| Microscópio | |||
| DAPI | ThermoFisher | D1306 | coloração nuclear |
| DMEM com 4,5 g/L de glicose, L-glutamina e piruvato de sódio | Corning | 10-013-CV | 500 mL |
| Tesoura Dowell | FST | 15040-11 | |
| Solução salina tamponada com fosfato de Dulbecco (DPBS) | Corning | 21-030-CV | 500 mL |
| Solução salina tamponada com fosfato da Dulbecco sem Ca e Mg (CMF-DPBS) | Corning | 21-031-CV | 500 mL |
| Dumont #5 Pinça Fina | FST | 11254-20 | |
| FACSAria classificador de células | BD | Lasers: 405 nm 50 mW, 488 nm 100 mW, 561 nm 50mW, 633 nm 11 mW | |
| FACSAria software BD | |||
| Falcon tubo de polipropileno de fundo redondo, 5 mL | BD | 38057 | |
| Tubo de falcão com tampa de filtro de células, 5 mL | BD | 08-771-23 | |
| Soro bovino fetal | Corning | 35-015-CV | 500 mL |
| Tesoura fina | FST | 14060-09 | |
| Software FlowJo | FlowJo LLC | ||
| Citômetro de fluxo Fortessa LSR | BD | Lasers: 405 nm 50 mW, 488 nm 100 mW, 561 nm 50mW, 633 nm 11 mW | |
| Revestimento à base de gelatina | Cell Biologics | 6950 | |
| Cabra anti-coelho IgG (H+L) Absorção cruzada Anticorpo secundário, Alexa Fluor 488 | Invitrogen | A-11008 | Anticorpo usado na diluição ICC 1:1000 |
| Graefe Forceps | FST | 11049-10 | |
| Solução de heparina sódica | Hospira | NDC 0409-2720-02 | 10.000 unidades USP/10 mL; de intestinos suínos |
| Incubadora | fixado em 37 ° C, 5% CO2, 95% O2 | ||
| Lâminas de microscópio Live/Dead-Near IR | Life Technologies | L10119 | |
| FisherSci | 12-550-343 | ||
| NG2-FITC | Millipore | AB5320A4 Anticorpo usado em FACS 1:100 diluição | |
| Agitador de oribital | VWR | Inside 37 ° C incubadora ou sala | |
| Paraformaldeído | FisherSci | 50-980-487 | diluir com 1x DPBS para obter 4% |
| de Penicilina-Estreptomicina | Corning | 30-002-CI& | |
| nbsp; Placa de Petri | FisherSci | FB0875714 | |
| Pipeta e pontas | |||
| ProLong Diamond | ThermoFisher | P36965 | mídia de montagem |
| Iodeto de propídio | ThermoFisher | para figura suplementar 2 | |
| Rabbit IgG FITC | eBiosciences | 11-4614-80 | Anticorpo de controle de isotipo - FITC |
| Rat IgG2a APC | Biolegend | 400512 | Anticorpo de controle de isotipo - APC |
| Rato IgG2a BV421 | Biolegend | 400536 | Anticorpo de controle de isotipo - BV421 |
| Rato IgG2a BV605 | BD | 563144 | Anticorpo de controle isotípico - BV605 |
| Rato IgG2a PE | Biolegend | 400308 | Anticorpo de controle isotípico - PE |
| Rato IgG2b PE-Cy7 | Biolegend | 400617 | Controle isotípico anticorpo - PE-Cy7 |
| SuperBlock | ThermoFisher | 37515 | tampão de bloqueio |
| T75 | ThermoFisher | 156499 | |
| Triton X-100 | Sigma | X100 | detergente, diluir com x DPBS para obter 0,1% |
| UltraComp grânulos de | Invitrogen | 01-2222-42 | |
| Bomba peristáltica de fluxo variável | FisherSci | 13-876-1 | |
| ViCell Contador de células | Beckman | ||
| Tampão | de lavagem 1:10 diluição do Superbloco em 1x DPBS |
Referências
- Armulik, A., Abramsson, A., Betsholtz, C. Endothelial/pericyte interactions. Circulation Research. 97 (6), 512-523 (2005).
- Armulik, A., Genove, G., Betsholtz, C. Pericytes: developmental, physiological, and pathological perspectives, problems, and promises. Developmental Cell. 21 (2), 193-215 (2011).
- Sengillo, J. D., et al. Deficiency in mural vascular cells coincides with blood-brain barrier disruption in Alzheimer's disease. Brain Pathology. 23 (3), 303-310 (2013).
- Avolio, E., Madeddu, P. Discovering cardiac pericyte biology: From physiopathological mechanisms to potential therapeutic applications in ischemic heart disease. Vascular Pharmacology. 86, 53-63 (2016).
- Dore-Duffy, P. Isolation and characterization of cerebral microvascular pericytes. Methods in Molecular Medicine. 89, 375-382 (2003).
- Bryan, B. A., D'Amore, P. A. Pericyte isolation and use in endothelial/pericyte coculture models. Methods in Enzymology. 443, 315-331 (2008).
- Maier, C. L., Shepherd, B. R., Yi, T., Pober, J. S. Explant outgrowth, propagation and characterization of human pericytes. Microcirculation. 17 (5), 367-380 (2010).
- Crisan, M., Corselli, M., Chen, W. C., Peault, B. Perivascular cells for regenerative medicine. Journal of Cellular Molecular Medicine. 16 (12), 2851-2860 (2012).
- Crisan, M., et al. Purification and long-term culture of multipotent progenitor cells affiliated with the walls of human blood vessels: myoendothelial cells and pericytes. Methods in Cellular Biology. 86, 295-309 (2008).
- Nees, S., et al. Isolation, bulk cultivation, and characterization of coronary microvascular pericytes: the second most frequent myocardial cell type in vitro. American Journal of Physiology Heart Circulatory Physiology. 302 (1), H69-H84 (2012).
- Avolio, E., et al. Expansion and characterization of neonatal cardiac pericytes provides a novel cellular option for tissue engineering in congenital heart disease. Journal of the American Heart Association. 4 (6), e002043(2015).
- Chen, W. C., et al. Human myocardial pericytes: multipotent mesodermal precursors exhibiting cardiac specificity. Stem Cells. 33 (2), 557-573 (2015).
- Baily, J. E., et al. Isolation of Perivascular Multipotent Precursor Cell Populations from Human Cardiac Tissue. Journal of Visualized Experiments. (116), e54252(2016).
- Murray, I. R., et al. Skeletal and cardiac muscle pericytes: Functions and therapeutic potential. Pharmacology & Therapeutics. 171, 65-74 (2017).
- Birbrair, A., et al. Role of pericytes in skeletal muscle regeneration and fat accumulation. Stem Cells Development. 22 (16), 2298-2314 (2013).
- Birbrair, A., et al. Skeletal muscle pericyte subtypes differ in their differentiation potential. Stem Cell Research. 10 (1), 67-84 (2013).
Reimpressões e permissões
