Apresentado aqui é um protocolo para determinar o número de tripes e predadores de insetos piratas minutos em culturas sobre várias datas em experimentos de campo. Também ilustrado é como determinar a eficácia das táticas de gestão contra tripes e avaliar os benefícios da predação por bugs piratas minutos.
Artigo de método
Amostragem para estimar espécies de Frankliniella flor tripes e Orius espécies predadores em experimentos de campo
Neste artigo
Resumo
Resumo
Os Thrips ocidentais da flor, occidentalis de Frankliniella (pergande), são uma praga polífagos que seja espalhada no mundo inteiro. O uso extensivo de inseticidas em tentativas de controle de suas populações elimina inimigos naturais e espécies de tripes de flores concorrentes, aumentando assim suas populações. Uma situação insustentável se desenvolve com populações de pragas resistentes concomitantes, surtos de pragas secundárias e degradação ambiental. A gestão integrada de pragas utiliza o conhecimento de pragas e relacionamentos inimigos naturais para implementar táticas que são ambientalmente amigáveis e sustentáveis. Bugs piratas minutos são os mais importantes predadores mundiais de tripes. Eles podem suprimir e, finalmente, controlar as espécies de Frankliniella flor tripes. Amostras de flores colhidas pelo menos semanalmente são necessárias para compreender a dinâmica predador-presa. Mostrado aqui é a amostragem das flores de vegetais frutíferos e plantas acompanhante para estimar as densidades de tripes individuais e espécies de insetos piratas minutos. Dados representativos ilustra como o protocolo é usado para determinar a eficácia das táticas de gestão ao longo do tempo e como avaliar os benefícios da predação por bugs piratas minutos. O protocolo de amostragem é igualmente adaptável à amostragem de tripes e insetos piratas minutos em outras espécies de plantas hospedeiras.
Introdução
A flor ocidental tripes, Frankliniella occidentalis (pergande), foi uma das primeiras grandes pragas que foi espalhado em todo o mundo como resultado do globalismo e do comércio internacional de produtos agrícolas. Os danos econômicos resultam diretamente da alimentação e da oviposição e indiretamente através da transmissão de vírus patogénicos da planta. As populações invasivas já eram largamente resistentes à maioria das classes de inseticidas, e as tentativas de controlar as populações com inseticidas aumentaram apenas o dano eliminando importantes inimigos naturais e espécies concorrentes. Essa abordagem de controle desestabilizou os programas de manejo e resultou em populações de pragas resistentes, surtos de pragas secundárias e degradação ambiental1.
Programas integrados de gestão de pragas foram desenvolvidos a partir do conhecimento de pragas e relacionamentos inimigos naturais e os efeitos das táticas de gestão sobre essas relações. As características da população da colonização e do crescimento rápidos foram acreditadas por muito tempo para outstrip as capacidades de inimigos naturais para regular os Thrips ocidentais oportunistas da flor; Isto é, até que se mostrou que a predação de populações naturais de Orius insidiosus (Say) não só resultou na supressão de populações de tripes de flores ocidentais, mas também um declínio das populações em direção à extinção2. Além disso, os tripes ocidentais da flor são na maior parte flor-habitar, em que compete para o pólen e outros recursos da flor com os tripes polífagos nativos da flor.
Na maior parte do leste dos Estados Unidos, o principal concorrente nativo é Frankliniella tritici (Fitch), enquanto no sul da Flórida a principal espécie concorrente é Frankliniella bispinosa (Morgan)3. Os tripes ocidentais da flor sofrem a resistência biótica forte em Florida das espécies nativas dos predadores e das espécies do tripes da flor do concorrente; no entanto, é a espécie dominante em habitats perturbados por inseticidas e outras táticas que excluem tripes concorrentes e inimigos naturais. Portanto, um componente central de programas de manejo integrado de pragas bem sucedidos para a frutificação vegetal é o aumento da predação e da concorrência3,4. Estes programas foram desenvolvidos a partir do conhecimento da dinâmica predador-presa e da eficácia de várias táticas para gerenciar tripes e aumentar a resistência biótica. Aqui, a metodologia usada para estimar as densidades de tripes individuais e espécies de insetos piratas minutos nas flores de vegetais frutíferos e plantas complementares na Flórida são mostradas. Os dados são utilizados para determinar a eficácia das táticas de gestão e avaliar os benefícios da predação por bugs piratas minutos.
Projetando o protocolo de amostragem de tripes de flores: informações de fundo
Quando os tripes da flor ocidental emergiram como uma praga importante na década de 19805, foi necessário desenvolver procedimentos para determinar com precisão, eficiência e precisão o número de espécies de tripes individuais em estudos de campo. Os procedimentos aqui descritos foram desenvolvidos a partir do conhecimento adquirido em inúmeros estudos realizados para compreender a biologia e o manejo de tripes de flores. Exemplos desses estudos incluem o trabalho de Funderburk et al.2, Hansen et al.6, Salguero Navas et al.7, Sutherland et al.8e Tyler-Julian et al.9. As concentrações de espécies de Frankliniella e insetos piratas minutos em flores é baseada em comportamentos e não um artefato de aplicações de inseticida ou de amostragem6. As estimativas das populações nas flores sobre outras partes da planta são geralmente suficientes para compreender a dinâmica local do predador e a rapina em um anfitrião da planta e em avaliar os benefícios de programas biológicos do controle baseados no predador às relações da rapina. No entanto, a metodologia desenvolvida para flores pode ser adaptada à amostragem de outras partes da planta. A unidade usual da amostra é uma ou mais flores. O número de amostras necessárias para atingir o nível de precisão desejado é uma função da densidade populacional e do número de flores na unidade amostral.
As espécies de Frankliniella tendem a ser uma distribuição agregada nas flores, e as populações são concentradas geralmente nas flores do dossel superior da planta7. Para a maioria de estudos, as flores são selecionadas aleatòria da metade superior da planta. As técnicas relativas para remover tripes das flores, incluindo a lavagem líquida, o dislodgement mecânico, ou a dessecação, são inexatas e imprecisas8. Por esta razão, uma contagem direta, a técnica de estimativa absoluta é usada. Tripes são pequenos organismos cerca de 2 mm em Iength, e a microscopia geralmente é necessária para determinar com precisão a espécie. As flores que constituem uma unidade de amostra são colocadas em um frasco de 70% de álcool. Uma vez coletadas as amostras, os frascos de cada parcela são devolvidos ao laboratório para extração dos tripes e insetos piratas minutos e determinação exata do sexo, das espécies e do estágio de cada um. Experimentos consistem em gráficos de campo replicados que são usados para avaliar a eficácia dos tratamentos para suprimir os tripes e os benefícios da predação por bugs piratas minutos. As amostras de flores são colhidas pelo menos semanalmente durante o período de floração do hospedeiro da planta. Os projetos experimentais do bloco completo randomizado são úteis na remoção das diferenças experimentais de erro em tripes e densidades de bug pirata minutos entre blocos. Os arranjos de tratamento de subparcelas são úteis para reduzir os efeitos interplot das táticas de manejo que afetam o movimento de tripes9.
Processamento e análise de amostras de flores: informações de fundo
Antes da década de 1990, as chaves para espécies de tripes foram desenvolvidas para uso por especialistas taxonômicos, que colocaram tripes para identificação em lâminas de microscópio usando um dos vários suportes de montagem. Pesquisadores estudando biologia e manejo de tripes não foram especialistas taxonômicos, e não houve envolvimento de especialistas taxonômicos nos estudos. Tipicamente, os tripes em amostras desses estudos foram aglomerados nos níveis de classificação do gênero, família, subordem ou ordem. Após a disseminação dos tripes da flor ocidental, houve 1) rápida proliferação de pesquisas sobre Biologia e manejo de tripes e 2) reconhecimento por pesquisadores pela necessidade de identificar espécies de tripes e desenvolver um sistema eficiente para o processamento de amostras.
Em estudos em meados da década de 1990 envolvendo a biologia populacional de tripes, os tripes adultos das amostras foram colocados em lâminas de microscópio e identificados para espécies por especialista taxonômico R. J. Beshear (por exemplo, Salguero Navas et al.7). As larvas foram identificadas apenas no gênero devido à falta de chaves de identificação larval disponíveis naquele momento. A montagem da corrediça era cara e laboriosa, e um sistema mais eficiente foi desenvolvido2. Em estudos subsequentes, os tripes nas amostras foram extraídos das flores em uma placa de Petri contendo 70% de álcool, e os machos e fêmeas na placa de Petri foram identificados para espécies estereoscopia. A maioria de nossa pesquisa envolve espécies de Frankliniella. Os adultos dessas espécies foram separados para espécies o estereoscópio, utilizando-se diferenças na sua chaetotaxia na superfície dorsal do pronotum, cabeça e antenas10,11,12.
Conhecimentos adicionais em taxonomia de tripes foram adquiridos para reconhecer e identificar outros gêneros de tripes e espécies nas amostras. Existem inúmeras espécies Orius em todo o mundo que são importantes predadores de tripes. Duas espécies, o. insidiosus e o. pumilio (Champion), são simpátricas em grande parte da Flórida13. Os adultos destas espécies são separados por características de cor do segmento sensilas basal, fémures da perna traseira, e necesse na asa. Espécies de tripes e gêneros diferem em sua biologia e comportamento; Portanto, os dados para cada um são normalmente analisados separadamente. Como as populações de tripes em flores têm um padrão agregado de distribuição, os dados precisam de transformação para estabilizar variâncias entre os tratamentos. Os meios de tratamento são comparados por meio da análise de variância, conforme apropriado para o experimento, e os dados são analisados para cada data individual e/ou para dados agrupados na data2,9. A análise dos efeitos em datas individuais é importante quando as diferenças de tratamento variam ao longo da data. A proporção do total de tripes (adultos e larvas) por bug pirata minuto (adultos e ninfas) é usado para avaliar a eficácia do controle biológico com bugs piratas minutos em estudos de campo da Flórida suprimindo populações de tripes em uma proporção de cerca de um predador para cada 180 tripes2,9.
Protocolo
1. experimento de campo para determinar os efeitos do mulch UV-reflexivo, caulim, e plantas de companheiro em tripes flor e seu predador bug minuto pirata
- Estabeleça um experimento de campo com um arranjo de tratamento de parcelas subdivididas em um delineamento experimental em blocos ao acaso com tipo de mulch como tratamentos de parcelas inteiras, caulim e não caulim como tratamentos de substrato, e plantas complementares e sem plantas acompanhante como tratamentos subplotais (Figura 1A, B)9,14.
- Blocos de layout de tomates ou pimenta que são cada pelo menos 6 m de largura e 72 m de comprimento.
- Aleatoriamente colocar em cada bloco parcelas inteiras de preto e UV-reflexivo mulch, com cada parcela inteira consistindo de seis levantou camas mulch pelo menos 36 m de comprimento.
- Plante uma fileira linear de tomates cada 45 cm ou duas fileiras lineares das pimentas cada 30 cm nas quatro camas internas de cada parcela inteira.
- Tratamento de caulim
- Divida aleatoriamente cada parcela inteira em subparcelas iguais de caulim ou sem tratamentos de caulim.
- Aplique caulim uma ou duas vezes por semana à taxa de 7,0 kg/ha para as plantas de tomate ou pimenta nas subparcelas atribuídas para receber tratamento de caulim.
- Plantas do companheiro
- Divida aleatoriamente cada subparcela em subparcelas iguais de plantas complementares ou tratamentos vegetais complementares.
- Plante duas fileiras lineares de Bidens Alba (l.) cada 30 cm ou uma fileira linear de Helianthus annuus l. cada 30 cm nas duas camas exteriores de cada tratamento do subplot com plantas do companheiro.
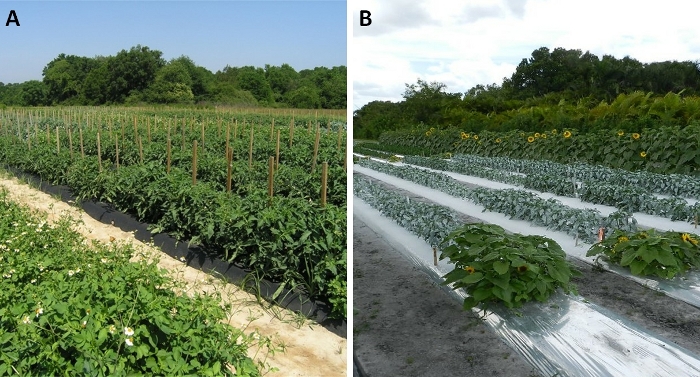
Figura 1: exemplo de estudo de campo experimental.
(A) delineamento em blocos ao acaso para avaliar os efeitos distintos e interativos de plantas companheiras, mulch e efeitos de caulim em tripes de flores e insetos piratas minutos. (B) Bidens Alba (L.) avaliada como uma espécie de planta acompanhante com tomate como a safra9. Helianthus annuus L. avaliada como uma espécie de planta acompanhante com pimenta como a safra14. Por favor clique aqui para ver uma versão maior desta figura.
2. flor tripes protocolo de amostragem
- Prepare 50 mL de frascos de amostra antes de ir para as parcelas experimentais.
- Coloque uma etiqueta com o mulch, o caulim, e o tratamento de planta do companheiro, o número do bloco, e a data da amostra na parte externa e dentro de cada frasco.
- Coloque exactamente 30 mL de álcool 70% em cada frasco para injetáveis de 50 mL.
- Coloque os frascos em uma bandeja.
- Leve as bandejas para o local de campo experimental.
- Prove as flores para tripes e insetos piratas minutos.
- Atribua aleatoriamente as plantas de tomate ou pimenta a serem amostradas em cada subparcela.
- Amostra entre meados da manhã e meio da tarde.
- Pegue as amostras da metade superior da planta.
- Retire a tampa do frasco para injetáveis. Usando uma navalha afiada ou tesoura, Retire cuidadosamente a flor da planta. Coloque rapidamente a flor no frasco pré-rotulado apropriado. Empurre a flor para o álcool do frasco para injetáveis (Figura 2). Substitua a tampa.
- Colete 10 flores por amostra. Certifique-se de que cada frasco está firmemente selado, em seguida, agitar cada frasco para assegurar que as flores estão dentro do álcool.
- Devolva as bandejas com amostras para o laboratório para armazenamento. Para garantir que as amostras não se deterioram antes do processamento, mantenha as amostras frescas e secas. Refrigerate, se possível, especialmente para as amostras que não são processadas rapidamente.
- Repita a amostragem de cada subparcela pelo menos semanalmente durante o período de floração da cultura.
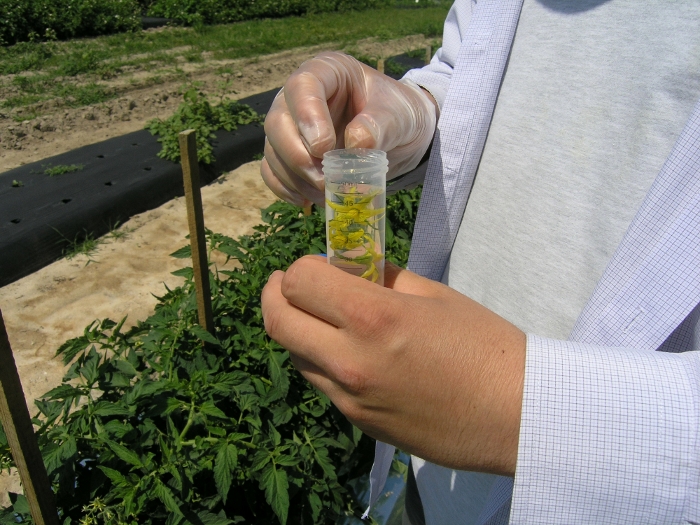
Figura 2: técnica de remoção de amostras.
Uma amostra de 10 flores de tomate sendo coletadas de uma parcela subsub no experimento push-pull de tomate9. Por favor clique aqui para ver uma versão maior desta figura.
3. processamento de amostras em laboratório
- Extraia os tripes e bugs piratas minutos das flores em cada amostra.
- Retire a amostra do frigorífico e da bandeja sem perturbar o conteúdo.
- Retire a tampa do frasco para injetáveis e extraia cuidadosamente com uma pipeta qualquer excesso de álcool acima das flores.
- Reseal o frasco e agitar para desalojar os tripes e insetos piratas minutos nas flores.
- Abra o frasco e despeje o conteúdo em uma placa de Petri. Enxague o interior do frasco com 70% de álcool e despeje o conteúdo na placa de Petri. Certifique-se de todos os tripes e bugs piratas minutos no frasco são liberados na placa de Petri.
- Dissecar cada flor com fórceps e enxaguar com 70% de álcool para garantir que todos os tripes e insetos piratas minutos foram desalojados. Retire e descarte as peças da flor da placa de Petri (Figura 3).
- Transfira o prato de Petri para a plataforma de um Estereoscópio com ampliação de 40x – 150x.
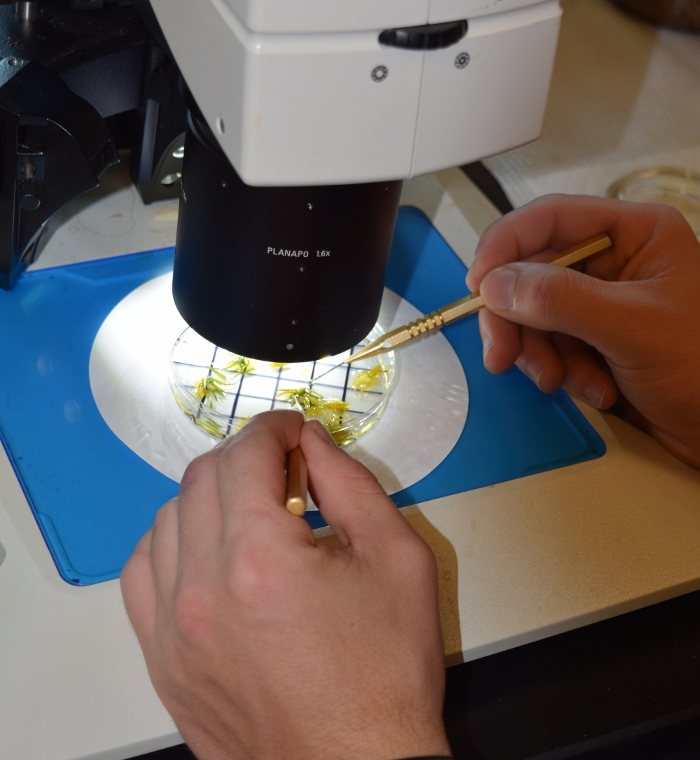
Figura 3: extração de tripes e bugs piratas minutos de flores.
Uma amostra de 10 flores de tomate derramou em um prato de Petri para processamento para determinar o número de tripes e insetos piratas minutos. Por favor clique aqui para ver uma versão maior desta figura.
- Identifique e conte os tripes de flores em amostras.
- Identifique e conte em cada grade o número de machos e fêmeas adultos de cada espécie de tripes de flores e o número de larvas de espécies de Frankliniella .
- Identifique as espécies de tripes de flores adultas na Flórida com base nas cerdas no pronotum, na cabeça e no segundo segmento sensilas10,11,12.
- Separe os adultos de f. bispinosa dos adultos de f. tritici e f. occidentalis pela altivez extra dos dois cerdas na margem dorsal anterior do segundo segmento sensilas (Figura 4).
- Separe o adulto f. occidentalis dos de f. bispinosa e f. tritici pelos comprimentos iguais próximos das cerdas principais marginais anteriores e angulares anteriores no pronoto e pelas mais longas cerdas postoculares na cabeça ( Figura 4).
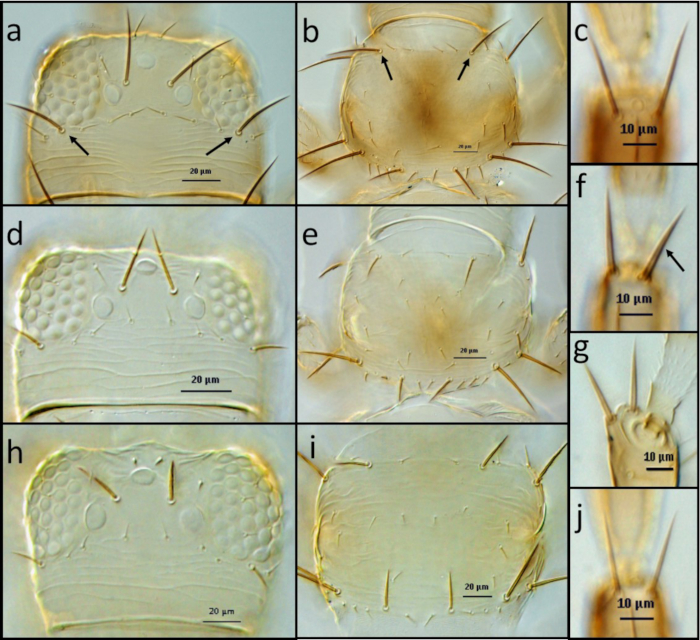
Figura 4: exemplos de caracteres morfológicos para identificar tripes.
(A, B, C) F occidentalis: cabeça (A), setas indicam par de cerdas postoculares IV; pronoto (B), as setas indicam par de longos setae ântero-marginais; cerdas dorsal distal do segmento de antena II (B). (D, E, F, G). F. bispinosa: cabeça (D); pronoto (E); cerdas dorsal distal do segmento de antena II (f, g), seta indica cerdas Stout (f), vista lateral de cerdas Stout (G). (H, I, J). F. tritici: cabeça (H); pronoto (I); cerdas dorsal distal do segmento de antena II (J). Por favor clique aqui para ver uma versão maior desta figura.
- Identifique e conte os bugs piratas minutos em amostras da Flórida.
- Identificar e contar em cada grade o número de adultos o . insidiosus e o . pumilio e o número de espécies de orius ninfal13,14.
- Identifique o adulto o. insidiosus pelos segmentos pré-antenais básicos marrons, pelo fémures que têm marcações escuras, e pelo necesse que é marrom escuro.
- Identifique o adulto o. pumilio pelos segmentos sensilas basais amarelos, o femora amarelo ou palha-colorido, e pelo necesse com palha pálida ou cor Light-Brown.
- Adicione os números de cada grade para determinar o número total de machos adultos e fêmeas de cada espécie de tripes de flores, o número de larvas de espécies de Frankliniella , o número de bug pirata minuto adulto de cada espécie, eo número de ninfas de bug pirata minuto na amostra.
- Selecione vouchers representativos de tripes de flores e adultos bug pirata minutos das amostras. Rótulo por data, host de fábrica, local e coletor. Curate para a preservação a longo prazo.
- Transfira os dados de cada amostra para uma planilha que inclua a data de amostra, o tratamento e a replicação.
- Crie um arquivo de dados que contenha os dados de cada amostra. Inclua a localização experimental, o delineamento experimental e as quantidades e datas de cada prática cultural utilizada para estabelecer e manter o experimento.
- Mantenha e gerencie o DataFile com o backup apropriado para acesso de longo prazo.
Resultados
Os dados coletados no estudo de Tyler-Julian et al.9 podem ser usados para demonstrar os efeitos separados e combinados dos fatores de impulso (i.e., cobertura ultravioleta-reflexiva e aplicação de caulim) e fator de tração (i.e., a agulha espanhola da planta acompanhante, B . Alba) sobre a dinâmica populacional de F. occidentalis adultos machos e fêmeas em flores de tomate (Figura 1a). Os tratamentos plásticos agriculturais do mulch no experimento foram usados para dar forma ao leito do sistema plástico do mulch da elevado-cama que é típico do sistema de produção usado para crescer vegetais do elevado-valor em Florida. O mecanismo do mulch ultravioleta-reflexivo no controle de Praga é uma dissuasão visual que interrompa o acolhimento-encontrando pelos Thrips adultos. Aplicação de caulim nas plantas de tomate também reflete luz ultravioleta suficiente para deter os adultos de tripes. Assim, utilizou-se o delineamento de blocos casualizados de parcelas subdivididas, no experimento, para reduzir a interferência interplot no movimento de tripes resultante das propriedades refletindo-ultravioleta dos tratamentos de palha e caulim, com cobertura de muleta tratamento (ultravioleta-reflexivo versus mulch preto convencional) como todo o enredo, tratamento de caulim (duas vezes por semana aplicação de caulim vs. não caulim) como a subparcela, e tratamento de plantas acompanhante (companheiro plantas vs. nenhum companheiro) como subparcela. O tamanho da subparcela foi de seis leitos por 9 m, com quatro leitos internos de cada subparcela consistindo de uma linha linear de tomate com espaçamento de 45 cm entre plantas, totalizando 80 plantas por subparcela. Duas fileiras de agulha espanhola foram plantadas em cada uma das duas camas externas nas subparcelas com a planta acompanhante com um espaçamento de 30 cm dentro e entre fileiras para um total de 128 plantas de acompanhante por subparcela.
Duas amostras de 10 flores de tomate foram coletadas em cada subparcela em cada uma das 13 datas em 2011 durante o período de floração da cultura do tomate, e o número de machos e fêmeas adultos F. occidentalis em cada amostra foram determinados (Figura 5). Os efeitos do mulch, caulim e planta acompanhante em cada gênero foram analisados por meio de análise de variância para um delineamento de blocos ao acaso para um arranjo de tratamento de parcelas subdivididas para dados em data de amostragem utilizando um modelo misto (ver Tyler-Julian et al. 9 para uma descrição completa da análise de variância e resultados). Os efeitos principais do mulch, do caulim, e da planta do companheiro eram significativos para os tripes ocidentais masculinos da flor (p < 0, 1, 0, 1, e 0, 1, respectivamente), quando os efeitos interativos do mulch x caulim, planta do companheiro do mulch x , caulim x as interações da planta acompanhante e do mulch x caulim x Companion não foram significativas (p > 0, 5). Estes resultados mostraram que cada um dos principais efeitos reduziu o número de machos adultos F. occidentalis, e que os efeitos de cada tática foram aditivos quando combinados uns com os outros.
O efeito principal do mulch foi significativo para a fêmea f. occidentalis (p < 0, 1), enquanto os principais efeitos das plantas de caulim e acompanhante não foram significantes para a fêmea f. occidentalis (p > 0, 5). Conseqüentemente, o mulch ultravioleta-reflexivo reduziu o F. occidentalis fêmea nas flores do tomate, mas o caulim e a planta do companheiro não fizeram. No entanto, a interação mulch X caulim foi significante (p < 0, 5) mostrando que os efeitos combinados do mulch e caulim ultravioleta-refletivos reduziram a F. occidentalis feminina mais do que qualquer uma das táticas isoladamente, enquanto o caulim aplicado a o tomate no mulch preto não reduz números fêmeas do F. occidentalis . Os efeitos interativos da planta complementar de mulch x , da planta do companheiro do caulim x , e das interações da planta do companheiro de x caulim x do mulch para F. occidentalis fêmeas não eram significativos (p > 0, 5).
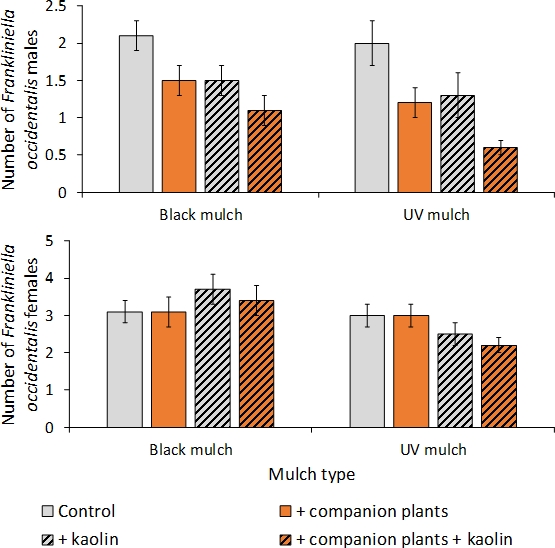
Figura 5: exemplo de análise de dados sobre a data da amostra.
O número médio por 10 flores de tomate (SEM) de machos e fêmeas adultos F. occidentalis em mulch, caulim e tratamentos de plantas complementares para dados amostrais agrupados em 13 datas em 2011 em um experimento push-pull realizado no Condado de Gadsden, Flórida. Este número foi modificado de Tyler-Julian et al.9
A interação da data da amostra de mulch X foi significativa no experimento em 2011 para adultos do sexo masculino e feminino F. occidentalis (p < 0, 1 e 0, 1, respectivamente)9. Isto revelou que o mulch ultravioleta-reflexivo reduziu números dos tripes da flor em algum, mas não todos, tâmaras da amostra. Portanto, foram realizadas análises adicionais para avaliar os efeitos do mulch em datas individuais da amostra. A interação mostrou que o mulch ultravioleta-reflexivo era eficaz em reduzir números dos tripes da flor cedo na estação, mas não havia nenhum significado em datas individuais da amostra durante meados de ou tarde-estação (Figura 6).
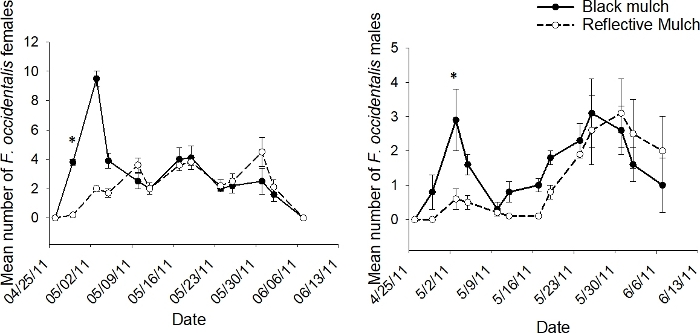
Figura 6: exemplo de dinâmica populacional para tratamento de parcelas inteiras.
O número médio (+sem) por 10 flores de tomate (n = 18 amostras) de machos e fêmeas adultos F. occidentalis em cada 2011 data da amostra em todo o tratamento de parcela de mulch preto e ultravioleta-reflexivo para dados agrupados em caulim e planta acompanhante tratamentos nos experimentos push-pull conduzidos no Condado de Gadsden, Flórida (* indica significância além do nível de significância de 95% de acordo com a análise de variância conduzida para as datas amostrais individuais; d.f. = 1,2). Este número foi modificado de Tyler-Julian et al.9. Por favor clique aqui para ver uma versão maior desta figura.
A interação da data da amostra de caulim X não foi significante em 2011 para F. occidentalis masculino ou feminino (p > 0, 5)9. Como mostrado anteriormente acima, as análises de dados agrupados sobre a data da amostra revelaram que o caulim não afetou significativamente os números femininos de f. occidentalis , enquanto os números masculinos de f. occidentalis foram significativamente reduzidos. A falta de uma interação significativa da data da amostra de caulim X nas análises para dados agrupados na data da amostra sugeriu que os resultados para cada sexo fossem consistentes na data da amostra (Figura 7).
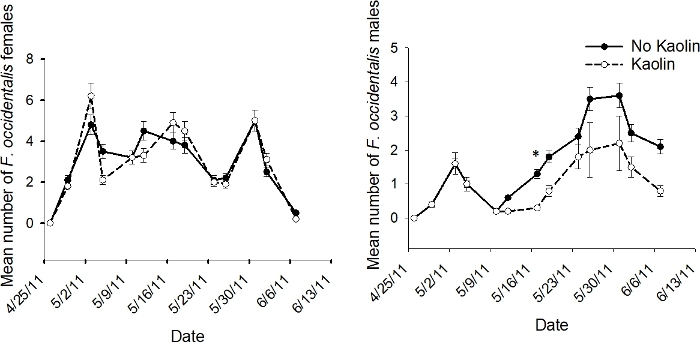
Figura 7: exemplo de dinâmica populacional para tratamento de subparcelas.
O número médio (+sem) por 10 flores de tomate (n = 12 amostras) de machos e fêmeas adultos F. occidentalis em cada 2011 data da amostra no tratamento subtrama de caulim e não caulim para dados agrupados em tratamentos de plantas complementares no push-pull experimentos conduzidos no Condado de Gadsden, Flórida (* indica significância além do nível de significância de 95% de acordo com a análise de variância conduzida para as datas amostrais individuais; d.f. = 1,4). Este número foi modificado de Tyler-Julian et al.9. Por favor clique aqui para ver uma versão maior desta figura.
A interação da planta acompanhante X data da amostra foi significante em 2011 para o masculino f. occidentalis (p < 0, 5), mas não para a fêmea f. occidentalis (p > 0, 5)9. As análises realizadas para avaliar os efeitos da planta acompanhante em datas amostrais individuais revelaram que as plantas acompanhantes reduziram os números adultos de F. occidentalis nas datas da amostra da estação tardia, mas nunca em datas de amostragem precoces ou médias (Figura 8 ).
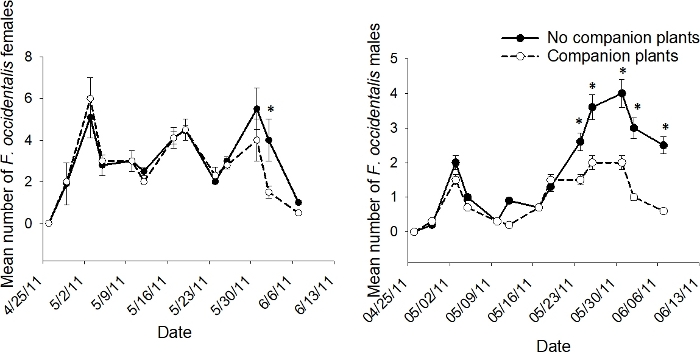
Figura 8: exemplo de dinâmica populacional para o tratamento subgráfico.
O número médio (+sem) por 10 flores de tomate (n = 6 amostras) de machos e fêmeas adultos F. occidentalis em cada 2011 data da amostra no tratamento subparcela da planta acompanhante e nenhuma planta acompanhante nos experimentos push-pull conduzidos em Gadsden County, Flórida (* indica significância além do nível de significância de 95% de acordo com a análise de variância conduzida para as datas individuais da amostra; d.f. = 1, 8). Este número foi modificado de Tyler-Julian et al.9. Por favor clique aqui para ver uma versão maior desta figura.
Os dados coletados a partir das flores da planta acompanhante no estudo de Tyler-Julian et al.14 podem ser utilizados para demonstrar a relação dinâmica entre os insetos piratas minutos e sua presa de tripes em flores (Figura 1b). Como no estudo de Tyler-Julian et al.9 , os objetivos foram determinar os efeitos separados e combinados dos fatores de impulso (i.e., cobertura ultravioleta-reflexiva e aplicação de caulim) e um fator de tração (ou seja, a planta acompanhante), sobre a população dinâmica de espécies de Frankliniella machos e fêmeas adultas em flores da colheita. No estudo de Tyler-Julian et al.14 , a espécie predominante de tripes de flores foi F. bispinosa na planta acompanhante H. annuus e na cultura da pimenta (> 99% do total de tripes nas flores). Os tripes colonizaram rapidamente os girassóis e as flores de pimenta, e seus números foram maiores logo após a floração começar (Figura 9). Populações de tripes diminuiu ao longo do tempo como o número de bugs piratas minutos aumentou. A relação predador-presa ilustrou a capacidade do predador de suprimir as populações de tripes com a extinção próxima das populações de tripes ocorrendo em proporções de > 1 predador por 40 tripes.
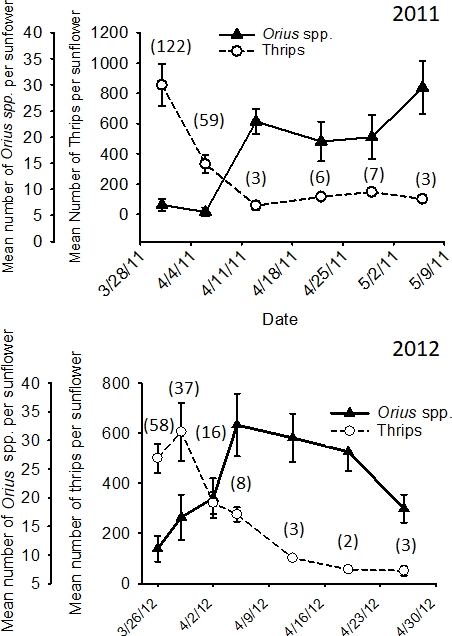
Figura 9: exemplo de avaliação dos benefícios da predação.
Número médio (+sem) de tripes totais (adultos e larvas) e orius spp. total (adultos e ninfas) por cabeça de flor Helianthus annuus em experimentos conduzidos em 2011 e 2012 em Palm Beach County, Flórida (o número de tripes totais presa por predador em cada data mostrada no parêntese). Este número foi adaptado dos dados relatados em Tyler-Julian et al.14 com permissão da Oxford University Press.
Discussão
Protocolos de amostragem com níveis desejados de precisão para estimar as densidades populacionais de tripes de flores foram desenvolvidos para as culturas da Flórida ao longo de mais de três décadas de pesquisa de campo. Os estudos foram conduzidos para compreender aspectos importantes da biologia dos tripes da flor que afetam estimativas da população. Por exemplo, estudos foram conduzidos para compreender os efeitos sobre as estimativas de hora do dia em que a amostragem16, local da amostra dentro do campo16, local da amostra em plantas individuais6,16, padrões de agregação em flores7, e cor da flor17. Esses fatores foram encontrados para influenciar as estimativas populacionais; assim, as decisões de onde, quando e como são criticamente importantes ao projetar o protocolo de amostragem em futuros estudos de pesquisa.
Minuto pirata bug adultos e ninfas são altamente anthophilous, e os agregados predador com sua presa de forma dependente de densidade, preferindo as mesmas flores também preferido pelo tripes17. Eles também exploram pistas de presas ou de plantas danificadas por presas na localização de tripes. Os adultos se movem rapidamente entre as flores, um comportamento que aumenta a sua capacidade de rastrear populações locais de tripes presas no espaço e no tempo18. Portanto, os protocolos de amostragem desenvolvidos para estimar populações de tripes devem ser usados em estudos futuros ao estimar populações de insetos piratas minutos. Bugs piratas minutos são predadores eficientes dos adultos e larvas de diferentes Frankliniella espécies flor tripes19. O número do predador em relação ao número de presas totais de tripes fornece a melhor estimativa da capacidade dos bugs piratas minutos para suprimir e controlar populações mistas de tripes nas flores. Isso deve ser considerado ao analisar os dados em estudos futuros.
Os adultos da espécie Frankliniella colonizam rapidamente as culturas hospedeiras, uma vez iniciada a floração, e o rápido crescimento populacional segue na ausência de mortalidade por inimigos naturais2,18,19. Em uma boa planta hospedeira tanto para predadores como para as presas de tripes como o girassol, os números de tripes são maiores logo após a iniciação das flores, seguidos por quedas nas populações como aumento de bugs piratas minutos (Figura 9). Populações de bugs piratas minutos permanecem, embora os tripes estão quase extintos. Para compreender plenamente esta relação dinâmica predador-presa, é necessário amostrando freqüentemente durante todo o período de floração da cultura. O mesmo é verdade quando se investiga a eficácia de outros tipos de táticas, como eles podem ser eficazes em algumas datas e não outros. Uma vez ou duas vezes por semana durante todo o período de floração foi empregada para avaliar os efeitos de múltiplas táticas no sistema push-pull investigação em Tyler-Julian et al.9,14.
Frankliniella é o segundo maior gênero da família Thripidae, e há uma grande quantidade de literatura descrevendo os estágios de vida adulta20. Um complexo de espécies habita flores que é específico para diferentes espécies de plantas hospedeiras e localizações geográficas. Conseqüentemente, a identificação do perito de espécimes slide-preparados de um subconjunto das amostragens iniciais é crítica. Em seguida, em qualquer hospedeiro de planta e localização geográfica, caracteres taxonômicos únicos para adultos de cada espécie podem ser escolhidos para que a espécie possa ser determinada em estudos futuros sem ir ao procedimento trabalhoso e dispendioso de colocar cada um no microscópio slides para visualização um microscópio composto. Eles simplesmente podem ser vistos e identificados um estereoscópio. (Em algumas situações incomuns, os caracteres morfológicos separando duas espécies são tão semelhantes que eles não podem ser separados o estereoscópio.) Os métodos descritos aqui para as espécies de tripes de flores comuns na maioria das culturas na Flórida devem ser adaptados e usados em outras localidades geográficas ao processar o grande número de amostras necessárias em estudos de campo para determinar a eficácia das táticas de manejo e avaliar os benefícios da predação por bugs piratas minutos.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
A sustentação foi fornecida por concessões do bloco da colheita da especialidade do departamento de Florida da agricultura e dos serviços de consumidor numera 01856 e 024049. Apoio adicional veio de acordos de cooperação entre o USDA-ARS e da Universidade da Flórida números 58-6618-2-096 e 58-6618-4-035. Agradecemos aos alunos, postdocs e colaboradores anteriores que contribuíram de muitas maneiras para nossa pesquisa para entender os fatores que afetam a dinâmica populacional de tripes de flores.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Álcool | Qualquer fonte | de etanol 70% ou tubo de | |
| centrífuga | Fisher Scientific Co. | 06-443-18 | Tampa plana e pinça com bandeja |
| Fisher | Scientific Co. | 08-885 | Argila de caulim de ponta média |
| Novasource | Surround WP | 95% caulim | |
| Pipeta Pasteur Fisher | Scientific Co. | 13-678-6A | Placa de Petri descartável de 5 ¾ polegadas |
| Fisher Scientific Co. | FB0875711A | Com sondas de grade | |
| /buscadores | Fisher Scientific Co. | 08-995 | 6 polegadas dobrado |
| extremidade Fisher | Scientific Co. | 14-840-00 | Excel |
| estereomicroscópio | Leica Microsystems | Série M | 40X e maior |
| cobertura morta reflexiva UV | Intergro | Metalizado |
Referências
- Morse, J. G., Hoddle, M. S. Invasion biology of thrips. Annual Review of Entomology. 51, 67-89 (2006).
- Funderburk, J., Stavisky, J., Olson, S. Predation of Frankliniella occidentalis (Thysanoptera: Thripidae) in field peppers by Orius insidiosus (Hemiptera: Anthocoridae). Environmental Entomology. 29, 376-382 (2000).
- Funderburk, J., Frantz, G., Mellinger, C., Tyler-Julian, K., Srivastava, M. Biotic resistance limits the invasiveness of the western flower thrips, Frankliniella occidentalis (Thysanoptera: Thripidae), in Florida. Insect Science. 23, 175-182 (2016).
- Demirozer, O., Tyler-Julian, K., Funderburk, J., Leppla, N., Reitz, S. Frankliniella occidentalis (Pergande) integrated pest management programs for fruiting vegetables in Florida. Pest Management Science. 68, 1537-1545 (2012).
- Kirk, W. D. J., Terry, L. I. The spread of the western flower thrips Frankliniella occidentalis (Pergande). Agricultural and Forest Entomology. 5, 301-310 (2003).
- Hansen, E. A., et al. Within-plant distribution of Frankliniella species (Thysanoptera: Thripidae) and Orius insidiosus (Heteroptera: Anthocoridae) in field pepper. Environmental Entomology. 32, 1035-1044 (2003).
- Salguero Navas, V. E., Funderburk, J. E., Mack, T. P., Beshear, R. J., Olson, S. M. Aggregation indices and sample size curves for binomial sampling of flower-inhabiting Frankliniella species (Thysanoptera: Thripidae) on tomato. Journal of Economic Entomology. 87, 1622-1626 (1994).
- Sutherland, A. M., Parrella, M. P. Accuracy, precision, and economic efficiency for three methods of thrips (Thysanoptera: Thripidae) population density assessment. Journal of Economic Entomology. 104, 1323-1328 (2011).
- Tyler-Julian, K., Funderburk, J., Srivastava, M., Olson, S., Adkins, S. Evaluation of a push-pull system for the management of Frankliniella species (Thysanoptera: Thripidae) in tomato. Insects. 9, 187(2018).
- Arthurs, S. P., Kok-Yokomi, M. L., Smith, H. Florida flower thrips (suggested common name) Frankliniella bispinosa Morgan (Insecta: Thysanoptera: Thripidae). University of Florida, IFAS, EDIS Document EENY639. , (2018).
- Cluever, J. D., Smith, H. A., Funderburk, J. E., Frantz, G. Western flower thrips (Frankliniella occidentalis [Pergande). University of Florida, IFAS, EDIS Document ENY883. , (2018).
- Sprague, D., Funderburk, J., Lucky, A. Flower thrips, Frankliniella tritici (Fitch). University of Florida, IFAS, EDIS Document EENY720. , (2018).
- Herring, J. L. The genus Orius of the Western Hemisphere (Hemiptera: Anthocoridae). Annals of the Entomological Society of America. 59, 1093-1109 (1966).
- Tyler-Julian, K., Funderburk, J., Frantz, G., Mellinger, C. Evaluation of a push-pull strategy for the management of Frankliniella bispinosa (Thysanoptera: Thripidae) in bell pepper. Environmental Entomology. 43, 1364-1378 (2014).
- Shapiro, J. P., Shirk, P. D., Kelley, K., Lewis, T. M., Horton, D. R. Identity of two sympatric species of Orius (Hemiptera: Heteroptera: Anthocoridae). Journal of Insect Science. 10, 189(2010).
- Salguero Navas, V. E., Funderburk, J. E., Beshear, R. J., Olson, S. M., Mack, T. P. Seasonal patterns of Frankliniella spp. (Thysanoptera: Thripidae) in tomato flowers. Journal of Economic Entomology. 84, 1818-1822 (1991).
- Funderburk, C., et al. Population dynamics of Frankliniella bispinosa (Thysanoptera: Thripidae) and the predator Orius insidiosus (Hemiptera: Anthocoridae) as influenced by flower color of Lagerstroemia (Lythraceae). Environmental Entomology. 44, 668-679 (2015).
- Ramachandran, S., Funderburk, J. E., Stavisky, J., Olson, S. Population abundance and movement of Frankiliniella thrips and Orius insidiosus in field pepper. Agricultural and Forest Entomology. 3, 129-137 (2001).
- Baez, I., Reitz, S., Funderburk, J. Predation by Orius insidiosus (Heteroptera: Anthocoridae) on life stages and species of Frankliniella flower thrips (Thysanoptera: Thripidae) in pepper flowers. Environmental Entomology. 33, 662-670 (2004).
- Nakahara, S. Annotated list of the Frankliniella species of the world (Thysanoptera: Thripidae). Contributions on Entomology, International. 2, 355-389 (1997).
Reimpressões e permissões
