Um protocolo para estudar eventos orientados pela FcγRIIIa por anticorpos terapêuticos em células assassinas naturais humanas é descrito aqui. Esta plataforma de estimulação artificial permite o interrogatório de funções de efeitos a jusante, como degranulação, produção de quimiocina/citocina, e caminhos de sinalização mediados pelas porções fcγriiia e fc de anticorpos envolvidos na vinculação.
Artigo de método
Avaliação de Eventos celulares assassinos naturais humanos impulsionados pelo engajamento da FcγRIIIa na presença de anticorpos terapêuticos
Neste artigo
Resumo
Resumo
Um mecanismo de ação para a eficácia clínica por anticorpos terapêuticos é a promoção de funções imunológicas, como a secreção de citocinas e citotoxicidade, impulsionada pela FcγRIIIa (CD16) expressa em células assassinas naturais (NK). Essas observações levaram a pesquisas com foco em métodos para aumentar eventos mediados por receptores de Fc, que incluem a remoção de uma moiety fucose encontrada na porção fc do anticorpo. Outros estudos têm elucidado as mudanças mecanicistas na sinalização, processos celulares e características citotóxicas que aumentam a atividade do ADCC com anticorpos afucossilados. Além disso, outros estudos mostraram os benefícios potenciais desses anticorpos em combinação com inibidores de pequenas moléculas. Esses experimentos demonstraram os mecanismos moleculares e celulares subjacentes aos benefícios do uso de anticorpos afucosilados em configurações combinadas. Muitas dessas observações foram baseadas em um ensaio de ativação in vitro artificial no qual a FcγRIIIa em células NK humanas foi ativada por anticorpos terapêuticos. Este ensaio forneceu a flexibilidade para estudar funções celulares NK efeito a jusante, como produção de citocinas e degranulação. Além disso, este ensaio tem sido usado para interrogar vias de sinalização e identificar moléculas que podem ser moduladas ou usadas como biomarcadores. Finalmente, outras moléculas terapêuticas (ou seja, inibidores de pequenas moléculas) foram adicionadas ao sistema para fornecer insights sobre a combinação dessas terapêuticas com anticorpos terapêuticos, o que é essencial no espaço clínico atual. Este manuscrito tem como objetivo fornecer uma base técnica para a realização deste ensaio artificial de ativação celular NK humana. O protocolo demonstra passos-chave para a ativação celular, bem como potenciais aplicações a jusante que vão desde leituras funcionais até observações mais mecanicistas.
Introdução
Nas últimas décadas, houve um enorme foco no desenvolvimento de terapias de câncer direcionadas usando anticorpos. Anticorpos terapêuticos, como trastuzumabe e rituximabe, operam através de múltiplos mecanismos, incluindo a prevenção da dimerização de moléculas de sinalização e mobilização do sistema imunológico1,2. Este último é realizado através da citotoxicidade celular dependente de anticorpos (ADCC), na qual linfócitos chamados células assassinas naturais (NK) são levados a uma célula alvo pelo anticorpo1,2. Ao colocar as células próximas umas das outras, a célula NK é ativada e pode lise uma célula tumor/alvo através da secreção de moléculas de efeitos3.
No nível molecular, a porção fab do anticorpo liga seu antígeno cognato expresso nas células tumorais, enquanto sua porção fc engaja a FcγRIIIa expressa em células NK para unir as duas células1,2. Após o engajamento das vias FcγRIIIa, as vias de sinalização (ou seja, mapk e pi3K) impulsionam o rearranjo citoesquelético, a produção de citocinas e a citotoxicidade4,5,6,7,8,9. Assim, o ADCC é um evento orientado pela FcγRIIIa mediado por células e anticorpos NK.
Como o ADCC era considerado um mecanismo de ação para esses anticorpos terapêuticos, os pesquisadores procuraram métodos para aumentar o ADCC modificando o anticorpo. Uma modificação foi a remoção de fucose na cadeia de oligossacarídeo anexada ao asparagine 297, o que aumenta a afinidade vinculante da porção fc do anticorpo para o FcγRIIIa10,11,12. Em estudos em animais, camundongos que receberam anticorpos afucossilados apresentaram crescimento tumoral mais lento em comparação com camundongos tratados com sua contraparte fucosylated13. Mais importante, o obinutuzumabe (por exemplo, Gazyva, um anticorpo afucosilado aprovado) mostrou melhor eficácia em relação ao rituximabe (por exemplo, Rituxan, sua contraparte fucosylated) em pacientes diagnosticados com leucemia linfocítica crônica ou linfoma folicular14,15.
Até recentemente, os mecanismos subjacentes ao aumento do ADCC através de anticorpos afucosylated eram desconhecidos. Combinado com o fato de que existem inúmeros programas de pesquisa desenvolvendo anticorpos terapêuticos para utilizar mecanismos orientados pela FcγRIIIa para atingir células cancerígenas, é imperativo desenvolver ensaios in vitro que examinem os aspectos moleculares e celulares promovidos por esses anticorpos. Isso proporciona uma compreensão fundamental dos mecanismos de ação, bem como do potencial de descoberta de biomarcadores. Como tal, um ensaio de ativação artificial foi desenvolvido para estudar funções mediadas por FcγRIIIa dependentes de anticorpos, além de sinalização e características celulares8. Através desses estudos, os mecanismos subjacentes ao aumento da eficácia dos anticorpos afucossilados têm sido elucidados nos quais a maior afinidade de ligação aumenta a sinalização para promover propriedades celulares e características citotóxicas8.
A tendência atual nos ensaios clínicos é o uso de uma combinação de moléculas terapêuticas16. Uma das vias mais comumente mutadas é a via PI3K, que tem provocado um tremendo esforço no desenvolvimento de pequenos inibidores de moléculas que visam componentes dessa via17,18,19,20. No entanto, como essas moléculas agem em combinação com anticorpos terapêuticos é relativamente desconhecida, especialmente em combinações onde o inibidor pode afetar moléculas que requerem a via PI3K para funcionar, como as impulsionadas por anticorpos terapêuticos.
Para isso, o ensaio in vitro empregado para os estudos de anticorpos afucosilados também tem sido usado para estudar a combinação de inibidores de PI3K e anticorpos terapêuticos. Estes estudos definiram as características moleculares da inibição de PI3K em eventos movidos a anticorpos terapêuticos baseados em PI3K e descreveram como anticorpos afucosilados podem compensar essa perda de sinalização9. Esses achados são relevantes, pois dão orientação potencial para a concepção de ensaios clínicos. Além disso, esta série de experimentos também levou às primeiras observações descritas para regulação cinética do caminho de sinalização PI3K para modular a transcrição e produção de quimiocina/citocina, que podem servir como potenciais biomarcadores9.
O ensaio de ativação in vitro artificial usado para definir a sinalização e as características celulares descritas acima foi projetado para estudar eventos orientados pela FcγRIIIa em células NK mediadas por anticorpos na ausência de células-alvo. Sem células-alvo no sistema, todos os eventos de sinalização e funções observadas podem ser atribuídos diretamente às células NK. No ensaio apresentado, o anticorpo é adicionado às células NK purificadas, momento em que a porção fc liga a FcriIIa. Isso é seguido pelo crosslinking do anticorpo usando um anticorpo anti-humano da cadeia de luz κ para estimular artificialmente as células. Crosslinking do anticorpo imita a ligação do antígeno alvo para gerar uma plataforma de sinalização que provoca eventos a jusante. Dependendo do comprimento da estimulação, os pesquisadores podem avaliar sinalização, processos celulares, características citotóxicas e funções deefeitos 8,9. Da mesma forma, este ensaio também proporciona flexibilidade no estudo desses eventos quando os anticorpos são combinados com outras moléculas9.
Juntos, este é um ensaio in vitro ideal para estudar anticorpos terapêuticos que provocam respostas celulares NK através de sua FcγRIIIa como parte do mecanismo de ação. Este protocolo descreve o desempenho deste ensaio de ativação in vitro e fornece insights sobre as várias leituras que podem ser realizadas.
Protocolo
O protocolo a seguir está de acordo com as diretrizes do comitê de ética em pesquisa humana da IQ Bioscience.
1. Isolamento de PBMCs e enriquecimento/purificação de células NK
NOTA: Outros métodos para o isolamento de células mononucleares periféricas (PBMCs) e enriquecimento/purificação também podem ser realizados.
- Desenhe 200 mL de sangue em condições regulamentadas em um tubo contendo heparina.
- Adicione 15 mL do meio gradiente de densidade em um tubo de 50 mL com uma barreira porosa incorporada. Gire o tubo a 1000 x g para 30 s.
- Adicione 12,5 mL de sangue no tubo seguido por outros 12,5 mL de PBS, e inverta suavemente 3x. Gire o tubo a 800 x g por 15 min a temperatura ambiente (RT) sem quebras.
- Prepare um tubo cônico de 50 mL com 40 mL de PBS para cada tubo com uma barreira porosa enquanto as células estão girando.
- Remova cuidadosamente os tubos e inspecione após a centrifugação. Verifique se há uma camada fina, visivelmente branca de PBMCs acima da barreira porosa, entre as demarcações de 20 mL e 25 mL no tubo de 50 mL.
- Remova cuidadosamente o máximo de líquido possível da parte superior usando uma pipeta sem perturbar a fina camada PBMC branca.
- Com uma pipeta sorológica limpa de 10 mL, remova suavemente a camada PBMC, além da camada líquida clara e amarelada até o filtro do tubo.
- Expulse os PBMCs e o líquido para o cônico de 50 mL contendo PBS preparado na etapa 1.4. Gire tubos em RT e 300 x g por 5 min.
- Aspire a lavagem pbs e adicione mais 40 mL de PBS. Gire tubos em RT e 300 x g por 5 min.
- Após a lavagem, conte as células e resuspensá-las em 40 μL de 2% BSA/PBS por 1 x 10⁷ células.
- Prossiga para o isolamento das células NK usando o método de escolha. As opções incluem classificação manual ou automatizada baseada em contas magnéticas9,21. A triagem celular ativada pela fluorescência também pode ser realizada22.
- Remova uma pequena alíquota de células para determinar a pureza das células NK por citometria de fluxo. A estratégia de gating inclui o seguinte: portão em células vivas com base no perfil de dispersão para a frente vs. lateral, em seguida, avaliar a pureza com base em marcadores NK (por exemplo, CD3, CD56) na população viva específica. A pureza típica é >95%.
- Após o isolamento ser concluído, gire células em RT e 300 x g por 5 min para pelota e aspirar.
- Resuspenque a pelota celular para 1 x 10⁷ células/mL em RPMI 1640 com nutrientes, 10% FBS inativados pelo calor, 1 mM piruvato de sódio, 55 mM 2-ME e 10 mM HEPES (pH = 7,2).
2. Ativação mediada por anticorpos de células NK via FcγRIIIa
- Coloque uma microcentrifuagem refrigerada a 4 °C.
- Dispense 1 x 10⁶ (100 μL de) células NK resuspended em tubos de 1,5 mL e coloque no gelo.
NOTA: As células podem ser distribuídas em uma placa de fundo U de 96 poços se houver inúmeras amostras. - Prepare 1 μL de 100 μg/mL rituximabe (ou anticorpo de interesse) por amostra e adicione 1 μL às células para uma concentração final de anticorpo de 1 μg/mL.
NOTA: Outras moléculas podem ser adicionadas às células neste momento ou anteriormente para a avaliação dos efeitos combinados. Aqui, ritixumab foi usado para estimulação. Em estudos anteriores, pequenos inibidores de moléculas foram adicionados às estimulações9. - Incubar a amostra no gelo por 30 minutos. Durante a incubação, prepare 50 μL de 50 μg/mL anticorpo de corrente de luz anti-humana por amostra em mídia e aqueça a 37 °C em um bloco de calor ou em um banho de água.
- Após a incubação de células no gelo, adicione 1 mL de mídia gelada e gire a 135 x g por 5 min a 4 °C. Lave novamente com 1 mL de gelo frio-mídia.
- Aspire o supernascente após a última lavagem e adicione 50 μL da mistura anti-humana de corrente de luz κ preparada na etapa 2.5.
- Incubar imediatamente amostras para o usuário final determinado pontos de tempo a 37 °C em um bloco de calor ou em um banho de água.
- Pare a estimulação adicionando 1 mL de mídia gelada e imediatamente gire amostras em uma centrífuga refrigerada a 135 x g por 5 min. Lave mais uma vez com 1 mL de mídia gelada.
3. Aplicações e leituras a jusante
- Interrogatório de moléculas de sinalização em células NK estimuladas pela FcγRIIIa pela análise de manchas ocidentais
NOTA: Podem ser utilizados diferentes aparelhos de separação de proteínas e transferência de membrana.- Após a última lavagem com mídia gelada (passo 2.8), as células de lise com 20 μL de tampão RIPA contendo fosfatase e inibidores de protease se misturam por 30 minutos no gelo.
- Tubos de giro a 2100 x g para 15 min a 4 °C. Transfira o lise para um tubo limpo de 1,5 mL e adicione os reagentes necessários para a separação de proteínas.
- Separe proteínas no gel SDS-PAGE e transfira para uma membrana nitrocelulose ou PVDF seguindo protocolos padrão.
- Bloqueie e teste a membrana de acordo com a folha de dados do fabricante para o anticorpo de detecção primária (aqui, pAKT, pPRAS 40 e pERK1/2 foram usados).
- Adicione o anticorpo secundário conjugado HRP e o reagente de chemiluminescência de acordo com as recomendações do fabricante sobre a membrana PVDF. Use filme de raio-X ou instrumento de detecção para visualizar (aqui, pAKT foi detectado a 60 kDa, pPRAS40 a 40 kDa e pERK1/2 a 42 kDa e 44 kDa).
- Isolamento do mRNA e preparação para análise de expressão genética das células NK estimuladas pela FcγRIIIa(Tabela de Materiais)
- Após o ponto de tempo para estimulação (passo 2.7), coloque o tubo no gelo e gire imediatamente em uma centrífuga refrigerada a 135 x g por 5 min (semelhante ao passo 2.8).
- Remova o supernasciente e lave 2x com 1 mL de PBS gelado.
- Células de lise utilizando extração de RNA isothiocianato de guanidium(Tabela de Materiais). Use 1 μg de mRNA para realizar transcrição reversa usando hexamers aleatórios com um kit comercial(Tabela de Materiais).
NOTA: Qualquer método de extração de RNA ou síntese de CDNA pode ser utilizado9,23,24. - Congele o cDNA a -20 °C até a análise da expressão genética.
- Avaliação de rearranjo citoesquelético em células NK estimuladas pela FcγRIIIa
- Após a última lavagem com mídia gelada (passo 2.8), resuspenque a pelota celular com 50 μL de paraformaldeído de 3,7% por 10 min na RT.
- Adicione 1 mL de PBS e gire a 135 x g por 5 min no RT. Repita esta lavagem mais uma vez.
- Adicione 100 μL de 0,1% Triton X-100/PBS por 5 min para células permeabilizes, e gire células a 135 x g por 5 min no RT para pelota.
- Adicione 100 μL de 5 unidades/mL de fhalloidina com rótulo AF488 diluída em 1% BSA/PBS e incubar por 20 min na RT.
- Adicione 1 mL de PBS e gire a 135 x g por 5 min no RT para lavar. Resuspende a pelota celular no volume desejado para análise citométrica de fluxo.
- Avaliação da degranulação de células NK estimuladas pela FcγRIIIa usando manchas de superfície CD107a
- Incubar as células com o anticorpo de interesse no gelo, conforme descrito nas etapas 2.1-2.4. Durante a incubação, prepare 50 μL de mistura de anticorpos por amostra. Prepare a mistura em mídia celular com uma concentração final de 50 μg/mL anticorpo de cadeia de luz anti-humana e 1 μg/mL com rotulagem fluorocromática CD107a.
- Após a incubação das células no gelo, adicione 1 mL de mídia gelada. Gire a 135 x g por 5 min a 4 °C e depois lave novamente com 1 mL de gelo frio..
- Aspire o supernascente após a última lavagem, depois adicione 50 μL da mistura anti-humana da cadeia de luz κ e incubar a 37 °C para os pontos de tempo desejados.
- Nos pontos de tempo desejados, adicione 1 mL de PBS e gire a 135 x g por 5 min na RT. Aspirar supernadário e adicionar 100 μL de 4% de paraformaldeído. Incubar na RT por 10 minutos.
- Adicione 1 mL de PBS e gire a 135 x g por 5 min no RT para lavar. Resuspende a pelota celular no volume desejado para análise citométrica de fluxo.
- Avaliação da produção de quimiocina/citocina das células NK estimuladas pela FcγRIIIa
NOTA: Diferentes métodos e/ou kits podem ser usados para avaliação da produção de quimiocina e citocina.- Após o ponto de tempo para estimulação (passo 2.7), coloque imediatamente o tubo no gelo e gire em uma centrífuga refrigerada a 135 x g por 5 min a 4 °C.
- Transfira o supernatante para um vaso limpo. Congele o sobrenatante até a avaliação de quimiocina ou citocina usando o ensaio desejado.
NOTA: As pelotas celulares agora podem ser lavadas com PBS gelado e processadas para estudos de sinalização, expressão genética e rearranjo citoesquelético.
Resultados
É essencial que a pureza celular NK seja alta porque a porção fc de anticorpos pode ligar a FcγRIIIa expressa em outros tipos celulares, como monócitos. Com alta pureza, as observações feitas podem ser atribuídas diretamente a eventos orientados pela FcγRIIIa em células NK. Aqui, as células NK apresentaram maiores 90% de pureza com base nas manchas de CD56 e CD3(Figura 1). Além disso, a viabilidade foi >95%. Deve-se utilizar cuidados ao utilizar isolamentos com menor viabilidade. Para garantir que os eventos fossem impulsionados pela FcγRIIIa, foram realizadas manchas ocidentais para fosfo-AKT (pAKT), fosfo-PRAS40 (pPRAS40) e phospho-ERK1/2 (pERK1/2), nas quais as células NK foram ativadas por 1-5 min. Como mostrado, observou-se um acúmulo dessas moléculas(Figura 2). Da mesma forma, as células NK ativadas expressaram MIP-1α, MIP-1β, IFN-γ e TNF-α, como mostra a análise de expressão genética(Figura 3).
Além disso, foi observado rearranjo citoesquelético em células ativadas(Figura 4). Uma porcentagem de células NK estimuladas para 4 h expressas CD107a na superfície celular(Figura 5). Além disso, ifn-γ, TNF-α, MIP-1α, MIP-1β e RANTES foram detectados no sobrenante após 3h de estimulação(Figura 6). Essas leituras são esperadas com base em estudos publicados, pois as células NK ativadas terão essas proteínas fosforiladas, bem como a expressão genética e a produção das quimioterapias e citocinas mencionadas8,9. Em todos os experimentos, as condições de estimulação devem incluir uma cadeia de luz anti-humana apenas controle e anticorpo sem controle de ligação cruzada de luz anti-humana. Estas células NK não devem mostrar qualquer sinalização fosfo, degranulação, produção de quimiocina/citocina, ou expressão genética de quimiocina/citocina.
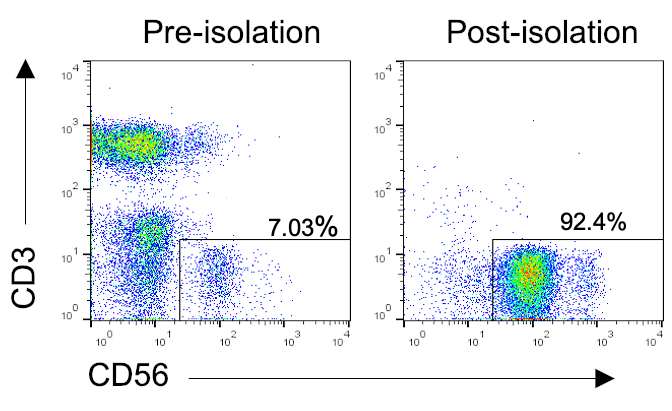
Figura 1: Perfis de fluxo representativos da pureza celular NK após isolamento dos PBMCs. Os PBMCs foram isolados do sangue de um doador saudável, seguidos pelo enriquecimento das células NK utilizando um método de seleção negativa para isolamento celular NK humano(Tabela de Materiais). As células foram manchadas com CD56 e CD3 antes e depois do enriquecimento para determinar a pureza. Parcelas de pontos representativas de CD56 vs. CD3 antes e depois do isolamento. Clique aqui para ver uma versão maior desta figura.
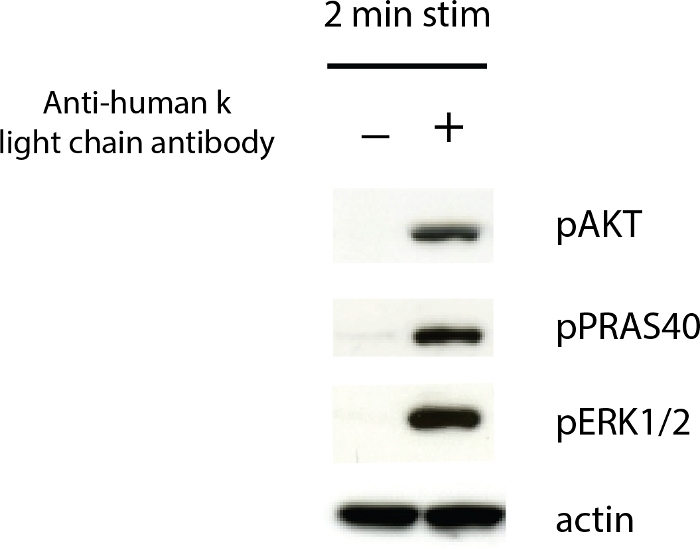
Figura 2: Células NK ativadas pela FcγRIIIa exibem moléculas de sinalização fosfoiladas. As células foram estimuladas com rituximabe por 2 min, e as células foram feitas de acordo com o protocolo. Os lysatos foram separados em um gel de 4%-12%, seguidos pela transferência para uma membrana PVDF. A membrana foi sondada com anticorpos contra pAKT, pPRAS40, pERK1/2 e actin. Clique aqui para ver uma versão maior desta figura.
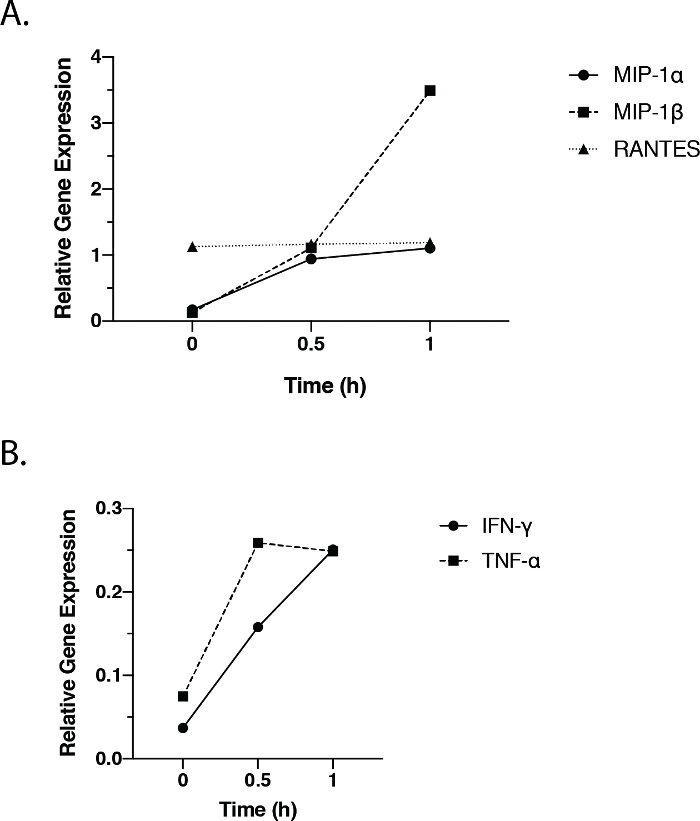
Figura 3: Células NK ativadas pela FcγRIIIa expressam genes de quimiocina e citocina. As células NK foram estimuladas com rituximabe para 0 h, 0,5 h e 1 h. mRNA foram coletadas, transcritas inversas e submetidas à análise qPCR para MIP-1α, MIP-1β, RANTES, IFN-γ e TNF-α(Tabela de Materiais). (A) Expressão relativa de MIP-1α, MIP-1β e RANTES em cada ponto de tempo. (B) Expressão relativa de IFN-γ e TNF-α em cada ponto de tempo. Os valores foram normalizados para o gene actin. Clique aqui para ver uma versão maior desta figura.
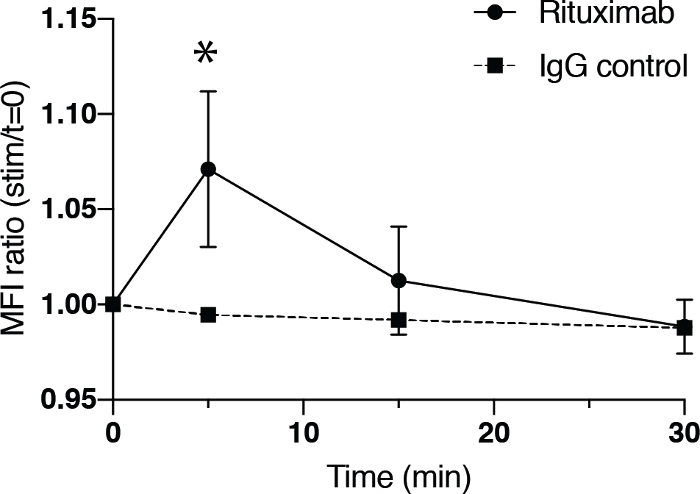
Figura 4: As células NK ativadas pela FcγRIIIa exibem rearranjo citoesquelético. As células NK foram estimuladas com rituximabe por 0 min, 5 min, 15 min e 30 min, seguidas pela avaliação para rearranjo citoesquelético por coloração de fálico e citometria de fluxo. A razão de MFI no ponto de tempo experimental para o MFI no momento 0 de células NK estimuladas com rituximabe (círculo, linha sólida) ou anticorpo secundário sozinho (linha quadrada, pontilhada). As barras representam o SD de quatro réplicas. Os asteriscos representam significância estatística com base no teste t de um aluno não remunerado de duas caudas (*p < 0,05). Clique aqui para ver uma versão maior desta figura.
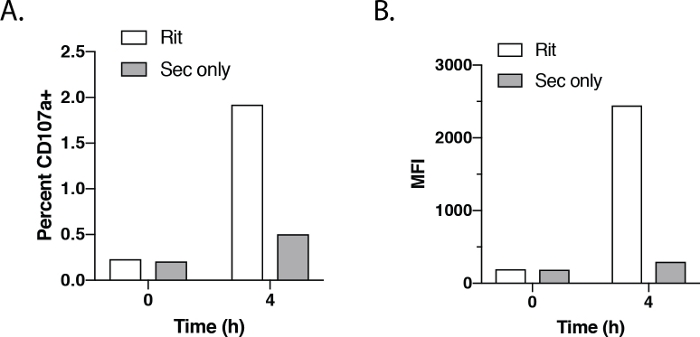
Figura 5: Células NK ativadas pela FcγRIIIa expressam CD107a. As células NK foram estimuladas com rituximabe por 4h seguidas de avaliação para desgranulação por CD107a e citometria de fluxo. (A) Porcentagem de células NK expressando CD107a após estimulação com rituximabe (barras brancas) ou anticorpo de corrente de luz anti-humana (barras cinza) para 0 h e 4 h.(B) CD107a MFI de células NK estimuladas com ritimauxbe (barras brancas) ou anticorpo de cadeia de luz anti-humana κ (barras cinza) após 0h e 4h de tratamento. Clique aqui para ver uma versão maior desta figura.
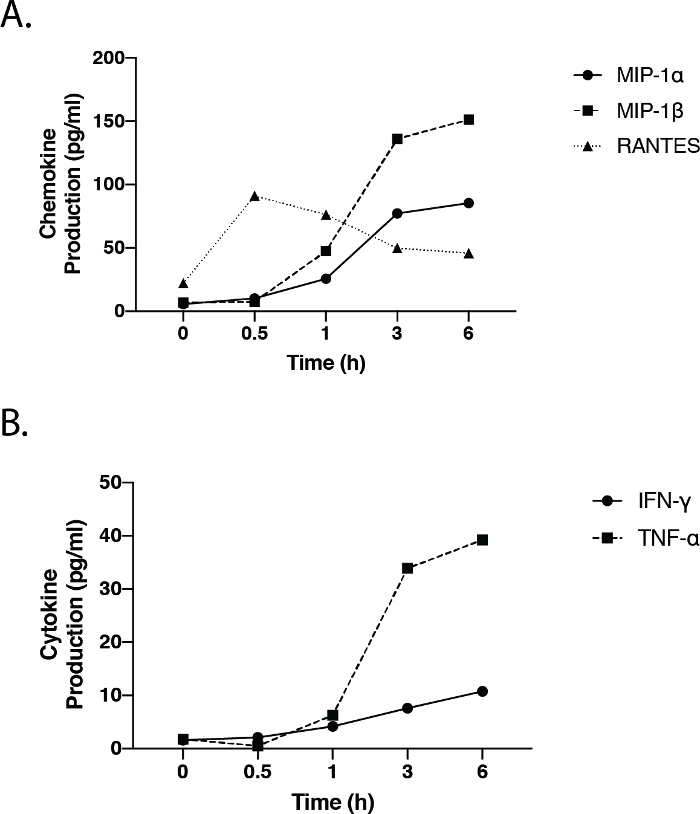
Figura 6: Células NK ativadas pela FcγRIIIa secretam quimiocinas e citocinas. As células NK foram estimuladas por 0, 0,5, 1, 3 e 6 horas com rituximabe. O supernaente foi coletado para medir a liberação de MIP-1α, MIP-1β, RANTES, IFN-γ e TNF-α por um método de avaliação de citocinas baseada em fluxo e contas(Tabela de Materiais). (A) PRODUÇÃO MIP-1α, MIP-1β e RANTES em cada ponto de tempo. (B) A produção de IFN-γ e TNF-α em cada ponto de tempo. Clique aqui para ver uma versão maior desta figura.
Discussão
Este protocolo descreve métodos para estudar eventos orientados pela FcγRIIIa em células NK mediadas por anticorpos. Essas técnicas permitem a avaliação de potenciais mecanismos de ação de anticorpos terapêuticos, que se sugere ser ADCC1,2. Especificamente, esses métodos fornecem flexibilidade no estudo de vias de sinalização molecular subjacentes e processos celulares responsáveis pelo ADCC. Eles também permitem a observação de outras funções de efeitos, como a produção de quimiocina e citocina. Além disso, esses métodos permitem a identificação de potenciais biomarcadores e moléculas que podem ser visadas para modular o ADCC.
A base para este protocolo é a estimulação artificial das células NK através da FcγRIIIa com anticorpos na ausência de células-alvo. As células-alvo ligadas a anticorpos normalmente servem para promover o crosslinking de receptores Fc para formar uma plataforma que conduz a sinalização e efeitos a jusante. Em vez disso, a crosslinking é realizada usando um anticorpo de cadeia de luz anti-humana neste ensaio, ignorando a necessidade de células-alvo para estimular as células NK. Sem células-alvo, os resultados e observações podem ser atribuídos diretamente às células NK, assumindo que o processo de purificação seja bem sucedido.
É importante ressaltar que o uso de anticorpo anti-humano da cadeia de luz para cruzar o anticorpo não interfere na afinidade vinculante da porção Fc para a FcγRIIIa, uma interação que dita a força da resposta10,11,12,13. De fato, estudos têm demonstrado que os anticorpos afucosilados aumentam o ADCC devido à sua maior afinidade com a FcγRIIIa10,11,12,13. Estudos subsequentes mostraram que esse aumento da afinidade não é afetado pelo substituto de anticorpos secundários da cadeia de luz anti-humana e pode ser usado para estudar a base para o aumento do ADCC8. Para garantir que a célula NK seja estimulada através da ligação cruzada do anticorpo, dois controles negativos devem ser incluídos: 1) anticorpo terapêutico apenas sem o anticorpo secundário da cadeia de luz anti-humana, e 2) apenas o anticorpo de cadeia de luz anti-humana secundário. Em ambos os casos, nenhuma sinalização ou função de efeitos deve ser gerada.
Este método também fornece flexibilidade para estudar os efeitos de anticorpos terapêuticos em inibidores de moléculas pequenas. O inibidor pode ser adicionado antes de cruzar com o anticorpo secundário para que o inibidor tenha tempo para engajar seu alvo. No entanto, estudos devem ser realizados para determinar o tempo ideal de pré-tratamento inibidor; assim, o inibidor tem um efeito máximo na estimulação. Dito isso, os pesquisadores também podem optar por estudar os efeitos de um inibidor após a estimulação. Neste caso, o inibidor pode ser adicionado após o crosslinking para estudar como ele influencia sinais e processos que já são gerados. Em conjunto, o método descrito aqui proporciona flexibilidade máxima no estudo de efeitos combinatórios de diferentes inibidores de moléculas pequenas com anticorpos terapêuticos.
Como mencionado acima, uma variedade de leituras podem ser realizadas após a estimulação. A mancha ocidental pode ser realizada para estudar a sinalização usando sistemas de transferência de SDS-PAGE e membrana de vários fornecedores. Da mesma forma, a expressão genética também pode ser avaliada usando vários métodos de extração de RNA, reagentes de transcrição reversa e instrumentos de expressão genética. Por fim, também pode ser realizada a coloração para proteína intracelular ou extracelular, na qual as amostras podem ser analisadas utilizando diferentes címetros de fluxo. Para a coloração de citocina intracelular e CD107a (etapa 3.4, que pode ser avaliada simultaneamente), monensina e/ou brefeldin A devem ser adicionadas para maximizar os sinais. Usamos plataformas diferentes para cada objetivo experimental e ainda observamos resultados semelhantes. Portanto, o método pode ser complementado com vários reagentes, plataformas e instrumentos, dependendo do estudo.
O tempo de cruzamento para estimulação dependerá do objetivo do estudo. Se os estudos de sinalização forem desejados, o tempo típico de estimulação transversal é entre 2 min e 10 min. pAKT, pPRAS40 e picos de acumulação pERK1/2 em 2 min e desaparece após 10 min8,9. Para estudos funcionais (ou seja, aqueles que envolvem a produção de quimiocina/citocina), as células devem ser estimuladas por pelo menos 30 min, dependendo do analito9. A análise da expressão genética também normalmente requer 30 minutos de estimulação9. Deve-se ter cuidado ao usar a expressão genética RANTES como leitura, pois a produção de mRNA RANTES é independente da ativação transcricional, uma vez que já está armazenada em células para tradução imediata e liberação de proteínas após a estimulação25. A desgranulação, em contraste, requer pelo menos 3h de estimulação. Apesar dessas observações gerais, os pesquisadores devem realizar estudos cinéticos para determinar o tempo ideal de estimulação para as moléculas particulares de interesse.
Da mesma forma, os pesquisadores devem titular o anticorpo de interesse para determinar a concentração ideal, pois anticorpos com especificidades diferentes se ligam à FcγRIIIa com afinidades diferentes, mesmo que sejam do mesmo isótipo. Por exemplo, rituximabe e trastuzumab são ambos um isótipo IgG1, mas trastuzumab se liga mais fortemente ao polimorfismo valina de FcγRIIIa do que rituximabe26,27. Essa diferença de afinidade pode levar a diferenças funcionais, como a desgranulação, como observado nos estudos publicados8.
Determinar a concentração ideal também é importante devido à baixa afinidade que a porção fc do anticorpo tem para o FcγRIIIa. Isso pode resultar na lavagem do anticorpo, uma vez que o protocolo inclui etapas de lavagem após a ligação do anticorpo ao receptor Fc. Isso pode, então, levar à falta de sensibilidade nos ensaios sugeridos pelo baixo percentual de células positivas cd107a após a estimulação(Figura 5). No entanto, a determinação da concentração ideal deve fornecer confiança de que os resultados não se devem à falta de sensibilidade. Além disso, as células são claramente ativadas nos ensaios bioquímicos e funcionais que usam células a granel em oposição a leituras de células únicas(Figura 2, Figura 3, Figura 6).
O protocolo também é limitado, pois não imita inteiramente o que ocorre fisiologicamente. O anticorpo K anti-humano secundário usado é imitar o crosslinking gerado pelo antígeno alvo expresso nas células. Aqui, uma quantidade saturada de anticorpos secundários é adicionada para gerar a resposta máxima. No entanto, células-alvo distintas expressarão diferentes níveis de antígeno, o que afetará o crosslinking e a resposta. Atualmente, esta plataforma não é otimizada para imitar os efeitos de diferentes níveis de expressão de antígeno.
Outro fator a considerar na realização desses experimentos é a variabilidade de doador para doador devido a diferentes origens genéticas e histórias imunológicas entre os indivíduos. Portanto, deve-se tomar cuidado ao comparar as respostas das células NK de diferentes doadores nos mesmos ensaios. Da mesma forma, apenas conclusões gerais devem ser feitas quando diferentes doadores são usados.
Ao todo, o método descrito é uma plataforma de estimulação simples e flexível para estudar eventos mediados por anticorpos com base em FcγRIIIa em células NK. Tem sido usado para entender melhor a base para o aumento do ADCC e a eficácia observada com anticorpos afucosilados8. Este método também foi empregado em um estudo que combina anticorpos terapêuticos e inibidores de pequenas moléculas PI3K9. Além disso, foi identificado um mecanismo até então desconhecido para a produção de quimiocina e citocina regulada pelo pS6. Portanto, estudos futuros utilizando esta plataforma de sinalização artificial podem elucidar ainda mais mecanismos de regulação para funções efetivas impulsionadas pela FcγRIIIa. Também pode identificar potencialmente novas moléculas importantes para esses mecanismos, bem como novos papéis para moléculas conhecidas.
Divulgações
Todos os autores são ou foram funcionários ou consultores da iQ Biosciences.
Agradecimentos
Os autores agradecem a James Lee e Christopher Ng pelos comentários e edição deste manuscrito.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 16% de paraformaldeído | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 faloidina | Thermo Fisher Scientific | A12379 | |
| anticorpo HRP anti-rato | Cell Signaling Technologies | 7076 | |
| Instrumento AutoMACS | Miltenyi | NK; outro instrumento de isolamento pode ser usado | |
| B-mercaptoetanol | Thermo Fisher Scientific | 21985023 | |
| Soro bovino Albumina Fração V, livre de ácidos graxos | Millipore Sigma | 10775835001 | |
| CD107a APC anticorpo Biolegend | 328620 | ||
| Citocina 30-Plex Painel Humano | Thermo Fisher Scientific | LHC6003M | método de quimiocina/citocina; outro método de análise de quimiocina/citocina pode ser usado |
| FBS | Hyclone | SH30071.01 | |
| Anticorpo de cadeia leve anti-humano e kappa; de cabra | Millipore Sigma | AP502 | |
| Halt Protease e Inibidor de Fosfatase Coquetel | Thermo Fisher Scientific | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| Kit de Transcrição Reversa de cDNA de Alta Capacidade | Thermo Fisher Scientific | 4368814 | método de transcrição de cDNA; usado de acordo com o protocolo do fabricante |
| IFN-? primers Thermo | Fisher Scientific | Hs00989291_m1 | |
| Tubo de leucosep (50 ml cônico com barreira porosa) | Greiner | 227290 | |
| Lymphoprep (meio de gradiente de densidade) | Células-tronco | 7851 | |
| MIP-1? primers | Thermo Fisher Scientific | Hs00234142_m1 | |
| Primers MIP-1β | Thermo Fisher Scientific | Hs99999148_m1 | |
| Kit de isolamento de células NK | Miltenyi | 130-092-657 | Kit de isolamento de células NK; outro kit de isolamento pode ser usado |
| NuPAGE 4-12% Géis de Proteína Bis-Tris | Thermo Fisher Scientific | outro sistema de separação de proteínas pode ser usado | |
| anticorpo pAKT (S473) | Tecnologias de Sinalização Celular | 4060 | |
| pERK1/2 anticorpo | Cell Signaling Technologies | 4370 | |
| pPRAS40 anticorpo | Cell Signaling Technologies | 13175 | |
| Membrana PVDF | Thermo Fisher Scientific | nitrocelulose pode ser usada | |
| Primers RANTES | Thermo Fisher Scientific | Hs00982282_m1 | |
| tampão RIPA | Millipore Sigma | R0278 | |
| RPMI com glutamax | Thermo Fisher Scientific | 61870 | |
| Piruvato de sódio | Thermo Fisher Scientific | 11360070 | |
| TNF-? primers | Thermo Fisher Scientific | Hs00174128_m1 | |
| Triton X-100 | Thermo Fisher Scientific | 85111 | |
| TRIzol | Thermo Fisher Scientific | 15596018 | Método de isolamento de RNA; usado de acordo com o protocolo do fabricante |
| Módulo de transferência Xcell Blot II | Thermo Fisher Scientific | outro sistema de separação de proteínas pode ser usado | |
| Xcell SureLock Protein Gel Electrophoresis Chamber System | Thermo Fisher Scientific | outro sistema de separação de proteínas pode ser usado | |
| β-actina anticorpo HRP | Abcam | ab6721 | |
| β-actina primers | Thermo Fisher Scientific | Hs00982282_m1 |
Referências
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
Reimpressões e permissões
