Um ensaio de imunoprecipitação da cromatina (X-ChIP) contra a marca de histona H3K4me3 para o organismo modelo Exaiptasia diaphana é apresentado. A especificidade e a eficácia do ensaio são confirmadas por PCR quantitativo e sequenciamento de última geração. Este protocolo permite o aumento da investigação das interações proteína-DNA na anêmona-do-mar E. diaphana.
Artigo de método
Imunoprecipitação da cromatina no sistema modelo cnidário Exaiptasia diaphana
* These authors contributed equally
Neste artigo
Resumo
Resumo
As modificações pós-traducionais de histonas (PTMs) e outras modificações epigenéticas regulam a acessibilidade da cromatina dos genes à maquinaria transcricional, afetando assim a capacidade de um organismo de responder a estímulos ambientais. A imunoprecipitação da cromatina juntamente com o sequenciamento de alto rendimento (ChIP-seq) tem sido amplamente utilizada para identificar e mapear interações proteína-DNA nos campos da epigenética e regulação gênica. No entanto, o campo da epigenética dos cnidários é dificultado pela falta de protocolos aplicáveis, em parte devido às características únicas de organismos modelo, como a anêmona-do-mar simbiótica Exaiptasia diaphana, cujo alto teor de água e quantidades de muco obstruem os métodos moleculares. Aqui, é apresentado um procedimento especializado de ChIP, que facilita a investigação das interações proteína-DNA na regulação do gene E. diaphana . As etapas de reticulação e extração da cromatina foram otimizadas para imunoprecipitação eficiente e, em seguida, validadas pela realização de ChIP usando um anticorpo contra a marca de histona H3K4me3. Posteriormente, a especificidade e a eficácia do ensaio ChIP foram confirmadas medindo a ocupação relativa de H3K4me3 em torno de vários loci gênicos constitutivamente ativados usando PCR quantitativo e por sequenciamento de próxima geração para análise em escala genômica. Este protocolo ChIP otimizado para a anêmona-do-mar simbiótica E. diaphana facilita a investigação das interações proteína-DNA envolvidas nas respostas do organismo às mudanças ambientais que afetam os cnidários simbióticos, como os corais.
Introdução
O relatório de 2022 do Painel Intergovernamental sobre Mudanças Climáticas (IPCC) destaca que, apesar dos crescentes esforços de conscientização e mitigação, ondas de calor marinhas cada vez mais intensas e frequentes estão colocando os recifes de coral em alto risco de branqueamento extensivo e mortalidade em massa nas próximas décadas1. A fim de informar os esforços de conservação e restauração dos recifes de coral, os efeitos atuais e projetados das mudanças nas condições ambientais em cnidários bentônicos estão sendo investigados em vários níveis biológicos para entender os mecanismos subjacentes de resposta e resiliência2.
A disponibilidade de ferramentas investigativas aplicáveis a cnidários bentônicos é crucial para enfrentar esse desafio, e o desenvolvimento dessas ferramentas requer um esforço ativo para transferir conhecimento e tecnologias estabelecidas em outros campos para organismos marinhos3. Os obstáculos para trabalhar com muitas espécies de corais são parcialmente aliviados pelo uso de sistemas modelo, como a anêmona-do-mar Exaiptasia diaphana (comumente referida como Aiptasia)4. Essas anêmonas-do-mar facultativamente simbióticas de crescimento rápido são relativamente fáceis de manter em condições de laboratório, reproduzem-se sexuada e assexuadamente e não possuem o esqueleto de carbonato de cálcio5. O genoma de referência de acesso aberto5 de E. diaphana facilita o uso de métodos epigenéticos que requerem sequenciamento. No entanto, características como alto teor de água, produção de muco e baixas quantidades de tecido por indivíduo são desafios para o estabelecimento de protocolos replicáveis, restringindo assim a pesquisa epigenética em E. diaphana e outros cnidários com características semelhantes.
Modificações epigenéticas podem alterar o fenótipo sem alterar a sequência de nucleotídeos genômicos de um organismo, regulando os processos associados à cromatina6. A regulação epigenética dos cnidários é investigada principalmente nos contextos de história evolutiva e desenvolvimento 7,8,9,10, estabelecimento e manutenção da simbiose 11,12,13 e resposta a mudanças ambientais14,15. Especificamente, variações nos padrões de metilação do DNA, que, na maioria dos casos, envolvem a adição de um grupo metil a uma base de citosina, foram observadas em resposta a mudanças nas condições ambientais, como aquecimento13 e acidificação dos oceanos16. Os padrões de metilação do DNA também demonstraram ser hereditários intergeracionalmente, enfatizando o papel da epigenética na aclimatação de corais a estressores ambientais17. Em comparação com a metilação do DNA, houve relativamente poucos estudos sobre outros reguladores epigenéticos importantes, como RNAs não codificantes11,18,19, fatores de transcrição 9,10 ou modificações pós-traducionais de histonas (PTMs) em cnidários20. A investigação de proteínas associadas ao DNA é especialmente exigente, pois os métodos disponíveis requerem acesso a um genoma de referência do organismo de estudo e são caros devido ao grande tamanho das amostras e anticorpos de alta especificidade necessários3. Com uma ampla variedade de grupos químicos que formam PTMs em resíduos específicos de histonas, entender as paisagens de modificação da cromatina em cnidários, especialmente no contexto de estresses ambientais iminentes, continua sendo um grande desafio.
O objetivo deste trabalho é avançar na investigação de PTMs de histonas, variantes de histonas e outras proteínas associadas à cromatina em cnidários, apresentando um protocolo otimizado de imunoprecipitação da cromatina (ChIP) para o modelo de coral E. diaphana (protocolo original de Bodega et al.21). O ChIP pode ser combinado com PCR quantitativo para caracterizar interações proteína-DNA específicas do locus ou sequenciamento de próxima geração (NGS) para mapear essas interações em todo o genoma. Em geral, proteínas e DNA são reticulados reversivelmente de modo que a proteína de interesse (POI) permanece ligada ao mesmo locus ao qual está associada in vivo. Embora o método comum de reticulação amplamente utilizado no sistema modelo de mamíferos seja geralmente mantido em 15 minutos ou menos à temperatura ambiente, a abordagem de reticulação foi otimizada para permitir que o formaldeído penetre através do muco produzido por E. diaphana de forma mais eficaz. O tecido é então congelado em nitrogênio líquido, homogeneizado e lisado para extrair os núcleos das células. A perda de material nessas etapas é evitada usando apenas um tampão de lise e, em seguida, passando diretamente para a sonicação, que fragmenta a cromatina em fragmentos de ~ 300 pb de comprimento. Esses fragmentos são incubados com um anticorpo específico para o POI com precisão de nível PTM. O imunocomplexo anticorpo-proteína-DNA é precipitado usando esferas magnéticas que se ligam aos anticorpos primários, selecionando assim apenas os segmentos de DNA associados ao POI. Após a reversão da reticulação e limpeza do precipitado, os segmentos de DNA produzidos podem ser usados para qPCR ou construção de biblioteca de DNA para sequenciamento para mapear os segmentos para um genoma de referência e, assim, identificar os loci aos quais o POI está associado. Mais detalhes sobre as considerações para cada etapa podem ser encontrados em Jordán-Pla e Visa22.
Protocolo
Uma visão geral do procedimento é fornecida na Figura 1. Os dados do ChIP-Seq estão disponíveis no NCBI Sequence Read Archive (SRA) sob o código do BioProject PRJNA931730 (https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730).
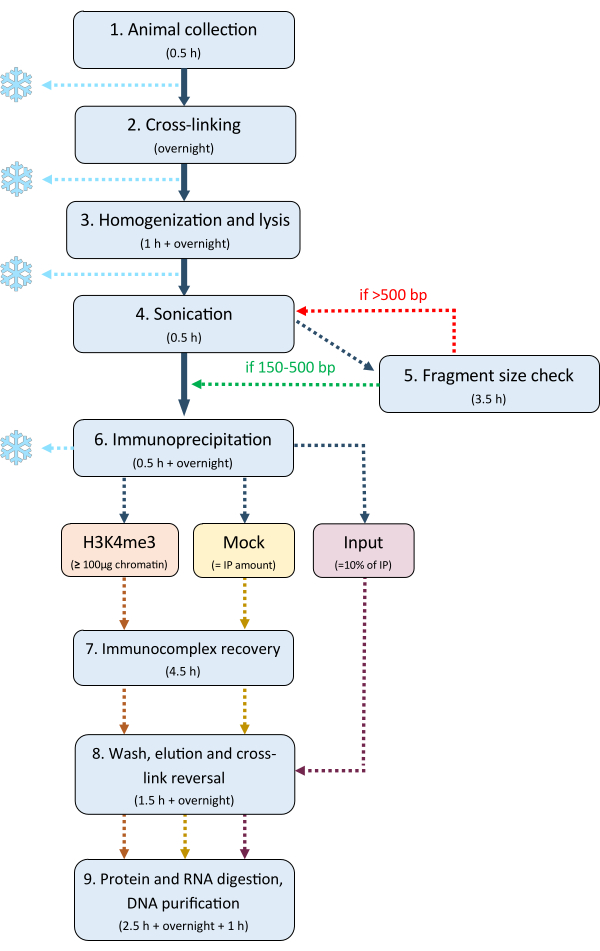
Figura 1: Fluxo de trabalho do protocolo ChIP. Visão geral do fluxo de trabalho do protocolo ChIP, incluindo a duração estimada de cada etapa e pontos de parada opcionais. Clique aqui para ver uma versão maior desta figura.
1. Coleção de animais
- Usando uma espátula de plástico, retire suavemente 20 E. diaphana simbióticas (cepa CC7) com um diâmetro de pedal de ~ 5 mm ou maior das paredes do aquário e pipete-as em um tubo de 15 mL.
NOTA: Recomenda-se a otimização do número de anêmonas com base em seu tamanho e quantos IPs são pretendidos. As anêmonas podem ser congeladas rapidamente em nitrogênio líquido (LN2) e armazenadas a -80 ° C por pelo menos 1 mês antes de iniciar o ChIP. Caso contrário, recomenda-se proceder imediatamente para evitar que as anêmonas se instalem nas paredes do tubo de 15 mL.
2. Reticulação
- Prepare 10 mL de tampão de reticulação a 0,5% (Tabela 1).
- Deixe as anêmonas assentarem no fundo do tubo ou gire-as em uma centrífuga por alguns segundos, indo até ~ 3.500 x g à temperatura ambiente e, em seguida, remova o excesso de água do mar com uma bomba de vácuo. Lave-os em 1x DPBS suspendendo-os e, em seguida, remova o DPBS.
- Transfira as anêmonas para o tampão de reticulação a 0,5% usando uma pinça ou uma espátula de plástico para evitar a transferência do tampão supérfluo. Incubar num rotador a 12 rpm e 4 °C durante 1 h.
- Enquanto isso, prepare 10 mL de tampão de reticulação a 1% (Tabela 1).
- Como na etapa 2.2, remova o tampão de 0,5% e reabasteça o tubo com o tampão de reticulação de 1%. Incubar num rotador a 12 rpm e 4 °C durante a noite.
NOTA: Certifique-se de que todas as anêmonas estejam suspensas e não aderidas umas às outras, invertendo o tubo suavemente. - No dia seguinte, prepare 10 mL de tampão de têmpera de um estoque de glicina 2 M (Tabela 1).
- Remova o tampão de reticulação de 1% como na etapa 2.2 e suspenda as anêmonas no tampão de têmpera para interromper a reação de reticulação. Incubar num rotador a 12 rpm e 4 °C durante 20 min.
- Remova o tampão de têmpera como na etapa 2.2 e lave as anêmonas duas vezes em DPBS. Se manusear várias amostras, mantenha as anêmonas suspensas em DPBS enquanto trabalha nas etapas 3.2-3.4 amostra por amostra.
NOTA: O experimento pode ser pausado congelando a amostra e armazenando-a a -80 ° C por no máximo 1 mês neste momento. Remova qualquer excesso de DPBS esvaziando o tubo em um lenço de papel antes de congelar e armazenar.
Tabela 1: Soluções e buffers usados no protocolo ChIP. Os ingredientes e suas respectivas concentrações são listados para cada tampão usado no protocolo. Clique aqui para baixar esta tabela.
3. Homogeneização e lise
- Prepare o tampão de lise (Tabela 1) fresco no dia (2 mL por amostra) e adicione 100x coquetel de inibidores de protease (PIC, consulte Tabela de Materiais) a uma concentração final de 1x. Limpe um almofariz de porcelana e pilão com etanol e comece a resfriar todas as ferramentas com LN2.
- Transvase a DPBS e esvazie as anêmonas em um lenço de papel para remover o máximo de líquido possível. Despeje um pouco de LN2 na argamassa e transfira as anêmonas usando uma pinça.
- Usando o pilão, comece quebrando cuidadosamente o tecido e depois triture até que a amostra seja um pó fino. Continue enchendo com LN2 conforme necessário para evitar o descongelamento.
- Coloque 2 mL de tampão de lise em um tubo de 5 mL no gelo. Colete a amostra usando uma espátula e transfira-a para o tampão de lise, garantindo que a amostra se dissolva no tampão. Deixe a amostra descansar no gelo por 1 min e depois misture por inversão. Repita as etapas 3.2-3.4 para todas as outras amostras, limpando completamente todo o equipamento com etanol entre as amostras.
NOTA: Minimize a perda de sample o máximo possível nesta etapa. - Lave um moedor de lenços de papel Dounce (consulte a Tabela de Materiais) com tampão de lise, transfira a amostra e dounce 20-30 vezes com um pilão apertado.
- Transfira a amostra de volta para o tubo, lave o moedor de lenços de papel com etanol e água destilada e repita a etapa 3.5 para todas as amostras.
- Incubar as amostras num rotador a ~14 rpm e 4 °C durante a noite.
- Use azul de tripano para verificar se a lise foi bem-sucedida ao microscópio (ampliação de 20x), misturando-o com 10 μL de amostra na proporção de 1:1. Se o corante penetrar nos núcleos, a lise será bem-sucedida.
NOTA: O experimento pode ser pausado neste ponto, armazenando a amostra a -80 ° C por até 2 meses.
4. Sonicação
- Gire brevemente a amostra em uma centrífuga a ~ 2.000 x g por 3-5 s em temperatura ambiente para remover qualquer líquido da tampa e das paredes.
- Passe o lisado por uma agulha de 25 G e uma seringa de 1 ml 10 vezes para quebrar quaisquer agregados.
- Coloque a amostra em um banho de gelo para mantê-la o mais fria possível durante a sonicação.
- Limpar a agulha de sonicação com etanol. Coloque a amostra no sonicador (consulte a Tabela de Materiais) com a agulha 1 cm acima do fundo do tubo e sem tocar nas paredes.
- Defina o ciclo de trabalho para 50% e a saída para 0. Ligue o sonicador e certifique-se de que nenhuma espuma esteja sendo produzida na amostra (caso contrário, pare e reajuste a posição da agulha). Aumente lentamente a potência de saída para 2 e, em seguida, sonice por 2 min.
- Desligue o sonicador, defina a potência de saída de volta para 0 e deixe o sample descansar e esfriar por 2 min.
- Repita as etapas 4.5 a 4.6 para um total de quatro conjuntos de sonicação e resfriamento por amostra. Remova a amostra, armazene-a no gelo e repita com outras amostras. Limpe a agulha do sonicador com etanol entre as amostras e no final.
NOTA: A intensidade da sonicação e o número do ciclo podem precisar ser otimizados para atingir a menor intensidade de sonicação enquanto produzem fragmentos de 150-500 pb de tamanho.
5. Extração de DNA e verificação do tamanho do fragmento
NOTA: Antes de passar para o IP, o tamanho dos fragmentos precisa ser verificado. Se os fragmentos forem muito grandes (>500 pb), o número de ciclos de sonicação e/ou a intensidade da sonicação devem ser aumentados; Se forem muito pequenos (<150 pb), o tempo e/ou a intensidade da sonicação devem ser reduzidos.
- Mantenha a amostra no gelo enquanto executa a verificação do tamanho do fragmento em um subconjunto da amostra. Transfira um subconjunto de 100 μL para um novo tubo de 1,5 mL.
- Adicione 8 μL de coquetel RNase (consulte a Tabela de Materiais) e incube a 42 ° C por 30 min agitando a 700 rpm.
- Adicione 2 μL de proteinase K (consulte a Tabela de Materiais). e incubar a 55 °C por 1 h agitando a 700 rpm.
- Reticular inversamente a amostra, incubando-a a 95 °C durante, pelo menos, 1 h, agitando a 700 rpm.
- Prepare um gel de agarose a 1% com 1x tampão TAE e brometo de etídio a 0,01% (consulte a Tabela de Materiais) ou um corante de gel alternativo.
- Extraia o DNA da amostra usando um kit de purificação seguindo as instruções do fabricante (consulte a Tabela de Materiais).
- Para verificar o tamanho da fragmentação do DNA extraído, carregue o gel de agarose com uma escada e uma amostra. Misture 4 μL de escada de 1 kbp com 1 μL de corante de carga roxa 6x e coloque-o em um poço do gel de agarose. Misture 20 μL de DNA com 4 μL de corante de carga roxa 6x para uma concentração final de 1x e pipete em um poço. Repita para todas as amostras.
- Execute o gel a 100 V por cerca de 30 min e, em seguida, crie uma imagem do gel carregando-o em uma bandeja, colocando-o no sistema de imagem de gel e seguindo as instruções do respectivo software do sistema (consulte a Tabela de Materiais). Decida se deve seguir em frente com base nos tamanhos de fragmentação, que devem estar entre 150-500 pb em média (Figura 2).
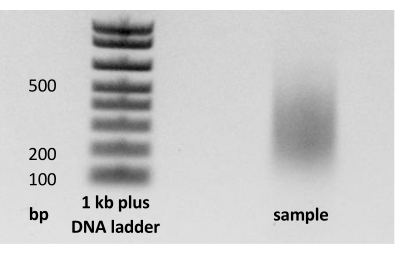
Figura 2: Verificação do tamanho do fragmento. Após a sonicação, um subconjunto da amostra é reticulado, purificado e executado em um gel de agarose para garantir que a cromatina tenha sido cortada para tamanhos de fragmento entre 150-500 pb. Clique aqui para ver uma versão maior desta figura.
6. Imunoprecipitação (IP)
- Usando uma pipeta, verifique o volume da amostra principal que foi mantida em gelo durante a extração do DNA. Adicione 10% de Triton X-100 a uma concentração final de 1%.
- Centrifugar a amostra a 20.000 x g a 4 °C durante 10 min e, em seguida, transferir o sobrenadante para um tubo limpo utilizando uma pipeta.
NOTA: O experimento pode ser pausado aqui congelando a amostra a -80 ° C por até 2 meses. Os detalhes das etapas de IP a seguir precisarão ser ajustados e otimizados para cada experimento. A quantidade de anticorpos por IP pode precisar ser otimizada. - Usando o tampão de lise como um branco, meça a concentração de cromatina seguindo as instruções de um sistema de medição de concentração de DNA disponível (consulte a Tabela de Materiais).
- Dependendo do volume da amostra e do número de IPs planejados, aumente o volume total da amostra adicionando 10% de Triton X-100 e 100x PIC (consulte a Tabela de Materiais) às concentrações finais de 1% e 1x, respectivamente. Recomenda-se o uso de 100 μg de cromatina em um volume total de 1.000 μL.
- Distribua o volume de cada IP em um tubo separado de 1,5 mL de baixa retenção (consulte a Tabela de Materiais). Para ChIP-qPCR, coloque o volume equivalente de amostra em outro tubo de 1,5 mL como um controle simulado. Pegue 10% do volume dos IPs como controle de entrada e armazene-o a -20 °C.
- Adicione 4 μg de anticorpo (aqui, anticorpo H3K4me3, consulte a Tabela de Materiais) a cada IP respectivo. Não acrescente nada à simulação. Incubar as reações IP e a simulação no rotador do tubo a 12 rpm e a 4 °C durante a noite.
7. Recuperação dos imunocomplexos com esferas magnéticas
NOTA: Sempre evite secar as esferas magnéticas; Mantenha-os cobertos com líquido ou reabasteça as soluções o mais rápido possível. Sempre trabalhe em uma amostra após a outra.
- Inverta suavemente as esferas magnéticas (consulte a Tabela de Materiais) para misturar.
- Prepare 10 mL de solução de bloqueio (Tabela 1) fresca no dia e misture delicadamente.
- Corte a ponta de uma ponta de pipeta para aumentar o diâmetro e transfira 50 μL de esferas magnéticas para tubos separados (um tubo por IP e outro para a simulação).
- Adicione 1 mL de solução de bloqueio a cada tubo e incube-os em um rotador a 12 rpm e 4 ° C por 30 min.
- Coloque as contas na solução de bloqueio em um rack magnético e aguarde a separação. Enquanto isso, diminua as reações IP a 2.000 x g por 3-5 s em temperatura ambiente para remover qualquer resíduo das paredes.
- Usando uma pipeta, remova e descarte o sobrenadante da solução de bloqueio e, em seguida, lave as esferas da parede com uma das amostras ou a simulação. Coloque a mistura de volta no respectivo tubo de baixa retenção e passe para a próxima amostra.
- Incubar todos os tubos num rotador a 12 rpm e 4 °C durante 3 h.
8. Lavagem, eluição e reversão de reticulação
- Prepare os tampões de lavagem e o tampão de sal TE (Tabela 1) durante a incubação de recuperação de imunocomplexos.
- Após a incubação, coloque os IPs e simule no rack magnético e aguarde cerca de 10 a 20 segundos para que os ímãs se separem.
- Descarte o sobrenadante e adicione 1 mL de tampão de lavagem com baixo teor de sal. Repita com todas as reações e, em seguida, remova os tubos do rack magnético e misture até que as contas fiquem suspensas.
- Incubar num rotador a 12 rpm e 4 °C durante 5 min.
- Coloque os tubos no rack magnético, remova o tampão de lavagem com baixo teor de sal, adicione 1 mL de tampão de lavagem com alto teor de sal e incube como na etapa 8.4.
- Repita as etapas 8.3-8.5 mais uma vez para um total de quatro lavagens usando sal baixo e alto alternadamente.
NOTA: O tampão de lavagem com alto teor de sal é muito agressivo e só deve ser usado por precisamente 5 min em cada etapa de lavagem. - Remova e descarte o sobrenadante usando uma pipeta e lave com 1 mL de tampão de sal TE; repita mais uma vez. Após a segunda lavagem, lave todas as contas da tampa do tubo.
- Faça o tampão de eluição (Tabela 1) durante as lavagens. Depois de descartar a segunda lavagem do tampão de sal TE, adicione 210 μL de tampão de eluição a cada reação.
- Suspender as esferas magnéticas e eluir a 65 °C, agitando a 700 rpm durante 15 min.
- Coloque as reações no rack magnético, colete o eluído e coloque-o em um novo tubo de 1,5 mL.
- Repita o processo de eluição com mais 210 μL de tampão de eluição e adicione o eluído ao primeiro lote para um volume final de 420 μL de eluição por IP e simule.
- Remova a entrada do freezer e adicione tampão de eluição a um volume total de 420 μL.
- Reticular inversamente todos os eluatos e a entrada, incubando-os a 65 °C e 700 rpm durante a noite.
9. Digestão de proteínas e RNA e purificação de DNA
- Dilua a concentração de SDS (consulte a Tabela de Materiais) para 0,5% adicionando 420 μL de tampão de sal TE ao eluído e à entrada.
- Para a digestão do RNA, adicione 10 μL de coquetel de RNase (consulte a Tabela de Materiais) e incube a 42 ° C a 700 rpm por 30 min.
- Para a digestão de proteínas, adicione 8 μL de proteinase K (ver Tabela de Materiais) a todos e incube a 55 ° C a 700 rpm por 1 h.
- Para purificação de DNA, siga o "Protocolo de Fixação e Sonicação de Tecidos Ren Lab ENCODE para MicroChIP"23 com alguns ajustes:
- Prepare os tubos com gel Phase Lock (consulte a Tabela de Materiais) girando o gel até o fundo do tubo a 20.000 x g por 1 min em temperatura ambiente.
- Sob uma hotte, adicionar uma amostra e o mesmo volume de fenol:clorofórmio:álcool isoamílico (25:24:1) a cada tubo. Agite os tubos vigorosamente e vortice-os brevemente até formarem uma camada branca espumosa.
CUIDADO: A mistura é tóxica, corrosiva e perigosa para a saúde. - Gire por 10 min a 4 °C e 20.000 x g. Verifique se a fase aquosa está clara.
- Transferir a fase aquosa para um tubo novo utilizando uma pipeta. Dois tubos novos por amostra são necessários, dependendo do volume provável da amostra. Nesse caso, transferir metade da amostra do primeiro para um segundo tubo.
- Adicione 1/10 do volume em acetato de sódio 3 M (NaAc, por exemplo, 40 μL para uma amostra de 400 μL) e 10 μL de acrilamida linear 5 mg / mL a cada amostra e inverta para misturar.
- Adicione 2x o volume da amostra em etanol 100% (por exemplo, 800 μL para uma amostra de 400 μL) e agite vigorosamente. Não vórtice, pois isso pode danificar o DNA.
- Incube a -20 °C durante a noite ou a -80 °C por 30 min.
- Resfrie a centrífuga a 4 ° C e, em seguida, gire as amostras por 30 minutos a 15.000 x g para granular o DNA.
- Transvase cuidadosamente e lave os pellets com 1 mL de EtOH a 70%. Centrifugar à velocidade máxima durante 5 min a 4 °C.
- Transvase com cuidado e gire novamente por alguns segundos. Use uma pipeta para remover todo o etanol. Se sobrar um pedacinho, pode ajudar a girar novamente.
- Ressuspenda os pellets em 30 μL de água livre de nuclease (consulte a Tabela de Materiais).
NOTA: Se houver vários tubos por amostra, ressuspenda um pellet em 30 μL, transfira para o próximo tubo e ressuspenda o próximo pellet nos mesmos 30 μL.
- Meça a concentração de DNA e armazene a amostra a -20 °C.
Resultados
Seguindo o protocolo acima, o DNA associado à trimetilação da histona 3 lisina 4 (H3K4me3) foi imunoprecipitado. O anticorpo ChIP-seq foi previamente utilizado na anêmona-do-mar Nematostella vectensis7 e foi validado aqui pela coloração imunofluorescente de cortes de tecido de E. diaphana (Figura 3). Embora o rendimento do DNA dependa da quantidade de material de entrada, era regularmente em torno de 100 ng / μL. Os fragmentos de DNA obtidos foram analisados por sequenciamento e qPCR (lista de primers no Arquivo Suplementar 1).
Uma profundidade de sequenciamento de 40 milhões de leituras rendeu ~ 17,6 milhões de leituras mapeadas exclusivamente. Após verificações de qualidade, as leituras brutas foram cortadas e mapeadas para o genoma de E. diaphana usando Bowtie24 (ver Tabela de Materiais). A análise baseada em modelo dos dados ChIP-Seq com MACS (ver Tabela de Materiais) identificou um total de 19.107 picos25. Como esperado para H3K4me3, a maioria dos picos estava localizada perto do local de início da transcrição (TSS), e a frequência da contagem de picos diminuiu drasticamente em ambos os lados do TSS, mas especialmente em direção ao corpo do gene (Figura 4).
Três genes com altos picos em torno de seus TSSs foram identificados a partir dos dados de sequenciamento, e os primers de qPCR foram projetados para atingir vários loci de altos picos dentro desses genes. Os dados de qPCR foram normalizados usando o método de porcentagem de entrada (Figura 5). Foi observado alto enriquecimento de H3K4me3 em relação aos controles de entrada e simulação. A porcentagem de entrada variou entre 2,7% a 10,7%, com diferenças no enriquecimento observadas entre os genes e entre diferentes loci dentro do mesmo gene.
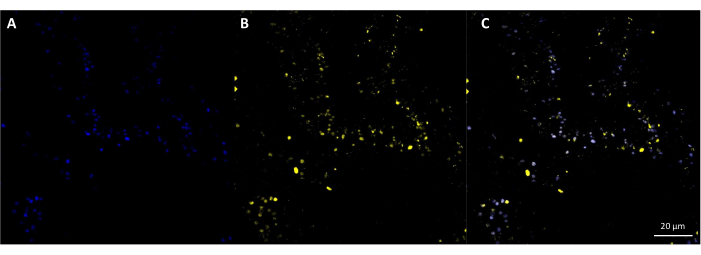
Figura 3: Coloração imunofluorescente de H3K4me3. Uma seção de tecido de E. diaphana foi corada com (A) coloração azul de ácido nucleico Hoechst e (B) um anticorpo secundário marcado com fluoróforo amarelo contra o anticorpo primário contra H3K4me3. (C) Uma sobreposição de A e B mostrando co-localização no núcleo. Barra de escala = 20 μm. Clique aqui para ver uma versão maior desta figura.
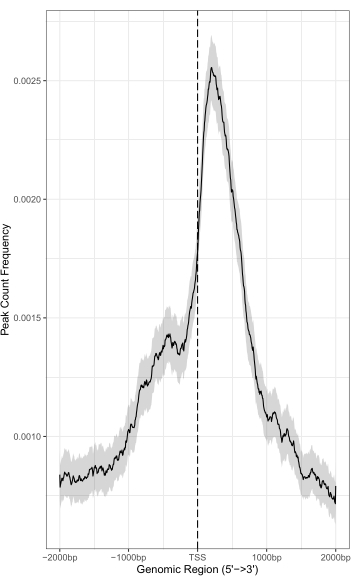
Figura 4: Alta frequência de contagem de picos ao redor do local de início da transcrição. A distribuição da frequência de contagem de pico da modificação de H3K4me3 abrangendo upstream (−) e downstream (+) 2.000bp em torno do local de início da transcrição (TSS). Clique aqui para ver uma versão maior desta figura.
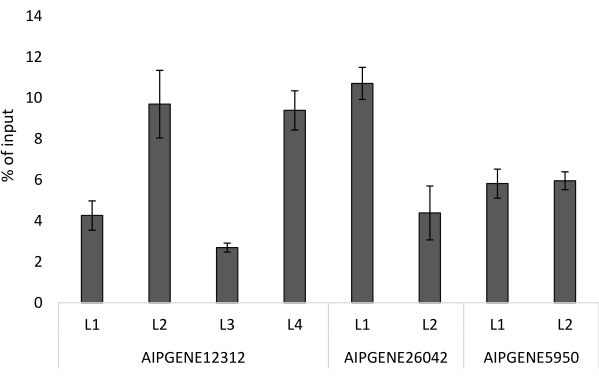
Figura 5: H3K4me3 ChIP-qPCR em Exaiptasia diaphana. Os resultados são representados como uma porcentagem (%) da entrada. Loci próximos ao local de início da transcrição dos respectivos genes (AIPGENE12312, AIPGENE26042 e AIPGENE5950) foram escolhidos para ChIP-qPCR. As barras de erro indicam o desvio padrão entre as réplicas, n = 3. Clique aqui para ver uma versão maior desta figura.
Arquivo Suplementar 1: Lista de primers usados para qPCR. Clique aqui para baixar este arquivo.
Discussão
Seguindo o protocolo acima, o DNA obtido foi usado com sucesso para ChIP-qPCR e ChIP-Seq. O mesmo perfil de pico geral para H3K4me3 relatado anteriormente de outros organismos 26,27,28 foi obtido aqui, com o pico mais alto ao redor do TSS e alto enriquecimento nos locais esperados no ChIP-qPCR. O número relativamente alto de leituras mapeadas multiplicadas nos dados ChIP-Seq pode ter sido causado por duplicatas de PCR. A quantidade de leituras mapeadas exclusivamente pode ser aumentada por mudanças no protocolo de preparação da biblioteca de DNA para reduzir as duplicatas de PCR. Existem vários métodos de normalização para dados ChIP-qPCR, com o método de porcentagem de entrada apresentado aqui sendo mais comumente usado. Esse método normaliza o IP e as amostras simuladas diretamente para a entrada, com a desvantagem de que a entrada é processada de forma diferente das amostras IP e simuladas durante o ChIP, o que pode introduzir erros. O método alternativo de enriquecimento de dobra normaliza o sinal do IP com base no sinal da simulação usando os mesmos conjuntos de primers, fornecendo assim uma relação sinal-fundo. No entanto, a intensidade do sinal da amostra simulada pode variar fortemente, o que, por sua vez, tem grandes efeitos nos dados. Uma discussão detalhada sobre ChIP-qPCR e normalização de dados pode ser encontrada em Haring et al.29.
Um grande ajuste no método apresentado acima em comparação com os protocolos ChIP comuns é o tempo de reticulação muito mais longo, de cerca de 15 minutos para proteínas histonas para uma incubação noturna. O principal objetivo desse ajuste é facilitar a penetração do fixador formaldeído através da camada de muco no tecido mais profundo de E. diaphana para preservar as interações proteína-DNA dentro do núcleo. A otimização desta etapa é fundamental para garantir reticulação suficiente para preservar as interações proteína-DNA sem reticulação tanto que o cisalhamento da cromatina por sonicação se torne ineficaz. A adição de detergentes como SDS também pode aumentar a eficiência da sonicação29. Além disso, uma longa incubação com formaldeído facilitou a etapa de homogeneização e resultou em uma amostra moída mais fina e uniformemente em comparação com anêmonas frescas ou congeladas que foram homogeneizadas antes da etapa de reticulação. As faixas recomendadas de comprimentos de fragmentos variam entre 100 pb e 1.000 pb29,30 e podem depender da proteína alvo. É fundamental que cada usuário otimize as condições de sonicação para atingir o comprimento desejado do fragmento com o menor poder de sonicação possível, pois a sobressonicação pode desnaturar as proteínas e, assim, impactar o IP31. Outra limitação do ChIP é a quantidade de material necessária, que afeta particularmente organismos relativamente pequenos, como as anêmonas; Esse problema foi resolvido reduzindo a perda de amostra entre as etapas. Após homogeneizar a amostra, ela foi lisada imediatamente, omitindo várias etapas comuns de preparação dos núcleos. O pool de amostras obtido de 20 anêmonas geralmente continha cromatina suficiente para três IPs e controles simulados e de entrada. A quantidade de material de partida (ou seja, o número de anêmonas) pode ser reduzida ainda mais no futuro, especialmente ao realizar um ChIP com apenas uma proteína-alvo. Dependendo do método a jusante pretendido, os controles devem ser ajustados; para ChIP-qPCR, deve-se considerar a inclusão de controles adicionais29, enquanto para ChIP-seq, a simulação pode ser omitida em favor de um controle de entrada.
Embora a validação de anticorpos esteja fora do escopo deste protocolo e, portanto, tenha sido apenas brevemente abordada aqui, é uma etapa crítica antes de realizar o ChIP. Especialmente ao usar anticorpos comerciais em espécies de invertebrados, a disponibilidade de anticorpos específicos para os alvos desejados pode ser uma limitação. Na primeira etapa, a sequência da cauda H3 N-terminal de E. diaphana e outros organismos modelo, incluindo peixe-zebra e camundongos, foi comparada e considerada altamente conservada12. A especificidade do anticorpo foi então testada usando imunofluorescência, que co-localizou os sinais do ácido nucléico e do anticorpo. O perfil de pico de H3K4me3 em torno do TSS obtido a partir dos dados de sequenciamento dá mais confiança em relação à especificidade do anticorpo.
Outra consideração em relação à especificidade do anticorpo é a possibilidade de qualquer interação com os dinoflagelados simbióticos que E. diaphana, assim como muitos outros antozoários, hospedam em suas células. Análises de transcriptoma em dinoflagelados dos gêneros Lingulodinium32 e Symbiodinium33 encontraram genes codificadores de histonas, incluindo histona central H3 e várias variantes H3 em baixos níveis de expressão, e a extensão da conservação funcional do código de histonas não é clara34. Marinov e Lynch34 compararam a conservação da sequência de caudas N-terminais variantes H3 dentro e entre espécies de dinoflagelados, e as espécies de Symbiodiniaceae mostraram uma alta divergência em torno da lisina 4 na sequência da cauda, especialmente quando se considera a congruência de aminoácidos adjacentes à lisina 4 como um fator. Esta região também demonstrou divergir de outras espécies modelo, como Arabidopsis thaliana, Drosophila melanogaster e Saccharomyces cerevisiae, que correspondem à sequência de E. diaphana12. Portanto, o risco de interação não intencional do anticorpo contra H3K4me3 com dinoflagelado H3 é baixo. Além disso, as sequências são alinhadas apenas ao genoma de E. diaphana , e os primers de qPCR devem ser específicos para sequências de E. diaphana , fornecendo uma camada extra de filtração de quaisquer sequências precipitadas não intencionalmente.
O protocolo ChIP apresentado produz DNA suficiente para qPCR, bem como sequenciamento de próxima geração e, embora a otimização individual por cada usuário provavelmente seja necessária, ele fornece um ponto de partida para o aumento da investigação das interações proteína-DNA em cnidários bentônicos, possivelmente no contexto de simbiose e mudanças ambientais.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 1 kb Plus DNA Ladder | Invitrogen | 10787018 | |
| 100% Etanol | |||
| 15 mL tubos | |||
| 16% Solução de formaldeído (p/v), sem metanol | Thermo scientific | 28906 | |
| 5 mL | |||
| Tubos 5PRIME Phase Lock | Quantabio | 2302820 | Bloqueio de fase gel - agulha AGANI leve |
| 25 G | Terumo | AN*2516R1 | |
| Agarose | |||
| Soro Bovino Albumina | Sigma-Aldrich | A7030 | |
| Bowtie | open source, disponível a partir de https://bowtie-bio.sourceforge.net/index.shtml | ||
| Sonifier Branson 250 | Branson | Sonicator | |
| Centrífuga | Eppendorf | 5430 R | Com rotores para tubos de 15 mL e 1,5 mL Anticorpo |
| de grau ChIP (aqui anticorpo policlonal H3K4me3) | Diagenode | C15410003 | |
| Inibidor de protease completo sem EDTA Cocktail | Roche | 11873580001 | 2 comprimidos/mL de água para estoque 100x |
| Vidro de cobertura | vwr | 48393 194 | |
| Espátula descartável | vwr | 80081-188 | |
| Kit de purificação de DNA (aqui QIAGEN QIAquick kit de purificação PCR) | QIAGEN | 28104 | |
| Moedor de tecidos | Dounce Wheaton | pilão apertado | |
| Solução salina tamponada com fosfato de Dulbecco (DPBS) 1x | gibco | 14190-094 | |
| Dynabeads Protein G | Thermo Fisher Scientific | 10004D | |
| EDTA | Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| eletroforese | |||
| Brometo de | |||
| FASTQC v0.11.9 | software | ||
| Gel Doc EZ Sistema de documentação | Bio-Rad | 1708270 | Sistema de imagem em gel |
| Glycine | Sigma-Aldrich | 50046 | |
| Seringa de tuberculina Injekt-F 1 mL | B. Braun | 9166017V | |
| Acrilamida linear (5 mg/mL) | Invitrogen | AM9520 | |
| de baixa retenção de 1,5 mL | |||
| de separação magnética | para tubos de 1,5 mL | ||
| Microscópio | |||
| Lâmina | |||
| de microscópioAnálise baseada em modelo de ChIP-Seq (MACS) | de código aberto | ||
| Almofariz e pilão, porcelana | |||
| NanoDrop 2000c espectrofotômetro | Thermo scientific | ND-2000C | |
| N-lauroylsarcosine | Sigma-Aldrich | 61739 | |
| Pipeta | |||
| de Pasteur de água | |||
| Fenol: Clorofórmio: Mistura de álcool isoamílico (25: 24: 1) | Sigma-Aldrich | 77617 | |
| Proteinase K (20 mg / mL) | Ambion | AM2546 | |
| Corante de carregamento roxo 6x | New England BioLabs | B7024S | |
| Qubit 2.0 Fluorômetro | Invitrogen | ||
| RNase Coquetel Mistura de Enzimas | Invitrogen | AM2286 | RNase A = 500 U/mL, RNase T1 = 20000 U/mL |
| Acetato de sódio | Sigma-Aldrich | S2889 | |
| Cloreto de sódio | Sigma-Aldrich | S9888 | |
| Desoxicolato de sódio | Sigma-Aldrich | 30970 | |
| SYBR Safe DNA Gel Stain | Invitrogen | S33102 | |
| TAE buffer | |||
| Thermomixer | Eppendorf | 5384000012 | |
| Tris base | Sigma-Aldrich | 10708976001 | |
| Triton X-100 solução | Sigma-Aldrich | 93443 | |
| Trypan Blue Stain (0,4%) | Gibco | 15250-061 | Perigo: pode causar câncer. Suspeito de danificar a fertilidade ou o feto |
| Rotador de tubo SB3 | Stuart | ||
| UltraPure SDS Solution, 10% | Invitrogen | 15553027 | |
| Bomba |
Referências
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
Reimpressões e permissões
