Este protocolo descreve um ensaio baseado em BRAKET para medir as interações da quinase CRAF com proteínas 14-3-3 em células vivas. O protocolo descreve as etapas para preparar as células, ler as emissões de BRET e analisar dados. Um exemplo de resultado com identificação de controles apropriados e solução de problemas para otimização de ensaio também é apresentado.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Ensaio baseado em transferência de energia por ressonância de bioluminescência (BRET) para medir interações de CRAF com proteínas 14-3-3 em células vivas
Neste artigo
Resumo
Resumo
O CRAF é um efetor primário das GTPases RAS e desempenha um papel crítico na tumorigênese de vários cânceres causados por KRAS. Além disso, o CRAF é um hotspot para mutações germinativas, que causam a RASopatia do desenvolvimento, síndrome de Noonan. Todas as quinases RAF contêm vários locais de ligação dependentes de fosforilação para proteínas reguladoras 14-3-3. A ligação diferencial de 14-3-3 a esses locais desempenha papéis essenciais na formação de dímeros RAF ativos na membrana plasmática sob condições de sinalização e na manutenção da autoinibição do RAF em condições quiescentes. Compreender como essas interações são reguladas e como elas podem ser moduladas é fundamental para identificar novas abordagens terapêuticas que visam a função da RAF. Aqui, descrevo um ensaio baseado em transferência de energia de ressonância de bioluminescência (BRET) para medir as interações de CRAF com proteínas 14-3-3 em células vivas. Especificamente, este ensaio mede as interações de CRAF fundido a um doador de Nano luciferase e 14-3-3 fundido a um aceitador de tag Halo, onde a interação de RAF e 14-3-3 resulta na transferência de energia doador para aceitador e na geração do sinal BRET. O protocolo mostra ainda que esse sinal pode ser interrompido por mutações que impedem a ligação do 14-3-3 a cada um de seus locais de ancoragem de alta afinidade da RAF. Este protocolo descreve os procedimentos para semear, transfectar e replaquear as células, juntamente com instruções detalhadas para ler as emissões de CHUT, realizar análises de dados e confirmar os níveis de expressão de proteínas. Além disso, são fornecidos exemplos de resultados de ensaios, juntamente com etapas de otimização e solução de problemas.
Introdução
As quinases RAF (ARAF, BRAF e CRAF) são os efetores diretos das GTPases RAS e os membros iniciadores da cascata de quinase RAF-MEK-ERK pró-proliferativa/pró-sobrevivência. Estudos recentes mostraram que a expressão de CRAF desempenha um papel fundamental na tumorigênese de vários cânceres causados por KRAS, incluindo câncer de pulmão de células não pequenas e adenocarcinoma ductal pancreático 1,2,3,4,5. Além disso, as mutações germinativas do CRAF causam uma forma particularmente grave da RASopatia, a síndrome de Noonan 6,7. Compreender a regulação do CRAF é fundamental para o desenvolvimento de abordagens terapêuticas bem-sucedidas que visam sua função nas células.
Todas as quinases RAF podem ser divididas em dois domínios funcionais, um domínio catalítico C-terminal (CAT) e um domínio regulador N-terminal (REG), que controla sua atividade (Figura 1A)8. O domínio REG engloba o domínio de ligação RAS (RBD), o domínio rico em cisteína (CRD) e uma região rica em serina/treonina (rica em S/T). Notavelmente, a região rica em S / T contém o sítio N ', que se liga a 14-3-3 de maneira dependente da fosforilação (S259 em CRAF; Figura 1A) 8. O domínio CAT engloba o domínio quinase, juntamente com um segundo local de ancoragem 14-3-3 de alta afinidade, conhecido como sítio C' (S621 em CRAF; Figura 1A) 8. A ligação diferencial de proteínas diméricas 14-3-3 aos sítios N 'e C', juntamente com o CRD, desempenha papéis críticos na ativação e inibição do RAF 9,10,11,12,13. Em condições normais de sinalização, a ativação do RAF é iniciada pelo seu recrutamento para a membrana plasmática pelo RAS, permitindo a formação de dímeros ativos, dos quais o heterodímero BRAF-CRAF é a forma ativa predominante14,15. Ensaios bioquímicos com BRAF e CRAF, juntamente com estruturas de microscopia eletrônica criogênica (Cryo-EM) de BRAF dimérico, indicam que um dímero 14-3-3 estabiliza dímeros RAF ativos ligando-se simultaneamente ao sítio C 'de ambos os protômeros RAF ( Figura 1B ) 9 , 13 , 16 , 17 . Por outro lado, estudos mostraram que, em condições quiescentes, o RAF adota uma confirmação citosólica e autoinibida, onde o domínio REG se liga ao domínio CAT e inibe sua atividade 12,18,19,20. Este estado fechado é estabilizado por um dímero 14-3-3 ligado ao CRD e ao sítio N' no domínio REG e ao sítio C' no domínio CAT (Figura 1B)10,13,21. No BRAF, este modelo é apoiado por estruturas Cryo-EM recentes de monômeros BRAF autoinibidos e por nossos estudos bioquímicos anteriores 10,12,13,21,22. No entanto, enquanto 14-3-3 é mostrado para desempenhar um papel inibitório na regulação CRAF23, um estado autoinibido semelhante a BRAF pode desempenhar um papel menor na regulação CRAF12; portanto, mais estudos são necessários para esclarecer os mecanismos pelos quais as proteínas 14-3-3 regulam a atividade do CRAF. A regulação mediada por 14-3-3 das quinases RAF requer uma infinidade de eventos de fosforilação e desfosforilação de RAF, a ligação a várias proteínas reguladoras e interações com a membrana plasmática8. Portanto, é fundamental que as interações 14-3-3-RAF sejam medidas em condições fisiologicamente relevantes e na presença de uma bicamada lipídica intacta.
Para resolver esse problema, a tecnologia NanoBRET (doravante referida como N-BRET; consulte a Tabela de Materiais para obter detalhes do kit) foi utilizada para desenvolver um ensaio baseado em proximidade para medir as interações de CRAF com proteínas 14-3-3 em células vivas (Figura 1C). Este sistema baseado em BRET mede as interações de duas proteínas de interesse (POI), onde uma proteína é marcada com um doador de nanoluciferase (Nano) e a outra com uma etiqueta Halo, para marcação com o ligante aceitador de energia Halo618 22,24. A interação das proteínas de interesse resulta na transferência de energia do doador para o aceitador, que por sua vez gera o sinal BRET (Figura 1C). A proteína doadora Nano extremamente brilhante (emissão (em) 460 nm) e o ligante Halo618 (em 618 nm) fornecem maior separação espectral e sensibilidade em relação ao BRET convencional, tornando-o uma plataforma ideal para estudar interações mais fracas e detectar mudanças sutis na ligação24. De fato, desenvolvemos anteriormente um ensaio baseado em N-BRET para medir as interações autoinibitórias dos domínios RAF REG e CAT, que foi essencial para a caracterização de um painel de mutações RASopatia no BRAF CRD e demonstrou a importância crítica desse domínio para manter a autoinibição e prevenir a ativação constitutiva de BRAF12.
O ensaio descrito aqui mede as interações de CRAF, fundido a uma etiqueta Nano N-terminal (Nano-CRAF), e a isoforma zeta de 14-3-3 fundida à etiqueta Halo C-terminal (14-3-3ζ-Halo; Figura 1C). Mostramos que as interações do Nano-CRAF com o 14-3-3ζ-Halo geram um sinal BRET robusto, que por sua vez pode ser interrompido por mutações que impedem a ligação do 14-3-3 ao sítio N '(S259A) e / ou ao sítio C '(S621A). O protocolo a seguir fornece etapas detalhadas para executar, otimizar e solucionar problemas deste ensaio.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
NOTA: Este ensaio é realizado em células de 293 pés. Uma linha epitelial bem caracterizada e facilmente transfectável derivada de células renais embrionárias humanas. Uma única placa de cultura confluente de 10 cm dessas células normalmente fornece células suficientes para semear 20 poços de placas de cultura de tecidos de 6 poços. As etapas 1 a 3 devem ser executadas usando técnica estéril em uma cabine de segurança biológica.
1. Semeadura celular (dia 1)
NOTA: Nesta etapa, as células são destacadas da(s) placa(s) de cultura de tecidos, contadas e semeadas em placas de cultura de tecidos de 6 poços para transfecção na etapa 2 (Figura 2).
- Aspirar o meio das células da cápsula de 10 cm. Lave as células com 5 mL de solução salina tamponada com fosfato (PBS) e aspire.
- Adicione 1 mL de ácido tripsina-etilenodiaminotetracético (EDTA) e incube por 3-5 min a 37 ° C para separar as células do prato.
- Adicione 9 mL de meio de águia modificado completo de Dulbecco (DMEM) às células para neutralizar a tripsina e pipetar para cima e para baixo repetidamente para gerar uma suspensão homogênea de célula única.
- Transfira imediatamente 20 μL de células para um tubo de 1,7 mL e misture com 20 μL de corante azul de tripano. Conte as células usando um contador de células automatizado (Tabela de Materiais) ou hemocitômetro.
- Dilua as células para 2 x 10⁵ células/mL em meio DMEM completo e adicione 2 mL a cada poço de uma placa de cultura de tecidos de 6 poços (4 x 10⁵ células/poço). Incubar células a 37 °C e 10% de CO2 durante a noite.
NOTA: Recomenda-se o uso de células de 293 pés que tenham sido passadas menos de 20x. Descobrimos anteriormente que o uso de células com maior número de passagens pode resultar em taxas BRET reduzidas e aumento da variabilidade do sinal poço a poço.
2. Transfecção celular (dia 2)
NOTA: Aqui, as células são transfectadas com as construções de expressão pCMV5-NanoLuc-CRAF e pCMV5-14-3-3ζ-Halo, juntamente com o vetor vazio pCDNA3.1 (Figura 2).
- Antes da transfecção, dilua os plasmídeos N-BRET para 5 ng/μL e pCDNA3.1 para 100 ng/μL e numere um conjunto de tubos estéreis de 1.7 mL.
- Adicione 100 μL de meios de transfecção (consulte a Tabela de Materiais para obter detalhes) a cada tubo, juntamente com 5 ng de pCMV5-NanoLuc-CRAF, 10 ng de pCMV5-14-3-3ζ e 200 ng de PCDNA3.1.
- Adicione 2 μL de reagente de transfecção (consulte a Tabela de Materiais para obter detalhes) e vortex suavemente para misturar. Gire os tubos brevemente em uma microcentrífuga para garantir que todo o líquido seja coletado no fundo dos tubos e, em seguida, incube a cerca de 25 ° C por 15 min.
- Adicione complexos de transfecção gota a gota às células e incube a 37 ° C / 10% CO2 por 16-20 h para permitir que as proteínas marcadas com Halo e Nano sejam expressas.
NOTA: A adição de um DNA portador de vetor vazio (pCDNA3.1) é essencial para alcançar alta eficiência de transfecção das construções de expressão N-BRET. A falha em adicionar vetor vazio resulta em níveis de expressão reduzidos das proteínas 14-3-3ζ-Halo e Nano-CRAF e, por sua vez, resulta em proporções BRET fracas e inconsistentes, conforme discutido anteriormente22.
3. Replaqueamento celular (Dia 3)
NOTA: Nesta etapa, as células são transferidas para uma placa de 384 poços e o ligante Halo 618 (+ligante; Tabela de Materiais) ou DMSO (+veículo) é adicionado para leitura das emissões BRET na etapa 4. As células restantes são transferidas para placas de cultura frescas de 6 poços para análise de western blot na Etapa 5 (Figura 2).
- Recolha os seguintes materiais e prepare a área de trabalho conforme descrito abaixo.
- Usando um banho-maria a 37 °C, tripsina-EDTA pré-quente, juntamente com meios de ensaio sem soro e meios de ensaio suplementados com FBS a 10% (consulte a Tabela de Materiais para obter detalhes).
- Com base no número de amostras a serem medidas, pré-rotule três conjuntos de tubos estéreis de 1,7 mL (Conjunto 1-3) e um conjunto de tubos de fundo cônico estéreis de 15 mL. Equipar uma centrífuga de balde oscilante com insertos de tubo de 15 ml e pré-arrefecer a 4 °C.
- Coloque os seguintes itens na capa de cultura de tecidos: reservatórios de reagentes, placas de cultura de tecidos de 384 poços, placas de cultura de tecidos de 6 poços, uma pipeta multicanal e pontas, lâminas/câmaras de contagem de células e coloração azul de tripano (Tabela de Materiais), juntamente com os conjuntos de tubos de 1,7 mL 1-3.
- Colha e conte as células conforme descrito abaixo.
- Aspire o meio das placas de 6 poços e adicione 250 μL de tripsina-EDTA às células. Incube as placas de 6 poços a 37 °C até que as células comecem a se desprender (3-5 min).
- Adicione 1 mL de meio de ensaio suplementado com FBS a 10% em cada poço para neutralizar a tripsina e pipetar vigorosamente para cima e para baixo para gerar uma suspensão de célula única.
- Transfira 1 mL da suspensão celular para os tubos de 15 mL pré-marcados. Adicione mais 1 mL de meio de ensaio suplementado com FBS a 10% a cada um dos tubos de 15 mL.
- Inverta os tubos 5x para misturar e transfira imediatamente 20 μL de suspensão celular para o conjunto de tubos 1.
- Centrifugue na centrífuga de balde oscilante pré-resfriada por 5 min a ~250 x g. Durante a etapa de centrifugação, misture 20 μL de coloração de células azuis de tripano com as células no conjunto de tubos 1 e, em seguida, conte as células usando um contador de células automatizado ou hemocitômetro. Um rendimento de 6-8 x 10⁵ células/mL é típico.
- Remova os tubos de 15 mL da centrífuga e aspire o meio dos pellets celulares. Ressuspenda os grânulos celulares a 2 x 10⁵ células/mL em meio de ensaio sem soro e pipete vigorosamente para gerar uma suspensão de célula única.
NOTA: O uso de meios de ensaio sem soro é usado para quiescer as vias normais de sinalização celular.
- Replaquetar células em placas de 384 poços e 6 poços, conforme descrito abaixo.
- Inverta os tubos de 15 mL várias vezes para garantir uma suspensão celular homogênea e transfira 500 μL para tubos de 1,7 mL conjunto 2 e conjunto 3.
- Adicione 0,5 μL de DMSO (+veículo) ao conjunto 2 e 0,5 μL de ligante Halo 618 (+ligante) ao conjunto de tubos 3 e pipeta para misturar.
- Transfira as suspensões de células +veículo e +ligante para poços separados de reservatórios de reagentes. Usando a pipeta multicanal (Tabela de Materiais), transfira 40 μL da suspensão da célula + veículo dos reservatórios de reagentes para os poços quadruplicados da placa de cultura de 384 poços. Repita esta etapa para as suspensões de células + ligantes.
- Transfira as células restantes para placas de cultura frescas de 6 poços. Incubar as placas de 384 e 6 poços durante a noite a 37 °C e 5% de CO2.
4. Leitura das emissões BRET (Dia 4)
NOTA: Nesta etapa, o substrato de nanoluciferase (consulte a Tabela de Materiais para obter detalhes) é adicionado às células na placa de cultura de 384 poços e as emissões do aceptor N-BRET (618 nm) e do doador (460 nm) são lidas (Figura 2). Os índices BRET corrigidos são então calculados.
- Pré-aqueça os meios de ensaio sem soro em banho-maria a 37 °C e descongele o substrato da nanoluciferase a 25 °C. Diluir o substrato da nanoluciferase 1:100 em meios de ensaio isentos de soro e transferir para um reservatório de reagente. Prepare o suficiente dessa mistura para adicionar 10 μL a cada poço da placa de 384 poços, mais 10% a 15% de volume extra.
- Usando uma pipeta multicanal (Tabela de Materiais), transfira 10 μL da mistura de substrato para cada um dos poços que contêm células na placa de cultura de 384 poços. Gire suavemente a placa por 1 min, manualmente ou usando um agitador orbital.
- Insira a placa de 384 poços no leitor de placas multimodo e registre as emissões de 460 nm e 618 nm para todos os poços que contêm células.
NOTA: Para o leitor de placas multimodo usado para esta etapa (consulte a Tabela de Materiais para obter detalhes), foi usada uma altura de leitura de 6.5 mm, com uma medição de tempo de leitura de 0.1 s, no entanto, uma otimização adicional pode ser necessária se estiver usando outros leitores de placas. - Calcule os rácios BRET brutos para +veículo e +ligante em unidades miliBRET (mBU) individualmente, utilizando a seguinte equação:
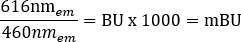
- Calcule o rácio BRET corrigido subtraindo o rácio BRET +veículo do rácio +Ligante (Quadro Suplementar 1).
NOTA: Ao comparar os resultados de vários experimentos, as razões BRET corrigidas podem ser agrupadas e normalizadas para a média do par N-BRET Wildtype (WT), consistindo em Nano-CRAFWT e 14-3-3ζWT-Halo (Tabela Suplementar 1).
5. Confirmação dos níveis de expressão proteica (dias 4 e 5)
NOTA: Nesta etapa, as células nas placas de 6 poços são lisadas e os níveis de expressão proteica das proteínas Nano-CRAF e 14-3-3ζ-Halo são determinados pela análise de western blot usando anticorpos específicos para as tags Halo e Nano. (Figura 2).
- Adicione inibidores de protease e fosfatase ao tampão de lise NP40 (Tabela de Materiais), permitindo 200 μL de tampão de lise por amostra.
- Aspire meios de placas de 6 poços que contenham células. Lave as células uma vez com 1 mL de PBS frio e aspire.
- Adicione 125 μL de tampão de lise NP40 a cada poço e incube placas de 6 poços a 4 °C em uma plataforma oscilante por 15 min para lisar as células.
- Transfira lisados para tubos de 1,7 mL em gelo e centrifugue a 20.000 x g por 10 min a 4 ° C. Coloque os lisados limpos de volta no gelo e determine a concentração de proteína usando ensaios disponíveis comercialmente, como ensaios de Bradford ou ácido bicinchonínico (BCA).
- Normalize a concentração de proteína em todas as amostras, transferindo um volume apropriado de lisado e tampão de lise NP40 para tubos frescos de 1,7 mL para um volume total de 100 μL.
- Ferva 5x tampão de amostra de proteína (Tabela de Materiais) por 1 min e adicione 25 μL a cada amostra. Ferva as amostras por 5-6 min e, em seguida, pulse a centrífuga dos tubos brevemente para garantir que toda a amostra seja coletada na base do tubo.
- Carregue 25 μL de amostra em cada poço de géis de proteína duplicados (Gel 1 e Gel 2) e, em seguida, transfira proteínas para membranas de nitrocelulose ou PVDF usando procedimentos padrão de western blotting, conforme descrito anteriormente22.
- Bloqueie as membranas em BSA-PBS a 3% a 25 ° C por 30 min e, em seguida, incube as membranas durante a noite com anticorpo Halo (diluição 1:1.000; Gel 1) e nanoluciferase ou anticorpo CRAF (diluição 1:500; Gel 2) em solução salina tamponada com tris, suplementada com Tween-20 a 0,2% (TBST; Tabela de Materiais).
- Lave as membranas 1x por 5 min em 10 mL de TBST e, em seguida, incube em temperatura ambiente por 1 h com anticorpo secundário anti-HRP de camundongo, diluído 1:10.000 em TBST.
- Lave as membranas 3x em uma plataforma de balanço em 10 mL de TBST a 25 ° C por 5 min cada. Remova o TBST e visualize as bandas de proteínas usando reagentes ECL e um processador de filme de raios-X ou outro sistema de imagem apropriado.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
Quando realizada conforme descrito neste protocolo (Figura 2), a interação de Nano-CRAFWT e 14-3-3ζ-Halo deve produzir razões BRET corrigidas de 50-60 mBU (Figura 3A; Tabela Suplementar 1). O CRAF contém dois locais de ancoragem 14-3-3 dependentes de fosforilação, o local N 'e o local C' (Figura 1) 8. Portanto, os controles apropriados para reduzir a ligação de CRAF: 14-3-3ζ inclue...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Estudos anteriores mostraram que as proteínas 14-3-3 desempenham papéis críticos na ativação e inibição das quinases RAF. Compreender como esses eventos de ligação são regulados e os efeitos da modulação dessas interações na sinalização RAF e na oncogênese orientada por RAF pode revelar novas vulnerabilidades terapêuticas que visam a função CRAF. No entanto, o ciclo de ativação de Raf é suportado por uma infinidade de proteínas associadas, modificações pós-traducionais e mudanças na localização subcelular
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Nada a divulgar.
Agradecimentos
Este projeto foi financiado em parte com fundos federais do Instituto Nacional do Câncer, Institutos Nacionais de Saúde, sob o número de projeto ZIA BC 010329.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Anticorpos | |||
| HaloTag® anticorpo monoclonal de camundongo | Promega | G9211 | Anticorpo para detecção de proteínas marcadas com HaloTag por immunoblot |
| Anticorpo monoclonal de camundongo NanoLuc® | R& D Systems | MAB10026 Anticorpo para detecção de proteínas marcadas com nano por imunotransferência | |
| de anticorpo monoclonal de camundongo CRAF (E10) | Santa Crus Biotechnology | sc-7267 | Anticorpo detectando diretamente proteínas CRAF por immunoblot |
| ECL anti-camundongo HRP anticorpo secundário | Amersham | NA931-1ML | Anticorpo de camundongo conjugado com HRP secundário (de ovelhas) |
| Reagents | |||
| X-tremeGENE™ 9 | Roche/Sigma | 6365809001 | |
| NanoBRET™ kit | Promega | N1661 | Kit NanoBRET contendo o ligante Halo 618 e o substrato NanoGlo (nanoluciferase) |
| DPBS, sem Ca++ e Mg++ | Produtos Biológicos de Qualidade | 114-057-101 | |
| Tripsina-EDTA (0,05%), vermelho de fenol | Life Technologies | 25300120 | |
| Meios de cultura de células DMEM | Life Technologies | 11995073 | Alto teor de glicose, L-glutamina, vermelho de fenol, piruvato de sódio; sem HEPES, meio de fornecimento com 10% de FBS, 2 mM de L-glutamina e 100U de penicilina-estreptomicina |
| L-Glutamina (200 mM) | Life Technologies | 25030164 | |
| Penicilina-Estreptomicina (10.000 U/mL) | Tecnologias de Vida | ||
| Opti-MEM™ Reduzi a mídia sérica | Gibco | 31985062 | Para transfecção celular |
| Meio sérico reduzido Opti-MEM, sem vermelho de fenol | Gibco | 11058021 | Para replaquetar células no Dia 3. Suplemento com 2 mM de L-glutamina e 100U de penicilina-estreptomicina, juntamente com 10% de FBS (quando indicado). |
| Mancha Invitrogen Trypan Blue | Thermo Scientific | T10282 | |
| Tampão de lise NP40 | N/A | N/A Tris | 20 mM (pH 8,0), NaCl 137mM, 10% de glicerol, Alternativa NP40 (Milipore, Cat# 492016). Armazene a 4 graus C.. Adicione a seguinte protease e fosfatase imediatamente antes do uso: 20 µ M leupeptina, 0,5 mM ortovanidato de sódio, 0,15 U/mL, 1mM PMSF. |
| 5x tampão de amostra de gel | N/A | N/A | 240 mM Tris (pH 8,0), 9,5% SDS, 30% glicerol, 500mM DTT, 3mM azul de bromofenol. Armazene a -20 graus C. |
| Linhas celulares | |||
| 293FT células (humanas) | Thermo Scientific | R70007 | |
| DNA fortes | |||
| pCMV5-Nano-CRAF WT e mutante | N/A | N/A | |
| pCMV5-14-3-3ζ-Halo | N/A | N/A | |
| Equipment | |||
| EnVision 2104 Leitor de Placas Multimodo | PerkinElmer 2104 | 2104-0010 | 600LP NanoBRET & Filtros de emissões M460/50 nm NanoBRET, Espelho Luminescence 404, altura de medição de 6,5 mm e tempo de medição de 0,1 s |
| Invitrogen Countess™ II Contador de Células Automatizado | Thermo Scientific | AMQAX1000 | |
| ThermoFisher E1-ClipTip™ Multicanal Pipettor | Thermo Scientific | 4672070 | |
| Software | |||
| GraphPad Prism (versão 10.0.3) | GraphPad | www.graphpad.com | |
| Outro | |||
| ThermoFisher ClipTip Ponteiras de pipeta multicanal | Thermo Scientific | ||
| Reservatório de Reagentes, 25 mL Dividido, Estéril | Thomas Scientific | 1228K16 | |
| Perkin Elmer 384-well CulturPlate™ | PerkinElmer | 6007680 | Branco, poliestireno, tratado para cultura de tecidos |
| Lâminas de Câmara de Contagem de Células Countess | Thermo Scientific | C10228 |
Referências
- Blasco, R. B., et al. c-Raf, but not B-Raf, is essential for development of K-Ras oncogene-driven non-small cell lung carcinoma. Cancer Cell. 19, 652-663 (2011).
- Blasco, M. T., et al. Complete regression of advanced pancreatic ductal adenocarcinomas upon combined inhibition of EGFR and C-RAF. Cancer Cell. 35, 573-587 (2019).
- Karreth, F. A., Frese, K. K., DeNicola, G. M., Baccarini, M., Tuveson, D. A. C-Raf is required for the initiation of lung cancer by K-Ras(G12D). Cancer Discov. 1, 128-136 (2011).
- Lito, P., et al. Disruption of CRAF-mediated MEK activation is required for effective MEK inhibition in KRAS mutant tumors. Cancer Cell. 25, 697-710 (2014).
- Sanclemente, M., et al. c-RAF ablation induces regression of advanced Kras/Trp53 mutant lung adenocarcinomas by a mechanism independent of MAPK signaling. Cancer Cell. 33, 217-228 (2018).
- Razzaque, M. A., et al. Germline gain-of-function mutations in RAF1 cause Noonan syndrome. Nat Genet. 39, 1013-1017 (2007).
- Pandit, B., et al. Gain-of-function RAF1 mutations cause Noonan and LEOPARD syndromes with hypertrophic cardiomyopathy. Nat Genet. 39, 1007-1012 (2007).
- Terrell, E. M., Morrison, D. K. Ras-mediated activation of the Raf family kinases. Cold Spring Harb Perspect Med. 9 (1), 033746(2019).
- Kondo, Y., et al. Cryo-EM structure of a dimeric B-Raf:14-3-3 complex reveals asymmetry in the active sites of B-Raf kinases. Science. 366, 109-115 (2019).
- Park, E., et al. Architecture of autoinhibited and active BRAF-MEK1-14-3-3 complexes. Nature. 575 (7783), 545-550 (2019).
- Tzivion, G., Luo, Z., Avruch, J. A dimeric 14-3-3 protein is an essential cofactor for Raf kinase activity. Nature. 394, 88-92 (1998).
- Spencer-Smith, R., et al. RASopathy mutations provide functional insight into the BRAF cysteine-rich domain and reveal the importance of autoinhibition in BRAF regulation. Mol Cell. 82, 4262-4276 (2022).
- Martinez Fiesco, J. A., Durrant, D. E., Morrison, D. K., Zhang, P. Structural insights into the BRAF monomer-to-dimer transition mediated by RAS binding. Nat Commun. 13, 486(2022).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. The importance of Raf dimerization in cell signaling. Small GTPases. 4, 180-185 (2013).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. Effects of Raf dimerization and its inhibition on normal and disease-associated Raf signaling. Mol Cell. 49, 751-758 (2013).
- Rushworth, L. K., Hindley, A. D., O'Neill, E., Kolch, W. Regulation and role of Raf-1/B-Raf heterodimerization. Mol Cell Biol. 26, 2262-2272 (2006).
- Garnett, M. J., Rana, S., Paterson, H., Barford, D., Marais, R. Wild-type and mutant B-RAF activate C-RAF through distinct mechanisms involving heterodimerization. Mol Cell. 20, 963-969 (2005).
- Tran, N. H., Wu, X., Frost, J. A. B-Raf and Raf-1 are regulated by distinct autoregulatory mechanisms. J Biol Chem. 280, 16244-16253 (2005).
- Chong, H., Guan, K. L. Regulation of Raf through phosphorylation and N terminus-C terminus interaction. J Biol Chem. 278, 36269-36276 (2003).
- Cutler, R. E., Stephens, R. M., Saracino, M. R., Morrison, D. K. Autoregulation of the Raf-1 serine/threonine kinase. Proc Natl Acad Sci U S A. 95, 9214-9219 (1998).
- Park, E., et al. Cryo-EM structure of a RAS/RAF recruitment complex. Nat Commun. 14, 4580(2023).
- Spencer-Smith, R., Morrison, D. K. Protocol for measuring BRAF autoinhibition in live cells using a proximity-based NanoBRET assay. STAR Protoc. 4, 102461(2023).
- Clark, G. J., et al. 14-3-3 zeta negatively regulates raf-1 activity by interactions with the Raf-1 cysteine-rich domain. J Biol Chem. 272, 20990-20993 (1997).
- Machleidt, T., et al. NanoBRET--A novel BRET platform for the analysis of protein-protein interactions. ACS Chem Biol. 10, 1797-1804 (2015).
- Hekman, M., et al. Dynamic changes in C-Raf phosphorylation and 14-3-3 protein binding in response to growth factor stimulation: differential roles of 14-3-3 protein binding sites. J Biol Chem. 279, 14074-14086 (2004).
- Hatzivassiliou, G., et al. RAF inhibitors prime wild-type RAF to activate the MAPK pathway and enhance growth. Nature. 464, 431-435 (2010).
- Bondzi, C., Grant, S., Krystal, G. W. A novel assay for the measurement of Raf-1 kinase activity. Oncogene. 19, 5030-5033 (2000).
- Spencer-Smith, R., et al. Inhibition of RAS function through targeting an allosteric regulatory site. Nat Chem Biol. 13 (1), 62-68 (2016).
- Roy, S., et al. 14-3-3 facilitates Ras-dependent Raf-1 activation in vitro and in vivo. Mol Cell Biol. 18, 3947-3955 (1998).
- Durrant, D. E., et al. Development of a high-throughput NanoBRET screening platform to identify modulators of the RAS/RAF interaction. Mol Cancer Ther. 20, 1743-1754 (2021).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
