O método desenvolvido de marcação com 13C6-glicose combinado com espectrometria de massa de alta resolução por cromatografia líquida é versátil e estabelece as bases para estudos futuros sobre os órgãos e vias primárias envolvidos na síntese de metabólitos secundários em plantas medicinais, bem como a utilização abrangente desses metabólitos secundários.
Artigo de método
13C6-Marcação de glicose associada a LC-MS: Identificação de órgãos primários de plantas na síntese de metabólitos secundários
Neste artigo
Resumo
Resumo
Este trabalho apresenta um método novo e eficiente para certificar órgãos primários envolvidos na síntese de metabólitos secundários. Como o metabólito secundário mais importante em Parispolyphylla var. yunnanensis (Franch.) Mão. -Mzt. (PPY), a saponina de Paris (PS) tem uma variedade de atividades farmacológicas e o PPY está em demanda crescente. Este estudo estabeleceu quatro tratamentos com folhas, rizoma e feixes vasculares do caule 13C6-Glicose alimentando e não alimentando para certificar com precisão os órgãos primários envolvidos na síntese de saponinas Paris VII (PS VII). Ao combinar cromatografia líquida-espectrometria de massa (LC-MS), as razões 13C/12C de folha, rizoma, caule e raiz em diferentes tratamentos foram calculadas com rapidez e precisão, e quatro tipos de razões de pico de íons isotópicos PS (M−) foram encontrados: (M+1) −/M−, (M+2) −/M−, (M+3) −/M− e (M+4) −/M−. Os resultados mostraram que a relação de 13C/12C nos rizomas dos tratamentos caule-vascular-feixe e alimentação do rizoma foi significativamente maior do que no tratamento não alimentar. Em comparação com o tratamento não alimentar, a proporção de moléculas de PS VII (M+2) −/M− nas folhas aumentou significativamente sob os tratamentos de alimentação com feixe vascular foliar e caule. Simultaneamente, em comparação com o tratamento não alimentar, a proporção de moléculas de PS VII (M+2) −/M− nas folhas sob tratamento com rizoma não apresentou diferença significativa. Além disso, a proporção de moléculas de PS VII (M+2) −/M− no caule, raiz e risoma não mostrou diferenças entre os quatro tratamentos. Em comparação com o tratamento não alimentar, a razão da molécula de saponina Paris II (PS II) (M+2) −/M− nas folhas sob tratamento de alimentação foliar não mostrou diferença significativa, e a razão (M+3) −/M− das moléculas de PS II nas folhas sob tratamento de alimentação foliar foi menor. Os dados confirmaram que o órgão primário para a síntese do PS VII são as folhas. Ele estabelece as bases para a futura identificação dos órgãos e vias primárias envolvidos na síntese de metabólitos secundários em plantas medicinais.
Introdução
As vias biossintéticas dos metabólitos secundários nas plantas são intrincadas e diversas, envolvendo órgãos de acumulação altamente específicos e diversos1. Atualmente, os locais de síntese específicos e os órgãos responsáveis pelos metabólitos secundários em muitas plantas medicinais não estão bem definidos. Essa ambigüidade representa um obstáculo significativo para o avanço estratégico e a implementação de métodos de cultivo projetados para otimizar o rendimento e a qualidade dos materiais medicinais.
Técnicas de biologia molecular, bioquímica e marcação de isótopos são amplamente empregadas para desvendar as vias de síntese e locais de metabólitos secundários em plantas medicinais 2,3,4,5, e cada uma dessas metodologias exibe pontos fortes e limitações únicas, como diferenças de eficiência e precisão. As abordagens de biologia molecular, por exemplo, oferecem alta precisão na identificação dos locais dentro das vias biossintéticas, mas são notavelmente demoradas. Sua utilidade é ainda mais restrita para espécies sem sequências genômicas disponíveis publicamente, tornando essas técnicas menos viáveis para esses casos6. Em contraste, as técnicas de marcação de isótopos, empregando razões isotópicas como 3C / 12C, 2H / 1H e 18O / 16O, fornecem um meio rápido e acessível para investigar os mecanismos de síntese, transporte e armazenamento de metabólitos secundários 7,8. Eles podem revelar a distribuição espacial de compostos orgânicos e isótopos estáveis nas folhas, permitindo assim a reconstrução das condições ambientais experimentadas pelas folhas ao longo de seu ciclo de vida9. Além disso, a aplicação de marcadores isotópicos externos, como 13C6-Glicose 10 e 13C 6-Fenilalanina11, permite a geração de metabólitos secundários marcados com carbono, melhorando nossa compreensão de sua produção e função.
As técnicas tradicionais de marcação de isótopos de carbono encontram desafios para identificar os órgãos específicos responsáveis pela síntese de metabólitos secundários devido à natureza altamente específica de suas vias biossintéticas e mecanismos de transporte. A cromatografia líquida-espectrometria de massa (LC-MS) ganhou destaque como um instrumento analítico fundamental nessa área, oferecendo um método robusto para rastrear isótopos exógenos na síntese química de medicamentos e investigar processos in vivo, como absorção, distribuição, metabolismo e excreção12. A sensibilidade, franqueza e confiabilidade superiores do LC-MS o tornam a escolha ideal para monitorar a produção de metabólitos secundários em plantas13. Nos últimos tempos, a LC-MS tornou-se cada vez mais favorecida por sua aplicação em técnicas externas de marcação de isótopos, o que permite a avaliação da eficiência da marcação em diferentes amostras. Essa metodologia fornece informações críticas sobre os órgãos primários envolvidos na síntese de metabólitos secundários em plantas medicinais, servindo como um complemento inestimável aos métodos biológicos para identificar os órgãos de síntese desses compostos14,15. Consequentemente, essa abordagem não apenas facilita a comparação das eficiências de marcação entre vários espécimes, mas também lança luz sobre os principais órgãos implicados na geração de metabólitos secundários de plantas, melhorando assim nossa compreensão de sua biossíntese.
Introduzimos um novo método que combina a marcação de isótopos de carbono com a detecção de LC-MS para identificar os órgãos primários responsáveis pela síntese de metabólitos secundários em plantas medicinais. A saponina parisiense (PS) tem uma variedade de atividades farmacológicas, como anticâncer, imunomodulação e anti-inflamatória16, e o PPY está em demanda crescente17. Portanto, usamos mudas de PPY como sujeitos de pesquisa e deciframos que as folhas são o órgão primário para sintetizar a saponina Paris VII (PS VII) (Figura 1B) usando a marcação de 13C6-glicose associada ao método LC-MS. Nossa abordagem incluiu quatro tratamentos diferentes envolvendo 13C6-Glucose alimentando feixes foliares, rizomáticos e vasculares do caule, bem como um controle não alimentar. A escolha da 13C6-Glicose é estratégica, pois é rapidamente metabolizada em acetil coenzima A via respiração, o que facilita a síntese de PS. Empregando a abundância natural de 13C, utilizamos um sistema de espectrômetro de massa de razão isotópica estável por cromatografia gasosa (GC-IRMS) para avaliar as razões de 13C / 12C em vários órgãos da planta e para analisar as razões de pico de íons isotópicos em moléculas de PS VII e saponinas Paris II (PS II) (Figura 1B). Nossa metodologia, que aproveita 13precursores de metabólitos secundários de plantas marcados com C e técnicas de espectrometria de massa de ponta, oferece uma alternativa mais simples e precisa aos métodos convencionais de marcação de isótopos de carbono. Essa nova abordagem não apenas aprofunda nossa compreensão dos órgãos envolvidos na síntese de metabólitos secundários em plantas medicinais, mas também estabelece uma base sólida para futuras explorações nas vias biossintéticas desses compostos.
Protocolo
1. Preparação experimental
- Certifique-se de que, durante o crescimento das plantas, a umidade relativa da estufa seja de 75%, as temperaturas dia/noite sejam de 20 °C/10 °C, o fotoperíodo seja composto de 12 h de dia e 12 h de noite e a intensidade da luz seja de 100 μmol·m-2·s-1. Forneça irradiância por meio de lâmpadas de diodo emissor de luz (LED), mantendo uma distância de 30 cm entre a lâmpada LED e a copa da planta.
NOTA: O fotoperíodo e a intensidade da luz estão de acordo com o número de horas de sol durante o período de crescimento em Yunnan. A irradiância é medida rotineiramente por um sensor quântico (consulte a Tabela de Materiais). Faça as alterações necessárias nos parâmetros ambientais de acordo com as características da planta medicinal. Uma vez que essas condições ambientais tenham sido cuidadosamente calibradas com base nas características da planta e no perfil regional da luz solar, é fundamental manter a consistência nessas configurações durante todo o experimento. Alterações arbitrárias nos parâmetros ambientais após seu estabelecimento inicial podem comprometer a integridade do experimento e a confiabilidade dos resultados. - Use uma abordagem hidropônica18 para garantir a precisão e especificidade de nosso experimento. Certifique-se de que as mudas de PPY lavadas de 2 anos (colhidas em Wenshan, província de Yunnan (104 ° 11′E, 23 ° 04′N) sejam imersas em uma concentração padrão de 1/4 da solução nutritiva de Hoagland por 3 dias para adaptação.
- Prepare a solução nutritiva de Hoagland (ver Tabela de Materiais) de acordo com as instruções; adicione 1,26 g de pó de Hoagland e 0,945 g de pó de nitrato de cálcio em 4 L de água purificada. Preparar a solução de 13C6-glicose (ver quadro de materiais) conforme descrito no manual normalizado; adicione 0,2 g de pó de 13C6-glicose em 100 mL de água purificada ou solução nutritiva de Hoagland.
- Prepare o tanque hidropônico e a bomba de oxigênio (Figura 2; consulte a Tabela de Materiais).
NOTA: Na configuração hidropônica, a utilização de uma solução de 13C6-glicose para rotulagem contorna a influência dos microrganismos do solo, garantindo assim que a solução contribua diretamente para a rápida síntese de metabólitos secundários em plantas medicinais. Para otimizar as condições de absorção de 13C6-Glicose pelas plantas, é imprescindível regular a vazão da bomba de oxigênio entre 4 e 8 L/min. Essa taxa de fluxo controlada é crucial para evitar que as mudas flutuem sobre a superfície da água, o que pode prejudicar significativamente sua capacidade de absorver o 13C6-Glicose de forma eficaz. Manter as mudas submersas na profundidade correta permite a absorção eficiente do composto de rotulagem, garantindo assim o sucesso do processo de síntese de metabólitos no sistema hidropônico.
2. Operação de experimento de rotulagem de carbono
- Configure quatro tratamentos e rastreie os órgãos de síntese e as vias de PS VII e PS II em PPY para demonstrar que as folhas são o principal órgão de síntese de PS.
- No Tratamento 1, a muda de PPY não se alimenta; no Tratamento 2, pulverize as folhas da muda de PPY com 0,2% de 13C6-Glicose; no Tratamento 3, alimente os rizomas de mudas de PPY com 0,2% de 13C6-Glicose; no Tratamento 3, alimente a muda de PPY na incisão do caule com o 0,2% de 13C6-Glicose (Figura 2A).
NOTA: O tratamento 1 é definido como um grupo de controle. O tratamento 2 é configurado para demonstrar que as folhas podem sintetizar o PS. Os tratamentos 3 e 4 são configurados para demonstrar que os rizomas podem absorver 13C 6-glicose. - Nos Tratamentos 1 e 2, cultivar as mudas de PPY em solução nutritiva normal de Hoagland. Pulverize 5 mL de solução de 13C6-glicose a 0,2% uma vez pela manhã, tarde e noite nas folhas do Tratamento 2.
- Nos Tratamentos 3 e 4, cultivar as mudas de PPY em solução nutritiva de Hoagland contendo 0,2% de 13C6-Glicose. No Tratamento 4, use um bisturi (ver Tabela de Materiais) para cortar os caules das mudas de PPY do meio, mas mantenha os feixes vasculares presos.
- Deixe cada tratamento ser rotulado por 3 dias e troque a solução nutritiva a cada 1,5 dias. Conduza o experimento usando um delineamento de blocos casualizados e repita cada tratamento 3x.
NOTA: Ao pulverizar as folhas, é importante colocar um papel absorvente atrás das folhas pulverizadas. Isso evita que gotículas de água caiam na solução nutritiva abaixo, o que poderia afetar os resultados do experimento. Os cortes nas hastes não são todos removidos, mas têm conduítes presos que são visíveis a olho nu.
- No Tratamento 1, a muda de PPY não se alimenta; no Tratamento 2, pulverize as folhas da muda de PPY com 0,2% de 13C6-Glicose; no Tratamento 3, alimente os rizomas de mudas de PPY com 0,2% de 13C6-Glicose; no Tratamento 3, alimente a muda de PPY na incisão do caule com o 0,2% de 13C6-Glicose (Figura 2A).
3. Métodos de amostragem e preparação
- Colete folhas, caules, rizomas e raízes de cada tratamento separadamente no final do experimento de 3 dias com 13C6-glicose. Lave bem os órgãos vegetais coletados para remover as impurezas da superfície.
NOTA: A ausência de abundância de 13C pode ser encontrada pela análise LC-MS da solução de lavagem, o que prova que a lavagem está limpa19. - Use um forno elétrico de secagem por explosão de temperatura constante (consulte a Tabela de Materiais) para secar os órgãos da planta lavados. Comece a 105 °C por 30 min e depois ajuste a 60 °C até peso constante. Esmague os órgãos da planta seca em pó usando um moedor rápido de amostra totalmente automático (consulte a Tabela de Materiais).
NOTA: O pó é usado para análise quantitativa das proporções PS VII, II e 13C / 12C em diferentes órgãos da planta. - Use uma balança analítica eletrônica (consulte a Tabela de Materiais) para pesar com precisão 30 mg de pó para cada amostra e coloque-a em 2 mL de etanol-água a 75% v/v. Use um limpador ultrassônico CNC (consulte a Tabela de Materiais) e execute a extração ultrassônica a 25 °C por 20 min (60 kHz), repita 2x; Juntar as soluções de extracção e preparar três amostras paralelas20.
NOTA: Erros no peso da amostra devem ser minimizados. - Use nitrogênio para secar a solução de extração e, em seguida, dissolva em metanol cromatográfico até um volume de 1 mL. Antes da injeção, use um filtro de fase orgânica de 0,22 μm (consulte a Tabela de Materiais) para filtração (Figura 2B).
NOTA: Não sopre o extrato ao secar com gás nitrogênio; O extrato deve ser passado através de uma membrana microporosa para garantir que as impurezas interfiram minimamente.
4. Configuração e operação de LC-MS
- Configuração MS
- Ative a bomba de vácuo girando o interruptor para a posição ligado. Abra a válvula principal no cilindro de gás argônio e, em seguida, ajuste a válvula de pressão parcial para atingir uma pressão alvo de cerca de 0,3 MPa. Em seguida, certifique-se de que a válvula de gás nitrogênio também esteja aberta.
- Inicie o software de controle MS (consulte a Tabela de Materiais). Clique na fonte de ionização por eletrospray aquecida (Fonte HESI) no painel do software e insira os parâmetros, incluindo a tensão capilar (3.0 kV para modo negativo), a temperatura capilar (350 °C), vazão do gás da bainha (N2) (35 unidades arbitrárias), vazão do gás auxiliar (N2) (15 unidades arbitrárias)), por meio de varredura completa com base na massa molecular do PS (operado de m/z 100-1.500). Clique no botão Aplicar para ativar a fonte de íons.
NOTA: Aguarde pelo menos 8 h para garantir um grau de vácuo suficiente para as condições experimentais. Verifique se a pressão do gás de argônio e nitrogênio é alta o suficiente antes da análise.
- LC pré-corrida
- Prepare a fase móvel A misturando ácido fórmico a 0,1% com água e use acetonitrila para a fase móvel B (consulte a Tabela de Materiais). Desgaseifique ambas as fases em um sonicador de banho de ultrassom por 15 minutos para eliminar os gases dissolvidos. Em seguida, conecte a fase móvel A à sua respectiva passagem de fluido e faça o mesmo com a fase móvel B. Finalmente, misture uma solução de metanol-água 1:9 v / v para o fluido de limpeza e encha a bomba e os frascos injetores manualmente.
NOTA: A frequência do sonicador do banho de ultrassom é de 40 kHz.
- Prepare a fase móvel A misturando ácido fórmico a 0,1% com água e use acetonitrila para a fase móvel B (consulte a Tabela de Materiais). Desgaseifique ambas as fases em um sonicador de banho de ultrassom por 15 minutos para eliminar os gases dissolvidos. Em seguida, conecte a fase móvel A à sua respectiva passagem de fluido e faça o mesmo com a fase móvel B. Finalmente, misture uma solução de metanol-água 1:9 v / v para o fluido de limpeza e encha a bomba e os frascos injetores manualmente.
- Estabelecimento do método LC
- Selecione o botão "Configuração do instrumento" para acessar a janela de edição de método.
- Pressione o botão "Novo" para iniciar a criação de um novo método de instrumento LC-MS.
- Defina o tempo total de execução para o método LC. Em seguida, insira os valores necessários para o limite de pressão, vazão total, gradiente de fluxo, temperatura da amostra, temperatura da coluna e delta de temperatura pronta na janela de edição do método.
NOTA: As configurações do método do instrumento LC-MS são adaptadas ao analito de interesse e ao tipo de coluna de cromatografia líquida utilizada. Para obter os melhores resultados, use uma taxa de fluxo de 0,3 mL/min com uma coluna BEH C18 mantida a 40 °C (consulte a Tabela de Materiais). A eluição do gradiente é configurada da seguinte forma: comece em 10% B, aumentando linearmente para 30% B ao longo de 8 min, depois para 45% B de 8 a 16 min, para 50% B de 16 a 24 min e para 70% B de 24 a 30 min. Imediatamente após isso, reverta o gradiente para a condição inicial de 10% B dentro de 0,1 min, mantendo-o lá por mais 2,9 min. Injetar um volume de amostra de 5 μL para cada análise. As configurações do método do instrumento LC-MS dependem da substância específica a ser analisada e do tipo de coluna de cromatografia líquida usada21.
- Aquisição de MS
- Na guia Configurações , escolha o tipo de experimento MS geral ou MSn para a configuração do método MS. Insira os valores necessários para configurar o tempo de aquisição, polaridade (positiva ou negativa), faixa de massa, número da válvula de desvio e duração da válvula de desvio. Depois de inserir esses detalhes, clique no botão "Salvar" para finalizar e salvar essas configurações como um método de instrumento.
NOTA: As configurações padrão sem coluna de cromatografia são as seguintes: tempo de aquisição, 2 min; polaridade, positiva ou negativa; faixa de massa, 100 a 1.500.
- Na guia Configurações , escolha o tipo de experimento MS geral ou MSn para a configuração do método MS. Insira os valores necessários para configurar o tempo de aquisição, polaridade (positiva ou negativa), faixa de massa, número da válvula de desvio e duração da válvula de desvio. Depois de inserir esses detalhes, clique no botão "Salvar" para finalizar e salvar essas configurações como um método de instrumento.
- Realizar espectrometria de massa de múltiplos estágios de acordo com métodos convencionais.
- Sempre empregue o modo de aquisição dependente de dados (DDA) para coleta de dados em espectrometria de massa de vários estágios. No modo DDA, o espectrômetro de massa identifica os cinco íons mais intensos durante cada varredura no primeiro estágio da esclerose múltipla em tandem, que são posteriormente fragmentados e examinados no segundo estágio da espectrometria de massa em tandem.
NOTA: Os dados coletados de MS e MS/MS podem ser usados para análise subsequente e pesquisa em banco de dados.
- Sempre empregue o modo de aquisição dependente de dados (DDA) para coleta de dados em espectrometria de massa de vários estágios. No modo DDA, o espectrômetro de massa identifica os cinco íons mais intensos durante cada varredura no primeiro estágio da esclerose múltipla em tandem, que são posteriormente fragmentados e examinados no segundo estágio da espectrometria de massa em tandem.
5. Aquisição, análise e cálculo manual de dados
- Aquisição e análise dos dados
- Clique duas vezes nos arquivos brutos para abrir todos os espectros de massa do MS. Calcule manualmente os valores de diferença m/z entre o íon e os íons de fragmento correspondentes.
- Importe os arquivos de dados brutos dos tratamentos de controle e amostra e brancos para o software de análise de espectrometria de massa para identificar PSs calculando com precisão a massa e os fragmentos de PS.
NOTA: PS VII e PS II são identificados por comparação com os tempos de retenção e a cooperação de soluções-padrão autênticas. LC-MS detecta uma série de pequenos picos nas posições dos picos de íons moleculares. A proporção de cada série de picos de íons isotópicos é constante. Quando os isótopos exógenos de 13C são administrados, a abundância total de 13C na planta aumenta e as proporções da série de picos de íons isótopos de metabólitos secundários da planta mudam. A tolerância máxima de erro de massa é definida em 5 ppm. - Digitalize a faixa de massa m/z 500-1.500 para identificar o pico básico. Determine o peso molecular preciso com 4 casas decimais, de acordo com o peso molecular preciso e o tempo de retenção da molécula alvo. Procure a área de pico do fluxo de íons isótopos seriais e derive valores para M−, (M+1) −, (M+2) −, (M+3) − e (M+4) −. Quando a fase móvel contém ácido fórmico, os íons negativos também incluem (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − e (M+COOH+4) −.
NOTA: A seleção de picos dentro da faixa de massa m/z 500-1.500 melhora a precisão da identificação de picos de íons moleculares para PS VII e PS II. Por exemplo, o espectro de massa de íons negativos do PS VII (C51H82O21, 1030.5349) ioniza principalmente com íons COOH− em mistura de ácido fórmico e água. Os íons isótopos seriais observados incluem 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55− e estendendo-se até 1079.56−.
- Cálculo de dados
- Para reduzir o efeito da abundância natural de 13C, calcule as proporções de correntes de íons marcadas e não marcadas para cada órgão sob diferentes tratamentos, concentrando-se especificamente nas proporções (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M − e (M + 4) - / M −. Para diferenciar entre isótopos marcados e naturais para uma avaliação precisa da incorporação de 13C, calcule essas proporções para n = 1, 2, 3, 4 usando a equação (1).
Razão = A (M+2) −/ AM− (1)
PS: (M+2) − inclui (M+2+COOH) − e (M+2) −; M− inclui (M+COOH) - e M−.
NOTA: Aqui, M− refere-se às áreas de pico combinadas de correntes iônicas para (M+COOH) − e M −, principalmente ionizadas com COOH− em ácido fórmico-água. A representa a área do pico. Por exemplo, as fórmulas para calcular as proporções PS VII são ilustradas da seguinte forma:
Relação + 1 = (A1030,54 + A1076,55) / (A1029,53 + A1075,55)
Relação + 2 = (A1031,54 + A1077,55) / (A1029,53 + A1075,55)
Relação+3= (A1032.55+A1078.56)/(A1029.53+A1075.55)
Relação+4= (A1033.55+A1079.56)/(A1029.53+A1075.55)
- Para reduzir o efeito da abundância natural de 13C, calcule as proporções de correntes de íons marcadas e não marcadas para cada órgão sob diferentes tratamentos, concentrando-se especificamente nas proporções (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M − e (M + 4) - / M −. Para diferenciar entre isótopos marcados e naturais para uma avaliação precisa da incorporação de 13C, calcule essas proporções para n = 1, 2, 3, 4 usando a equação (1).
Resultados
Para confirmar que o fornecimento de 13C6-Glucose em rizomas foi bem-sucedido, analisamos ainda mais as razões isotópicas de 13C / 12C em rizomas. As razões isotópicas de 13C / 12C dos tratamentos 3 e 4 foram muito maiores do que as do tratamento 2 (Figura 1A). Os resultados indicaram que a 13C6-Glicose dos tratamentos 3 e 4 entrou nos rizomas por ingestão.
As proporções de 13picos de isótopos de C, como (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M - e (M + 4) - / M −, normalmente permanecem constantes. Os compostos marcados com 13C adicionados exogenamente têm a mesma estrutura molecular, pesos moleculares, propriedades físico-químicas e tempos de retenção semelhantes aos seus equivalentes não marcados. No entanto, quando esses compostos marcados foram analisados usando espectrometria de massa, as proporções de seu pico de íons isótopos mudaram. Em nosso estudo, usamos LC-MS para detectar PS VII e PS II em quatro órgãos diferentes de PPY em vários tratamentos (Figura 3). Em comparação com o Tratamento 1, os resultados indicaram um aumento significativo na relação PS VII (M+2) −/M− nas folhas do PPY tratado com 13C exógeno (Figura 3B). Particularmente no Tratamento 2, onde as folhas de PPY foram pulverizadas com 13C6-Glicose, PS VII marcado com dois átomos de 13C foram sintetizados. No entanto, no Tratamento 4, a proporção de moléculas de PS VII (M+2) −/M− nas folhas não teve diferença significativa entre o rizoma e o tratamento não alimentar, e as proporções de moléculas de PS VII (M+1) −/M−, (M+3) −/M−, (M+4) −/M− no caule, rizoma e raiz em todos os quatro tratamentos não mostraram diferenças significativas (Figura 3A, C, D). Além disso, a proporção de moléculas de PS II (M + 2) - / M - aumentou lentamente no Tratamento 2 ( Figura 3F ). Não houve diferenças notáveis nas proporções de moléculas de PS II (M + 1) - / M - e (M + 4) - / M - nas folhas entre os tratamentos 1 e 2 ( Figura 3E , H ), enquanto a proporção de moléculas de PS II (M + 3) - / M - mostrou uma diminuição notável nas folhas no tratamento 2 em comparação com o tratamento 1 ( Figura 3G ). Esses achados sugerem que a síntese de PS VII de fato ocorre nas folhas tratadas com 13C 6-Glicose, alinhando-se com a via biossintética conhecida de PSs.
Nossa abordagem sugere a folha como o órgão primário para a síntese de PS VII em PPY, contrastando com a síntese de PS II. Notavelmente, o PS VII marcado com 13C estava ausente no rizoma após o tratamento foliar com 13C 6-glicose, implicando transporte lento de PS VII das folhas para os rizomas. Em contraste, PS II marcado com 13C foi detectado no rizoma após tratamentos de marcação de feixe vascular do caule e rizoma, indicando possível síntese de rizoma nesta fase e necessitando de uma exploração mais aprofundada dos locais de síntese de PS II. A detecção exclusiva da razão (M + 2) - / M - para moléculas PS VII nas folhas se alinha com o destino metabólico de 13C 6-glicose; após a absorção, é metabolizado via glicólise para produzir acetil-CoA com dois isótopos de 13C. Considerando o PS como um composto isoprenóide, sua biossíntese a partir do acetil-CoA prossegue através do ácido mevalônico (MVA) ou da via 2-C-metil-D-eritritol-4-fosfato (MEP) (Figura 4), levando à formação de (M + 2) - / M − PS VII. Assim, nosso estudo delineia a folha como o órgão definitivo para a síntese de PS VII em PPY.

Figura 1: A razão de isótopos de 13C / 12C em rizomas de quatro tratamentos. (A) As razões de isótopos de 13C / 12C nos rizomas dos tratamentos 4 e 3 foram muito maiores do que as dos tratamentos 1 e 2, indicando que a 13C6-glicose havia entrado significativamente nos rizomas através da alimentação das raízes. Cada coluna representa a média (± EP) de três réplicas. As letras nas colunas apresentam médias significativamente diferentes na relação do isótopo 13C/12C em quatro tratamentos (p < 0,05). Abreviatura: PS = saponinas de Paris . (B) A espectrometria de massa de alta resolução do PS VII (C51H82O21, 1030.5349) detectou seu íon negativo com um tempo de retenção de 16,83 minutos. Devido à abundância natural de 13C (com um peso molecular exato de 13,003, em comparação com 12C a 12,000, uma variedade de picos de isótopos, incluindo (M−), principalmente (M+1)−, (M+2)−, (M+3)− e (M+4)−, aparecem no mesmo tempo de retenção que o pico de íon molecular PS VII M−. Esses picos foram devidos principalmente à ionização de COOH− em água de ácido fórmico. Um diagrama de barras ampliado destaca esses picos de isótopos. As razões de corrente iônica de (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M − e (M + 4) − / M − foram calculadas. Ao analisar as mudanças nessas proporções, pudemos rastrear e inferir a biossíntese de saponinas. Aqui, M− representou as áreas de pico combinadas da corrente iônica para (M+COOH)- e M−. A Figura 1B foi modificada de Wen et al.24. Clique aqui para ver uma versão maior desta figura.

Figura 2: 13C6-Fluxo de trabalho de rotulagem e integração de dados de glicose. As mudas foram marcadas por pulverização e alimentação com 0,2% de 13C6-glicose por 3 dias; em seguida, os extratos de cada órgão foram analisados isotopicamente por LC/MS e GC/IRMS e combinados com integração de pico e dados para análise órgão-específica da síntese de PS. (A) Um diagrama esquemático ilustrando a alimentação de glicose em diferentes órgãos. Os tratamentos 1-4 foram não alimentadores, alimentados com folha, feixe vascular do caule e rizoma, respectivamente. (B) As etapas para análise LC-MS do líquido extraído feito do tecido PPY seco por meio de um instrumento de trituração e sopro de nitrogênio. Abreviaturas: LC/MS = cromatografia líquida-espectrometria de massa; PPY = Parispolyphylla var. yunnanensis (Franch.) Mão. -Mzt.; PS = saponina de Paris . Clique aqui para ver uma versão maior desta figura.
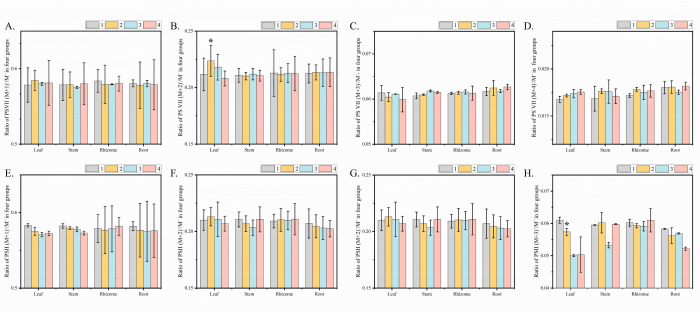
Figura 3: Rastreamento da biossíntese de saponina de Paris VII e saponina de Paris II via alimentação de 13C6-Glicose de órgãos vegetais. (A-D) A proporção de moléculas PS VII (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M −, (M + 4) - / M − em cada órgão dos quatro tratamentos. A proporção de moléculas de PS VII (M+2) −/M− aumentou significativamente nas folhas do Tratamento 2 e do Tratamento 3. No caule, raiz e rizoma, a proporção de moléculas de PS VII (M+2) −/M− não mostrou diferenças óbvias entre os quatro tratamentos. (E-H) A proporção de moléculas PS VII (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M −, (M + 4) - / M − em cada órgão dos quatro tratamentos. Em comparação com o Tratamento 1, as proporções de moléculas de PS II (M+2) −/ M− nas folhas não tiveram diferença no Tratamento 2. No Tratamento 2, a proporção de moléculas de PS II (M+1) −/M− e (M+4) −/M− não tem diferenças óbvias nas folhas em comparação com o Tratamento 1. As proporções de moléculas PS II (M + 3) - / M - diminuíram nas folhas em comparação com o Tratamento 1. Saponina de Paris VII, PS VII. Cada coluna representa a média (± EP) de três réplicas. "*" indicou uma diferença significativa em relação ao tratamento não alimentar (teste t em p < 0,01). Abreviatura: PS = saponinas de Paris . Clique aqui para ver uma versão maior desta figura.

Figura 4: Descrição do PS VII gerado pela 13C6-Glicose exógena que entra na via MVA. Diagrama esquemático do metabolismo da acetil coenzima A marcada com 13C6-glicose para gerar moléculas PS VII (M + 2) - / M - através da via MVA. O carbono rotulado é mostrado em vermelho; O carbono não rotulado é cinza. Sob a ação da glicólise, a 13C6-glicose é clivada em duas moléculas de acetil coenzima A(M+2)-, que então gera pirofosfato de isopentenil e pirofosfato de dimetil propenil através da via MVA e, em seguida, gera atenol cíclico através da geração catalítica de geranilgeranil pirofosfato sintase, farnesil pirofosfato sintase, esqualeno sintase, esqualeno epoxigenase, cicloatenol sintase Cicloartenol, em seguida, oxidação, descarboxilação, redução e outras reações para obter colesterol, colesterol através de uma série de enzimas do citocromo P450, glicosiltransferases e saponina furostanóide 26-O-β-glicosidase da modificação tardia da formação de moléculas PS VII contendo dois carbonos marcados. (M+2) - indica que o COOH- de dois carbonos é ionizado neste ponto, e o número de rótulos para dois carbonos pode ser derivado usando (M + 2) - / M −. Usando protocolos padrão, o corpo isotópico é identificado individualmente e as correntes iônicas foram divididas para obter dados de marcação para os isótopos. O valor de M− é estável. Abreviatura: PS = saponinas de Paris ; PS VII = saponina de Paris VII; AMIU = via do mevalonato; GPPS = Geranilgeranil pirofosfato sintase; FPPS = Farnesil pirofosfato sintase; SQS = Esqualeno sintase; SQE = esqualeno epoxigenase; CYPs = enzimas do citocromo P450; UGTs = Glucuronic transferase; F26G = saponina furostanóide 26-O-β-glicosidase. Clique aqui para ver uma versão maior desta figura.
Discussão
A implementação bem-sucedida deste protocolo depende de pesquisas abrangentes sobre propriedades fisiológicas de plantas, tecidos, órgãos e metabólitos secundários. A abordagem de design experimental descrita no protocolo estabelece uma base robusta para investigar as vias biossintéticas dos metabólitos secundários das plantas. Os fatores críticos neste experimento são (1) determinar a idade das mudas perenes e (2) escolher o tempo correto de detecção de marcação de isótopos. As plantas medicinais são categorizadas em perenes e anuais, cada uma com diferentes padrões de síntese e acúmulo de metabólitos secundários. Este experimento tem como objetivo esclarecer os órgãos sintéticos primários de metabólitos secundários em plantas medicinais, analisando a taxa de síntese desses metabólitos. Portanto, é essencial selecionar cuidadosamente os anos e estágios de crescimento que correspondem a esses padrões e taxas de síntese.
O PPY é uma planta medicinal perene e o conteúdo de PS se acumula ano a ano. No entanto, foi demonstrado que a taxa de síntese de PS não diferiu daquela do PPY22 das plantas perenes. Ao mesmo tempo, o tamanho menor das mudas de 2 anos em comparação com as mais velhas facilita a hidroponia. Portanto, este estudo utilizou mudas de PPY de 2 anos de idade. Isso garante que as plantas selecionadas exibam a maior taxa de síntese de metabólitos secundários. É crucial reconhecer a variação nas taxas de síntese e transporte de metabólitos secundários em diferentes espécies23. A duração ideal para o período de detecção de rotulagem é determinada por essas taxas. Pesquisas indicam que o teor de açúcar e PS nas folhas de PPY diminui em 3 dias24, sugerindo um processo de transporte lento para PS devido ao seu peso molecular substancial, improvável de ser concluído dentro desse período. Uma duração de tratamento inferior a algumas horas pode levar a dificuldades inadequadas de síntese e detecção de PS marcado 5,25. Por outro lado, estender o tratamento além de 3 dias corre o risco de translocação de PS das folhas para o rizoma, o que pode distorcer os resultados experimentais. Portanto, um período de rotulagem intermediário de 3 dias é selecionado para minimizar a interferência de órgãos - particularmente para métodos de pulverização de folhas e rotulagem de rizomas - garantindo assim resultados experimentais mais precisos.
Estudos anteriores de marcação isotópica em Nicotiana tabacum26,27 e Brassica napus28 mostraram absorção e integração bem-sucedida de 13C6-Glucose nos tecidos vegetais. Em nossa pesquisa, nos concentramos em mudas de PPY de 2 anos cultivadas hidroponicamente, implementando tratamentos de alimentação com 13C6-Glucose para folhas, rizomas e feixes vasculares do caule, juntamente com tratamentos de controle sem alimentação. Usando a detecção de LC-MS, descobrimos que, no terceiro dia após a marcação, a relação 13C/12C nos rizomas dos tratamentos de alimentação com feixe vascular do tronco e rizoma foi significativamente maior do que nos controles sem alimentação, confirmando a assimilação efetiva de 13C6-glicose e o sucesso de nossa abordagem de marcação (Figura 2). Em nosso estudo, analisamos simultaneamente quatro tipos de razões de pico de íons isotópicos para moléculas PS VII e PS II em quatro órgãos diferentes de PPY: (M + 1) - / M −, (M + 2) - / M −, (M + 3) - / M − e (M + 4) - / M −. É importante ressaltar que observamos que no tratamento de marcação foliar, as proporções da molécula PS VII (M+2) −/M− nas folhas foram notavelmente maiores do que no tratamento não alimentar. A proporção de moléculas PS VII (M + 2) - / M - nas folhas sob o rizoma e o tratamento sem alimentação sem diferença ( Figura 3B ). Além disso, em comparação com o tratamento não alimentar, a proporção da molécula de saponinas Paris II (PS II) (M + 2) - / M - nas folhas sob tratamento de alimentação foliar sem diferença significativa, e as proporções de moléculas PS II (M + 3) - / M - nas folhas sob tratamento de alimentação foliar foram menores ( Figura 3G ). Os tratamentos de marcação do feixe vascular do caule e do rizoma exibiram diferenças significativas nas proporções de moléculas PS II (M + 1) - / M - e (M + 4) - / M - em rizomas em comparação com o tratamento sem alimentação ( Figura 3E , H ).
Ao adaptar essa abordagem a outras plantas medicinais, é crucial selecionar compostos marcadores adaptados aos precursores dos metabólitos secundários primários da planta, garantindo a especificidade do marcador. Se o composto-alvo for sintetizado principalmente no caule, o composto de marcação deve ser capaz de ser eficientemente transportado e metabolizado no caule. Reavalie a via de síntese se as proporções isotópicas esperadas, como (M + 2) - / M - para PS VII, estiverem ausentes, confirmando a adequação dos compostos de marcação. A concentração do composto de marcação na solução nutritiva pode precisar de ajuste para garantir a absorção e integração adequadas nos compostos-alvo dentro do órgão desejado. Os parâmetros de detecção de LC-MS podem exigir otimização para detectar os metabólitos específicos marcados de interesse de forma eficaz. Isso pode envolver o ajuste das configurações de espectrometria de massa, como o modo de ionização, para aumentar a sensibilidade e a especificidade dos compostos exclusivos da espécie de planta e do órgão sob investigação. Se as proporções de 13C / 12C não forem detectadas nos rizomas dos tratamentos de marcação de feixe vascular do caule e rizoma, a concentração de 13C6-glicose na solução nutritiva de Hoagland e a duração da marcação devem ser aumentadas até que a detecção seja possível. Os métodos de alimentação e técnicas analíticas de 13C6-Glicose estabelecidos neste estudo devem orientar a análise e interpretação dos resultados para identificar os órgãos de síntese de metabólitos secundários em várias plantas medicinais.
Os tratamentos de alimentação e não alimentação com 13C6-glicose para folhas, rizomas e feixes vasculares do caule neste experimento oferecem maior especificidade na identificação dos órgãos de síntese de metabólitos secundários em comparação com os métodos tradicionais de marcação de isótopos de carbono. No entanto, os desafios permanecem. Uma limitação importante é a ausência de um prazo único de detecção de rotulagem adequado para todas as plantas medicinais. A seleção de um período de tempo ideal aumenta a eficácia da rotulagem. Além disso, o uso de razões para analisar os resultados complica a diferenciação das localizações dos grupos funcionais em isômeros grandes e complexos. Assim, uma revisão completa da literatura e experimentos preliminares são aconselhados antes de empregar esta metodologia. Essa estratégia não apenas garante precisão e eficiência, mas também tem implicações significativas para a biologia vegetal e a farmacologia. A integração deste método com a espectroscopia de ressonância magnética nuclear, uma técnica líder para analisar estruturas de compostos orgânicos, permite a identificação precisa de 13locais de marcação de C. Este método abre caminho para explorar as vias biossintéticas de metabólitos secundários de plantas, apresentando uma abordagem detalhada e eficaz para determinar a especificidade de órgãos na síntese de metabólitos secundários em plantas medicinais.
Divulgações
Os autores declaram não haver interesses financeiros concorrentes.
Agradecimentos
Este trabalho foi financiado pelo Programa da Juventude da Fundação Nacional de Ciências Naturais da China (nº 82304670).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 0,1% de água de ácido fórmico | Chengdu Kelong Reagente Químico Fábrica | 44890 | |
| 13C6-Glicose em pó | MERCK | 110187-42-3 | |
| Acetonitrila | Chengdu Kelong Reagente Químico Fábrica | 44890 | |
| FRASCOS DE AMOSTRADOR AUTOMÁTICO | Biosharp Biotechnology Company | 44866 | |
| BEH C18 coluna | Águas, Milfor, MA | 1.7μ m,2.1*100 mm | |
| Limpador ultrassônico CNC | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM software | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM software | Thermo Scientific,Fremont,CA | 3 | |
| Forno | DHG-9146A | ||
| Balança analítica eletrônica | Sedolis Scientific Instruments Beijing Co., Ltd | SOP | |
| Etanol | Fábrica de Reagentes Químicos Chengdu Kelong | 44955 | |
| Moedor rápido de amostra totalmente automático | Xangai Jingxin Technology | Tissuelyser-48 | |
| Espectrômetro de massa de proporção de isótopos estáveis por cromatografia gasosa | Thermo Fisher | Delta V Advantage | |
| Solução Hoagland | Sigma-Aldrich | H2295-1L | |
| Tanque hidropônico | JRD | 1020421 | |
| Software Isodat | Thermo Fisher Scientific | 3 | |
| Cromatografia líquida de alta resolução espectrometria de massa | Tecnologia Agilent | Agilent 1260 -6120 | |
| Instrumento de fabricação de nitrogênio | PEAK SCIENTIFIC | Genius SQ 24 | |
| Filtro de fase orgânica | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| Bomba de oxigênio | Magic Dragon | MFL | |
| Quantum sensor | Highpoint | UPRtek | |
| Bisturi | Handskit | 11-23 | |
| Aspersão pode | CHUSHI | WJ-001 | |
| Xcalibur software | Thermo Fisher Scientific | 4.2 |
Referências
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
Reimpressões e permissões
