Apresentamos um novo dispositivo para medir as taxas de consumo de oxigênio (OCR) em culturas epiteliais pigmentares da retina (RPE). O dispositivo pode medir o OCR por semanas a fio em RPE cultivado em placas de cultura de células padrão com meio padrão, enquanto as placas estão em uma incubadora de cultura de células padrão.
Artigo de método
Monitoramento de longo prazo das taxas de consumo de oxigênio em culturas epiteliais pigmentares retinianas altamente diferenciadas e polarizadas
* These authors contributed equally
Neste artigo
Resumo
Resumo
O metabolismo mitocondrial é crítico para a função normal do epitélio pigmentar da retina (EPR), uma monocamada de células na retina importante para a sobrevivência dos fotorreceptores. A disfunção mitocondrial do EPR é uma marca registrada da degeneração macular relacionada à idade (DMRI), a principal causa de cegueira irreversível no mundo desenvolvido, e da vitreorretinopatia proliferativa (RVP), uma complicação ofuscante dos descolamentos de retina. As condições degenerativas do EPR foram bem modeladas por sistemas de cultura de EPR que são altamente diferenciados e polarizados para mimetizar o EPR in vivo . No entanto, o monitoramento das taxas de consumo de oxigênio (OCR), um proxy para a função mitocondrial, tem sido difícil em tais sistemas de cultura porque as condições que promovem a polarização e diferenciação ideais do RPE não permitem medições fáceis de OCR.
Aqui, apresentamos um novo sistema, o Resipher, para monitorar o OCR por semanas a fio em culturas de EPR bem diferenciadas, mantendo o EPR em substratos de crescimento ideais e meios de cultura fisiológicos em uma incubadora de cultura de células padrão. Este sistema calcula o OCR medindo o gradiente de concentração de oxigênio presente no meio acima das células. Discutimos as vantagens deste sistema sobre outros métodos para detectar OCR e como configurar o sistema para medir OCR em culturas de EPR. Abordamos as principais dicas e truques para usar o sistema, cuidados sobre a interpretação dos dados e diretrizes para solucionar problemas de resultados inesperados.
Também fornecemos uma calculadora on-line para extrapolar o nível de hipóxia, normóxia ou hiperóxia que as culturas de EPR experimentam com base no gradiente de oxigênio no meio acima das células detectadas pelo sistema. Finalmente, revisamos duas aplicações do sistema, medindo o estado metabólico das células RPE em um modelo PVR e entendendo como o RPE se adapta metabolicamente à hipóxia. Prevemos que o uso deste sistema em culturas de EPR altamente polarizadas e diferenciadas aumentará nossa compreensão do metabolismo mitocondrial de EPR, tanto em estados fisiológicos quanto em estados de doença.
Introdução
O epitélio pigmentar da retina (EPR) é uma monocamada de células epiteliais funcionalmente pós-mitóticas e altamente polarizadas que formam uma barreira entre os fotorreceptores sensíveis à luz na retina e sua circulação sanguínea, um leito capilar denominado coriocapilar. Como o papel dos neurônios que sustentam a glia, o EPR realiza inúmeras funções para apoiar os fotorreceptores, incluindo fagocitose dos segmentos externos dos fotorreceptores, transporte de nutrientes e suporte metabólico para fotorreceptores e secreção de fatores essenciais de crescimento, todos críticos para manter a função visual.
A degeneração do EPR está subjacente a vários distúrbios degenerativos comuns da visão. Na degeneração macular relacionada à idade (DMRI), uma das causas mais comuns de perda de visão incurável no mundo, o EPR morre e, portanto, os fotorreceptores sobrejacentes sofrem uma degeneração secundária. Na vitreorretinopatia proliferativa (PVR), o EPR sai de seu estado pós-mitótico normalmente quiescente, proliferando e se desdiferenciando em um estado mesenquimal (a chamada transição epitelial para mesenquimal [EMT]) com alterações em seu metabolismo. A desdiferenciação do EPR causa uma perda de suporte do EPR para os fotorreceptores, ao mesmo tempo em que desencadeia um estado mais fibrótico. Isso resulta tanto na degeneração dos fotorreceptores quanto na cicatrização induzida pelo EPR, que desencadeiam perda de visão 1,2.
A maior parte do suporte do EPR aos fotorreceptores é metabólico, e a desregulação metabólica é um fator crítico em várias doenças da retina, incluindo DMRI e PVR. O EPR serve como uma barreira regulatória entre os fotorreceptores e sua fonte de oxigênio e nutrientes, os coriocapilares. Assim, o que o EPR escolhe metabolizar versus o que o EPR escolhe passar do coriocapilar para os fotorreceptores governa fortemente o metabolismo e a sobrevivência dos fotorreceptores. Numerosos estudos mostraram que o EPR é fortemente dependente do metabolismo mitocondrial para sua saúde normal e que os fotorreceptores dependem fortemente da glicólise3. Isso introduziu o conceito de estados metabólicos complementares e entrelaçados entre os fotorreceptores e o EPR. Especificamente, o EPR reduz seu metabolismo de substratos metabólicos fotorreceptores preferidos e, em vez disso, utiliza os subprodutos do metabolismo dos fotorreceptores combinados com os metabólitos que os fotorreceptores não consomem. Em doenças como RVP e DMRI, as evidências sugerem fortemente que o EPR se torna mais glicolítico e menos dependente do metabolismo mitocondrial; essa mudança para a glicólise do EPR pode privar os fotorreceptores dos metabólitos de que necessita, desencadeando a degeneração 4,5,6. Dado o quão interdependentes são o EPR e o metabolismo dos fotorreceptores e o quanto o metabolismo alterado está subjacente à doença da retina, há um forte interesse em modelar e manipular o metabolismo do EPR para fins terapêuticos.
Embora o estudo do metabolismo mitocondrial do EPR in vivo seja ideal, muitos aspectos do metabolismo mitocondrial do EPR só podem ser investigados na prática em um sistema de cultura in vitro. Um progresso significativo em direção a culturas de EPR de alta fidelidade foi feito nas últimas décadas, a ponto de as culturas de EPR mais cuidadosamente preparadas agora estarem sendo usadas para terapia de reposição celular em ensaios clínicos em humanos7. Para manter essas culturas de alta fidelidade, o RPE precisa ser cultivado em substratos específicos em meios específicos por meses antes da experimentação. Com essas condições, as culturas de EPR são diferenciadas e polarizadas ao máximo, aproximando-se do EPR in vivo. Infelizmente, não há nenhum equipamento atualmente disponível que possa medir o metabolismo mitocondrial especificamente a partir do EPR in vivo. Embora o monitoramento de oxigênio da rede capilar da retina tenha sido obtido in vivo usando oximetria de ressonância paramagnética eletrônica (EPR)8, isso não é possível para a análise de RPE. As diferenças entre o metabolismo do EPR in vivo e in vitro não são bem descritas, mas as culturas de EPR demonstraram ter alta atividade mitocondrial, semelhante ao EPR in vivo 3,9, sugerindo que uma visão significativa do metabolismo mitocondrial do EPR pode ser obtida usando culturas de EPR de alta fidelidade.
Como todo metabolismo mitocondrial leva ao consumo de oxigênio, medir as taxas de consumo de oxigênio (OCR) do EPR é um proxy fiel para o metabolismo mitocondrial. Medir o OCR em culturas de EPR tem sido difícil, pois as condições que promovem a polarização e diferenciação máximas do EPR muitas vezes impedem medições precisas de OCR de longo prazo com as técnicas atualmente disponíveis, como o Seahorse Analyzer. Neste artigo de métodos, é introduzido um novo dispositivo, denominado Resipher (doravante denominado "o sistema"), que permite a medição contínua de OCR ao longo de semanas em RPE cultivado sob condições que promovem ao máximo a polarização e a diferenciação. A facilidade com que o OCR pode ser medido por este sistema em condições de cultura de EPR que promovem ao máximo a diferenciação e polarização de EPR é única entre os dispositivos de medição de OCR existentes.
Este artigo fornece dicas e truques para usar o sistema com culturas de EPR, seguido por uma demonstração de duas aplicações específicas. Primeiro, o EMT do RPE, imitando o PVR, é desencadeado pela exposição ao fator de crescimento transformador beta (TGFβ) 1 , 10 , 11 , 12 . O sistema é usado para monitorar como o metabolismo do EPR evolui durante o processo de EMT. Em segundo lugar, o papel da hipóxia no metabolismo do EPR é explorado usando este sistema. A hipóxia é um importante contribuinte para a patogênese da DMRI, pois a coriocapilar diminui com a idade13,14. A combinação desse sistema com câmaras de hipóxia permite modelar o metabolismo mitocondrial alterado do EPR com a hipóxia sutil que acompanha o envelhecimento. Finalmente, uma calculadora online usando dados do Resipher é introduzida para permitir determinar se as culturas de EPR estão em condições hipóxicas, normóxicas ou hiperóxicas. Essas informações são críticas para tirar conclusões sobre o metabolismo do EPR a partir de estudos de cultura de EPR in vitro.
Protocolo
Para protocolos para estabelecer culturas primárias humanas ou iPSC-RPE, consulte as seguintes referências 15,16,17,18. A aquisição e o uso de tecido humano para esses protocolos foram revisados e permitidos pelo Conselho de Revisão Institucional da Universidade de Michigan (HUM00105486).
1. Aplicação geral do sistema à cultura de EPR
- Células-tronco pluripotentes induzidas por humanos (iPSC) derivadas de RPE ou células primárias de RPE humanas em placas de 96 poços compatíveis com o sistema.
- Assumindo culturas maduras já existentes cultivadas em placas de cultura de células de 24 poços, lave as células com solução salina tamponada com fosfato (PBS) uma vez e, em seguida, adicione 500 μL de tripsina-EDTA a 0,25% (Tabela de Materiais). Incube por 10-40 min em uma incubadora de cultura de células, verificando a cada 5-10 min até que as células estejam arredondadas e quase prontas para se soltar.
- Pipete suavemente o meio sobre as células para separá-las do plástico de cultura de células, seguido de transferência para 3x o volume de meio de cultura de células (1.500 μL por 24 poços), girando em uma centrífuga a 250 × g por 5 min em temperatura ambiente.
NOTA: A receita para meios de cultura de células RPE está detalhada na Tabela 1 e disponível nas referências publicadas anteriormente 9,15,16,17,18. - Ressuspenda as células em meios de cultura de células RPE com 15% de soro fetal bovino (FBS) e conte as células com um hemocitômetro.
- Semear 74.000 células para cada poço de uma placa de 96 poços (geralmente 225-300 × 105 células/cm2), após o revestimento com substratos de revestimento de matriz extracelular altamente especializados (Tabela de Materiais) seguindo as instruções do fabricante.
NOTA: Células de sementes apenas em uma placa compatível com Resipher (Tabela de Materiais) e apenas em poços correspondentes ao conjunto de sondas na tampa de detecção (colunas 3, 4, 9 e 10 para a tampa de 32 canais; consulte a Tabela de Materiais). A tampa de detecção do sistema está disponível com sensores de 4, 32 ou 96 canais (consulte a localização dos sensores na Figura 1A-D), e uma variedade de placas de cultura de células padrão são compatíveis. - Como os poços de borda são propensos à evaporação, o que afeta drasticamente a disponibilidade de oxigênio e, portanto, as leituras de OCR, evite semear células em todos os poços de borda (linhas A e H de uma placa de 96 poços). Além disso, adicione 200 μL de água estéril em cada um dos poços vazios da placa de 96 poços para reduzir os efeitos da evaporação.
- Mantenha a placa em uma superfície de mesa estável por 10 min para permitir que as células se assentem; em seguida, devolva-o à incubadora. Troque o meio após 24-72 h, substituindo por meios de cultura RPE padrão com 5% de FBS. Cultura por pelo menos 4 semanas, trocando de mídia 2x por semana.
NOTA: As células estão prontas para experimentação quando são pigmentadas, paralelepípedos e altamente compactas (Figura 1E).
- Configurando e adquirindo dados com o sistema
- Coloque a tampa de detecção em uma placa receptora vazia de 96 poços e, em seguida, coloque-a de volta na incubadora de cultura de células. Alinhe e monte o dispositivo na tampa de detecção e conecte-o ao hub por meio do cabo USB fornecido. Isso cria um "sanduíche" de Resipher. (Figura 2A).
- Acesse o aplicativo do site do Lucid Lab (https://lab.lucidsci.com/) e clique no botão Novo experimento no canto superior direito para criar um novo experimento.
- Nomeie o título do experimento e insira quaisquer notas experimentais relevantes para o estudo específico (por exemplo, número de passagem do iPSC-RPE que está usando).
- Crie boas condições e grupos de tratamento. Por exemplo, se estiver testando os efeitos de diferentes concentrações séricas na mídia no OCR, selecione Soro no nome do grupo e insira as concentrações de soro da mídia a serem usadas, adicionando mais valores percentuais de soro clicando no botão + . Atribua quais poços receberão uma porcentagem de soro específica e selecione um padrão de cores para esses poços. Adicione mais grupos (por exemplo, uma variável experimental diferente para testar) conforme necessário clicando no botão adicionar grupo .
- Defina a configuração da placa e selecione o dispositivo e o estilo de placa correspondentes. Clique no botão adicionar placa e escolha Dispositivo; Selecione o tipo de placa. Selecione o tratamento e clique no poço correspondente.
- Clique no botão Iniciar agora para iniciar o experimento. Verifique se o indicador no website e o LED no Hub estão verdes sólidos.
- Deixe o sistema funcionar por 15 a 60 minutos para garantir que cada sensor esteja devidamente calibrado e detecte com precisão o oxigênio atmosférico, que deve estar a uma concentração de ~ 200 μM em uma incubadora de cultura de células totalmente umidificada com 5% de CO2 (Figura 2Bi).
NOTA: Se algum dos sensores estiver mais de 20% fora da média dos outros sensores em uma configuração padrão de incubadora de cultura de células, considere excluir esse poço na análise de dados, pois o sensor está com defeito (Figura 2Bii).
NOTA: Se todos os sensores estiverem mais de 20% fora da média dos outros sensores e do O2 atmosférico esperado relatado como 200 μM em uma configuração padrão de incubadora de cultura de células, a tampa de detecção foi usada muitas vezes; substitua-o por uma nova tampa de detecção (Figura 2Biii).
NOTA: Obter as leituras de O2 no ar antes de iniciar um experimento melhora significativamente a solução de problemas posterior. Se um poço específico aparecer como um outlier após a realização de um experimento e esse poço tiver um sensor que estava fora de calibração, o problema pode estar no sensor, não na réplica biológica. - Remova o dispositivo da tampa de detecção (mas não desconecte o cabo USB do dispositivo). Coloque o dispositivo de cabeça para baixo na incubadora para permitir que o motor do dispositivo seja reiniciado. Não reutilize o dispositivo até que todos os sons do motor tenham parado (aproximadamente 20-30 s).
NOTA: É importante manter o dispositivo conectado ao hub por meio do cabo USB o tempo todo durante um experimento, mesmo quando o dispositivo estiver fora da tampa de detecção. Isso permite que o dispositivo monitore e relate continuamente o ambiente da incubadora de cultura de células. - Coloque a placa com a tampa de detecção de volta na capa de cultura de células, junto com uma placa de 96 poços contendo as culturas de EPR. Troque o meio na placa com culturas de EPR com o mesmo meio e o mesmo volume para todos os poços para obter valores de OCR de linha de base para cada poço. Certifique-se de encher todos os poços sem EPR com água estéril para ajudar a evitar a evaporação.
NOTA: Em geral, recomendamos 60-100 μL de meios de cultura RPE por 96 poços, com base em dados que demonstram que volumes de meio mais baixos levam à rápida depleção de nutrientes, mas volumes de meio mais altos levam à hipóxia inadvertida9. - Transfira a tampa de detecção para a placa que contém as culturas de células e a tampa padrão (sem reserva) da placa que contém as culturas de células para a placa receptora vazia de 96 poços para manter a esterilidade da tampa padrão, que será necessária em vários pontos durante a experimentação.
- Coloque a placa com culturas de células e a tampa de detecção de volta na incubadora de cultura de células. Mais uma vez, alinhe e monte o dispositivo na tampa de detecção e conecte-o ao hub através do cabo USB fornecido (montando o "sanduíche"). Verifique se os indicadores na interface do site e no Hub estão todos verdes sólidos.
NOTA: Os dados de concentração de O2 aparecerão imediatamente, enquanto os dados de OCR só aparecerão depois que dados suficientes de O2 forem coletados, aproximadamente 1 h. - Deixe o dispositivo medir o OCR em cada poço por pelo menos 12-24 h para capturar um OCR de linha de base.
NOTA: O OCR de linha de base será diferente dependendo de muitos fatores, incluindo o tipo de mídia que está sendo aplicada às células. Na Figura 2C, os meios de cultura RPE padrão com diferentes quantidades de FBS (0%, 5%, 15%) têm valores de OCR ligeiramente diferentes. Além disso, as culturas com mais FBS podem sustentar a atividade mitocondrial por mais tempo após a aplicação do meio às células antes que o OCR caia devido à depleção de metabólitos mitocondriais (lado direito da curva). - Depois que um OCR de linha de base for obtido, repita as etapas 1.2.8 a 1.2.12, mas altere o meio na placa com culturas de EPR para as condições experimentais (normalmente, ± um medicamento ou uma comparação de diferentes condições de meio).
NOTA: As alterações de mídia de rotina também podem ser tratadas da mesma maneira. Sempre que a incubadora de cultura de células for aberta, espere uma interrupção significativa nas leituras de OCR, pois elas dependem da temperatura, umidade, concentrações de CO2 e outros fatores que são temporariamente interrompidos com a abertura da porta da incubadora. Durante qualquer remoção do dispositivo da tampa de detecção, não há necessidade de pausar o experimento online. Depois que a porta da incubadora de cultura de células é aberta ou o meio é trocado na placa que está sendo sondada, geralmente leva de 2 a 4 horas para restabelecer o gradiente de oxigênio e começar a medir um OCR preciso. - Após a obtenção dos dados, subtraia o OCR basal para cada poço do OCR após a aplicação da condição experimental, para determinar o Delta OCR desencadeado pelo tratamento.
- Após a conclusão do experimento, esterilize e reutilize a tampa de detecção (que pode ser reutilizada de 3 a 5 vezes, embora o desempenho diminua com o uso repetido). Para esterilizar a tampa de detecção, mergulhe toda a tampa em etanol a 70% por 10 min em uma coifa de cultura de células, depois remova da imersão e descanse no gabinete com o lado da sonda para cima (evite tocar nas delicadas pontas da sonda) e deixe o etanol e a água evaporarem totalmente antes de colocar a tampa de detecção em uma nova placa receptora de 96 poços.
- Tire imagens de campo claro para normalizar os valores de OCR para o número da célula.
NOTA: O acúmulo de melanina no EPR facilita a normalização do OCR com base em uma simples contagem do número de células em culturas vivas usando um microscópio de campo claro.- Remova o dispositivo e coloque-o de cabeça para baixo, como na etapa 1.2.8. Na coifa de cultura de células, troque a tampa de detecção na placa de cultura RPE por uma tampa padrão de 96 poços.
- Usando um microscópio invertido padrão, tire imagens de campo claro de cada poço.
NOTA: Mantenha as imagens da área um consistentes entre os poços (localização relativa no poço e ampliação da objetiva). - Na capela de cultura de células, substitua a tampa padrão de 96 poços na placa de cultura de EPR pela tampa de detecção e coloque-a de volta na incubadora para monitoramento adicional.
- Conte o número de células em cada poço com o ImageJ ou outro software.
- Normalize o OCR para o número de células nos diferentes grupos experimentais. O sistema relata o OCR em unidades de fmol∙(mm2)-1∙s-1-o consumo por área unitária da seção transversal. Portanto, para normalizar o OCR por célula, divida o OCR pela contagem de células por mm2 (em vez da contagem de células por poço). Equivalentemente, multiplique o OCR relatado pelo sistema pela área da seção transversal do poço (cerca de 31 mm2 para uma placa padrão de 96 poços) para produzir OCR em unidades de fmol∙s-1∙well-1.
- Controles para determinação dos parâmetros bioenergéticos do EPR.
NOTA: Para garantir que o sistema e as culturas de EPR estejam respondendo às manipulações mitocondriais de maneiras previsíveis, pode-se testar certas pequenas moléculas bem estabelecidas para atingir etapas específicas da fosforilação oxidativa mitocondrial. Esses testes são análogos às etapas realizadas em um Teste de Estresse Mitocondrial usando o Seahorse Analyzer10 e fornecem um perfil bioenergético para culturas de EPR.- Cultive células RPE em 65 μL de meios de cultura RPE padrão com 5% de FBS e meça o OCR por 24 h para estabelecer uma linha de base.
- Aspire meios de cultura e adicione 65 μL de meios de cultura RPE padrão com 5% de FBS e com desacopladores mitocondriais (3 μM de cianeto de carbonila-p-trifluorometoxifenilhidrazona [FCCP] ou 500 nM Bam15, Tabela de Materiais). Incubar durante a noite.
NOTA: Os desacopladores mitocondriais devem aumentar significativamente o OCR. Certifique-se de que o OCR aumentado não seja igual ou próximo ao OCR máximo teórico limitado à difusão de aproximadamente 275 fmol∙(mm2)-1∙s-1 para 65 μL de meio em condições de cultura padrão. O OCR máximo para diferentes volumes de mídia comumente usados está disponível na seção Discussão. - Após a incubação durante a noite, aspire o meio com desacopladores mitocondriais e substitua por 65 μL de meio de cultura RPE padrão com 5% de FBS. Observe a placa por mais 24 h para determinar a recuperação do RPE OCR após a remoção dos medicamentos.
- Calcule os efeitos dos desacopladores no OCR subtraindo o OCR obtido após o tratamento do OCR obtido antes do tratamento (Figura 3).
NOTA: O aumento do OCR com a adição de desacopladores mitocondriais significa a capacidade respiratória mitocondrial de reserva da célula19. - Para medir outros parâmetros mitocondriais normalmente capturados durante o Teste de Estresse Mitocondrial com um Analisador de Cavalos-Marinhos, execute as mesmas etapas acima com os seguintes compostos (Figura 4).
- Use oligomicina a 1 μM para avaliar a respiração ligada ao ATP.
- Use antimicina A e rotenona a 1 μM para avaliar qualquer respiração não mitocondrial.
NOTA: FCCP, oligomicina, antimicina A e rotenona podem ser tóxicos para o EPR. Se induzirem morte celular significativa, as medições de OCR não serão precisas. Assim, as medições de OCR devem ser obtidas apenas em um momento em que não haja morte celular óbvia, geralmente nas primeiras horas após a adição dos medicamentos (Figura 4).
2. Medição de alterações no metabolismo mitocondrial em EPR submetidos a EMT
- Siga o mesmo protocolo descrito na seção 1.2.
- Para induzir a EMT após obter as medições de OCR basais, adicione TGF-β2 (10 ng/mL) às culturas de EPR e monitore o OCR por 3 semanas. Atualize a mídia com TGFβ2 novo a cada 2-3 dias (Figura 5).
- Pelo menos 2x por semana, obtenha imagens de campo claro como na seção 1.3 para garantir que a contagem de células não esteja mudando. Se a contagem mudar, normalize os valores de OCR para o número de células em cada poço.
NOTA: O mesmo protocolo pode ser usado para outros indutores de EMT para monitorar alterações de OCR de longo prazo durante todo o período de cultura enquanto as células estão na incubadora.
3. Medição de alterações no metabolismo mitocondrial em EPR hipóxico
NOTA: A aplicação do sistema em condições hipóxicas, normóxicas ou hiperóxicas é a mesma da seção 1.2, exceto para manter o "sanduíche" em uma câmara de hipóxia (Tabela de Materiais) colocada em uma incubadora de cultura de células padrão.
- Faça um furo na tampa da câmara de hipóxia para montar o cabo USB tipo c e selá-lo com silicone ou massa (Figura 6A).
- Monte a tampa de detecção com a placa de cultura de células no exaustor e transfira-as para a câmara de hipóxia.
- Configure o "sanduíche" (placa, tampa de detecção, dispositivo) na câmara de hipóxia. Coloque também na câmara de hipóxia uma placa de Petri com água estéril para ajudar a manter a umidade. Por fim, coloque um sensor portátil de O2 na câmara de hipóxia (Tabela de Materiais). A configuração é exibida na Figura 6A.
- Sele a câmara e conecte-a a um cilindro de gás com concentração hipóxica de O2 e concentração padrão de cultura de células de CO2 (por exemplo, 1% de O2 e 5% de CO2).
- Troque lentamente o ar na câmara de hipóxia pelo ar de 1% O2/5% CO2 no cilindro até que o sensor de oxigênio mostre a concentração de O2 desejada, geralmente entre 1% e 10%.
NOTA: O sensor portátil de O2 requer tempo para se equilibrar, portanto, o gás do cilindro deve ser adicionado à câmara de hipóxia lentamente. - Feche as válvulas de entrada e saída da câmara de hipóxia e transfira toda a câmara para a incubadora.
- Configure e inicie o experimento como na seção 1.2.
NOTA: O meio de pré-equilíbrio na câmara de hipóxia antes de adicionar às células pode diminuir o tempo que leva para a monocamada celular experimentar hipóxia verdadeira (Figura 6B).
4. Calcular a concentração de O2 na monocamada de EPR para determinar se as células estão em condições hipóxicas, normóxicas ou hiperóxicas
NOTA: O sistema mede a concentração de O2 entre aproximadamente 1 a 1,5 mm acima do fundo do poço por padrão, assumindo que uma placa padrão é usada com a tampa de detecção recomendada correspondente para cultura de monocamada (consulte https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf). Embora a concentração de O2 na monocamada da célula não seja medida diretamente, os dados do sistema podem ser usados para estimar a concentração de O2 no nível do RPE. Especificamente, sabendo que existe um gradiente de oxigênio entre a parte superior da coluna de mídia, onde O2 está disponível, e a parte inferior da coluna de mídia, onde O2 está sendo consumido, as Leis de Difusão de Fick podem ser combinadas com a taxa de OCR medida para extrapolar os níveis de O2 na monocamada da célula. Uma calculadora para essa estimativa é fornecida online: https://lucidsci.com/notes?entry=oxygen_diffusion (e na forma de um caderno interativo de código aberto em https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture, o código-fonte desta calculadora pode ser encontrado em https://github.com/lucidsci/oxygen-diffusion-calculator).
- Assim que a calculadora for acessada, insira o volume do meio em microlitros (por exemplo, 100 μL).
- Insira a concentração de oxigênio saturado na interface ar-líquido (a parte superior da coluna de mídia acima das células). Este valor é ~185 μM à pressão atmosférica padrão com 5% de O2 e 95% de umidade.
NOTA: Isso também pode ser determinado a partir de medições de O2 por sondas do sistema em poços somente de mídia (sem células no fundo do poço). - Na entrada Flux, insira o Flux/OCR relatado pelo sistema.
- Com base nesses valores, a concentração de oxigênio no estado estacionário em cada altura na coluna de mídia é calculada e mostrada no gráfico (Figura 7). O eixo x da parcela é a altura em mm acima do fundo do poço. O eixo y é a concentração calculada de O2 a essa altura (em μM).
- A concentração de O2 no fundo do poço (onde estão as células) é indicada na linha abaixo do gráfico.
NOTA: Em geral, estima-se que o EPR in vivo tenha uma concentração de O2 de 4-9%. Cada 10 μM de O2 em condições atmosféricas padrão corresponde a aproximadamente 1% de O2. Assim, a normóxia ao nível das células é de aproximadamente 40-90 μM de O2. Quanto mais alta a coluna de mídia, menor será o O2 no nível da monocamadaRPE 9. Assim, se as células parecerem estar em condições hipóxicas, o volume do meio pode ser reduzido. Se as células parecerem estar em condições hiperóxicas, o volume do meio pode ser aumentado.
Resultados
A configuração "sanduíche" para o experimento Resipher é demonstrada na Figura 2A. Tampas de detecção com 32 sondas correspondentes às colunas 3, 4, 9 e 10 na placa de 96 poços ficam entre a placa da célula e o dispositivo. Depois de conectar ao Hub, o dispositivo ativa os motores para mover a tampa de detecção para cima e para baixo, medindo a concentração de O2 na coluna de mídia em uma faixa de alturas acima da monocamada da célula (normalmente 1-1.5 mm). O gradiente de O2 é, portanto, medido continuamente registrando as concentrações de O2 nessas várias alturas acima da monocamada. A partir de medições de gradiente e aplicando as Leis de Difusão de Fick, o dispositivo calcula automaticamente o fluxo de oxigênio de cima da faixa de altura da sonda para abaixo dela, que é a taxa de consumo de oxigênio (OCR) da monocamada da célula. A tampa de detecção detecta O2 independentemente de um poço estar vazio (somente ar), cheio de meio, mas sem células (somente meio) ou ter meio sobreposto a uma monocamada de célula (meio + células). Como uma verificação de qualidade para verificar o funcionamento dos sensores na tampa de detecção, a tampa pode primeiro ser colocada sobre uma placa vazia (somente ar) de 96 poços. Se cada sensor para cada poço estiver funcionando, o O2 relatado deve ser consistente entre si e próximo a 200 μM, que está próximo do O2 esperado na atmosfera sob condições padrão de incubadora de cultura de células. A Figura 2Bi mostra as leituras de O2 de oito sondas no ar atmosférico (relatadas como a concentração em μM, uma vez que a conversão de unidade padrão assume que as sondas estão em líquido a 37 ° C). Essas leituras são apertadas (±5%) e próximas a 200 μM, o que implica que todos os oito sensores estão funcionando bem. Na Figura 2Bii, a mesma tampa de detecção da Figura 2Bi está sendo usada, mas um dispositivo diferente é implantado. Aqui, dois sensores de dispositivo defeituosos são captados com base em curvas discrepantes (em vermelho). Isso sugere que o dispositivo é problemático e precisa ser substituído (ou os poços correspondentes a sensores defeituosos devem ser deixados de fora do experimento). Na Figura 2Biii, o mesmo dispositivo da Figura 2Bi é usado, mas duas tampas de detecção diferentes são empregadas. A tampa1 (lado esquerdo) tem alta variabilidade entre as sondas, sugerindo que o material sensor da tampa está degradado, geralmente porque a tampa foi usada muitas vezes. Lid2 (lado direito) é novo, demonstrando leituras apertadas e agrupadas em torno de 200 μM. Usando o sistema, pode-se analisar o efeito da suplementação sérica no meio no metabolismo mitocondrial do EPR. Como visto na Figura 2C, o aumento dos níveis de suplementação sérica desencadeou níveis sutilmente mais altos de RPE OCR. É importante ressaltar que a maior suplementação sérica também permitiu que o metabolismo mitocondrial fosse sustentado por um período mais longo. Mesmo sem qualquer suplementação sérica, o OCR é mantido por aproximadamente 90 h antes que a exaustão dos substratos metabólicos mitocondriais desencadeie uma queda no OCR. Assim, as trocas de meio com 100 μL por poço 96 a cada 3,5 dias (duas vezes por semana) são suficientes, mesmo com meio sem soro, para evitar a depleção de nutrientes em culturas de EPR maduras, altamente diferenciadas e polarizadas.
As taxas de OCR podem variar significativamente de poço para poço, mesmo em culturas onde todos os poços parecem ter o mesmo número de células e morfologia. Assim, para isolar se os aumentos no OCR são atribuíveis a uma condição experimental ou simplesmente diferenças de linha de base no OCR entre os poços, a normalização é necessária. O primeiro passo na normalização é garantir que as contagens de células entre os poços sejam consistentes, conforme descrito na seção 1.3 do protocolo. Se as contagens de células variarem entre os poços, o OCR do poço precisará ser normalizado para o número de células. Em geral, para culturas de EPR altamente maduras e polarizadas, as contagens de células entre os poços são notavelmente consistentes9. Mesmo nesses cenários, o OCR de linha de base entre os poços pode variar, conforme demonstrado na Figura 3A. Aqui, o OCR basal, antes de qualquer tratamento, varia em até 100 fmol/mm2/s entre os poços. Ao medir o OCR antes do tratamento, pode-se determinar o Delta OCR desencadeado pelo tratamento experimental e isolá-lo de quaisquer diferenças no OCR basal entre os poços. Nesse caso, os tratamentos estão comparando dois desacopladores mitocondriais (FCCP vs. BAM15) com controle veicular. Uma vez que o OCR basal é utilizado para normalização, os efeitos do tratamento específicos para os desacopladores versus controle tornam-se óbvios (compare a Figura 3B com a Figura 3C). Geralmente, os experimentos que podem alterar o OCR devem ser divididos em pelo menos duas fases: OCR inicial para estabelecer um OCR de linha de base e uma fase de tratamento para determinar o OCR Delta.
Para confirmar que as culturas de EPR respondem da maneira esperada à manipulação mitocondrial e estabelecer um perfil bioenergético para EPR, as ferramentas clássicas de pequenas moléculas usadas no Teste de Estresse Mitocondrial no Seahorse Analyzer da Agilent podem ser empregadas com o sistema. Primeiro, a capacidade mitocondrial sobressalente pode ser medida utilizando um desacoplador mitocondrial19. Em culturas de EPR, o desacoplador mitocondrial BAM15 mostra um aumento muito mais robusto e sustentado no OCR em comparação com o FCCP ( Figura 3C , D ), sem induzir toxicidade. Outros parâmetros disponíveis no Teste de Estresse Mitocondrial do Seahorse Analyzer, incluindo respiração basal, respiração ligada a ATP, vazamento de prótons e capacidade respiratória não mitocondrial, podem ser calculados usando o sistema. Enquanto o Seahorse Analyzer depende de portas de injeção para fornecer sequencialmente toxinas que inibem complexos de fosforilação oxidativa específicos para inferir os parâmetros acima, o Resipher não tem essa capacidade. No entanto, cada toxina mitocondrial pode ser adicionada a poços separados, e diferentes parâmetros respiratórios podem ser calculados com base na mudança de dobra em poços tratados com veículo. Na Figura 4A, as diferenças no OCR entre os poços tratados com o desacoplador mitocondrial BAM15, o inibidor da ATP sintase oligomicina, os inibidores do complexo I e III antimicina/rotenona e o controle do veículo (DMSO) são todos comparados. Como essas toxinas podem induzir a morte celular por longos períodos de tempo e a morte celular afetará o OCR, as leituras de OCR foram feitas após apenas algumas horas de tratamento. A Figura 4B mostra as diferenças no OCR entre o veículo e os poços tratados com cada pequena molécula mitocondrialmente ativa na forma de gráfico de barras, extrapolada dos últimos pontos de tempo na Figura 4A. Os valores de OCR na Figura 4B podem então ser usados para calcular os parâmetros bioenergéticos para a cultura de EPR, como visto na Figura 4C. Cada valor codificado por cores no perfil bioenergético na Figura 4C vem do mesmo valor codificado por cores na Figura 4B. Assim, parâmetros como respiração ligada ao ATP, vazamento de prótons, capacidade respiratória mitocondrial máxima e capacidade respiratória não mitocondrial podem ser estimados usando o sistema OCR. Um resumo do modo de ação de cada pequena molécula mitocondrialmente ativa é mostrado na Figura 4D.
Tendo demonstrado o protocolo para este sistema em culturas de RPE e experimentos de controle para testar perfis bioenergéticos de RPE, pode-se explorar aplicações experimentais do sistema para biologia e patologia de RPE. Na vitreorretinopatia proliferativa (RVP), uma condição que ocorre após descolamento de retina ou trauma ocular, o EPR sofre uma transformação dramática conhecida como transição epitelial-mesenquimal (EMT), em que o EPR altamente regular e semelhante a paralelepípedos perde suas aderências célula-célula e se transdiferencia em células mesenquimais fusifais que são contráteis e móveis 1,2. Isso desencadeia forças contráteis tangenciais na retina que podem induzir o descolamento de retina. Os indutores clássicos de EMT no EPR incluem o fator de crescimento transformador beta (TGFβ) e o fator de necrose tumoral alfa (TNFα) 10 , 11 , 12 . Das três isoformas de TGFβ de mamíferos, o TGFβ2 é o indutor mais proeminente e potente de EMT na retina1, causando um alongamento celular distinto das células RPE caracteristicamente hexagonais e aumento da expressão de marcadores mesenquimais. A resposta EMT induzida por TGFβ2 no RPE é acompanhada por uma supressão da respiração mitocondrial e um subsequente aumento na capacidade glicolítica, como demonstrado anteriormente usando um Seahorse XFe9610. Embora o Seahorse forneça perfis bioenergéticos em tempo real, ele não permite o monitoramento de OCR de longo prazo. Assim, na primeira aplicação do sistema OCR neste estudo (Figura 5), a respiração mitocondrial foi rastreada ao longo de três semanas à medida que a EMT era induzida com TGFβ2 em RPE, permitindo a modelagem in vitro da reprogramação metabólica que ocorre durante a RVP. Ao contrário da análise de ponto de tempo único do RPE EMT usando um Seahorse Analyzer, o estado metabólico do RPE submetido a EMT pode ser rastreado por várias semanas. É evidente que a exposição repetida de RPE ao TGFβ2 causa um declínio progressivo contínuo no metabolismo mitocondrial. Dados anteriores usando o Seahorse XF Analyzer indicaram que o TGFβ2 reduziu significativamente a capacidade respiratória máxima em 24h e 72h, mas não afetou os níveis basais de OCR10. O OCR basal inalterado com TGFβ2 até 72 h é corroborado pelo sistema OCR utilizado neste estudo (Figura 5). No entanto, os dados de longo prazo do sistema OCR neste estudo revelam que após 5 dias de exposição ao TGFβ2, os níveis basais de OCR começam a diminuir, com uma queda no OCR basal tornando-se mais evidente em 20 dias. Essas descobertas destacam mudanças de longo prazo no OCR basal que não foram capturadas com pontos de tempo anteriores do Seahorse.
Em uma segunda aplicação, o sistema pode ser usado para monitorar o metabolismo mitocondrial do EPR em condições hipóxicas. Como a DMRI está ligada ao afinamento e hipóxia coriocapilar13,20, a compreensão dos ajustes do EPR à hipóxia subtóxica deve fornecer informações sobre a patogênese da DMRI. Para submeter as culturas de EPR à hipóxia controlada enquanto monitora o metabolismo mitocondrial, o sistema pode ser colocado em uma câmara de hipóxia que, por sua vez, é colocada em uma incubadora de cultura de células. Para facilitar essa configuração, um pequeno orifício é perfurado na tampa de uma câmara de hipóxia, permitindo que o cabo USB do sistema alcance dentro da câmara de hipóxia. O orifício é selado com massa ou silicone (Figura 6A). Um sensor portátil de O2 pode ser colocado na câmara de hipóxia para monitorar os níveis atmosféricos de O2 e garantir que a vedação da câmara de hipóxia permaneça intacta. Usando esta configuração, a taxa de equilíbrio entre a concentração atmosférica de O2 e a concentração de O2 do meio pode ser determinada. Na Figura 6B, o meio equilibrado com o O2 atmosférico é colocado em poços individuais em uma placa de 96 poços, sem células, e introduzido em uma câmara de hipóxia contendo apenas 5% de O2 (~ 50 μM O2). Com o tempo, o meio em cada poço se equilibra com a nova concentração atmosférica. Quanto maior a altura da coluna de mídia (mais volume), mais tempo leva o equilíbrio. Com 65 μL de meio em um poço de uma placa de 96 poços, o equilíbrio com o O2 atmosférico leva aproximadamente 5 h. No entanto, o tempo de equilíbrio leva mais de 10 h quando o volume do meio é de 100-200 μL. Esses resultados ressaltam a importância de pré-equilibrar o meio com a concentração atmosférica desejada deO2 antes de aplicar o meio às células durante um experimento de hipóxia.
Para experimentos de hipóxia, é importante garantir que os níveis de O2 na câmara de hipóxia permaneçam estáveis. Manter um dos poços de borda na placa de 96 poços livre de células ou meios permitirá que um dos sensores da tampa de detecção monitore continuamente o O2 atmosférico. Na Figura 6C, esse monitoramento com um único poço exposto ao ar demonstra que a câmara de hipóxia tem um vazamento lento, de modo que, em 30 h, as células estão próximas das concentrações atmosféricas deO2 . Como controle final para experimentos de hipóxia, é importante determinar se a solubilidade de O2 difere entre meios "frescos" e "condicionados". Se a solubilidade diferir entre a mídia inicialmente colocada nas células e a mídia que esteve nas células por um período significativo de tempo, o gradiente de O2 na coluna de mídia acima das células será diferente como "condições" de mídia com o tempo sobre as células. Isso, por sua vez, afeta o cálculo do OCR. Na Figura 6D, uma placa de 96 poços com poços vazios ("ar"), poços sem células, mas com meio fresco ("novo meio") e poços sem células, mas com meio previamente incubado sobre culturas de EPR por 48 h ("meio condicionado") foi colocada pela primeira vez no O2 atmosférico para permitir o equilíbrio total. A placa foi então colocada em uma câmara de hipóxia a aproximadamente 3-4% O2 (30-40 μM) e deixada em equilíbrio. Finalmente, a placa foi novamente devolvida às concentrações atmosféricas de O2 . As curvas de concentração de O2 para novos meios e meios condicionados são idênticas, demonstrando que a solubilidade de O2 entre meios novos e condicionados é idêntica, confirmando que as mudanças na composição do meio ao longo do tempo, à medida que os nutrientes são consumidos e os subprodutos são secretados no meio, não alteram significativamente a solubilidade de O2 e, portanto, não afetam inadvertidamente o OCR.
Como a altura da coluna de mídia acima das células afeta drasticamente a disponibilidade de O2 na monocamada9 do EPR, é importante determinar se um determinado volume de meio está induzindo hipóxia, normóxia ou hiperóxia na monocamada do EPR. Usando medições do sistema, combinadas com uma calculadora online (https://lucidsci.com/notes?entry=oxygen_diffusion (e na forma de um caderno interativo de código aberto em https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture) - código-fonte desta calculadora em https://github.com/lucidsci/oxygen-diffusion-calculator), a concentração de oxigênio na monocamada RPE pode ser estimada. A Figura 7 demonstra uma captura de tela da calculadora interativa. O EPR in vivo normalmente apresenta uma concentração de O2 de 4-9%, traduzindo-se em uma concentração molar de O2 de ~ 40-90 μM.
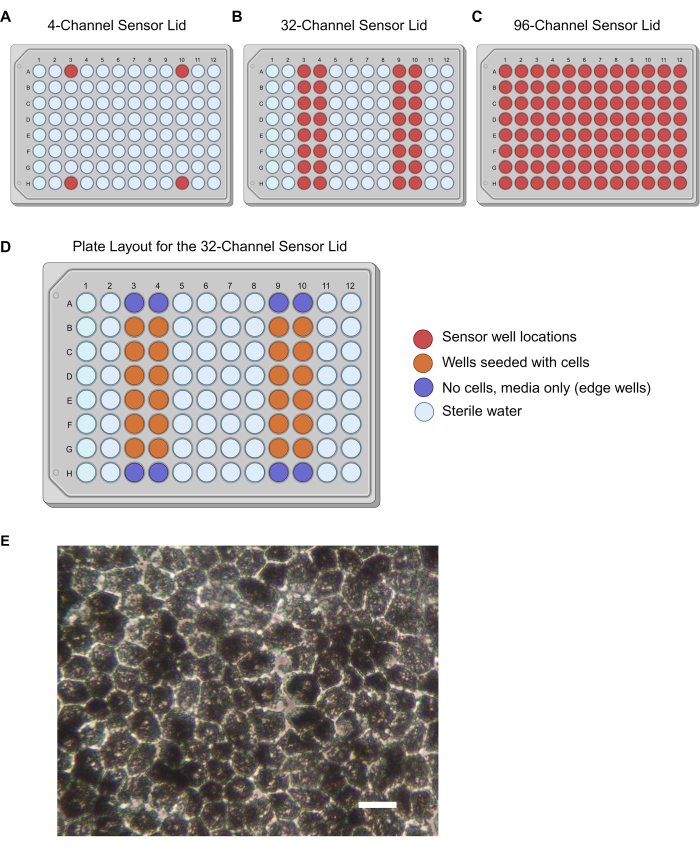
Figura 1: Localização dos sensores em diferentes tampas de detecção, layout da placa para a tampa de detecção de 32 canais e morfologia do EPR. Poços que correspondem à localização dos sensores nas diferentes tampas de detecção para as opções de tampa (A) de 4 canais, (B) 32 canais e (C) 96 canais. (D) Layout de placa recomendado para a tampa do sensor de 32 canais. Devido aos efeitos de borda, as células não devem ser semeadas nos poços de borda e, em vez disso, a mídia deve ser colocada nesses quatro poços (roxo). As células são semeadas em poços de laranja. Os poços restantes devem ser preenchidos com água estéril (azul) para evitar os efeitos da evaporação. (E) Cultura de EPR madura com células pigmentadas hexagonais, bem compactadas. Barra de escala = 20 μm. Abreviaturas: RPE = epitélio pigmentar da retina. Clique aqui para ver uma versão maior desta figura.

Figura 2: Configuração do sistema Resipher "sanduíche" e controle de qualidade. (A) A tampa de detecção substitui uma tampa de placa padrão de 96 poços e tem suas sondas inseridas nos poços correspondentes. O dispositivo em preto fica bem na tampa de detecção por meio de ímãs. As imagens no lado esquerdo da figura mostram o dispositivo e a tampa de detecção em sua orientação correta. No entanto, para as fotografias do lado direito, o dispositivo e a tampa de detecção foram girados para os lados para melhor exibir seu perfil inferior. (B) Controle de qualidade para tampas de detecção e o Dispositivo. (i, ii) A mesma tampa de detecção é colocada em uma placa receptora vazia de 96 poços (somente ar) e dois dispositivos diferentes são colocados sequencialmente na parte superior da tampa de detecção. (i) O primeiro dispositivo demonstra dados de oito sondas com baixa variabilidade e leituras de O2 ~ 200 μM, esperadas para o O2 atmosférico. (ii) O segundo dispositivo demonstra dados de oito sondas nas quais duas sondas estão lendo de forma anômala (pontos vermelhos). (iii) Um dispositivo foi usado com uma placa vazia de 96 poços (somente ar), mas com duas tampas de detecção diferentes testadas sequencialmente. Os dados de 16 sondas foram plotados, demonstrando ampla variabilidade para Lid1 (lado esquerdo) e baixa variabilidade para Lid2 (lado direito). (C) Os gráficos de OCR de culturas de EPR em meio de 100 μL com diferentes quantidades de soro foram monitorados por 120 h. As células de EPR em meio livre de soro (magenta) têm OCR mais baixo, com OCR caindo mais cedo do que meios com maiores quantidades de soro. Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina. Clique aqui para ver uma versão maior desta figura.
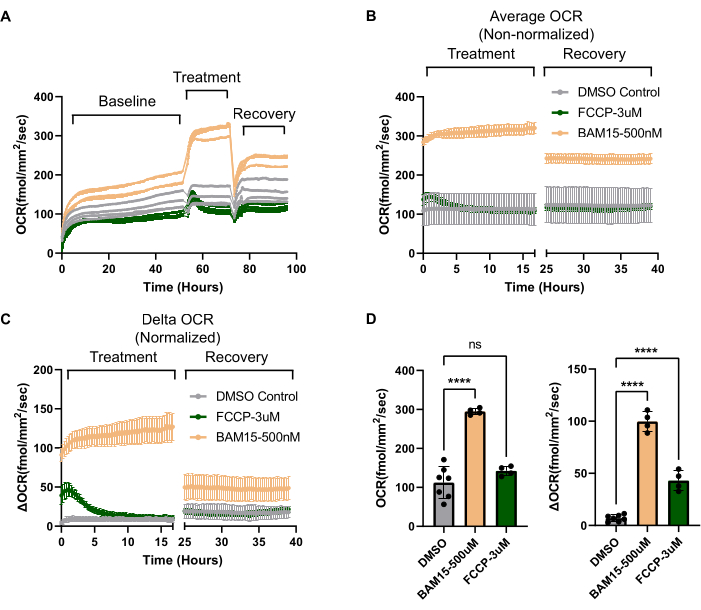
Figura 3: Efeitos a longo prazo dos desacopladores mitocondriais demonstrados exclusivamente com o sistema OCR. (A) Dados brutos de OCR ao longo do tempo (horas) destacando o OCR inicial (estabelecido ao longo de 50 h), fase de tratamento (~ 20 h após a adição de medicamentos) e fase de recuperação (~ 20 h após a lavagem do medicamento). O EPR foi tratado com dois desacopladores mitocondriais diferentes, FCCP (3 μM, N = 4) ou BAM15 (500 nM, N = 4) e comparado ao controle veicular DMSO (0,6%, N = 7). Cada traço representa um único poço. (B) OCR médio de todos os poços para cada condição em (A) plotado para as fases de tratamento e recuperação. Sem normalização (o eixo Y é OCR absoluto), é difícil ver a magnitude do efeito do tratamento com FCCP. (C) Quando cada traço de OCR é subtraído de seu OCR antes do tratamento, um Delta OCR pode ser calculado (plotado no eixo Y). Isso permite isolar os efeitos do tratamento no OCR, apesar da variabilidade no OCR basal entre os poços. Usando o Delta OCR, o efeito do FCCP torna-se aparente. Também se torna aparente o quão de curta duração é o efeito do FCCP no desacoplamento mitocondrial, em comparação com o BAM15. Finalmente, torna-se aparente que, em comparação com o FCCP, a exposição ao BAM15, mesmo após a lavagem do medicamento, cria um novo estado "adaptado" de OCR mais alto sustentado. (D) Os gráficos em (B) e (C) são exibidos em forma de gráfico de barras, permitindo a comparação direta entre dados não normalizados (gráfico da esquerda, de (B)) e normalizados (Delta OCR, gráfico da direita, de (C)). Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina; FCCP = cianeto de carbonila-p-trifluorometoxifenilhidrazona; DMSO = dimetilsulfóxido. Clique aqui para ver uma versão maior desta figura.

Figura 4: Utilizando o sistema OCR para calcular os parâmetros da bioenergética mitocondrial. (A) Utilizando as mesmas moléculas pequenas que fazem parte do Teste de Estresse Mitocondrial do Seahorse Analyzer, o OCR nas primeiras 2,5 h da fase de tratamento é representado para culturas de EPR. (Gráfico à esquerda) O inibidor da ATP-sintase oligomicina (N = 3), os inibidores do complexo I e III antimicina A / rotenona (N = 7) ou veículo, DMSO 0,4% (N = 4). (Gráfico à direita) O desacoplador mitocondrial BAM15 (N = 4) ou veículo DMSO 0,6% (N = 4). (B) Média dos três pontos finais para cada grupo de tratamento (caixas vermelhas em (A)). (C) Representação de um perfil bioenergético simulado do Teste de Estresse Mitocondrial do Analisador de Cavalos-Marinhos com base nos dados do Reiper. Os pontos de dados codificados por cores no gráfico simulado correspondem aos gráficos de barras codificados por cores em (B). Todos os parâmetros respiratórios podem ser calculados usando dados do Resipher e selecionar pequenas moléculas. (D) Diagrama do modo de ação dos reagentes usados na figura 3 e na figura 4. Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina; DMSO = dimetilsulfóxido; AA = Antimicina A; Podridão = Rotenona. Clique aqui para ver uma versão maior desta figura.

Figura 5: Monitoramento OCR de longo prazo de RPE submetido à transição epitelial-mesenquimal estimulada por TGFβ2. As culturas primárias de EPR humanas maduras foram tratadas com 10 ng/mL de TGFβ2 ou controle de veículo a cada 2-3 dias. (A) As medições de OCR em tempo real foram monitoradas por 3 semanas com (B) Quantificação do Delta OCR ao longo do tempo (Dia 19-Dia 6). N = 6-7 poços por condição, teste t não pareado, * P < 0,05. Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina; TGFβ2 = fator de crescimento transformador beta-2. Clique aqui para ver uma versão maior desta figura.
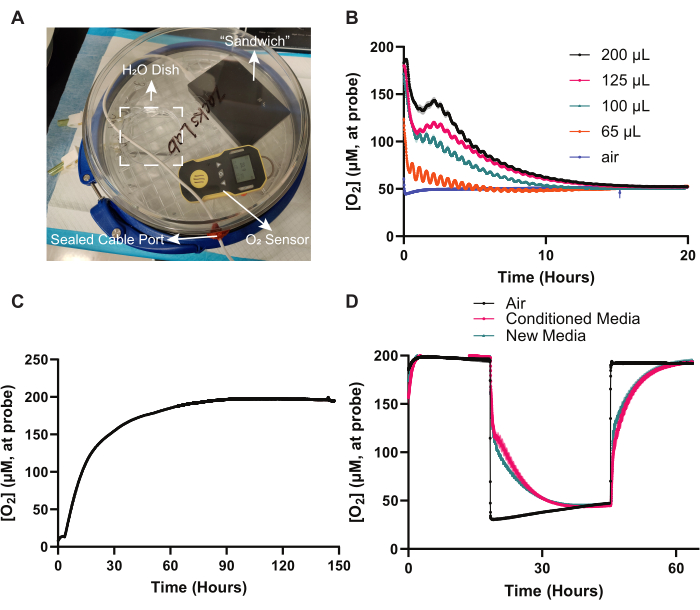
Figura 6: Monitoramento da resposta mitocondrial do EPR à hipóxia. (A) O sistema OCR "sanduíche" foi montado em uma câmara de hipóxia e o cabo USB foi conectado ao Hub por meio de um orifício perfurado na tampa e selado com graxa de silicone ou massa. Também na câmara de hipóxia há uma placa de Petri de água estéril para manter a umidade e um sensor portátil de O2 . Todo o sistema foi deixado em uma incubadora de cultura de células depois que a atmosfera da câmara de hipóxia foi substituída por uma concentração mais baixa deO2 . (B) O meio leva tempo para se equilibrar em concentrações de O2 acima da interface ar-líquido. Diferentes volumes de meios de EPR equilibrados ao O2 atmosférico foram adicionados em poços vazios (sem células) de uma placa de 96 poços. A câmara de hipóxia foi então ajustada para 5% (50 μM) O2. A concentração de O2 no meio de cada poço foi monitorada por 20 h. Poços com volumes de mídia mais altos equilibrados para 5% O2 mais lentamente do que volumes de mídia mais baixos. N = 8. (C) O sistema pode ser usado para detectar vazamentos de ar na câmara de hipóxia. A câmara de hipóxia foi montada com 1% deO2 e a tampa sensora foi colocada sobre poços vazios (somente ar). As portas de entrada e saída da câmara de hipóxia foram deixadas abertas, e a atmosfera da câmara de hipóxia foi reequilibrada para níveis atmosféricos deO2 ao longo de ~ 90 h. (D) Novos meios e sobrenadantes ("meios condicionados") têm solubilidade deO2 semelhante. Isso elimina a preocupação com a solubilidade diferencial de O2 em meios à medida que sua composição muda durante a cultura, o que afetaria a consistência das leituras de OCR ao longo do tempo. O mesmo volume (100 μL) de meio fresco ("novo meio") ou meio incubado por 48 h sobre células ("meio condicionado") foi adicionado a poços de uma placa sem células. O sistema OCR "sanduíche" foi inicialmente submetido a níveis atmosféricos deO2 , depois transferido para a câmara de hipóxia (3-5% deO2 ou 30-50 μM), depois transferido novamente para níveis atmosféricos deO2 . Os níveis de O2 no ar foram monitorados por sondas em poços vazios (somente ar). A mudança na concentração de O2 durante cada transição entre os dois tipos de meios é idêntica, mostrando que a solubilidade de O2 entre os dois tipos de meios é idêntica. N = 6. Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina. Clique aqui para ver uma versão maior desta figura.

Figura 7: Concentrações de O2 na monocamada RPE determinadas com uma calculadora online. Captura de tela da calculadora online (https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture). Consulte o texto para obter detalhes de como a calculadora pode ser usada para determinar a quantidade de oxigênio disponível na monocamada RPE. Abreviaturas: RPE = epitélio pigmentar da retina. Clique aqui para ver uma versão maior desta figura.

Figura 8: Experimentos de solução de problemas: evaporação, células não saudáveis e flutuações excessivas de OCR. (A) Evaporação excessiva. Quando houver irregularidade no rastreamento de OCR de um poço, comece clicando na guia Ambiente na interface online do sistema (Esquerda). Aqui, a umidade, a temperatura e a pressão atmosférica podem ser monitoradas. Abrir a incubadora de cultura de células interromperá temporariamente a umidade (veja 2 h e 28 h no traço). No entanto, a partir de 30 h, o traço de umidade diminui consistentemente ao longo do tempo, mesmo sem a abertura da porta. Isso sugere que a bandeja de água da incubadora de cultura de células está seca. Qualquer interrupção na umidade ou temperatura alterará as leituras de OCR. (Direita) A baixa umidade exacerba a evaporação. No traço à direita, um poço passando por rápida evaporação demonstra diferenças progressivamente menores na concentração de O2 entre a parte superior e inferior da excursão da sonda do sensor (1 mm a 1,5 mm acima da monocamada RPE). Isso sugere que a ponta da sonda está próxima à interface ar-mídia. Quando a concentração de O2 se "estabiliza" em um valor próximo às concentrações atmosféricas conhecidas de O2 (~ 200 μM), isso sugere que a ponta da sonda está totalmente fora da coluna de mídia e apenas amostrando o ar. As leituras de OCR não são mais válidas e esses poços precisam de mudanças imediatas na mídia. (B) Células insalubres. A plotagem do traço de O2 e OCR de cada poço individual permite a identificação de um poço discrepante, geralmente causado pela falta de saúde das células. Aqui, o poço designado pelo traço azul não é saudável. N = 6 poços. (C) Aberturas de portas da incubadora e mudança de mídia. Mudanças na umidade atmosférica, temperatura, pressão e CO2 durante as aberturas das portas da incubadora, juntamente com qualquer mudança no meio, interrompem temporariamente o gradiente de O2 de equilíbrio estabelecido no poço, causando picos aberrantes de O2 e OCR no início e no final desses gráficos. N = 6 poços. Abreviaturas: OCR = taxa de consumo de oxigênio. Clique aqui para ver uma versão maior desta figura.

Figura 9: Experimentos de solução de problemas: volume de mídia e normalização. (A) O volume da mídia limita o OCR máximo possível. Como volumes de mídia mais altos levam a uma menor disponibilidade de O2 na monocamada RPE, cada volume de mídia em um único poço de uma placa de 96 poços tem um OCR máximo. Acima deste OCR, o O2 ao nível das células é essencialmente 0% (anóxico). Assim, se alguém estiver próximo do OCR teórico máximo para um determinado volume de mídia, há utilidade em diminuir o volume de mídia, de modo que nenhum "efeito teto" de OCR seja visto ao longo do experimento. O OCR teórico máximo alcançável em cada volume de mídia (em uma placa padrão de 96 poços) é mostrado. Todos os valores foram calculados usando a calculadora online discutida na seção 4 do protocolo e exibida na Figura 7. (B) Normalização apropriada. Para experimentos em que se está interessado no efeito de uma variável na capacidade de outra variável de induzir o metabolismo mitocondrial, uma configuração experimental de OCR Delta-Delta é ideal. Na configuração em (B), a capacidade de dois meios diferentes de promover a β-oxidação do palmitato é testada. Se ocorrer β-oxidação do ácido graxo, deve haver um aumento significativo no OCR mitocondrial. Alguns meios podem promover a β-oxidação do palmitato melhor do que outros. No lado esquerdo do gráfico OCR, dois meios diferentes (Mídia 1 vs. Mídia 2) são introduzidos em poços paralelos de culturas de EPR. O OCR basal é obtido. Em seguida, o palmitato é adicionado à metade dos poços contendo cada tipo de meio. Isso cria quatro condições: Meio 1 - palmitato, Meio 1 + palmitato, Meio 2 - palmitato, Meio 2 + palmitato. A resposta do OCR a cada uma dessas novas condições de mídia é registrada. Em seguida, os valores de OCR após os tratamentos experimentais (média da caixa tracejada vermelha na fase de tratamento) são subtraídos dos valores de OCR da linha de base antes do tratamento (média da caixa tracejada vermelha na fase de linha de base), criando gráficos de barras Delta OCR (canto inferior esquerdo). Finalmente, a capacidade do Meio 1 vs. Meio 2 de promover a oxidação β é determinada em um gráfico de barras Delta-Delta OCR (canto inferior direito). Aqui, a diferença entre "Delta OCR de Mídia 1 + palmitato" e "Delta OCR de Mídia 1 - palmitato" é calculada e comparada com a diferença entre "Delta OCR de Mídia 2 + palmitato" e "Delta OCR de Mídia 2 - palmitato". Este tipo de configuração experimental e normalização isola os efeitos do meio 1 vs. meio 2 na promoção da β-oxidação; a estrutura geral dessa normalização é aplicável a qualquer experimento em que se está medindo o efeito de uma variável na capacidade de outra variável de alterar o OCR. Abreviaturas: OCR = taxa de consumo de oxigênio; EPR = epitélio pigmentar da retina. Clique aqui para ver uma versão maior desta figura.
Tabela 1: A receita para meios de cultura de células RPE. Clique aqui para baixar esta tabela.
Discussão
O metabolismo mitocondrial do EPR desempenha um papel crítico na patogênese de doenças retinianas comuns que causam cegueira, incluindo DMRI e RVP. A modelagem do metabolismo mitocondrial do EPR in vitro permite isolar seu estado metabólico daqueles dos tecidos circundantes, além de submeter o tecido a diferentes insultos simuladores de doenças de maneira controlada. Essa modelagem in vitro do metabolismo mitocondrial do EPR foi facilitada pelo advento de culturas primárias humanas e iPSC-RPE de alta fidelidade que atingem o estado de diferenciação e a polaridade adequados necessários para aproximar o EPR in vivo. Embora o monitoramento da taxa de consumo de oxigênio (OCR) em tais culturas seja um método ideal para monitorar o metabolismo mitocondrial, a configuração do monitoramento do OCR geralmente impede o cultivo de culturas nas condições necessárias para RPE altamente polarizado e totalmente diferenciado. Aqui, descrevemos o Resipher como um novo sistema para monitorar o metabolismo mitocondrial do RPE por meio da avaliação em tempo real e de longo prazo do OCR em culturas de RPE altamente diferenciadas e polarizadas.
Outros métodos têm sido usados para monitorar o OCR no EPR. O Seahorse XF Analyzer foi projetado para monitorar o OCR em curtos períodos de tempo com manipulações agudas da função mitocondrial. No entanto, os ensaios de cavalos-marinhos exigem que as células sejam cultivadas em placas personalizadas, que não são propícias para suportar alta polaridade e diferenciação de RPE21. Calton, Vollarth e colegas adaptaram o cavalo-marinho para a avaliação de culturas de EPR altamente diferenciadas cultivadas em suportes microporosos, cortando a membrana microporosa em pedaços e colocando-os na placa do cavalo-marinho, mas esse método ainda funciona apenas para monitoramento de curto prazo de culturas, pois as células não têm acesso ao CO2 Durante o ensaio, o ensaio só pode ser feito em condições não estéreis, e o corte do suporte microporoso induzirá morte e disfunção na porção da borda do suporte microporoso ao longo do tempo22. O Barofuse é um sistema de perfusão sem bomba no qual tiras de EPR cultivadas em suportes microporosos podem ser carregadas no sistema de perfusão, permitindo que o OCR seja monitorado em tempo real23. Semelhante à configuração modificada para o Seahorse por Calton, Vollarth e colegas, as principais limitações da avaliação do EPR com Barofuse são a necessidade de cortar os suportes microporosos e a natureza de curto prazo do ensaio. O Oxygraph também foi projetado para mudanças cinéticas rápidas no OCR em resposta a manipulações metabólicas24. Não tem sido usado para culturas de EPR e sofreria as mesmas limitações para avaliar culturas de EPR altamente polarizadas e diferenciadas que o cavalo-marinho e o Barofuse.
Em contraste com esses outros métodos, o sistema OCR descrito aqui permite o monitoramento do OCR enquanto o RPE é cultivado em placas/substratos de cultura de células padrão sob condições padrão com meio de RPE padrão em uma incubadora de CO2 de cultura de células padrão, fornecendo sondagem fácil e conveniente de culturas de RPE altamente diferenciadas e polarizadas. Além de gerar dados sobre alterações de OCR em tempo real pelo sistema, essas mesmas células podem ser utilizadas para ensaios adicionais no final do período de monitoramento de OCR. Isso permite experimentos altamente flexíveis em que o efeito de uma intervenção no OCR é testado repetidamente durante um período de semanas (por exemplo, - indução de EMT de EPR na Figura 5) ou onde a recuperação a longo prazo de uma intervenção pode ser testada (por exemplo, - recuperação do desacoplamento mitocondrial na Figura 3) ou onde as alterações metabólicas em cascata em resposta a uma intervenção inicial podem ser monitoradas (por exemplo, - efeitos do soro no OCR quando os nutrientes do meio são esgotados na Figura 3) 2). O sistema OCR neste artigo é particularmente conveniente para medir o OCR em culturas de EPR altamente polarizadas e diferenciadas. Essas culturas são funcionalmente pós-mitóticas, com empacotamento apertado e pigmentação pesada. Isso significa que cada poço contém números de células quase idênticos9, evitando assim a necessidade de normalizar o OCR para o número de células para a maioria dos experimentos. Mesmo quando a normalização para o número de células é necessária, a pigmentação pesada do EPR e as bordas celulares bem demarcadas permitem que a normalização ocorra com uma contagem de células simples não invasiva com base em imagens de campo claro. Para experimentos envolvendo RPE indiferenciado e proliferação de RPE, como os experimentos EMT na Figura 5, normalizar o OCR por poço para o número de células torna-se necessário para saber qual é o OCR "por célula".
Fora do campo retiniano, o sistema tem sido empregado para estudar a respiração celular e a atividade metabólica em vários tipos de células, incluindo células das ilhotas pancreáticas25, músculo esquelético26, câncer de ovário27, cardiomiócitos28 e até organismos inteiros, como C. elegans29. O monitoramento em tempo real e de longo prazo do OCR usando o sistema OCR descrito aqui revelou informações importantes sobre mudanças bioenergéticas e disfunção mitocondrial nesses diversos modelos de doenças.
O sistema Resipher carrega limitações. O método para determinar o OCR é fundamentalmente diferente do Seahorse Analyzer, BaroFuse ou Oxygraph. Requer o estabelecimento de um gradiente de O2 para calcular o OCR, e o gradiente pode levar horas para ser estabelecido. Assim, experimentos cinéticos rápidos, possíveis nos outros sistemas, não são possíveis com este sistema. Além disso, ao contrário dos outros sistemas, o Resipher não possui portas de injeção para a entrega rápida de pequenas moléculas ou coleta de metabólitos. Em vez disso, a tampa de detecção deve ser removida em uma capa de cultura de células, com drogas sendo enriquecidas ou meio substituído, juntamente com a coleta manual de metabólitos a serem analisados.
Para estabelecer e solucionar problemas de um experimento usando o sistema OCR descrito neste documento, recomenda-se o seguinte. Primeiro, minimize a evaporação. Lembre-se de que o gradiente de O2 na coluna de mídia acima da monocamada RPE é altamente dependente da altura da coluna9, e o sistema calcula o OCR com base no gradiente de O2 . Assim, se houver um rebaixamento acentuado da coluna de mídia durante o experimento devido à evaporação, o gradiente de O2 mudará, afetando as leituras de OCR. Manter a bandeja de água da incubadora cheia é fundamental, mas também é sugerido que a água seja colocada em todos os poços não utilizados da placa de 96 poços. Além disso, os poços na borda da placa têm taxas de evaporação mais altas, de modo que esses poços são deixados vazios de células nos experimentos típicos apresentados acima. O sensor de umidade no sistema OCR pode ajudar a monitorar a umidade da incubadora. Na Figura 8A, a queda na umidade durante o experimento sugere que a bandeja de água da incubadora está vazia. À medida que a evaporação acelera no poço, as leituras de concentração de O2 para o poço subirão mais alto e, eventualmente, "planarão" na concentração atmosférica de O2 (~ 200 μM) (Figura 8A).
Em segundo lugar, confirme se o "sanduíche" do sistema OCR está montado adequadamente. Os pontos de contato de metal na parte inferior do dispositivo e na parte superior da tampa de detecção devem estar limpos, sem detritos para impedir o contato total. O dispositivo e a tampa de detecção devem ser fixados totalmente nivelados e uniformemente alinhados na placa de 96 poços, sem qualquer inclinação. O cabo USB que conecta o dispositivo ao hub não deve estar tensionado, o que pode resultar em torque do "sanduíche" e restrição do movimento adequado do dispositivo.
Terceiro, certifique-se de que o dispositivo e os sensores da tampa de detecção estejam calibrados. A Figura 2B detalha como verificar rapidamente o funcionamento adequado do sensor no início de cada experimento. Quarto, certifique-se de que um poço específico não esteja demonstrando um OCR discrepante antes da manipulação experimental. Depois de garantir que os sensores estejam funcionando, determinar os valores de OCR de linha de base para todos os poços com células pode ajudar a determinar se certos poços contêm células não saudáveis. A Figura 8B mostra vários poços submetidos à avaliação de OCR de linha de base, nos quais o poço de cor azul demonstra claramente um OCR mais baixo (e, portanto, alta concentração de O2 ). Este poço é um outlier e deve ser excluído da manipulação experimental.
Quinto, minimize as manipulações ambientais durante as leituras ativas de OCR. O gradiente de O2 é altamente sensível a mudanças de temperatura, umidade, níveis de CO2 da incubadora e pressão atmosférica. A abertura da porta da incubadora afeta significativamente esses fatores, causando interrupções temporárias nas leituras de OCR até que o gradiente de O2 da coluna de mídia retorne ao equilíbrio (Figura 8C). Os parâmetros que afetam o OCR podem ser monitorados na interface on-line do sistema na guia "Ambiente" (Figura 8A).
Sexto, determine o volume de mídia ideal para o experimento. Embora o volume insuficiente do meio possa criar artefatos por evaporação excessiva (consulte a primeira medida de solução de problemas acima) ou exaustão prematura de nutrientes no meio, o volume excessivo do meio limita a disponibilidade de O2 para a monocamada do EPR, desencadeando hipóxia9. A Figura 7 é uma captura de tela da calculadora online disponível para determinar o efeito do volume de mídia na concentração de O2 na monocamada RPE. O OCR máximo possível para um determinado volume de mídia é exibido na Figura 9A. Se a taxa de OCR para um determinado experimento usando um determinado volume se aproximar da taxa exibida na Figura 9A, então a concentração de O2 na monocamada RPE se aproxima da anóxia (0%) e um volume de mídia menor é necessário. Em geral, experimentos envolvendo processos mitocondrialmente intensivos em cultura de EPR devem ter volumes de meio não superiores a 75 μL por 96 poços.
Sétimo, realizar a normalização apropriada para isolar os efeitos de uma intervenção experimental no OCR. Como poços diferentes podem ter OCR de linha de base diferente, é fundamental obter leituras de OCR de linha de base para cada poço antes de uma intervenção experimental. Subtraia o OCR basal do OCR após a intervenção experimental para obter o "Delta OCR", que demonstra o efeito da intervenção experimental no OCR. O método para obter "Delta OCR" é demonstrado na Figura 3 e na Figura 9B. Se alguém estiver interessado nos efeitos de uma intervenção experimental na capacidade de outra intervenção experimental de induzir OCR, é necessária uma etapa adicional de normalização, o "OCR Delta-Delta". Tal exemplo é ilustrado na Figura 9B, onde a capacidade do palmitato (uma intervenção experimental) de induzir aumento do OCR (via indução de β-oxidação) depende do tipo de meio para a cultura de EPR (uma segunda intervenção experimental).
Finalmente, minimize o risco de contaminação. O sistema monitora o OCR introduzindo um sensor de oxigênio na mídia acima das células. Isso aumenta o risco de infecção. Quedas inesperadas no OCR durante o experimento ou OCR inesperadamente baixo no início do experimento podem ser sinais de uma infecção. As placas precisam ser monitoradas ativamente quanto a infecções sob um microscópio de cultura de células. A contaminação cruzada entre placas de 96 poços pode ocorrer se uma tampa de detecção for reutilizada. Para minimizar essa contaminação cruzada, deve-se mergulhar toda a tampa em etanol a 70% por 20 minutos para descontaminação após a realização de um experimento, antes da reutilização da tampa de detecção em um novo experimento (consulte a seção 1.2.15 do protocolo).
Em conclusão, é apresentado um protocolo para monitoramento em tempo real e de longo prazo do metabolismo mitocondrial em culturas de EPR de alta fidelidade por meio da avaliação do OCR usando um novo sistema chamado Resipher. Ele pode ser usado para inúmeras aplicações em culturas de EPR altamente polarizadas e diferenciadas, em particular, sondando propriedades metabólicas fisiológicas de EPR isolado, bem como metabolismo alterado de EPR em modelos in vitro de doença da retina, incluindo DMRI e PVR.
Divulgações
Richard A. Bryan e Kin Lo são funcionários da Lucid Scientific, que fabrica o sistema Resipher.
Agradecimentos
Agradecemos aos Drs. Daniel Hass e Jim Hurley pela ideia de testar a solubilidade de O2 em meios novos versus condicionados como controle. Agradecemos à Dra. Magali Saint-Geniez pela contribuição editorial do manuscrito. Agradecemos a Scott Szalay do Instrument and Electronic Services Core, Kellogg Eye Center, por adaptar a câmara de hipóxia com o cabo USB Resipher. Nenhum fundo federal foi usado para pesquisa de HFT. O Núcleo de Serviços Eletrônicos é apoiado pelo P30 EY007003 do National Eye Institute. Este trabalho é apoiado por uma bolsa departamental irrestrita da Research to Prevent Blindness (RPB). J.M.L.M. é apoiado pela Iniciativa James Grosfeld para Degeneração Macular Relacionada à Idade Seca, a Fundação E. Matilda Ziegler para Cegos, uma doação do banco de olhos Eversight, uma doação de K08EY033420 do National Eye Institute e apoio de Dee e Dickson Brown, bem como da Fundação David e Lisa Drews Discovering Hope. D.Y.S. é apoiado pelo Programa Scientia da UNSW. L.A.K. é apoiado pelo Prêmio Iraty, Monte J. Wallace, Michel Plantevin, uma bolsa R01EY027739 do Instituto Nacional de Olhos e a Atividade de Aquisição de Pesquisa Médica do Exército do Departamento de Defesa VR220059.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 0,25% Tripsina-EDTA | Gibco | # 25-200-056 | |
| 3,3 ', 5-triiodo-L-tireonina sal de sódio | Sigma | T5516 | |
| 32 canais Tampa Resipher | Lucid Scientific | NS32-101A para Falcon | |
| Antimycin A de streptomyces sp. | Sigma | A8674-25MG | Inibidor do Complexo III da cadeia de transporte de elétrons |
| BAM15 | Sigma | SML1760-5MG | Agente de desacoplamento para aumentar a respiração mitocondrial |
| DMSO, grau de cultura de células | Sigma-aldrich | D4540-100ML | Veículo para reconstituição de drogas mitocondriais |
| Substratos de revestimento de matriz extracelular: Synthemax II-SC | Corning | #3535 | Matriz extracelular para hfRPE |
| Substratos de revestimento de matriz extracelular: Vitronectina | Gibco | A14700 | Matriz extracelular para iPSC-RPE |
| FCCP | Sigma | C2920-10MG | Agente de desacoplamento para aumentar a respiração mitocondrial Soro |
| Fetal Bovino (Bio-Techne S11550H) | Bio-Techne | S11550H | |
| Hidrocortisona-Ciclodextrina | Sigma | H0396 | |
| Câmara de hipóxia | Embrient Inc. | MIC-101 | |
| N1 Suplemento de Mídia | Sigma | N6530 | |
| Solução de Aminoácidos Não Essenciais | Sensor Gibco | 11140050 | |
| O2 | Tecnologia Sensit ou Detectores Forenses | P100 ou FD-90A-O2 | |
| Penicilina-Estreptomicina | Gibco | 15140-122 | |
| Humano recombinante TGFβ 2 | Peprotech | 100-35B | Fator de crescimento transformador beta-2 para induzir a transição epitelial-mesenquimal |
| Rotenona | Sigma | R8875-1G | Inibidor do Complexo I da cadeia de transporte de elétrons |
| Placa compatível com o sistema | Corning | #353072 | |
| Taurina | Sigma | T8691 | |
| α MEM (Modificação Alfa da Mídia da Águia) | Corning | 15-012-CV |
Referências
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
Reimpressões e permissões
