Aqui apresentamos um protocolo para transplantar células com alta resolução espacial e temporal em embriões e larvas de peixe-zebra em qualquer estágio entre pelo menos 1 e 7 dias após a fertilização.
Artigo de método
Transplante de células de alta resolução em peixe-zebra embrionário e larval
Neste artigo
Resumo
Resumo
O desenvolvimento e a regeneração ocorrem por um processo de interações celulares espaço-temporais dinâmicas geneticamente codificadas. O uso de transplante de células entre animais para rastrear o destino celular e induzir incompatibilidades nas propriedades genéticas, espaciais ou temporais das células doadoras e hospedeiras é um meio poderoso de examinar a natureza dessas interações. Organismos como pintinhos e anfíbios fizeram contribuições cruciais para nossa compreensão do desenvolvimento e da regeneração, respectivamente, em grande parte devido à sua receptividade ao transplante. O poder desses modelos, no entanto, tem sido limitado pela baixa tratabilidade genética. Da mesma forma, os principais organismos modelo genéticos têm menor receptividade ao transplante.
O peixe-zebra é um importante modelo genético para desenvolvimento e regeneração e, embora o transplante de células seja comum no peixe-zebra, geralmente é limitado à transferência de células indiferenciadas nos estágios iniciais de desenvolvimento da blástula e da gástrula. Neste artigo, apresentamos um método simples e robusto que estende a janela de transplante de peixe-zebra para qualquer estágio embrionário ou larval entre pelo menos 1 e 7 dias após a fertilização. A precisão dessa abordagem permite o transplante de apenas uma célula com resolução espacial e temporal quase perfeita em animais doadores e hospedeiros. Embora destaquemos aqui o transplante de neurônios embrionários e larvais para o estudo do desenvolvimento e regeneração nervosa, respectivamente, essa abordagem é aplicável a uma ampla gama de tipos de células progenitoras e diferenciadas e questões de pesquisa.
Introdução
O transplante de células tem uma longa e célebre história como uma técnica fundamental na biologia do desenvolvimento. Por volta da virada doséculo 20, abordagens que usam manipulações físicas para perturbar o processo de desenvolvimento, incluindo o transplante, transformaram a embriologia de uma ciência observacional em uma ciência experimental 1,2. Em um experimento histórico, Hans Spemann e Hilde Mangold transplantaram ectopicamente o lábio dorsal do blastóporo de um embrião de salamandra para o lado oposto de um embrião hospedeiro, induzindo o tecido próximo a formar um eixo secundáriodo corpo 3. Este experimento mostrou que as células poderiam induzir outras células a adotar certos destinos e, posteriormente, o transplante se desenvolveu como um método poderoso para interrogar questões críticas na biologia do desenvolvimento em relação à competência e determinação do destino celular, linhagem celular, capacidade indutiva, plasticidade e potência das células-tronco 1,4,5.
Avanços científicos mais recentes expandiram o poder da abordagem de transplante. Em 1969, a descoberta de Nicole Le Douarin de que a coloração nucleolar poderia distinguir espécies de origem em quimeras de codornas permitiu o rastreamento de células transplantadas e sua progênie6. Esse conceito foi posteriormente sobrecarregado pelo advento de marcadores fluorescentes transgênicos e técnicas avançadas de imagem5, e foi aproveitado para rastrear o destino celular 6,7, identificar células-tronco e sua potência 8,9 e rastrear movimentos celulares durante o desenvolvimento do cérebro10. Além disso, o surgimento da genética molecular facilitou o transplante entre hospedeiros e doadores de genótipos distintos, apoiando a dissecção precisa de funções autônomas e não autônomas de fatores de desenvolvimento11.
O transplante também fez contribuições importantes para o estudo da regeneração, particularmente em organismos com fortes habilidades regenerativas, como planárias e axolotes, elucidando as identidades e interações celulares que regulam o crescimento e a padronização dos tecidos em regeneração. Estudos de transplante revelaram princípios de potência12, padronização espacial13,14, contribuições de tecidos específicos15,16 e papéis da memória celular12,17 na regeneração.
O peixe-zebra é um dos principais modelos de vertebrados para o estudo do desenvolvimento e regeneração, inclusive no sistema nervoso, devido aos seus programas genéticos conservados, alta tratabilidade genética, fertilização externa, grande tamanho da ninhada e clareza óptica 18,19,20. O peixe-zebra também é altamente passível de transplante nos estágios iniciais de desenvolvimento. A abordagem mais proeminente é o transplante de células de um embrião de doador marcado para um embrião hospedeiro no estágio de blástula ou gástrula para gerar animais em mosaico. As células transplantadas durante o estágio de blástula se espalham e se dispersam quando a epíboa começa, produzindo um mosaico de células e tecidos marcados em todo o embrião21. Os transplantes de gástrula permitem algum direcionamento das células transplantadas de acordo com um mapa de destino aproximado, à medida que o escudo se forma e os eixos AP e DV podem ser determinados21. Os mosaicos resultantes foram valiosos para determinar se os genes agem de forma autônoma nas células, testando o comprometimento celular e mapeando o movimento do tecido e a migração celular ao longo do desenvolvimento 5,11. O peixe-zebra mosaico pode ser gerado de várias maneiras, incluindo eletroporação22, recombinação23 e transgênese F024 e mutagênese25, mas o transplante fornece a maior manipulabilidade e precisão no espaço, tempo e número e tipos de células. O estado atual do transplante de peixe-zebra é amplamente restrito a células progenitoras em estágios iniciais, com algumas exceções, incluindo transplante de neurônios motores espinhais26,27, células ganglionares da retina28,29 e células da crista neural nas primeiras 10-30 h após a fertilização (hpf) 30 e de células hematopoiéticas e tumorais em peixes-zebra adultos 5,31. Expandir os métodos de transplante para uma ampla gama de idades, estágios de diferenciação e tipos de células aumentaria muito o poder dessa abordagem para fornecer informações sobre os processos de desenvolvimento e regeneração.
Aqui, demonstramos uma técnica flexível e robusta para transplante de células de alta resolução eficaz em embriões e larvas de peixe-zebra até pelo menos 7 dias após a fertilização. Peixes hospedeiros e doadores transgênicos que expressam proteínas fluorescentes em tecidos-alvo podem ser usados para extrair células únicas e transplantá-las com resolução espacial e temporal quase perfeita. A clareza óptica dos embriões e larvas de peixe-zebra permite que as células transplantadas sejam visualizadas ao vivo à medida que o animal hospedeiro se desenvolve ou se regenera. Essa abordagem foi usada anteriormente para examinar como a dinâmica da sinalização espaço-temporal influencia a identidade neuronal e a orientação do axônio no embrião32 e para examinar a lógica pela qual fatores intrínsecos e extrínsecos promovem a orientação do axônio durante a regeneração em larvasde peixes 33. Embora nos concentremos aqui no transplante de neurônios diferenciados, nosso método é amplamente aplicável a tipos de células indiferenciadas e diferenciadas em muitos estágios e tecidos para abordar questões de desenvolvimento e regeneração.
Protocolo
Todos os aspectos deste procedimento que dizem respeito ao trabalho com peixes-zebra vivos foram aprovados pelo Comitê Institucional de Cuidados e Uso de Animais da Universidade de Minnesota (IACUC) e são realizados em conformidade com as diretrizes da IACUC.
1. Configuração inicial única do aparelho de transplante (Figura 1)
- Monte o microscópio de transplante de acordo com as instruções do fabricante.
NOTA: Este protocolo usa um microscópio de fluorescência vertical com uma objetiva de imersão em água de 40x. - Monte os micromanipuladores grossos e finos e monte-os no lado direito do microscópio de acordo com as instruções do fabricante.
NOTA: Como é importante que o estágio não se mova na dimensão Z em relação à agulha, usamos um microscópio de estágio fixo com os micromanipuladores montados na base do microscópio. Se um microscópio de platina fixa não estiver disponível, o micromanipulador pode ser montado na platina. - Conecte o suporte do microeletrodo à alça do eletrodo e monte no micromanipulador.
- Conecte um lado da torneira de três vias à bomba de microsseringa. Conecte o outro lado da torneira ao tubo de polietileno usando o adaptador de cromatografia.
- Conecte o lado oposto do tubo de polietileno ao suporte do microeletrodo usando o adaptador de cromatografia.
- Encha a seringa do reservatório de 10 mL com óleo mineral leve e monte-a na parte superior da torneira.
- Encha a bomba de microsseringa e a tubulação (a linha hidráulica) com óleo mineral do reservatório, certificando-se de remover todas as bolhas de ar.
NOTA: Uma vez que o aparelho esteja configurado, ele exigirá apenas manutenção ocasional da linha hidráulica. A seringa do reservatório pode ser removida e recarregada com óleo mineral, conforme necessário.
2. Prepare empurradores de embriões.
- Corte um pedaço de linha de pesca de 2 cm e insira-o parcialmente na extremidade estreita de uma ponta de pipeta P1000, deixando ~ 1.5 cm exposto. Prenda a linha de pesca com uma pequena gota de supercola e deixe secar.
3. Prepare soluções.
- Para preparar 1% de acarose de baixo ponto de fusão dissolvida em meio embrionário (LMA), dissolva a agarose em meio embrionário fervente34. Faça alíquotas de 1-2 mL em tubos de ensaio de fundo redondo e armazene a 4 °C.
- Prepare a solução de Ringer com penicilina-estreptomicina e tricaína (RPT) combinando os seguintes ingredientes em concentrações finais de 116 mM de NaCl, 2,9 mM de KCl, 1,8 mM de CaCl2, 5 mM HEPES pH 7,2, 50 unidades/mL de penicilina e 50ug/mL de estreptomicina, mexendo até dissolver e passando por um filtro a vácuo. Armazene em temperatura ambiente. Adicione tricaína imediatamente antes de usar a uma concentração de 0,02%.
4. Preparar os animais doadores e hospedeiros para transplante.
- Crie animais hospedeiros e doadores com os genótipos apropriados e com células de interesse marcadas com fluorescência, até a idade desejada.
NOTA: Para esses transplantes, usamos animais doadores Tg(isl1:EGFPCAAX)fh474 32 e Tg(isl1:mRFP)fh1 animais hospedeiros35 e neurônios transplantados do doador para o hospedeiro de núcleos motores vagos em 3dpf. - Prepare as lâminas de transplante aplicando um contorno retangular de esmalte transparente em cada lâmina de vidro (Figura 2A). O esmalte cria uma barreira hidrofóbica para segurar no RPT adicionado na etapa 4.8. Deixe secar completamente antes de usar.
NOTA: Os slides podem ser preparados com antecedência e armazenados indefinidamente. - Derreta uma alíquota de LMA colocando um tubo de LMA em um béquer de 50mL contendo 40mL de água e leve ao micro-ondas por 1 min a 50% da potência ou até derreter. Mantenha a LMA a 40 °C em um aquecedor de banho seco.
- Descorione os animais hospedeiros e doadores com fórceps (se aplicável) e anestesiá-los colocando-os em pequenas placas de Petri cheias de RPT em temperatura ambiente. Aguarde 5 minutos para que os animais sejam totalmente anestesiados antes de prosseguir.
- Monte o doador individual e os animais hospedeiros: Usando a pipeta Pasteur e a bomba de pipeta, transfira os animais do RPT para o LMA e, em seguida, transfira os animais em pequenas gotas de LMA para lâminas dentro do contorno do esmalte. Minimize a quantidade de RPT transferida para o LMA para que o LMA não se dilua. Antes que a ML se solidifique, use um empurrador de embriões para orientar os animais, garantindo que cada animal seja montado com o local de inserção da agulha pretendido para a direita e que todos os animais estejam alinhados verticalmente (Figura 2B); Deixe a agarose endurecer completamente (~5 min) antes de prosseguir.
NOTA: Como muitas células podem ser retiradas de cada animal doador, é mais eficiente montar de 2 a 4 animais hospedeiros com um doador em cada lâmina. - Usando um bisturi, corte uma fatia vertical reta em todas as gotas de agarose à direita dos animais montados (Figura 2C). Remova a agarose solta da lâmina com lenços umedecidos.
- Usando um bisturi, corte cunhas da agarose para expor o local de inserção da agulha (Figura 2C). Remova a agarose solta da lâmina com lenços umedecidos.
- Aplique RPT na lâmina até que as gotas de agarose estejam totalmente submersas (Figura 2D).
- Monte a lâmina preparada no microscópio de transplante. Coloque o animal doador em foco sob o objetivo de 40x. Para fazer isso, abaixe a objetiva até que ela quebre a superfície da mídia e, em seguida, levante a objetiva para o plano focal desejado.
NOTA: O contato com o líquido pela objetiva deve ser mantido até que o transplante seja concluído (Figura 3C). - Colocar em foco a(s) célula(s) doadora(s) marcada(s) com fluorescência de interesse; Em seguida, mova o estágio para a esquerda em preparação para localizar a agulha de transplante.
NOTA: Neste ponto, não ajuste o microscópio nos eixos Y ou Z, para garantir que você possa reencontrar facilmente o animal doador na seção 5.
5. Prepare a agulha de transplante.
- Insira uma micropipeta no extrator de micropipetas e puxe uma agulha de microinjeção.
NOTA: O formato da agulha deve ser semelhante ao usado para injeções de embriões de peixe-zebra em estágio de 1 célula ou fixação de remendos. Usamos um extrator de micropipeta com o seguinte programa: PRESSÃO = 500, CALOR = rampa + 80, TRAÇÃO = 90, VELOCIDADE = 70, TEMPO = 250 (consulte a Tabela de Materiais), embora as configurações corretas para cada extrator provavelmente precisem ser determinadas empiricamente. - Alinhe a ponta da agulha com as divisões do micrômetro de platina sob um escopo de dissecação. Usando o micrômetro como guia de medição, use uma pinça afiada para quebrar a agulha em um tamanho de furo ligeiramente maior que o diâmetro das células de interesse (Figura 3A). Certifique-se de que a quebra esteja o mais limpa possível, pois as bordas irregulares podem contribuir para o entupimento da agulha. NOTA: Para neurônios motores vagos (5-7 μm de diâmetro), as agulhas devem ser quebradas para um diâmetro interno de 10 μm, o que corresponde a um diâmetro externo de 20 μm. Se necessário, o tamanho, a forma e/ou o ângulo da ponta da agulha podem ser refinados com uma microforja ou micromoedor36.
- Usando uma seringa de 50 mL cheia de óleo mineral leve e equipada com um enchimento de pipeta, encha completamente a agulha com óleo mineral (Figura 3B). Certifique-se de que não haja bolhas de ar. Deixe a agulha cheia de lado até que esteja pronta para montagem.
NOTA: Para garantir que não haja bolhas de ar, insira o enchimento da pipeta totalmente na agulha e libere o óleo enquanto puxa lentamente o enchimento para fora da agulha. - No aparelho de transplante, gire a torneira de três vias para que seu braço longo fique voltado para a bomba de microsseringa e pressione o êmbolo da seringa do reservatório para liberar todas as bolhas de ar da linha hidráulica. Mantenha uma leve pressão no êmbolo (para evitar o refluxo de ar para a linha) e gire a torneira de três vias de modo que seu braço longo fique voltado para a seringa do reservatório.
- Insira a agulha no suporte, tomando cuidado para não introduzir bolhas de ar. Ajuste o ângulo da agulha de modo que ela fique voltada diretamente para a esquerda em um ângulo de 10-15° da horizontal (Figura 3C).
- Use os micromanipuladores grossos e finos para manobrar a ponta da agulha sob a objetiva do microscópio e colocá-la em foco (Figura 3D).
NOTA: O posicionamento grosseiro da agulha nos planos X e Y pode ser feito observando diretamente a área abaixo da objetiva enquanto você manobra a agulha, pois a agulha refletirá o feixe de luz transmitido quando estiver posicionada sob a objetiva. As oculares do microscópio podem então ser usadas para posicionamento fino. Não ajuste a posição da platina do microscópio ou o foco durante esta etapa. Use os micromanipuladores para colocar a ponta da agulha na posição focal existente. - Se o líquido estiver fluindo para dentro ou para fora da ponta da agulha, ajuste a pressão usando a bomba de seringa até que um menisco estável entre o óleo mineral e a solução de Ringer seja observado (Figura 3D).
NOTA: Se uma bolha de óleo permanecer na ponta da agulha após a estabilização, ela pode ser removida usando o ajuste do plano X no micromanipulador grosso para mover a agulha para a direita até que sua ponta seja retirada do RPT e, em seguida, de volta para a esquerda até que seja reposicionada sob a objetiva.
6. Transplante
NOTA: Todos os movimentos da agulha devem ser feitos usando o micromanipulador fino para esta seção.
- Mova o palco para a direita até que o animal doador seja trazido de volta à vista, tomando cuidado para evitar a penetração acidental com a agulha.
- Centralize novamente e concentre-se nas células a serem transplantadas e alinhe a agulha com as células do lado de fora do animal (Figura 4A).
NOTA: Pode ser necessário alternar entre campo claro e fluorescência com frequência para garantir o alinhamento adequado. O uso de um filtro de densidade neutra pode ajudar na visualização de ambos simultaneamente. - Insira a agulha no animal doador.
NOTA: Movimentos repetidos para dentro e para fora com a agulha podem ajudar a penetrar na pele. - Reestabilize imediatamente o menisco de óleo na ponta da agulha com a bomba de microsseringa, conforme descrito na etapa 5.7.
- Posicione a ponta da agulha contra as células de interesse e aplique uma sucção suave com a bomba de microsseringa (Figura 4B).
NOTA: Movimentos suaves de entrada e saída durante a sucção podem ajudar a soltar as células. - Quando um número adequado de células tiver sido absorvido, remova a agulha do doador e reestabilize imediatamente o menisco de óleo na ponta da agulha com a bomba de microsseringa.
- Tomando cuidado para evitar o contato com animais ou agarose com a agulha, reposicione o palco para trazer o primeiro animal hospedeiro à vista.
- Centralize e concentre-se na área em que as células devem ser colocadas e alinhe a agulha com essa região fora do animal (Figura 4C).
- Insira a agulha no animal hospedeiro e reestabilize imediatamente o menisco de óleo na ponta da agulha com a bomba de microsseringa.
- Posicione a ponta da agulha no local de deposição e aplique uma leve pressão com a bomba de microsseringa até que o número correto de células doadoras seja liberado da agulha (Figura 4D).
NOTA: Se as células doadoras e hospedeiras forem marcadas com fluoróforos diferentes, um filtro multibanda para permitir a visualização simultânea pode ser muito útil neste estágio. - Remova a agulha do hospedeiro e reestabilize imediatamente o menisco de óleo na ponta da agulha com a bomba de microsseringa.
- Repita as etapas 6.7 a 6.11 para todos os hosts restantes.
7. Recuperação do animal hospedeiro
- Levante a objetiva de 40x e use o micromanipulador grosso para manobrar a agulha de volta à posição de carregamento.
NOTA: A agulha pode ser reutilizada para várias lâminas. - Remova a lâmina do microscópio de transplante e coloque-a sob um microscópio de dissecação.
- Desmonte os animais hospedeiros removendo-os cuidadosamente da queda do LMA com uma pinça. Usando uma pipeta de vidro Pasteur, transfira os animais hospedeiros para um prato com solução de Ringer fresca com penicilina/estreptomicina. Certifique-se de que os animais se recuperem da anestesia e mantenha-os em uma incubadora de embriões até que estejam prontos para a imagem. Eutanásia dos animais doadores de acordo com os protocolos aprovados.
NOTA: Nosso método de eutanásia é imergir os animais em um banho de gelo por pelo menos 1 hora, seguido de imersão em hipoclorito de sódio 500 mg/L.
Resultados
Os resultados dos experimentos de transplante são observados diretamente pela visualização de células doadoras marcadas com fluorescência em animais hospedeiros em pontos apropriados após o transplante usando um microscópio de fluorescência. Aqui, transplantamos neurônios vagos anteriores individuais a 3 dpf. Os animais hospedeiros foram então incubados por 12 ou 48 h, anestesiados, montados em ML em uma lamínula de vidro e fotografados com um microscópio confocal (Figura 5). Às 12 h após o transplante (hpt), observamos um neurônio doador transplantado com sucesso (Figura 5A). Podemos confirmar o posicionamento correto da célula, pois ela está situada entre os neurônios vagos do hospedeiro na região anterior do núcleo motor vago do hospedeiro; a célula também parece intacta e saudável, conforme indicado pela extensão de várias saliências curtas de neuritos (Figura 5A). Aos 2 dias após o transplante (dpt), podemos confirmar novamente que um único neurônio foi transplantado com sucesso para a posição correta do núcleo do hospedeiro (Figura 5B). Neste ponto, observamos que o neurônio estendeu um novo axônio para o 4º arco faríngeo (Figura 5B). A observação direta também revela quando o procedimento falhou. Neste exemplo, observamos um hospedeiro de 2 dpt no qual nenhum neurônio doador está presente; em vez disso, uma pequena mancha verde, provavelmente um fragmento de um neurônio doador que morreu após o transplante, é aparente (Figura 5C). Embora as taxas de sucesso do transplante variem de acordo com a experiência do usuário e o número e tipo de células transplantadas, experimentamos uma taxa de sucesso (definida como a presença de um neurônio sobrevivente que estendeu um axônio no hospedeiro a 2-3 dpt) de 66% (n = 453 transplantes) para transplantes de neurônios motores vagos realizados a 3-4 dpf33.
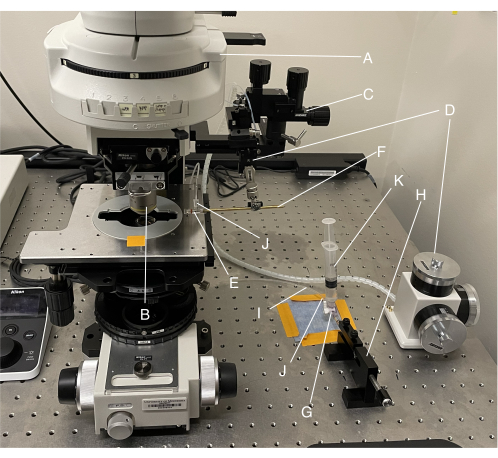
Figura 1: Visão geral do aparelho de transplante. (A) Microscópio de fluorescência vertical; (B) Objetivo de imersão em água 40x; (C) micromanipulador grosseiro; (D) micromanipulador fino; (E) suporte de microeletrodo; (F) cabo do eletrodo; (G) torneira de três vias; (H) bomba de microsseringa; (I) tubos de polietileno; J) Adaptadores de cromatografia; (K) Seringa reservatório de 10 mL. Clique aqui para ver uma versão maior desta figura.
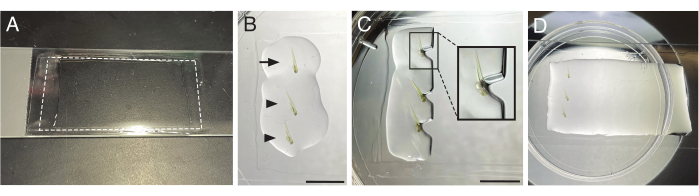
Figura 2: Montagem de animais para transplante. (A) Uma lâmina de vidro fosco de 3 polegadas x 1 polegada com esmalte transparente aplicado em um contorno retangular (linha tracejada). (B) Animais doadores (seta) e hospedeiros (cabeça de seta) montados em gotas de agarose, alinhados verticalmente com o local alvo do transplante (rombencéfalo) orientado para a direita. (C) Agarose com borda direita e cunhas cortadas para expor o local alvo do transplante. Inserção: zoom da região encaixotada. (D) Lâmina de transplante inundada com solução de Ringer com penicilina-estreptomicina e tricaína. Barras de escala = 5 mm. Clique aqui para ver uma versão maior desta figura.
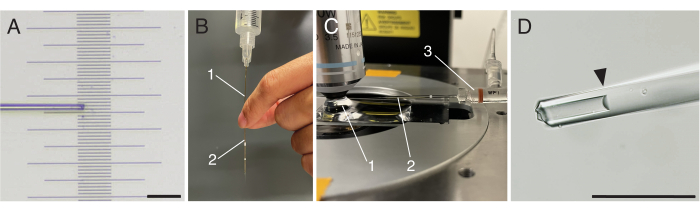
Figura 3: Preparação da agulha de transplante. (A) Agulha de transplante quebrada em cima de um micrômetro de estágio. (B) Enchimento de pipeta (1) inserido na agulha de transplante (2) para encher a agulha com óleo mineral. (C) Lâmina de transplante preparada e agulha no microscópio de transplante. 1: Menisco aquático entre a objetiva de imersão 40x e a lâmina inundada 2: Agulha de transplante 3: Suporte de microeletrodo. (D) Ponta de uma agulha de transplante quebrada com menisco de óleo estável (ponta de seta) vista através do microscópio de transplante com ampliação de 40x. Barras de escala = 100 μm Clique aqui para ver uma versão maior desta figura.
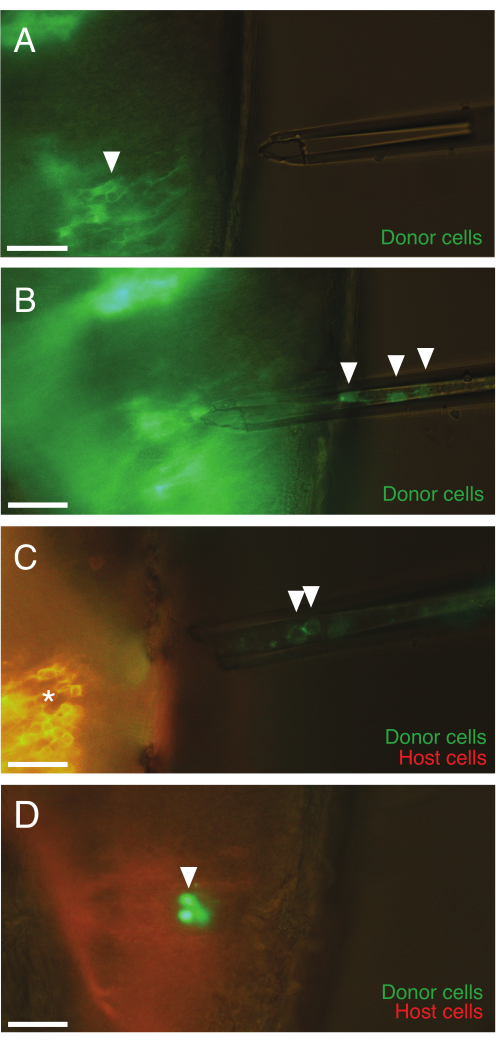
Figura 4: O processo de transplante ao microscópio. (A) Agulha posicionada fora do animal doador, direcionada aos neurônios motores vagos (verde, ponta de seta). (B) Agulha posicionada dentro do animal doador após a captação de neurônios doadores marcados com fluorescência (pontas de setas). (C) Agulha contendo vários neurônios doadores (pontas de setas) posicionados fora do animal hospedeiro, voltados para os neurônios motores vagos do hospedeiro anterior (vermelho, asterisco). (D) Animal hospedeiro pós-transplante com agulha retirada. Um grupo de neurônios doadores transplantados expressando GFP (ponta de flecha) foi expelido para o hospedeiro. Barras de escala = 30 μm Clique aqui para ver uma versão maior desta figura.
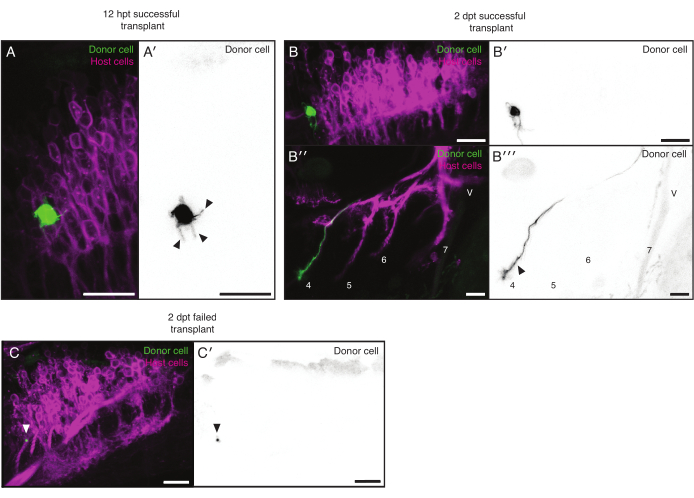
Figura 5: Resultados representativos. (A, B) Transplantes bem-sucedidos. (A) A região anterior de um núcleo motor vago do hospedeiro de 12 hpt (magenta) contendo um neurônio doador (verde, preto em A'). O neurônio doador estendeu vários neurites (setas em A'). (B) O núcleo motor vago (B-B') e os ramos do axônio faríngeo (B''-B''', ramos do axônio marcados) de um hospedeiro de 2 dpt (magenta) contendo um neurônio doador (verde, preto em B', B'''). O neurônio doador estendeu um novo axônio para o ramo 4 (pontas de setas). A Figura 5A, B representa diferentes animais. (C) Transplante malsucedido. O núcleo motor vago de um hospedeiro de 2 dpt (magenta). Nenhum neurônio doador está presente; em vez disso, uma pequena mancha (verde, preta em C '), provavelmente representando um fragmento de um neurônio doador morto (ponta de seta), está presente. Barras de escala = 20 μm. Abreviaturas: dpt = dias pós-transplante; HPT = horas pós-transplante. Clique aqui para ver uma versão maior desta figura.
Discussão
A biologia do desenvolvimento e regenerativa há mais de um século depende de experimentos de transplante para examinar os princípios de sinalização celular e determinação do destino celular. O modelo do peixe-zebra já representa uma poderosa fusão de abordagens genéticas e de transplante. O transplante nos estágios de blástula e gástrula para gerar animais em mosaico é comum, mas limitado em quais tipos de questões pode abordar. O transplante em estágio avançado é raro, embora métodos para transplantar neurônios motores espinhais embrionários e células ganglionares da retina em 16-18 hpf e 30-33 hpf, respectivamente, tenham sido relatados 26,27,28. Inspirando-se nesses esforços anteriores, este trabalho aumenta ainda mais o poder do transplante de peixe-zebra, descrevendo uma abordagem aplicável aos estágios embrionários e larvais tardios, abrindo a porta para seu uso em estudos de regeneração, e que integra abordagens transgênicas fluorescentes modernas para melhorar a marcação, transferência e rastreamento de longo prazo de células.
Este protocolo apresenta novas oportunidades para transplantar células de muitos estágios e idades de diferenciação diferentes, inclusive no contexto regenerativo. Por exemplo, o transplante de neurônios diferenciados tem sido usado para examinar como a dinâmica de sinalização afeta a identidade neuronal, alterando os contextos espaciais e temporais nos quais os neurônios se desenvolvem32; examinar o tempo de determinação neuronal26; como meio de ferir axônios e rastrear seu crescimento com resolução de célula única33; examinar o papel autônomo celular de um receptor durante a regeneração do axônio por meio de transplantes do tipo mutante para selvagem33; e examinar o papel da memória-alvo na orientação regenerativa do axônio33. Embora até agora tenhamos nos concentrado no transplante neuronal, não temos conhecimento de nenhuma característica dos neurônios que os torne exclusivamente adequados a essa abordagem; em vez disso, acreditamos que essa abordagem é aplicável a muitos tipos de células. Esperamos e esperamos que os pesquisadores encontrem maneiras criativas de examinar a dinâmica do desenvolvimento e regeneração em muitos contextos usando essa técnica.
As considerações críticas neste protocolo incluem a seleção de marcadores celulares, a adequação das células para transplante e a acessibilidade do tecido. Um marcador fluorescente brilhante, estável e permanente para células de doadores é importante para facilitar o transplante e o rastreamento subsequente. Tanto os corantes injetados quanto os transgenes podem ser usados, embora os transgenes possam ser mais permanentes e mais específicos para as células de interesse. A resistência ao fotobranqueamento também prolonga o tempo que se pode levar para realizar o transplante. As células do dador devem ser suficientemente frouxamente aderentes e de forma adequada para serem aspiradas para a agulha a partir do tecido circundante/matriz extracelular sem danos excessivos. As modificações para diferentes tipos de células incluem o ajuste do tamanho do furo da agulha, que deve ser ligeiramente maior que o diâmetro da célula de interesse; orientar adequadamente o animal durante a montagem para facilitar o acesso às células de interesse; e otimizar o nível de sucção ou interrupção física necessária para soltar e puxar as células. À medida que o animal envelhece, certos tecidos podem se tornar visual e/ou fisicamente inacessíveis, embora não tenhamos conhecimento de limites de idade específicos. Por exemplo, o crânio provavelmente acabará limitando o acesso aos neurônios. As modificações podem incluir o uso de animais não pigmentados para visualizar mais facilmente os tecidos internos, ou a realização de pequenas incisões preliminares, ajustes na espessura do tubo microcapilar ou formato da agulha puxada para facilitar a entrada da agulha.
As limitações deste protocolo incluem células de certos tipos e idades não passíveis de transplante, conforme descrito acima, e a dificuldade de manter estruturas em nível de tecido durante o transplante. Como esse procedimento requer que as células individuais sejam dissociadas de seus arredores durante a remoção, as interações célula-célula e as estruturas de ordem superior serão perdidas. O sistema imune inato, que se torna funcional durante a embriogênese, pode responder a danos teciduais ou à presença de células mortas e detritos no local do transplante, o que pode afetar a sobrevida das células doadoras37,38. Em estágios posteriores, as células doadoras também podem ser rejeitadas pelo sistema imunológico adaptativo, que se torna funcional em 3-6 semanas após a fertilização39,40. Esse problema pode ser evitado transplantando para hospedeiros sem imunidade adaptativa ou inata 41,42,43,44.
Possíveis dificuldades com o protocolo que podem exigir solução de problemas incluem o seguinte: Primeiro, o material dentro da agulha deve se mover de maneira suave e responsiva durante a sucção e a pressão. O movimento instável e inconsistente é provavelmente causado pela presença de bolhas de ar na linha hidráulica ou um entupimento parcial na agulha; Portanto, deve-se ter cuidado para remover todas as bolhas de ar da agulha e da linha hidráulica durante a configuração. Se forem encontradas bolhas de ar, retorne a agulha à posição de carregamento usando o micromanipulador grosso, remova a agulha do suporte e lave a agulha e forre com óleo mineral antes da remontagem. O entupimento da agulha pode ser mitigado evitando quebras irregulares da agulha. Às vezes, os entupimentos podem ser resolvidos expelindo o óleo mineral da ponta da agulha para empurrar o entupimento ou retraindo totalmente e reinserindo a agulha no RPT; caso contrário, uma nova agulha deve ser usada. Em segundo lugar, pode haver dificuldade em soltar as células durante a remoção. Quebrar a ponta da agulha em um ângulo para uma forma chanfrada, mover a agulha para frente e para trás durante a sucção e ajustar a força de sucção pode ajudar a soltar as células para o desprendimento do tecido. Um micromoedor também pode ser usado para preparar agulhas chanfradas com um tamanho de abertura e ângulo específicos36. Por fim, pode haver danos às células durante a remoção. As células gravemente danificadas podem perder sua forma definida e aparecer como pequenos fragmentos ou bolhas fluorescentes amorfas na agulha de injeção. A falha em sobreviver das células após o transplante também pode ser uma indicação de dano e pode ser facilmente testada pela ausência de células marcadas com fluorescência no hospedeiro. A solução de problemas para danos celulares repetidos pode incluir aumentar o tamanho do furo da agulha e limitar a quantidade de sucção aplicada para reduzir a força de cisalhamento. Uma agulha parcialmente entupida também pode aumentar as forças de cisalhamento, causando danos.
Divulgações
Os autores não têm conflitos de interesse a divulgar.
Agradecimentos
Agradecemos a Cecilia Moens pelo treinamento em transplante de peixe-zebra; Marc Tye pelo excelente cuidado com os peixes; e Emma Carlson pelo feedback sobre o manuscrito. Este trabalho foi apoiado pelo NS121595 de concessão do NIH para AJI
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 10 mL "seringa de reservatório" | Fisher Scientific | 14-955-459 | |
| Filtro de vácuo descartável de 150 mL, .2 µ m, PES | Corning | 431153 | |
| bloco de aquecimento de 20 x 12 mm | Corning | 480122 | |
| torneira de 3 vias | Braun Medical Inc. | ||
| 3 x 1 Corrediça de vidro fosco | VWR | 48312-004 | |
| 40x objetiva de imersão em água | Nikon | MRD07420 | |
| Cloreto de cálcio di-hidratado | Sigma-Aldrich | C3306 | |
| Manipulador grosseiro | Narishige | MN-4 | |
| Bomba de microsseringa personalizada | Universidade de Oregon | N / A | Fabricado pela oficina mecânica da Universidade de Oregon (tsa.uoregon@gmail.com). Uma alternativa comercialmente disponível está listada abaixo. |
| Dumont #5 Fórceps | Fine Science Tools | 1129500 | |
| Eclipse FN1 "Microscópio de Transplante" | Nikon | N/A | |
| cabo de eletrodo | Precision Instruments | 5444 | |
| Lâmina Cirúrgica Estéril de Penas, #11 | VWR | 21899-530 | |
| Micromanipulador fino, Hidráulico de óleo de três eixos | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| Cabo de bisturi de alta precisão #3 | Fisher Scientific | 12-000-163 | |
| Pipeta Pasteur de Borosilicato Descartável Kimble, Ponta Larga, 5.75 in | DWK Life Sciences | 63A53WT | |
| Adaptador de Cromatografia KIMBLE | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Óleo Mineral Leve | Sigma-Aldrich | M3516-1L | |
| LSE, 1 bloco, 120 V | Bomba | 6875SB | |
| World Precision Instruments | MMP | Alternativa comercial à bomba de microsseringa personalizada | |
| Suporte de Microeletrodo | World Precision Instruments | MPH310 | |
| MicroFil Pipeta Filler | World Precision Instruments | MF28G67-5 | |
| Esmalte | Unhas Eletrônica Microscopia Sciences | 72180 | |
| Água livre de nuclease | VWR | 82007-334 | |
| P-97 Tipo Flamejante/Marrom Micropipeta Extrator | Sutter Instruments | P-97 | |
| Penicilina-estreptomicina | Sigma-Aldrich | p4458-100ML | 5.000 unidades de penicilina e 5 mg de estreptomicina/mL |
| bomba de pipeta 10 mL | Bel-Art | 37898-0000 | |
| Cloreto de potássio | Sigma-Aldrich | P3911 | |
| Professional Super Glue | Loctite | LOC1365882 | |
| Tubos | de ensaio de poliestireno de fundo redondoFalcon | 352054 | |
| Cloreto de sódio | Sigma-Aldrich | S9888 | |
| Micrômetro de estágio | Meiji Techno America | MA285 | |
| Seringas sem agulha, 50 mL | BD Medical | 309635 | |
| Tricaine Methanosulfonate | Syndel USA | SYNCMGAUS03 | |
| Trilene XL linha de pesca de fundição suave | Berkley | XLFS6-15 | |
| Tubos, polietileno nº 205 | BD Medical | 427445 | |
| UltraPure Low Melting Point Agarose | Invitrogen | 16520050 | |
| Micropipetas calibradas Wiretrol II | Drummond | 50002010 |
Referências
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Reimpressões e permissões
