Este protocolo detalha a preparação de meios limitados por Zn2+, vasos de crescimento e culturas de sementes para produzir ribossomos limitados por Zn2+ em micobactérias. Traços de Zn2+ levam ao crescimento limitante de Zn2+ e descrevemos características morfogênicas usadas como bioindicadores para verificar a limitação de Zn2+ in vitro na bactéria modelo, Mycobacterium smegmatis, e no patógeno humano M. tuberculosis.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Usando Mycobacterium smegmatis como um bioindicador para condições de crescimento limitado por zinco em micobactérias
* These authors contributed equally
Neste artigo
Resumo
Resumo
Muitas bactérias constroem ribossomos alternativos em condições de crescimento limitantes de Zn2+, substituindo proteínas ribossômicas de ligação a Zn2+ por parálogos independentes de Zn2+. A definição de um sistema para estudar esses ribossomos alternativos tem se mostrado difícil porque a contaminação por Zn2+ em laboratório é comum. Para resolver esse problema, agentes quelantes às vezes são adicionados aos meios de crescimento, mas essa abordagem complica a resposta biológica à limitação gradual do Zn2+ e está associada à hibernação do ribossomo. Aqui, instruções detalhadas são descritas para preparar meios e culturas de semeadura para crescimento limitado de Zn2+ sem adição de quelantes. Seguindo este método, a bactéria modelo, Mycobacterium smegmatis, sofre morfogênese, que depende de ribossomos alternativos. Como a morfogênese é tratável e ocorre apenas em condições limitantes de Zn2+, M. smegmatis pode ser usado como um bioindicador para verificar condições de crescimento biologicamente relevantes. Três fenótipos de bioindicadores (densidade celular, comprimento celular e fluorescência da coenzima F420) que indicam limitação de Zn2+ no tipo selvagem são descritos, e mudanças nesses bioindicadores para um mutante de deleção que não pode construir ribossomos alternativos são descritos. Como a contaminação por traços de Zn2+ é difícil de controlar para cada lote de meio, e a quantificação precisa de Zn2+ em cada preparação de meio é excessivamente onerosa, seguir esse fenótipo bioindicador é uma maneira acessível de validar a preparação de meios de crescimento limitados por Zn2+. Para ajudar a identificar as condições adequadas para o crescimento limitante do Zn2+ e a produção alternativa de ribossomos, as mudanças nos fenótipos dos bioindicadores também foram perfiladas para preparações contaminadas com Zn2+ ou severamente depletadas de Zn2+ de meios limitados por Zn2+. Mais detalhes para alcançar o crescimento limitante de Zn2+ e a produção alternativa de ribossomos em M. tuberculosis são apresentados, juntamente com o fenótipo bioindicador associado. No geral, as instruções detalhadas e os fenótipos de bioindicadores descritos aqui ajudarão a padronizar a produção de ribossomos alternativos translacionalmente ativos em micobactérias.
Introdução
O íon zinco (Zn2+) é um micronutriente essencial e um componente padrão dos meios microbiológicos. No entanto, muitas bactérias sofrem limitação de Zn2+ no ambiente, pois as condições limitantes de Zn2+ são generalizadas; solo1, marine2 e nichos dentro do hospedeiro3 são frequentemente limitados por Zn2+. Como tal, a maioria das bactérias desenvolveu mecanismos para superar a limitação do Zn2+ e preservar a função celular4. Os sistemas envolvidos na manutenção da homeostase do Zn2+ estão sob rígido controle transcricional5 e estão envolvidos na eliminação do Zn2+ usando sistemas de importação de Zn2+ de alta afinidade, mobilizando reservas celulares de Zn2+ e substituindo certas proteínas de ligação ao Zn2+ por parálogos alternativos independentes de Zn2+6. Um exemplo deste último são os parálogos de proteína ribossômica (RPs) independentes de Zn2+, que são uma característica comum de regulons responsivos a Zn2+ em bactérias4. Esses RPs independentes de Zn2+ altamente divergentes são distinguidos de seus parálogos de ligação de Zn2+ pela interrupção do motivo CXXC de ligação de Zn2+7. Mais da metade dos genomas procarióticos sequenciados contêm pelo menos um par de RPs duplicados onde, em muitos deles, um RP se liga a Zn2+, enquanto seu parálogo não8. Embora a notação C+/C- (indicando a presença/ausência do motivo de ligação Zn2+ rico em cisteína) seja comumente usada em referência a esses pares de RP parálogos7, os RPs independentes de Zn2+ também foram descritos como versões alternativas (Alt) dos parálogos primários (Prim) de RP de ligação a Zn2+, uma vez que os AltRPs servem como RPs alternativos para a biogênese do ribossomo no Zn2+-condição limitada em algumas bactérias e é uma palavra-chave com melhor capacidade de pesquisa9,10,11.
Como a expressão de AltRP é rigidamente regulada por Zn2+, é lógico supor que a expressão de AltRP oferece redundância funcional para proteínas ribossômicas dependentes de Zn2+ em face da limitação de Zn2+. De fato, essa característica dos AltRPs foi demonstrada para a bactéria modelo do solo Bacillus subtilis, onde o crescimento é resgatado durante a limitação de Zn2+ pela liberação da superfície PrimRP L31 e substituição pelo AltRP L3112,13. No entanto, alguns AltRPs são parálogos aos PrimRPs principais, por exemplo, S14, o que significa que sua incorporação é necessária durante a biogênese do ribossomo12,13. Reconstruir o ribossomo com AltRPs é um programa comprometido e intensivo em energia. Embora esses AltRPs centrais possam servir para liberar Zn2+ do ribossomo, também é possível que alguns AltRPs tenham evoluído uma função adicional no ambiente limitado por Zn2+. Isso é apoiado pela observação de que os AltRPs são divergentes de seus PrimRPs parálogos; a homologia da sequência dos genes AltRP é frequentemente maior entre homólogos em diferentes espécies do que a sequência do gene PrimRP de ligação a Zn2+ dentro da mesma espécie7,10. Como os genes que codificam AltRPs altamente divergentes estão sob controle transcricional dependente de Zn2+, eles são removidos da pressão seletiva exercida sobre os superoperons ribossômicos fortemente regulados e altamente conservados14. A pressão seletiva dissociada sobre a informação genética que codifica a maquinaria ribossômica e os AltRPs expõe esses RPs a trajetórias evolutivas diferentes das PrimRPs homólogas e pode permitir a evolução específica da linhagem do mesmo AltRP em diferentes bactérias10,15. A existência generalizada de AltRPs em bactérias e a regulação genética dissociada desses RPs únicos levanta uma questão interessante sobre se a incorporação de AltRPs em ribossomos bacterianos confere uma propriedade especial aos ribossomos contendo AltRP (ribossomos Alt).
As micobactérias são um grupo ideal de bactérias para investigar as propriedades mecanicistas dos ribossomos Alt. Primeiro, as micobactérias possuem um operon altRP altamente conservado contendo quatro genes que codificam AltRPs: S14-2, S18-2, L28-2 e L33-28,9. Os AltRPs micobacterianos são significativamente diferentes de seus parálogos PrimRP; em todos os quatro pares PrimRP / AltRP, um determinado gene AltRP é mais semelhante em todas as espécies de micobactérias do que ao gene PrimRP na mesma espécie10. A evolução específica da linhagem de AltRPs também é aparente dentro de micobactérias, como evidenciado por AltRPs S18-2 e L28-2 em Mycobacterium tuberculosis e M. bovis, que contêm sequências únicas no terminal C que não estão presentes em outras micobactérias10. Em segundo lugar, este grupo de bactérias altamente relacionadas contém membros não patogênicos e patogênicos que residem em diversos ambientes, desde o solo (por exemplo, M. smegmatis) até uma miríade de hospedeiros: humanos (por exemplo, M. tuberculosis), bovinos (por exemplo, M. bovis), aquáticos (por exemplo, M. marinum) e aviários (por exemplo, M. avium), para citar alguns. A natureza altamente conservada do operon altRP em micobactérias, a evolução específica da linhagem de genes AltRP específicos e os ambientes muito diferentes nos quais os membros desse grupo existem fornecem uma oportunidade única para analisar a evolução conservada e específica da linhagem da função AltRP e propriedades mecanicistas dos ribossomos Alt. Apesar da abundância de AltRPs em genomas procarióticos, o papel de AltRPs e Alt-ribossomos foi investigado em apenas algumas bactérias9,10,11,12,13,16,17,18,19. O estabelecimento de um sistema padronizado com métricas específicas para validar as condições de crescimento limitantes de Zn2+ em micobactérias melhoraria os resultados experimentais e avançaria a compreensão dos ribossomos Alt no campo da pesquisa de ribossomos.
Zn2+ é um micronutriente; portanto, traços de contaminação do Zn2+ em produtos químicos e água contribuem para a biodisponibilidade do Zn2+, mesmo quando omitidos da preparação do meio. Os vestígios de Zn2+ presentes na água ou produtos químicos podem variar drasticamente entre os laboratórios, afetando assim o resultado do crescimento limitante do Zn2+. Quantificar empiricamente o [Zn2+] em cada preparação independente de meio é excessivamente oneroso para a maioria dos laboratórios que realizam ensaios de crescimento de rotina, mas um mecanismo para eliminar a possibilidade de contaminação por Zn2+ em meios de crescimento seria intrinsecamente valioso. Para este fim, é apresentado aqui um método detalhado para preparar um meio limitado por Zn2+ quimicamente definido (ZLM), vasos de crescimento e culturas de sementes para crescimento limitante de Zn2+ e produção de ribossomo Alt em M. smegmatis e M. tuberculosis. As principais características morfogênicas (densidade celular medida por OD600, comprimento celular e fluorescência da coenzima F420) após o crescimento em ZLM são usadas para verificar se a limitação de Zn2+ foi alcançada. A coenzima F420 é um cofator de deazaflavina que tem papéis importantes no catabolismo e na defesa contra o estresse oxidativo em metanógenos e micobactérias20,21. É importante ressaltar que as micobactérias são autofluorescentes quando excitadas a 420 nm devido à abundância desse cofator22. A ligação molecular entre a fluorescência [Zn2+] e F420 permanece sem solução, mas seguir a fluorescência F420 em culturas é um bioindicador tratável e confiável.
Em M. smegmatis, os fenótipos bioindicadores ocorrem nas bactérias do tipo selvagem, mas um mutante de deleção sem o operon altRP não passa pelo mesmo programa morfogênico e pode ser usado como um bioindicador diferencial10. Embora M. tuberculosis não siga o mesmo programa morfogênico que M. smegmatis durante a limitação de Zn2+, M. tuberculosis tem uma resposta robusta e global ao Zn2+ limitação e um fenótipo bioindicador chave seguindo este método23. Assim, o sistema definido aqui permite que os ribossomos Prim e Alt- sejam gerados sob as mesmas condições de crescimento (ou seja, limitação de Zn2+), facilitando a dissecação mecanicista da função do ribossomo Alt e seu papel na formação da fisiologia bacteriana. Este método de crescimento foi usado para resolver a estrutura dos ribossomos Alt ativos e demonstrar sua atividade translacional em M. smegmatis24. Além disso, apoiando que este método de crescimento e fenótipo bioindicador destaca a funcionalidade biológica dos AltRPs durante a limitação do Zn2+, a expressão de AltRP é necessária para a morfogênese dependente de Zn2+ e tem um efeito profundo no transcriptoma e proteoma de M. smegmatis10,25. O mesmo método, com pequenas modificações na quantidade de inóculo e no tempo de incubação, é usado para gerar culturas limitadas a Zn2+ de M. tuberculosis9,23. Aqui, são detalhados protocolos e fenótipos bioindicadores para alcançar o crescimento limitante de Zn2+ em M. smegmatis e M. tuberculosis, com foco em M. smegmatis, uma vez que essa bactéria é mais sensível à contaminação por Zn2+ no meio e é mais amplamente acessível do que o patógeno de crescimento lento.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
OBSERVAÇÃO: As cepas utilizadas neste estudo são M. smegmatis selvagem mc2 155 (doação do Dr. Robert Husson, Boston Children's Hospital) e a cepa deletada ΔaltRP (originada no laboratório Prisic10). Elas podem ser cultivadas em laboratório de Nível 1 de Biossegurança (NB1) ou em laboratório de NB2, dependendo das regulamentações locais de biossegurança e dos recursos disponíveis. Aqui, o protocolo foi escrito para um laboratório de NB2. Se for realizado em um laboratório de NB1, uma técnica asséptica com bico de Bunsen pode substituir a cabine de segurança biológica. Além disso, pesquisadores que desejarem incluir outras cepas ou condições precisarão calcular o volume de meio necessário com base no número total de culturas analisadas. Manipule a M. tuberculosis patogênica H37Rv (Mtb-H37Rv; doação do Dr. Robert Husson, Boston Children's Hospital) em laboratório de NB3, utilizando um respirador (por exemplo, PAPR ou N95). Não reutilize frascos ao cultivar micobactérias altamente virulentas, como a Mtb-H37Rv. A M. tuberculosis auxotrófica mc26206 (Mtb-Aux) é atenuada e pode ser manipulada em laboratório de NB2 (doação do Dr. William R. Jacobs Jr., Albert Einstein College of Medicine).
1. Preparação dos frascos
OBSERVAÇÃO: Condições de crescimento com limitação de Zn2+ são obtidas em frascos Erlenmeyer de policarbonato reutilizáveis (autoclaváveis) de 250 mL. Não utilize frascos de vidro para o crescimento com limitação de Zn2+, ou investigue e compare rigorosos procedimentos de lavagem ácida com os resultados apresentados neste protocolo19. Frascos novos são adequados para alcançar condições de crescimento com limitação de Zn2+, mas nunca misture frascos novos e usados em um mesmo experimento. Descarte frascos que apresentem sinais de fragilidade (geralmente nas costuras) ou que tenham sido utilizados mais de aproximadamente 20 vezes. Verifique regularmente os filtros das tampas quanto a degradação e descarte-os se estiverem comprometidos. Se presentes, descarte as tampas rosqueáveis que cobrem os filtros na parte superior das tampas. Este método descreve as precauções adotadas para limpar os frascos e prepará-los para reutilização.
- Rotule permanentemente os frascos para que o mesmo conjunto seja usado apenas em condições de limitação de Zn2+. Rotule outro conjunto de frascos para o crescimento com Zn2+ em abundância. O uso de cores diferentes para rotulagem é útil para evitar a mistura dos frascos.
- Nunca permita que resíduos de cultura sequem dentro dos frascos. Adicione água aos frascos imediatamente após decantar a cultura (por exemplo, 100 mL). Se a cultura não for colhida ao final do crescimento, esvazie os frascos despejando toda a cultura em um recipiente para descarte de resíduos líquidos com concentração final de 10% de água sanitária, após registrar os fenótipos dos bioindicadores conforme descrito neste protocolo.
- Autoclave os frascos no ciclo para líquidos (pelo menos 121 °C a 15 psi) por 20 min, com a água dentro e as tampas colocadas.
- Após a autoclavação, lave os frascos com detergente não iônico e de baixa formação de espuma, escovando bem com uma escova macia. Destine uma escova exclusivamente para a lavagem dos frascos usados no crescimento com limitação de Zn2+. Certifique-se de que os frascos estejam limpos, sem resíduos ou detritos. Não escove nem use sabão nas tampas; enxágue suavemente com água desionizada.
- Enxágue bem os frascos com água da torneira, seguido por três enxágues com água desionizada (tipo II ou III) e pelo menos mais um enxágue com água ultrapura (tipo I) (18,2 MΩ-cm a 25 °C e ≤ 5 ppb de carbono orgânico total).
- Coloque os frascos na posição vertical e de cabeça para baixo para que a água não acumule no fundo. Não use estantes de secagem laboratoriais padrão montadas na parede, pois essas mantêm os frascos em um ângulo e permitem a formação de pequenas poças de água. Estantes comuns para utensílios de laboratório são suficientes. Deixe os frascos e as tampas secarem completamente.
- Uma vez secos, rosqueie as tampas nos frascos e cubra-as com papel alumínio. Fixe uma tira de fita indicadora de autoclave no papel alumínio para indicar o status estéril e proteger os filtros das tampas contra poeira.
- Autoclave os frascos limpos (pelo menos 121 °C a 15 psi) por 20 min, seguido por um ciclo de vácuo pós-autoclavagem para secar a carga (se a autoclave estiver equipada com esse recurso). Armazene os frascos secos e protegidos contra poeira.
2. Preparação do meio limitante em Zn2+ (ZLM)
OBSERVAÇÃO: Utilize apenas béqueres de plástico, cilindros graduados e quaisquer outros materiais descartáveis para preparar os meios. Designe um conjunto de vidraria que seja usado exclusivamente para o preparo de meios com limitação de Zn2+. Enxágue toda a vidraria cuidadosamente com água ultrapura (tipo I) antes e após o uso. Utilize produtos químicos de alta pureza e compre dos mesmos fornecedores, sempre que possível.
- Prepare o meio de Sauton limitado em Zn2+, sem sais adicionais de Zn2+26, misturando os seguintes produtos químicos com cerca de 950 mL de água ultrapura em um béquer plástico de 1 L com um bastão de agitação:
0,5 g de KH2PO4 (0,05%; MM: 136,09)
0,5 g de MgSO4 x 7H2O (0,05%; MM: 246,48)
2 g de ácido cítrico anidro (0,2%; MM: 192,12)
4 g de L-asparagina, 99% (0,4%; MM: 132,12)
60 mL de glicerol (6%)
189 µL de solução de citrato férrico de amônio 1 M (0,005%; MM: 265)- Adicione o glicerol utilizando uma pipeta serológica plástica descartável de 50 mL. Enxágue bem a pipeta pipetando para cima e para baixo cerca de 10 vezes no meio, até que não reste glicerol residual na pipeta.
NOTA: O glicerol é altamente viscoso e difícil de medir. Alternativamente, o glicerol também pode ser despejado em um cilindro graduado e enxaguado várias vezes com cerca de 30 mL de água ultrapura, que então são adicionados ao meio. Se adotar essa abordagem, comece com um volume menor (~600 mL) para que o volume final não ultrapasse ~950 mL após a adição do glicerol e das lavagens do cilindro graduado ao meio.
- Adicione o glicerol utilizando uma pipeta serológica plástica descartável de 50 mL. Enxágue bem a pipeta pipetando para cima e para baixo cerca de 10 vezes no meio, até que não reste glicerol residual na pipeta.
- Complete o volume do meio até cerca de 950 mL e misture bem. A L-asparagina leva alguns minutos para se dissolver; aguarde até que não haja mais flocos brancos antes de prosseguir.
NOTA: A solução de citrato férrico de amônio confere ao meio uma coloração amarelo-claro. - Prepare 15 mL de solução fresca de NaOH (~10% p/v) com água ultrapura em um recipiente plástico (por exemplo, tubo cônico de 15 mL).
- Enxágue completamente um medidor de pH com água ultrapura antes do uso e imerja apenas a lâmpada do medidor de pH no meio. Mantenha o medidor de pH no meio com agitação suave enquanto ajusta o pH. Utilizando uma pipeta plástica descartável, adicione a solução de NaOH recém-preparada até atingir um pH final de 7,4.
NOTA: O pH inicial do meio é altamente ácido. É necessário um grande volume da solução de NaOH para elevar o pH até a faixa neutra. Adicione inicialmente 4-6 mL da solução de NaOH; quando o pH atingir cerca de 6,5, adicione a solução de NaOH gota a gota. Não ultrapasse o pH-alvo de 7,4. Se isso ocorrer, não tente reajustar com HCl ou outros ácidos – descarte o meio. É recomendável destinar um medidor de pH exclusivamente para a preparação do meio limitado em zinco (ZLM) e não utilizá-lo para medir o pH de outros meios ou tampões que possam contaminar a sonda. - Transfira o meio para um cilindro graduado e complete até o volume final de 1 L com água ultrapura. Esterilize o meio por filtração através de um frasco-filtro descartável de 0,2 µm.
- Adicione assépticamente 2,5 mL de solução de Tween-80 a 20%, previamente filtrada e esterilizada (concentração final de 0,05%). Armazene a 4 °C, protegido da luz, por até 6 meses.
Crescimento limitado por Zn2+ em M. smegmatis
OBSERVAÇÃO: Devido à variação entre lotes na quantidade de Zn2+ presente no ZLM, é imprescindível usar o mesmo lote de meio ou vários meios que tenham sido bem misturados entre si para todas as culturas em um experimento. Além do meio necessário para preparar as culturas, cerca de 100 mL a mais são necessários para lavar e normalizar as culturas semente.
- Realize todas as etapas em uma cabine de segurança biológica. Prepare culturas sementes 18 h antes de montar um experimento de crescimento. Não utilize culturas sementes supercrescidas ou com aglomeração. Uma cultura semente por linhagem é suficiente.
- Adicione assépticamente 5 mL de meio 7H9-ADC (caldo Middlebrook 7H9 com 0,05% de Tween 80 e enriquecimento com 10% de ADC [concentração final: 0,5% de albumina sérica bovina, 0,2% de dextrose, 0,085% de NaCl e opcionalmente 0,0003% de catalase]) a um tubo de biorreator de 50 mL.
- Adicione assépticamente 10 µL de células de estoque glicerinado descongeladas (preparadas conforme26) diretamente ao meio. Parafuse a tampa do tubo.
- Posicione firmemente os tubos em um incubador com agitação em um ângulo de aproximadamente 45°, de modo que o líquido alcance cerca da metade do tubo durante a agitação.
- Incube os tubos a 37 °C com agitação a 120 rpm por aproximadamente 18 h.
- Verifique as culturas sementes noturnas para garantir que a cultura esteja uniformemente turva e não apresente aglomeração significativa. A densidade óptica a 600 nm (OD600) da cultura noturna deve ser idealmente em torno de 0,5-0,8.
- Centrifugue as culturas noturnas nos tubos de biorreator, usados para crescimento noturno, a 3.000 x g durante 5 min à temperatura ambiente para obter o pellet.
- Decante ou aspire o sobrenadante e ressuspenda em 5 mL de ZLM. Repita os passos de centrifugação e ressuspensão 2 vezes, totalizando três lavagens.
- Durante as etapas de centrifugação, encha uma cubeta até transbordar com etanol a 70% para esterilização. Deixe a cubeta cheia repousar na cabine de segurança biológica por 10 min e enxágue bem 3 vezes com ZLM usando uma pipeta.
NOTA: O processo de normalização celular exige tempo e prática para ser realizado com eficiência. Ao normalizar as células diretamente na cubeta esterilizada com etanol, o processo é grandemente acelerado. - Prepare um número suficiente de cubetas para o número de linhagens incluídas no estudo, por exemplo, este protocolo exige duas cubetas esterilizadas, uma para o tipo selvagem e outra para o mutante ΔaltRP.
- Durante as etapas de centrifugação, encha uma cubeta até transbordar com etanol a 70% para esterilização. Deixe a cubeta cheia repousar na cabine de segurança biológica por 10 min e enxágue bem 3 vezes com ZLM usando uma pipeta.
- Após três lavagens com ZLM, ressuspenda cada pellet celular em 2 mL de ZLM.
- Use 600 µL de ZLM em uma cubeta para zerar o espectrofotômetro. A cubeta não precisa ser esterilizada. Reserve a cubeta e use-a para zerar o espectrofotômetro antes de normalizar cada cultura (ou seja, cada linhagem).
- Trabalhando com uma linhagem por vez, transfira 600 µL de células lavadas do passo 3.5 para uma cubeta esterilizada preparada no passo 3.4.1 e meça a OD600 inicial. Se a OD600 for superior a 1, prossiga para o passo 3.8. Se a OD600 for inferior a 1, siga os subpassos 3.7.1 e 3.7.2.
- Se a leitura inicial de OD600 do passo 3.7 for inferior a 1, recolha toda a cultura dentro da cubeta, devolva-a ao restante das células sementes lavadas no tubo de centrífuga e centrifugue novamente conforme o passo 3.3. Ressuspenda a cultura em um volume menor do que o usado no passo 3.5 (por exemplo, 1 mL) para obter uma densidade celular mais alta e repita o passo 3.7.
- Se a OD600 após o passo 3.7.1 ainda for inferior a 1, a cultura não está suficientemente densa; reinicie o procedimento a partir do passo 3.1. Incube as culturas por mais tempo ou aumente a quantidade de inóculo para preparar as culturas noturnas, de modo que a densidade final da cultura noturna seja em torno de OD600 = 0,5-0,8, conforme descrito no passo 3.2.
- Calcule o volume de ZLM a ser adicionado aos 600 µL de células lavadas na cubeta para obter uma OD600 de 1, utilizando a seguinte equação e a OD600 medida no passo 3.7:
Volume de ZLM (μL) = (OD600 inicial - 1) × 600 μL - Adicione o volume de ZLM calculado no passo 3.8 à cubeta preparada no passo 3.7, homogeneíze bem pipetando de 5 a 10 vezes e meça novamente a OD600.
- Ajuste a OD600 para dentro de 5% da OD600 = 1 seguindo os subpassos listados abaixo. Use duas pipetas, sendo uma (tamanho P1000) dedicada à mistura da cultura, para evitar o uso excessivo de ponteiras em cada ajuste.
- Se a OD600 for superior a 1, adicione ZLM gota a gota (~50 µL de cada vez), homogeneíze bem pipetando para cima e para baixo de 5 a 10 vezes e meça a OD600. Repita este processo conforme necessário até que a cultura esteja dentro de 5% da OD600 = 1.
- Se a OD600 cair abaixo de 1 durante a normalização, adicione mais células lavadas (~20 µL inicialmente) do passo 3.5, homogeneíze bem pipetando de 5 a 10 vezes e meça a OD600. Repita este processo conforme necessário (ou adicione mais ZLM conforme descrito no passo 3.10.1 se a OD600 ultrapassar 1) até que a cultura esteja dentro de 5% da OD600 = 1.
- Assegure-se de que o volume na cubeta não exceda ~1,5 mL durante a normalização celular para evitar derramamento no espectrofotômetro. Remova cultura da cubeta ao diluir, se necessário. Também certifique-se de que o volume da cultura na cubeta esteja acima do mínimo necessário para medir com precisão a OD600 no espectrofotômetro. A maioria dos espectrofotômetros exige pelo menos 600 µL.
- Repita os passos de normalização celular (3.6 - 3.10) para todas as linhagens e condições incluídas no estudo.
- Prepare o número total de frascos necessários para um experimento adicionando assépticamente 50 mL de ZLM em frascos Erlenmeyer plásticos de 250 mL preparados conforme descrito no passo 1.
- Inocule os frascos adicionando assépticamente 50 µL da cultura normalizada com OD600 = 1 diretamente da cubeta, obtendo uma OD600 final de 0,001 (diluição 1:1000 do inóculo normalizado).
- Para culturas cultivadas sem limitação de Zn2+ (ou seja, meio repleto de Zn2+, ZRM), adicione 30 µL de ZnSO4 estéril 10 mM (preparado recentemente a partir de solução estoque estéril 1 M) diretamente aos frascos de cultura, obtendo uma concentração final de 6 µM de ZnSO4.
- Incube os frascos a 37 °C com agitação a 100 rpm por 3 dias até a fase estacionária (Dia 0 é o dia da inoculação).
- A cada dia de crescimento, use um leitor de microplacas com monocromador ou com filtros para medir as seguintes métricas de crescimento utilizando 200 µL de cultura em uma microplaca de 96 poços com fundo plano. Realize as leituras da placa imediatamente após a alíquota das células para evitar sedimentação.
NOTA: O pré-aquecimento do leitor de placas não é necessário, pois os valores absolutos de fluorescência são menos informativos do que as razões e os espectros de fluorescência, e o pequeno volume medido equilibra rapidamente à temperatura ambiente durante a preparação da placa. A fluorescência pode ser medida a partir da parte superior ou inferior da placa se houver condensação na tampa, embora os valores de intensidade de fluorescência sejam geralmente menores quando lidos pela parte inferior.- Densidade celular (ou seja, OD600): Para relatar a OD600 obtida de um leitor de microplacas, gere uma curva padrão para converter a leitura do caminho óptico da microplaca com um volume fixo (por exemplo, 200 µL) para o caminho óptico padrão de 1 cm.
- Fluorescência do cofator F420 (ex 420 nm/em 475 nm): Para leitores de microplacas com filtros, use o conjunto de filtros mais próximo (por exemplo, ex 430 nm/em 488 nm) e microplacas pretas de 96 poços.
- Meça a fluorescência de fundo a 375 nm (ex 375 nm/em 475 nm).
- Se estiver usando um monocromador, gere um espectro de intensidade de fluorescência de ex 230 - 440 nm em incrementos de 5 nm e emissão fixa em 475 nm.
- Se estiver usando um monocromador, calcule a porcentagem de intensidade de fluorescência a 375 nm em relação a 420 nm usando a equação:
F375/420 (%) = (F375/F420) x 100
4. Gravação e medição do comprimento celular
- No dia 3, visualize e registre o comprimento das células. Limpe uma lâmina de vidro e uma lamínula com um pano sem fiapos. Pipete uma gota de 10 µL de cultura sobre a lâmina e coloque a lamínula diretamente sobre a cultura. Pressione suavemente a lamínula para que a cultura se espalhe e preencha quase toda a área sob a lamínula. Prepare as lâminas e visualize imediatamente para evitar secagem.
NOTA: Se a cultura não se espalhar facilmente, detritos podem estar impedindo um bom contato, e o movimento da água dificultará a captura de células em foco. Prepare uma nova lâmina. - Utilizando um microscópio composto (ou contraste de interferência diferencial, DIC, veja abaixo) com objetiva de imersão em óleo de 100x e ocular de 10x (aumento total de 1000x) e um adaptador para câmera, visualize a lâmina preparada.
NOTA: As células são muito mais fáceis de visualizar com o contraste fornecido pela microscopia de interferência diferencial (DIC)10. Utilize este tipo de microscópio para imagens de alta qualidade, se possível. Para análises rotineiras e verificação do estado de crescimento limitado por Zn2+, um microscópio composto de luz padrão é suficiente. - Tire fotos de áreas da lâmina com múltiplas células que estejam em foco, no mesmo plano (ou seja, todo o comprimento da célula seja visível) e que não estejam se movendo. Registre fotos suficientes em diferentes áreas da lâmina (ou em várias lâminas da mesma cultura) para que pelo menos 100 células sejam medidas.
- Utilizando o mesmo microscópio e objetiva, capture uma imagem de uma lâmina de calibração.
- No Fiji27, use a ferramenta de linha reta para traçar uma linha ao longo do comprimento da lâmina de calibração. Selecione Analisar > Definir escala e preencha a distância conhecida e a unidade da barra de escala. Selecione Global para aplicar a escala a todas as imagens e medições futuras.
- Abra uma foto do microscópio. Use a ferramenta de linha reta para traçar uma linha ao longo do comprimento de uma célula e pressione a tecla M no teclado para medir a célula. Meça pelo menos 100 células de cada cultura.
- Copie os dados de comprimento gerados na janela pop-up do Fiji para um software de planilha eletrônica ou salve-os como um arquivo de valores separados por vírgula (.csv) para análise estatística.
5. Modificações para o cultivo de M. tuberculosis (Mtb) limitado em Zn2+
OBSERVAÇÃO: Em contraste com Mtb-H37Rv, Mtb-Aux não consegue sintetizar L-leucina e D-pantotenato, e esses suplementos são adicionados ao meio28. A suplementação para Mtb-Aux não afeta a limitação de Zn2+, e ambas as cepas exibem fenótipos semelhantes em ZLM23. Este protocolo é uma modificação de um protocolo previamente publicado23, sendo a principal diferença o cultivo das culturas por 8 dias em vez de 10 dias, a fim de reduzir a agregação e permitir o enriquecimento de células isoladas, o que é necessário para aplicações posteriores, como infecções de macrófagos. Para outras diferenças menores, consulte a publicação original23. O método de inoculação difere de M. smegmatis devido ao inóculo muito maior necessário para iniciar o crescimento de M. tuberculosis.
- Para o Mtb-Aux, forneça suplementação adicional de 50 µg/mL de L-leucina e 48 µg/mL de D-pantotenato em todos os meios. Esterilize por filtração soluções estoque 1000x de 50 mg/mL de L-leucina e 48 mg/mL de D-pantotenato de cálcio com filtro de 0,2 µm e adicione aos meios esterilizados.
- Adicione assépticamente 1 mL de células em estoque glicerinado descongelado a 4 mL de 7H9-ADC em um tubo cônico redondo de 14 mL com tampa de encaixe (para Mtb-Aux) ou em um tubo de biorreator de 50 mL (para Mtb-H37Rv).
- Incube a 37 °C sem agitação até que a cultura atinja OD600 ~1. Isso levará cerca de 1 semana. Aire a cultura uma vez ao dia abrindo o tubo em uma cabine de segurança biológica e pipetando algumas vezes para misturar a cultura.
- Inocule 1 mL da cultura estacionária em 50 mL de 7H9-ADC em um frasco plástico ventilado de 250 mL. Uma cultura de 50 mL em 7H9-ADC é suficiente para triplicatas biológicas por linhagem e condição (ou seja, selvagem em ZLM e ZRM). Tenha cuidado para evitar grandes agregados (ou seja, grandes aglomerados de células) deixando a cultura repousar por 5-10 min antes da inoculação, permitindo que os agregados sedimentem no fundo do tubo, e coletando a cultura do topo.
NOTA: A inoculação com grandes agregados resulta em culturas agregadas, o que afeta a normalização e a reprodutibilidade da cultura. - Incube a 37 °C com agitação a 100 rpm até que a cultura atinja OD600 entre 0,5 e 0,8 (fase logarítmica média). Isso levará de 3 a 5 dias.
- Transfira a cultura para um tubo cônico de 50 mL e pelletize as células por centrifugação a 3.000 x g durante 10 min à temperatura ambiente. Descarte o sobrenadante aspirando 40 mL com uma pipeta serológica e removendo o sobrenadante restante com uma micropipeta P1000.
NOTA: Esta etapa é crítica para reduzir o arraste de Zn2+ proveniente do meio 7H9-ADC. - Resuspenda o pellet em 5 mL de ZLM e complete o volume total da cultura para 50 mL no tubo cônico com ZLM.
- Repita a centrifugação a 3.000 x g durante 10 min à temperatura ambiente para pelletizar as células. Descarte o sobrenadante. Resuspenda o pellet celular até o volume final de 50 mL conforme descrito na etapa 5.7.
- Meça a OD600 das células semente lavadas e calcule o volume necessário para obter uma OD600 inicial de 0,05 (Mtb-H37Rv) ou 0,08 (Mtb-Aux) em 50 mL usando a seguinte equação:
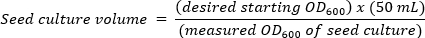
NOTA: O crescimento do Mtb-Aux com uma OD600 inicial de 0,05 é inconsistente; portanto, utiliza-se uma OD600 mais alta de 0,08 para garantir crescimento consistente. - Aliquote o volume da cultura semente calculado na etapa 5.9 em um novo tubo cônico de 50 mL e complete o volume para 50 mL com ZLM. Decante a cultura lavada e normalizada do tubo cônico para frascos Erlenmeyer plásticos preparados conforme descrito na etapa 1. Repita utilizando o mesmo tubo cônico para todas as réplicas biológicas de cada linhagem e condição.
- Para culturas cultivadas sem limitação de Zn2+ (ou seja, meios repletos de Zn2+, ZRM), adicione 30 µL de ZnSO4 10 mM estéril diretamente aos frascos de cultura para uma concentração final de 6 µM de ZnSO4.
- Incube os frascos de cultura a 37 °C com agitação a 100 rpm por 8 dias. Meça a OD600 e a fluorescência de F420 durante todo o crescimento conforme descrito na etapa 3. Descarte as culturas se estiverem agregadas nos primeiros dias de crescimento (ou seja, a cultura não apresenta turvação e há agregados visíveis ao longo da cultura).
NOTA: Idealmente, as culturas devem ser predominantemente planctônicas (ou seja, livres de grandes agregados visíveis a olho nu) durante os primeiros dias de crescimento. As culturas de Mtb, especialmente as em ZLM, tornam-se progressivamente mais agregadas ao longo do crescimento, e a presença de agregados flutuando na superfície do meio em forma de flocos é esperada na fase logarítmica tardia23.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
Fenótipos bioindicadores de M. smegmatis
Tipo selvagem M. smegmatis culturas cultivadas em ZLM que atingem Zn2+-limitação de crescimento apresentam três fenótipos bioindicadores principais quando comparados a células cultivadas sob Zn2+-condições de repleção: [1] diminuição da DO600, [2] células alongadas e [3] diminuição da fluorescência máxima em 420 nm. O mutante que lack AltRPs (ΔaltRP) não possui o mesmo Zn2+...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Uma grande contribuição para a lacuna de conhecimento sobre os fundamentos mecanicistas dos ribossomos Alt é a dificuldade em alcançar condições limitantes de Zn2+ in vitro. A contaminação por traços de Zn2+ no ambiente de laboratório é comum; assim, alcançar condições de crescimento limitadas por Zn2+ reprodutíveis é um desafio. A contaminação por Zn2+ pode se originar de várias fontes, embora a fonte mais significativa e comum de contaminação e variabilidade seja a á...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores não têm conflitos de interesse.
Agradecimentos
Este estudo foi financiado pelo Prêmio CAREER da National Science Foundation (NSF) 1844854, pelo Prêmio de Inovação da American Lung Association IA -937538 e pelo Instituto Nacional de Saúde (NIH) NIAID R21 AI109293 para SP O endereço atual da Allexa D. Burger é o Centro de Pesquisa em Biociências do Pacífico, Universidade do Havaí em Mānoa, Honolulu, Havaí, EUA.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Sistemas de filtração a vácuo de 1000 mL, linha padrão | VWR | 10040-440 | |
| Frascos agitadores Erlenmeyer de 125 mL | Greiner Bio-One | 679501 | |
| Tubos de cultura de 14 mL, plástico, com tampas de posição dupla | VWR | 60818-725 | |
| Frascos agitadores Erlenmeyer de 250 mL | Greiner Bio-One | 679502 | |
| 40X-1000X Composto Biológico Binocular de Laboratório Microscópio | Omax | M82EZ | |
| Tubos de Bio-Reação de 50 mL, Estéril | VWR | 76211-286 | |
| Tubos de Centrífuga de Alto Desempenho de 50 mL com Tampas de Bandeira | VWR | 89039-656 | |
| Alcojet Detergente em Pó de Baixa Formação de Espuma | Alconox | 1404 | |
| Citrato de Ferro Amônio (III), marrom | Thermo Scientific | AAA1119930 | MW: 265 g/mol, para solução 1M adicione 1,325 g a 5 mL de água ultrapura; armazene protegido da luz a 4 C |
| Albumina de soro bovino | Thermo Scientific | J10857-A1 | |
| D-pantotenato de cálcio | Thermo Scientific | AC243300050 | |
| Catalase | Sigma-Aldrich | C1345-10G | |
| Ácido cítrico anidro, cristalino | Fisher Scientific | BP339-500 | |
| Dextrose anidra | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Caldo | BD Diagnostics | 271310 | |
| Dilufotômetro OD600 para a Determinação da Densidade Celular e Ensaios de Bradford | Implen | OD600-10 | |
| GENios FL Leitor de Microplacas | Tecan | Descontinuado | |
| Glicerol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Leitor de Microplacas Multimodo | Tecan | LGE140213-20BL | |
| L-Asparagine | Thermo Scientific | AAB2147336 | |
| L-Leucina | Thermo Scientific | A1231122 | |
| Macrofire SP CCD câmera | Optrônica | Para uso com microscópio Olympus | |
| Sulfato de magnésio heptahidratado | VWR | 97062-134 | |
| Sistema de purificação de água Milli-Q Direct 8 | Millipore | C85358 | |
| Moticam X3 | Motic | Descontinuado, substituído pelo Moticam X5 Plus; para uso com microscópio composto | |
| Ácido oleico | Thermo Scientific | 031997-14 | |
| Microscópio vertical Olympus BX51 | Olympus | Descontinuado, substituído por BX53M | |
| Fosfato de potássio, monobásico | Fisher Scientific | BP362-500 | |
| Semi-Micro Cubetas de plástico descartáveis de dois lados | VWR | 97000-590 | |
| Cloreto de sódio, cristal | VWR | VW1494-01 | |
| Hidróxido de sódio | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| Sulfeto de zinco heptahidratado, cristalino/ | ACS MP Biomedicals | 219145290 |
Referências
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
