Aqui, estabelecemos um protocolo usando quantidades mínimas de seções de tecido cerebral recém-congelado e um método de centrifugação de alta velocidade acessível, juntamente com cromatografia de exclusão de tamanho para obter pequenas vesículas extracelulares como fontes de biomarcadores de microRNA (miRNA) para distúrbios neurológicos.
Artigo de método
Aproveitando o poder das cargas de microRNA em pequenas vesículas extracelulares liberadas de seções do cérebro humano recém-congeladas
Neste artigo
Resumo
Resumo
Pequenas vesículas extracelulares (sEVs) são mediadores cruciais da comunicação célula-célula, transportando diversas cargas como proteínas, lipídios e ácidos nucléicos (microRNA, mRNA, DNA). A carga de microRNA sEV tem utilidade potencial como um poderoso biomarcador de doença não invasiva devido à capacidade do sEV de atravessar barreiras biológicas (por exemplo, barreira hematoencefálica) e se tornar acessível por meio de vários fluidos corporais. Apesar de numerosos estudos sobre biomarcadores de sEV em fluidos corporais, a identificação de subpopulações de sEV específicas de tecidos ou células continua sendo um desafio, principalmente no cérebro. Nosso estudo aborda esse desafio adaptando os métodos existentes para isolar sEVs de quantidades mínimas de seções congeladas do cérebro humano usando cromatografia de exclusão de tamanho (SEC).
Após aprovação ética, aproximadamente 250 μg de tecido cerebral humano recém-congelado (obtido do Manchester Brain Bank [Reino Unido]) foram cortados dos 3 tecidos doadores e incubados em solução de colagenase tipo 3/Hibernate-E, com agitação intermediária, seguida de centrifugação seriada e etapas de filtração. Em seguida, os sEVs foram isolados usando o método SEC e caracterizados seguindo as diretrizes do MISEV. Antes de isolar o RNA de dentro desses sEVs, a solução foi tratada com Proteinase-K e RNase-A para remover qualquer RNA extracelular não-sEV. A quantidade e a qualidade do RNA foram verificadas e processadas posteriormente para experimentos de qPCR e sequenciamento de RNA pequeno.
A presença de sEVs foi confirmada por meio de análise de rastreamento de nanopartículas de fluorescência (fNTA) e western blot para marcadores de superfície (CD9, CD63, CD81). A distribuição de tamanho (50-200 nm) foi confirmada por NTA e microscopia eletrônica. A concentração total de RNA dentro de sEVs lisados variou de 3-9 ng/μL e foi usada para quantificação bem-sucedida por qPCR para microRNAs candidatos selecionados. O sequenciamento de RNA pequeno em MiSeq forneceu dados de alta qualidade (Q >32) com 1,4-5 milhões de leituras por amostra.
Este método permite o isolamento e a caracterização eficientes de sEVs a partir de volumes mínimos de tecido cerebral, facilitando a pesquisa não invasiva de biomarcadores e é promissor para estudos equitativos de biomarcadores de doenças, oferecendo insights sobre doenças neurodegenerativas e potencialmente outros distúrbios.
Introdução
As vesículas extracelulares (EVs) são um dos principais atores da comunicação intercelular em todos os organismos multicelulares1. EVs são partículas de membrana de bicamada lipídica derivadas de células que podem facilitar a transferência de uma variedade de cargas de carga, como proteínas, lipídios e ácidos nucléicos, para as células receptoras. Os EVs podem ter uma ampla faixa de tamanho que varia de 30 nm a 1 μM. Os EVs pequenos (sEVs), definidos como vesículas ligadas a lipídios com diâmetro médio de <200 nm, têm a capacidade de atravessar a barreira hematoencefálica; portanto, eles têm sido implicados na disseminação e exacerbação de doenças neurodegenerativas e outras condições, como doença de Alzheimer (DA), demência frontotemporal (DFT), doença de Parkinson (DP) e cânceres 2,3. Além disso, como os sEVs podem ser encontrados em uma variedade de biofluidos, como sangue, líquido cefalorraquidiano (LCR), saliva e até urina, seu uso benéfico pode abranger o campo de biomarcadores e diagnósticos não invasivos. Por exemplo, a pesquisa de DA pode apontar para o uso de proporções de proteínas patogênicas de biofluidos, como tau / Aβ, ou mesmo Aβ42 / Aβ404.
Uma carga conhecida de sEVs é o microRNA (miRNA), um grupo de pequenas moléculas de RNA não codificantes de cerca de 22 nucleotídeos de comprimento que se ligam às regiões 3'-UTR do mRNA e geralmente regulam negativamente a expressão de proteínas. Envolvidos em muitos papéis celulares, os miRNAs também têm sido implicados na patogênese de várias doenças, incluindo cânceres e doenças neurodegenerativas. Cheng et al. conduziram uma análise de sequenciamento de alto rendimento de assinaturas de expressão de miRNA sEV derivadas do soro de pacientes com DA5. Uma vez acoplados aos registros de neuroimagem e fatores de risco conhecidos de idade, sexo e apresentação do alelo APOE ε4, os resultados foram encontrados para prever a DA com 87% de sensibilidade e 77% de especificidade. Além disso, a pesquisa identificou dois miRNAs de LCR regulados positivamente (miR-151a-3p, let-7f-5p) e 3 miRNAs regulados negativamente (miR-27a-3p, miR-125a-5p e miR-423-5p) que podem potencialmente diagnosticar DP em estágio inicial6. Com doenças patológicas, o estado patológico pode preceder certos sintomas característicos das doenças, enquanto na neurodegeneração, o acúmulo de características patológicas ocorre muito antes do declínio cognitivo.
Os microRNAs são potencialmente um biomarcador mais eficaz do que as proteínas, devido às suas diversas funções e regulação epigenética de ordem superior. Usando tecido cerebral, os pesquisadores podem identificar assinaturas específicas de miRNAs sEV (BDsEV) derivadas do cérebro para doenças e seus subtipos. Por exemplo, sEVs com marcadores neuronais e gliais podem apresentar diferentes cargas de miRNA, e a análise pode resultar em métodos mais precisos de detecção de doenças. Além disso, sugere-se que os BDsEVs desempenhem um grande papel na disseminação transsináptica de proteínas neuropatogênicas7. Relatórios anteriores sugeriram imunoprecipitação e ultracentrifugação com gradiente de densidade (gradiente de sacarose) para obter sEVs de tecido cerebral fresco congelado 8,9. No entanto, essas abordagens requerem infraestrutura específica com métodos de ultracentrífuga e purificação a jusante para obter amostras de sEV de alta qualidade10. Relatórios mais recentes sugeriram várias modificações e melhorias na abordagem 11,12,13; no entanto, apesar disso, o isolamento e o estudo de microRNAs derivados de sEV de tecidos humanos ainda não são amplamente aplicados. A abordagem descrita neste protocolo visa fornecer um protocolo refinado e passo a passo para o estudo sEV derivado do cérebro para melhorar a acessibilidade a essa técnica. Estabelecemos um protocolo usando quantidades mínimas de tecido cerebral, a partir do qual isolamos sEVs puros usando cromatografia de exclusão de tamanho e mostramos dados de sequenciamento de última geração de alta qualidade da carga de microRNA desses sEVs.
Protocolo
O trabalho foi aprovado eticamente pelo Manchester Brain Bank (referência REC 09/H0906/52) e pelo comitê de ética da Universidade de Salford (ID do aplicativo: 3408).
1. Quebra da matriz intracelular usando colagenase em seções de tecido cerebral congeladas
- Corte em fatias finas 250 mg de tecido cerebral congelado (fragmentos de cerca de 0,4 mm de espessura) usando um bisturi esterilizado em uma placa fria e adicione 2 mL de solução de colagenase tipo III / Hibernate-E 75 U / mL.
- Incubar cada amostra em banho-maria a 37 °C durante 20 min. No ponto de 5 minutos, inverta cada amostra duas vezes para misturar; no ponto de 10 minutos, pipetar cada amostra três vezes suavemente usando uma tira descartável de plástico de 10 mL.
- Coloque cada amostra no gelo e adicione 1x coquetel de inibidor de protease e 1x inibidor de fosfatase. Isso interrompe a reação enzimática e é o ponto final da digestão usando colagenase tipo III.
- Centrifugue cada amostra de tecido cerebral a 300x g por 10 min a 4 °C. Recolher cada sobrenadante e centrifugar a 2000 x g durante 15 min a 4 °C.
- Recolher novamente cada sobrenadante e filtrar através de um filtro de 0,22 μm. Centrifugar cada filtrado a 10 000 x g durante 48 min a 4 °C.
- Recolher o sobrenadante e adicionar tampão de precipitação numa proporção de 2:1 para cada amostra. Incubar durante a noite a 4 °C.
- Centrifugar cada amostra a 10 000 x g durante 96 min a 4 °C e ressuspender o sedimento em 100 μL de PBS livre de vesículas extracelulares (EV).
2. Preparação de colunas de cromatografia de exclusão de tamanho
- Antes de usar, equilibre a coluna SEC pré-preparada à temperatura ambiente (RT) por 15 min.
NOTA: A tampa inferior deve ser removida antes da tampa de rosca. - Após o equilíbrio, remova o tampão conservante do topo da coluna e lave a coluna duas vezes usando 250 μL de PBS sem EV. Cada lavagem PBS é deixada para entrar na coluna por gravidade.
3. Isolamento de pequenas vesículas extracelulares usando cromatografia de exclusão de tamanho
- Adicionar o sedimento ressuspenso ao topo da coluna SEC e centrifugar a coluna a 50 x g durante 30 s. Descarte o fluxo.
- Adicione 180 μL de PBS livre de EV ao topo da coluna SEC e centrifugue a coluna a 50 x g por 1 min, permitindo que os sEVs derivados do cérebro eluam da coluna.
NOTA: A parte do protocolo detalhada acima está resumida na Figura 1.
4. Confirmação de pequenos marcadores de vesículas extracelulares por western blotting
- Para lisar sEVs antes da análise de western blot (para garantir que todas as cargas de membrana e citosólicas sejam analisadas), dilua a amostra isolada de sEV 1:1 em lise e tampão de extração (1x inibidor de protease e 1x inibidor de fosfatase).
- Agitar a amostra a 4 °C durante 30 min.
- Centrifugar a amostra a 14 000 x g durante 15 min.
- Coletar o sobrenadante de proteína e medir as concentrações de proteína usando um kit de ensaio de proteína.
- Misture amostras com 4x tampão Laemmli e carregue 20 μg de proteína em cada poço contra uma escada de proteína pré-corada.
- Uma vez resolvidas, transfira as proteínas para uma membrana de nitrocelulose de 0,45 μm. Após a transferência, bloqueie a membrana por 2 h em 5% de BSA.
- Incubar as membranas com anticorpos primários (Tabela 1) durante a noite.
- Lave a membrana três vezes com tampão de lavagem (1% Tween20 em PBS) e core usando um anticorpo secundário anti-camundongo. Em seguida, lave três vezes com tampão de lavagem (1% Tween20 em PBS).
- Siga as etapas acima no manuscrito antes de obter imagens das manchas.
- Imagem usando substrato de peroxidase de rábano (HRP).
5. Confirmação de pequenas vesículas extracelulares por análise de rastreamento de nanopartículas (NTA)
- Execute NTA para analisar a concentração e o tamanho de todas as partículas na amostra. Efectuar este procedimento diluindo cada amostra em PBS a um factor de diluição de 1:1000.
- Injectar a amostra no instrumento NTA e ler a amostra no comprimento de onda de 550 nm. Nesta fase, use a quantidade de partículas para medir a quantidade de proteína por partícula (geralmente expressa em femtograma) conforme recomendado nas diretrizes do MISEV.
- Em seguida, para NTA fluorescente, dilua a máscara celular laranja (CMO) (cora todas as partículas biológicas dentro de uma amostra) em PBS por um fator de diluição de 1:1000. A partir disso, diluir o corante CMO usando a amostra sEV por um fator de diluição de 1:10 - Incubar esta etapa de diluição no escuro por 30 min a 4 ° C.
- Diluir a segunda diluição da OCM com PBS por um factor de diluição de 1:1000.
NOTA: A diluição final do corante CMO deve ser de 1:10 000 000. - Leia o CMO de cada amostra sEV em um comprimento de onda de 550 nm usando o instrumento NTA.
- Para os anticorpos fluorescentes de tetraspanina (ver Tabela de Materiais), em primeiro lugar, diluir cada anticorpo respectivo em PBS por um fator de diluição de 1:10. A partir daí, diluir cada um dos corantes utilizando uma amostra de sEV com um factor de diluição de 1:10 - Incubar a etapa de diluição no escuro durante 2 h a 4 °C.
- Diluir a segunda diluição de anticorpos utilizando PBS com um factor de diluição de 1:1000.
NOTA: A diluição final de cada anticorpo tetraspanina deve ser de 1:100 000. - Leia as leituras de anticorpos fluorescentes da amostra sEV em um comprimento de onda de 550 nm usando o instrumento NTA.
6. Confirmação de pequenas vesículas extracelulares por microscopia eletrônica de transmissão (MET)
NOTA: Este protocolo foi realizado pelo Biomedical Microscopy Facility da Universidade de Liverpool.
- Em primeiro lugar, fixe as amostras de sEV usando glutaraldeído e core com acetato de uranila.
- Através de uma série graduada de álcoois, desidratar a amostra pronta para TEM.
- Amostras de imagens usando um microscópio eletrônico de transmissão adequado.
7. Tratamento com proteinase K e RNase A
- A 50 μL de EVs isolados de derivados do cérebro, adicione 1 μL de 20 μg / μL de proteinase K e incube a 37 ° C por 30 min.
- Pare cada reação adicionando 1x coquetel inibidor de proteinase e incube no gelo por 10 min.
- Após a incubação, adicionar 1 μL de 10 μg/μL de RNase A a cada amostra e incubar a 37 °C durante 30 min.
NOTA: Passe imediatamente para a seção 8.
8. Isolamento total de RNA de pequenas vesículas extracelulares
- Para isolar o RNA total, adicione 700 μL de reagente de lise de recuperação de RNA de alta qualidade a 50 μL de amostra EV derivada do cérebro (BDsEV). Agitar cada amostra durante 1 h.
- Adicionar 140 μL de clorofórmio, agitar vigorosamente cada amostra durante 20 s e deixar incubar em RT durante 3 min.
- Centrifugar a amostra a 12 000 x g durante 15 minutos a 4 °C e recolher a interfase da amostra. Adicione 1,5x o volume de etanol 100%.
- Adicionar 700 μL de colunas de isolamento de RNA de mistura de interfase/etanol e centrifugar a ≥8000 x g durante 15 s em RT.
NOTA: Repita esta etapa usando todas as amostras de interfase / etanol. - À coluna, adicione 700 μL de tampão de lavagem e centrifugue a ≥8000 x g por 15 s. Descarte o fluxo.
- Adicione 500 μL de buffer RPE e centrifugue novamente a ≥8000 x g por 15 s. Descarte o fluxo.
- Adicione 500 μL de etanol a 80% e centrifugue a ≥8000 x g por 2 min. Descarte o fluxo.
- Neste ponto, seque a membrana da coluna centrifugando as colunas em velocidade máxima (>8000 x g) por 5 min com a tampa aberta.
- Transfira a coluna para um novo tubo de coleta, adicione 14 μL de água livre de RNase diretamente à membrana da coluna e centrifugue a ≥8000 x g por 1 min para eluir o RNA total dos BDsEVs.
- Quantificar o microRNA total com amostras usando um kit de ensaio de quantificação de miRNA, onde as amostras foram medidas em um fluorômetro de quantificação, selecionando o tipo de ensaio de miRNA.
9. Sequenciamento de RNA pequeno
- Após a quantificação do miRNA dentro da amostra, sintetize uma biblioteca de cDNA usando o Small RNA-Seq Library Prep Kit.
NOTA: Usando este protocolo, a geração da biblioteca incluiu quatro etapas: ligação do adaptador 3', purificação, ligação do adaptador 5' e transcrição reversa - onde, no final, uma biblioteca de RNA / cDNA é formada. Após a geração da biblioteca, a amplificação da PCR do endpoint ocorre com a adição de primers de índice (usados para fins de multiplexação), após o que as amostras são purificadas. - Para testar a qualidade do RNA, use um ensaio de aplicação de controle de qualidade detalhando o tamanho de cada preparação e a intensidade do pico.
- Para testar a concentração de DNA, meça a quantificação do DNA em um fluorômetro de quantificação, selecionando o tipo de ensaio dsDNA.
- Prepare as amostras para Small RNA Seq usando o kit de reagentes, após o que as amostras são carregadas na célula de fluxo.
Resultados
Para confirmar a presença de BDsEVs, foram utilizadas três técnicas: western blotting, NTA e TEM (Figura 3). Os resultados do Western blot (Figura 3A e Arquivo Suplementar 1) mostram a presença de todos os cinco marcadores positivos (CD9, CD63, CD81, Flot-1 e TSG101) e a ausência de Calnexina em sEVs (usado como controle negativo), confirmando que não há contaminação com conteúdo celular. Como esperado, os homogeneizados cerebrais (BH) apresentam mais proteína do que a observada nos sEVs para os marcadores testados. As imagens TEM confirmaram a morfologia dos BDsEVs e seu tamanho relativo dentro da amostra ( Figura 3B ), o que foi confirmado pela análise de rastreamento de nanopartículas ( Figura 3C ).
A Figura 3C (painel superior) mostra os tamanhos de partículas isoladas entre 50-200 nm. A partir dos dados do NTA, tomando o resultado de dispersão como 100% das partículas representadas, o CMO representa cerca de 52,35% das partículas (Figura 3C, painel inferior) a ter uma bicamada lipídica. Dessas partículas coradas com CMO, 34,66% continham CD9, 15,49% continham CD63 e 12,01% continham CD81. Consulte o Arquivo Suplementar 2 para obter dados de controle NTA.
Os dados de quantificação do RNA isolado (Tabela 2) mostram níveis variando de 3,24-8,76 (ng/μL), valores que foram normalizados ao gerar as bibliotecas de cDNA. Os resultados do ensaio TapeStation (Figura 4) mostram picos principais de cerca de 120-160 pb, com picos menores abaixo disso de cerca de 50 pb e outros picos menores que são mais altos de cerca de 484 pb.
As verificações de qualidade para os dados de sequenciamento de próxima geração mostram leituras de altíssima qualidade após o corte do adaptador (Figura 5A). Todas as posições de sequência mostram uma pontuação Phred de >30, indicando taxas de erro inferiores a 1 em 1000 nucleotídeos. A Figura 5B mostra que a maioria das sequências tem cerca de 21-22 pb, correspondendo à faixa de tamanho esperada para microRNAs. Por meio de mapeamento adicional a jusante (usando BowTie2), usando a ferramenta biológica de análise flagstat da Samtools, de 1.304.100 sequências alinhadas, 1.116.264 (85%) foram mapeadas para as regiões de microRNA no genoma humano (build hg38; Tabela 3).
Do total de miRNAs, 808 miRNAs foram expressos em todas as 3 amostras, com 344 miRNAs compartilhados entre as três amostras (~ 43%), 5 compartilhados entre o controle 1 e o controle 2, 183 compartilhados entre o controle 1 e o controle 3 e 16 compartilhados entre o controle 2 e o controle 3 (Figura 6). A partir desses dados, o miRNA mais expresso em todos os três BDsEVs são has-let-7b-5p, has-miR-143-3p, has-miR-30a-5p, has-miR-221-3p e has-let7i-5p. Da mesma forma, os 5 principais miRNAs menos diferencialmente expressos entre as amostras de BDsEVs (lê-se >10) são has-miR-128-2-5p, has-miR-182-5p, has-miR-193b-5p, has-miR-448 e has-miR-505-3p. Todas as contagens de leitura brutas e normalizadas são fornecidas no Arquivo Suplementar 3.
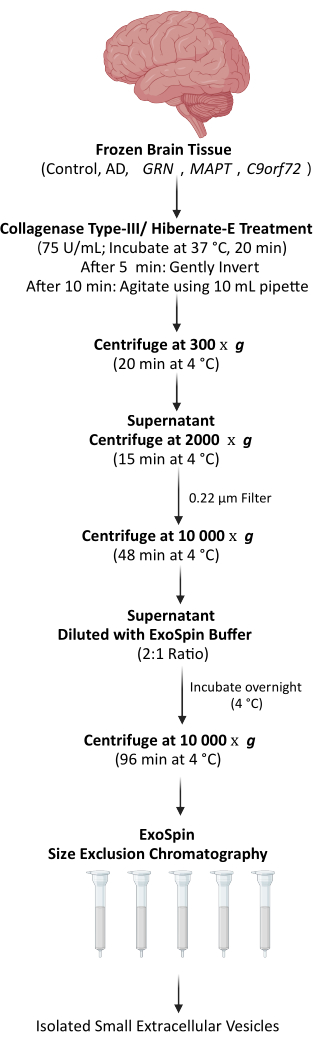
Figura 1: Fluxo de trabalho de processamento de tecidos. A figura mostra o processo passo a passo para o isolamento de sEVs derivados do cérebro (BDsEVs) de seções cerebrais recém-congeladas usando cromatografia de exclusão de tamanho. Clique aqui para ver uma versão maior desta figura.
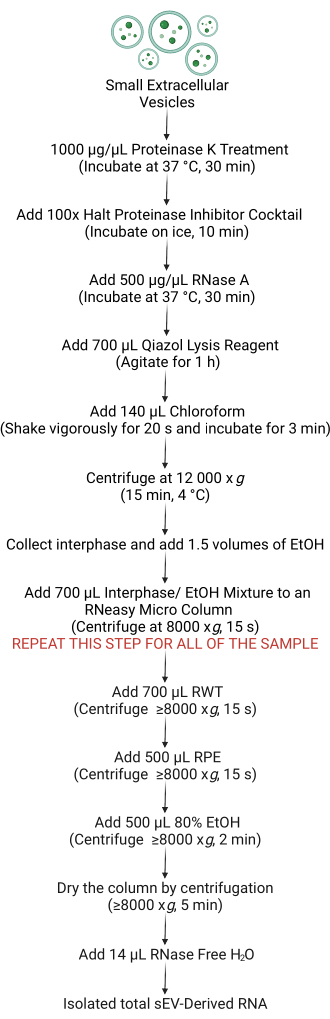
Figura 2: Fluxo de trabalho de isolamento de RNA de BDsEVs. A figura mostra o processo passo a passo de isolamento do RNA total dos BDsEVs, incluindo a etapa de pré-tratamento de remoção de qualquer RNA extracelular usando proteinase K e RNase A. Clique aqui para ver uma versão maior desta figura.
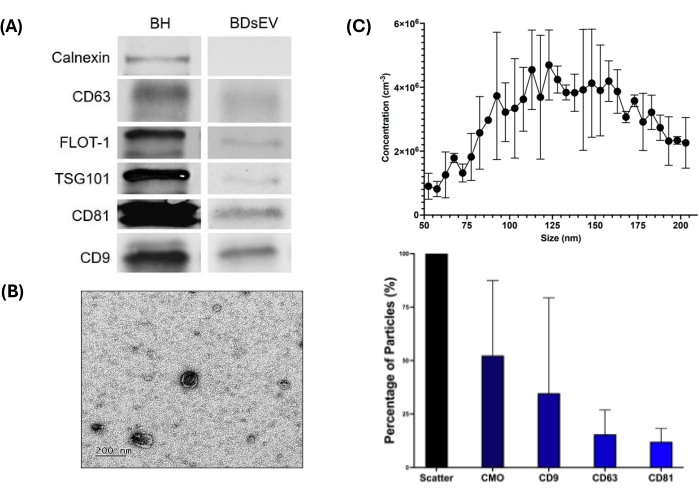
Figura 3: Fluxo de trabalho de caracterização do BDsEV. A figura mostra vários métodos para caracterizar os BDsEVs. (A) Western blot para detectar marcadores de proteína específicos do sEV. BH Homogeneizado cerebral. A calnexina é um controle negativo para sEVs - ausência em sEV e presença em BH confirmam a pureza da amostra de sEV. Para outros marcadores, como esperado, a quantidade de proteína é maior em BH do que nas amostras de sEV (20 μg de proteína carregada por poço). (B) Imagem representativa de microscopia eletrônica de transmissão (TEM) para BDsEVs na escala de 200 μM, confirmando a morfologia esperada com uma membrana de bicamada lipídica. (C) Gráfico de distribuição de tamanho para análise de rastreamento de nanopartículas (NTA) para todas as partículas (painel superior). Cada ponto de dados representa a variação entre três replicações. Proporções normalizadas para partículas biológicas (sEVs) e proporções relativas para marcadores de superfície específicos (painel inferior) (dados mostrados como média ± SEM de poços triplicados (n = 3)). Clique aqui para ver uma versão maior desta figura.
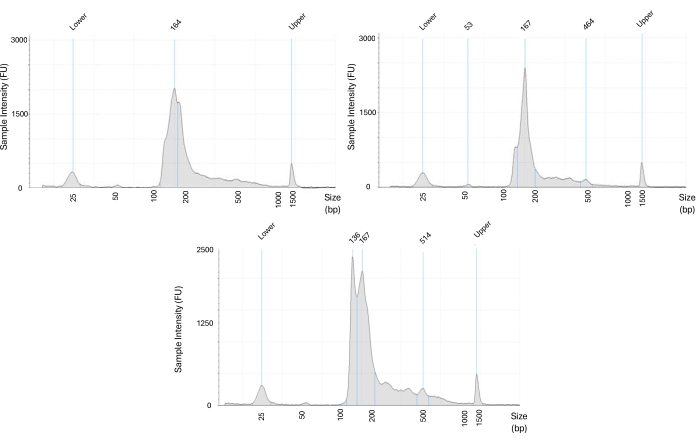
Figura 4: Verificação de qualidade para preparação de biblioteca de cDNA. Análise de fita para amostras individuais após a preparação da biblioteca de cDNA. Os picos exibidos em cada gráfico exibem o tamanho de cada preparação (eixo horizontal, em pb) e a respectiva intensidade de cada pico (eixo vertical, FU). A pequena biblioteca de RNA esperada atinge picos em torno de 120-160 pb, como visto na figura. Clique aqui para ver uma versão maior desta figura.
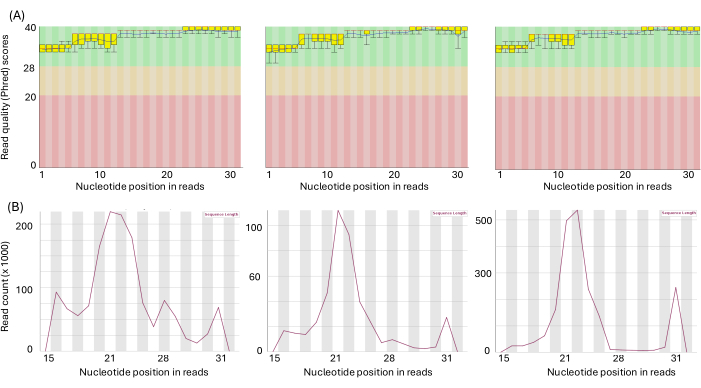
Figura 5: Verificação de qualidade para sequenciamento do miRnome. (A) Gráfico FASTQC para qualidade de leitura para as amostras individuais após o corte do adaptador. O eixo horizontal é para a posição do nucleotídeo e o eixo vertical é para as pontuações do Phred. Os gráficos de caixa para cada posição mostram a distribuição da pontuação do Phred em todas as leituras de cada posição. Todas as distribuições dentro da zona verde confirmam dados de altíssima qualidade (>Q30) que implicam uma preparação de amostra de alta qualidade. (B) A distribuição do comprimento da sequência para cada amostra mostra que, para todas as três amostras, a maioria das leituras foi em torno de 21-22 nucleotídeos - a faixa de tamanho esperada para microRNA. Clique aqui para ver uma versão maior desta figura.
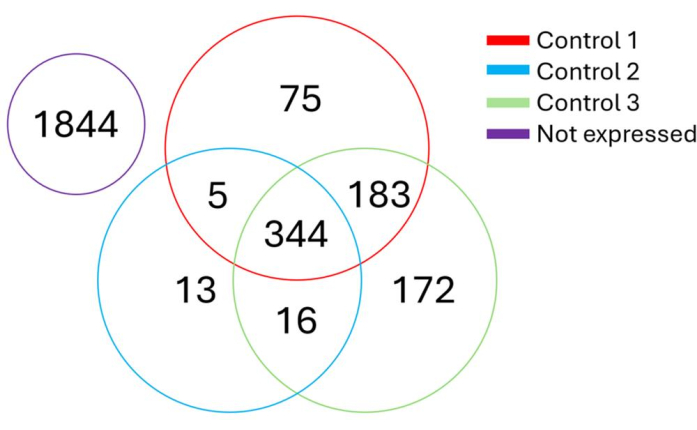
Figura 6: Sobreposição da expressão de MicroRNA em todas as amostras. O número de miRNAs detectados em cada amostra (contagem de leitura ≥ 10) e microRNAs específicos compartilhados em mais de uma amostra são mostrados no diagrama de Venn. Todas as leituras brutas e normalizadas são mostradas no Arquivo Suplementar 3. Clique aqui para ver uma versão maior desta figura.
| Epítopo de anticorpo | Fator de diluição do anticorpo |
| Mouse Anti-CD9 | 1:2000 |
| Mouse Anti-CD63 | 1:2000 |
| Rato Anti-CD81 | 1:2000 |
| Anti-Flotilina 1 do rato | 1:2000 |
| Rato Anti-TSG101 | 1:1000 |
| Mouse Anti-Calnexina | 1:10 000 |
| Anticorpo secundário anti-camundongo | 1:3000 |
Tabela 1: Epítopos de anticorpos usados para a caracterização de BDsEVs e seus respectivos fatores de diluição.
| Amostra | Concentração de miRNA (ng/μL) |
| 1 | 8.76 |
| 2 | 3.24 |
| 3 | 5.33 |
Tabela 2: Dados de quantificação do RNA isolado.
| Amostra | Sequências alinhadas | MiRNA mapeado | Porcentagem (%) |
| Amostra de controle 1 | 1 444 665 | 1 133 437 | 78.46 |
| Amostra de controle 2 | 442 808 | 381 631 | 86.18 |
| Amostra de controle 3 | 2 024 828 | 1 983 726 | 97.97 |
| Média | 1 304 100.33 | 1 166 264.67 | 89.43 |
Tabela 3: Quantidade de sequências de miRNA alinhadas e mapeadas com sucesso.
Arquivo Suplementar 1: Dados suplementares de análise de western blot. Clique aqui para baixar este arquivo.
Arquivo Suplementar 2: Dados suplementares de controle NTA. Clique aqui para baixar este arquivo.
Arquivo Suplementar 3: Contagens de leitura brutas e normalizadas da análise de expressão de miRNA. Clique aqui para baixar este arquivo.
Arquivo Suplementar 4: Dados suplementares de concentração de proteínas. Clique aqui para baixar este arquivo.
Discussão
Este protocolo modificado e aprimorado para isolar pequenas vesículas extracelulares derivadas do cérebro e sua carga de microRNA demonstra a viabilidade de usar o mínimo de tecido sem comprometer a qualidade e a quantidade dos produtos a jusante. No campo da descoberta de biomarcadores, a identificação de identificadores moleculares específicos para tipos de células e tecidos pode levar a meios mais acessíveis de testes diagnósticos não invasivos usando fluidos corporais. Além disso, a abordagem descrita aqui fornece a estrutura para a identificação de subpopulações específicas de sEV em diferentes tipos de células (neuronal vs. glial), tipos de tecido (tecido hipocampal versus tecido do córtex pré-frontal) e biofluidos - o que oferecerá uma maior compreensão das assinaturas de carga de carga, fisiopatologia e extensão da doença. Anteriormente descrito em Vella et al., foi sugerido que 450 mg a 1 g deveriam ser usados para isolamento de BDsEV, juntamente com ultracentrifugação com gradiente de densidade (usando velocidades de até 180.000 x g)8. Nesta metodologia, os sEVs foram isolados com sucesso usando quantidades menores (redução de >50%) de amostras de tecido cerebral recém-congelado (250-450 mg). A redução da quantidade de tecido cerebral usado para isolar sEVs leva à redução de custos e consumíveis. Da mesma forma, o protocolo tornou-se mais acessível por meio da aplicação de SEC acoplado à centrifugação de alta velocidade (10.000 x g) em vez de ultracentrifugação (180.000 x g).
Usando fNTA e TEM, estabelecemos que o perfil da faixa de tamanho dos sEVs está dentro da faixa de tamanho característica de 30-200 nm, conforme recomendado pelas diretrizes do MISEV13,14, com o MET fornecendo confirmação morfológica dos sEVs obtidos. Conforme mostrado na Figura 3C e no Arquivo Suplementar 4, >87% das partículas têm <250 nm de tamanho, e as amostras, em média, mostram 10,56 fg de proteína/BDsEV. Espécies específicas de pequenas vesículas extracelulares variam em tamanho e forma, onde subpopulações caracteristicamente menores, como exossomos, são observadas como tendo uma morfologia uniforme em comparação com microvesículas que dizem ter uma estrutura irregular devido à sua natureza de biogênese15. Para o fNTA, uma leitura de dispersão (520 nm) foi produzida para analisar as partículas totais nas amostras, fornecendo detalhes do perfil de tamanho e concentrações. As leituras mostram que mais de 50% das partículas eram biológicas (através da coloração de CMO), com populações de partículas biológicas que se enquadram na faixa de tamanho de sEVs exibindo marcadores de tetraspanina, sendo o CD9 o mais predominante em nossas amostras de controle (34,66%). Já para western blotting, a presença de cargas características de membrana e proteína citosólica forneceu evidências da presença de sEV, com a ausência de Calnexina confirmando que os BDsEVs estão livres de qualquer contaminação celular. Para garantir ainda mais que o miRNA disponível para processamento a jusante fizesse parte da carga de sEV (e não de outro RNA extracelular), tratamos os sEVs com enzimas Proteinase K e RNase A antes de romper as membranas de sEV para degradar qualquer proteína e RNA que estivessem externamente presentes no espaço extracelular fora dos BDsEVs16.
O RNA total foi extraído dos sEVs e preparado para aplicações downstream, como qRT-PCR e sequenciamento de próxima geração (para RNA pequeno). Verificações padrão usando ensaios de controle de qualidade mostraram amostras de alta qualidade e bibliotecas de cDNA prontas para sequenciamento. As bibliotecas de cDNA atingem o pico em torno de 120-160 pb, atribuindo picos de cDNA derivados de miRNA com sequências adaptadoras de comprimentos variados, com quaisquer picos menores potencialmente representando dímeros adaptadores.
A análise dos dados de sequenciamento de próxima geração usando FASTQC e CutAdapt mostra resultados de alta qualidade obtidos a partir de miRNAs BDsEV. Conforme mostrado na Figura 5, cada posição lida tem uma pontuação Q superior a 30 (Q30), mostrando uma probabilidade de erro de 0,001-0,0001 (1 em 1000-10.000). Além disso, a análise da distribuição do comprimento da sequência (Figura 6) mostra picos predominantes dentro da faixa característica do miRNA (19-25 pb), sugerindo alta qualidade e especificidade para os dados obtidos.
Numerosos estudos futuros se beneficiarão desse método devido à sua acessibilidade aprimorada, além de economizar custos e recursos ao reduzir não apenas a quantidade de amostras de tecido, mas também economizar no custo dos reagentes. A redução (>50%) na quantidade necessária de tecido torna esse método também mais ético. Alinhado com os esforços globais em saúde de precisão, o fluxo de trabalho aprimorado detalhado aqui fornece ferramentas comparativamente mais acessíveis para embarcar em biomarcadores específicos de tipo de célula precisos por meio de rotas não invasivas (ou minimamente invasivas) usando BDsEVs e sua carga. Isso pode ser usado para uma ampla gama de condições neurológicas. Uma possível limitação desse método é que o protocolo precisará de ajustes se os pesquisadores quiserem usar um tecido diferente do cérebro humano para isolamento de sEV. A longo prazo, esse método aprimorado tornará a descoberta e validação de biomarcadores não invasivos e específicos do tecido mais equitativas e acessíveis em todo o mundo.
Divulgações
Não há conflitos de interesse para nenhum dos autores.
Agradecimentos
Este trabalho foi financiado pela bolsa de doutorado de Joseph Morgan da Alzheimer's Society UK (Grant number 549 / SERA-52) e pelos fundos de Estratégia de Inovação da Universidade de Salford (bolsa SEFA-39). O tecido cerebral foi obtido do banco de cérebros de Manchester (REC Reference 09/H0906/52) da Brains for Dementia Network.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Albumina de soro bovino | Merck | A9418-100G | |
| Máscara celular Mancha de membrana plasmática laranja | ThermoFisher Scientific | C10045 | |
| Colagenase tipo III | StemCell Technologies | 07422 | |
| Colunas ExoSpin e sistemas | de orientação de células tampão Ltd. | EX01-50 | Este kit contém colunas SEC usadas neste experimento, buffer de precipitação e PBS livre de EV. |
| Coquetel Inibidor de Protease Halt (100x) | ThermoFisher Scientific | 78429 | |
| Hibernate-E Medium | de Amostra Laemmli A1247601 | ThermoFisher | |
| Scientific (4x) | BioRad | 1610747 | |
| Lexogen Small RNA-Seq Library Prep Kit | Lexogen | 052.24 | Este kit contém uma pequena caixa de preparação de RNA com placa de primer i7 Index. |
| miRNeasy Micro Kit (50) | Qiagen | 217084 | Este kit contém reagente de lise de recuperação de RNA de alta qualidade (Qiazol), colunas de isolamento de RNA, tampões de isolamento (RWT, RPE) e água livre de RNase. |
| Kit de Reagentes MiSeq v3 | Illumina | MS-102-3001 | Este é o Kit de Preparação Illumina |
| Membrana de Nitrocelulose, 0.45 μ m | ThermoFisher Scientific | 88018 | |
| PE / Dazzle 594 anticorpo CD63 | BioLegend | 143914 | usado para análise fNTA |
| PE / Dazzle 594 anticorpo CD81 humano | BioLegend | 349520 | usado para análise fNTA |
| PE / Dazzle 594 anticorpo CD9 humano | BioLegend | 312118 | usado para análise fNTA |
| PhosSTOP | Merck | ||
| 4906845001 Pierce BCA Protein Assay Kit | ThermoFisher Scientific | 23225 | |
| Proteinase K | ThermoFisher Scientific | 25530049 | |
| Qubit Kit de ensaio de microRNA | ThermoFisher Scientific | Q32880 | |
| Qubit 1X dsDNA HS kit de ensaio | ThermoFisher Scientific | Q33230 | |
| Qubit 3.0 Fluorômetro | ThermoFisher Scientific | Q33216 | |
| RIPA Lise e Tampão de Extração | ThermoFisher Scientific | 89901 | |
| RNase A | ThermoFisher Scientific | EN0531 | |
| SuperSignal West Femto Substrato de Sensibilidade Máxima | ThermoFisher Scientific | 34094 |
Referências
- Jia, Y., et al. Small extracellular vesicles isolation and separation: Current techniques, pending questions and clinical applications. Theranostics. 12 (15), 6548-6575 (2022).
- Fornari, S., Schäfer, A., Jucker, M., Goriely, A., Kuhl, E. Prion-like spreading of Alzheimer's disease within the brain's connectome. J R Soc Interface. 16 (159), 20190356(2019).
- Zhang, P., et al. Tumor-derived small extracellular vesicles in cancer invasion and metastasis: molecular mechanisms, and clinical significance. Mol Cancer. 23 (1), 18(2024).
- Constantinides, V., et al. CSF Aβ42 and Aβ42/ Aβ40 ratio in Alzheimer's disease and frontotemporal dementia. Diagnostics. 13 (4), 783(2023).
- Cheng, L., et al. Prognostic serum miRNA biomarkers associated with Alzheimer's disease shows concordance with neuropsychological and neuroimaging assessment. Mol Psychiatry. 20 (10), 1188-1196 (2015).
- Roser, A. E., Caldi Gomes, L., Schünemann, J., Maass, F., Lingor, P. Circulating miRNAs as diagnostic biomarkers for Parkinson's disease. Front Neurosci. 12, 625(2018).
- Jackson, N., Guerrero-Muñoz, M. J., Castillo-Carranza, D. L. The prion-like transmission of tau oligomers via exosomes. Front Aging Neurosci. 14, 974414(2022).
- Vella, L., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Yousif, G., Qadri, S., Parray, A., Akhthar, N., Shuaib, A., Haik, Y. Exosomes derived neuronal markers: Immunoaffinity isolation and characterization. Neuromolecular Med. 24 (3), 339-351 (2022).
- Kumar, K., et al. Recent advances in microfluidic approaches for the isolation and detection of exosomes. TRAC-Trend Anal Chem. 159, 116912(2023).
- Ransom, L., et al. Human brain small extracellular vesicles contain selectively packaged, full-length mRNA. Cell Rep. 43 (4), 114061(2024).
- Gomes, P., et al. A novel isolation method for spontaneously released extracellular vesicles from brain tissue and its implication for stress-driven brain pathology. Cell Commun Signal. 21 (1), 35(2023).
- Welsh, J., et al. Minimal information for studies of extracellular vesicles (MISEV 2023): From basic to advanced approaches. J Extracell Vesicles. 13 (2), e12404(2023).
- Théry, C., et al. Minimal information for studies of extracellular vesicles 2018 (MISEV2018): a position statement of the International Society for Extracellular Vesicles and update of the MISEV2014 guidelines. J Extracell Vesicles. 7 (1), 1535750(2018).
- Pirisinu, M. The long journey of extracellular vesicles towards global scientific acclamation. Adv Pharm Bull. 13 (3), 489-501 (2023).
- Bender, A., Sullivan, B. P., Lillis, L., Posner, J. D. Enzymatic and chemical-based methods to inactivate endogenous blood ribonucleases for nucleic acid diagnostics. J Mol Diagn. 22 (8), 1030-1040 (2020).
Reimpressões e permissões
