Este artigo aborda os procedimentos para induzir respostas ao estresse usando o estresse de contenção física em camundongos e ratos. Considerações adicionais que devem ser observadas ao selecionar e usar o estresse de contenção em modelos de roedores são discutidas.
Artigo de método
Contenção para induzir estresse em camundongos e ratos
Neste artigo
Resumo
Resumo
Em todas as espécies animais, a exposição a condições estressantes induz respostas ao estresse. Um método para estudar os efeitos do estresse usando modelos de roedores é o procedimento de estresse de contenção. O estresse de contenção tem sido usado há décadas para investigar mudanças na fisiologia, genética, neurobiologia, imunologia e outros sistemas afetados pelo estresse. Devido à facilidade de realização do procedimento, baixo custo e inúmeras modificações na escala para a intensidade e duração da exposição ao estresse, uma vasta literatura de estudos tem utilizado o estresse de contenção em camundongos e ratos. Como exemplo, este estudo apresenta dados publicados anteriormente mostrando o impacto do estresse de contenção em camundongos transgênicos nos níveis plasmáticos de corticosterona e na liberação de norepinefrina induzida optogeneticamente. O estresse agudo de contenção aumentou os níveis plasmáticos de corticosterona, mas esse efeito foi atenuado em camundongos após o estresse de contenção repetido. No entanto, a liberação estimulada de norepinefrina no núcleo do leito da estria terminal foi aumentada apenas no grupo de estresse de restrição repetida. Esses dados destacam considerações importantes sobre os parâmetros de restrição em medidas dependentes. Descrições adicionais de estresse de contenção em ratos também estão incluídas para comparação. Finalmente, a influência dos parâmetros da contenção (por exemplo, aguda vs. crônica) e características dos animais (cepa, sexo, idade) são discutidas.
Introdução
Devido à experiência universal do estresse, as investigações sobre os mecanismos de respostas alteradas após exposições ao estresse têm sido uma área consistente de pesquisa por várias décadas1. Essas investigações começaram a analisar aspectos do estresse que podem ser benéficos para aumentar a adaptabilidade e a capacidade de resposta a estressores agudos de experiências de estresse que induzem alterações desadaptativas das funções fisiológicas e comportamentais, muitas vezes resultantes da exposição prolongada a estressores repetidos e/ou imprevisíveis. Muitas dessas respostas aos estressores afetam a função cerebral, o eixo hipotálamo-hipófise-adrenal (HPA), os ramos simpático e parassimpático do sistema nervoso autônomo e o sistema imunológico. A exposição a estressores inicia o aumento da liberação do fator liberador de corticotropina (CRF) para aumentar o hormônio adrenocorticotrófico (ACTH) e os hormônios glicocorticóides, como cortisol em primatas e muitos outros mamíferos e corticosterona em roedores2. Além disso, a epinefrina e a norepinefrina são liberadas em toda a periferia e no cérebro como parte da resposta do sistema nervoso simpático3. Esses sinais químicos interagem com vários sistemas fisiológicos, como função imunológica, metabolismo, reprodução e reatividade neuronal4.
Experiências estressantes estão associadas a uma infinidade de condições, incluindo aumentos de ansiedade e depressão, alterações no aprendizado e na memória, deficiências na tomada de decisões e na função executiva e suscetibilidade ao transtorno por uso de substâncias, entre outros. Cada um desses efeitos depende de ambos os parâmetros do estressor e das características do indivíduo que sofre estresse4. A natureza do estressor, como agudo ou crônico e como controlável ou imprevisível, altera substancialmente os resultados observados. Esses aspectos do estresse parecem consistentes entre as experiências humanas e os modelos animais. Assim, para modelar o estresse em estudos com animais, deve-se considerar cuidadosamente a seleção de parâmetros de exposição ao estresse apropriados para a espécie, sexo e condição.
Embora vários estressores estejam disponíveis para estudos com roedores (incluindo estressores psicossociais como estresse de isolamento social ou derrota social, estressores farmacológicos como administração de cortisol ou ioimbina, estressores físicos como choque nas patas e contenção e estressores multimodais que combinam ou alternam entre condições), o foco deste manuscrito será o uso de estresse de contenção em camundongos e ratos. O estresse de contenção pode ser escolhido em detrimento de outros estressores porque é fácil de executar, barato, ajustável a vários tamanhos de roedores, escalável para períodos agudos e de longo prazo e raramente resulta em danos adversos ao sujeito5. Embora este manuscrito se concentre nas mudanças duradouras induzidas pela exposição ao estresse de contenção, alguns estudos usam contenção em roedores para examinar mecanismos e comportamentos que ocorrem durante a contenção, incluindo comportamentos de enfrentamento ativos envolvidos na fuga do estressor 6,7,8,9. O objetivo deste manuscrito é fornecer considerações metodológicas para avaliar o impacto do estresse de contenção em camundongos ou ratos.
Protocolo
Os experimentos e protocolos foram aprovados pelo Comitê Institucional de Cuidados e Uso de Animais (IACUC) da Universidade da Carolina do Norte em Chapel Hill (camundongos) e da Fairfield University (ratos) e seguem as diretrizes do NIH10.
1. Estresse de contenção em camundongos
NOTA: Os camundongos oferecem uma série de vantagens ao estudar os efeitos do estresse na fisiologia e nos sistemas neuronais. Com a prevalência de linhagens de camundongos transgênicos, investigações mecanicistas sobre as interações entre genes e exposições ao estresse são prontamente viáveis. Seja usando camundongos transgênicos ou selvagens, recomenda-se considerar a cepa de fundo. Além disso, devido ao seu tamanho e habitação social, os ratos oferecem uma vantagem na utilização do espaço sobre outras espécies.
- Exposição ao estresse de contenção
- Designe aleatoriamente camundongos para grupos de controle de gaiola doméstica, estresse de contenção agudo ou estresse de contenção crônica.
- Determine a duração da exposição ao estresse. Para estressores agudos, use uma única sessão com duração de 5 min até 12 h confinado no aparelho de contenção. Para estressores crônicos, certifique-se de que a sessão corresponda à duração do estressor agudo, mas seja repetida diariamente por apenas 3 dias e até 21 dias.
NOTA: Como os ratos ficarão sem acesso a comida e água enquanto estiverem nas condições de contenção, considere se os animais de controle em gaiolas domésticas também devem não ter acesso a comida e água. - Modifique os tubos cônicos de 50 mL para adicionar orifícios de ventilação.
- Use uma furadeira elétrica com uma broca de 1/8" para espaçar uniformemente os orifícios ao redor de cada tubo cônico para garantir o fluxo de ar em todas as áreas do tubo.
- Coloque esses orifícios para permitir que o mouse acesse o ar, independentemente da direção para a qual o mouse está voltado no tubo. Certifique-se de que não haja arestas vivas após a modificação.
NOTA: Esses tubos cônicos modificados devem ser eficazes para a maioria dos camundongos adultos (~ 20-40 g), mas podem não conter camundongos pequenos / jovens ou cepas maiores.
- Em uma sala de testes, separada do alojamento dos animais e dos testes comportamentais, coloque o animal designado para contenção no tubo cônico modificado com a tampa presa para confinar o camundongo no tubo pelo comprimento designado de contenção.
NOTA: As especificidades do projeto da sala de teste podem variar de acordo com o espaço disponível na instalação; A sala pode incluir capelas de exaustão e outros equipamentos de laboratório e/ou mesas/bancadas de laboratório ou ser uma sala de procedimentos vazia. No entanto, independentemente da configuração da sala, o ambiente da sala de contenção deve permanecer consistente ao longo de exposições repetidas de contenção para evitar alterações induzidas pelo contexto nas respostas ao estresse11. - Coloque o tubo de retenção horizontalmente em uma superfície plana. Se necessário, prenda o tubo com fita adesiva ou uma bacia de pipeta/reservatório de reagente para que não role com o mouse dentro.
NOTA: Sob condições de estresse, os camundongos produzem vocalizações ultrassônicas. Considere se o desenho do estudo requer isolamento acústico de outros sujeitos contidos12. A corticosterona e outros marcadores de respostas ao estresse seguem os ritmos circadianos. Como tal, considerações sobre as condições de iluminação e o tempo de estressor devem ser feitas. Em todos os grupos de estresse, a contenção deve ocorrer em um horário consistente do dia, de preferência no início do ciclo de luz 13,14,15. Para o estudo aqui apresentado, os camundongos foram contidos por aproximadamente 3 h após o acendimento das luzes. - Monitore cada animal durante o estresse de contenção pelo menos a cada 20 minutos. Determine visualmente se o animal está exibindo respostas incomuns (respiração lenta, falta de movimento). Se observado, remova o camundongo do tubo de contenção, entre em contato com um veterinário e exclua o camundongo do estudo.
- Retorne o mouse para a gaiola inicial e forneça acesso a comida e água.
2. Estresse de contenção em ratos
NOTA: Como roedores maiores, os ratos têm vantagens a serem consideradas ao investigar os efeitos do estresse. Como os camundongos, os ratos têm várias cepas com respostas diferenciais à exposição ao estresse16,17. Além disso, o aumento do tamanho dos ratos torna os ratos mais fáceis de usar com certas medidas comportamentais, por exemplo, autoadministração de drogas.
- Exposição ao estresse de contenção
- Atribua aleatoriamente o rato aos grupos de controle de gaiola doméstica, estresse agudo de contenção ou estresse crônico de contenção.
- Determine a duração da exposição ao estresse. Para estressores agudos, use uma única sessão com duração de 5 min até 12 h confinado no aparelho de contenção. Para estressores crônicos, certifique-se de que a sessão corresponda à duração do estressor agudo, mas seja repetida diariamente por apenas 3 dias e até 21 dias.
NOTA: Como os ratos ficarão sem acesso a comida e água enquanto estiverem na condição de contenção, considere se os animais de controle em gaiolas domésticas também devem não ter acesso a comida e água. - Para um tubo de retenção disponível comercialmente, siga as etapas descritas abaixo.
NOTA: Tubos de contenção disponíveis comercialmente para ratos estão disponíveis. Esses dispositivos têm uma variedade de designs, incluindo fio de metal, recipientes e tubos de plástico/plexiglass com opções de fundo arredondado e plano. Cada opção é simples de usar.- Insira o rato no dispositivo, adicione um plugue ajustado ao tamanho do sujeito e trave-o no lugar. Quando colocado no tubo de contenção, certifique-se de que o rato esteja confortavelmente confinado para evitar giros da cabeça à cauda, mas possa respirar facilmente.
NOTA: Esses dispositivos são projetados para conter ratos e não precisam de modificação para respiração. Este estudo usa o limitador tailveiner (Tabela de Materiais), que inclui ventosas em uma plataforma sob o tubo para prender o dispositivo. Um benefício adicional deste dispositivo é que a cauda é acessível fora do dispositivo para controle do sujeito durante a inserção e remoção do tubo ou coleta de sangue da veia da cauda durante a contenção.
- Insira o rato no dispositivo, adicione um plugue ajustado ao tamanho do sujeito e trave-o no lugar. Quando colocado no tubo de contenção, certifique-se de que o rato esteja confortavelmente confinado para evitar giros da cabeça à cauda, mas possa respirar facilmente.
- Em uma sala de testes separada do alojamento dos animais e testes comportamentais, coloque animas atribuídas à restrição no tubo de contenção pelo comprimento designado de contenção. Coloque o tubo de retenção horizontalmente em uma superfície plana.
NOTA: Sob condições de estresse, os ratos também produzem vocalizações ultrassônicas. Considere se o desenho do estudo requer isolamento acústico de outros sujeitos contidos. - Monitore cada animal durante o estresse de contenção pelo menos a cada 20 minutos. Determine visualmente se o animal está exibindo respostas incomuns (respiração lenta, falta de movimento). Se observado, remova o rato do tubo de contenção, entre em contato com um veterinário e exclua o rato do estudo.
- Devolva o rato para a gaiola de casa e forneça acesso a comida e água.
3. Avaliações do estresse
- Medição da ativação do HPA
- Se apropriado, após a exposição ao estresse de contenção ou remoção da gaiola doméstica, decapite rapidamente os indivíduos para coletar sangue do tronco em tubos heparinizados.
- Isolar o plasma por centrifugação e armazenar as amostras de plasma a -80 °C. Analise a corticosterona sanguínea usando um kit de ensaio imunoenzimático (ELISA).
NOTA: Embora a corticosterona seja frequentemente usada como uma leitura da gravidade da exposição ao estresse, especialmente o estresse agudo, os níveis de corticosterona nem sempre se correlacionam com as alterações comportamentais induzidas pelo estresse6. Além disso, a resposta do eixo HPA que regula a liberação de corticosterona se habitua à exposição repetida ao mesmo estressor18. Alternativamente, o hormônio adrenocorticotrófico (ACTH) pode ser uma medida mais confiável da intensidade de um estressor agudo4. Ele permanece elevado por aproximadamente uma hora após a cessação da exposição ao estressor, mas o estresse severo e prolongado (aproximadamente > 2 h) pode cansar sua produção.
- Efeitos comportamentais
- Se apropriado, após a exposição ao estresse de contenção ou remoção da gaiola, avalie o desempenho comportamental do roedor com a tarefa comportamental apropriada.
NOTA: Mais informações sobre os efeitos da contenção em vários modelos comportamentais podem ser encontradas na seção de discussão.
- Se apropriado, após a exposição ao estresse de contenção ou remoção da gaiola, avalie o desempenho comportamental do roedor com a tarefa comportamental apropriada.
- Neurobiologia
- Alternativamente ou adicionalmente, avalie a função neurobiológica após a exposição ou controle do estresse de contenção. Uma ampla gama de ensaios pode investigar os efeitos do estresse de contenção em celulares, sinápticos e circuitos. Dependendo do ensaio, implante um dispositivo de medição in vivo ou colete tecido cerebral para realizar a análise selecionada.
NOTA: Os efeitos do estresse nas mudanças específicas do tipo de célula na síntese de proteínas e modificações epigenéticas foram completamente revisados por McEwen e colegas1. Essas modificações genéticas e proteicas induzem plasticidade para alterar as conexões e circuitos sinápticos. Para realizar esses estudos, colha tecido cerebral após a exposição ao estresse e realize análises genômicas, proteômicas, fisiologia ex vivo e outras. Alternativamente, avalie as alterações neurobiológicas por meio de medições in vivo, como microdiálise, voltametria cíclica de varredura rápida (FSCV), fotometria de fibra e outras. Essas abordagens registram a liberação neuroquímica e a ativação neuronal, tanto após a exposição ao estresse de contenção 2,19 quanto agora durante a contenção 8,9,20. A caixa de ferramentas para avaliar os mecanismos neurobiológicos subjacentes aos efeitos do estresse de contenção está se expandindo rapidamente, permitindo novos insights sobre as complexidades do estresse.
- Alternativamente ou adicionalmente, avalie a função neurobiológica após a exposição ou controle do estresse de contenção. Uma ampla gama de ensaios pode investigar os efeitos do estresse de contenção em celulares, sinápticos e circuitos. Dependendo do ensaio, implante um dispositivo de medição in vivo ou colete tecido cerebral para realizar a análise selecionada.
Resultados
Em um estudo publicado anteriormente21, os procedimentos de estresse de contenção descritos neste manuscrito foram usados para avaliar o impacto do estresse de contenção na regulação do cortisol e da norepinefrina, enquadrando-se nas amplas possibilidades de alterações na neurobiologia induzidas pelo estresse mencionadas no protocolo 3.3. Neste estudo, utilizamos o protocolo descrito acima para a contenção de camundongos. Detalhes adicionais que estão além do escopo do foco de restrição deste artigo, por exemplo, a justificativa para a região do cérebro, parâmetros de estimulação optogenética ou FSCV, podem ser encontrados no manuscrito referenciado.
Usamos camundongos transgênicos machos e fêmeas (DBH:Cre+/-::Ai32+/-) expressando canalrodopsina seletivamente em neurônios noradrenérgicos e medimos a liberação estimulada de norepinefrina no núcleo do leito da estria terminal (BNST) com FSCVex vivo 21. Os camundongos foram contidos conforme descrito no protocolo 1 agudamente (2 h) e cronicamente (2 h/dia por 5 dias) ou controle em gaiola doméstica. Após a exposição, foi coletado sangue de alguns indivíduos para análise de corticosterona, conforme descrito no protocolo 3.1. Imediatamente após o estresse agudo de contenção, os camundongos mostraram níveis elevados de corticosterona, mas a resposta foi atenuada após estresse repetido (ver Figura 1). Camundongos adicionais foram usados para avaliar o impacto do estresse de contenção na liberação de norepinefrina. 24 horas após a exposição final ao estresse, o tecido cerebral foi rapidamente colhido e fatiado para registrar a liberação de norepinefrina no BNST. Curiosamente, a contenção aguda não afetou a liberação estimulada de norepinefrina, mas a exposição repetida ao estresse causou um aumento significativo na liberação estimulada de norepinefrina em todos os parâmetros de estimulação (ver Figura 2). Esses resultados convergem com investigações anteriores sobre o impacto do estresse de contenção na liberação de norepinefrina em ratos usando as abordagens descritas no protocolo 217,22.

Figura 1: Corticosterona no plasma de controles domésticos (ingênuos) e após estresse agudo (único) e crônico (repetido) de contenção. Após uma única sessão de 2 horas de estresse agudo de contenção, os níveis plasmáticos de corticosterona foram elevados em comparação com indivíduos com estresse ingênuo e repetido. Os resultados são expressos como média ± SEM. N = 5-6 camundongos por grupo. **p < 0,05, ***p < 0,005. Essa figura foi modificada com permissão de Schmidt et al.21. Clique aqui para ver uma versão maior desta figura.
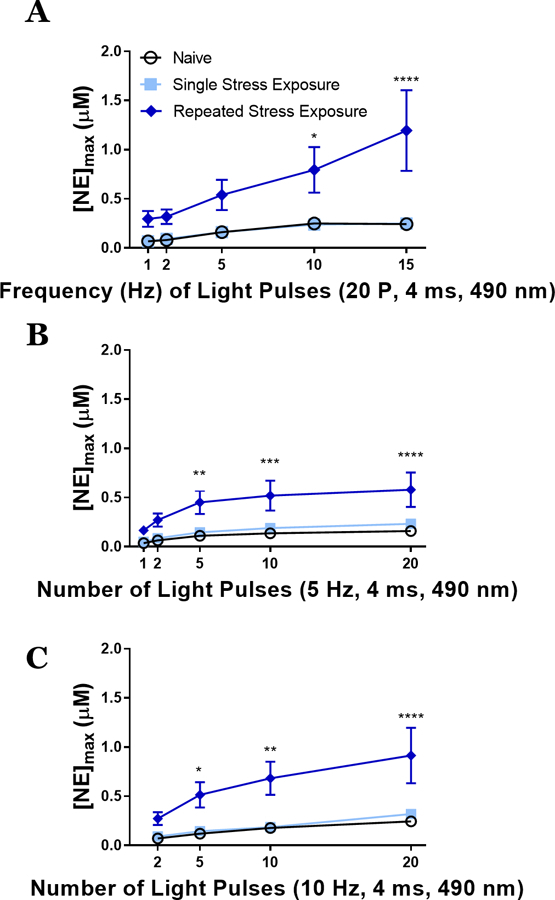
Figura 2: A liberação de norepinefrina estimulada optogeneticamente é aumentada após estresse crônico (repetido) de contenção. No dia seguinte à exposição final ao estresse, a voltametria cíclica de varredura rápida ex vivo foi realizada para medir a liberação de norepinefrina estimulada optogeneticamente no núcleo do leito da estria terminal de camundongos. (A) Variações de frequência (Hz) de 20 pulsos (20 P) de estímulos liberaram mais norepinefrina no grupo de estresse repetido. (B, C) Variações no número de pulsos (2-20) em uma frequência de estimulação de 5 Hz (B) ou 10 Hz (C) indicaram maior liberação de norepinefrina no grupo de estresse repetido. Média ± SEM; n = 5−6 camundongos/grupo fornecendo 7−8 fatias/grupo. *p < 0,05, **p < 0,05, ***p < 0,005 e ****p < 0,0001. Essa figura foi modificada com permissão de Schmidt et al.21. Clique aqui para ver uma versão maior desta figura.
Discussão
Para investigar os efeitos do estresse nas funções fisiológicas, neurobiológicas e comportamentais em modelos de roedores, devem ser utilizadas condições que produzem estresse para roedores. Dentre essas considerações estão as condições que produzem respostas de estresse no sujeito. A contenção é um procedimento validado para produzir respostas fisiológicas e comportamentais em roedores que correspondam aos efeitos do estresse em humanos. Usando uma metodologia semelhante a este protocolo, a contenção tem sido usada para avaliar uma série de respostas moleculares, celulares, endócrinas e fisiológicas relacionadas a modelos de transtornos psiquiátricos, incluindo ansiedade, depressão, dor e transtorno por uso de substâncias 1,19. Aqui, os dados de um estudo publicado são apresentados como um exemplo de contenção em roedores, mas os efeitos da contenção se estendem além desse exemplo específico para uma vasta gama de medidas dependentes. A contenção pode ser selecionada para uso como estressor porque é fácil de executar em camundongos e ratos, barata de estabelecer e adaptável para induzir vários níveis de respostas ao estresse, dependendo dos parâmetros usados.
Quando comparada a outras abordagens indutoras de estresse, a contenção tem algumas limitações a serem consideradas durante o desenho do estudo 4,23. Notavelmente, o estresse de contenção nem sempre induz mudanças comportamentais observadas com outros estressores físicos, como choque intermitente no pé24. Essas inconsistências podem ser resultado da vantagem da restrição de que ela pode ocorrer em uma variedade de ambientes, enquanto o choque de pé é mais limitado a uma câmara de teste equipada com pisos de grade de choque. Os contextos de estresse influenciam muito os efeitos resultantes11. Além disso, o confinamento dentro de um tubo ou dispositivo de contenção tradicional é uma desvantagem porque limita o acesso ao sujeito durante a contenção. Dispositivos de contenção mais recentes foram desenvolvidos, por exemplo, "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", para superar essa limitação e permitir o tethering para coleta de dados neurobiológicos durante as sessões de contenção 8,9,20. Outra abordagem para lidar com esse obstáculo usa o estresse de imobilização como uma técnica semelhante à contenção - muitas vezes, imobilização e contenção são usadas como sinônimos, mas com diferenças importantes25. O estresse de imobilização envolve prender os braços, pernas e cabeça de um animal a uma superfície, enquanto a contenção envolve a colocação dentro de um dispositivo restritivo. Como tal, o estresse de imobilização restringe o movimento enquanto fornece acesso ao sujeito para a coleta de sangue, líquido cefalorraquidiano, respostas pupilares ou outros efeitos fisiológicos que podem ser de interesse para a pesquisa de estresse. Estressores adicionais que têm sido usados para induzir estresse em roedores incluem estresse ambiental pelo frio, administração de agentes farmacológicos como corticosterona ou ioimbina, experiências etologicamente relevantes de derrota social ou exposição a odores de predadores e estresse multimodal como estresse imprevisível crônico (CUS). Essas modalidades alternativas de estresse são selecionadas para uso devido às suas vantagens na modelagem de aspectos específicos do estresse. Por exemplo, apesar de a contenção ser um aspecto dos modelos de USC em camundongos e ratos26, os efeitos da USC podem ser distintos daqueles produzidos por uma exposição equivalente ao estresse crônico de contenção27,28. A previsibilidade da contenção repetida reduz a resposta a futuros episódios de contenção, o que limita a eficácia do estresse de contenção homotípico. Como alternativa, o CUS e outros modelos de estresse heterotípicos alternam estressores ou contextos para minimizar a habituação11,18. Esses modelos de estresse imprevisíveis podem modelar melhor os aspectos das condições psiquiátricas humanas para encapsular totalmente a perda de controle e a expectativa. Outra desvantagem da contenção que outras modalidades de estresse são melhores em abordar é a contribuição social para a suscetibilidade ao estresse e o amortecimento do estresse 29,30,31. Roedores e humanos são animais sociais com relações e hierarquias coespecíficas. Embora o estresse de contenção não incorpore a socialização, estressores psicossociais, como o estresse de derrota social, fornecem um estressor etologicamente relevante para roedores 32,33,34.
Dentro do uso do estresse de contenção, a intensidade e a repetição da administração é um parâmetro que pode ser manipulado5. Para criar uma tensão de contenção mais robusta, o projeto do estudo pode exigir um período de tempo maior no dispositivo de restrição. Tão curto quanto 5 min ou tão longo quanto 12 h são parâmetros possíveis para sessões de contenção agudas ou prolongadas, respectivamente 35,36. Uma vez determinado o tempo de exposição à contenção, a repetição do estressor também pode ser um fator na indução de vários níveis de estresse35,37. Deve-se notar que o estresse repetido de contenção não significa necessariamente um aumento nos efeitos observados. Muitas vezes, o estresse de contenção repetido habitua ou reduz as respostas ao estresse18. Nos dados aqui apresentados, observamos habituação com a resposta da corticosterona ao estresse de contenção repetido, enquanto, ao mesmo tempo, medimos diferenças na liberação de norepinefrina estimulada apenas no grupo de exposição ao estresse repetido. Portanto, os efeitos da contenção repetida devem ser cuidadosamente investigados antes de determinar os efeitos de habituação35.
Além disso, as consequências das condições de alojamento utilizadas em estudos que utilizam estresse de contenção devem ser consideradas. A interação com coespecíficos estressados afeta as respostas ao estresse em roedores 30,38,39. Assim, para manter respostas consistentes entre os grupos experimentais, os indivíduos devem ser alojados individualmente ou em grupo com todos os companheiros de gaiola experimentando a mesma condição de estresse37. Criticamente, uma desvantagem dessa abordagem de isolamento social de todos os sujeitos é que a habitação de isolamento social também é um estressor40,41. No entanto, independentemente das condições de moradia, a exposição ao estresse deve ocorrer isoladamente, se possível, para evitar que o amortecimento social do estresse impacte as medidas de desfecho30. Juntamente com essas condições de moradia, o momento da exposição ao estresse em relação aos ciclos de luz ambientais deve ser considerado14,15. Como alguns estudos observam37, os níveis de corticosteróides seguem os ritmos circadianos, portanto, a administração de estressores em diferentes momentos do ciclo de luz pode produzir efeitos inconsistentes. Portanto, estabelecer e manter um horário de início uniforme para a contenção é essencial. Por exemplo, um artigo que examina os efeitos do estresse do exercício no controle circadiano da corticosterona mostra que, em camundongos controle, a corticosterona atinge o pico no final do ciclo de luz, mas em camundongos estressados, a corticosterona permanece elevada sem um pico estável13. À luz dessas descobertas, recomenda-se estressar roedores no início do ciclo de luz para produzir os maiores efeitos.
Além dos parâmetros das condições de contenção, as características do animal também foram importantes a serem consideradas em estudos que utilizam estressores de contenção. Por exemplo, vários estudos relataram diferenças entre os sexos usando estresse de contenção 12,35,37,42,43,44. Compreender os mecanismos subjacentes a essas diferenças é digno de investigação e pode levar a melhores resultados para tratamentos equitativos quando as pessoas experimentam estresse. Talvez mulheres e homens experimentem e processem os estressores de maneira diferente, o que leva ao aumento da ansiedade e depressão nas mulheres44. Por exemplo, o estresse de contenção diminui o desempenho de aprendizagem em homens, mas aumenta o desempenho de aprendizagem em mulheres45. Historicamente, os estudos de estresse de contenção em roedores limitaram seus sujeitos aos machos, mas no futuro, devemos projetar experimentos para incluir ambos os sexos. Outra característica do assunto a ser considerada ao projetar experimentos usando estressores de restrição (e outros) em espécies de camundongos ou ratos é a cepa 46,47,48,49,50,51. Os efeitos da tensão foram observados em vários paradigmas, com algumas cepas exibindo respostas exacerbadas ao estresse de contenção. Por fim, a idade do sujeito deve ser considerada ao utilizar o estresse de contenção. Desde a exposição pré-natal ao estresse, restringindo uma mãe grávida até a contenção em populações idosas, o estresse de contenção pode ser adaptado a qualquer momento. Diferenças na resposta ao estresse foram demonstradas ao longo da vida 45,52,53,54,55,56. Além de exigir diferentes dispositivos de contenção para acomodar mudanças no tamanho do corpo à medida que o envelhecimento ocorre, as experiências de estresse relacionadas à idade devem ser consideradas ao usar estressores de contenção.
A seleção da medida de resultado apropriada, seja uma tarefa comportamental descrita em 3.2 ou uma variável neurobiológica descrita em 3.3, requer consideração. Por um lado, a exposição aguda e leve ao estresse demonstrou melhorar o desempenho em algumas tarefas de aprendizagem, mas a exposição intensa ou crônica ao estresse prejudica o desempenho em tarefas de aprendizagem e memória57. Acredita-se que essas mudanças no desempenho cognitivo sejam reguladas pela desregulação do circuito entre o córtex pré-frontal, a amígdala e o hipocampo. No entanto, os efeitos do estresse de contenção na flexibilidade cognitiva são mais misturados, com achados inconsistentes que dificultam uma imagem clara de como parâmetros variados de contenção alteram o aprendizado de reversão ou a mudança de conjunto58. Com relação aos efeitos comportamentais das drogas, o estresse de contenção demonstrou, como outros estressores, aumentar os comportamentos relacionados ao transtorno por uso de substâncias em várias classes de drogas59. No entanto, esses efeitos são um tanto seletivos, pois o estresse de contenção não é relatado como impulsionador da busca de drogas em modelos de recaída de condicionamento operante, mas aumenta o aprendizado associativo dos efeitos das drogas, medido por tarefas de preferência de lugar condicionadas, incluindo a reintegração60. Acredita-se que essa discrepância ocorra porque os dispositivos de contenção criam um contexto separado das câmaras de condicionamento operante, enquanto o estresse de choque no pé pode ocorrer no ambiente operante. Para superar essa limitação, o emparelhamento da exposição ao estresse com pistas que podem ser apresentadas durante as sessões de autoadministração operante demonstrou aumentos induzidos pelo estresse no uso e na busca de drogas61. Os efeitos da contenção crônica sobre os comportamentos relacionados às drogas são menos bem caracterizados. Considerando modelos de transtornos afetivos como ansiedade e depressão, tanto em humanos quanto em modelos animais, a exposição ao estresse aumenta as medidas de ansiedade. Em roedores, as avaliações de ansiedade do estresse de contenção incluem respostas de tigmotaxia no aparelho de campo aberto medidas pelo rastreamento da resposta locomotora do animal ao longo das paredes da arena em comparação com o centro. Animais que exibem comportamentos semelhantes à ansiedade após a contenção passarão mais tempo perto dos lados e terão menos cruzamentos centrais. Outra abordagem para medir a ansiedade é o labirinto em cruz elevado. Esta tarefa usa um aparelho em forma de cruz elevado a aproximadamente 3 pés acima do chão. Dois braços do aparelho incluem barreiras de parede; dois braços têm lados abertos. Animais que exibem comportamentos semelhantes à ansiedade passarão mais tempo nos braços fechados do que nos braços abertos62,63. Comportamentos semelhantes à depressão são avaliados por meio da tarefa de nado forçado, na qual os roedores são colocados em um cilindro de água e medidos quanto às respostas de luta em comparação com as respostas flutuantes64. Se a cessação da luta para escapar realmente representa um comportamento semelhante à depressão foiquestionado 65, mas a tarefa mostrou utilidade como uma tela para medicamentos antidepressivos. Comportamentos semelhantes à depressão também podem ser avaliados por meio de reduções induzidas pelo estresse na preferência porsacarose 66. Essas mudanças no consumo de líquido doce são tomadas como uma avaliação dos aspectos da anedonia da depressão clínica.
Em resumo, a contenção em camundongos e ratos é um procedimento validado para produzir respostas de estresse e ansiedade em estudos de fisiologia, genética, imunologia e neurociência. Em comparação com outras abordagens indutoras de estresse, a contenção é barata, fácil de executar, útil para modelar aspectos de distúrbios humanos, incluindo ansiedade, depressão, transtorno por uso de substâncias e transtorno de estresse pós-traumático, e pode ser adaptada com uma ampla gama de parâmetros. Por essas razões, o estresse de contenção continua a ser um método útil para determinar o impacto do estresse em roedores.
Divulgações
Sem conflitos de interesse a relatar.
Agradecimentos
Agradeço o feedback editorial fornecido por Holly Rahurahu e Sam Shaffer.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tubo cônico de tampa de rosca de uso geral de 50 mL | Globe Scientific | 6288 | |
| Fisher Scientific | 13-681-500 | ||
| ensaios de mandril | de corticosterona | K014-H | |
| Tubo de retenção de cauda | Braintree Scientific | RTV |
Referências
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Reimpressões e permissões
