Este manuscrito descreve os procedimentos operacionais e precauções para investigar os potenciais mecanismos patogênicos comuns que ligam a síndrome de Sjögren primária e o adenocarcinoma de pulmão por meio de análise de bioinformática e verificação experimental.
Artigo de método
Síndrome de Sjögren Primária Associada ao Adenocarcinoma de Pulmão: Sondando os Potenciais Mecanismos Patogênicos Comuns e Verificação Experimental
Neste artigo
Resumo
Resumo
Este estudo teve como objetivo investigar os potenciais mecanismos patogênicos comuns que ligam a síndrome de Sjögren primária (SSp) e o adenocarcinoma de pulmão (LUAD) por meio de análise de bioinformática e verificação experimental. Os genes relevantes associados a pSS e LUAD foram recuperados do banco de dados Gene Expression Omnibus (GEO) e do banco de dados Genecard. Posteriormente, genes diferencialmente expressos (DEGs) associados a pSS e LUAD foram rastreados como pSS-LUAD-DEGs. Análises de enriquecimento da Enciclopédia de Genes e Genomas de Kyoto (KEGG) e Ontologia Gênica (GO) foram realizadas para elucidar as funções biológicas significativas dos pSS-LUAD-DEGs. Os alvos principais foram identificados pela construção da rede de interação proteína-proteína (PPI), avaliando ainda mais a precisão do diagnóstico do gene hub por meio de análises de curva ROC (Receiver Operating Characteristic). Neste estudo, camundongos NOD/Ltj serviram como modelos animais pSS e foram estimulados com material particulado 2,5 (PM2,5) para gerar uma reação inflamatória. Reação em cadeia da polimerase quantitativa em tempo real (qPCR), ensaio imunoenzimático (ELISA) e western blotting foram empregados para verificação relevante de experimentos de biologia molecular. Os resultados revelados por meio de análises de enriquecimento KEGG e GO indicam que a inflamação desempenha um papel crítico na ligação entre pSS e LUAD. IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 foram determinados como os principais alvos do pSS-LUAD. Camundongos BALB/c e camundongos NOD/Ltj exibiram expressão aumentada das citocinas inflamatórias IL-6 e IL-1β nos tecidos pulmonares após 21 dias de estimulação com PM2.5, ativando a via de sinalização JAK2/STAT3 e regulando positivamente a expressão dos genes associados ao tumor CCNA2, CCNB2 e CEP55, com camundongos NOD/Ltj exibindo alterações mais pronunciadas do que camundongos BALB/c. Este protocolo demonstra que a carcinogênese induzida pelo microambiente inflamatório pulmonar pode ser uma das principais razões para a alta incidência de LUAD em pacientes com SSp. Além disso, os mecanismos relacionados ao bloqueio podem ajudar a prevenir a ocorrência de LUAD em pacientes com SSp.
Introdução
A síndrome de Sjögren primária (SSp) é uma doença autoimune caracterizada por infiltração linfocítica das glândulas exócrinas e leva aos sintomas clínicos de olhos secos (xeroftalmia) e boca seca (xerostomia)1,2. A SSp também é geralmente acompanhada por manifestações extraglandulares de envolvimento, incluindo hiperglobulinemia3, doença pulmonar intersticial4, acidose tubular renal5, dano neurológico6 e trombocitopenia7, que constituem os principais fatores prognósticos adversos. Nos últimos anos, uma linha de estudos tem demonstrado que a SSp é geralmente acompanhada por um aumento da prevalência de câncer, incluindo neoplasias hematológicas e tumores sólidos 8,9,10. O câncer de pulmão é um dos cânceres mais comuns relacionados à SSP, especialmente o adenocarcinoma de pulmão (LUAD)11.
Coletivamente, uma investigação mais aprofundada sugeriu que a SSp com LUAD pode ter alguma patogênese comum subjacente. De acordo com nosso conhecimento atual, ainda não há estudos especiais que expliquem os mecanismos comuns entre as duas doenças. Recentemente, a análise de bioinformática oferece uma possibilidade potencial para revelarmos mecanismos de doenças potencialmente compartilhados entre as espécies 12,13,14. Para revelar ainda mais os mecanismos subjacentes, a análise de bioinformática é usada para a análise de alvos comuns e vias de sinalização entre pSS e LUAD, e modelos animais são posteriormente estabelecidos para verificação experimental. A revelação desses mecanismos pode ajudar a fornecer uma base de evidências para a prevenção clínica da LUAD em pacientes com SSp.
Este estudo utilizou os bancos de dados GEO e Genecard para recuperar os genes relevantes associados a pSS e LUAD. Posteriormente, os DEGs associados a pSS e LUAD foram rastreados como pSS-LUAD-DEGs. Realizamos análises de enriquecimento KEGG e GO para elucidar as funções biológicas significativas dos pSS-LUAD-DEGs. A construção da rede PPI foi usada para identificar os principais alvos, e avaliamos ainda mais a precisão diagnóstica do gene hub por meio de análises da curva ROC. Usamos camundongos NOD/Ltj como modelos animais pSS estimulados com material particulado 2,5 (PM2,5) para gerar uma reação inflamatória. QPCR, ELISA e western blotting foram realizados para verificar o estudo experimentalmente. No geral, os resultados aqui indicam que a carcinogênese induzida pelo microambiente inflamatório pulmonar pode ser uma razão crítica para a alta incidência de LUAD em pacientes com SSp. Também sugere que a ocorrência de LUAD em pacientes com SSp pode ser prevenida por mecanismos relacionados ao bloqueio.
Protocolo
Os animais experimentais foram alojados nas instalações de animais do Hospital da Amizade China-Japão, onde as condições de alojamento atendiam ao ambiente de alimentação animal de acordo com o padrão nacional da China, Requisitos de Animais de Laboratório de Instalações Ambientais e de Alojamento (GB14925-2010). Todos os procedimentos e experimentos de cuidados com os animais obedeceram às diretrizes ARRIVE e foram baseados nos princípios 3R (redução, substituição, refinamento), aderindo às diretrizes da Lei Nacional de Bem-Estar Animal da China. Os camundongos BALB/c foram comprados da SPF (Beijing) Biotechnology Co., Ltd., e os camundongos NOD/Ltj foram comprados da Huafukang (Beijing) Biotechnology Co., Ltd.
1. Análise de bioinformática
- Preparação de conjuntos de dados
- Abra o banco de dados Gene Expression Omnibus (GEO) (www.ncbi.nlm.nih.gov/geo)15 e use a síndrome de Sjögren primária e o adenocarcinoma de pulmão como palavras-chave para pesquisar perfis de expressão gênica. Em seguida, clique nos resultados no banco de dados GEO DataSets e selecione Homo sapiens em Principais organismos. Selecione e baixe o conjunto de dados de interesse junto com as informações da plataforma correspondentes.
- Abra o banco de dados Genecard (https://www.genecards.org/)16 e use asíndrome de Sjögren p rimária e o adenocarcinoma de pulmão como palavras-chave para obter os genes de pSS e LUAD. Baixe as planilhas dos genes da doença.
- Identificação de DEGs compartilhados entre pSS e LUAD
- Baixe e abra o software R (https://cran.r-project.org/)17. Instale o pacote GEOquery R, o pacote stringr R, o pacote ggplot2 R, o pacote reshape2 R e o pacote limma R no software R.
- Identifique e visualize genes diferencialmente expressos (DEGs) em diferentes conjuntos de dados GEO (GSE84844, GSE51092, GSE32863 e GSE75037) usando o software R e, em seguida, compare e analise a expressão gênica entre esses conjuntos de dados. Considere os genes com um valor P ajustado < 0,05 e mudança de dobra (FC) > 1,2 ou < 0,83 como DEGs.
- Selecione genes com um nível de expressão maior ou igual a 20 relacionados a pSS e LUAD do banco de dados Genecard.
- Mescle os DEGs associados ao pSS e os DEGs associados ao LUAD do banco de dados GEO e do banco de dados Genecard.
- Instale e carregue o pacote VennDiagram no R para obter e visualizar os DEGs associados a pSS e LUAD (pSS-LUAD-DEGs).
- Análise de enriquecimento da via da Enciclopédia de Genes e Genomas de Kyoto (KEGG)
- Digite Metascape (https://metascape.org/)18. Clique em Selecionar arquivo e carregue o arquivo de formato .xlsx do pSS-LUAD-DEGs. Selecione H. sapiens em Entrada como espécie. Da mesma forma, selecione H. sapiens em Análise como Espécie.
- Clique em Análise personalizada. Clique em Enriquecimento e selecione Caminho KEGG. Clique em Análise de Enriquecimento e, em seguida, clique em Página do Relatório de Análise quando a análise de enriquecimento estiver concluída.
- Clique em Tudo em um arquivo Zip para baixar o resultado. Acesse o arquivo _ FINAL_GO.csv na pasta de Enrichment_GO de download para visualizar o resultado.
- Use o pacote ggplot2 para executar o programa de visualização KEGG em R.
- Análise de enriquecimento de Ontologia Gênica (GO)
- Instale e carregue o pacote clusterProfiler e enrichplot no R.
- Importe a lista de formato de texto de pSS-LUAD-DEGs para R.
- Execute os pacotes clusterProfiler e enrichplot para análise de enriquecimento GO e visualização de resultados. Defina a significância estatística na análise em um valor de P ajustado < 0,05.
- Construção de rede de interação proteína-proteína (PPI) e análise de módulos
- Digite o banco de dados Retrieval of Interacting Genes (STRING) (http://string-db.org/)19. Clique em Procurar e carregue o arquivo de pSS-LUAD-DEGs. Selecione Homo sapiens em Organismos e clique em Pesquisar.
- Clique em Continuar. Assim que os resultados estiverem disponíveis, clique em Configurações. Em Configurações básicas > Pontuação mínima de interação necessária, selecione Alta confiança (0,700). Marque Ocultar nós desconectados na rede em Configurações avançadas e clique em Atualizar.
- Clique em Exportações na barra de título para baixar o texto da relação PPI no formato TSV.
- Baixe e ative o software Cytoscape 3.7.1 (https://cytoscape.org/)20. Clique em Arquivo > Importar > rede do arquivo para importar o arquivo de formato TSV para construir a rede PPI.
- Use a ferramenta Network Analyzer para analisar os parâmetros topológicos na rede. Otimize o tamanho e a cor do nó por meio da barra de estilo no painel de controle esquerdo.
- Na barra de menus, selecione Ferramentas > Analisar rede. No painel Tabela , clique em Grau para classificar os componentes por grau em ordem decrescente. Pegue os 20 principais genes com graus mais altos como genes centrais.
- Instale e carregue os pacotes igraph e ggplot2 no R para visualizar os genes do hub por grau.
- Identificação e validação de genes hub
- Instale e carregue o pacote pROC em R.
- Importe a lista de genes de hub em formato de texto para R.
- Plote as curvas ROC (receiver operating characteristic) dos genes do hub e calcule a área sob os valores da curva ROC (AUC).
NOTA: Consulte o Arquivo de Codificação Suplementar 1 para obter o código R para filtrar DEGs.
2. Verificação experimental
NOTA: Consulte a Tabela de Materiais para obter detalhes sobre os materiais, reagentes e instrumentos usados neste protocolo.
- Preparação animal
- Alimentar 12 ratinhos BALB/c fêmeas com nove semanas de idade e 12 ratinhos NOD/Ltj fêmeas com nove semanas de idade de forma adaptativa durante 1 semana.
- Use uma tabela de números aleatórios para alocar uniformemente 12 camundongos BALB/c fêmeas de nove semanas de idade no grupo de controle em branco e no grupo PM2.5. Da mesma forma, divida uniformemente 12 camundongos NOD / Ltj fêmeas de nove semanas de idade no grupo pSS e no grupo pSS-PM2.5.
- Preparação da suspensão de partículas 2.5 (PM2.5)
NOTA: PM2.5 pode induzir a ocorrência e o desenvolvimento de LUAD relacionado à inflamação no modelode camundongo 21. Camundongos BALB/c e camundongos NOD/Ltj foram induzidos por PM2.5 a desenvolver alterações relacionadas à inflamação. De acordo com o método descrito por Piao et al.22, a concentração da suspensão de PM2,5 foi preparada a 1 mg/mL.- Pese as membranas de fibra de quartzo PM2.5, corte-as em pedaços de 2 cm × 2 cm e mergulhe-as em um béquer contendo uma quantidade adequada de água deionizada.
- Fechar o copo e sonicá-lo num sonicador em banho-maria a 37 °C durante 30 minutos de cada vez. Repita este processo 3 vezes até que as partículas estejam completamente dissolvidas.
- Filtre o líquido no béquer através de 16 camadas de gaze médica estéril e, em seguida, esprema qualquer umidade residual da gaze.
- Colocar o filtrado num prato raso e congelá-lo em blocos de gelo num congelador a -20 °C. Em seguida, use um instrumento de liofilização (-52 ° C, 0,1 mbar, 48 h) para secar os blocos de gelo do filtrado e coletar as partículas em pó.
- Dissolva as partículas em pó completamente em solução salina para preparar uma suspensão de PM2,5 com uma concentração de 1 mg/mL. Despeje a suspensão PM2.5 em uma garrafa de vidro, coloque-a em um esterilizador de alta pressão e aplique alta pressão e temperatura (15 min a 121 ° C, 15 psi) para esterilização.
- Realize agitação ultrassônica (200 W, 10 s de agitação, 10 s de repouso, por 3 ciclos). Após o tratamento, guarde-o em uma geladeira a 4 °C para uso posterior.
- Estabelecimento do modelo de camundongo PM2.5
NOTA: O grupo PM2.5 e o grupo pSS-PM2.5 receberam suspensão de PM2.5 por gotejamento da traqueia uma vez a cada 3 dias durante 28 dias, com cada dose sendo de 0,1 mL. O grupo controle em branco e o grupo pSS receberam soro fisiológico por gotejamento da traqueia uma vez a cada 3 dias por 28 dias, sendo cada dose de 0,1 mL.- Injete uma mistura de cetamina (100 mg / kg) e xilazina (10 mg / kg) no camundongo. Confirme o plano cirúrgico da anestesia verificando se há falta de resposta a uma pinça do dedo do pé e garantindo o relaxamento muscular completo. Monitore continuamente os reflexos, a respiração e a resposta geral para garantir que a anestesia adequada seja mantida durante todo o procedimento até que todas as etapas sejam concluídas.
- Posicione o mouse no limitador de pequenos animais com o abdômen voltado para cima, a cabeça elevada e a cauda abaixada em um ângulo de 45°. Use linha fina para enrolar os incisivos superiores do mouse, puxando-os para cima, e prenda a rosca em um parafuso no suporte do animal, garantindo a exposição total da cavidade oral do mouse.
- Abra a lâmpada de luz fria e acenda a luz na pele do pescoço do rato. Use uma pinça para puxar a língua do rato, expondo totalmente a glote. Observe dentro da cavidade oral do camundongo um ponto de luz recorrente de abertura e fechamento, que indica a posição da abertura das vias aéreas do camundongo.
- Insira a agulha venosa de demora 18 G na traqueia do camundongo, puxe o núcleo da agulha, coloque o fio de algodão na extremidade externa da agulha venosa e confirme o sucesso ao observar o fio de algodão se movendo com os movimentos do peito do camundongo.
- Aspire 0,2 mL de ar primeiro usando uma seringa de 1 mL, depois aspire 0,1 mL de suspensão PM2,5, seguido de aspiração de mais 0,2 mL de ar. Injetar a mistura através da agulha venosa de demora 18 G na traqueia.
- Retire a agulha venosa de demora 18 G. Prenda o porta-animais na posição vertical e gire-o no sentido horário e anti-horário 30 vezes para distribuir uniformemente a suspensão PM2.5 nos pulmões do camundongo. Em seguida, estenda o pescoço do rato e coloque-o de lado para evitar asfixia.
- Coleta de espécimes
NOTA: Colete amostras no29º dia do experimento para análises subsequentes de biologia molecular.- Verifique a conexão do sistema de eutanásia e ligue a alimentação do controlador. Abra a válvula do cilindro de dióxido de carbono (CO2).
NOTA: Não encha previamente a câmara de eutanásia antes de colocar os animais dentro. - Coloque os camundongos na câmara e infunda CO2 a 30% -70% do volume da câmara por minuto. Exponha os camundongos ao CO2 por 5 min, garantindo que eles estejam imóveis, sem respirar e com as pupilas dilatadas. Desligue a válvula do cilindro de CO2 e observe por mais 5 minutos para confirmar a morte.
- Coloque o camundongo sacrificado em decúbito dorsal em uma placa de dissecação limpa. Exponha a traqueia, o coração e os pulmões.
- Use tesouras e fórceps para remover a pele e os músculos que cobrem as regiões ventral torácica e do pescoço. Use tesouras e fórceps para fazer incisões ao longo das bordas das costelas em ambos os lados da cavidade torácica para expor a cavidade torácica que contém o coração e os pulmões. Em seguida, corte a clavícula para criar uma abertura larga o suficiente para examinar minuciosamente os lobos pulmonares esquerdo e direito.
- Extirpar os músculos do pescoço que se estendem do esterno e costelas até a mandíbula. Insira uma tesoura abaixo da borda anterior das costelas e faça incisões em ambos os lados para remover a porção óssea que cobre a traqueia.
- Segure a traqueia perto da mandíbula com uma pinça e faça uma incisão transversal completa usando uma tesoura colocada acima da pinça.
- Puxe suavemente a traqueia com uma pinça, cortando as conexões do tecido ventral com uma tesoura até que todo o tecido torácico seja removido do corpo.
- Coloque os pulmões na bancada. Enxágue o resíduo da superfície do tecido pulmonar com soro fisiológico, seque com papel de filtro, alíquota em criotubos e armazene a -80 °C.
- Verifique a conexão do sistema de eutanásia e ligue a alimentação do controlador. Abra a válvula do cilindro de dióxido de carbono (CO2).
- Reação em cadeia da polimerase quantitativa em tempo real (qPCR)
- Moa o tecido pulmonar em pó usando uma argamassa contendo nitrogênio líquido.
- Pese 20 mg de tecido moído usando uma balança de precisão, combine-o com 750 μL de Buffer RL em um tubo de centrífuga, misture bem usando um misturador de vórtice e deixe repousar em temperatura ambiente (RT) por 3 min. Em seguida, centrifugue-o a 14.000 x g por 5 min em RT e colete o sobrenadante.
- Coloque a mini coluna de filtro de DNA genômico (gDNA) em um tubo de coleta de 2 mL. Transferir o sobrenadante para a mini-coluna do filtro de ADNg e centrifugar a 14.000 x g durante 2 min a RT.
- Descarte a mini coluna do filtro gDNA. Adicione um volume igual de etanol a 70% ao filtrado e misture pipetando para cima e para baixo 5 vezes.
- Coloque a mini coluna de RNA em um tubo de coleta de 2 mL. Transfira 750 μL da mistura para a mini coluna de RNA e centrifugue a 12.000 x g por 1 min em RT.
- Descarte o filtrado e coloque a mini coluna de RNA de volta no tubo de coleta de 2 mL. Adicione 500 μL de tampão RW1 à mini coluna de RNA e centrifugue a 12.000 x g por 1 min em RT.
- Descarte o filtrado e coloque a mini coluna de RNA de volta no tubo de coleta de 2 mL. Adicione 500 μL de tampão RW2 à mini coluna de RNA. Centrifugue a 12.000 x g por 1 min em RT. Repita esta etapa mais uma vez.
- Descarte o filtrado e coloque a mini coluna de RNA de volta no tubo de coleta de 2 mL. Centrifugue a 12.000 x g por 2 min em RT.
- Transfira a mini-coluna de RNA para um tubo de centrífuga de 1,5 mL, adicione 100 μL de água livre de RNase ao centro da membrana da coluna e incube em RT por 2 min. Em seguida, centrifugue a 12.000 x g por 1 min em RT. Descarte a mini coluna de RNA e armazene a solução de RNA a -80 ° C.
- Pegue 2 μL da solução de RNA e meça-a usando o espectrofotômetro NanoDrop de acordo com o manual do equipamento para determinar sua concentração e qualidade.
NOTA: O estudo selecionou as proporções 260/280 e 260/230 para o controle de qualidade do RNA. - Prepare a solução de RNA adicionando sequencialmente os seguintes componentes em um tubo de microcentrífuga: 1 μg de RNA total, 4 μL de MgCl2 (25 mM), 2 μL de tampão 10x de transcrição reversa, 2 μL de mistura dNTP (10 mM), 0,5 μL de inibidor de ribonuclease recombinante, 15 unidades de transcriptase reversa, 0,5 μg de oligo (dT) 15 primer, e adicione água sem nuclease a 20 μL. Misture o conteúdo suavemente para coletar todo o líquido no fundo do tubo.
NOTA: As soluções de coquetel devem ser preparadas para garantir uma síntese de cDNA e quantificação de RNA mais consistentes. - Transcreva reversamente a solução de RNA de 20 μL em cDNA, incubando-a a 42 ° C por 15 min, desnaturando-a a 95 ° C por 5 min e, em seguida, resfriando-a a 4 ° C, seguida de armazenamento a -20 ° C.
- Combine e misture completamente 6,4 μL de água destilada, 10 μL de master mix de PCR em tempo real SYBR Green, 2 μL da solução de cDNA obtida, 0,8 μL de primer direto (10 μM) e 0,8 μL de primer reverso (10 μM) (Tabela 1) para preparar o sistema de reação.
- Execute a reação no instrumento de PCR para obter os valores do limiar de ciclo (CT) para os genes-alvo e genes de referência.
- Definir a desnaturação inicial a 95 °C durante 60 s no início de cada ciclo de PCR.
- Durante os ciclos de PCR, realizar desnaturação a 95 °C por 15 s, recozimento a 60 °C por 15 s e extensão a 72 °C por 45 s, coletando dados durante a etapa de extensão. Realize um total de 40 ciclos de PCR.
- Depois de completar os ciclos de PCR, execute a análise da curva de fusão automaticamente usando o instrumento de PCR.
NOTA: Se a curva de fusão mostrar um pico duplo ou formato de pico irregular, isso indica que pode haver um problema com o experimento.
- Determine os níveis de expressão relativa de cada gene alvo usando o método 2-ΔΔCT, seguido de análise estatística adicional. Use a seguinte lista de fórmulas para o método 2-ΔΔCT:
ΔCT (teste) = CT (alvo, teste) - TC (ref, teste)
ΔCT (calibrador) = CT (alvo, calibrador) - CT (ref, calibrador)
ΔΔCT = ΔCT (teste) -ΔCT (calibrador)
2-ΔΔCT = Mudança de dobra na expressão gênica
| Nome do gene | Sequência (5 ′ a 3 ′) |
| Mouse CCNA2 para frente | CCCAGAAGTAGCAGAGTTTGTG |
| Mouse CCNA2 reverso | TTGTCCCGTGACTGTGTAGAG |
| Mouse ASPM para frente | CTTATTCAGGCTATGTGGAGGA |
| Mouse ASPM reverso | CCAGGCTTGAATCTTGCAG |
| Mouse CCNB2 para frente | TTGAAATTTGAGTTGGGTCGAC |
| Mouse CCNB2 reverso | CTGTTCAACATCAACCTCCC |
| Mouse NUSAP1 para frente | CTCCCTCAAGTACAGTGACC |
| Mouse NUSAP1 reverso | TTTAACAACTTGGTTGCCCTC |
| Mouse CEP55 para frente | CCGCCAGAATGCAGCATCAAC |
| Mouse CEP55 reverso | AGTGGGAATGGCTGCTCTGTGA |
Tabela 1: Sequências primárias para PCR quantitativo em tempo real.
- Ensaio de imunoabsorção enzimática (ELISA)
NOTA: De acordo com as instruções do kit ELISA, equilibre o kit ELISA com RT, prepare um tampão de lavagem e dilua o padrão. Diluir 90 μL de anticorpo biotinilado concentrado com 8910 μL de tampão de diluição de anticorpo biotinilado para preparar uma solução de trabalho de anticorpo biotinilado (1:100) com antecedência. Da mesma forma, dilua 90 μL de conjugado enzimático concentrado com 8910 μL de tampão de diluição do conjugado enzimático para preparar uma solução de trabalho de conjugado enzimático (1:100) com antecedência.- Triture o tecido pulmonar em pó usando uma argamassa contendo nitrogênio líquido.
- Pese 50 mg de tecido pulmonar usando uma balança de precisão, combine-o com 1 mL de PBS em um tubo de moagem e triture-o completamente no gelo.
- Centrifugar a mistura a 4 °C, 3000 x g durante 5 min e recolher o sobrenadante como amostra.
- Colocar 100 μL de amostra/padrão de diferentes concentrações nos respectivos alvéolos da placa ELISA, cobrir os alvéolos de reação com película adesiva de vedação e incubar numa incubadora a 37 °C durante 90 min.
- Use uma lavadora de placas automatizada para lavar a placa ELISA 4 vezes, injetando 350 μL de tampão de lavagem de cada vez com um intervalo de 30 s entre a injeção e a aspiração.
- Adicione 100 μL de solução de trabalho de anticorpos biotinilados por poço, sele os poços com filme de vedação adesivo e incube em uma incubadora a 37 °C por 60 min. Em seguida, lave a placa ELISA 4 vezes seguindo o procedimento descrito anteriormente.
- Adicione 100 μL de solução de trabalho de conjugado enzimático por poço, sele os poços com filme de vedação adesivo e incube em uma incubadora a 37 °C por 30 min. Em seguida, lave a placa ELISA 4 vezes seguindo o procedimento descrito anteriormente.
- Adicione 100 μL de agente cromogênico por poço, proteja da luz e incube em uma incubadora a 37 ° C por 10-20 min. Em seguida, adicione 100 μL de solução de parada por poço, misture bem e meça imediatamente a densidade óptica em valores de 450 nm (OD450).
NOTA: Uma pipeta de 8 canais é usada para adicionar a solução de trabalho de anticorpo biotinilado, a solução de trabalho do conjugado enzimático e a solução de parada, o que permite concluir a adição rapidamente e evitar possíveis erros. - Gere uma curva padrão usando o software CurveExpert (http:// curveexpert.webhop.net/) para calcular a concentração das substâncias-alvo em cada poço de amostra.
- Western blotting
- Prepare a solução de ensaio de radioimunoprecipitação (RIPA) misturando tampão de lise RIPA, fluoreto de fenilmetanossulfonil (PMSF) e inibidor de fosfatase na proporção de 100:1:1 e coloque-o no gelo.
- Triture os tecidos pulmonares em pó usando uma argamassa contendo nitrogênio líquido.
- Pesar 20 mg de tecido pulmonar com precisão usando uma balança de precisão e adicioná-lo a 250 μL da solução misturada RIPA.
- Incubar a mistura em gelo durante 20 min, centrifugar a 12 000 x g durante 15 min a 4 °C e recolher o sobrenadante como amostra.
- Prepare a solução de trabalho BCA misturando o Reagente A e o Reagente B do kit BCA na proporção de 50:1.
- Diluir o padrão para preparar soluções-padrão diluídas com concentrações de 0, 0,025, 0,05, 0,1, 0,2, 0,3, 0,4 e 0,5 mg/ml. Adicionar 20 μl de cada solução-padrão e colher a amostra em alvéolos separados de uma placa de 96 poços e incubar a 37 °C durante 30 min.
- Medir a absorvância a 490 nm utilizando o leitor de microplacas. Ajustar a curva-padrão utilizando as concentrações e absorvâncias das soluções-padrão e calcular a concentração da amostra23. Ajustar as concentrações da amostra para o mesmo nível utilizando a solução mista RIPA.
- Misture o sobrenadante de proteína com tampão de carga 5x na proporção de 4:1 em um tubo de centrífuga. Ferva em um banho de metal por 5 min, depois centrifugue a 12.000 x g por 15 min a 4 ° C e colete o sobrenadante.
- Realize a separação de proteínas usando eletroforese em gel de dodecil sulfato de sódio-poliacrilamida (SDS-PAGE) e transfira as proteínas para uma membrana de fluoreto de polivinilideno (PVDF) eletricamente. Bloqueie a membrana de PVDF com 5% de leite desnatado em RT por 1 h.
- Incubar a membrana de PVDF com anticorpo primário (diluído a 1:1000) a 4 °C durante 12 h, seguido de lavagem três vezes com TBST durante 10 min cada, e depois incubar com anticorpo secundário (diluído a 1:5000) a RT durante 2 h.
- Detecte as bandas alvo usando um sistema de imunoensaio de eletroquimioluminescência totalmente automático e realize análises quantitativas usando o software integrado.
- Análise estatística
- Utilize o software apropriado para análise estatística.
- Apresentar dados experimentais como média ± desvio padrão.
- Determine a significância usando a análise de variância (ANOVA) unidirecional.
- Considere P < 0,05 como estatisticamente significativo.
Resultados
Um total de 3290 DEGs foram identificados a partir dos 23348 genes em GSE84884 (pSS), incluindo 2659 genes regulados positivamente e 631 genes regulados negativamente (Figura 1A). Para GSE51092 (pSS), um total de 3290 DEGs foram identificados a partir dos 11409 genes, incluindo 667 genes regulados positivamente e 587 genes regulados negativamente (Figura 1B). O banco de dados GeneCards obteve 102 DEGs relacionados ao SSp ovariano, e o escore de correlação dos critérios de triagem foi de ≥20. A união e desduplicação dos DEGs relacionados a pSS obtidos de GEO e GeneCards resultaram em 453 DEGs (pSS-DEGs). Um total de 7154 DEGs foram identificados a partir dos 25440 genes em GSE32863 (LUAD), incluindo 3934 genes regulados positivamente e 3220 genes regulados negativamente (Figura 1C). Em GSE75037 (LUAD), um total de 11235 DEGs foram identificados a partir dos 25440 genes, incluindo 6125 genes regulados positivamente e 5110 genes regulados negativamente (Figura 1D). O banco de dados GeneCards obteve 600 DEGs relacionados ao LUAD ovariano, e o escore de correlação dos critérios de triagem foi de ≥20. A união e desduplicação dos DEGs relacionados ao LUAD obtidos de GEO e GeneCards resultaram em 7478 DEGs (LUAD-DEGs). Um total de 233 DEGs compartilhados (pSS-LUAD-DEGs) foram selecionados entre pSS-DEGs e LUAD-DEGs e visualizados usando diagramas de Venn (Tabela Suplementar 1 e Figura 1E).
Em relação à análise de enriquecimento da via KEGG, as 10 principais vias de sinalização significativas de pSS-LUAD-DEGs identificadas foram relacionadas a vias metabólicas após a remoção das vias de sinalização relacionadas à doença. Especificamente, essas vias incluem a via de sinalização PI3K-Akt, a via de sinalização MAPK, a interação citocina-receptor de citocina, necroptose, regulação do citoesqueleto de actina, via de sinalização FoxO, via de sinalização do receptor semelhante a NOD, senescência celular, diferenciação de células Th17 e via de sinalização JAK-STAT (Figura 2A). As 10 principais vias de sinalização KEGG e pSS-LUAD-DEGs foram visualizadas, conforme mostrado na Figura 2B.
A análise de enriquecimento GO de pSS-LUAD-DEGs revelou os seguintes 10 principais processos biológicos (Figura 3) e foram enriquecidos em componente celular (CC): resposta ao vírus, resposta imune inata, resposta de defesa ao vírus, resposta de defesa ao simbionte, regulação do processo viral, regulação do ciclo de vida viral, regulação negativa do processo viral, regulação negativa da replicação do genoma viral, regulação da replicação do genoma viral, resposta imune inata antiviral; processo biológico (PB): lado da membrana, lado externo da membrana plasmática, matriz extracelular, estrutura encapsulante externa, matriz extracelular contendo colágeno, trímero de colágeno, jangada de membrana, microdomínio de membrana, jangada de membrana plasmática, caveola; função molecular (MF): ligação ao receptor de citocinas, atividade de citocinas, atividade do regulador do receptor de sinalização, ligação da superfamília do receptor do fator de necrose tumoral, atividade do ativador do receptor de sinalização, ligação do receptor do fator de necrose tumoral, atividade do ligante do receptor, atividade de homodimerização de proteína, atividade da proteína quinase do receptor transmembrana, atividade da proteína quinase.
A rede PPI compreendia 99 nós e 466 arestas (Figura 4A). Os 20 principais genes com graus mais altos na rede PPI são STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 e CEP55, servindo como genes centrais (Figura 4B).
A análise da curva ROC foi realizada para avaliar a acurácia diagnóstica dos 20 genes hub (Figura 5). Os valores de área sob a curva (AUC) para as curvas ROC de STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 e CEP55 foram 0,543, 0,840, 0,724, 0,892, 0,965, 0,529, 0,721, 0,763, 0,933, 0,784, 0,836, 0,648, 0,936, 0,689, 0,662, 0,548, 0,960, 0,939, 0,934 e 0,953 para GSE32863 (Figura 5A, D) e 0,620, 0,811, 0,676, 0,878, 0,955, 0,546, 0,642, 0,765, 0,945, 0,759, 0,804, 0,625, 0,938, 0,753, 0,641, 0,540, 0,958, 0,945, 0,908 e 0,941 para GSE75037 (Figura 5B,E). Além disso, para o conjunto de validação GSE31210 (Figura 5C, F), os valores de AUC foram 0,505, 0,676, 0,819, 0,688, 0,863, 0,540, 0,720, 0,665, 0,814, 0,562, 0,766, 0,661, 0,806, 0,528, 0,607, 0,652, 0,906, 0,927, 0,910 e 0,898. Os valores de AUC para IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 foram >0,7, sugerindo que todos os oito têm significado diagnóstico.
Nos tecidos pulmonares de camundongos BALB/c e camundongos NOD/Ltj, apenas uma pequena quantidade de fatores pró-inflamatórios expressão de IL-6 e IL-1β foi detectada. Após a estimulação com PM2.5, a expressão de IL-6 e IL-1β aumentou significativamente, com uma elevação notavelmente maior observada em camundongos NOD / Ltj em comparação com camundongos BALB / c (Figura 6).
Após a estimulação de PM2.5, os níveis de expressão de JAK2 / STAT3 não mudaram significativamente nos tecidos pulmonares de camundongos BALB / c e camundongos NOD / Ltj. No entanto, os níveis de p-JAK2 e p-STAT3 aumentaram significativamente. Os camundongos NOD / Ltj mostraram expressão significativamente maior de p-JAK2 e p-STAT3 em comparação com os camundongos BALB / c após a estimulação de PM2.5 (Figura 7).
Após a estimulação de PM2.5, a expressão de mRNA de ASPM e NUSAP1 não mudou significativamente em camundongos BALB/c e camundongos NOD/Ltj, mas a expressão de mRNA de CCNA2, CCNB2 e CEP55 aumentou (Figura 8). Notavelmente, a expressão de mRNA de CCNA2, CCNB2 e CEP55 foi significativamente maior em camundongos NOD / Ltj em comparação com camundongos BALB / c após estimulação de PM2.5.
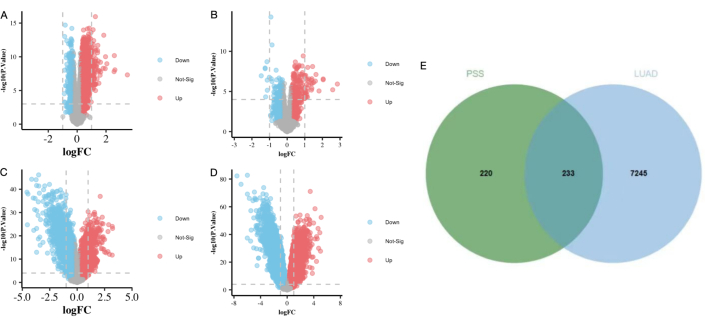
Figura 1: O mapa do vulcão e o diagrama de Venn dos DEGs. (A) O mapa do vulcão de GSE84844. (B) O mapa vulcânico de GSE51092. (C) O mapa vulcânico de GSE32863. (D) O mapa vulcânico de GSE75037. (E) Diagrama de Venn de pSS-DEGs e LUAD-DEGs. Os genes regulados para cima são coloridos em vermelho; Os genes regulados negativamente são coloridos em verde. Abreviaturas: pSS = Síndrome de Sjögren primária; LUAD = adenocarcinoma de pulmão; DEGs = genes diferencialmente expressos. Clique aqui para ver uma versão maior desta figura.
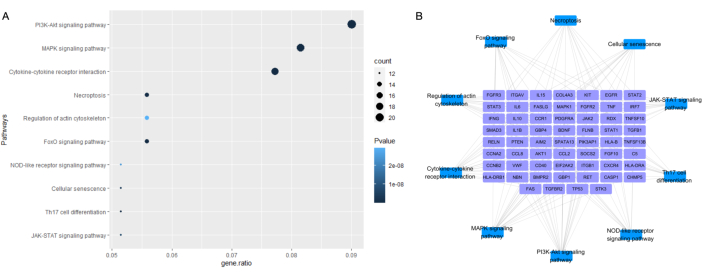
Figura 2: Enriquecimento da via KEGG de pSS-LUAD-DEGs. (A) Mapa de enriquecimento TOP10 KEGG de pSS-LUAD-DEGs. (B) A associação entre as vias de sinalização TOP10 KEGG com pSS-LUAD-DEGs. Abreviaturas: KEGG = Enciclopédia de Genes e Genomas de Kyoto; SSp = Síndrome de Sjögren primária; LUAD = adenocarcinoma de pulmão; DEGs = genes diferencialmente expressos. Clique aqui para ver uma versão maior desta figura.
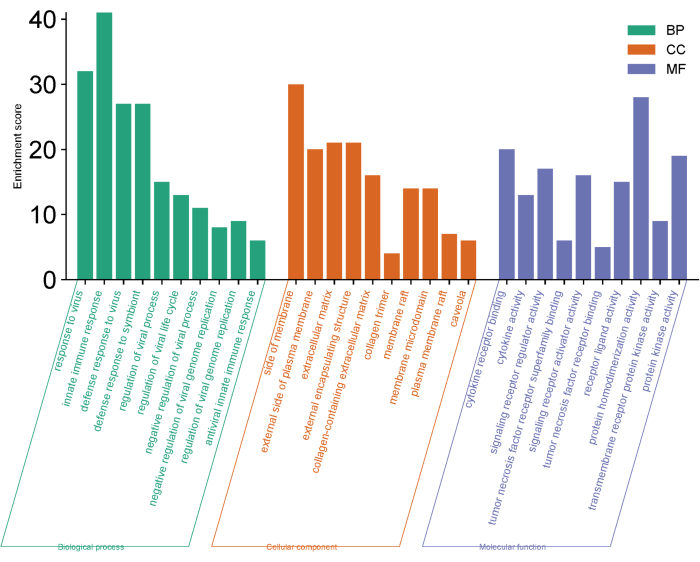
Figura 3: Análise de enriquecimento GO de pSS-LUAD-DEGs. Abreviaturas: GO = Ontologia Genética; SSp = Síndrome de Sjögren primária; LUAD = Adenocarcinoma de pulmão; DEGs = genes diferencialmente expressos. Clique aqui para ver uma versão maior desta figura.
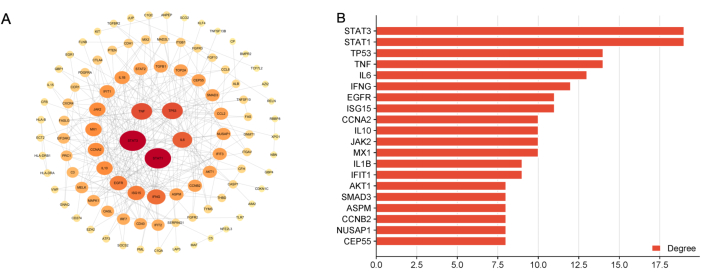
Figura 4: Rede PPI de pSS-LUAD-DEGs. (A) Visualização da rede PPI. Tons mais vermelhos indicam conectividade mais forte do nó. (B) Os 20 principais genes com graus mais altos na rede PPI. Abreviaturas: PPI = interação proteína-proteína; SSp = Síndrome de Sjögren primária; LUAD = adenocarcinoma de pulmão; DEGs = genes diferencialmente expressos. Clique aqui para ver uma versão maior desta figura.
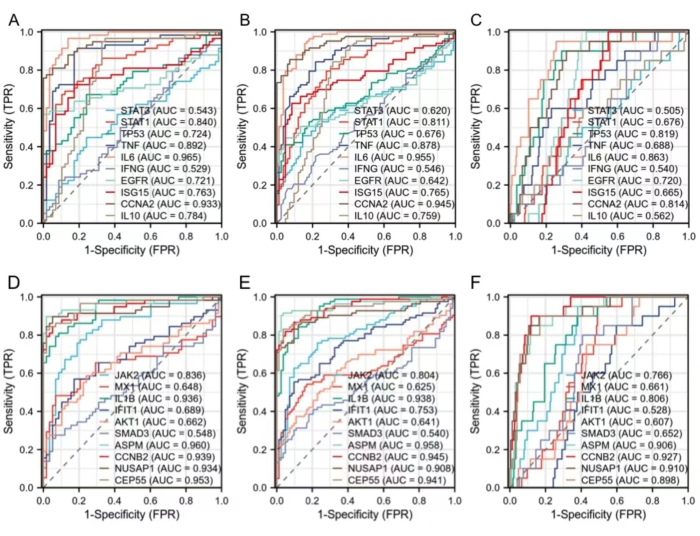
Figura 5: Análise da curva ROC dos genes hub. (A-F) Análise da curva ROC de genes centrais em GSE32863, GSE75037 e GSE31210. Abreviaturas: ROC = Característica de Operação do Receptor. Clique aqui para ver uma versão maior desta figura.
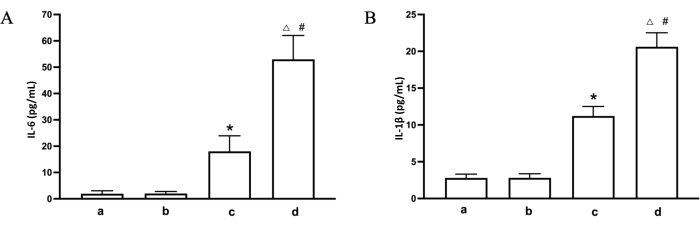
Figura 6: O impacto do PM2.5 nos fatores pró-inflamatórios nos tecidos pulmonares de camundongos. (A) Expressão de IL-6 em tecidos pulmonares de camundongos de cada grupo. (B) Expressão de IL-1β em tecidos pulmonares de camundongos de cada grupo. a. grupo de controle em branco; b. Grupo pSS; c. Grupo PM2,5; d. Grupo pSS-PM2.5. * p < 0,05 em comparação com o grupo controle em branco; # p < 0,05 em comparação com o grupo pSS; Δ p < 0,05 em comparação com o grupo PM2,5. Abreviaturas: PM2.5 = material particulado 2.5. Clique aqui para ver uma versão maior desta figura.
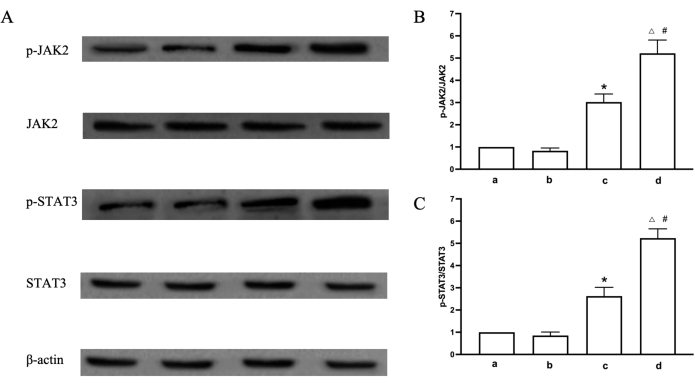
Figura 7: O impacto do PM2.5 na via de sinalização JAK2 / STAT3 em tecidos pulmonares de camundongos. (A) Expressão de p-JAK2, JAK2, p-STAT3, STAT3 e β-actina em tecidos pulmonares de camundongos de cada grupo. (B) A proporção de p-JAK2 / JAK2 em tecidos pulmonares de camundongos de cada grupo. (C) A proporção de p-STAT3 / STAT3 em tecidos pulmonares de camundongos de cada grupo. a. grupo de controle em branco; b. Grupo pSS; c. Grupo PM2,5; d. Grupo pSS-PM2.5. * p < 0,05 em comparação com o grupo controle em branco; # p < 0,05 em comparação com o grupo pSS; Δ p < 0,05 em comparação com o grupo PM2,5. Abreviaturas: PM2.5 = material particulado 2.5. Clique aqui para ver uma versão maior desta figura.
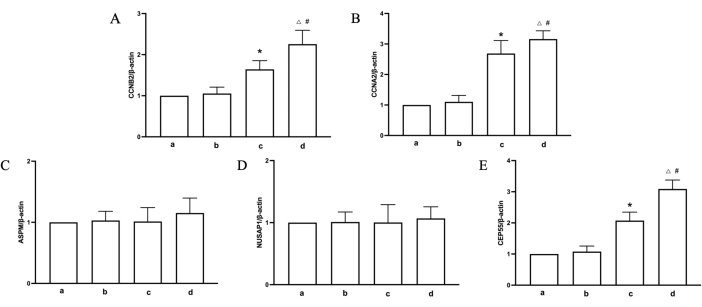
Figura 8: O impacto do PM2.5 nos genes relacionados ao LUAD em tecidos pulmonares de camundongos. (A) Expressão de mRNA CCNB2 em tecidos pulmonares de camundongos de cada grupo. (B) Expressão de mRNA CCNA2 em tecidos pulmonares de camundongos de cada grupo. (C) Expressão de mRNA ASPM em tecidos pulmonares de camundongos de cada grupo. (D) Expressão de mRNA NUSAP1 em tecidos pulmonares de camundongos de cada grupo. (E) Expressão de mRNA CEP55 em tecidos pulmonares de camundongos de cada grupo. a. grupo de controle em branco; b. Grupo pSS; c. Grupo PM2,5; d. Grupo pSS-PM2.5. * p < 0,05 em comparação com o grupo controle em branco; # p < 0,05 em comparação com o grupo SSp; Δ p < 0,05 em comparação com o grupo PM2,5. Abreviaturas: PM2.5 = material particulado 2.5. Clique aqui para ver uma versão maior desta figura.
Tabela Suplementar 1: Lista dos DEG partilhados (pSS-LUAD-DEGs) selecionados entre pSS-DEGs e LUAD-DEGs. Clique aqui para baixar este arquivo.
Arquivo de codificação suplementar 1: Código R para filtragem de DEGs. Clique aqui para baixar este arquivo.
Discussão
Embora a SSp seja considerada uma doença caracterizada principalmente pela invasão de glândulas exócrinas, os danos das glândulas extra-glândulas não podem ser ignorados24. Os pulmões representam um órgão-alvo para a SSp, e o envolvimento pulmonar é uma manifestação extraglandular comum da SSp, geralmente envolvendo infiltração linfocítica da mucosa brônquica e interstício pulmonar25. Pesquisas indicam que pelo menos 20% dos pacientes com SSp apresentam doença pulmonar intersticial (DPI)26,27. A DPI é um fator de risco significativo para câncer de pulmão, o que, em certa medida, explica o aumento da incidência de câncer de pulmão na SSp28. Ao mesmo tempo, os pacientes com DPI-SSp apresentam um aumento significativo nos marcadores tumorais, ressaltando ainda mais a associação entre SSp e neoplasias pulmonares29,30. Para explorar os mecanismos da associação entre pSS e LUAD, este estudo primeiro conduziu uma análise de bioinformática com base nos DEGs associados a pSS e LUAD e, posteriormente, estabeleceu modelos animais relevantes para ambas as doenças para verificação experimental.
Após a identificação de pSS-LUAD-DEGs, foi realizada uma análise de enriquecimento da via KEGG, revelando o papel crítico desempenhado pela via de sinalização PI3K/Akt nessa associação. A via de sinalização PI3K/Akt, após ativação por PI3K, catalisa a geração de PIP3, recrutando as proteínas PDK1 e AKT para a membrana plasmática. PDK1 fosforila AKT para ativação, iniciando uma cascata de efeitos a jusante. Estudos relacionados sugerem que o envolvimento da via de sinalização PI3K/Akt na ocorrência, proliferação, migração, apoptose e angiogênese de tumores 31,32,33,34,35,36. Uma série de estudos clínicos demonstrou que a via de sinalização PI3K/Akt é amplamente ativada na tumorigênese36. Enquanto isso, a AKT pode regular a via de sinalização do NFκB fosforilando a IκB quinase, controlando a transcrição de fatores inflamatórios relacionados37,38. A via de sinalização MAPK39, a interação citocina-receptor de citocina40, a via de sinalização do receptor NOD-like41, a diferenciação de células Th1742 e a via de sinalização JAK-STAT43 desempenham papéis regulatórios cruciais nos processos relacionados à inflamação. No entanto, a via de sinalização FoxO44, a necroptose45 e a senescência celular46 afetam a tumorigênese regulando o processo de apoptose nas células. Enquanto isso, a análise de enriquecimento do GO também revelou que processos biológicos intimamente relacionados à inflamação, como ligação ao receptor de citocinas, atividade de citocinas, ligação de superfamília do receptor do fator de necrose tumoral e ligação ao receptor do fator de necrose tumoral, estão envolvidos nesse processo.
Para identificar ainda mais os principais alvos entre pSS e LUAD, os genes principais foram obtidos de pSS-LUAD-DEGs por meio de análise de rede PPI, seguida de validação usando o conjunto de dados GSE31210. Por fim, IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 foram determinados como os principais alvos do pSS-LUAD. IL6 e IL1B são os principais fatores inflamatórios que desempenham papéis críticos no processo inflamatório da SSp 47,48. Enquanto isso, o JAK2 serve como um alvo chave na regulação da via de sinalização JAK-STAT e, nos últimos anos, uma série de inibidores da enzima JAK foram tentados para o tratamento clínico do pSS49. ASPM, CCNB2, NUSAP1 e CEP55 estão envolvidos na regulação da replicação do DNA, desempenhando papéis cruciais na iniciação e progressão dos tumores 50,51,52,53,54,55. Estudos demonstraram que ASPM, CCNB2, NUSAP1 e CEP55 promovem a invasão e progressão do LUAD 51,52,55,56,57. O estudo acima descobriu que a inflamação desempenha um papel crucial tanto na SSp quanto na LUAD. A SSp, caracterizada por infiltração linfocítica, induz reações inflamatórias crônicas e persistentes nos tecidos locais58. A ocorrência e metástase do câncer de pulmão estão intimamente associadas ao microambiente inflamatório dos pulmões59. Em resumo, levantamos a hipótese de que a reação inflamatória pode ser a chave para essa associação entre SSp e LUAD. Usando isso como ponto de referência, outras verificações experimentais foram realizadas.
Como não existe atualmente um modelo comum para pSS e LUAD, decidimos usar camundongos modelo pSS estimulados por PM2.5 para simular um modelo relevante para ambas as doenças após revisar a literatura relevante. PM2.5 refere-se a partículas sólidas finas com diâmetro menor ou igual a 2.5 μm. Pode flutuar no ar e penetrar profundamente nos pulmões, causando danos significativos à saúde60. Pesquisas indicam que a exposição prolongada ao PM2.5 pode levar a um microambiente inflamatório crônico nos pulmões, levando à ocorrência de LUAD21,61. Camundongos NOD/Ltj, que exibem infiltração linfocítica em glândulas exócrinas, são um modelo ideal para estudar pSS62. Portanto, em outras verificações experimentais, estimulamos camundongos NOD / Ltj com PM2.5 para estabelecer um modelo composto de pSS e reações inflamatórias pulmonares. Os resultados experimentais indicam que os fatores pró-inflamatórios IL-6 e IL-1β foram mal expressos em camundongos NOD / Ltj e camundongos BALB / c sem estimulação de PM2.5. No entanto, após a estimulação de PM2,5, a expressão de IL-6 e IL-1β aumentou significativamente, indicando o estabelecimento bem-sucedido do modelo experimental de microambiente inflamatório pulmonar. Os níveis de expressão de IL-6 e IL-1β foram maiores em camundongos NOD/Ltj em comparação com camundongos BALB/c após estimulação de PM2.5, indicando que pSS é mais sensível às reações inflamatórias induzidas por PM2.5.
A via JAK/STAT é uma via de transdução de sinal estimulada por citocinas, participando de processos biológicos, incluindo crescimento celular, diferenciação, apoptose e regulação imunológica63. Citocinas inflamatórias, incluindo IL-6 e IL-1β, ligam-se a receptores na membrana celular, levando à ativação da fosforilação de Janus quinases (JAKs), e JAKs medeiam a fosforilação de STAT64. As proteínas STAT fosforiladas são transferidas para o núcleo e regulam a expressão de genes responsivos a STAT. A via de sinalização JAK2/STAT3 está intimamente relacionada à regulação de genes relacionados ao tumor, que é ativada principalmente pela IL-6 e modula a expressão de uma série de proteínas que promovem o crescimento celular, a mobilidade e a formação de tumores. Este estudo revelou que, após a estimulação com PM2,5, os níveis proteicos de JAK2 e STAT3 nos pulmões de camundongos NOD/Ltj e camundongos BALB/c não mostraram alterações significativas, mas os níveis de fosforilação de JAK2 e STAT3 aumentaram significativamente, indicando que a via JAK2/STAT3 foi ativada de forma anormal. Uma comparação posterior revelou que os níveis de fosforilação de JAK2 e STAT3 aumentaram significativamente nos pulmões de camundongos NOD / Ltj em comparação com camundongos BALB / c, sugerindo uma ativação mais pronunciada da via de sinalização JAK2 / STAT3 nos pulmões de camundongos pSS sob condições de estimulação PM2.5 equivalentes.
Exploração adicional dos níveis de expressão gênica relacionados ao tumor de CCNA2, ASPM, CCNB2, NUSAP1 e CEP55, conforme previsto pela análise de bioinformática. Os resultados revelaram que os níveis de expressão de CCNA2, CCNB2 e CEP55 foram elevados nos pulmões após a estimulação de PM2.5, com níveis mais altos detectados em camundongos NOD/Ltj em comparação com camundongos BALB/c. Ele sugeriu que CCNA2, CCNB2 e CEP55 podem estar intimamente relacionados a reações inflamatórias após a estimulação de PM2.5 e envolvidos na ocorrência potencial e desenvolvimento de LUAD.
Em pesquisas futuras, esperamos colaborar com a cirurgia torácica para obter amostras cirúrgicas pulmonares de pacientes com SSp, incluindo aqueles com LUAD e lesões pulmonares não cancerosas, para elucidar a progressão da infiltração de linfócitos para processos neoplásicos por meio de sequenciamento de células únicas. Enquanto isso, os fatores inflamatórios IL-6 e IL-1β, juntamente com a via de sinalização JAK/STAT crucial para regular a inflamação, têm sido associados a potenciais mecanismos patogênicos na progressão de pSS para LUAD. Isso indica que medicamentos como tocilizumabe (anticorpos monoclonais de IL-6), canaquinumabe (anticorpos monoclonais de IL-1β) e tofacitinibe (inibidores de JAK), que estão relacionados à inflamação, podem servir como potenciais medicamentos candidatos para prevenir LUAD em pacientes com SSP.
Divulgações
Os autores não têm conflitos de interesse a divulgar.
Agradecimentos
Este estudo foi apoiado pelo National High Level Hospital Clinical Research Funding (2023-NHLHCRF-BQ-01) e pelo Youth Project of China-Japan Friendship Hospital (No.2020-1-QN-8).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Marcador de proteína pré-fabricada de 3 cores | Epizyme | WJ103 | Blot |
| Antibody Dilution Buffer | Epizyme | PS119 | Western Blot |
| BCA Protein Quantification Kit | Epizyme | ZJ101 | Western Blot |
| Cytoscape 3.7.1 software | Instituto Nacional de Ciências Médicas Gerais (NIGMS), National Institutes of Health (NIH) | Versão 3.7.1. | Software de código aberto para análise e visualização de redes biológicas |
| ECL Fluido Luminoso | Epizyme | SQ203 | Western Blot |
| Electrophoresis Buffer | Epizyme | PS105S | Western Blot |
| GraphPad Prism 10.0 | GraphPad | Versão 10.0 | Análise de dados |
| HRP-conjugado Cabra anti-Rabbit IgG (H + L) (AS014) | abclonal | AS014 | Western Blot |
| JAK2 Antibody | Cell Signaling Technology | 3230T | Blot |
| Mouse IL-1β Kit ELISA | Pequim 4A Biotech Co., Ltd | CME0015 | Kit ELISA |
| Mouse IL-6 ELISA | Beijing 4A Biotech Co., Ltd | CME0006 | |
| o cocktail do inibidor da fosfatase de ELISA (100×) | Epizyme | GRF102 | Western Blot |
| Phospho-JAK2 (Tyr1007/1008) | Tecnologia de sinalização celular | 3776S | Western Blot |
| Phospho-STAT3 (Tyr705) | Tecnologia de sinalização celular | 9145S | Western Blot |
| Protease Inhibitor Cocktail (100 &vezes;) | Western Blot | Epizyme | GRF101 |
| (5 vezes;) | Membrana Epizyme | PS108 | Western Blot |
| PVDF | Millipore | IPVH00010 | Western Blot |
| Software R | Base para Computação Estatística | Não Aplicável | Software de análise estatística e linguagem de programação usados para aplicações de análise de dados, visualização e aprendizado de máquina |
| Ensaio de imunoprecipitação de rádio | Epizyme | PC101 | Western Blot |
| Sistema de Transcrição Reversa | Promega | A3500 | PCR |
| SDS-PAGE | Epizyme | LK303 | Western Blot |
| SDS-PAGE Tampão de Carga de Proteína (5 &vezes;) | Tecnologia | Western Blot | LT103 |
| Blot | |||
| SYBR Green Realtime PCR Master Mix | TOYOBO | QPK-201 | PCR |
| TBST (10×) | Epizyme | PS103 | Western Blot |
| Tampão de Transferência Western Blot (10&vezes;) | Epizyme | PS109 | Western Blot |
| β-Actin | Anticorpo abclonal | AC026 | Western Blot |
Referências
- Thorlacius, G. E., Bjork, A., Wahren-Herlenius, M. Genetics and epigenetics of primary sjogren syndrome: Implications for future therapies. Nat Rev Rheumatol. 19 (5), 288-306 (2023).
- Bjordal, O., Norheim, K. B., Rodahl, E., Jonsson, R., Omdal, R. Primary Sjogren's syndrome and the eye. Surv Ophthalmol. 65 (2), 119-132 (2020).
- Zhong, H., et al. Hyperglobulinemia predicts increased risk of mortality in primary Sjogren's syndrome: Based on a Chinese multicentre registry. Mod Rheumatol. 34 (1), 137-143 (2023).
- Lin, W., et al. Interstitial lung disease in primary Sjogren's syndrome. BMC Pulm Med. 22 (1), 73(2022).
- Aiyegbusi, O., et al. Renal disease in primary Sjogren's syndrome. Rheumatol Ther. 8 (1), 63-80 (2021).
- Liampas, A., et al. Primary sjogren syndrome-related peripheral neuropathy: A systematic review and meta-analysis. Eur J Neurol. 30 (1), 255-265 (2023).
- Wu, J., et al. Clinical and laboratory features of primary Sjogren's syndrome complicated with mild to severe thrombocytopenia. Ann Transl Med. 10 (6), 300(2022).
- Zhong, H., et al. Primary Sjogren's syndrome is associated with increased risk of malignancies besides lymphoma: A systematic review and meta-analysis. Autoimmun Rev. 21 (5), 103084(2022).
- Goulabchand, R., et al. Cancer incidence in primary Sjogren's syndrome: Data from the French hospitalization database. Autoimmun Rev. 20 (12), 102987(2021).
- Witkowski Durand Viel, P., et al. Chronological interplay, clinical features, and treatments among patients with cancer and primary Sjogren's syndrome. Cancer Immunol Immunother. 72 (12), 4309-4322 (2023).
- Xu, Y., et al. The prevalence and clinical characteristics of primary Sjogren's syndrome patients with lung cancer: An analysis of ten cases in China and literature review. Thorac Cancer. 6 (4), 475-479 (2015).
- Shi, L., Du, X., Li, J., Zhang, G. Bioinformatics and systems biology approach to identify the pathogenetic link between psoriasis and cardiovascular disease. Clin Cosmet Investig Dermatol. 16, 2283-2295 (2023).
- Xu, R., Ma, L. L., Cui, S., Chen, L., Xu, H. Bioinformatics and systems biology approach to identify the pathogenetic link between heart failure and sarcopenia. Arq Bras Cardiol. 120 (10), e20220874(2023).
- Lv, Y., et al. Bioinformatics and systems biology approach to identify the pathogenetic link of long COVID and myalgic encephalomyelitis/chronic fatigue syndrome. Front Immunol. 13, 952987(2022).
- Barrett, T., et al. Ncbi geo: Archive for functional genomics data sets--update. Nucleic Acids Res. 41 (database issue), D991-D995 (2013).
- Stelzer, G., et al. The GeneCards suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1.30.1-1.30.33 (2016).
- Liu, S., et al. Three differential expression analysis methods for RNA sequencing: limma, EdgeR, DESeq2. J Vis Exp. 175, e62528(2021).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Szklarczyk, D., et al. The string database in 2023: Protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 51 (D1), D638-D646 (2023).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Hill, W., et al. Lung adenocarcinoma promotion by air pollutants. Nature. 616 (7955), 159-167 (2023).
- Piao, C. H., et al. PM2.5 exposure regulates th1/th2/th17 cytokine production through NF-κβ signaling in combined allergic rhinitis and asthma syndrome. Int Immunopharmacol. 119, 110254(2023).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume protein concentration determination using the nanodrop 2000c spectrophotometer. J Vis Exp. 33, e1610(2009).
- Luo, J., et al. Distinct clinical phenotypes of primary Sjogren's syndrome differ by onset age: A retrospective study of 742 cases and review of the literature. Clin Exp Rheumatol. 40 (12), 2373-2380 (2022).
- Luppi, F., et al. Lung complications of Sjogren syndrome. Eur Respir Rev. 29 (157), (2020).
- Berardicurti, O., et al. Interstitial lung disease and pulmonary damage in primary Sjogren's syndrome: A systematic review and meta-analysis. J Clin Med. 12 (7), 2586(2023).
- Roca, F., et al. Interstitial lung disease in primary Sjogren's syndrome. Autoimmun Rev. 16 (1), 48-54 (2017).
- Fisher, D. A., et al. Diagnosis and treatment of lung cancer in the setting of interstitial lung disease. Radiol Clin North Am. 60 (6), 993-1002 (2022).
- Okudela, K., et al. Implications of thyroid transcription factor-1 gene methylation in carcinogenesis of interstitial pneumonia-related non-terminal respiratory unit lung adenocarcinoma. Int J Clin Exp Pathol. 15 (3), 120-130 (2022).
- Sekine, A., et al. Disease activity of lung cancer at the time of acute exacerbation of interstitial lung disease during cytotoxic chemotherapy. Thorac Cancer. 13 (17), 2443-2449 (2022).
- Glaviano, A., et al. PI3K/AKT/mTOR signaling transduction pathway and targeted therapies in cancer. Mol Cancer. 22 (1), 138(2023).
- Ediriweera, M. K., Tennekoon, K. H., Samarakoon, S. R. Role of the PI3K/AKT/mTOR signaling pathway in ovarian cancer: Biological and therapeutic significance. Semin Cancer Biol. 59, 147-160 (2019).
- Hoxhaj, G., Manning, B. D. The PI3K-AKT network at the interface of oncogenic signalling and cancer metabolism. Nat Rev Cancer. 20 (2), 74-88 (2020).
- Liu, R., et al. PI3K/AKT pathway as a key link modulates the multidrug resistance of cancers. Cell Death Dis. 11 (9), 797(2020).
- Manogaran, P., Beeraka, N. M., Paulraj, R. S., Sathiyachandran, P., Thammaiappa, M. Impediment of cancer by dietary plant-derived alkaloids through oxidative stress: Implications of PI3K/AKT pathway in apoptosis, autophagy, and ferroptosis. Curr Top Med Chem. 23 (10), 860-877 (2023).
- Acosta-Martinez, M., Cabail, M. Z. The PI3K/AKT pathway in meta-inflammation. Int J Mol Sci. 23 (23), 15330(2022).
- Chen, G. Y., et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021, 5233462(2021).
- Chen, G. Y., et al. Total flavonoids of Rhizoma Drynariae restore the MMP/TIMP balance in models of osteoarthritis by inhibiting the activation of the NF-κβ and PI3K/AKT pathways. Evid Based Complement Alternat Med. 2021, 6634837(2021).
- Chen, G. Y., et al. Network pharmacology analysis and experimental validation to investigate the mechanism of total flavonoids of Rhizoma Drynariae in treating rheumatoid arthritis. Drug Des Devel Ther. 16, 1743-1766 (2022).
- Yao, C., Narumiya, S. Prostaglandin-cytokine crosstalk in chronic inflammation. Br J Pharmacol. 176 (3), 337-354 (2019).
- Liu, P., et al. NOD-like receptor signaling in inflammation-associated cancers: From functions to targeted therapies. Phytomedicine. 64, 152925(2019).
- Damasceno, L. E. A., et al. PKM2 promotes Th17 cell differentiation and autoimmune inflammation by fine-tuning stat3 activation. J Exp Med. 217 (10), e20190613(2020).
- Banerjee, S., Biehl, A., Gadina, M., Hasni, S., Schwartz, D. M. JAK-STAT signaling as a target for inflammatory and autoimmune diseases: Current and future prospects. Drugs. 77 (5), 521-546 (2017).
- Jiramongkol, Y., Lam, E. W. FOXO transcription factor family in cancer and metastasis. Cancer Metastasis Rev. 39 (3), 681-709 (2020).
- Tong, X., et al. Targeting cell death pathways for cancer therapy: Recent developments in necroptosis, pyroptosis, ferroptosis, and cuproptosis research. J Hematol Oncol. 15 (1), 174(2022).
- Ou, H. L., et al. Cellular senescence in cancer: From mechanisms to detection. Mol Oncol. 15 (10), 2634-2671 (2021).
- Felten, R., et al. Interleukin 6 receptor inhibition in primary Sjogren syndrome: A multicentre double-blind randomised placebo-controlled trial. Ann Rheum Dis. 80 (3), 329-338 (2021).
- Bardsen, K., et al. Interleukin-1-related activity and hypocretin-1 in cerebrospinal fluid contribute to fatigue in primary Sjogren's syndrome. J Neuroinflammation. 16 (1), 102(2019).
- Barrera, M. J., et al. Tofacitinib counteracts il-6 overexpression induced by deficient autophagy: Implications in Sjogren's syndrome. Rheumatology (Oxford). 60 (4), 1951-1962 (2021).
- Liu, H., Zhou, Q., Xu, X., Du, Y., Wu, J. ASPM and TROAP gene expression as potential malignant tumor markers. Ann Transl Med. 10 (10), 586(2022).
- Qian, X., et al. CCNB2 overexpression is a poor prognostic biomarker in Chinese NSCLC patients. Biomed Pharmacother. 74, 222-227 (2015).
- Mo, M. L., et al. Use of serum circulating CCNB2 in cancer surveillance. Int J Biol Markers. 25 (4), 236-242 (2010).
- Li, L., et al. NuSAP is degraded by APC/C-Cdh1 and its overexpression results in mitotic arrest dependent of its microtubules' affinity. Cell Signal. 19 (10), 2046-2055 (2007).
- Fabbro, M., et al. Cdk1/Erk2- and Plk1-dependent phosphorylation of a centrosome protein, cep55, is required for its recruitment to midbody and cytokinesis. Dev Cell. 9 (4), 477-488 (2005).
- Jeffery, J., Sinha, D., Srihari, S., Kalimutho, M., Khanna, K. K. Beyond cytokinesis: The emerging roles of CEP55 in tumorigenesis. Oncogene. 35 (6), 683-690 (2016).
- Feng, Z., et al. Overexpression of abnormal spindle-like microcephaly-associated (ASPM) increases tumor aggressiveness and predicts poor outcome in patients with lung adenocarcinoma. Transl Cancer Res. 10 (2), 983-997 (2021).
- Zheng, H., et al. Comprehensive pan-cancer analysis reveals NuSAP1 is a novel predictive biomarker for prognosis and immunotherapy response. Int J Biol Sci. 19 (14), 4689-4708 (2023).
- Verstappen, G. M., Pringle, S., Bootsma, H., Kroese, F. G. M. Epithelial-immune cell interplay in primary sjogren syndrome salivary gland pathogenesis. Nat Rev Rheumatol. 17 (6), 333-348 (2021).
- El Rayes, T., et al. Lung inflammation promotes metastasis through neutrophil protease-mediated degradation of Tsp-1. Proc Natl Acad Sci U S A. 112 (52), 16000-16005 (2015).
- Zhao, L., et al. PM2.5 and serum metabolome and insulin resistance, potential mediation by the gut microbiome: A population-based panel study of older adults in china. Environ Health Perspect. 130 (2), 27007(2022).
- Li, J., et al. PM2.5 exposure perturbs lung microbiome and its metabolic profile in mice. Sci Total Environ. 721, 137432(2020).
- Liao, J. H., et al. Network pharmacology-based strategy to investigate the mechanisms of artemisinin in treating primary sjogren's syndrome. BMC Immunol. 25 (1), 16(2024).
- Hu, Q., et al. JAK/STAT pathway: Extracellular signals, diseases, immunity, and therapeutic regimens. Front Bioeng Biotechnol. 11, 1110765(2023).
- Xue, C., et al. Evolving cognition of the JAK-STAT signaling pathway: Autoimmune disorders and cancer. Signal Transduct Target Ther. 8 (1), 204(2023).
Reimpressões e permissões
