O uso indevido de álcool prejudica a imunidade dos macrófagos alveolares (MA) devido à supressão da respiração mitocondrial e da bioenergética. Recentemente, demonstramos que a exposição ao etanol (EtOH) aumenta a dependência da glutamina para a respiração mitocondrial em AMs. Aqui, são fornecidos métodos para determinar o uso de glutamina para respiração mitocondrial em AMs tratados com EtOH usando um bioanalisador de fluxo extracelular.
Artigo de método
Avaliação da glutamina como fonte de combustível para macrófagos alveolares expostos ao etanol crônico usando um bioanalisador de fluxo extracelular
Neste artigo
Resumo
Resumo
Os macrófagos alveolares (MAs) são a primeira linha de defesa celular nas vias aéreas inferiores contra patógenos. No entanto, o uso crônico e excessivo de álcool prejudica a capacidade dos AMs de fagocitar e eliminar patógenos do espaço alveolar, em parte por meio do metabolismo desregulado do combustível e da bioenergética. Nosso trabalho anterior mostrou que o consumo crônico de etanol (EtOH) prejudica a bioenergética mitocondrial e aumenta os níveis de lactato em AMs. Além disso, demonstramos recentemente que o EtOH aumenta a dependência de glutamina e a respiração máxima dependente de glutamina enquanto diminui a flexibilidade, afastando-se da respiração dependente de piruvato e em direção à respiração dependente de glutamina. A glutaminólise é uma importante via compensatória para a respiração mitocondrial quando o piruvato é usado para a produção de ácido lático ou quando outras fontes de combustível são insuficientes. Usando uma linhagem de células AM de camundongo, células MH-S, expostas a EtOH ou EtOH (0,08%) por 72 h, determinamos a dependência da respiração mitocondrial e da bioenergética da glutamina como fonte de combustível usando um bioanalisador de fluxo extracelular. Medidas em tempo real foram feitas em resposta ao bis-2-(5-fenilacetamido-1,3,4-tiadiazol-2-il) sulfeto de etila (BPTES), um inibidor da glutaminase 1, que impede a conversão enzimática de glutamina em glutamato, em veículo de meio ou em resposta ao veículo sozinho, seguido de teste de estresse mitocondrial. O protocolo passo a passo fornecido aqui descreve nossos métodos e cálculos para analisar os níveis médios de respiração mitocondrial basal dependente de glutamina, respiração mitocondrial ligada ao ATP, respiração mitocondrial máxima e capacidade respiratória mitocondrial sobressalente em várias réplicas biológicas e experimentais.
Introdução
O transtorno por uso de álcool (AUD) afeta mais de 28 milhões de pessoas nos Estados Unidos1. Pessoas com AUD têm 2 a 4 vezes mais chances de desenvolver infecções respiratórias 2,3, aumentando o risco de morbidade e mortalidade prematuras 3,4,5. O uso indevido de álcool aumenta a suscetibilidade a infecções respiratórias, em parte por meio da supressão da função imunológica pulmonar. Os macrófagos alveolares (AMs) são a primeira linha de defesa celular contra patógenos na parte inferior do pulmão, onde fagocitam e eliminam micróbios inalados. No entanto, o consumo crônico de álcool prejudica a capacidade dos MAs de engolir e matar patógenos 6,7.
As funções imunológicas dos AMs, como a fagocitose, são processos que exigem energia e requerem vias metabolicamente ativas necessárias para a geração de trifosfato de adenosina (ATP). A fosforilação oxidativa mitocondrial é o processo celular mais eficiente para a produção de ATP, mas a exposição crônica ao etanol (EtOH) aumenta o estresse oxidativo derivado da mitocôndria, o que pode resultar em disfunção mitocondrial em AMs 8,9,10. A respiração mitocondrial medida usando a taxa de consumo de oxigênio celular (OCR) pode ser quantificada usando um bioanalisador de fluxo extracelular em tempo real. Perfis de respiração mitocondrial avaliados em resposta à oligomicina (inibidor da ATP sintase), cianeto de carbonila-p-trifluorometoxifenilhidrazona (FCCP, desacoplador de prótons) e rotenona/antimicina A (R/A, inibidores do complexo mitocondrial I e III, respectivamente) são usados para determinar a bioenergética mitocondrial. A EtOH crônica diminui a bioenergética mitocondrial em AMs, como evidenciado pela diminuição da respiração basal mitocondrial, respiração ligada ao ATP, respiração máxima e capacidade respiratória sobressalente10.
As células têm vários níveis de dependência de fontes de combustíveis, como piruvato, glutamina ou ácidos graxos, para a produção de ATP. Eles também têm um nível de flexibilidade pelo qual podem mudar o uso de combustível para regular a bioenergética celular. A glutaminólise é uma via fundamental para a respiração mitocondrial, particularmente quando o piruvato é desviado para a produção de ácido lático ou quando os ácidos graxos são insuficientes. Nosso estudo recente mostrou que a exposição crônica ao EtOH aumenta a dependência de glutamina no AM e diminui a flexibilidade do AM para usar glutamina e outras fontes de combustível para a respiração mitocondrial11. Esses resultados, juntamente com dados que demonstram que o tratamento de células MH-S expostas a EtOH com o inibidor de oxidação de piruvato UK5099 não alterou a bioenergética mitocondrial em comparação com células MH-S expostas ao controle de mídia tratadas com UK5099, sugeriram uma mudança da respiração dependente de piruvato para a respiração dependente de glutamina em células EtOH MH-S. No entanto, esse deslocamento é insuficiente para atender às demandas bioenergéticas do MA11. Aqui, descrevemos os métodos para avaliar a glutamina como fonte de combustível para a respiração mitocondrial em AMs crônicos expostos a EtOH usando um bioanalisador de fluxo extracelular. Este protocolo foi criado e otimizado para um formato de 96 poços (11,04 mm2 de área) e deve ser ajustado para tamanhos maiores de poços de cultura de células. A dependência de glutamina para bioenergética mitocondrial é determinada usando bis-2-(5-fenilacetamido-1,3,4-tiadiazol-2-il) sulfeto de etila (BPTES, inibidor da glutaminase 1) para inibir seletivamente a conversão enzimática de glutamina em glutamato. Os dados apresentados neste estudo são réplicas biológicas adicionais para os grupos experimentais tratados com controle de mídia e BPTES de linha celular de camundongo de camundongo não tratada e crônica exposta a EtOH, células MH-S, que são publicadas em Crotty et al.11.
Protocolo
1. Exposição crônica ao EtOH in vitro
- Cultura de células MH-S, uma linhagem celular de macrófagos alveolares de camundongo, em meio completo contendo RPMI-1640 com 10% de soro bovino fetal, 1% de penicilina/estreptomicina, 11,9 mM de bicarbonato de sódio, 40 mg/mL de gentamicina e 50 μM de 2-mercaptoetanol a 37°C com 5% de CO2 em uma incubadora umidificada.
- Trate as células MH-S cultivadas com ou sem EtOH (0,8 mg / mL ou 0,08%) por 72 h, onde o EtOH deve ser trocado a cada 24 h. Incube células MH-S tratadas com EtOH a 37 ° C com 5% de CO2 em uma incubadora umidificada separada contendo 0,08% de EtOH na água da incubadora.
2. Plaqueamento de células MH-S para avaliação da glutamina como fonte de combustível usando um bioanalisador de fluxo extracelular
- Certifique-se de que as células MH-S tratadas com controle (Con) e crônica não tratadas com EtOH sejam cultivadas até pelo menos 50% de confluência (70% -90% de confluência é o ideal) em frascos T-75 para passar para uma placa de microcultura de fluxo extracelular de 96 poços. Prepare um mapa de placas para 5-6 réplicas técnicas por réplica biológica de condições experimentais de Con e EtOH e controles de meio para cada um para comparar com as injeções de BPTES (quatro grupos no total para biológico n = 1).
- Enxágue as células com meio ou solução salina tamponada com fosfato.
- Adicionar 6 ml de meio contendo soro ao balão.
- Raspe as células até que estejam soltas e o fundo da placa esteja limpo. A tripsina não é necessária para o descolamento de células MH-S, mas pode ser útil em outros tipos de células.
- Separe as células usando uma pipeta sorológica ou pipeta de 1 mL.
- Transfira as células suspensas para um tubo cônico de 15 mL e centrifugue-as a 200 x g por 6 min.
- Aspire o sobrenadante.
- Adicione 1 mL de meio e ressuspenda bem as células.
- Transfira 10 μL para um tubo de microcentrífuga e adicione 10 μL de azul de tripano. Misture bem.
- Transfira 10 μL da mistura de célula / azul de tripano para um lado de um hemocitômetro ou contador de células.
- Conte o número de células usando um microscópio óptico ou contador de células.
- Calcule a densidade celular como uma contagem média de células vivas por mililitro.
- Faça cálculos para as diluições necessárias:
Número de poços necessários x 10000-15000 células = número total de células necessárias.
Número de poços necessários x 80 μL = volume total de células ressuspensas necessárias. - Aplique 80 μL de células nos poços necessários da placa de microcultura de fluxo extracelular de 96 poços.
- Deixe os poços de canto completamente desprovidos de células ou meios. Esses poços serão usados para medições de fundo.
- Incubar as células em uma incubadora umidificada a 37 °C com 5% de CO2 durante a noite para permitir que as células adiram e se equilibrem na placa de microcultura de fluxo extracelular.
- Trate as células MH-S na placa de microcultura de fluxo extracelular de 96 poços por 72 h usando a etapa 1.
- Pelo menos 4 h e até 24 h antes de executar o experimento do bioanalisador de fluxo extracelular, hidrate um cartucho de pak de fluxo extracelular de 96 poços.
- Remova a parte superior do pacote de fluxo extracelular e coloque a parte sondada do pacote de fluxo voltada para cima na bancada. Aplique 200 μL de solução calibrante de fluxo extracelular em cada poço na parte inferior do cartucho de pacote de fluxo extracelular.
- Junte as seções e embrulhe o cartucho de fluxo extracelular em parafilme. Coloque-o em uma incubadora umidificada a 37 °C não-CO2 ou em um banho de esferas a 37 °C.
- Ligue o computador que contém o desenho do ensaio e abra o software de execução/análise conectado ao instrumento bioanalisador de fluxo extracelular para permitir que ele aqueça pelo menos 4 h antes de realizar o experimento.
3. Usando um bioanalisador de fluxo extracelular para avaliar a glutamina como fonte de combustível para a respiração mitocondrial em células MH-S
NOTA: A visão geral deste procedimento é mostrada na Figura 1.
- Verifique as células MH-S cultivadas tratadas com Con e EtOH sob um microscópio óptico e certifique-se de que as células estejam saudáveis e aderidas aos poços em uma monocamada. Certifique-se de que as células sejam pelo menos 70% confluentes (90% de confluência é o ideal) para realizar o ensaio de forma confiável.
- Prepare o meio base de fluxo extracelular com os seguintes suplementos:
- Alíquota de 35 mL de meio base de fluxo extracelular em um tubo de 50 mL.
- Adicione 350 μL de piruvato de sódio 100 mM (concentração final de 1 mM), 350 μL de D-glicose (concentração final de 10 mM) e 350 μL de GlutaMAX, que é mais estável em comparação com a L-glutamina (concentração final de 2 mM).
NOTA: A L-glutamina fresca também pode ser usada na mesma concentração. - Aquecer a solução a 37 °C e assegurar que o pH é de 7,4 ± 0,05 a 37 °C.
- Aspire suavemente o meio de crescimento da placa de microcultura extracelular. Deixe o mínimo de mídia possível sem aspirar as células da parte inferior. Lave uma vez com um máximo de 50 μL do meio de base suplementado com fluxo extracelular.
- Adicione 180 μL de meio de base suplementado com fluxo extracelular a cada poço e incube a placa de microcultura extracelular em uma incubadora umidificada a 37 °C não-CO2 por 30 min a 1 h para permitir o equilíbrio.
- Dissolva os reagentes de teste de oxidação da glutamina:
- No tubo BPTES, adicione 700 μL de meio base suplementado com fluxo extracelular para fazer uma solução estoque de 120 mM. Pipete para cima e para baixo 10 vezes para solubilizar adequadamente o composto.
CUIDADO: O BPT causa irritação na pele e nos olhos e pode causar irritação respiratória. Use luvas de proteção, proteção para os olhos e proteção facial ao manusear. Descarte o conteúdo e os recipientes em uma instalação de descarte de resíduos aprovada. - No tubo de oligomicina, adicione 630 μL de meio de base suplementado com fluxo extracelular para fazer uma solução estoque de 100 mM. Pipete para cima e para baixo 10 vezes para solubilizar adequadamente o composto.
- No tubo FCCP, adicione 720 μL de meio base suplementado com fluxo extracelular para fazer uma solução estoque de 100 mM. Pipete para cima e para baixo 10 vezes para solubilizar adequadamente o composto.
CUIDADO: O FCCP é prejudicial se ingerido, causa queimaduras graves na pele e danos aos olhos, pode causar uma reação alérgica na pele e pode causar efeitos nocivos duradouros à vida aquática. Use luvas de proteção, roupas de proteção, proteção para os olhos e proteção facial ao manusear. Descarte o conteúdo e os recipientes em uma instalação de descarte de resíduos aprovada. - No tubo R / A, adicione 540 μL de meio de base suplementado com fluxo extracelular para fazer uma solução estoque de 50 mM. Pipete para cima e para baixo 10 vezes para solubilizar adequadamente o composto.
CUIDADO: A rotenona é fatal se ingerida ou inalada, causa irritação na pele, causa irritação ocular grave, pode causar irritação respiratória e é muito tóxica para a vida aquática com efeitos duradouros. Use luvas de proteção, proteção para os olhos, proteção facial e proteção respiratória. Descarte o conteúdo e os recipientes em uma instalação de descarte de resíduos aprovada. A antimicina A é fatal se ingerida e é muito tóxica para a vida aquática, com efeitos duradouros. Descarte o conteúdo e os recipientes em uma instalação de descarte de resíduos aprovada.
- No tubo BPTES, adicione 700 μL de meio base suplementado com fluxo extracelular para fazer uma solução estoque de 120 mM. Pipete para cima e para baixo 10 vezes para solubilizar adequadamente o composto.
- Preparar concentrações de trabalho de oxidação do substrato e reagentes de teste de estresse mitocondrial:
- Para BPTES, misture 1.500 μL de meio de base suplementado com fluxo extracelular com 500 μL de solução estoque BPTES 120 mM para fazer uma solução de trabalho BPTES de 30 μM.
- Para oligomicina, misture 2.520 μL de meio de base suplementado com fluxo extracelular com 480 μL de oligomicina 100 mM para fazer uma solução de trabalho de oligomicina 16 mM.
- Para FCCP, misture 2.865 μL de meio de base suplementado com fluxo extracelular com 135 μL de FCCP 100 mM para fazer uma solução de trabalho FCCP de 4,5 mM.
- Para R/A, misture 2.700 μL de meio de base suplementado com fluxo extracelular com 300 μL de 50 mM R/A para fazer uma solução de trabalho de 5 mM R/A.
- Carregue as portas da parte superior do cartucho de pacote de fluxo extracelular com o seguinte:
- Carregue os poços de controle de fundo e de mídia com 20 μL de meio de base suplementado com fluxo extracelular na porta A, 22 μL de oligomicina na porta B, 25 μL de FCCP na porta C e 27 μL de R/A na porta D.
- Carregue os poços contendo células com 20 μL de controle de meio ou BPTES na porta A (concentração final de 3 μM para BPTES), 22 μL de oligomicina na porta B (concentração final de 2 μM para oligomicina), 25 μL de FCCP na porta C (concentração final de 0,5 μM para FCCP) e 27 μL de R/A (concentração final de 0,5 μM para R/A) na porta D.
- Realize o experimento do bioanalisador de fluxo extracelular usando o programa de software de computador para projeto e análise de ensaio que é anexado ao instrumento usando a seguinte estratégia de tempo e injeção:
- Para a injeção com a porta A para BPTES, defina o número de medições como 6. Defina o tempo de mistura para 3 min, com um tempo de espera de 0 min e um tempo de medição de 3 min.
- Para a injeção com a porta B para oligomicina, defina o número de medições para 3. Defina o tempo de mistura para 3 min, com um tempo de espera de 0 min e um tempo de medição de 3 min.
- Para a injeção com a porta C para FCCP, defina o número de medições para 3. Defina o tempo de mistura para 3 min, com um tempo de espera de 6 min e um tempo de medição de 3 min.
- Para a injeção com a porta D para R/A, defina o número de medições para 3. Defina o tempo de mistura para 3 min, com um tempo de espera de 0 min e um tempo de medição de 3 min.
- Revise todos os poços de fundo definidos, controle de mídia e grupo experimental. Salve e execute o ensaio. Primeiro, carregue o pacote de fluxo extracelular com injeções AD. A calibração ocorrerá até que a placa celular esteja pronta para carregar.
- Remova a placa celular imediatamente no final do ensaio. Salve os resultados para analisar posteriormente em outro dispositivo.
- Verifique se as células ainda estão aderidas usando um microscópio de luz. Lave 1x com solução salina tamponada com fosfato e lise as células com um tampão de lise celular preferido. Conservar a -80 °C ou dosear imediatamente a concentração de proteínas.
4. Análise dos resultados para avaliar a glutamina como fonte de combustível para a respiração mitocondrial em células MH-S
- Extraia a proteína das células em cada poço para normalizar os dados da taxa de consumo de oxigênio (OCR) para proteína:
- Calcular a concentração (nanogramas/microlitro [ng/μL]) de proteína por alvéolo.
- Calcule a concentração média de proteína (ng/μL) para toda a placa de microcultura de fluxo extracelular.
- Divida a concentração de proteína de cada poço pela concentração média de proteína da placa para obter um fator de normalização.
- Aplique o fator de normalização ao arquivo de dados de interesse usando o programa de software de computador para projeto e análise de ensaio.
- Certifique-se de que os valores de OCR de todos os poços de fundo estejam próximos de 0.
- Desmarque todos os poços de células em que o OCR é < 10 na linha de base. Os dados não serão excluídos, mas os poços destacados aparecerão no arquivo de dados exportado.
- Exporte os dados do programa de software de computador para projeto e análise de ensaio para um programa de planilha de computador.
- Abra o arquivo no programa de planilha do computador e classifique todos os dados diminuindo os valores de OCR. Exclua poços de fundo, poços que foram previamente desmarcados (e não foram excluídos), quaisquer poços com baixa viabilidade celular, poços com baixa confluência celular, poços sem conclusão total da estratégia de injeção, poços com leituras imprecisas de concentração de proteína, poços com OCR de linha de base < 10 e quaisquer outros critérios predeterminados.
- Classifique todos os dados restantes por medição, depois por grupo e depois por OCR.
- Calcule a média das réplicas técnicas de cada N biológico independentemente por medição. Certifique-se de que haja um mínimo de 18 valores diferentes (3 na linha de base, 3 após o meio/BPTES, 3 após a oligomicina, 3 após FCCP e 6 após a rotenona/antimicina A) por grupo experimental por N biológico após a média das réplicas técnicas. Faça isso para cada N biológico separadamente para que o desvio padrão ou erro padrão da média possa ser calculado posteriormente para os dados analisados.
- Copie todos os valores médios em uma nova planilha, separados por grupo experimental.
- Calcule a média dos valores de OCR por estratégia de injeção em cada grupo experimental.
- Calcule os parâmetros da bioenergética mitocondrial com base no consumo de oxigênio:
- Calcule a respiração basal:
- Calcule a respiração mitocondrial basal da seguinte forma:
Respiração mitocondrial basal (pmol O2 consumido) = ([Medições AVG OCR #1, 2, 3 - Medições AVG OCR #16, 17, 18] x [Tempo #3 - Tempo #1])
NOTA: A respiração basal deve ser semelhante entre os grupos controle de mídia e BPTES porque isso ocorre antes da injeção do inibidor. - Calcule a respiração mitocondrial basal não dependente da glutamina da seguinte forma:
Respiração mitocondrial basal não dependente de glutamina (pmol O2 consumido) = ([Medições AVG OCR #4, 5, 6, 7, 8, 9 - Medições AVG OCR #16, 17, 18] x [Tempo #9 - Tempo #4])
NOTA: A respiração mitocondrial basal não dependente da glutamina deve ser menor do que a respiração mitocondrial basal, a menos que as células não sejam fortemente dependentes da glutamina. - Calcule a respiração mitocondrial basal dependente da glutamina da seguinte forma:
Respiração mitocondrial basal dependente de glutamina (pmol O2 consumido) = ([Medições AVG OCR #1, 2, 3 - Medições AVG OCR #4, 5, 6, 7, 8, 9] x [Tempo #9 - Tempo #4])
NOTA: A respiração mitocondrial basal total não deve ser subtraída da respiração mitocondrial basal e não deve ser dependente da glutamina, uma vez que estas são calculadas em diferentes momentos.
- Calcule a respiração mitocondrial basal da seguinte forma:
- Calcule a respiração ligada ao ATP da seguinte forma:
- Calcule a respiração mitocondrial total ligada ao ATP de todos os combustíveis da seguinte forma:
Respiração total ligada ao ATP mitocondrial de todos os combustíveis (pmol O2 consumido) = ([Medições AVG OCR #1, 2, 3 - Medições AVG OCR #10, 11, 12] x [Tempo #12 - Tempo #10])
NOTA: O OCR médio para as medições # 10, 11 e 12 deve ser semelhante entre os grupos de controle de meio e BPTES, uma vez que a oligomicina deve inibir fortemente a ATP sintase e a inibição de uma via de combustível não deve alterar a respiração total ligada ao ATP. - Calcule a respiração mitocondrial ligada ao ATP não dependente da glutamina da seguinte forma:
Respiração mitocondrial ligada a ATP não dependente de glutamina (pmol O2 consumido) = ([Medições AVG OCR #4, 5, 6, 7, 8, 9 - Medições AVG OCR #10, 11, 12] x [Tempo #12 - Tempo #10])
NOTA: A respiração mitocondrial ligada ao ATP não dependente da glutamina deve ser menor do que a respiração mitocondrial ligada ao ATP, a menos que as células não sejam fortemente dependentes da glutamina. - Calcule a respiração mitocondrial ligada ao ATP dependente da glutamina da seguinte forma:
Respiração mitocondrial ligada ao ATP dependente de glutamina (pmol O2 consumido) = Respiração mitocondrial ligada ao ATP total de todos os combustíveis - Respiração mitocondrial ligada ao ATP não dependente da glutamina
- Calcule a respiração mitocondrial total ligada ao ATP de todos os combustíveis da seguinte forma:
- Calcule a respiração máxima da seguinte forma:
- Calcule a respiração mitocondrial máxima total da seguinte forma:
Respiração mitocondrial máxima total (pmol O2 consumido) = ([Medições AVG OCR #13, 14, 15 - Medições AVG OCR #16, 17, 18] x [Tempo #15 - Tempo #13]) - Calcule a respiração mitocondrial máxima não dependente da glutamina da seguinte forma:
Respiração mitocondrial máxima não dependente de glutamina (pmol O2 consumido) = ([Medições AVG OCR #13, 14, 15 dos grupos BPTES - Medições AVG OCR #16, 17, 18 dos grupos BPTES] x [Tempo #15 - #Time 13]) - Calcule a respiração mitocondrial máxima dependente da glutamina da seguinte forma:
Respiração mitocondrial máxima dependente de glutamina (pmol O2 consumido) = Respiração mitocondrial máxima total de todos os combustíveis - Respiração mitocondrial máxima não dependente de glutamina
NOTA: Este cálculo pode ser usado para determinar a dependência celular para a capacidade sobressalente de glutamina em comparação com outros combustíveis. Quanto maior a respiração mitocondrial máxima, maior a dependência da glutamina, que pode ser expressa como grupos BPTES - grupos controle para mostrar uma perda na respiração mitocondrial máxima ou como uma porcentagem da respiração total.
- Calcule a respiração mitocondrial máxima total da seguinte forma:
- Calcule a capacidade respiratória sobressalente da seguinte forma:
- Calcule a capacidade respiratória sobressalente total da seguinte forma:
Capacidade respiratória sobressalente total (pmol O2 consumido) = ([Medições AVG OCR #13, 14, 15 - Medições AVG OCR #1, 2, 3] x [Tempo #15 - Tempo #13]) - Calcule a capacidade respiratória sobressalente não dependente da glutamina da seguinte forma:
Capacidade respiratória sobressalente não dependente da glutamina (pmol O2 consumido) = ([Medições AVG OCR #13, 14, 15 dos grupos BPTES - Medições AVG OCR #1, 2, 3 dos grupos BPTES] x [Tempo #15 - Tempo #13]) - Calcule a capacidade respiratória sobressalente dependente da glutamina da seguinte forma:
Capacidade respiratória sobressalente dependente da glutamina (pmol O2 consumido) = Capacidade respiratória sobressalente total de todos os combustíveis - Capacidade respiratória sobressalente não dependente da glutamina
NOTA: Este cálculo representa a flexibilidade das células dependentes da glutamina e se elas podem obter maior respiração sem glutamina quando necessário.
- Calcule a capacidade respiratória sobressalente total da seguinte forma:
- Calcule a respiração basal:
- Subtraia os controles de mídia por grupos inibidores e normalize o pmol O2 consumido em relação ao grupo controle, se desejar.
- Crie gráficos de perfis bioenergéticos de OCR (pmol O2/min), respiração basal (pmol O2), respiração ligada a ATP (pmol O2), respiração máxima (pmol O2) e capacidade respiratória sobressalente (pmol O2) dependentes da glutamina.
- Descreva os valores dos pontos finais bioenergéticos mitocondriais em gráficos de barras ou expresse como meio dos grupos inibidores em relação aos grupos de controle de meio. Se cada N biológico for calculado separadamente, calcule o desvio padrão ou erro padrão da média dos dados analisados em todos os N biológicos.
5. Análise estatística
- Realize todas as análises estatísticas usando o software de análise de dados apropriado.
- Para pontos lineares de perfis bioenergéticos de OCR, realizar ANOVA de duas vias seguida de análises post hoc de Tukey para comparar os dados desses quatro grupos experimentais com dois fatores (estratégia de tratamento e injeção): Con + meio, Con + BPTES, EtOH + meio e EtOH + BPTES.
- Para gráficos de barras de respiração basal, respiração ligada ao ATP, respiração máxima e capacidade respiratória sobressalente dependente da glutamina, realize análises do teste t de Student para comparar dados de dois grupos experimentais, Con + BPTES e EtOH + BPTES.
- Apresentar os dados como média ± erro padrão da média (EPM). Considere p < 0,05 estatisticamente significativo.
Resultados
A exposição crônica à EtOH diminui a dependência de glutamina em células MH-S.
A glutaminólise é uma via crítica para a respiração mitocondrial, apoiando a glutamina como uma importante fonte de combustível para a bioenergética celular. Para determinar se a exposição crônica ao EtOH altera a dependência das células MH-S da glutamina como fonte de combustível para a respiração mitocondrial, as células MH-S foram tratadas sem controle de EtOH (Con) ou EtOH, e o OCR foi medido ao longo do tempo em resposta a injeções seriadas de reagentes associados à respiração mitocondrial. Os perfis bioenergéticos de OCR em resposta a injeções seriadas de oligomicina (inibidor da ATP sintase), FCCP (desacoplador de prótons) e R/A (inibidores do complexo mitocondrial I e do complexo III, respectivamente) são usados para calcular outros parâmetros da bioenergética mitocondrial, como respiração ligada ao ATP, respiração máxima e capacidade respiratória sobressalente. Todos os dados mostrados são réplicas biológicas adicionais de Con + meio, Con + BPTES e EtOH + meio, grupos experimentais de células EtOH + BPTES MH-S que foram publicados em Crotty et al.11. Conforme mostrado na Figura 2A, a oligomicina diminuiu o OCR devido à inibição do complexo V, o FCCP aumentou o OCR devido ao desacoplamento mitocondrial do potencial de membrana e à geração de ATP dependente de mitocôndrias12 e o R / A efetivamente desligou o OCR dependente de mitocôndrias. Esses perfis de respostas bioenergéticas de OCR às injeções seriadas são consistentes com o guia do usuário para avaliação do estresse mitocondrial usando um bioanalisador de fluxo extracelular13,14.
Depois que o OCR basal foi medido em células MH-S tratadas com Con e EtOH, uma injeção de controle de mídia ou BPTES, um inibidor da glutaminase 1, foi carregada. Con + meio versus células Con + BPTES MH-S e EtOH + meio versus células EtOH + BPTES MH-S não demonstraram diferenças nos perfis bioenergéticos de OCR (Figura 2A). As células EtOH + BPTES MH-S mostraram uma diminuição na respiração basal dependente de glutamina em comparação com Con + BPTES (medição # 4 em comparação com a medição # 3 na Figura 2A e Figura 2B), sugerindo que EtOH diminui a oxidação basal da glutamina das células MH-S, contribuindo para a respiração mitocondrial. As células EtOH + BPTES MH-S exibiram uma perda da respiração mitocondrial ligada ao ATP dependente de glutamina em comparação com Con + BPTES (Figura 2C). Embora as células EtOH + BPTES MH-S tenham demonstrado uma perda atenuada na respiração máxima dependente de glutamina em comparação com Con + BPTES (Figura 2D), as células EtOH + BPTES MH-S mostraram uma diminuição na capacidade respiratória sobressalente dependente de glutamina em comparação com Con + BPTES (Figura 2E). Esses resultados sugerem que as células EtOH MH-S têm a capacidade de ser mais dependentes da glutamina para respiração, como quando estressadas com FCCP, mas que podem ser incapazes de fazê-lo devido a um aumento na demanda de glutamina ser superado por uma diminuição na biodisponibilidade da glutamina.
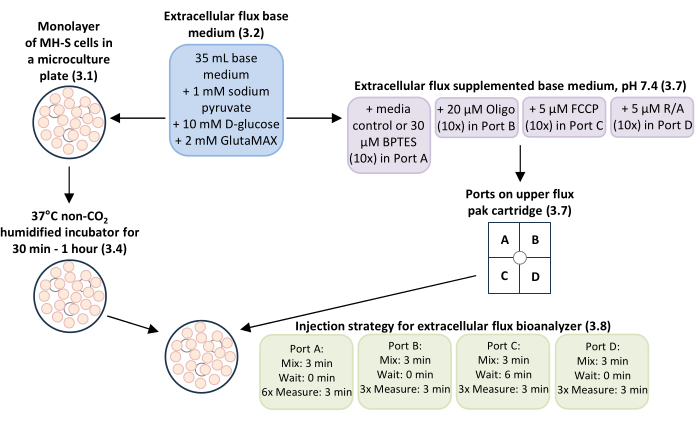
Figura 1: Visão geral do fluxo de trabalho para medir a respiração mitocondrial dependente de glutamina e a bioenergética em células MH-S, uma linha celular de macrófagos alveolares de camundongo. Monocamadas de células MH-S cultivadas em poços de placa de microcultura de fluxo extracelular (etapa 3.1) foram incubadas com meio de base de fluxo extracelular com suplementos adicionados (etapa 3.2) a 37 ° C em uma incubadora umidificada não-CO2 por 30 min-1 h (etapa 3.4). O meio de base de fluxo extracelular com adição de suplementos (etapa 3.2) foi usado como controle de meio e para diluir as concentrações de trabalho do inibidor da oxidação da glutamina BPTES até a concentração final de 3 μM, o inibidor do complexo mitocondrial V oligomicina (Oligo) até a concentração final de 0,5 μM, o desacoplador mitocondrial cianeto-p-trifluorometoxifenilhidrazona (FCCP) até a concentração final de 0,5 μM e os inibidores do complexo mitocondrial I e do complexo III rotenona/antimicina A (R/A) até 0,5 μM concentração final para carregar as portas A-D no cartucho pak de fluxo extracelular superior (etapa 3.7). A estratégia de injeção para tempos de mistura, espera e medição para a execução experimental usando o bioanalisador de fluxo extracelular foi: 3 min de tempo de mistura, 0 min de tempo de espera e 6 medições de 3 min de tempo de medição para a Porta A (controle de meio ou BPTES); 3 min de tempo de mixagem, 0 min de tempo de espera e 3 medições de 3 min de tempo de medição para Port B (Oligo); 3 min de tempo de mixagem, 6 min de tempo de espera e 3 medições de 3 min de tempo de medição para a Porta C (FCCP); e 3 min de tempo de mixagem, 0 min de tempo de espera e 3 medições de 3 min de tempo de medição para a Porta D (R/A). Clique aqui para ver uma versão maior desta figura.
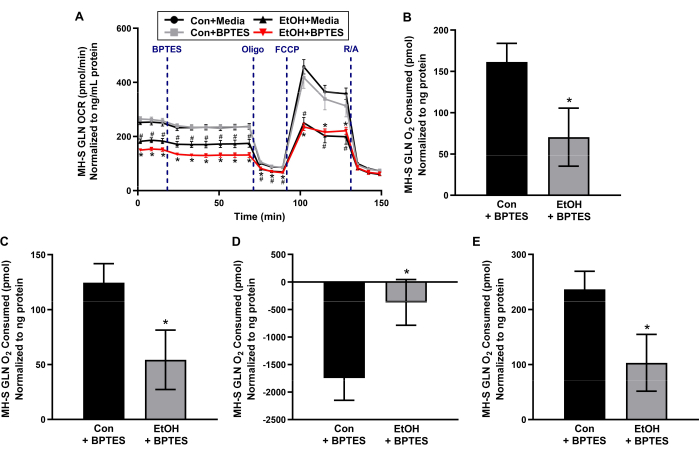
Figura 2: O etanol crônico (EtOH) diminui a respiração mitocondrial dependente de glutamina em células MH-S, uma linha celular de macrófagos alveolares de camundongo. As células MH-S não foram tratadas (Con) ou tratadas com EtOH (0,08%, 72 h), e a taxa de consumo de oxigênio (OCR) ao longo do tempo foi medida usando um bioanalisador de fluxo extracelular antes e depois da injeção com controle de meio ou um inibidor de oxidação de glutamina (GLN) (3 μM de BPTES), seguido por injeções seriadas de inibidor do complexo V mitocondrial (0,5 μM de oligomicina, Oligo), desacoplador mitocondrial (0,5 μM de cianeto de carbonila-p-trifluorometoxifenilhidrazona, FCCP) e inibidores do complexo mitocondrial I e do complexo III (0,5 μM de rotenona / 0,5 μM de antimicina A, R / A). (A) Os perfis bioenergéticos OCR foram usados para calcular a respiração basal dependente de glutamina (B), (C) respiração ligada ao ATP, (D) respiração máxima e (E) capacidade respiratória sobressalente. Os pontos lineares representam médias ± SEM (n = 4, #p < 0,05 versus Con + media e *p < 0,05 versus Con + BPTES, ANOVA unidirecional com post hoc de Tukey). As barras representam médias ± EPM (n = 4, *p < 0,05 versus Con + BPTES, teste t de Student). Os dados apresentados são réplicas biológicas adicionais para os grupos experimentais de controle e BPTES tratados com mídia de células MH-S não tratadas e expostas crônicas a EtOH, que são publicadas em Crotty et al.11. Clique aqui para ver uma versão maior desta figura.
Discussão
Os dados aqui apresentados são réplicas biológicas adicionais para células MH-S não tratadas e crônicas expostas a EtOH tratadas com controle de meio ou BPTES, que são publicados em Crotty et al.11. O protocolo descrito é usado para avaliar a dependência de células MH-S expostas a EtOH da glutamina como fonte de combustível para respiração mitocondrial e bioenergética usando um bioanalisador de fluxo extracelular. Existem várias etapas críticas no protocolo. Em primeiro lugar, a formação e confluência de células MH-S são importantes. As células MH-S são inicialmente cultivadas em poços de microcultura de fluxo extracelular em baixa confluência e usadas quando as células estão em uma monocamada na confluência final de 90%. Como a exposição a EtOH das células MH-S foi de 72 h, a confluência final de 90% foi alcançada antes da execução experimental no bioanalisador de fluxo extracelular. Isso é consistente com outros relatos de formação de monocamada celular e confluência de 90% a 100% antes de executar esses experimentos 15,16,17. Em segundo lugar, a normalização dos valores da respiração mitocondrial para proteína em cada amostra é crítica. Alguns estudos normalizam a bioenergética mitocondrial para o número de células 18,19,20. No entanto, a estratégia de injeção em série neste ensaio destina-se a estressar sequencialmente as mitocôndrias. Em células que dependem principalmente da fosforilação oxidativa, como AMs, isso pode levar à morte celular durante a execução experimental no bioanalisador de fluxo extracelular. Portanto, o número de células pode não ser consistente desde o início do experimento até o final da execução experimental, e a normalização dos valores da respiração mitocondrial em proteína é ideal21,22. Um fator de normalização de proteína usando proteína média em todos os poços é sugerido aqui para relatar perfis de OCR específicos de células mais precisos. Em terceiro lugar, a análise dos resultados em réplicas biológicas é fundamental. Às vezes, imagens representativas de perfis bioenergéticos mitocondriais são apresentadas 22,23 em vez da respiração mitocondrial média em múltiplas réplicas biológicas 10,11,24. No entanto, essas imagens representativas não fornecem uma imagem completa das variações entre os experimentos. Ao calcular cada réplica biológica separadamente, o erro padrão da média pode mostrar a variação dos valores médios da respiração mitocondrial em todas as réplicas biológicas e ser usado para calcular as diferenças estatísticas entre os perfis bioenergéticos mitocondriais.
Antes de executar o ensaio no bioanalisador de fluxo extracelular, a densidade celular ideal das células MH-S para cultura na placa de microcultura de fluxo extracelular para obter uma monocamada de células em cada poço precisava ser determinada. Como as concentrações apropriadas de Oligo e FCCP para células MH-S também precisavam ser estabelecidas, testes de diferentes densidades de células MH-S com diluições seriadas de Oligo e FCCPforam realizados 21,25. A cultura inicial de 10.000-15.000 células MH-S resultou em uma monocamada de células com 90% de confluência após 72 h de exposição com e sem EtOH10. Com base nesses experimentos de otimização, 2 μM de Oligo e 0,5 μM de FCCP foram determinados como as concentrações mínimas desses reagentes que causaram alterações na respiração mitocondrial10.
Medidas em tempo real da respiração mitocondrial no início e após o tratamento com BPTES, um inibidor da glutaminase 1, que impede a conversão enzimática de glutamina em glutamato, é usado para determinar a dependência de glutamina para respiração basal em células MH-S expostas a Con e EtOH. Uma limitação dos dados apresentados neste estudo é que os papéis dos ácidos graxos de cadeia curta e média como fontes de combustível para a respiração mitocondrial e bioenergética, além da glutamina em células MH-S expostas à EtOH, não foram investigados. Os resultados do estudo anterior de Crotty et al.11 sugeriram que as células EtOH MH-S exibiram uma mudança da respiração dependente de piruvato para a respiração dependente de glutamina sem compensação total da perda na respiração mitocondrial total. Além disso, realizando o mesmo experimento com uma injeção combinada de UK5099 (um inibidor da oxidação do piruvato) e etomoxir (um inibidor da oxidação de ácidos graxos de cadeia longa), a contribuição da glutamina na ausência de piruvato e ácidos graxos como fontes de combustível para a respiração mitocondrial pode ser determinada em células MH-S expostas ao EtOH.
A respiração mitocondrial tem sido medida usando um eletrodo de Clark por quase setenta anos26, e também existem ensaios de fluorescência baseados em placas para medir a respiração mitocondrial27. No entanto, esses métodos são significativamente mais demorados e/ou não têm a sensibilidade das medições que podem ser alcançadas com um bioanalisador de fluxo extracelular. A vantagem de usar um bioanalisador de fluxo extracelular para avaliar a glutamina como fonte de combustível para a respiração mitocondrial e bioenergética é que experimentos com múltiplas réplicas biológicas podem ser conduzidos ao mesmo tempo. Além disso, o bioanalisador de fluxo extracelular permite a flexibilidade de experimentar mitocôndrias isoladas ou células intactas. Para células que não possuem alta concentração de mitocôndrias, como células musculares lisas da artéria pulmonar, isolar mitocôndrias suficientes de amostras limitadas é um desafio. Usando o bioanalisador de fluxo extracelular, a respiração mitocondrial pode ser medida em células musculares lisas da artéria pulmonar intactas28 ou AMs primários de camundongos 10,11. O protocolo utilizado neste estudo pode ser usado para avaliar a glutamina como fonte de combustível para a respiração mitocondrial e bioenergética de outras amostras de tamanho amostral limitado, como MAs humanos primários. Mostramos anteriormente que o estresse oxidativo derivado da mitocôndria induzido por EtOH e os desarranjos em células MH-S exibem um perfil semelhante de desregulação mitocondrial em AMs primários de camundongos e AMs humanos 6,7,11,28,29,30. Coletivamente, os estudos apóiam o uso desse método de avaliação da glutamina como fonte de combustível para a respiração mitocondrial e bioenergética em AMs em condições patológicas caracterizadas por estresse oxidativo derivado das mitocôndrias.
Divulgações
Todos os autores não têm conflitos de interesse financeiros relevantes a relatar.
Agradecimentos
Reconhecemos as contribuições de Sarah S. Chang, BS, para a cultura celular inicial e preparação de células MH-S para experimentação. Este trabalho foi apoiado por NIAAA R01-AA026086 para SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 para KMC e NIGMS T32-GM008602 para Randy Hall, Departamento de Farmacologia e Biologia Química, Universidade Emory. O conteúdo deste relatório não representa as opiniões do Departamento de Assuntos de Veteranos ou do Governo dos EUA.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tubo cônico de 15 mL | VWR International, Inc. | 21008-670 | Usado para preparar concentrações de estoque de reagentes relacionados às mitocôndrias. |
| 2-mercaptoetanol | Sigma Aldrich Co. | M6250 | Usado para cultura de células MH-S. |
| Raspador de células | Dot Scientific, Inc. | 70-1180 | Usado para raspar células MH-S de frascos T-75. |
| Countess 3 FL Instrumento: contador de células | Fisher Scientific Company | AMQAF2000 | Usado para contar o número de células MH-S a serem plaqueadas para experimentos. |
| D-glicose | Sigma Aldrich Co. | G8270 | Usado para o meio de base de fluxo extracelular. |
| Etanol | Fisher Scientific Company | 4355720 | Tratamento experimental para células MH-S. |
| Soro fetal bovino | Sciencell Research Laboratories | 500 | Usado para cultura de células MH-S. |
| Gentamicina | Sigma Aldrich Co. | G1397 | Usado para cultivar células MH-S. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Usado para o meio base de fluxo extracelular. |
| GraphPad Prism 10.2.3 | Software GraphPad | N/A | Software para análise estatística. Pode ser baixado após a compra em https://www.graphpad.com/features. |
| Células MH-S | Coleção de cultura de tipo americano | CRL-2019 | Linha celular de macrófagos alveolares de camundongo. |
| Tubo de microcentrífuga | EUA Scientific, Inc. | 4036-3212 | Usado para preparar concentrações de trabalho de reagentes relacionados às mitocôndrias. |
| Microsoft 365 Excel: programa de planilha de computador | Microsoft | N/A | Software para organização de dados e cálculos bioenergéticos mitocondriais. Pode ser baixado após a compra em https://www.microsoft.com/en-us/microsoft-365/excel. |
| Penicilina/estreptomicina | Fisher Scientific Company | 15140122 | Usado para cultivar células MH-S. |
| Solução salina tamponada com fosfato | VWR International, Inc. | 45000-446 | Usado para lavar células MH-S. |
| RPMI-1640 | VWR International, Inc. | 45000-396 | Usado para cultura de células MH-S. |
| Seahorse Wave Pro Software: programa de software de computador para projeto e análise de ensaios | Agilent Technologies, Inc. | N/A | O computador está conectado ao instrumento Seahorse XF Pro Analyzer. Transferível de https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Base Medium: meio base de fluxo extracelular, pH 7,4 | Agilent Technologies, Inc. | 103334-100 | Usado para preparar concentrações de estoque e trabalho de reagentes relacionados às mitocôndrias e cultura de células MH-S antes de execuções experimentais. |
| Kit de Teste de Estresse de Oxidação de Glutamina Seahorse XF | Agilent Technologies, Inc. | 103674-100 | Contém estoque BPTES, oligomicina, FCCP e rotenona/antimicina A. |
| Seahorse XF Pro Analyzer: bioanalisador de fluxo extracelular | Agilent Technologies, Inc. | N/A | Bioanalisador de fluxo extracelular. |
| Seahorse XFe96 FluxPak: cartuchos de pacote de fluxo extracelular de 96 poços, placas de microcultura de fluxo extracelular de 96 poços e solução calibrante | Agilent Technologies, Inc. | 102416-100 | Usado para preparar células MH-S para ensaios usando um bioanalisador de fluxo extracelular. |
| Pipeta sorológica | Santa Cruz Biotecnologia, Inc. | sc-550678 | Usado para remover mídia de células MH-S. |
| Bicarbonato de sódio | Sigma Aldrich Co. | S6014 | Usado para cultura de células MH-S. |
| Piruvato de sódio | Sigma Aldrich Co. | P4562 | Usado para o meio de base de fluxo extracelular. |
| Frascos T-75 | Santa Cruz Biotechnology, Inc. | sc-200263 | Usado para cultura de células MH-S. |
Referências
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Reimpressões e permissões
