Este artigo apresenta um modelo de co-cultivo de células de teca e granulosa bovinas. Este método tem o potencial de servir como uma base confiável para análises focadas no estudo da comunicação parácrina e transporte de substrato entre as células somáticas dentro do folículo.
Artigo de método
Um sistema de co-cultura modificado para entender as interações entre células granulosa-teca no ovário bovino
Neste artigo
Resumo
Resumo
Uma co-cultura confiável de células da granulosa (GCs) e da teca (TCs) tem o potencial de facilitar uma compreensão mais abrangente das interações, vias de sinalização e troca de substrato entre os dois compartimentos celulares no folículo ovariano bovino. Utilizando insertos de cultura de células disponíveis comercialmente, foi estabelecido um modelo de co-cultura reprodutível de GCs e TCs bovinos. Observou-se que as células primárias da teca e da granulosa requerem consideravelmente mais tempo para se ligarem à membrana de inserção em comparação com as linhagens celulares. Inicialmente, os TCs foram semeados na membrana de inserção invertida, com um tubo truncado servindo como recipiente de inoculação para evitar vazamento do meio. Após um período de incubação de 72 h, o inserto foi invertido, permitindo que os GCs fossem cultivados no lado oposto da membrana. Esta co-cultura foi então submetida a mais 6 dias de incubação a 37 °C e 5% de CO2, com troca de meios em dias alternados. A expressão de genes marcadores indicou padrões específicos do tipo de célula, sendo CYP17A1 altamente abundantes em CTs e não expressos em GCs. Por outro lado, CYP19A1 apresentaram altos níveis em GCs e apenas baixos níveis em TCs. A análise hormonal apoiou a presença de um sistema fisiológico de co-cultura, como evidenciado pela síntese de estradiol. Este modelo de co-cultura modificado suporta estudos reprodutíveis de sinalização parácrina e transporte de substrato entre as células somáticas do folículo.
Introdução
Durante a foliculogênese, um aumento no hormônio luteinizante (LH) desencadeia uma cascata de alterações fisiológicas no ovário, levando à liberação de um oócito maduro durante a ovulação 1,2. Este processo é rigidamente regulado pelas células somáticas foliculares, que fornecem suporte essencial para a maturação do oócito e garantem a função ovulatória adequada3. O folículo é composto por dois tipos de células somáticas esteroidogênicas, uma camada interna de células da granulosa (GCs) e uma camada externa de células da teca (TCs). Entre estes, os GCs sofrem as alterações morfológicas e funcionais mais pronunciadas após o aumento do LH, destacando seu papel crítico na orquestração dos estágios finais do desenvolvimento folicular4. Consequentemente, os GCs são de considerável interesse na análise de fatores que podem influenciar a foliculogênese, ovulação e luteinização.
Um modelo de cultura celular de GCs bovinos mimetizando um status estradiol ativo foi previamente estabelecido 5,6,7,8,9,10,11. Este modelo de cultura livre de soro permite uma análise confiável da fisiologia do GC e possíveis análises efetoras nas vias de sinalização, regulação gênica e síntese hormonal 12,13,14. No entanto, a estrutura folicular é muito mais complexa, como destacado pela hipótese 2-células-2-gonadotrofinas15. Isso ressalta a dependência e a natureza interconectada dos tipos de células no contexto da síntese de esteróides sendo compartimentados entre as duas camadas.
Vários estudos descreveram modelos de cultura de TC semelhantes aos sistemas de monocultura de GC previamente estabelecidos 16,17,18. No entanto, foi relatado um sistema de co-cultura de células de teca e granulosa suína, no qual ambas as populações de células são cultivadas em um único prato na proporção de 4:1 de GCs para CTs 19,20,21. Neste modelo, pôde-se demonstrar que existe um sistema funcional e interação entre as células da granulosa e da teca, revelando uma maior quantidade de estradiol no sistema de co-cultura do que na monocultura. No entanto, deve-se notar que este modelo não é capaz de analisar adequadamente a interação e a troca de substrato entre as células da granulosa e da teca, pois ambos os tipos de células podem ser afetados de forma diferente. Portanto, a análise dos níveis moleculares de GCs e TCs independentemente uns dos outros quase não é possível sem um procedimento de classificação elaborado, que por si só pode afetar a fisiologia celular. Além disso, é importante considerar que esse modelo pode não replicar com precisão a situação anterior ao surto de LH, quando GCs e TCs são separados por uma membrana basal3. No bovino, foi proposto um sistema de cultura celular baseado em membrana, no qual ambos os tipos de células são cultivados em ambos os lados de uma membrana de colágeno, refletindo assim a situação in vivo com mais precisão 22,23,24,25,26.
Adaptando o conceito inicial de um sistema baseado em membrana, este método teve como objetivo estabelecer um modelo de co-cultura para GCs e TCs bovinos com insertos de cultura de células para permitir futuros estudos de sinalização parácrina entre os dois compartimentos celulares. O método apresentado utiliza inserções de cultura de células suspensas disponíveis comercialmente em vez de um sistema de membrana personalizado, oferecendo vantagens como maior reprodutibilidade, qualidade padronizada e maior estabilidade do produto. Essa abordagem garante consistência entre os experimentos, tornando-se uma ferramenta valiosa para pesquisadores que estudam as interações das células foliculares. O procedimento de cultura inclui uma semeadura inicial de 1,7-1,8 x 10⁵ células teca na parte inferior da inserção, seguida por aproximadamente 1,0 x 10⁵ células da granulosa na superfície superior após a inversão e uma pré-incubação de 72 h. As culturas são mantidas em meio definido em condições padrão (37 °C, 5% CO2) com meio trocado em dias alternados. Para permitir a troca parácrina entre os compartimentos, foram utilizadas inserções de cultura de células de 0,4 μm feitas de poliéster, como tereftalato de polietileno (PET) (disponível comercialmente). Membranas desse tamanho de poro permitem a difusão de macromoléculas solúveis, como hormônios, fatores de crescimento e proteínas, ao mesmo tempo em que impedem a migração celular27,28.
Ao permitir a separação espacial enquanto mantém a comunicação parácrina, este sistema de co-cultura fornece um ambiente fisiologicamente relevante para investigar as interações das células granulosa-teca, vias de sinalização e troca de substrato. O modelo é particularmente adequado para estudos que requerem condições controladas, como regulação hormonal, análise de expressão gênica ou teste de drogas. Pesquisadores interessados em dinâmica folicular, fisiologia reprodutiva ou distúrbios ovarianos podem achar esse método aplicável a seus estudos. Além disso, o uso de insertos padronizados permite fácil adaptação a diferentes necessidades experimentais, incluindo modificações na duração da cultura, tipos de células ou condições de tratamento.
Protocolo
Os ovários bovinos foram obtidos de um matadouro comercial local. Nesta configuração experimental, a preparação dos ovários é realizada dentro de 2 h após o recebimento. A coleta de subprodutos do matadouro não requer aprovação ética de acordo com a lei alemã.
NOTA: O isolamento e a criopreservação de GCs bovinos já foram descritos e mostrados em um relatório de método anterior6 e podem ser realizados de acordo.
1. Preparação de reagentes e configuração para dissecção do folículo ovariano
- Prepare 1x PBS (pH 7,4) suplementado com 100 UI de penicilina, 0,1 mg/mL de estreptomicina e 0,5 μg/mL de anfotericina para transporte de ovários. A solução pode ser conservada a 4 °C durante um período máximo de 4 semanas.
- Prepare a solução de digestão contendo 10x tampão de sal de Hanks suplementado com 25 mM de HEPES, 100 UI de penicilina, 0,1 mg/mL de estreptomicina e 0,5 μg/mL de anfotericina. A solução de digestão pode ser armazenada a 4 °C por 2-3 semanas.
- Encha 1 ml de solução de digestão em tubos de 1,5 ml para cada folículo dissecado planeado e pré-aqueça a solução a 37 °C.
- Adicione 10 μL de colagenase NB8 para atingir uma concentração de 0,1% da solução de digestão pouco antes da preparação.
- Prepare os seguintes pratos para procedimentos de preparação, isolamento e lavagem.
- Pratos de vidro com diâmetro mínimo de 3 cm para colocar os ovários para dissecção.
- Uma placa de 6 poços com 1 mL 1x PBS (suplementado com antibióticos) para lavagem.
- Um prato de 12 poços com aproximadamente 10 μL de solução de digestão.
- Para criopreservação, prepare uma solução de congelamento composta por 80% de soro fetal de bezerro (FCS) e 20% de DMSO.
NOTA: A concentração final de DMSO para criopreservação será de 10%.
2. Dissecção folicular com subsequente digestão de células de teca bovina
- Execute os procedimentos de digestão celular, bem como o trabalho de cultura celular sob uma bancada de fluxo laminar.
- Lave os ovários 2-3x em 1x PBS (suplementado com antibióticos, consulte a etapa 1.1) para remover sangue e outros resíduos da superfície. Coloque os ovários em um copo, encha-o com 1x PBS para que os ovários fiquem cobertos e descarte a solução em seguida. Repita esta etapa 3-4x até que os ovários estejam limpos.
- Coloque um ovário em um prato de vidro e selecione folículos de 5-11 mm, medidos com uma régua, para dissecação.
- Aspire o fluido folicular com uma seringa de 3 mL e uma agulha de 18 G puncionando um folículo selecionado. Descarte o fluido folicular.
- Corte o folículo com uma tesoura, começando no ponto onde a agulha foi inserida durante a aspiração. Use um par de binóculos para um corte preciso.
- Use uma pinça na borda cortante do folículo para agarrar a camada mais interna, a teca interna.
- Tente retirar a teca interna do lado interno da parede do folículo aberto.
NOTA: Dependendo da idade ou estágio do folículo, a camada de células da teca pode ser removida com mais facilidade, resultando em uma camada de teca intacta.
- Coloque a camada de células da teca em um prato cheio de 1x PBS (suplementado com antibióticos, consulte a etapa 1.1.) para remover as células da granulosa restantes.
- Raspe suavemente as células da granulosa do lado interno da membrana com um bisturi. As células devem se desprender facilmente em grandes aglomerados.
- Coloque a camada de células da teca em um novo prato cheio de 1x PBS para lavá-lo.
- Enxágue cuidadosamente a membrana girando o PBS 1x fresco para remover quaisquer células soltas.
NOTA: A partir da próxima etapa, trabalhe sob a caixa de fluxo laminar.
- Transfira a teca interna para a solução de digestão preparada da placa de 12 poços (consulte as etapas 1.2 e 1.3.3) e corte-a em pedaços pequenos, presumivelmente de 1-3 mm, usando um bisturi.
NOTA: Recomenda-se digerir as células teca de diferentes folículos de forma independente para evitar o entupimento de tecidos de diferentes origens. - Transfira os fragmentos de teca para um tubo de reação preparado de 1,5 ml (ver passo 1.2.1 e 1.2.2). Incubar a teca numa incubadora termosagitadora a 800 rpm a 37 °C durante 45-50 min.
- Depois de agitar por 30 min, comece a agitar os tubos de reação por 3-5 s e coloque-os de volta na incubadora agitada.
- Repita esta etapa 3-4x no tempo de incubação restante.
- Após a incubação, ressuspenda as células digeridas com uma pipeta.
- Elimine o tecido não digerido por filtração com o filtro de células de 100 μm colocado em um tubo de 50 mL e proceda imediatamente à contagem e criopreservação das células para remover o meio de digestão.
3. Contagem e criopreservação de CTs
- Para contar o número de células viáveis, prepare um tubo com 1,5 μL de uma solução de azul de tripano a 0,25%. As células vivas permanecerão sem coloração, enquanto as células mortas aparecem azuis devido ao acesso do azul de tripano através de barreiras celulares quebradas.
- Adicionar 15 μl da suspensão celular digerida à solução de azul de tripano e misturar suavemente.
- Colocar 10 μL da mistura em ambas as câmaras de um hemocitômetro. Conte o número de células vivas (= incolores) em um grande quadrado por câmara.
- Determine o número de células vivas com a média de ambos os quadrados da câmara seguindo as diretrizes padrão. Observe que a proporção de células vivas pode diferir entre os ovários.
- Congelar porções não digeridas da suspensão de células tecais (ver etapa 2.9) para uma comparação pretendida como um controle não cultivado e para realizar uma avaliação da potencial contaminação cruzada com GCs (como mostrado na Figura 2).
- Transferir o tecido não digerido de cada teca interna dissecada que permanece no filtro de células de 100 μm (ver passo 2.10) para um tubo marcado.
- Congele o tubo em nitrogênio líquido antes de armazená-lo a -80 °C.
- Realizar a criopreservação das células isoladas da teca para facilitar o planejamento aprimorado das culturas de células, com particular atenção ao número de células necessárias.
- Centrifugar a suspensão de células digeridas a 500 x g durante 5 minutos à temperatura ambiente (em média 20 °C). Descarte o sobrenadante.
- Dissolva cuidadosamente o pellet celular em 1 mL de 100% FCS. Adicione 1 ml de meio de congelação (ver passo 1.4) à solução celular. A concentração final de DMSO para criopreservação é de 10%. Transfira a mistura para os frascos criogênicos de 2 mL especificados.
- Coloque os frascos em um dispositivo mais frio para uma diminuição controlada da temperatura. Nesta configuração, foi utilizado um recipiente de congelamento específico, que garante uma taxa de congelamento de -1 °C/min quando colocado por pelo menos 4 h em -80 °C. Posteriormente, os frascos podem ser armazenados em sistemas de armazenamento de nitrogênio líquido.
4. Preparações para o trabalho de cultura celular
- Corte a tampa de um tubo de reação de 1,5 mL. Em seguida, corte o tubo de reação a aproximadamente 1 cm da abertura com a ajuda de um bisturi (de preferência aquecido) ou de um cortador de mangueira apropriado. Em seguida, autoclave os tubos e tampas cortados. As tampas podem ser necessárias para procedimentos subsequentes da cultura de células (ver passo 5.5).
NOTA: Certifique-se de que os tubos de 1.5 mL se encaixam firmemente no inserto escolhido. - Certifique-se de revestir as inserções com 0,02% de colágeno R para fixação de GCs e TCs na cultura.
NOTA: Execute o procedimento de revestimento sob uma coifa de fluxo laminar estéril.- Use água purificada (adequada para cultura de células) para preparar uma solução de colágeno R a 0,02%. Preparar 80 μl desta solução para cada inserção de cultura celular necessária.
- Coloque o inserto de cabeça para baixo em uma tampa de uma placa de 24 poços. Adicione suavemente 40 μL de solução de colágeno R à membrana da inserção, garantindo que ela permaneça no lugar. Deixe a solução de colágeno R secar por 4-5 h sob a capela de fluxo laminar.
- Gire o inserto e pendure-o nos poços da placa de 24 poços para revestir o segundo lado novamente com 40 μL de solução de colágeno R. Deixe a solução secar novamente por 4-5 h.
- Irradie as inserções com luz UV por 10-15 min para diminuir a contaminação.
- As inserções devem ser armazenadas dentro da placa de 24 poços (de preferência no saco de entrega estéril) e em uma geladeira a 4 °C e podem ser usadas por até 4 semanas.
- Preparar o meio 8,10 do seguinte modo:
NOTA: Execute o procedimento de preparação do meio sob uma capela de fluxo laminar estéril.- Suplementar o Meio Essencial α-Minimial (α-MEM) com 2 mM de L-glutamina, 0,084% de bicarbonato de sódio, 0,1% de BSA, 20 mM de HEPES, 4 ng/mL de selenito de sódio, 5 μg/mL de transferrina, 10 ng/mL de insulina e 1 mM de aminoácidos não essenciais.
NOTA: Para garantir a consistência, recomenda-se preparar meio suficiente para todo o experimento com antecedência. O meio preparado pode ser armazenado a 4 °C. Para a configuração descrita, use 750 μL por poço de cultura de células. - Além disso, adicione 100 UI de penicilina, 0,1 mg / mL de estreptomicina e 0,5 μg / mL de anfotericina ao meio preparado.
- Pré-aqueça o meio a 37 °C em banho-maria.
NOTA: Após o pré-aquecimento do meio, os antibióticos permanecem estáveis por aproximadamente 48 h. Portanto, alíquota apenas a quantidade desejada de mídia para aquecimento. - Além disso, suplemente o α-MEM com 20 ng/mL de hormônio folículo-estimulante (FSH), 50 ng/mL de R3 IGF-1 e 2 μM de androstenediona para um ambiente celular fisiológico 7,8,10,11.
NOTA: Adicione esses componentes pouco antes do início da cultura ou troca de mídia. Para evitar uma atividade comprometida, é imperativo evitar ciclos repetidos de congelamento e descongelamento das soluções de estoque de FSH e IGF-1.
- Suplementar o Meio Essencial α-Minimial (α-MEM) com 2 mM de L-glutamina, 0,084% de bicarbonato de sódio, 0,1% de BSA, 20 mM de HEPES, 4 ng/mL de selenito de sódio, 5 μg/mL de transferrina, 10 ng/mL de insulina e 1 mM de aminoácidos não essenciais.
5. Co-cultura de TCs e GCs
- Preparar a câmara de inoculação para a cultura de células tecais (figura 1A).
- Coloque o inserto revestido de cabeça para baixo em uma placa maior (por exemplo, placa de 12 poços).
- Coloque o tubo cortado e autoclavado em um inserto invertido (consulte a etapa 4.1). Certifique-se de que o tubo esteja firmemente encaixado no inserto para evitar vazamento de mídia.
- Descongele rapidamente as células de teca criopreservadas em banho-maria a 37 °C durante 3-5 min e transfira a suspensão celular imediatamente após a descongelação para o meio pré-aquecido.
- Centrifugar a suspensão da célula tecal a 500 x g durante 3 min à temperatura ambiente (em média 20 °C) e rejeitar o sobrenadante. Adicione o α-MEM suplementado e ressuspenda cuidadosamente as células.
- Semear 1,7-1,8 x 10⁵ células por inserção na câmara de inoculação em um volume final de 200 μL de meio. Inclua pelo menos três réplicas técnicas por condição.
- Para fechar a placa de cultura de células com uma tampa, pode ser necessário aumentar a distância entre a placa e a tampa ao usar a câmara de inoculação.
- Use as tampas cortadas e autoclavadas dos tubos de reação de 1,5 mL (consulte a etapa 4.1) e coloque-as em cada canto das placas de cultura de células. As tampas funcionarão como suportes para levantar ligeiramente a tampa da placa, fornecendo espaço suficiente para a câmara de inoculação enquanto ainda cobre a placa de cultura adequadamente.
- Feche a placa do poço com cuidado, certificando-se de que permaneça estável e não toque na membrana ou câmara.
- Transfira suavemente a placa para uma incubadora de cultura de células umidificada.
- Incube as células da teca por 3 dias a 37 ° C com 5% de CO2 para permitir a fixação das células na membrana.
- Gire o inserto após 3 dias de cultura para se preparar para a semeadura com GCs (Figura 1B).
- Prepare uma placa de 24 poços e encha com 500 μL de meio em cada um dos poços desejados.
- Com uma pipeta, remova todos os meios da câmara de inoculação. Remova cuidadosamente a câmara de inoculação do inserto com uma pinça.
- Coloque o inserto com as células tecas anexadas na placa de 24 poços preparada, garantindo que os TCs estejam voltados para baixo (consulte a Figura 1B para obter mais detalhes).
- Para semear células da granulosa a partir da criopreservação, execute as etapas 5.2 e 5.3.
- Semeie aproximadamente 1,0 x 10⁵ células por inserção em um volume final de 250 μL de mídia que é colocado dentro da inserção.
- Em seguida, incubar a cocultura a 37 °C com 5% de CO2 por mais seis dias.
- Realize uma troca de meios a cada 48 h após a semeadura por GC quando apenas dois terços dos meios de cultura forem substituídos. Isso deve reduzir o estresse do procedimento e ajudar a se adaptar à mídia recém-adicionada.
6. Análise subsequente de células cultivadas de teca e granulosa
- Realize a avaliação morfológica das células da teca e da granulosa em toda a cultura de células com um microscópio de contraste de fase para monitorar a fixação e a disseminação de ambos os tipos de células (ver Figura 3).
- Para a análise da hormona esteróide, recolher o meio e congelar a -20 °C. Use um método apropriado para analisar as concentrações dos hormônios esteróides desejados (por exemplo, neste fluxo de trabalho, o estradiol foi analisado via RIA 5,29).
NOTA: A análise do hormônio esteróide ajuda a avaliar o estado fisiológico da cultura7. - Para analisar a expressão gênica, primeiro isole o RNA com uma técnica apropriada (por exemplo, procedimentos de kit).
NOTA: Esteja ciente de que durante o procedimento de isolamento, ambos os tipos de células são preparados independentemente um do outro.- Dissocie as células de ambos os lados da membrana com um reagente apropriado (por exemplo, tripsina ou accutase). Coloque o meio de dissociação tanto no inserto (por exemplo, 200 μL de accutase) quanto nos poços da placa (por exemplo, 500 μL de accutase) de modo que a membrana fique completamente envolvida pelo meio de dissociação.
- Colete as células da granulosa da inserção, enquanto as células da teca destacadas podem ser coletadas do poço. Transfira todos os tipos de células para um tubo de 1,5 mL.
- Centrifugue as células a 500 x g por 3 min e descarte o sobrenadante.
- Lisar as células, realizar o isolamento de RNA e depois medir a concentração de RNA.
NOTA: O protocolo pode ser interrompido após a lise das células para a maioria dos procedimentos de isolamento, de modo que as amostras possam ser armazenadas a -20 °C por um curto prazo. Para um armazenamento mais longo, as células lisadas podem ser armazenadas a -80 °C. - Posteriormente, sintetizar cDNA para medir a abundância de transcritos de interesse por qPCR. A síntese de cDNA utiliza 100 ng de RNA com hexâmero aleatório e oligo-dT primers. Para qPCR, foram utilizados primers específicos para genes conforme descrito anteriormente 5,30. Em resumo, as condições do ciclo foram as seguintes: pré-incubação a 95 ° C por 5 min, 40 ciclos de desnaturação a 95 ° C por 20 s, recozimento a 60 ° C por 15 s, extensão a 72 ° C por 15 s e aquisição fluorescente de ponto único por 10 s. Um padrão externo de cinco concentrações diferentes (5x10-12- 5x10-16 g DNA/reação) foi co-amplificado. Para normalização da abundância de transcritos, foi calculada a média geométrica de RPLP0 e TBP.
- Para eliminar a potencial contaminação cruzada, avalie a pureza das preparações celulares de teca e granulosa analisando a expressão gênica dos marcadores específicos da célula CYP17A1 e CYP19A1 das preparações celulares recém-isoladas de TCs e GCs (Figura 2).
NOTA: Uma avaliação estatística deve incluir um mínimo de três réplicas de diferentes culturas de células. Nesta configuração experimental, um teste t ou a ANOVA de uma via foi realizada após a verificação de normalidade e variância.
Resultados
Embora TCs e GCs tenham sido isolados usando técnicas de separação mecânica bem estabelecidas baseadas na compartimentalização folicular, a expressão de genes específicos do tipo de célula CYP17A1 e CYP19A1 foi avaliada para eliminar o risco de contaminação cruzada. CYP17A1 foi expresso exclusivamente em CTs recém-isolados, enquanto CYP19A1 foi predominantemente expresso em CGs recém-isolados (Figura 2).
O sistema de co-cultura permite a compartimentalização das células da teca e da granulosa bovina em lados opostos de uma inserção de membrana, mimetizando assim a organização espacial in vivo. Após três dias em cultura, os TCs exibiram uma morfologia achatada e alongada à medida que se espalhavam pela superfície da membrana de inserção revestida de colágeno, indicando uma fixação bem-sucedida (Figura 3A). Quando cultivados sozinhos durante todo o período de 9 dias, os TCs continuaram a proliferar e atingiram a confluência no dia 9 (Figura 3B). Em contraste, os GCs cultivados sozinhos por 6 dias na membrana de inserção revestida com colágeno desenvolveram um fenótipo semelhante ao fibroblasto, que é característico dos GCs in vitro ( Figura 3C ). Além disso, como descrito anteriormente, os GCs tendiam a formar clusters, uma característica típica dessas células em cultura 5,7,31,32. No sistema de co-cultura, não foram observadas diferenças morfológicas aparentes em TCs ou GCs quando comparados às suas respectivas monoculturas pareadas no tempo (Figura 3D), indicando que o ambiente baseado em inserção mantém o comportamento celular normal. No entanto, devido a limitações técnicas, a avaliação microscópica da co-cultura permanece desafiadora, particularmente na distinção e avaliação da morfologia do CT independentemente das outras células. Para superar essas limitações, um protocolo otimizado para fixação celular está sendo abordado de acordo com a exploração de estratégias alternativas para identificação celular na ausência de anticorpos específicos para imunocoloração.
A funcionalidade do sistema de co-cultura foi avaliada pela análise da produção hormonal e da expressão de genes-marcadores chave para TCs e GCs33,34, confirmando os papéis esteroidogênicos específicos do tipo de célula. Uma comparação entre o modelo de monocultura de GC e o modelo de cocultura revelou níveis semelhantes de estradiol (E2) produzidos in vitro. No entanto, como esperado, a monocultura de TC produziu apenas quantidades insignificantes de E2, consistente com a hipótese de 2 células-2-gonadotrofinas (Figura 4A) 15, que afirma que as células tecas não têm a capacidade de sintetizar E2 de forma independente.
Para avaliar ainda mais a relevância fisiológica das condições de cultivo, a expressão de genes-marcadores chave33 foi examinada. De acordo com a hipótese de 2 células-2-gonadotrofinas, a CYP19A1 foi predominantemente expressa em GCs, enquanto a CYP17A1 foi detectada principalmente em TCs, um padrão observado em condições de mono e co-cultura (Figura 4B, C). Notavelmente, a abundância de transcritos de CYP19A1 foi maior em GCs dentro do sistema de co-cultura em comparação com a monocultura de GC, apesar de não terem sido observadas diferenças nas concentrações de estradiol.
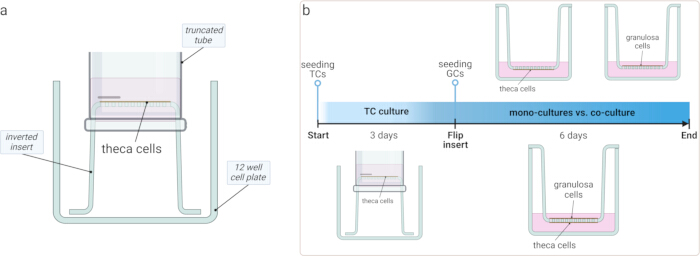
Figura 1: Representação esquemática da configuração da cultura de células. (A) Um diagrama ilustrando a câmara de inoculação personalizada, que utiliza um tubo truncado no inserto invertido para evitar vazamento de meio durante o período inicial de cultura. (B) Linha do tempo do procedimento experimental: Os TCs foram cultivados no inserto invertido por três dias para permitir a fixação. A inserção foi invertida e os GCs foram semeados no lado oposto, seguidos por mais seis dias de cultura. O estudo comparou TCs e GCs cultivados separadamente ao sistema de co-cultura TC-GC. Clique aqui para ver uma versão maior desta figura.
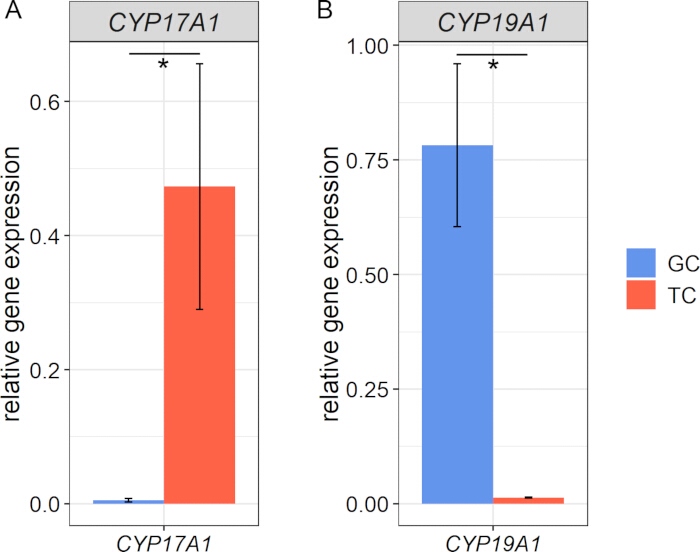
Figura 2: Expressão gênica de marcadores específicos do tipo de célula em células da granulosa e teca recém-isoladas. (A) CYP17A1 foi expressa exclusivamente em TCs, enquanto (B) CYP19A1 foi predominantemente detectada em GCs, confirmando a especificidade e pureza inicial das populações de células isoladas antes do cultivo. Os dados são apresentados como expressão relativa normalizada para a média geométrica dos genes de referência RPLP0 e TBP. As médias e o erro padrão das médias são mostrados, os dados foram testados quanto à normalidade e variância, os asteriscos indicam diferenças significativas (n = 3, teste t). Clique aqui para ver uma versão maior desta figura.
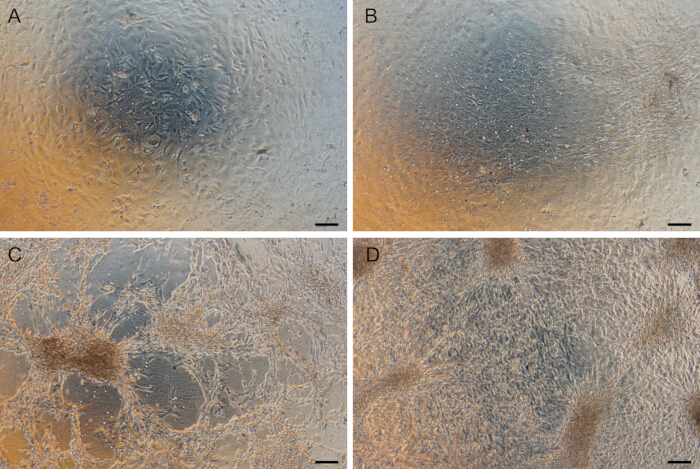
Figura 3: Morfologia das células da teca e da granulosa em cultura. (A) Os TCs cultivados por 3 dias foram anexados à membrana de inserção revestida com colágeno. (B) Os TCs cresceram até a confluência após todo o período de 9 dias na monocultura. (C) Os GCs exibem o fenótipo típico semelhante a fibroblastos após 6 dias em cultura. (D) A co-cultura de TCs e GCs não mostra diferença morfológica aparente em comparação com as respectivas monoculturas pareadas no tempo. Esta imagem foi tirada após 6 dias de cultura de GC e 9 dias de cultura de TC (no ponto final do experimento de co-cultura). Barras de escala de 100 μm. Clique aqui para ver uma versão maior desta figura.
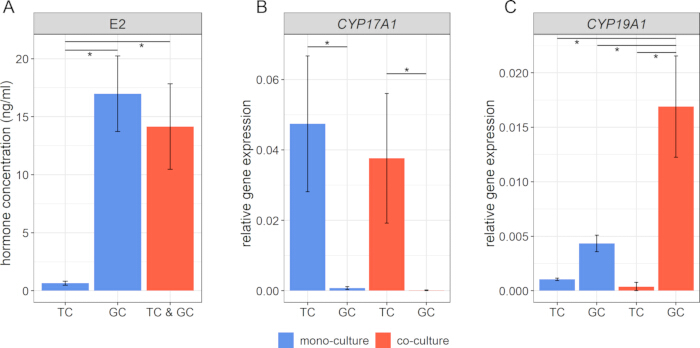
Figura 4: Análise de marcadores funcionais no sistema de co-cultura. (A) As concentrações hormonais de estradiol (E2) confirmam a funcionalidade fisiológica do sistema de cultura celular. (B, C) A análise da expressão gênica do marcador TC CYP17A1 e do marcador GC CYP19A1 demonstra a identidade e o estado funcional de ambas as populações celulares. A média geométrica dos genes de referência RPLP0 e TBP foi utilizada para calcular a expressão relativa. As médias e o erro padrão das médias são mostrados, os dados foram testados quanto à normalidade e variância, os asteriscos indicam diferenças significativas (n = 3, ANOVA de uma via). Clique aqui para ver uma versão maior desta figura.
Discussão
O pré-requisito para realizar este modelo de co-cultura é um isolamento bem realizado de ambos os tipos de células para evitar qualquer contaminação cruzada. A pureza de ambas as preparações celulares foi avaliada pela expressão gênica do marcador específico de TC CYP17A1 e do marcador específico de GC CYP19A1. Como mostrado anteriormente, a técnica de isolamento de GC e CT não mostrou contaminação cruzada relevante30.
Este modelo de co-cultura permite a cultura simultânea de células da teca e da granulosa em lados opostos de uma membrana, mimetizando sua organização espacial dentro do folículo e apoiando o estado fisiológico de ambas as populações de células3. A validade do modelo é reforçada por seu perfil de produção hormonal e padrões de expressão gênica que se alinham com a hipótese de 2 células-2-gonadotrofinas15. Como esperado, os baixos níveis de estradiol na monocultura de CT confirmam que as células teca sozinhas são incapazes de sintetizar estradiol, apoiando o conhecimento estabelecido da esteroidogênese folicular35. Apesar da maior expressão de CYP19A1 em GCs co-cultivados, os níveis de estradiol permaneceram comparáveis à monocultura de GC, sugerindo a influência de mecanismos regulatórios como disponibilidade de substrato, inibição de feedback ou diferenças na atividade enzimática. Uma exploração mais aprofundada das vias de sinalização e dos mecanismos subjacentes é necessária, como assunto para estudos futuros. No entanto, o estabelecimento de um sistema funcional de co-cultivo de CTs e GCs bovinos é imperativo, conforme previsto neste estudo. O presente estudo enfocou a produção de estradiol e os níveis de expressão de mRNA de CYP17A1 e CYP19A1 como indicadores-chave da funcionalidade do modelo de co-cultura. Ambos representam marcadores sensíveis da função das células da granulosa e da teca 4,8,36 e estão diretamente alinhados com a hipótese de 2 células-2-gonadotrofinas15. Embora reconheça a importância da expressão proteica, a falta de anticorpos confiáveis impediu sua avaliação precisa; portanto, uma análise abrangente dos níveis de proteína estava além do escopo desta investigação inicial.
Em geral, este modelo é um desenvolvimento adicional do modelo tradicional de cultura 2D, que imita parcialmente a estrutura do folículo ovariano3. Os resultados suportam um estado fisiológico de ambos os compartimentos celulares revelado pela expressão de marcadores sensíveis para a fisiologia GC e TC.
Uma vantagem sobre os modelos tradicionais de cultura 2D é facilitar as interações parácrinas entre as células da teca e da granulosa, mantendo sua separação espacial, imitando melhor a estrutura folicular in vivo. Em contraste, os sistemas de co-cultura no prato, onde TCs e GCs são misturados em um único poço, carecem dessa organização estrutural. Estudos que utilizam tais sistemas comumente aplicaram uma relação GC:TC de 4:1 19,20,21, mas essa abordagem não reflete a compartimentalização encontrada in vivo e, portanto, pode não ser viável para analisar a troca de substrato. Além disso, as alterações encontradas no nível celular não podem ser facilmente detectadas, quando essa mistura GC-TC precisa ser classificada de maneira complexa.
Modelos tridimensionais de co-cultura para células da granulosa e teca permanecem escassos, mas as primeiras tentativas mostraram resultados promissores. O grupo de Kotsuji 22,23,24,37 descreveu anteriormente a interação das células da granulosa e da teca em cultura usando uma membrana de colágeno como separador físico. No entanto, esse sistema dependia de uma membrana de colágeno personalizada, tornando a reprodutibilidade e a padronização desafiadoras. Em contraste, o modelo de co-cultura apresentado se beneficia de inserções de cultura suspensas disponíveis comercialmente, que aumentam a reprodutibilidade, padronização e qualidade do produto, garantindo uma aplicabilidade mais ampla em todos os laboratórios. Embora o modelo aqui apresentado tenha resultado em maior produção de estradiol do que os modelos anteriores, a comparação desses modelos é difícil, pois carece de unidade de suplementos de cultura celular, principalmente as concentrações utilizadas26 ou o uso adicional de IGF-1 22,23,24,37.
Uma das etapas mais cruciais do procedimento é a cultura de TCs dentro da câmara de inoculação. Garantir que a câmara seja colocada com segurança no inserto invertido é essencial para evitar vazamento de mídia, o que poderia comprometer a fixação e a sobrevivência do TC. Portanto, é aconselhável pressionar firmemente a câmara de inoculação no inserto invertido com a ajuda de uma pinça e inspecionar visualmente a colocação da câmara de inoculação. Além disso, remover a câmara de inoculação e inverter o inserto após três dias requer precisão técnica. Algum treinamento de habilidade pode ser necessário para executar esta etapa sem interromper e/ou danificar as células anexadas. Outra consideração importante é a densidade de semeadura dos GCs. Maior densidade celular excedendo os níveis ideais de 1,0 x 10⁵ células por inserção pode levar à diferenciação de GCs, afetando potencialmente a produção esteroidogênica. Além disso, o método de criopreservação apresentado rendeu viabilidade após descongelamento de 80-90% para ambos os tipos celulares.
Embora o modelo descrito ofereça um sistema fisiológico e reprodutível para estudar as interações das células da granulosa e da teca, algumas limitações devem ser consideradas. O método também é adaptável a outras espécies; no entanto, as diferenças específicas da espécie podem exigir a otimização dos parâmetros da cultura de células, como densidades celulares, tempo ou composição do meio. A escalabilidade deste modelo é limitada à disponibilidade das inserções de cultura de células, mas pode ser suficiente para a maioria dos estudos efetores. Finalmente, este modelo de co-cultura é mais um passo para imitar a situação in vivo do folículo, mas ainda carece de toda a complexidade do folículo ovariano.
Em conclusão, o modelo apresentado pode ser facilmente modificado para acomodar diferentes necessidades experimentais, como estender o período de cultura, ajustar o número ou proporção de células ou incorporar fatores adicionais. Com o desenvolvimento, este sistema representa uma ferramenta valiosa para estudar a função folicular, a esteroidogênese e a sinalização celular entre os dois compartimentos celulares. Além disso, possui potencial para aplicações em toxicologia reprodutiva, fornecendo uma plataforma controlada para avaliar o impacto de diferentes compostos nas células foliculares.
Divulgações
Todos os autores declaram não ter conflitos de interesse.
Agradecimentos
Gostaríamos de expressar nossa gratidão a Veronica Schreiter, Maren Anders e Olivier Seidel por sua excelente assistência técnica. Além disso, gostaríamos de agradecer ao matadouro comercial "DANISH CROWN Teterower Fleisch GmbH" (Alemanha), de quem obtivemos os ovários para este estudo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 10x Hank's Solução Salinal Balanceada HBSS (w Mg/Ca, Vermelho de Fenol) | Bio & Vender | BS. L201-10 | dissolver em água ultrapura; ajustar o pH para 7,4 da solução de digestão (HBSS e HEPES) e realizar filtração estéril antes de usar |
| Agulha 18 G, 40 mm, diâmetro 1,2 mm | Roth | 281T.1 | agulha descartável, atalho |
| Seringa de 3 ml (Omnifix Luer) | Roth | LY22.1 | |
| acutase | Merck | Rolamento A6964 | filial da empresa: Sigma-Aldrich |
| anfotericina B (250 µ g/ml) | Bio & Vender | BS. AB17.01050 | |
| androstenediona | Merck | 46033 | utilizamos uma solução reserva de 10 mM, diluída em etanol a 100%; filial da empresa: Supelco |
| binóculo Carl Zeiss Technival2 | Carl Zeiss Jena | não aplicável | usado em conjunto com a luz incidente Schott KL 1600 LED |
| BSA (5%) | Merck | Resposta 3311 | filial da empresa: Sigma-Aldrich |
| filtro de células (100 µ tamanho do poro m) | Sarstedt | 83.3945.100 | Encaixe em tubos de centrifugação de 50 ml |
| colágeno R (0,2%) | Serva | 47254 | |
| Colagenase NB8 (10%) | Nordmark | S1745601 | |
| Recipiente de congelamento de células CoolCell LX | Merck | CLS432002 | produto da Corning |
| Frascos para injetáveis de criopreservação (2 ml) | TPP Fausto | TPP89020 | |
| prato de cultura, 12 poços, fundo plano | TPP Fausto | TPP92112 | |
| prato de cultura, 24 poços, fundo plano | TPP Fausto | TPP92424 | |
| prato de cultura, 6 poços, fundo plano | TPP Fausto | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS sem Ca2+, Mg2+ | Bio & Vender | BS. L182-10 | dissolver em água ultrapura e autoclave antes de usar |
| estradiol, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| soro fetal de bezerro (FBS Superior stabil) | Bio & Vender | FBS. S0615 | |
| FSH (~ 7.000 UI / mg; da hipófise humana) | Merck | F4021 | preferimos usar uma solução estoque de 2 µ g/ml, diluído em NaCl a 0,9 %; filial da empresa: Sigma-Aldrich |
| inserções de cultura de células suspensas (0,4 µ tamanho do poro m) | cellQART | 9320412 | ao fazer o pedido, esteja ciente das diferentes propriedades das pastilhas; preferimos uma membrana PET transparente para microscopia de contraste de fase |
| HEPES (1 M) | Roth | 9105.2 | ajustar o pH para 7,4 da solução de digestão (HBSS e HEPES) e realizar filtração estéril antes de usar |
| Holo-transferrina (bovinos) | Merck | T1283 | dissolver em água estéril; filial da empresa: Sigma-Aldrich |
| Mini Kit de RNA innuPREP 2.0 | IST innuscreen | 845-KS-2040250 | |
| insulina (10 mg/ml; do pâncreas bovino) | Merck | I0516 | dissolver em 1x PBS; filial da empresa: Sigma-Aldrich |
| L-Glutamina (200 mM) | Bio & Vender | BS. K0283 | |
| LR3-IGF-1 | Merck | I1146 | usamos uma solução estoque de 200 µ g/ml, dissolvido em HCl 10 mM e 1x PBS com 1 mg/ml BSA; filial da empresa: Sigma-Aldrich |
| Espectrofotômetro NanoDrop 1000 | ThermoScientific | não aplicável | Medição da concentração de RNA |
| NEA (100x) | Bio & Vender | BS. K0293 | |
| penicilina/estreptomicina (10.000 UI/10 mg/ml) | Bio & Vender | BS. Resposta A2213 | |
| água purificada, adequada para cultura de células | Merck | W3500 | filial da empresa: Sigma-Aldrich |
| Kit de síntese de cDNA SensiFAST | Biolinha | BIO-65054 | fornecido através do parceiro de distribuição BioCat |
| bicarbonato de sódio (7,5%) | Bio & Vender | BS. L1713 | |
| selenito de sódio | Merck | S9133 | dissolver em água estéril; filial da empresa: Sigma-Aldrich |
| termoagitador TS-100C | Fischer Scientific | 12357627 | usado em conjunto com o bloco HC18 (Cat.-No. 12337627) |
| α-MEM | Bio & Vender | BS. Rolamento F0915 |
Referências
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Reimpressões e permissões
