A amplificação in vitro estável das Células Germinativas Primordiais (PGCLCs), um modelo substituto derivado de células-tronco pluripotentes das células germinativas primordiais embrionárias, tem enfrentado desafios técnicos. Este protocolo suporta a expansão a longo prazo de PGCLCs em uma condição in vitro sem soro ou células da camada alimentadora.
Artigo de método
Cultura de longo prazo de células germinativas primordiais humanas semelhantes a células germinativas
Neste artigo
Resumo
Resumo
As células germinativas primordiais (PGCs) são precursoras comuns de todas as células germinativas masculinas e femininas. Os PGCs surgem em embriões de mamíferos peri-implantação e tornam-se precursores de células germinativas específicas de gênero após a diferenciação sexual do anlage gonadal. O modelo in vitro comumente conhecido como células semelhantes a PGC (PGCLCs), gerado a partir de células-tronco pluripotentes humanas, é um substituto útil dos PGCs embrionários humanos, proporcionando uma oportunidade única para explorar a gametogênese humana in vitro. O protocolo apresentado aqui suporta a expansão in vitro de longo prazo de PGCLCs humanos. PGCLCs recém-isolados são mantidos inicialmente em uma camada alimentadora STO e depois expandidos em uma condição livre de alimentador no extrato de membrana basal. Os PGCLCs de cultura de longo prazo (LTC-PGCLCs) podem ser enriquecidos com Classificação de Células Ativadas por Fluorescência (FACS) como células CD38-positivas e são prontamente amplificados para dezenas de milhões de células como cultura monótona pura, sem alimentador e sem soro, sem limitações aparentes, como senescência. É praticamente viável obter uma população pura de mais de 1 milhão de PGCLCs humanos a partir de alguns milhares de PGCLCs recém-isolados. A cultura de células LTC-PGCLC humanas é um modelo in vitro útil e conveniente para estudar a biologia e diferenciação de células germinativas humanas nas células germinativas a jusante.
Introdução
As células germinativas primordiais (PGCs) são os primeiros precursores de todas as células germinativas. Os PGCs humanos emergem do epiblasto posterior - presumivelmente células precursoras amnióticas não comprometidas - no início da pós-implantação, gastrulando embriões em 2-3 semanas de gestação 1,2,3,4,5,6,7. Para a especificação de PGCs humanos e de camundongos, as vias de sinalização ativadas pelas proteínas morfogenéticas ósseas (BMPs) e WNT3 desempenham papéis críticos 3,6. Enquanto a indução de três fatores de transcrição, BLIMP1, PRDM14 e TFAP2C, é necessária para a especificação de PGCs de camundongos, na especificação de PGC humano, o papel do PRDM14 é diminuído. SOX17, que é dispensável para a especificação de PGC de camundongo, mas indispensável para a especificação de PGC humano, é induzido pela sinalização BMP de maneira dependente exclusivamente de EOMES ou EOMES e TBXT 7,8,9. Os PGCs humanos migram do epiblasto posterior para o anlagen gonadal nas cristas genitais através do mesentério dorsal em 5-6 semanas de gestação 10,11,12,13,14,15,16. A migração humana de PGC pode ser impulsionada pela quimiotaxia, embora aguarde confirmação experimental. Os perfis transcriptômicos dos PGCs humanos migratórios não são idênticos aos dos PGCs de camundongos no mesmo estágio17,18. Por exemplo, os PGCs humanos expressam DAZL antes mesmo de seu assentamento no anlagen gonadal, enquanto os PGCs de camundongos expressam DAZL somente após seu assentamento gonadal9. Após o início da diferenciação sexo-específica das células somáticas gonadais, os PGCs também sofrem diferenciação para prospermatogonia (também conhecida como gonócitos) ou oogônia.
Como o acesso a PGCs embrionários humanos é extremamente desafiador devido a barreiras técnicas e éticas, o uso de células semelhantes a PGC (PGCLCs) derivadas de células-tronco pluripotentes está se tornando cada vez mais popular3. Os PGCLCs de camundongos se assemelham ao estágio pós-migração dos PGCs, caracterizado pela desmetilação avançada do DNA genômico global (gDNA), e são capazes de gerar espermatozóides e oócitos competentes para fertilização 19,20,21. Em contraste, os PGCLCs humanos se assemelham aos estágios iniciais dos PGCs embrionários com desmetilação global limitada do gDNA 7,22,23,24. Acumulam-se evidências de que os PGCLCs humanos, apesar de seu status relativamente imaturo, são capazes de diferenciação in vitro para estágios mais avançados de células germinativas semelhantes a oogônias25,26 ou prospermatogônia27.
Desde que Irie et al. publicaram a primeira geração de PGCLCs a partir de células-tronco pluripotentes humanas em 20157, vários laboratórios publicaram vários protocolos para a produção de PGCLC humano. Os primeiros protocolos padrão envolvem a formação de agregados celulares pluripotentes, que são frequentemente chamados de corpos embrióides 7,22,24,26,28,29. Os PGCLCs humanos podem ser produzidos usando vários protocolos baseados em agregados que compartilham perfis transcriptômicos comparáveis, todos os quais expressam fortemente os principais genes marcadores de PGC, como PRDM1, SOX17, TFAP2C, POU5F1 e NANOS3, enquanto a expressão do marcador de pluripotência SOX2 ou marcador PGC em estágio avançado DDX4 é comumente suprimida24. Tentativas bem-sucedidas também foram relatadas para produzir PGCLCs humanos a partir de culturas de células de monocamada para melhorar a escalabilidade e conveniência30. Embora o rendimento de PGCLCs seja relativamente pequeno, a produção bem-sucedida de PGCLCs humanos a partir de modelos in vitro derivados de células-tronco pluripotentes dos embriões em estágio de gastrulação contribui significativamente para a elucidação dos mecanismos de especificação da linha germinativa e desenvolvimento de PGC em estágio inicial 31,32,33,34,35,36.
Embora o rendimento e a qualidade dos PGCLCs humanos produzidos usando vários métodos de cultura de células tenham melhorado, a dificuldade técnica na expansão da cultura de células de PGCLCs humanos representa um obstáculo significativo para sua aplicação em experimentos que exigem grandes quantidades de populações de células homogêneas, como triagem química ou genética, bem como produção de estágios avançados de células germinativas26. Gell et al. relataram manutenção de PGCLCs humanos por até 21 dias em alimentadores de STO em um meio à base de FR10 contendo fator de células-tronco (SCF) e 2,5% de soro fetal de bezerro (FCS); no entanto, os PGCLCs tenderam a divergir da identidade semelhante ao PGC para outros tipos de células que podem não ser relevantes para o desenvolvimento de células germinativas37. Murase et al. eliminaram repetidamente essas células indesejadas da cultura por FACS a cada passagem e mostraram que os PGCLCs humanos são capazes de manter seu potencial de proliferação a longo prazo in vitro38. Mais tarde, Murase et al. relataram amplificação bem-sucedida de PGCLCs humanos em um meio contendo 2,5% de FCS39, mas seu método requer as células da camada alimentadora m220-5, que são subclones resistentes a MMC de emergência espontânea das células embrionárias de camundongo m220 que expressam a forma ligada à membrana de SCF de camundongo de um vetor exógeno40. A partir de hoje, as células m220-5 ainda não foram depositadas em um repositório acessível ao público. Assim, continua sendo um grande desafio expandir a cultura de PGCLC humano in vitro para um grande número de células homogêneas, mantendo suas características semelhantes às de PGC em uma condição simples que não requer um recurso de célula alimentadora não padronizado e é livre de reagentes de origem animal, cuja eficiência pode variar entre diferentes lotes.
Para superar o obstáculo técnico acima,foi desenvolvido um método que permite a expansão in vitro a longo prazo de PGCLCs humanos como uma população de células homogêneas, mantendo as características semelhantes às PGC em uma condição livre de células do soro ou da camada alimentadora. Como os PGCLCs humanos expressam telomerase, essas células se amplificam a uma taxa constante, sem sinais de senescência ou desvio de outros tipos de células por pelo menos 150 dias. Os PGCLCs de cultura de longo prazo (LTC-PGCLCs) mantêm suas características transcriptômicas semelhantes às PGC humanas, embora seu gDNA global seja modestamente desmetilado após passagens repetidas. LTC-PGCLS são prontamente convertidos em células semelhantes a células germinativas embrionárias pluripotentes (EGCLCs), restaurando o transcriptoma semelhante a iPSC e o metiloma gDNA, embora a restrição alélica impressa da expressão do RNA H19 seja perdida. LTC-PGCLCs também são capazes de se diferenciar em células que expressam DAZL semelhantes a prospermatogonia na cultura organoide xenobiótica xrTestis27. Assim, o modelo LTC-PGCLC humano representa um novo tipo de recurso de cultura de células relevante para a pluripotência e mantido de forma estável que retém permanentemente as características biológicas dos PGCLCs e é facilmente expandido in vitro como uma linha celular estável.
Este artigo descreve o método de adaptação da população pura recém-isolada e enriquecida com FACS de PGCLCs humanos para cultura de manutenção de longo prazo sem soro por meio do suporte temporal pelas células da camada alimentadora STO padrão e, em seguida, em uma condição livre de alimentador no Extrato de Membrana Basal (BME). Este método suporta a expansão in vitro de PGCLCs humanos produzidos usando o protocolo dependente do corpo embrióide, conforme descrito anteriormente24 , 41 , 42 ou relatado por Sasaki et al22, e o método de cultura em monocamada relatado por Overeem et al30. Quando aplicado a PGCLCs humanos preparados conforme descrito41, uma população inicial de 10.000 células pode ser expandida para quase 1 x 10⁹ células em 1,5 a 2 meses com um tempo de duplicação da população de 4 a 4,5 dias41. A aplicabilidade deste método a PGCLCs humanos produzidos por outros métodos também é esperada.
Protocolo
1. Preparação de meios de cultura celular
- Prepare o meio conforme descrito na Tabela 1, Tabela 2, Tabela 3 e Tabela 4. Armazene alíquotas dessas mídias congeladas.
- Prepare o meio basal PGCLC conforme descrito na Tabela 1. Faça alíquotas de 40 mL e armazene a -20 °C por 6 meses. Prepare o meio STO 1 conforme descrito na Tabela 2. Armazene alíquotas de 50 mL em tubos de centrífuga de 50 mL a 4 °C por 1 mês.
- Prepare o meio STO 2 conforme descrito na Tabela 3. Use imediatamente. Prepare o meio de armazenamento de células STO tratadas com mitomicina-C (MMC-STO) conforme descrito na Tabela 4. Armazene alíquotas de 10 mL a -20 °C por 6 meses.
CUIDADO: Como o dimetilsulfóxido é considerado perigoso (líquido combustível), ele deve ser mantido longe do calor, faíscas, chamas abertas ou superfícies quentes. Siga o protocolo regulatório local para seu descarte.
2. Preparação de células STO tratadas com MMC
NOTA: O tratamento MMC de células STO inativa sua atividade de proliferação sem prejudicar significativamente sua viabilidade. As células MMC-STO são usadas como células da camada alimentadora durante a cultura inicial de PGCLCs humanos (etapa 4), bem como a fonte do meio condicionado livre de células (etapa 3).
- Cultive células STO em meio STO 1 em quatro placas P15 até perto da confluência. Troque o meio STO 1 a 23 mL / prato. Adicione 23 μL / prato de concentração de 10 mg / mL MMC diretamente ao meio até uma concentração final de 10 μg / mL.
- Agitar bem e incubar a 37 °C numa incubadora de CO2 durante 4 h.
CUIDADO: A MMC é fatal se uma grande quantidade for ingerida e é suspeita de ser cancerígena. O manuseio e o descarte deste composto devem seguir os protocolos regulatórios locais. - Lave as células com 20 mL / prato PBS de Dulbecco (livre de Ca / Mg) 2x em temperatura ambiente.
- Dissocie as células com 4 mL / prato de TrypLE Express em uma incubadora de CO2 por 2 min. Suspenda as células em uma suspensão de célula única por pipetagem suave.
- Transferir duas placas de suspensão celular (8 ml) para um tubo de centrifugação de 50 ml contendo 30 ml de meio STO gelado-1. Repita para os outros dois pratos para fazer dois tubos de suspensão de células de 38 mL.
- Conte as células na presença de azul de tripano a 0,2% para avaliação da viabilidade celular usando um hemocitômetro ou contador de células automatizado.
- Centrifugar as células a 300 x g durante 5 min a 4 °C. Descarte o sobrenadante. Ressuspenda os grânulos celulares em meio de armazenamento de células congeladas geladas para 5 x 10⁶ células / mL.
- Prepare alíquotas de 1 mL de células STO tratadas com MMC nos frascos criogênicos. Congele as células lentamente em uma caixa de isopor ou em um dispositivo de congelamento lento e armazene a -80 °C por até 12 meses.
3. Preparação do meio condicionado STO (S-CM)
NOTA: O meio condicionado livre de células das células MMC-STO (preparado na etapa 2) suporta a sobrevivência e proliferação de PGCLCs humanos enquanto reprime seu desvio para células que perdem características semelhantes a PGC.
- Dia 1: Descongele as células STO tratadas com MMC de estoques congelados e inocule 5 x 10⁶ células em um prato P10 revestido com gelatina com 10 mL / prato STO-meio 2. O tamanho típico de um lote consiste em 4 a 8 pratos P10. Incubar as células a 37 °C numa incubadora de CO2 durante a noite.
- Para revestir os poços com gelatina, adicione 1 mL / poço de gelatina a 0,1% e incube em temperatura ambiente por pelo menos 20 min. Aspire o excesso de solução de gelatina e deixe os poços abertos no gabinete de biossegurança até secar. Armazene os artigos de plástico revestidos de gelatina em temperatura ambiente por 2 semanas ou a 4 ° C por 3 meses.
- Descongelar alíquotas do meio basal PGCLC a 4 °C durante a noite.
NOTA: Não é recomendado descongelar este meio mais rapidamente a uma temperatura mais alta. Não conservar o meio basal de PGCLC a 4 °C durante mais de 1 semana. - Dia 2: Remova e descarte o STO-medium 2. Lave as células com DPBS quente (~ 10 mL / prato) seguido de uma lavagem com PGCLC basal quente Adicione PGCLC basal médio quente (12 mL / prato) e incube as células a 37 ° C em uma incubadora de CO2 durante a noite.
- Dia 3: Colete todo o meio condicionado em um tubo de centrífuga de 50 mL. Repita o meio basal PGCLC (12 mL / prato) e incubação para coleta do meio condicionado no dia seguinte da mesma cultura de células STO. Centrifugar o meio condicionado recolhido a 300 x g durante 5 min a 4 °C. Fazer alíquotas de 10 ml do sobrenadante (S-CM) em tubos de centrífuga de 15 ml. Não tome os últimos 3 mL do meio restante no fundo dos tubos de 50 mL para evitar a contaminação das células MMC-STO em S-CM. Conservar as alíquotas a -80 °C durante um período máximo de 6 meses.
- Dia 4: Colha S-CM repetindo a etapa 3.4 todos os dias até que a cultura em monocamada MMC-STO se deteriore após 5-6 dias de cultivo em meio basal PGCLC. Pare de colher quando 25% ou mais células estiverem separadas do prato.
4. Adaptação de PGCLCs humanos à cultura de longo prazo
- Cultura de PGCLCs humanos recém-isolados na camada alimentadora MMC-STO. Preparar PGCLCs humanos usando um método publicado anteriormente (Mitsunaga et al.24; Kobayashi et al.41). Protocolos detalhados de indução de PGCLC humano também foram publicados 42,43.
- Após a amplificação inicial por até 28 dias, mantenha os PGCLCs como LTC-PGCLCs no BME como uma cultura livre de alimentador. Ao longo dessas duas etapas da cultura de PGCLCs, use o meio condicionado por STO (S-CM, preparado na etapa 3) com suplementação de SCF, mas não inclusão de FCS. O inibidor de ROCK é necessário apenas imediatamente após a passagem.
NOTA: Como BME, o Matrigel de grau ESC foi usado em nosso laboratório. Outros produtos comerciais não apoiaram a expansão de longo prazo dos LTC-hPGCLCs. - Dia 1: Inocular células da camada alimentadora de STO tratadas com MMC em placas de 6 poços revestidas com gelatina a 8 x 10⁴ células/cm2 com 3 mL/poço STO-meio 2. Incubar a camada de alimentação a 37 °C numa incubadora de CO2 durante a noite.
- Dia 2: Descarte o meio STO da cultura e lave as células com MEM de Dulbecco quente (sem soro), 3 mL / poço. Adicione 3 mL / poço de S-CM recém-suplementado com 0,1 mM de 2-mercaptoetanol, 50 μg / mL de ácido ascórbico, 100 ng / mL de SCF recombinante humano e 10 μM de Y-27632. Inocular 500 a 2.000 PGCLCs humanos recém-isolados na camada alimentadora STO em cada poço. Incubar as células a 37 °C numa incubadora de CO2 durante a noite.
NOTA: A presença de soro, mesmo em baixas concentrações, tende a causar o surgimento de tipos indesejados de células de PGCLCs humanas41. O crescimento de PGCLCs humanos é estritamente dependente do SCF41. O Y-27632 suporta a sobrevivência de PGCLCs humanos unicelulares no momento da inoculação, mas não é necessário durante a cultura de manutenção. Adicione 2-mercaptoetanol, ácido ascórbico, SCF e Y-27632 recentemente ao meio. Em um experimento típico, os PGCLCs são inoculados em todos os poços de uma placa de 6 poços. Se um número maior de PGCLCs estiver disponível como material de partida, uma densidade mais alta de até 10.000 PGCLCs por poço é aceitável. - Dia 3: Substitua metade do meio (1,5 mL / poço) por S-CM quente recém-suplementado com 0,1 mM de 2-mercaptoetanol, 50 μg / mL de ácido ascórbico, 100 ng / mL de SCF recombinante humano, mas sem Y-27632. Não perturbe os PGCLCs, que podem ser destacados da camada de alimentação por um forte fluxo de meio.
- Dias 5 a 28: Repita a etapa 4.5 em dias alternados. Como os PGCLCs normalmente proliferam no tempo de duplicação da população de 4,5 dias41, pequenos grupos de PGCLCs surgem no dia 6-7 ou mais tarde (Figura 1A-D). Os clusters se tornarão mais evidentes no dia 14-15 (Figura 1E, F). Se aparecerem tipos indesejados de aglomerados celulares com características morfológicas anômalas que se desviam dos PGCLCs corretos, descarte os poços que contenham tais aglomerados ou tente eliminar as células anômalas usando a técnica de adesão diferencial descrita posteriormente na etapa 4.9.
- Quando os PGCLCs se expandem para formar aglomerados que cobrem mais de 20% da área de cultura (~ Dia 28), dissocie as células usando a solução de descolamento celular (CDS). Remova o S-CM dos poços da cultura PGCLC e adicione CDS pré-aquecido a 1 mL / poço sem lavar as células. Incubar as células a 37 °C em uma incubadora de CO2 por 5 min até que os PGCLCs se desprendam dos poços.
NOTA: Accutase é recomendado como CDS para dissociação leve. Não pré-aqueça o CDS a 37 ° C por mais de 5 min. O descolamento do PGCLC pode ser facilitado por pipetagem suave, mas os PGCLCs não precisam ser completamente dissociados em uma única suspensão celular. Pequenos agregados de PGCLCs podem aumentar a viabilidade. Se tipos indesejados de células surgirem e crescerem rapidamente, ajuste o tempo de incubação em CDS durante o descolamento celular para a coleta seletiva de PGCLCs, que tendem a se desprender mais cedo do que as células alimentadoras e a maioria dos tipos de células indesejadas. Se o surgimento persistente de tipos indesejados de células perturbar a expansão dos PGCLCs, tente remover as células indesejadas usando sua adesão mais rápida a poços revestidos de gelatina, conforme descrito na etapa 4.9. Como o enriquecimento de PGCLCs por FACS tende a perder uma porção significativa de PGCLCs vivos, reduza o tamanho da área da camada alimentadora de acordo. - Para interromper o descolamento celular por CDS, dilua a suspensão celular com 10x o volume de PGCLC basal quente Observe que a atividade enzimática de alguns CDS, como a Accutase, não é suprimida por inibidores séricos ou de tripsina. Descarte o sobrenadante e ressuspenda as células em 3 mL de S-CM quente recém-suplementado com 0,1 mM de 2-mercaptoetanol, 50 μg / mL de ácido ascórbico, 100 ng / mL de SCF recombinante humano e 10 μM de Y-27632.
- Inocular a suspensão celular em poços de placas de 6 poços revestidas com gelatina a 0,1% e incubar a 37 °C em uma incubadora de CO2 por 30 min para remover células MMC-STO (e tipos indesejados de células), que aderem rapidamente aos poços revestidos de gelatina.
NOTA: É recomendável inspecionar as células por microscopia de contraste de fase aos 20 minutos de incubação, bem como aos 30 minutos para avaliar a adesão das células alimentadoras. Pode ser necessário alongar o tempo de incubação para até 45 min. O uso de FACS ou MACS para eliminar células alimentadoras geralmente não é necessário, pois as células STO tratadas com MMC não podem proliferar e se deteriorar no S-CM. - Transfira PGCLCs esgotados de tipos anômalos de células para poços revestidos com matriz de membrana basal para iniciar a cultura de longo prazo sem alimentador de PGCLCs humanos. Para um único poço em uma placa de 6 poços, recomenda-se a inoculação de 1 x 10⁵ PGCLCs viáveis.
NOTA: Normalmente, é necessário agrupar hPGCLCs de até 6 poços para coletar 1 x 10⁵ PGCLCs viáveis (coloração com azul de tripano negativo) e semeá-los em um único poço para aumentar a densidade celular do inóculo. Se o número de PGCLCs colhidos não atingir 1 x 10⁵, use um tamanho menor de poço, como uma placa de 12 ou 24 poços para obter uma densidade de PGCLC relativamente alta. No momento da primeira subcultura, a maioria das células da camada alimentadora MMC-STO está deteriorada e não sobrevive ao procedimento de passagem. Um pequeno número de células MMC-STO viáveis é efetivamente removido pela técnica de adesão diferencial. Mesmo que algumas células MMC-STO estejam contaminadas em poços revestidos com BME, elas desaparecerão da cultura durante várias passagens. - Os PGCLCs humanos crescem como uma população de células altamente dispersa, sem sinais significativos de contato físico direto entre células individuais (Figura 1). Se surgirem aglomerados de células que apresentam interações intercelulares estreitas (Figura 2A), passar a cultura usando a técnica descrita na etapa 4.7. Uma vez por semana, a passagem (1:4) é normalmente suficiente.
NOTA: O enriquecimento FACS de PGCLCs humanos é normalmente desnecessário. No entanto, se as células anômalas indesejadas não puderem ser removidas efetivamente após a técnica de adesão diferencial repetida descrita na etapa 4.11, alguns ciclos de enriquecimento FACS de PGCLCs humanos como células CD38-positivas42,43 facilitam o estabelecimento de uma população pura de LTC-hPGCLCs. Exemplos de células anômalas derivadas de PGCLC crescendo em placas revestidas com BME na ausência de uma camada alimentadora são mostrados na Figura 3. É importante manter uma densidade relativamente alta de cultura de células PGCLC para reduzir o risco de induzir tipos indesejados de células.- Preparar pratos revestidos com BME como descrito anteriormente 42,43. Descongele o BME no gelo em uma geladeira ou câmara fria durante a noite. Não descongele o BME congelado em temperatura ambiente nem use banho-maria morno.
- Alíquota BME (~200 μL; o volume de uma alíquota é determinado pelo fabricante para cada lote e indicado no rótulo do frasco) em tubos de centrífuga de baixa ligação estéreis e pré-resfriados ou tubos de criopreservação de células em gelo. É importante manter o BME gelado durante a distribuição para evitar a solidificação. Armazenar as alíquotas a -80 °C.
- Dilua uma alíquota de BME com 25 mL de DMEM / F12 gelado e espalhe para três placas de 10 cm (~ 8 mL / prato) ou quatro placas de 6 poços (total de 24 poços, 1 mL por poço). Incube os pratos em temperatura ambiente por pelo menos 1 h. Após o revestimento, os pratos podem ser selados com filme transparente e armazenados em temperatura ambiente por até 1 semana.
- Aspire o meio da louça imediatamente antes de usar. Não é necessário lavar a louça revestida.
- Manter uma densidade relativamente alta de cultura LTC-PGCLC no BME para suprimir o surgimento de tipos indesejados de células. A passagem de PGCLCs é recomendada quando as células atingem mais de 25% de confluência. Metade do meio (1,5 mL/poço) deve ser trocada com S-CM quente recém-suplementado com 0,1 mM de 2-mercaptoetanol, 50 μg/mL de ácido ascórbico e 100 ng/mL de SCF recombinante humano.
NOTA: A inoculação de PGCLCs em uma densidade mais baixa aumenta o risco de produção de células indesejadas. Como o tempo de duplicação da população de PGCLCs humanos é de aproximadamente 4,5 dias41, a passagem semanal de rotina é tipicamente adequada para manter a cultura de longo prazo. A inclusão do inibidor de ROCK (Y-27632) é necessária somente após a passagem para melhorar a viabilidade do PGCLC. - Não perturbe os PGCLCs, que podem ser destacados da camada de alimentação por um forte fluxo de meio.
NOTA: Como os PGCLCs humanos expressam a telomerase, eles proliferam sem sinais aparentes de senescência, como encurtamento dos telômeros ou expressão da β-galactosidase associada à senescência41. - Quando os PGCLCs humanos obtiveram proliferação estável sem gerar quantidades significativas de tipos indesejados de células, examine suas características semelhantes ao PGC por meio do perfil de expressão de genes marcadores.
NOTA: Abordagens analíticas adequadas para a caracterização de cada célula única (como imunofluorescência, FACS ou RNA-seq de célula única) são incentivadas para avaliar a possível contaminação de tipos de células indesejadas. Se os resultados de tais análises apoiarem a natureza semelhante ao PGC dos PGCLCs, o estabelecimento de uma cultura LTC-hPGCLC é confirmado. - Armazene LTC-PGCLCs congelados em um meio de congelamento celular (1 x 10⁶ células / mL por frasco criogênico). A partir de um total de 10.000 PGCLCs humanos como material inicial, o rendimento total de 1 x 10⁶ PGCLCs é alcançável em 6 semanas. Coloque uma caixa de papel ou plástico contendo os frascos criogênicos em uma caixa de isopor hermeticamente fechada. Coloque a caixa selada em um freezer a -80 °C durante a noite para congelamento lento. Em seguida, coloque os frascos para injetáveis num congelador a -80 °C ou num tanque de azoto líquido.
- Para iniciar a cultura a partir de um frasco de células congeladas, siga os passos descritos abaixo.
- Descongele as células rapidamente em banho-maria a 37 °C com agitação manual, mantendo o fundo do frasco em água. Quando >80% do conteúdo estiver descongelado no frasco, seque o frasco com lenços de papel sem fiapos ou papel de laboratório equivalente e limpe a tampa com um cotonete embebido em álcool.
- Transfira as células para um tubo de centrífuga de 15 ml contendo meio basal PGCLC pré-aquecido (37 °C). Se pequenas células congeladas permanecerem no frasco, recupere-as com o meio basal PGCLC por pipetagem.
- Centrifugue as células imediatamente a 300 x g por 5 min em temperatura ambiente e remova o sobrenadante.
- Ressuspenda o pellet celular com 9 mL de S-CM pré-aquecido recém-suplementado com 0,1 mM de 2-mercaptoetanol, 50 μg / mL de ácido ascórbico, 100 ng / mL de SCF recombinante humano e 10 μM de Y-27632. Suspenda suavemente as células usando ponteiras de pipeta de 1.000 mL.
- Inocular 3 mL/poço em 3 poços da placa revestida com BME para iniciar a cultura. Agite suavemente as placas vertical e horizontalmente para uma distribuição uniforme das células. Evite movimentos circulares de agitação, pois tal movimento moverá as células para o centro dos poços. A viabilidade das células imediatamente após a recuperação de um estoque congelado é normalmente superior a 80%.
Resultados
Resultados representativos - Os PGCLCs normalmente formam aglomerados visíveis na camada alimentadora MMC-STO dentro de 2 semanas após a inoculação (Figura 1A-D). Demora aproximadamente 3-4 semanas até que os PGCLCs estejam prontos para a cultura sem alimentador. Como os PGCLCs mostram forte atividade citocinética, sua interação intercelular é fraca quando formam aglomerados na camada alimentadora (Figura 1E, F). PGCLCs saindo dos aglomerados são frequentemente observados (Figura 1F, pontas de setas vermelhas). Sem uma camada alimentadora, os LTC-PGCLCs crescem como células dispersas com poucos sinais de adesão intercelular, mesmo quando a densidade celular é alta (Figura 3). Cada LTC-PGCLC mantém a morfologia original do PGCLC humano recém-isolado, mostrando sinais de citocinese ativa. Quando as células se desviam das características morfológicas semelhantes às PGC emergem (Figura 2), o enriquecimento de PGCLCs pela técnica de adesão diferencial repetida geralmente melhora a qualidade da cultura. Se as células anômalas persistirem, o enriquecimento ocasional de PGCLCs por FACS como células CD38 positivas pode ajudar.
Uma publicação anterior identificou PGCLCs humanos como células positivas para PRDM1, positivas para TFAP2C, mas negativas para SOX241. Eles também expressam POU5F1, mas seus iPSCs precursores também expressam esse marcador de pluripotência41. É fortemente encorajado confirmar o rendimento em nível de célula única e os perfis de expressão de marcadores dos PGCLCs humanos em expansão nas primeiras oportunidades usando marcadores geneticamente induzíveis, imunofluorescência, FACs ou RNA-seq de célula única. No entanto, sem essas análises confirmatórias, o rendimento e a qualidade dos PGCLCs humanos na presença ou ausência das células alimentadoras podem ser convenientemente estimados usando a microscopia de contraste de fase padrão, conforme mostrado na Figura 1, Figura 2 e Figura 3.
Durante a cultura de longo prazo, os LTC-PGCLCs mantêm uma população de células homogênea contendo uma subpopulação de proliferação ativa, como demonstraram dados anteriores de RNA-seq de célula única41. O perfil transcriptômico dos PGCLCs originais é amplamente mantido, exceto que a expressão dos marcadores PGCLC em estágio inicial GATA2 e GATA3 é rapidamente perdida41. O nível global de metilação do DNA em iPSCs humanas é de aproximadamente 73% e diminui para cerca de 64% nos PGCLCs recém-produzidos41. O nível global de metilação do DNA diminui ainda mais em LTC-PGCLCs para cerca de 54% após 12 semanas de expansão in vitro 41. A maioria das características transcriptômicas e epigenéticas dos LTC-PGCLCs humanos são completamente revertidas para as dos iPSCs originais quando convertidos em células germinativas embrionárias pluripotentes, exceto que as marcas epigenéticas específicas do alelo em várias regiões de controle de impressão são apagadas em PGCLCs e nunca revertem41.
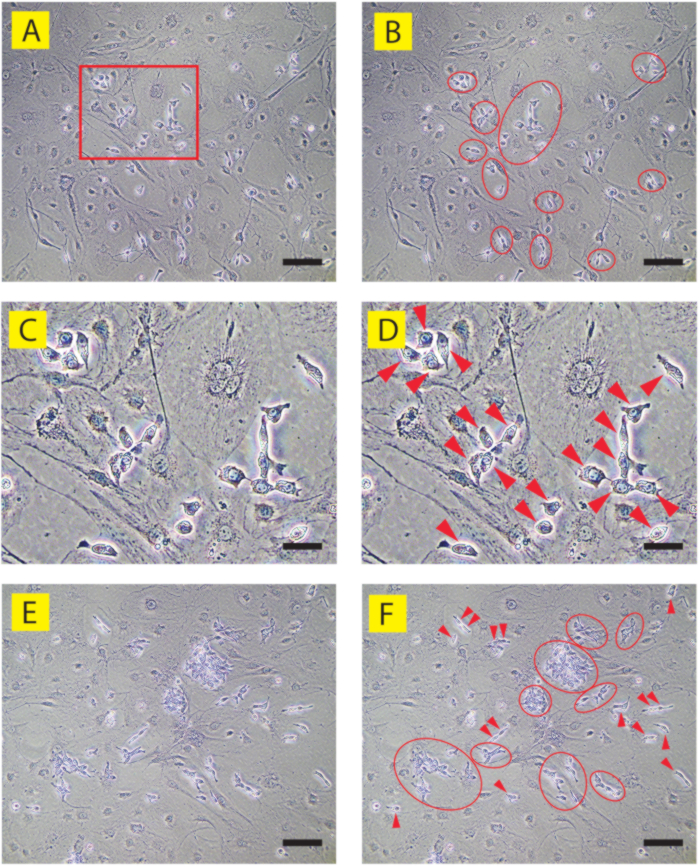
Figura 1: Imagens de contraste de fase de PGCLCs humanos corretos na camada alimentadora STO (clone iPSC humano 9A13). (A, C, E) são anotados em (B, D, F), respectivamente. (A-D) Dia 6 cultura. Uma parte de (A) mostrada em um retângulo vermelho é ampliada em (C, D). A maioria dos PGCLCs é observada como células dispersas que geralmente formam aglomerados soltos (ovais vermelhos). PGCLCs individuais (pontas de seta vermelhas) não formam contato próximo uns com os outros e são prontamente identificados sob microscopia de contraste de fase como células que se projetam das células alimentadoras de STO em deterioração, planas e amplamente espalhadas. (E, F) Dia 15 cultura. Vários grupos de PGCLCs são prontamente identificados (ovais vermelhos), enquanto o contato intercelular ainda é frouxo. Alguns PGCLCs são encontrados fora dos aglomerados, geralmente como duplets (pontas de setas vermelhas), refletindo sua proliferação ativa enquanto migram aleatoriamente sobre e entre a camada alimentadora altamente deteriorada. Barras de escala = 50 μm (A, B, E, F) ou 15 μm (C, D). Clique aqui para ver uma versão maior desta figura.
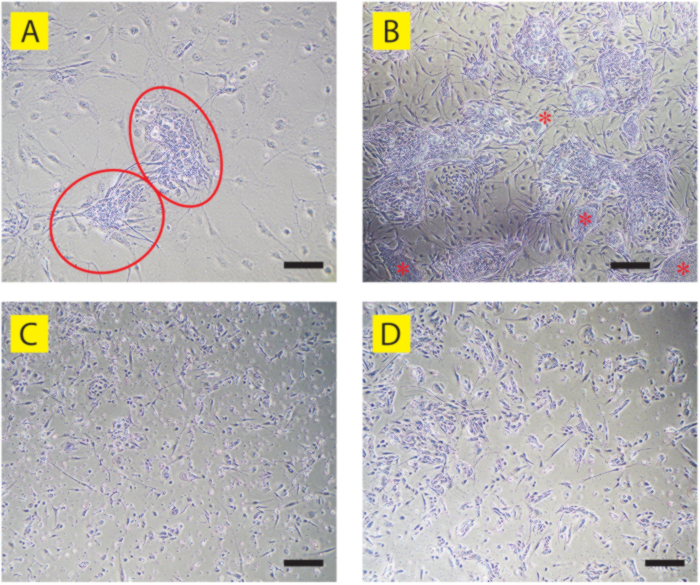
Figura 2: Imagens de contraste de fase de PGCLCs humanos que são desviadas das características semelhantes a PGC. (A) Dois aglomerados anômalos de PGCLCs (ovais vermelhos) apareceram na cultura do Dia 9 de PGCLCs 9A13 na camada alimentadora STO. Diferente dos clusters PGCLC corretos (ver Figura 1A-D), as células mostram forte contato intercelular que obscurece os limites de cada célula individual. (B) Cultura do dia 18 da cultura PGCLC humana mostrada em (A). Múltiplos clusters anômalos de PGCLC são observados, alguns dos quais mostram colônias densas semelhantes às iPSCs humanas precursoras (asteriscos vermelhos). Observe que a maioria das células alongadas semelhantes a fibroblastos encontradas entre os aglomerados também são células anômalas derivadas de PGCLC, enquanto a maioria das células alimentadoras de STO são deterioradas e desalojadas. (C) LTC-hPGCLCs (clone humano iPSC B6) mostrando morte celular maciça e morfologias anômalas em placas revestidas com BME e sem alimentador. (D) LTC-hPGCLCs que são amplamente desviados para células com morfologias anômalas em placas revestidas com BME e sem alimentador (clone iPSC humano T548). Compare esses LTC-hPGCLCs anômalos com os LTC-hPGCLCs corretos mostrados na Figura 3B. Barras de escala = 50 μm (A, B) ou 100 μm (C, D). Clique aqui para ver uma versão maior desta figura.
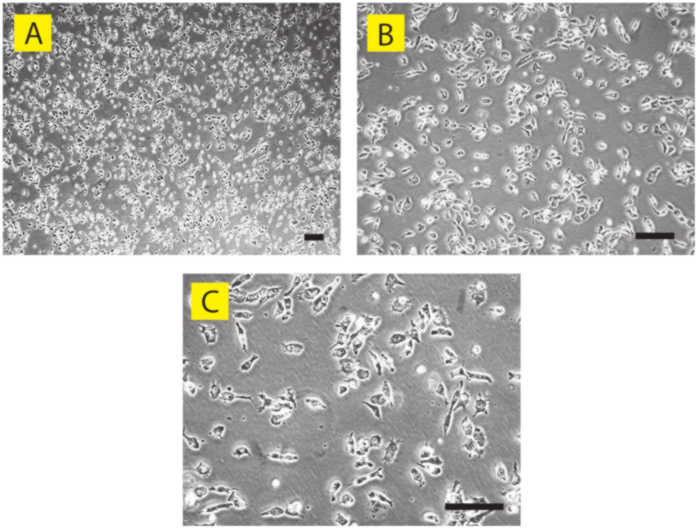
Figura 3: Imagens de contraste de fase de PGCLCs humanos corretos como cultura livre de alimentador (clone iPSC humano A4). A cultura sem alimentador do dia 56 de LTC-PGCLCs em placas revestidas com BME é mostrada em (A) baixa, (B) média e (C) alta ampliação. Embora a densidade celular seja relativamente alta, cada PGCLC individual não forma contatos intercelulares próximos, exceto para células que completaram recentemente a divisão celular. Devido à citocinese ativa, alguns PGCLCs apresentam morfologia alongada, enquanto outros são redondos. Barras de escala = 50 μm. Clique aqui para ver uma versão ampliada desta figura.
| PGCLC Meio Basal | |
| Ingredientes | Volume |
| MEM de Glasgow | 500 mL |
| Reposição de soro nocaute (KSR) | 75 mL |
| MEM NEAA (100X) | 6 mL |
| Piruvato de sódio (100X) | 6 mL |
| Penicilina-estreptomicina (100X) | 6 mL |
Tabela 1: PGCLC meio basal. Composição do meio basal do PGCLC (593 mL).
| STO médio 1 | |
| Ingredientes | Volume |
| MEM de Dulbecco | 445 ml |
| Soro fetal de bezerro | 50 mL |
| Penicilina-estreptomicina (100X) | 5 ml |
Tabela 2: STO médio 1. Composição do meio STO 1 (500 mL).
| STO médio 2 | |
| Ingredientes | Volume |
| MEM de Dulbecco | 47 ml |
| Soro fetal de bezerro | 2,5 ml |
| Penicilina-estreptomicina (100X) | 0,5 mL |
| FGF2 (200 μg/mL) | 2,5 μL |
Tabela 3: STO médio 2. Composição do meio STO 2, que é suplementado com FGF2 para aumento do crescimento de células STO (50 mL).
| Meio de armazenamento MMC-STO | |
| Ingredientes | Volume |
| MEM de Dulbecco | 42,5 ml |
| Soro fetal de bezerro | 5 ml |
| Dimetilsulfóxido | 2,5 ml |
Tabela 4: Meio de armazenamento MMC-STO. Composição do meio de armazenamento MMC-STO, que é usado para preparar estoques congelados de células alimentadoras STO tratadas com MMC (50 mL).
Discussão
O método de manutenção humana de PGCLC descrito neste artigo é relativamente simples, sem a necessidade de dispositivos específicos ou materiais não padronizados. Os métodos publicados anteriormente de manutenção de PGCLC humano requerem classificação FACS frequente devido ao desvio significativo de células do status semelhante ao PGCLC38. Esses métodos também requerem uma linha celular de camada alimentadora não padronizada (m220-5), que não está prontamente disponível em repositórios acessíveis ao público e internacionalmente39,40. A inclusão de FCS em seus meios introduz incerteza devido à dependência do desempenho de um lote específico do soro. Em contraste, o método atualmente apresentado obtém prontamente muitos milhões de PGCLCs humanos, que podem ser armazenados congelados mantendo alta viabilidade (> 90%), sem a necessidade de soro ou outros reagentes de origem animal. O protocolo requer a linha celular padrão da camada alimentadora STO, que está comumente disponível em muitos repositórios públicos. O método fornece um nível de conveniência sem precedentes para lidar com PGCLCs humanos como se fossem linhagens celulares convencionais. O fornecimento ilimitado de PGCLCs humanos alcançado usando este método ampliará o escopo das aplicações de PGCLC humano em áreas como produções experimentais de células germinativas humanas e/ou gametas, avaliações de distúrbios de células germinativas humanas, como infertilidade (incluindo tentativas de gametogênese in vitro) ou tumores de células germinativas, e avaliações toxicológicas de possíveis tóxicos de células germinativas.
O método exclui FCS no S-CM para minimizar o surgimento de tipos indesejados de células de PGCLCs humanos41. Vários clones de iPSC tenderam a produzir tipos indesejados de células durante o estágio dependente do alimentador ou posteriormente, e alguns deles tiveram que passar por duas ou três rodadas de purificação FACS de PGCLCs. No entanto, uma vez que a cultura LTC-PGCLC é estabelecida com mais de 50% de confluência, a necessidade de purificação do FACS é tipicamente diminuída. O crescimento de PGCLCs humanos in vitro é estritamente dependente da presença de SCF41. Se a taxa de crescimento dos LTC-PGCLCs diminuir, recomenda-se testar diferentes lotes ou reagentes SCF dos fabricantes. Como os PGCLCs humanos expressam telomerase, eles não experimentam senescência durante a expansão a longo prazo in vitro41. Ele tem sido usado com sucesso para estabelecer LTC-PGCLCs derivados de iPSCs humanas masculinas e femininas com várias origens étnicas41. Exemplos de aplicação bem-sucedida do método atualmente apresentado incluem clones iPSC humanos masculinos A4 e A5 (recém-nascido caucasiano), PGP1 (adulto caucasiano) e 9A13 (adulto japonês) e clones iPSC femininos ATCC-BXS0116 (caucasiano) e ATCC-BXS0115 / ACS-1029 (hispânico). A aplicabilidade geral deste método e dos marcadores de predição precisa ser estabelecida em estudos futuros.
A necessidade de purificação ocasional de FACS de PGCLCs humanos depende do clone precursor de iPSC. Enquanto alguns clones de iPSC nunca necessitaram de enriquecimento de FACS após o isolamento inicial de PGCLCs como células CD38-positivas, alguns PGCLCs tiveram que ser enriquecidos como células CD38-positivas até três vezes por FACS durante a fase dependente de alimentador. PGCLCs enriquecidos com FACS foram inoculados em alimentadores MMC-STO recém-preparados. O enriquecimento do FACS normalmente não é necessário em todas as passagens, uma vez que os PGCLCs iniciam a amplificação estável no BME sem o alimentador.
Dados detalhados sobre a proporção de células que mantêm as características semelhantes ao PGC versus células que se desviam para tipos de células indesejados para o clone iPSC individual em cada passagem não estão disponíveis no momento. Em geral, a cultura de LTC-hPGCLC é estabilizada após 2-4 semanas de cultura com passagem repetida. Quando os PGCLCs humanos tendem a gerar tipos indesejados de células, o método de adesão diferencial pode efetivamente enriquecer os PGCLCs, já que a maioria das células indesejadas tende a aderir à placa de cultura com mais força do que os PGCLCs. Se tentativas repetidas de adesão diferencial não ajudarem no enriquecimento de PGCLC, o enriquecimento FACS de PGCLCs humanos como células CD38-positivas geralmente elimina as células indesejadas e, posteriormente, o LTC-hPGCLC puro pode ser mantido usando apenas o método de adesão diferencial. Estabelecer uma cultura de longo prazo de PGCLCs humanos gerados usando o método 2-D descrito por Overeem et al. às vezes tem sido um desafio. No entanto, os mesmos PGCLCs humanos que ganharam resistência à apoptose por meio do nocaute CRISPR de genes pró-apoptóticos foram prontamente expandidos para LTC-hPGCLCs. Detalhes da compatibilidade deste método com cada iPSCs e PGCLCs humanos individuais precisam ser examinados em estudos futuros.
Enquanto as células da camada alimentadora STO tratadas com MMC inicialmente suportam a sobrevivência e a proliferação de PGCLCs humanos recém-isolados, os PGCLCs de proliferação rápida se expandem in vitro sem uma camada alimentadora, desde que sejam suportados pelo meio condicionado STO e revestimento BME das placas. O benefício exclusivo do método atualmente apresentado em relação a outras abordagens é a capacidade de estabelecer LTC-hPGCLCs como uma cultura livre de alimentadores. As células da camada alimentadora MMC-STO mostram sinais iniciais de deterioração no meio S-CM após 5-6 dias de cultivo. No dia 6-7 (Figura 1A-D), a camada alimentadora mostra danos modestos, que se tornam mais evidentes no dia 14-15 (Figura 1E, F). Na ausência das células alimentadoras, a taxa de sobrevivência de PGCLCs humanos recém-isolados é tipicamente baixa, aparentemente devido à sua baixa eficiência em aderir ao fundo das placas de cultura de células. Especula-se que as proteínas da matriz extracelular depositadas pelas células MMC-STO facilitem a adesão e sobrevivência das PGCLCs mesmo após a deterioração das células MMC-STO. Uma vez que o número de PGCLCs humanos se torna suficientemente grande para formar aglomerados visíveis no dia 14-15, a matriz extracelular depositada pelos próprios PGCLCs pode ser suficiente para suportar sua sobrevivência e proliferação. Apoiando essa suposição, a inoculação de PGCLCs humanos recém-isolados em alta densidade (por exemplo, 100.000 células em um poço de uma placa de 12 poços) para poços revestidos com BME sem alimentador geralmente inicia a expansão bem-sucedida da cultura LTC-hPGCLC. Por outro lado, o uso do meio condicionado MMC-STO é absolutamente necessário em toda a cultura de PGCLC humano, enfatizando a importância do condicionamento contínuo pelas células MMC-STO.
É importante manter uma densidade relativamente alta de cultura LTC-PGCLC no BME para suprimir o surgimento de tipos indesejados de células. Recomenda-se a passagem de PGCLCs com mais de 25% de confluência. A inoculação de PGCLCs em uma densidade mais baixa aumenta o risco de produção de células indesejadas. Como o tempo de duplicação da população de PGCLCs humanos é de aproximadamente 4,5 dias41, a passagem semanal de rotina é tipicamente adequada para manter a cultura de longo prazo. Se uma grande parte dos PGCLCs se desviar de suas características semelhantes às de PGC e se a técnica de adesão diferencial ou FACS for insuficiente para remover as células indesejadas, considere a inoculação da camada alimentadora de MMC-STO em poços revestidos com BME em vez de revestimento de gelatina e/ou cultura alongada de células MMC-STO para 3 ou 4 dias antes da inoculação de PGCLCs.
As características morfológicas e de expressão de marcadores entre os tipos de células indesejadas variam significativamente, embora possam ser prontamente identificadas sob a microscopia de contraste de fase padrão (Figura 2). As células que apresentam características de crescimento agregadas ou aparência achatada desviam-se das características semelhantes às do PGC. A expressão dos marcadores PGC padrão, como PRDM1 ou TFAP2C, é tipicamente diminuída em tais células indesejadas, embora critérios claros não estejam atualmente disponíveis para distinguir a população de células indesejadas da população de células convincentemente semelhante a PGC, o que pode ser confirmado por coloração de imunofluorescência, FACS ou RNA-seq de célula única. A partir de hoje, as identidades ou relevância dos tipos de células não-PGC que surgem durante a expansão dos LTC-hPGCLCs são desconhecidas.
Embora o método apresentado neste artigo use as células da camada alimentadora STO, as células SNL 76/7 também podem ser usadas para a produção do meio condicionado e da camada alimentadora. Algumas culturas de PGCLC foram capazes de se adaptar à cultura de longo prazo sem passar pela cultura dependente do alimentador, especialmente ao iniciar a cultura com um grande tamanho de inóculo (>100.000 células). Por outro lado, estabelecer uma cultura LTC-PGCLC pode ser um desafio quando o tamanho inicial é menor que 10.000 células. Embora os principais componentes do meio condicionado STO tenham sido descritos anteriormente, os componentes que suportam a expansão do PGCLC a longo prazo ainda não foram identificados44.
Divulgações
Os autores não têm conflitos de interesse a divulgar.
Agradecimentos
Este trabalho foi apoiado por bolsas do NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 e R21CA290650 para TS. A TS também é subpremiada com uma bolsa 63299 da Fundação John Templeton (PI, John McCarrey, Universidade do Texas, San Antonio). Uma parte do estudo apresentado também foi apoiada pelo James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Placas de cultura de células de 6 poços | Corning | 3506 | |
| Accutase | Tecnologias Celulares Inovadoras | AT104 | Armazene a -20 > C por 6 meses. |
| Pratos de plástico de 10 cm tratados com cultura de células (pratos P10) | Corning | 353003 | |
| Pratos de plástico de 15 cm tratados com cultura de células (pratos P15) | Corning | 353025 | |
| Frasco criogênico | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | Tecnologias STEMCELL | 7930 | Armazene a 4 ° C. |
| Dimetilsulfóxido | Fisher Científico | BP231-1 | Armazene em temperatura ambiente. Grau de cultura celular. |
| Dulbecco; s Solução salina tamponada com fosfato (livre de Ca/Mg) (DPBS) | Gibco | 14190144 | Armazene em temperatura ambiente. Grau de cultura celular. |
| Meio Essencial Mínimo de Dulbecco (MEM de Dulbecco) | Corning | 10-013-CM | Armazene a 4 ° C. nUse meio contendo 4,5 g / L de glicose, 1X L-glutamina e 1X piruvato de sódio. |
| Soro fetal de bezerro | Soro CPS | FBS-500 | Armazene a -20 > C por 12 meses. |
| Gelatina | Tecnologias STEMCELL | 7903 | 0,1% em água. Estéril. |
| Meio Essencial Miminum de Glasgow (MEM de Glasgow) | Gibco | 11710-035 | Armazene a 4 ° C. |
| Fator de crescimento de fibroblastos recombinantes humanos 2 (FGF2) | PeproTech | 100-18B | Armazene a -80 & C por 3 meses. |
| Fator de células-tronco recombinantes humanas (SCF) | PeproTech | 300-07 | Reconstitua em água seguindo as instruções do fabricante. Armazene a -80 & C por 3 meses. |
| Knockout Serum Replacementq | Gibco | 10828-028 | Armazene a -20 > C por 6 meses. |
| Matrigel (células-tronco embrionárias humanas qualificadas) | Corning | 354277 | |
| Meio essencial mínimo Aminoácidos não essenciais (MEM NEAA) | Gibco | 11140-050 | Armazene a 4 ° C. |
| Mitomicina-C (10 mM em água) | Millipore-Sigma | M5353 | Dissolva a mitomicina-C (MMC) em água e filtro estéril (tamanho de poro de 0,22 mM). Armazene alíquotas de 100 mL a -20 &graus; C por 6 meses. Para descongelar MMC congelado, descongele os cristais roxos em banho-maria quente (>60 & C) para solução roxo-escura. |
| Penicilina-estreptomicina (100X) | Gibco | 15140-122 | Armazene a 4 ° C. |
| Tubos de centrífuga de plástico (15 mL) | Corning | 352196 | |
| Tubos de centrífuga de plástico (50 mL) | Corning | 352070 | |
| Piruvato de sódio (100X) | Gibco | 11360-070 | Armazene a 4 ° C. |
| Fibroblastos embrionários de camundongo STO | ATCC | CRL-1503 | |
| Azul de tripano (0,4%) | Fisher Científico | T10282 | Armazene em temperatura ambiente. |
| TrypLE Express | Gibco | 12604-013 | Armazene em temperatura ambiente. |
| Y-27632 (10 mM em água) | Tocris | 1254 | Dissolva o Y-27362, que é um inibidor de ROCK, em água a 10 mM e filtro estéril (tamanho de poro de 0,22 mM). Armazene alíquotas de 100 mL a -20 &graus; C por 6 meses. |
Referências
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve