Aqui, descrevemos um protocolo in vitro para modelar danos por hipóxia/reoxigenação nas células epiteliais tubulares proximais, altamente metabólicas. Este modelo foi projetado para induzir danos induzidos por estresse metabólico, que podem ser medidos pela expressão de marcadores de dano dos túbulos proximais e avaliação da função respiratória mitocondrial.
Artigo de método
Modelagem de Hipóxia/Lesão por Reoxigenação em Células Epiteliais Tubulares Proximais
Neste artigo
Resumo
Resumo
O transplante renal representa aproximadamente 60%-65% de todos os órgãos sólidos transplantados. A maioria dos rins doados é obtida de indivíduos falecidos, exigindo preservação prolongada a frio, o que é conhecido por contribuir para maus resultados em transplantes. Apesar das estratégias atuais de preservação, a lesão por isquemia-reperfusão (IRI) continua sendo uma consequência inevitável da interrupção transitória do fluxo sanguíneo, levando à privação de oxigênio e nutrientes. Dentro do néfron, as células epiteliais tubulares proximais (PTECs) do segmento S3 são particularmente suscetíveis à IRI devido à sua alta demanda metabólica e dependência da fosforilação oxidativa mitocondrial. No nível molecular, o IRI interrompe o metabolismo mitocondrial e reduz a produção de ATP, comprometendo as necessidades energéticas das células epiteliais tubulares proximais (PTECs) e promovendo a apoptose e necrose. Para investigar esses mecanismos e avaliar potenciais estratégias terapêuticas, modelos robustos e reprodutíveis in vitro da IRI renal que recapitulem com precisão a vulnerabilidade metabólica dos PTECs são essenciais. Aqui, descrevemos um protocolo para indução e avaliação de lesões por hipóxia/reoxigenação (H/R) em PTECs imortalizados murinos (IM-PTECs). O protocolo inclui informações detalhadas sobre a composição do meio e as condições de cultivo necessárias para manter essas células, seguidas pela indução de lesão H/R por meio de hipóxia controlada e fases de reoxigenação que imitam de perto os eventos de isquemia e reperfusão em rins transplantados. Esse modelo oferece uma plataforma valiosa para avaliar os efeitos de diferentes intervenções nas células epiteliais renais expostas à lesão H/R. O impacto desses tratamentos pode ser avaliado por meio da análise da expressão dos marcadores associados ao dano da PT, bem como pela avaliação da função respiratória mitocondrial. Juntos, esses resultados oferecem insights mecanicistas sobre a eficácia dos compostos e os processos de recuperação celular, apoiando o desenvolvimento de terapias direcionadas para IRI renal.
Introdução
De acordo com o Observatório Global de Doação e Transplante, o transplante renal representa aproximadamente 60%-65% de todos os transplantes de órgãos sólidos no mundo, com o número de procedimentos realizados em 2023 sendo quase três vezes maior do que o dos transplantes de fígado, sendo este último o segundo tipo mais comum. Em 61% dos transplantes de rim realizados naquele ano, o órgão foi originado de doadoresfalecidos 1, o que envolve um período de preservação mais longo em comparação com transplantes de doadores vivos, onde o tempo de espera é significativamente menor2. Durante esse período de preservação, os rins geralmente são preservados usando armazenamento estático a frio para desacelerar o metabolismo celular, o que reduz a demanda por oxigênio e energia e, portanto, limita a lesãoisquêmica 3. No entanto, o armazenamento estático a frio oferece apenas proteção parcial, pois não pode sustentar totalmente o metabolismo celular ou a entrega de oxigênio, levando a disfunção metabólica progressiva durante apreservação 4,5. Alternativamente, a preservação normotérmica ex vivo surgiu como uma estratégia viável para manter o órgão em temperatura próxima à fisiológica, apoiando assim o metabolismo celular e a oxigenação, reduzindo consequentemente a lesão isquemia-reperfusão (IRI)6.
No entanto, durante o transplante renal, a lesão renal aguda (AK) causada pela IRI é uma consequência inevitável. A IRI resulta da interrupção do fluxo sanguíneo pelo órgão, levando a um desequilíbrio entre a oferta e a demanda de oxigênio enutrientes 7. Esse processo tem impacto direto na função do rim transplantado e aumenta o risco de rejeição aguda e redução da função do enxertoa longo prazo 8,9.
Os PTECs — especialmente abundantes no córtex renal — são particularmente vulneráveis à IRI. Essas células constituem aproximadamente 60%-70% do epitélio tubular e são responsáveis pela reabsorção da maior parte do filtrado glomerular, incluindo água, íons, glicose eaminoácidos 10. Sua alta atividade metabólica é sustentada por uma extensa rede mitocondrial para atender às demandas de transporte dependentes deATP 11. Consequentemente, são extremamente sensíveis a distúrbios metabólicos, como privação de oxigênio e disfunção mitocondrial, ambas características centrais doIRI 12.
Durante a IRI, a privação de oxigênio interrompe a fosforilação oxidativa mitocondrial, levando à depleção do ATP e à função de reabsorçãocomprometida 13,14. Isso inicia uma mudança metabólica da oxidação dos ácidos graxos (FAO) para glicólise anaeróbia e ativação da via do fosfato pentose, que, embora temporariamente protetora, é insuficiente para atender plenamente às demandas energéticas e redox dessascélulas. Se a supressão da FAO persistir durante a fase de reparo, o acúmulo lipídico16 e a lipotoxicidadeocorrem 17, danificando ainda mais as células e prejudicando sua capacidaderegenerativa 18. Esse estado metabólico desadaptativo pode, em última análise, levar à atrofia tubular, fibrose intersticial e progressão para doença renalcrônica 19.
Esse comprometimento metabólico, causado por FAO defeituosa, dificulta a capacidade de atender às altas demandas energéticas do túbulorenal 17,19. A consequente depleção de ATP e o acúmulo de lipídios promovem disfunção mitocondrial e geração de espécies reativas de oxigênio, que ativam a sinalização pró-inflamatória e a infiltraçãoleucocítica 20,21,22. Inflamação persistente e lesão oxidativa desestabilizam a integridade mitocondrial, amplificando a falha energética e, eventualmente, desencadeando a morte celular apoptóticae necrótica 23,24. Durante essa fase de lesão aguda, biomarcadores específicos como a Molécula de Lesão Renal 1 (KIM-1) e a Lipocalina Associada a Neutrófilos Gelatinase (NGAL) são regulados para alta, servindo como indicadores sensíveis de dano tubular proximal e AKI25 precoce.
Após lesão aguda, mecanismos de reparo maladaptativos promovem a deposição excessiva da matriz extracelular, uma característica marcante da fibroserenal 26. Entre os componentes da matriz extracelular, o colágeno, particularmente o tipo I (codificado pelo gene Col1a1), acumula-se no espaço intersticial, contribuindo para a atrofia tubular e perda do parênquimafuncional 27. Essa remodelação fibrótica é em grande parte impulsionada pela senescência tubular e pela transição parcial do epitelial para o mesenquimal (pEMT) nas células epiteliais tubulares, levando, em última análise, ao declínio funcionalrenal 28,29,30. O início da PEMT renal e da fibrose auxilia na progressão da AKI para a doença renal crônica (DRC), culminando em uma perda irreversível da função renal e comprometida sobrevivência doenxerto 31,32.
Neste protocolo, descrevemos um modelo in vitro de lesão H/R usando células epiteliais tubulares proximais (IM-PTECs) imortalizadas por SV40 de camundongo, submetidas a condições controladas de H/R. A maioria dos estudos pré-clínicos sobre IRI renal tradicionalmente se baseou em modelos animais, que reproduzem as respostas vasculares e imunes complexas do rim, mas envolvem custos mais altos, preocupações éticas e variabilidade biológica consideravelmente maior33,34. Essas limitações retardaram o desenvolvimento de sistemas complementares baseados em células, válidos para estudos mecanicistas detalhados e de alta capacidade. Esse sistema experimental permite a simulação reprodutível da privação e restauração de oxigênio, imitando características-chave do IRI observadas em rins transplantados. O modelo serve como uma ferramenta valiosa para estudar os mecanismos celulares e moleculares subjacentes à lesão tubular, à expressão de biomarcadores e às respostas fibróticas em um ambiente controlado. Além disso, oferece uma plataforma relevante para a triagem e avaliação de estratégias terapêuticas potenciais voltadas para prevenir ou mitigar danos isquêmicos e melhorar os resultados pós-transplante.
Protocolo
As células usadas neste protocolo não foram isoladas no contexto deste estudo. Eles já foram isolados e disponibilizados por outrospesquisadores 35. Portanto, nenhuma nova experimentação com animais foi realizada, e não foi necessária aprovação ética para o presente trabalho.
1. Cultura IM-PTEC
- Prepare o meio L3 conforme descrito na Tabela 1.
- Descongele um frasco de IM-PTECs. Cultive aproximadamente 1 x 10⁶ células a 33 °C em uma incubadora umidificada sob condições padrão (5% de CO2, Oatmosférico 2) até 80% de confluência (geralmente atingida após 3 dias).
NOTA: Os IM-PTECs são isolados de camundongos Immorto. Para um protocolo detalhado sobre o isolamento dos IM-PTECs, consulte o35. - Subcultura de células 2 vezes por semana com uma proporção de divisão aproximada de 1:10. Para a passagem, desprenda a monocamada aderente usando tripsina-EDTA a 0,05% por 2-3 minutos a 33 °C, neutralize com meio de crescimento completo e resemeie em frascos de cultura fresca.
| Componente | Concentração em Quantidade/Final de Mídia |
| DMEM/F12 | 500 mL |
| Soro fetal para panturril (FCS) | 10% |
| Penicilina | 10.000 U/mL |
| Estreptomicina | 10.000 μg/mL |
| L-glutamina | 0,02 μM |
| Insulina | 5 μg/mL |
| Transferrin | 5 μg/mL |
| Selenito de sódio | 5 μg/mL |
| Triiodotironina | 40 pg/mL |
| Hidrocortisona | 36 ng/mL |
| Fator de Crescimento Epidérmico | 20 ng/mL |
| Interferon γ (IFN-γ) | 10 ng/mL |
Tabela 1: Composição média L3.
2. Cultura restritiva dos IM-PTECs
- Subcultura conforme descrito no passo 1.3 e transferência de toda a suspensão celular de um frasco T-25 de IM-PTECs para um frasco T-75 contendo aproximadamente 10 mL de meio L3 sem interferon-γ (IFN-γ). Cultivo a 37 °C sob condições padrão até 80% de confluência (geralmente atingido após 3 dias).
- Subcultura conforme descrito no passo 1.3 e transferência de toda a suspensão celular de um frasco T-75 para dois frascos T-175 contendo aproximadamente 20 mL de meio L3 sem IFN-γ. Cultivo a 37 °C sob condições padrão até 80% de confluência (geralmente atingido após 3 dias).
- Placam IM-PTECs para experimentos destacando células de culturas confluentes usando 0,05% de tripsina-EDTA, ressuspendendo-as em meio completo e semeando na densidade desejada (aproximadamente 1 x 10⁵). Utilize placas de 6 poços para análise de expressão de marcadores moleculares, ou microplacas de cultivo celular de 96 poços adequadas para estudos de respiração mitocondrial.
NOTA: Para outros experimentos, use um formato de cultura adequado.- Ao revestir células em uma microplaca de cultura celular de 96 poços para estudos de respiração mitocondrial, deixe os quatro poços nos cantos vazios para usá-los como correção de fundo. Deixe a microplaca por 1 hora em temperatura ambiente antes de colocá-la na incubadora para permitir que as células se assentem.
3. Procedimento de hipóxia/reoxigenação (Figura 1)
- Atualize os IM-PTECs removendo o meio de cultivo e adicionando meio L3 fresco sem IFN-γ (0,1 mL/poço para placas de 96 poços ou 2 mL/poço para placas de 6 poços). Coloque as células em um incubador de hipóxia a 1%O2, 5%CO2, a 37 °C por 48 horas.
- Remova as células da incubadora de hipóxia e refresque-as com meio L3 sem IFN-γ. Coloque as células em incubadora de cultura celular em condições padrão deO2 e 5% deCO2 a 37 °C por 24 horas.
NOTA: Condições hipóxicas podem ser alcançadas usando um incubador de hipóxia ou uma câmara modular de hipóxia conectada a um suprimento controlado de gás.
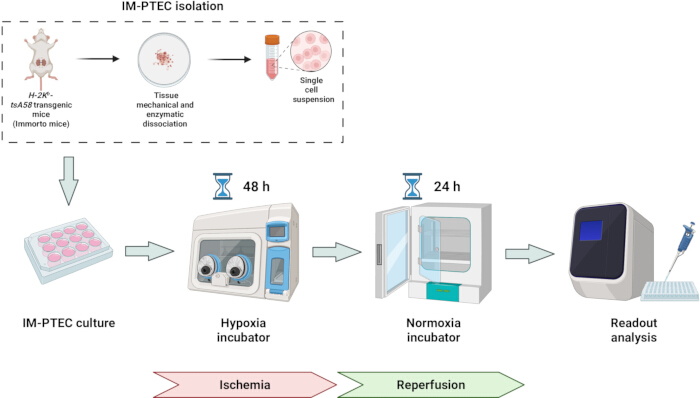
Figura 1: Representação esquemática do modelo H/R in vitro em células epiteliais tubulares proximais imortalizadas (IM-PTECs). IM-PTECs derivados de camundongos transgênicos H-2Kb-tsA58 (Immorto) foram cultivados sob condições normóxicas, expostos à hipóxia (1%O2, 48 h) e posteriormente reoxigenados (condições padrãoO2, 24 h), para análise de leitura. Por favor, clique aqui para ver uma versão ampliada desta figura.
4. Análise da expressão de marcadores moleculares
- Isolamento de RNA
- Adicione 800 μL de reagente de isolamento de RNA a cada poço de uma placa de 6 poços. Incube por 5 minutos em temperatura ambiente. Transfira as amostras para tubos microcentrífugas de 1,5 mL livres de RNAse.
- Adicione 200 μL de clorofórmio e misture bem por 15 segundos pipetando. Incube em temperatura ambiente por 2-3 minutos.
- Centrifuge a 12.000 x g a 4 °C por 12 minutos. Transfira a fase superior aquosa para um tubo microcentrífuga de 1,5 mL livre de RNAse.
- Adicione 500 μL de isopropanol. Incube em temperatura ambiente por 10 minutos. Centrifuge a 12.000 x g a 4 °C por 10 minutos.
- Descarte o sobrenadante e lave o pellet com 1 mL de etanol a 70%. Centrifuge a 5.000 x g a 4 °C por 5 minutos. Descarte o supernadante.
- Seque o pellet ao ar. Dissolva o pellet em 12 μL de água sem RNAse.
- Aqueça a amostra a 56 °C por 15 minutos. Meça a concentração de RNA em um espectrofotômetro UV-Vis de microvolume.
NOTA: Sempre mantenha as amostras no gelo entre as etapas da incubação para evitar a degradação do RNA.
- Transcrição reversa
- Sobre gelo, adicione os seguintes componentes da reação a um tubo de microcentrífuga de 0,2 mL livre de RNAse: 10 μL de Master Mix (2x), 2 μL de Enzyme Mix, 1-5 μg de RNA e até 20 μL deH2O livre de nuclease.
- Misture suavemente e incube a 25 °C por 10 minutos, seguido de incubação a 50-55 °C por 10 minutos.
- Desative a reação aquecendo a 85 °C por 5 minutos e deixe refrigerar no gelo. Dilua o cDNA em 1:5 ou 1:10.
- PCR Quantitativa em Tempo Real (RT-qPCR)
- Prepare conjuntos de primer misturando-os em uma concentração final de 10 μM (Tabela 2).
- Para cada gene a ser medido, prepare uma mistura de qPCR em tempo real (RT) contendo os seguintes reagentes por poço: 5 μL de mistura mestre RT-qPCR; 0,4 μL de primer frontal de 10 μM, 0,4 μL de primer reverso de 10 μM e 2,2 μL de H2Olivre de nuclease.
- Adicione 8 μL da mistura RT-qPCR a cada poço de uma placa PCR de 384 poços. Adicione 2 μL de amostra de cDNA a cada poço, deixando uma gota na borda do poço.
- Após adicionar todas as amostras, bata suavemente na placa até que todas as gotas caiam nos poços. Sele a placa firmemente com sua membrana. Gire a placa de PCR de 384 poços.
- Meça em um sistema RT qPCR com o seguinte programa: 98 °C por 30 s, 40 ciclos de 98 °C por 10 s, seguidos por 60 °C por 30 s, e uma curva de fusão a 95 °C.
| Gene | Sequências de primers |
| Kim-1 | F: 5' - TGGTTGCCTTTTGTCTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| Ngal | F: 5' - ATGTCACCTCCCCCTGTCGTCAG |
| R: 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | F: 5' - GCCATCTTTTTTGGGATGGA |
| R: 5' - CCCCTGACAGGACGTTGTTA | |
| Col1a1 | F: 5' - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGTTTTTTTTGCCAGG |
Tabela 2: Sequências de primer usadas para RT-qPCR.
5. Avaliação da função respiratória mitocondrial
- Dia antes do ensaio
- Ligue o analisador de taxa de consumo de oxigênio (OCR)/taxa de acidificação extracelular (ECAR) e deixe que ele aqueça pelo menos 5 horas antes do experimento.
- Hidrate um cartucho sensor a 37 °C em uma incubadora sem CO2 durante a noite.
- Dia do ensaio
- Preparar o meio de ensaio para uma microplaca de cultura celular de 96 poços contendo: 33,4 mL de meio DMEM pH 7,4; 0,875 mL de glicose 1 M (concentração final 25 mM); 0,35 mL de piruvato 100 mM (concentração final 1 mM); e 0,35 mL de Glutamina 200 mM (concentração final 2 mM).
- Prepare soluções inibidoras conforme a Tabela 3.
- Remova o Cartucho Sensor montado da incubadora. Carregue 25 μL de cada inibidor em sua porta correspondente usando uma pipeta multicanal e um guia de carregamento.
- Remova o meio de crescimento de cultura celular da microplaca de cultura celular. Adicione 175 μL de meio de ensaio pré-aquecido (37 °C) a cada poço usando uma pipeta multicanal.
- Coloque a microplaca de cultura celular emuma incubadora sem CO 2 a 37 °C por 45-60 minutos antes do ensaio.
- Coloque a placa de calibração com o cartucho sensor carregado no analisador OCR/ECAR para calibração.
- Coloque a microplaca de cultura celular no instrumento para medição.
- Após a execução, guarde a microplaca de cultura celular para quantificar a proteína total e normalizar os dados.
| [Cartucho] (μM) | [Meio de ensaio] (μM) | Porto A | Porto B | Porto C | |
| Oligomicina | 12 | 1.5 | 8,4 μL | ||
| FCCP | 9 | 1 | 6,3 μL | ||
| Antimicina A | 25 | 2.5 | 17,5 μL | ||
| Rotenona | 12.5 | 1.25 | 8,75 μL | ||
| Meio de ensaio | 3,5 mL | 3,5 mL |
Tabela 3: Soluções inibidoras para avaliação da respiração mitocondrial.
Resultados
Uma validação do curso temporal foi realizada inicialmente para determinar as condições ideais de hipóxia/reoxigenação (H/R) para reproduzir lesão isquêmica em IM-PTECs. A ativação da caspase-3, uma marca registrada da lesão de isquemia-reperfusão renal tanto in vivo quanto in vitro, foi usada como indicador da fidelidade domodelo 36,37. Descobrimos que 48 horas de hipóxia seguidas por 24 horas de reoxigenação produziram o maior aumento na atividade da caspase-3. A viabilidade celular, avaliada pelo ensaio MTT, permaneceu comparável à dos controles normóxicos nessas condições, indicando que, embora a sinalização apoptótica tenha sido iniciada, as células permaneceram viáveis para testes farmacológicos subsequentes (Figura Suplementar 1). Esse protocolo validado foi então usado para induzir lesão H/R por meio de hipóxia/reoxigenação controlada dos IM-PTECs.
Após o insulto isquêmico, foi realizada a RT-qPCR para determinar a expressão de vários marcadores de lesão renal (Figura 2). RT-QPCR mostrou que, no contexto da IRI, a expressão de Kim-138,39 e Ngal40,41, marcadores conhecidos de lesão renal aguda, aumentou significativamente. Além disso, a expressão de Acta242,43 e Col1a1 44,45,46, marcadores de pEMT/fibrose renal, também aumentou. Além de ser um marcador de pEMT/fibrose renal, a expressão de Col1a1 pode estar correlacionada com a gravidade47 da DRC. /p>
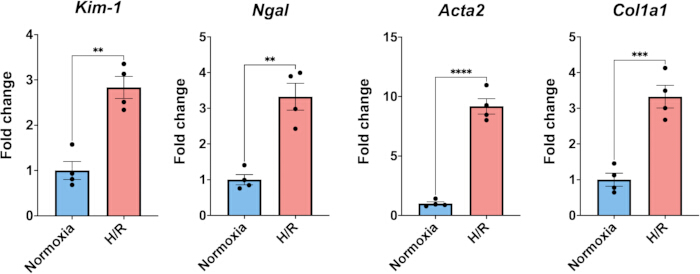
Figura 2: Expressão molecular de marcadores de lesão renal sob normóxia ou hipóxia/reoxigenação (H/R). Após a H/R, a expressão dos marcadores moleculares de lesão renal Kim-1, Ngal, Acta2 e Col1a1 aumenta significativamente nos IM-PTECs. Os dados são apresentados como média ± erro padrão da média (MEB) de quatro réplicas biológicas por condição. A significância estatística foi avaliada usando um teste t de Student bicauda, sem pare. Os níveis de significância são indicados da seguinte forma: p < 0,05 (*), p < 0,01 (**), p < 0,001 (***) e p < 0,0001 (****). Por favor, clique aqui para ver uma versão ampliada desta figura.
Estudos de respiração mitocondrial também foram realizados para determinar a capacidade respiratória mitocondrial após H/R (Figura 3). Por meio da medição da Taxa de Consumo de Oxigênio (OCR), determinamos que, após o desafio isquêmico, todos os parâmetros da respiração mitocondrial (respiração basal, produção de ATP, vazamento de prótons, respiração máxima e capacidade sobrando) foram reduzidos, apontando para um metabolismo mitocondrial prejudicado.
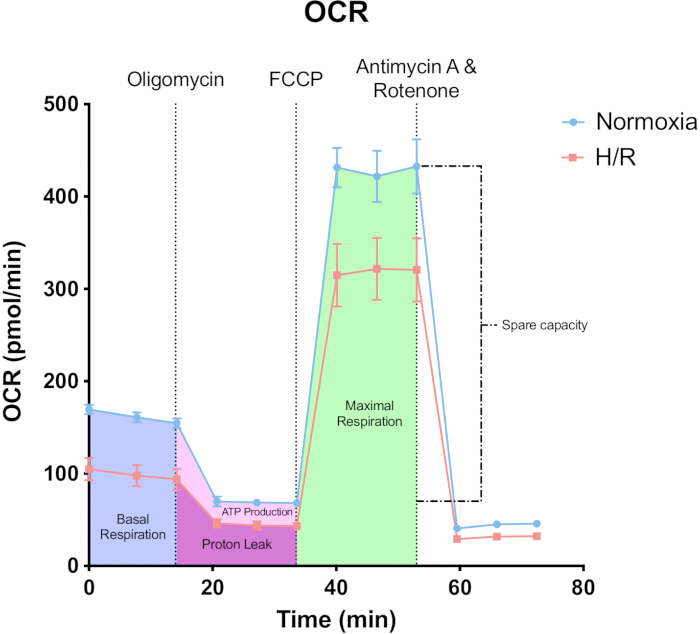
Figura 3: OCR (taxa de consumo de oxigênio) em IM-PTECs sob condições normóxicas ou hipóxicas. Após hipóxia/reoxigenação (H/R), os IM-PTECs apresentam uma função respiratória mitocondrial reduzida. A respiração mitocondrial foi avaliada adicionando sequencialmente inibidores da cadeia de transporte de elétrons: oligomicina, FCCP (cianeto de carbonila-p-trifluorometoxifenilhidrazona), antimicina A e rotenona. Os dados são apresentados como média ± erro padrão da média (MEB) de quatro réplicas biológicas por condição. Por favor, clique aqui para ver uma versão ampliada desta figura.
Esses resultados confirmam que o protocolo H/R induz efetivamente alterações moleculares e metabólicas consistentes com lesão renal isquêmica nos IM-PTECs48,49. Esse protocolo, portanto, fornece uma estrutura útil para reproduzir condições semelhantes à isquemia renal e reperfusão in vitro.
Figura suplementar 1. Viabilidade celular e atividade da caspase-3 sob condições de normóxia e hipóxia/reoxigenação (H/R). (A) Viabilidade celular. A viabilidade celular foi avaliada por ensaio MTT após exposição à normóxia ou hipóxia/reoxigenação (H/R). Os resultados são expressos como viabilidade relativa (%) normalizada para controles normóxicos. (B) Caspase cortada-3. A atividade da caspase-3 clivada (proteína nmol/min/mg) foi quantificada em células submetidas a diferentes durações de normóxia (N), hipóxia (H) e reperfusão (R). Os dados são apresentados como média ± SEM, e cada ponto representa uma réplica biológica individual. Por favor, clique aqui para baixar esta figura.
Discussão
A maior parte dos dados pré-clínicos sobre a IAA induzida por IRI renal é gerada por meio de modelos in vivo 50,51,52,53, devido à falta de modelos in vitro estabelecidos. Isso, somado à disponibilidade limitada de linhas celulares epiteliais tubulares proximais imortalizadas e bem caracterizadas, limita a pesquisa in vitro, tornando o desenvolvimento desse protocolo um recurso valioso. Esse método oferece uma plataforma mais acessível e reprodutível para estudar os mecanismos de lesão renal H/R sob condições controladas, ao mesmo tempo em que reduz a necessidade de uso animal.
Além disso, esse protocolo utiliza predominantemente equipamentos laboratoriais padrão, facilitando sua implementação sem a necessidade de instrumentos especializados e caros. A única exceção é a necessidade de um incubador de hipóxia, que normalmente está disponível em laboratórios de pesquisa em câncer para recriar microambientes de tumoreshipóxicos 54,55,56. Essa acessibilidade apoia uma adoção mais ampla e promove a reprodutibilidade entre diferentes laboratórios.
Uma consideração crítica neste protocolo é a cultura correta dos IM-PTECs. As células devem ser cultivadas a 33 °C e suplementadas com IFN-γ para evitar a redução da atividade do SV40. Antes dos procedimentos experimentais, os IM-PTECs são então transferidos para condições restritivas por 7 dias antes do início dos experimentos. A cultura restritiva é alcançada aumentando a temperatura para 37 °C e removendo o interferon-gama (IFN-γ) do meio por 1 semana, o que diminui a expressão do antígeno T grande SV40 — uma proteína viral codificada pelo Vírus Simian 40, usada para imortalizar as células 35,57 — fazendo com que as células percam seu status de imortalização e promovendo um fenótipo58 mais diferenciado e fisiologicamente relevante. Notavelmente, IM-PTECs podem desenvolver vacúolas citoplasmáticas proeminentes após vários dias em cultura; Se ocorrer vacuolação, a hidroxicortisona deve ser omitida do meio de cultivo para evitar ou reverter essa mudança.
Embora o uso de PTECs imortalizados ofereça a vantagem de estabilidade e facilidade de manutenção, os pesquisadores também podem considerar o uso de células epiteliais tubulares proximais primárias para aumentar a relevância fisiológica. No entanto, PTECs primários de camundongos apresentam maior variabilidade de doadorpara doador (59,60) e têm capacidade proliferativalimitada (61,62), tornando-os menos adequados para experimentos de alto rendimento ou de longo prazo. Seu uso pode ser mais adequado para estudos de validação ou ao estudar respostas específicas derivadas de pacientes
Esse protocolo oferece uma plataforma valiosa para investigar os mecanismos moleculares subjacentes à lesão H/R, identificar e avaliar abordagens terapêuticas potenciais e explorar respostas celulares como inflamação, estresse oxidativo e vias de morte celular em um ambientecontrolado 63,64.
No entanto, uma limitação importante desse modelo é que ele não reproduz certas características de isquemia observadas em transplantes renais, como hipotermia e privação de nutrientes durante armazenamento afrio 9. Essas condições influenciam significativamente o metabolismo celular e os padrões de lesão, e sua ausência pode restringir a tradução dos achados para o ambienteclínico 65,66.
Em conclusão, este modelo H/R in vitro em IM-PTECs oferece uma abordagem reproduzível, acessível e eticamente favorável para estudar lesão por isquemia-reperfusão renal sob condições controladas. Embora não recapitule totalmente a complexidade da isquemia in vivo , representa uma ferramenta complementar valiosa para elucidar mecanismos celulares, triar candidatos terapêuticos e reduzir a dependência da experimentação com animais na pesquisa renal.
Divulgações
Os autores declaram que não têm conflitos de interesse a divulgar este trabalho
Agradecimentos
Mariano Marin-Blazquez pertence ao "Programa de Doutorado em Ciências da Saúde" da Universidade Católica de Múrcia (UCAM). O trabalho nos grupos Ruben Rabadan-Ros e Ruben Zapata-Perez é apoiado por uma bolsa do Ministo de Ciência, Inovação e Universidades - Projetos de Geração de Conhecimento 2023 (PID2023-147560OA-I00). Ruben Rabadán-Ros conta com apoio de uma bolsa da Fundación Séneca - Agência de Ciência e Tecnologia da Região de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). A AT é financiada por uma bolsa conjunta NWO-FAPESP para Envelhecimento Saudável executada pela Zonmw (nº 457002002) e por uma bolsa para Talentos Juniores da Nierstichting.
Os autores agradecem com gratidão à Universidad de Murcia (UM) e à Universidad Católica de Murcia (UCAM) por fornecerem acesso às suas instalações onde as imagens de vídeo foram gravadas.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Placa qPCR de 384 poços | Biossistemas Aplicados | 4309849 | |
| Centrífuga | Ortoalresa | Biocen22R | |
| Clorofórmio | VWR | 0757-500ML | |
| DMEM/F12 | Gibco | 21331020 | |
| Fator de Crescimento Epidérmico | Sigma-Aldrich | E9644 | |
| Etanol | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Bloco de aquecimento | Eppendorf | ThermoMixer C | |
| Hidrocortisona | Sigma-Aldrich | H0135 | |
| Incubadora de Hipóxia | Memmert | ICO 50med | |
| IFN-&gama; | ProspecBIo | CYT-358 | |
| Incubadora | Memmert | ICO 105 | |
| Isopropanol | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-glutamina | Gibco | 25030081 | |
| Pipeta multicanal | Eppendorf | 3125000052 | |
| Incubadora não2 | |||
| PCR Primers | Genômica Eurofins | ||
| Penicilina - Estreptomicina | Gibco | 15140-122 | |
| Mistura Mestre qPCR | NZYTech | MB22303 | |
| Sistema qPCR em Tempo Real | Biossistemas Aplicados | QuantStudio 5 | |
| Mistura Mestre de Transcrição Reversa | NZYTech | MB12502 | Contém mistura enzimática |
| Água livre de RNAse | HyClone | SH3053802 | |
| Kit de Teste de Estresse Mito da Célula XF Seahorse | Agilent | 103015-100 | Contém oligomicina, FCCP, Antimicina A e rotenona |
| Seahorse XF DMEM médio | Agilent | 103575-100 | |
| Glicose XF Cavalo-marinho | Agilent | 03577-100 | |
| Glutamina XF de cavalo-marinho | Agilent | 103579-100 | |
| Seahorse XF Piruvato | Agilent | 103578-100 | |
| Analisador Seahorse XFe96 | Agilent | S7800BR | |
| Seahorse XFe96 FluxPak | Agilent | 103792-100 | Contém microplaca de cultura celular XFe96 e cartucho sensor XFe96 |
| Ciclador térmico | BIO-RAD | Ciclador Térmico T100 | |
| Triiodotironina | Sigma-Aldrich | T5516 | |
| Trizol | Invitrogen | 15596026 | |
| Espectrofotômetro UV-Vis | DeNovix | DS-11 |
Referências
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Reimpressões e permissões
