Este protocolo detalha um ensaio quantitativo de defecação em jovens mutantes RAC1/ CED-10 Caenorhabditis elegans, fornecendo um modelo direto para estudar os estágios da doença prodrômica de Parkinson. Ela supera limitações de outros modelos animais e facilita o teste de estratégias terapêuticas que visam a patologia parkinsoniana precoce.
Artigo de método
Avaliação da Motilidade Gastrointestinal em Mutantes RAC1/CED-10 de Caenorhabditis elegans como uma ferramenta para estudar a doença de Parkinson precoce
Neste artigo
Resumo
Resumo
A doença de Parkinson (DP) está entre os distúrbios neurodegenerativos mais prevalentes e é diagnosticada com base em sintomas motores que surgem após uma perda significativa de neurônios dopaminérgicos. Sintomas não motores, como constipação, são os mais comuns e geralmente aparecem mais cedo, indicando o início da doença. Muitos modelos animais são usados para estudar doenças neurodegenerativas, mas a maioria foca nos estágios avançados. Como é difícil determinar o início exato da neurodegeneração, nenhum modelo único representa completamente toda a progressão da doença. Modelos de mamíferos são especialmente demorados e caros devido aos seus ciclos de vida longos. Em contraste, Caenorhabditis elegans (C. elegans), um nematoide transparente de 1 mm com ciclo de vida e reprodução curto (~3 semanas e 3 dias), possibilita experimentos mais rápidos e econômicos graças à sua rápida rotatividade de geração. O programa motor de defecação em C. elegans consiste em ciclos rítmicos regulados por uma rede genética complexa na qual participam as GTPases Rho/rac, e RAC1 (CED-10 em C. elegans) está entre eles. Mostramos que mutantes RAC1/CED-10 apresentam morfologia e função GABAérgica comprometidas, o que resulta em ciclos de defecação interrompidos. Aqui, apresentamos o protocolo experimental para medir a constipação em RAC1/CED-10 C. elegans em estágios iniciais. Além de servir como ferramenta preditiva para investigar sintomas precoces de DP antes da neurodegeneração, esse protocolo também pode ser empregado como um ponto final precoce para avaliar a eficácia da intervenção farmacológica. Como essas mudanças não são específicas de cada doença, acreditamos que esse modelo oferece uma ferramenta valiosa para investigar alterações que surgem precocemente em outras doenças.
Introdução
A doença de Parkinson (DP) é o segundo distúrbio neurodegenerativo mais comum e uma das principais causas de incapacidadeneurológica 1,2. Seus traços patológicos incluem corpos de Lewy e neuritos de Lewy, compostos principalmente por α-sinucleína, juntamente com perda neuronal na substância negra e outras regiõescerebrais 3.
Clinicamente, a DP é classificada como um distúrbio do movimento, mas também é caracterizada por um amplo espectro de sintomas não motores. As prejuízos motores surgem da degeneração dos neurônios dopaminérgicos na substância negra e da depleção estriatal da dopamina. No entanto, sintomas não motores — como constipação, ansiedade e transtorno comportamental do sonoREM 4 — frequentemente surgem anos antes, durante a fase prodrômica, quando a neurodegeneração afeta estruturas extraíngeras (por exemplo, tronco encefálico, sistema olfativo e vias autonômicas).
Um grande desafio na pesquisa sobre DP é o início clínico tardio: os sintomas motores normalmente aparecem somente após 60%-80% dos neurônios dopaminérgicos serem perdidos3, momento em que a intervenção terapêutica se torna menos eficaz. Sintomas não motores precoces (por exemplo, disfunção autonômica) podem servir como biomarcadores para DPprodrômica 6, mas sua não especificidade complica o diagnóstico definitivo. Diante dessas limitações, modelos animais são essenciais para estudar estágios iniciais da DP, padronizar a caracterização dos sintomas e desenvolver terapias neuroprotetoras — atualmente ausentes — que possam desacelerar ou prevenir a neurodegeneração.
RAC1/CED-10 Mutantes de C. elegans recapitulam características chave do estágio inicial eavançado de PD 6. Já demonstramos anteriormente que a atividade do RAC1 é crítica para a sobrevivência e função dos neurônios dopaminérgicos, protegendo contra toxicidade induzida porα-sinucleína 7. Além disso, mutantes RAC1/CED-10 apresentam alterações fenotípicas semelhantes a DP precoce, incluindo desregulação do metabolismo lipídico e disfunção GABAérgica, esta última refletida em ciclos de defecaçãointerrompidos 6. Esses achados estabelecem os mutantes RAC1/CED-10 como um modelo tratável para estudar a fisiopatologia pré-degenerativa da DP.
Aqui, descrevemos um ensaio otimizado de defecação para mutantes RAC1/CED-10, que captura quantitativamente a dismotilidade intestinal, permitindo o estudo sistemático das características gastrointestinais durante a fase prodrômica da DP.
Protocolo
NOTA: Tipo selvagem: N2 Bristol foi usado. Modelo do primeiro PD RAC1/CED-10: A cepa BR3579 é genotipada ced-10(n3246) e é chamada RAC1/CED-10 aqui. Foi uma doação generosa do Dr. Ralf Baumeister (Universidade Albert-Ludwig, Freiburg/Breisgau, Alemanha). Essa variante do ced-10 (N3246) é um alelo forte. A mutação ced-10(n3246) é uma transição G-para-A que resulta na mudança da glicina 60 da CED-10 para arginina (G60R), resultando em função alterada nãonula 8,9. A gravidade desse alelo é maior em comparação com outros alelos ced-10 10. Hermafroditas foram usadas ao longo de todo o estudo.
1. Manutenção de minhocas
- Despeje 25 mL de meio de crescimento de nematoides (NGM) em placas de Petri de 150 mm e deixe o ágar solidificar. Semeie cada placa com 500 μL de uma cultura OP50 de Escherichia coli , distribuindo a suspensão uniformemente pela superfície do ágar. Incube as placas a 30 °C durante a noite para permitir o crescimento bacteriano. Prepare os pratos 24 horas antes do uso.
2. Obtenção de vermes sincronizados no 4º estágio do desenvolvimento larvar (L4)
- Realizar medições da motilidade intestinal com vermes sincronizadas no estágio larvar L4. Para obter vermes neste estágio de desenvolvimento, siga o protocolo de branqueamento descrito abaixo (adaptado do 11) com pequenas modificações relacionadas ao fenótipo11 do RAC1/CED-10.
- Adicione 10 adultos grávidos às placas NGM com Escherichia coli OP50, preparada como na etapa 1, para depositar ovos e permitir que as minhocas cresçam por 3 dias. Alternativamente, transfira um pedaço de ágar de uma placa NGM contendo uma população mista para uma nova placa NGM. Neste caso, o controle do ciclo de vida não é tão preciso quanto ao usar 10 adultos grávidos. Após 80 h, foi observada uma população mista de hermafroditas C. elegans com adultos grávidos no caso dos tipos selvagens. Mutantes RAC1/CED-10 apresentaram 6 horas de desenvolvimentoatrasado no 6, então adultos grávidos apareceram às 86 horas.
NOTA: Adultos grávidos são identificados porque possuem ovos dentro. - Lave placas com 10 mL de M9 para recuperar adultos grávidos em tubos de 15 mL (marcados com o genótipo correspondente).
- Faça pellets nas minhocas centrifugando por 2 minutos a 2000 x g (~1500 rpm em uma centrífuga de mesa padrão) em temperatura ambiente, descarte o sobrenadante e adicione 10 mL de tampão M9 fresco.
NOTA: Embora funcione em temperatura ambiente, observamos melhores resultados ao centrifugar a 10 °C. - Realize o passo 2.4 3 vezes ou até que o tampão pareça livre de bactérias (supernadante transparente). A presença de bactérias pode ser inferida pelo fato de que o sobrenadante aparece levemente amarelado e turvo.
- Adicione o buffer M9 a um volume total de 3,5 mL.
NOTA: Em nossa experiência, água destilada estéril – ou até água da torneira – pode ser usada nesta etapa sem introduzir contaminação, pois o processo subsequente de branqueamento elimina qualquer microrganismo. No entanto, recomendamos M9 buffer ou água estéril para garantir a reprodutibilidade em laboratórios. - Misture 0,5 mL de NaOH 5M com 1 mL de água sanitária para preparar a solução de branqueamento. Prepare essa solução fresca pouco antes do uso. Adicione 1,5 mL da mistura ao tubo da centrífuga contendo minhocas.
- Agite vigorosamente os tubos durante o branqueamento enquanto monitora a destruição do tecido adulto sob um microscópio dissecador. Pare a reação assim que apenas restar vestígios de adultos visíveis.
NOTA: O tratamento de branqueamento lisa vermes adultos e larvas, enquanto os embriões permanecem viáveis porque a casca do ovo os protege da água sanitária. Essa etapa é fundamental para conseguir sobreviventes. Um tempo em excesso pode matar todos os vermes. O uso de um vórtice é fortemente recomendado, mas depois, verifique a destruição da cutícula a cada 3 minutos. Mutantes RAC1/CED-10 são mais sensíveis à água sanitária. Monitore a desintegração do tecido adulto a cada 2 minutos e nunca ultrapasse 8 minutos. - Pare a reação adicionando um buffer M9 para preencher o tubo (~15 mL). Centrifuge rapidamente (já que o tratamento pode ainda estar ativo) por 1 minuto a 2.000 x g e descarte o sobrenadante.
- Lave o pellet 3 vezes enchendo o tubo com o buffer M9 e centrifugando conforme descrito acima. Após a lavagem final, remova cuidadosamente o sobrenadante até que restem aproximadamente 0,1 mL.
- Adicione esses ovos a um novo tubo de 15 mL e adicione M9 a 5 mL. Incube em temperatura ambiente com rotação suave. Deve ser feita aeração adequada.
NOTA: Obtivemos bons resultados de sincronização usando água da torneira em vez de M9 em todas as etapas, exceto na etapa 2.9. - Após 24 horas, pare a rotação e faça pellets nas minhocas centrifugando a 2.000 x g por 1 minuto a 10 °C.
- Placa de 30-50 μL de vermes em pellets dos genótipos correspondentes em placas NGM de 150 cm semeadas com OP50 e marcadas com o genótipo correspondente. Vários vermes RAC1/CED-10 pareceram mortos, como propriedade intrínseca do genótipo RAC1/CED-10 (observação pessoal). Assim, placem o dobro do volume desses mutantes e monitorem-nos no dia seguinte.
NOTA: O volume de vermes em placas depende do rendimento do protocolo de branqueamento. Nunca ultrapasse o número de 250 minhocas por prato, pois a comida acabará mais rápido e as minhocas podem entrar em fome. A diferença no tempo de desenvolvimento poderia ser usada de forma inteligente para registrar os primeiros ciclos de defecação de vermes selvagens e depois RAC1/CED-10 (veja a próxima seção). - Verifique se há vermes do tipo selvagem no estágio L4 do desenvolvimento larval após 34 horas de incubação. O mesmo estágio de desenvolvimento para minhocas RAC1/CED-10 será alcançado em 40 horase 6. Distinga vermes L4 de L3 e jovens adultos medindo seu tamanho (~650 μm) e verificando sua estrutura de vulva semelhante àda lua 12.
3. Registro da motilidade intestinal
- Lave as placas com 3 mL de M9 para recuperar os vermes L4 em dois tubos centrífugos de 1,5 mL.
- Centrifuge a 2.000 x g por 1 min (Figura 1A), descarte o sobrenadante e adicione 1 mL de tampão M9 novo. Repita o passo 3 vezes.
- Coloque esses vermes lavados em uma placa NGM sem OP50 (Figura 1B). Com essas etapas de lavagem e finalização da placa, elimine o excesso de bactérias.
- Transfira minhocas individualmente para placas de 12 poços com 5 μL de bactérias OP50 sementes (Figura 1C). Deixe as minhocas se adaptarem por 1 hora a 20 °C.
NOTA: Essas placas foram semeadas e deixadas secar antes da adição de minhocas. É melhor não preparar essas placas com antecedência, pois o crescimento excessivo de bactérias pode dificultar a visualização do ciclo de defecação. - Coloque as placas de 12 poços com minhocas sob o microscópio, localize um verme e comece a gravar. Registre ciclos de defecação por 15 minutos (15 ciclos; Figura 1D). Use uma meta 5x para imagens com uma câmera que ofereça resolução de 12 bits e taxa de 60 quadros por segundo (fps). Realize a aquisição de vídeo usando a Ferramenta de Corte no Windows. Inicie a gravação quando detectar o primeiro ciclo de defecação.
NOTA: Se o microscópio estiver conectado a um computador, você pode gravar a tela diretamente com a Ferramenta de Corte. Recomendamos fortemente ter um cronômetro computadorizado para monitoramento do ciclo de defecação. Clique no botão Voltas toda vez no final do ciclo de defecação.
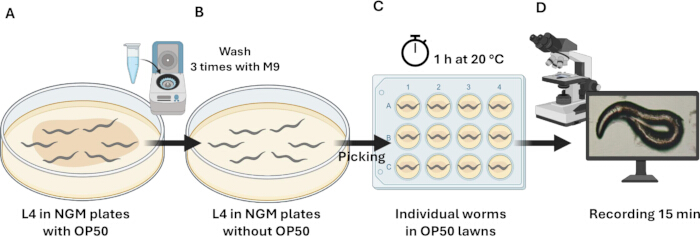
Figura 1: Diagrama esquemático do protocolo experimental para medir a motilidade intestinal. (A) Vermes sincronizados no estágio L4 de desenvolvimento. Essas minhocas foram coletadas e lavadas 3 vezes com M9. (B) Os vermes lavados foram placados em placas NGM sem OP50. (C) As minhocas eram colhidas individualmente em uma placa de 12 poços com OP50 e deixadas rastejar por 1 hora a 20 °C. Durante esse período, os vermes se adaptam ao novo meio e relaxam do estresse da transferência. (D) Vermes individuais foram registrados por 15 minutos para analisar a motilidade intestinal. Por favor, clique aqui para ver uma versão ampliada desta figura.
4. Análise do ciclo de defecação
NOTA: Em C. elegans, o programa motor de defecação compreende ciclos rítmicos orquestrados por uma complexa rede genética. Este programa consiste em três contrações musculares sequenciais e distintas, cada uma facilmente detectável sob um microscópio de dissecação. A primeira etapa envolve a contração dos músculos da parede posterior do corpo (pBoc), seguida pela contração dos músculos da parede anterior do corpo (aBoc) e, finalmente, pelas contrações dos músculos entéricos (EMC), que resultam na expulsão do conteúdo intestinal (Exp)13 (Figura 2).
- Realize experimentos a 20 °C. Depois que todos os vídeos estiverem gravados, comece a análise dos dados.
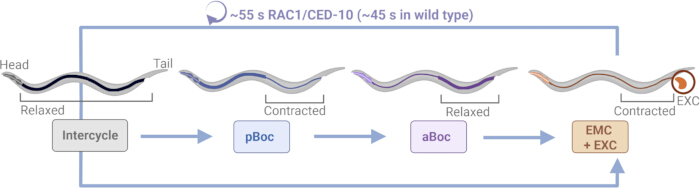
Figura 2: Ciclo de defecação em mutantes RAC1/CED-10 de C. elegans. Uma representação diagramática do ciclo de defecação de C. elegans nos nematoides mutantes RAC1/CED-10. pBoc denota a contração da musculatura da parede posterior do corpo; aBoc denota a contração da musculatura da parede anterior do corpo, e EMC + EXC corresponde à ejeção do conteúdo intestinal. Em animais selvagens que se alimentam sem perturbações, esse programa motor é iniciado a cada 45 segundos com uma regularidademuito alta de 18. Os vermes são orientados com a cabeça voltada para a esquerda e a cauda para a direita. Excreção (EXC) é destacada em laranja. Esse valor foi modificado a partir do6. Por favor, clique aqui para ver uma versão ampliada desta figura.
5. Análise de vídeo
- Abra um vídeo com um programa de vídeo player.
NOTA: Usamos o Windows Media Player Legacy v12. Outros programas de vídeo podem ser usados. - Prepare o arquivo da planilha. Abra o arquivo Template fornecido (Tabela Suplementar 1). Insira o nome do arquivo de vídeo e o tamanho do worm (opcional) nos campos designados, então inicie a reprodução do vídeo.
- Defina e registre a primeira excreção. Defina tempo zero como o momento em que a gravação começa quando minhocas são colocadas sob o microscópio. Observe a região do ânus do verme e identifique o primeiro evento de excreção. Registre o tempo (em s) desse evento na célula rotulada Primeira Excreção da planilha.
NOTA: O tempo da primeira excreção variará entre os vermes (por exemplo, Verme 1 = 5 s, Verme 2 = 26 s, Verme 3 = 34 s) porque o momento da última excreção antes da gravação é desconhecido. - Registre os eventos de excreção subsequentes: Continue a reprodução e documente cada excreção subsequente sequencialmente (Excreção 2, Excreção 3, etc.) até que um total de 16 excreções sejam introduzidas.
- Calcule intervalos de ciclo: O modelo determina automaticamente o intervalo entre excreções consecutivas (por exemplo, Excreção 2 - Excreção 1; Excreção 3 - Excreção 2; ...). Use esses intervalos como o comprimento do ciclo.
- Determinar o tempo total do ciclo: Uma vez que os 16 eventos tenham sido registrados, o modelo calcula o tempo necessário para que o worm complete 15 ciclos. Esse valor é exibido na célula chamada Tempo Total da planilha. Repita esse processo para cada verme.
NOTA: Atualmente, nenhum software automatizado detecta de forma confiável os ciclos de defecação em C. elegans. Embora plataformas como o WMicrotracker sejam eficazes para quantificar parâmetros de movimento (velocidade, distância percorrida, número de vermes ou tamanho corporal14,15), elas não fornecem a resolução necessária para monitorar a região do ânus e identificar eventos de contração ou excreção. Portanto, a pontuação manual continua sendo necessária, semelhante à limitação observada nos ensaios do bombeamentofaríngeo 16.
6. Medições do comprimento do ciclo
- Pontue o tempo do ciclo como o tempo entre duas excreções consecutivas. Calcule subtraindo o tempo final de um ciclo do tempo final do ciclo seguinte, conforme explicado na Tabela 1 e na Equação 1.
Duração do ciclo (n) (em segundos) = Excreção de tempo (n+1) - Excreção de tempo (n) Equação 1
Duração do ciclo (1st) = 66 s ((excreção temporal 2 = 71 s) - (excreção temporal 1 = 5 s)) - Para cada conjunto de dados, calcule o período médio do ciclo de defecação, o desvio padrão (DE) e o erro padrão da média (SEM) usando um software de análise estatística.
7. Ritmicidade ou regularidade do ciclo de defecação
- O coeficiente de variação (CV) é usado para descrever a variabilidade relativa e explica como os dados estão distribuídos em relação à média. Já foi usada anteriormente como indicador da regularidade do ciclo de defecação em C. elegans6. Calcule o CV de cada verme aplicando a Equação 2.
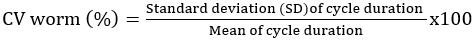 Equação 2
- Para cada deformação de C. elegans , calcule a média CV, o desvio padrão (SD) e o erro padrão da média (SEM) usando um software de análise estatística.
8. Análise estatística
- Realize experimentos em três réplicas independentes, com cinco vermes analisados por condição. Avalie a normalidade dos dados usando o teste de Shapiro-Wilk (α=0,05), que é recomendado para n < 50.
- Como as medições do comprimento do ciclo não seguiram uma distribuição normal, a análise foi realizada com o teste de Mann-Whitney não paramétrico, que é bem adequado para detectar diferenças nas medianas com tamanhos de amostra pequenos. Por outro lado, os dados CV (%) são normalmente distribuídos; analise-as usando um teste t desparelhado com correção de Welch para considerar variâncias desiguais.
- Realize todas as análises estatísticas usando software de análise estatística. Para experimentos que incluem mais de duas cepas, aplique um teste alternativo, como ANOVA unidirecional, com verificação contínua da distribuição da amostra.
Resultados
O ensaio baseado em vídeo descrito foi implementado no modelo RAC1/CED-10 de C. elegans da DP precoce para avaliar quantitativamente a motilidade intestinal. Dado o atraso no desenvolvimento dos mutantes RAC1/CED-10, populações sincronizadas foram ajustadas para garantir comparações de estágio com controles do tipo selvagem. Vermes individuais foram registrados no estágio L4, e 15 ciclos consecutivos de defecação foram analisados para determinar o comprimento e a regularidade do ciclo. Essa abordagem permite medições precisas e de alta resolução da função motora intestinal e possibilita a detecção de alterações sutis não motoras associadas aos fenótipos iniciais da DP em C. elegans.
Atraso no desenvolvimento em animais RAC1/CED-10 para experimentos sincronizados
Dado o atraso no desenvolvimento observado no mutante 6 do RAC1/CED-10 de C. elegans, experimentos de sincronização realizados em paralelo com animais selvagens requerem ajuste temporal. Para compensar esse atraso e garantir comparações de estágio durante a gravação de vídeo, os animais RAC1/CED-10 foram placados 6 horas antes dos controles do tipo selvagem no mesmo dia.
Worms RAC1/CED-10 para investigar alterações na defecação associadas à doença de Parkinson
A constipação pode ser detectada já duas décadas antes do diagnóstico de DP motora, tornando-se um dos primeiros sinais reconhecíveis que indicam o início dadoença 17. Já demonstramos anteriormente que o modelo RAC1/CED-10 apresenta alterações não motoras no estágio de desenvolvimento L4, antes do início daneurodegeneração 6, e a alteração da motilidade intestinal é uma delas. Conforme descrito no Protocolo, vermes individuais foram registrados no estágio L4. A Figura 3 mostra um worm representativo RAC1/CED-10.
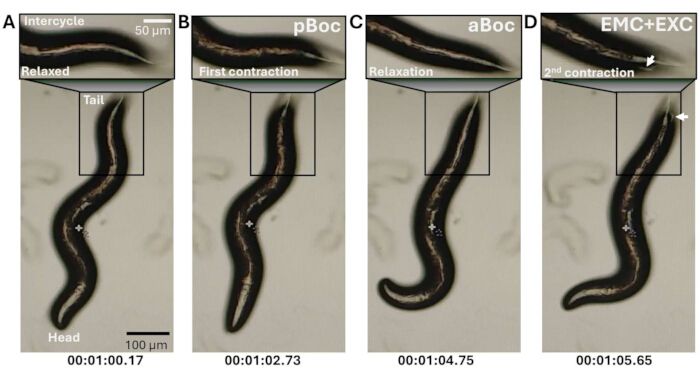
Figura 3: Ciclo de defecação de C. elegans em imagens de animais mutantes RAC1/CED-10. Ciclo de defecação em mutantes RAC1/CED-10 nas imagens. Minhocas são orientadas de cabeça para baixo. As regiões caudais, destacadas em caixas horizontais, mostram a sequência dos passos motores da defecação conforme descrito no6 e esquematizado na Figura 2: (A) trato anterior relaxado, (B) contração posterior do corpo (pBoc), (C) contração anterior do corpo (aBoc) e (D) contração do músculo entérico com expulsão (EMC+EXC). A duração do ciclo é indicada abaixo. Flechas marcam material expelido. Por favor, clique aqui para ver uma versão ampliada desta figura.
Os dois parâmetros usados para analisar a motilidade intestinal são duração do ciclo e regularidadedo ciclo 13. Primeiro, medimos 15 ciclos de cada verme, representados na Figura 4.
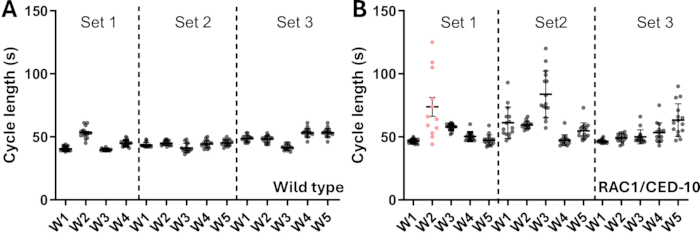
Figura 4: Duração do ciclo dos indivíduos selvagens (A) e RAC1/CED-10 (B). Os conjuntos 1, 2 e 3 indicam réplicas independentes. Cada ponto representa um ciclo de defecação, e há 15 ciclos por verme. O W2 rosa em B foi descartado para análise adicional porque não completou 15 ciclos. W = verme. A análise estatística não foi realizada nesta figura. Por favor, clique aqui para ver uma versão ampliada desta figura.
Os vermes individuais foram designados com W (W1, W2, etc.) entre as diferentes réplicas experimentais (Set = 1, 2, 3). Para cada verme (W), foram feitas 15 medições ao longo de 15 minutos. No primeiro conjunto de experimentos com animais selvagens (Figura 4A, Conjunto 1), um verme foi excluído porque era um jovem adulto em vez de um L4. No caso do RAC1/CED-10, um worm foi descartado porque, após o processamento dos dados, não completou 15 ciclos em 15 minutos. Por isso, recomendamos usar o aplicativo de clock para saber quantos ciclos foram concluídos, já que os worms RAC1/CED-10 eram bastante irregulares.
Com base nesses valores individuais, foram calculados a média e o desvio padrão do comprimento do ciclo para vermes do tipo selvagem e mutantes RAC1/CED-10 (Tabela 1 e Figura 5). Como publicadoanteriormente 6, os vermes RAC1/CED-10 apresentam ciclos mais longos e menos regulares do que os vermes do tipo selvagem. Vermes do tipo selvagem apresentam ciclos mais curtos (46 s ± 5 s) do que os mutantes RAC1/CED-10 (55 s ± 12 s).
Tabela 1: Conjunto representativo de medições do ciclo de excreção para vermes individuais. A tabela resume dados representativos coletados de três animais. Para cada verme, o conjunto de dados inclui o identificador do arquivo de vídeo, tamanho do corpo (μm), pontos de tempo (em s) correspondentes a eventos individuais de excreção, os comprimentos de ciclo calculados ao longo de 15 ciclos consecutivos e a duração total da gravação. O comprimento do ciclo foi obtido subtraindo pontos consecutivos de tempo de excreção (por exemplo, para VID_154028 de minhocas, o primeiro ciclo foi de 66 s, calculado como 71-5 s). As entradas restantes ilustram medições semelhantes para dois vermes adicionais, fornecendo exemplos de variabilidade típica dentro do conjunto de dados. Por favor, clique aqui para baixar esta tabela.
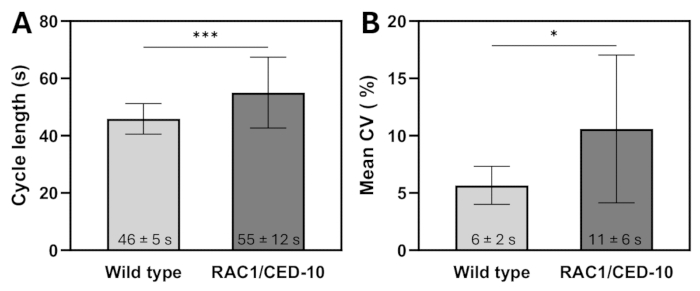
Figura 5: Parâmetros do ciclo de defecação. (A) Duração do ciclo de defecação e (B) Média de CV de vermes selvagens e RAC1/CED-10. Os dados representam a média ± SD. N=3 n=5. O teste de Mann-Whitney não paramétrico foi aplicado para o comprimento do ciclo de defecação. Teste t não pareado com correção de Welch foi aplicado para dados de Média CV. p < 0,001 * p < 0,05. Veja o passo 8 para informações de análise estatística. Por favor, clique aqui para ver uma versão ampliada desta figura.
A regularidade do ciclo é calculada usando o coeficiente médio de variação (CV), que é a média dos coeficientes de variação para cada verme noexperimento 18. A Figura 5B mostra maior variabilidade em animais mutantes RAC1/CED-10 em comparação com animais do tipo selvagem. A média de CV é de 6% ± 2% nos tipos selvagens, comparado a 11% ± 6% em mutantes RAC1/CED-10.
Tabela suplementar 1: Modelo para o cálculo do ciclo de defecação em Caenorhabditis elegans. Os usuários devem inserir o nome de cada arquivo de minhoca na primeira coluna e podem, opcionalmente, registrar o comprimento do corpo do verme. O tempo (em s) correspondente a cada evento de excreção (Excreção 1-16) é então inserido sequencialmente, conforme determinado pela reprodução de vídeo. O modelo calcula automaticamente o intervalo entre excreções consecutivas (Excreção N - Excreção N - Excreção N-1), representando o comprimento do ciclo de defecação. Após 16 eventos de excreção serem inseridos, o tempo total necessário para completar quinze ciclos completos é automaticamente calculado e exibido na célula de Tempo Total (mm:ss). Por favor, clique aqui para baixar este arquivo.
Discussão
C. elegans como um modelo poderoso para estudar a DP prodrômica
Embora a maioria dos modelos de doenças neurodegenerativas foque na patologia em estágioavançado 19, estudar o início precoce da doença continua sendo tecnicamente desafiador. Modelos tradicionais de mamíferos, como camundongos, ratos ou primatas, são limitados por longos ciclos de vida e altos custos. O nematoide microscópico C. elegans supera essas limitações com sua expectativa de vida de 3 semanas, ciclo reprodutivo de 3 dias e tratabilidade genética – tornando-se um sistema ideal para estudos eficientes e em larga escala daneurodegeneração 6.
O mutante RAC1/CED-10 de C. elegans oferece três vantagens principais para estudar a patogênese precoce da DP. Primeiro, sua resolução temporal precisa permite que eventos neurodegenerativos sejam acompanhados ao longo de estágios de desenvolvimentobem definidos 6. Segundo, o modelo oferece versatilidade experimental excepcional por meio da tratabilidade genética, baixa manutenção e compatibilidade de alta produtividade 6,7. Terceiro, como C. elegans não possui um homólogo endógeno de α-sinucleína, inclusive no modelo RAC-1/CED-10, ele oferece uma vantagem valiosa. Os pesquisadores podem examinar mecanismos pré-clínicos da DP sem interferência α-sinucleína, que marca estágiosmais avançados 6. Isso posiciona o modelo como uma excelente ferramenta para estudar eventos patogênicos iniciais e para posterior integração da expressão de α-sinucleína para investigar patogênese avançada. Por fim, a conservação evolutiva da homologia do CED-10 com o RAC1 humano garante relevância direta na translação10,20.
O modelo de C. elegans descrito aqui é bem adequado para ensaiosfarmacológicos 17,21. Como os mutantes RAC-1/CED-10 apresentam atraso no desenvolvimento, o cegamento não é possível na etapa inicial, pois sua identidade não pode ser ocultada em relação ao tipo selvagem. Para triagens farmacológicas, entretanto, o viés pode ser minimizado adotando um desenho duplo-cego no qual o experimentador que coleta os dados e a pessoa que os analisa permanecem alheios a todas as variáveis experimentais.
A constipação afeta quase todos os pacientes com DP durante a fase prodrômica, frequentemente precedendo os sintomasmotores. C. elegans oferece vantagens únicas para estudar essa disfunção gastrointestinal precoce. Diferentemente dos modelos de mamíferos que exigem intervenções invasivas, a transparência e simplicidade do nematoide permitem a observação não invasiva e em tempo real de seu programa motor de defecação altamente estereotipado — uma característica crítica para quantificar defeitos de motilidade intestinal. O curto ciclo de vida e a rítmica precisa da defecação de C. elegans permitem uma análise rápida e reprodutível de prejuízos funcionais. Em mutantes RAC1/CED-10, desvios no horário da defecação refletem fenótipos semelhantes à constipação observados no prodrômioPD 6. Essas descobertas fornecem uma estrutura fundamental para validação posterior em mamíferos complexos (por exemplo, camundongos, primatas), ao mesmo tempo em que ligam diretamente a sinalização RAC1 à disfunção entérica.
Além de sua relevância mecanicista, o modelo RAC1/CED-10 também oferece utilidade translacional. O ensaio de defecação é simples, reproduzível e escalável, tornando-o adequado para triagem de drogas em estágio inicial. Compostos que normalizam o tempo ou a regularidade do ciclo podem ser rapidamente priorizados para testes em modelos de mamíferos, fornecendo um filtro econômico para candidatos terapêuticos. Como a disfunção gastrointestinal é comum em várias condiçõesneurodegenerativas4, esse ensaio também pode ser aplicado além da DP, servindo tanto como ferramenta de descoberta quanto como ponte translacional para a pesquisa pré-clínica.
Etapas críticas do protocolo
Apresentamos uma metodologia refinada para estudar a dismotilidade intestinal em mutantes RAC1/CED-10, um fenótipo não motor-chave relevante para a DP prodrômica. Embora baseado nos ensaios de defecaçãoestabelecidos 18,22, este protocolo aborda desafios únicos apresentados pelos mutantes RAC1/CED-10 para garantir resultados robustos e reproduzíveis.
As principais adaptações para mutantes RAC1/CED-10 são as seguintes:
Ajustes de sincronização: Mutantes RAC1/CED-10 apresentam fecundidade reduzida em comparação com cepas do tipo selvagem (observação pessoal). Para compensar o menor rendimento da prole, aplique os seguintes ajustes durante a sincronização: Método de blocos de placas - use um inoculo maior, aproximadamente 2x o volume usado para cepas selvagens, para considerar o aumento da variabilidade do desenvolvimento. Método adulto grávido - Transferir de 15 a 20 adultos (em vez de 10 padrão) para garantir um número suficiente de embriões para experimentos subsequentes.
Sensibilidade à água sanitária: Embriões de mutantes RAC1/CED-10 apresentam sensibilidade aumentada ao tratamento com hipoclorito. Para minimizar os danos, reduza o tempo de exposição à água sanitária em 20%-30% em comparação com protocolos do tipo selvagem e verifique a integridade do embrião microscopicamente após o tratamento.
Considerações sobre atraso no desenvolvimento: Mutantes RAC1/CED-10 amadurecem mais lentamente do que vermes do tiposelvagem 10. Para alcançar a sincronização adequada das gravações, inicie análises em vídeo com vermes do tipo selvagem para estabelecer uma referência temporal e registrar mutantes em estágios morfológicos correspondentes (por exemplo, morfologia vulvar) em vez de por idade cronológica.
Justificativa do fluxo de trabalho: Conduzir experimentos iniciais com C. elegans selvagem controla a variabilidade ambiental e fornece uma referência para ritmos normais de defecação. Devido a atrasos no desenvolvimento em mutantes RAC1/CED-10-10, os cronogramas de gravação devem ser adaptados para priorizar comparações de estágio (em vez de estritamente por etários).
Considerações de tempo específicas por cepa: Atrasos no desenvolvimento em mutantes exigem um agendamento experimental flexível, com ênfase em corresponder aos estágios de desenvolvimento entre genótipos, em vez de depender apenas da idade cronológica.
Limitações do modelo do nematoide
Embora C. elegans não possua a complexidade anatômica e a redundância das vias dos sistemas mamíferos — uma limitação para alguns estudos translacionais — sua simplicidade é vantajosa para examinar funções biológicas discretas. Focar na motilidade intestinal aproveita essa força, já que a fisiologia otimizada do nematoide permite a análise precisa de parâmetros funcionais específicos. Embora estudos complementares em mamíferos sejam necessários para validação terapêutica, C. elegans oferece uma plataforma excepcional para a investigação mecanicista de processos biológicosconservados 21,23.
Nosso modelo também carece de α-sinucleína endógena, que é benéfica para o estudo precoce da DP pré-clínica (doença de Parkinson), um estágio em que a constipação pode surgir como sintomaprodrômico 3. O ciclo de defecação fornece uma medida objetiva e de alta cadência, mas reflete apenas um aspecto da disfunção gastrointestinal e não é específico da doença.
Embora este ensaio não capture agregação progressiva de α-sinucleína, neurodegeneração complexa ou patologia sistêmica relacionada à idade observada em DP5 humano, observamos alterações na função dopaminérgica e GABAérgica e na sinalizaçãoRac1 6 interrompida, destacando a relevância mecanicista desse modelo. Portanto, continua sendo valioso para dissecar os mecanismos neurogastrointestinais e vias conservadas relacionados à DP no início da época.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
A A.M.J. reconhece a bolsa de doutorado (FPU18/05190) no âmbito do doutorado em Biotecnologia da Universitat Autònoma de Barcelona. AL e AMJ reconhecem o financiamento PID2021-122645OB-100 e PID2024-1576370B-100 pelo MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa"; o Programa "Severo Ochoa" para Centros de Excelência, em P&D CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, e o programa de pesquisa e inovação Horizon Europe da União Europeia sob o acordo de subvenção nº 101057527 (NextGEM). A EDC reconhece o apoio da bolsa APR-2024 (PMI24006), financiada pela Fundació d'Estudis Superiores en Ciències de la Salut (FESS) e pela Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Placas multipoço de cultura de 12 poços, tratadas, estéreis | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Para preparar placas NGM |
| Bactopeptona | VWR | 90000-264 | Para preparar placas NGM |
| Água sanitária | Qualquer casa | Para o processo de branqueamento | |
| CaCl2 | Labkem | CACH-02P-1K0 | Para preparar placas NGM |
| Centrífuga Sorvall ST8 | Sorvall | 15194923 | |
| Colesterol | Sigma-Aldrich | C8667-25G | Para preparar placas NGM |
| Relógio | Janelas | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Etanol | Panreac | 131086.1214 | Para preparar placas NGM |
| Incubadora 20 & deg; C | Ecogen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | Para preparar o tampão M9 |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; Para preparar placas NGM |
| MgSO4 | Sigma-Aldrich | M7506 | Para preparar placas NGM; Para preparar o tampão M9 |
| Microscópio | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | Para preparar o tampão M9 |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | Para preparar o tampão M9 |
| NaCl | Sigma-Aldrich | S5886 | Para preparar placas NGM; Para preparar o tampão M9; LB |
| NaOH | Sigma-Aldrich | 567530 | Para o processo de descolorimento; LB |
| Ferramenta de Corte no Windows | Janelas | V 11.2504.42.0 | |
| Triptona | CONDA | 1612 | LB |
| Extrato de levedura | CONDA | 1702 | LB |
Referências
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Reimpressões e permissões
