Este protocolo descreve o uso de um sistema miniaturizado de bicamada lipídica planar de Montal–Mueller com amplificação integrada para realizar gravações estáveis de canais individuais. O método é demonstrado pela reconstrução de um canal K2P sintético purificado para validar o desempenho do sistema.
Artigo de método
Eletrofisiologia de Canal Único Utilizando um Sistema Miniaturizado de Bicamada Lipídica Plana de Montal–Mueller para Gravação de um Canal K2P Sintético
Neste artigo
Resumo
Resumo
O reconstituição funcional de canais iônicos em bicamadas lipídicas planares fornece uma estratégia para investigar a atividade do canal em nível de molécula única. No entanto, os sistemas convencionais de bicamada de Montal–Mueller normalmente exigem configurações experimentais volumosas, montagem manual da câmara e volumes relativamente grandes de gravação, o que aumenta o consumo de reagentes e pode introduzir fontes adicionais de ruído elétrico devido à fiação prolongada e estágios externos. Aqui, apresentamos uma plataforma de bicamada miniaturizada e pronta para uso (BLMchipMM) integrada a um amplificador compacto que permite gravações estáveis de canal único com redução no consumo de reagentes e operação simplificada. Este protocolo descreve o uso desse sistema para realizar medições de eletrofisiologia de canal único. Utilizando este sistema, reconstituímos um canal K2P sintético (ancTREK1) e o utilizamos como proteína-teste de prova de princípio para validar a reconstituição e a gravação de canal único. As gravações de canal único mostram uma relação corrente–voltagem em soluções simétricas de K+ livres de Mg2+, com valores de condutância consistentes com os relatados para canais TREK1. A reconstituição bem-sucedida deste canal semelhante a K2P demonstra a utilidade deste sistema para análise de canal único em membranas artificiais.
Introdução
O reconstituição de canais iônicos em membranas bilitáteras artificiais, também conhecidas como membranas lipídicas negras (BLMs), é uma das técnicas estabelecidas para realizar a caracterização eletrofisiológica de canais iônicos no nível de única molécula1. As vantagens das BLMs decorrem de sua estrutura. De fato, uma bicamada lipídica planar (PLB) é criada dentro de um poro em uma superfície não polar, separando duas soluções líquidas. Assim, ao imitar uma membrana biológica, permite o registro da atividade de canais iônicos sob condições altamente controladas, incluindo a composição lipídica da membrana e as concentrações de eletrólitos ou compostos químicos, ao mesmo tempo que permanece acessível por ambos os lados. Essa acessibilidade também permite que os canais iônicos sejam inseridos diretamente, por exemplo, a partir de uma solução micelar ou por fusão mediada por lipossomos2,3.
O primeiro sistema de membrana artificial descrito foi criado usando a técnica de pintura4, na qual uma gota de lipídios dissolvidos em um solvente orgânico não volátil é aplicada sobre uma pequena abertura com um pincel. A adição de uma solução aquosa em ambos os lados da abertura leva então à formação espontânea de uma bicamada lipídica. No entanto, uma desvantagem significativa desse método é a retenção de traços de solvente, o que pode afetar as propriedades da membrana. Para reduzir a quantidade de solvente orgânico residual nas bicamadas lipídicas, foi desenvolvido o método de dobramento5, permitindo a formação de membranas lipídicas bimoleculares (BLMs) “livres de solvente”. Nessa abordagem, uma solução lipídica em um solvente volátil é espalhada sobre a superfície da água para formar duas monocamadas, e ao elevar gradualmente o nível da fase aquosa acima da abertura, essas monocamadas lipídicas dobram-se sobre a abertura, formando uma bicamada. Contudo, embora a BLM resultante seja definida como livre de solvente, a formação bem-sucedida da bicamada exige o pré-tratamento da abertura com uma fina camada de solvente não volátil. O elemento central necessário para esses experimentos consiste em uma câmara de registro com dois compartimentos aquosos (geralmente denominados cis e trans), separados por um septo lipofílico com uma pequena abertura (de 50–250 µm de diâmetro) (Figura 1). Eletrodos de cloreto de prata/prata (Ag/AgCl) são inseridos em cada compartimento. Quando imersos na solução eletrolítica, esses eletrodos estabelecem a conexão eletroquímica entre a bicamada lipídica e o equipamento de registro. Este último consiste em um amplificador de fixação de voltagem, que permite o controle preciso do potencial transmembranar e a medição simultânea das correntes iônicas que atravessam proteínas formadoras de poros incorporadas na membrana.
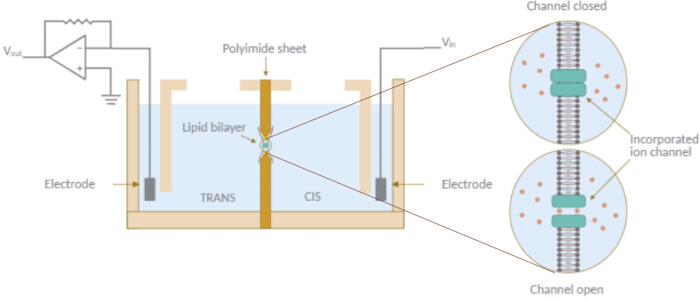
Figura 1: Esquema da montagem para eletrofisiologia em bicamada lipídica planar (PLB). Um esquema dos componentes essenciais necessários para experimentos com PLB. A câmara de gravação consiste em dois compartimentos aquosos (cis e trans) separados por um septo lipofílico contendo uma abertura onde é formada uma bicamada lipídica. Eletrodos de cloreto de prata/prata (Ag/AgCl) são imersos na solução eletrolítica em cada compartimento. Um eletrodo aplica estímulos de tensão (por exemplo, formas de onda senoidal, quadrada ou triangular), enquanto o outro, mantido em terra, conecta-se a um conversor de corrente em tensão que transforma a corrente iônica em um sinal de tensão proporcional. O sinal é amplificado, opcionalmente filtrado, digitalizado e registrado para monitoramento e análise em tempo real. Clique aqui para visualizar uma versão maior desta figura.
Outros métodos também foram estabelecidos para formar bicamadas lipídicas artificiais (BLMs). Entre eles, uma abordagem comum consiste em criar bicamadas lipídicas suspensas na ponta de uma pipeta para patch-clamp. Assim, o método de imersão da ponta6 permite a formação de uma bicamada lipídica livre de solvente suspensa na abertura de uma micropipeta de vidro com diâmetro de aproximadamente 4 µm, imergindo-se repetidamente a ponta através de uma monocamada lipídica na interface ar–água, capturando assim uma única monocamada durante cada passagem. A técnica de patch-clamp também tem sido usada para medições de canais individuais em bicamadas lipídicas. Por exemplo, no método de perfuração7, uma pipeta de vidro com diâmetro entre 10 e 80 µm é utilizada para selar uma membrana grande originalmente pintada sobre uma abertura em uma câmara de gravação. Alternativamente, o método de lipossomo-patch envolve o uso de uma vesícula pré-formada, de tamanho nano a micro, como uma BLM livre de solvente8,9. Em particular, vesículas unilamelares gigantes têm sido amplamente utilizadas para gravações de canais individuais por meio de diferentes configurações de patch-clamp, incluindo os modos ligado à célula e fragmento excisado10,11.
Várias plataformas também surgiram para a formação paralela e automatizada de múltiplas bicamadas. Uma dessas abordagens é a técnica da bicamada de interface entre gotículas (DIB, na sigla em inglês)12, na qual gotículas aquosas são colocadas em uma mistura de lipídio e solvente. Nesse método, monocamadas lipídicas se organizam espontaneamente ao redor das gotículas, e a formação da bicamada ocorre quando duas gotículas entram em contato. Em algumas configurações, as DIBs podem ser formadas sobre hidrogéis para melhorar a estabilidade da membrana13. Uma abordagem alternativa baseada na formação de DIB na ponta de uma pipeta de vidro é o método da bicamada de bolhas em contato (CBB, na sigla em inglês)14, no qual bolhas aquosas são introduzidas em uma fase oleosa usando duas micropipetas. Como na abordagem DIB, uma bicamada lipídica forma-se espontaneamente quando duas bolhas revestidas com lipídio são colocadas em contato. Outra plataforma é representada pelos sistemas de BLM em arranjo, que consistem em arranjos de poros bem definidos, em escala micro a nanométrica, organizados em um padrão de grade. Nessas plataformas, bicamadas lipídicas suspensas podem ser formadas manualmente — por meio de técnicas de pintura ou dobramento, ou pela ruptura de vesículas lipossomais15,16,17 — ou automaticamente pela injeção sequencial de soluções de lipídio e tampão, quando acopladas a estruturas de canais microfluídicos18,19.
Embora muitos métodos tenham sido desenvolvidos para formar bicamadas lipídicas sem solvente (BLMs), neste trabalho focamos no método de dobramento implementado em uma plataforma miniaturizada e integrada para investigar o comportamento de canais individuais de proteínas de membrana inseridas em uma bicamada lipídica artificial. Os experimentos foram realizados utilizando o sistema Elements, que consiste em dois componentes: o Leitor de Nanoporos Elements (amplificador eNPR) e o BLMchipMM (Figura 2A e Figura 2B). O primeiro é um amplificador compacto e de baixo ruído para potencial fixo (voltage-clamp) que simplifica o espaço de trabalho ao constituir uma unidade completa e independente, eliminando a necessidade de dispositivos externos adicionais. O BLMchipMM é um sistema pré-montado e miniaturizado projetado para a técnica Montal–Mueller e atua como interface experimental. Ele consiste em uma câmara de registro transparente feita de polimetilmetacrilato (PMMA), integrada a uma placa de circuito impresso (PCB), que inclui dois conectores projetados para acomodar fios de Ag/AgCl que servem como eletrodos para conexão direta ao amplificador. A estrutura principal da câmara é composta por um septo de poliimida selado entre dois componentes transparentes de PMMA. O septo tem 50 µm de espessura, exceto em uma pequena região central (3,78 mm2), onde a espessura é reduzida a 25 µm para facilitar a formação da bicamada. No centro dessa região mais fina, uma abertura cônica é criada por perfuração a laser, o que melhora a estabilidade mecânica da bicamada lipídica20,21. Quatro diâmetros de abertura (50, 75, 100 e 140 µm) estão disponíveis, permitindo o ajuste da capacitância da membrana (Tabela 1). Cada componente de PMMA possui uma cavidade em forma de C com volume de 110 µL, formando dois compartimentos fluidos em ambos os lados do septo de poliimida para conter a solução eletrolítica. Dois canais fluidos inclinados são perfurados em cada bloco de PMMA em lados opostos: um canal é usado para inserir o eletrodo de Ag/AgCl, enquanto o outro permite o ajuste manual do nível do tampão no reservatório por pipetagem.
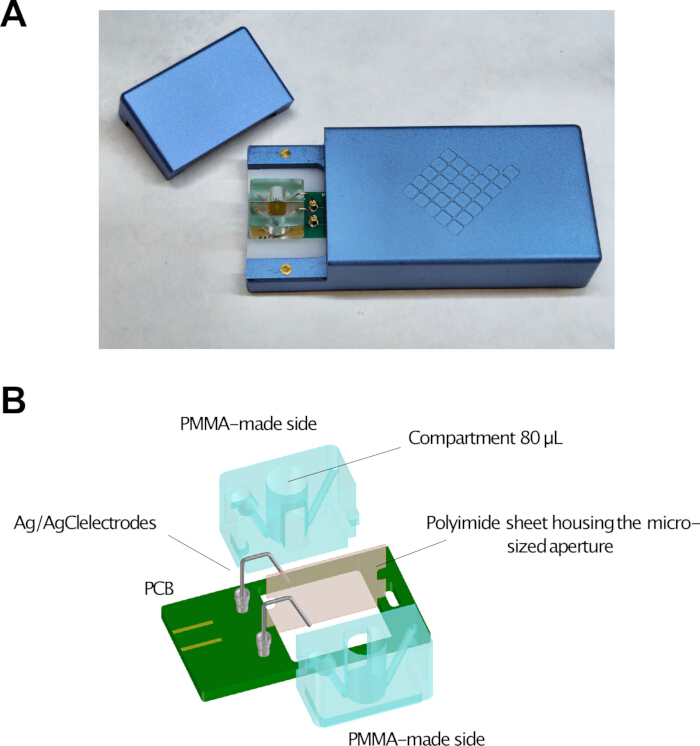
Figura 2: Sistema integrado de Leitor de Nanoporos Elements e BLMchipMM. (A) Fotografia mostrando o BLMchipMM inserido no encaixe dedicado do amplificador Leitor de Nanoporos Elements (eNPR). (B) Representação esquemática dos componentes do BLMchipMM, incluindo a câmara de gravação de polimetilmetacrilato (PMMA), o septo de politrimida contendo a abertura em escala micrométrica e a placa de circuito impresso (PCB) com soquetes para eletrodos de Ag/AgCl e um encaixe para alinhamento da câmara. Clique aqui para visualizar uma versão maior desta figura.
| Diâmetro do orifício (µm) | 50 | 75 | 100 | 140 |
| Espessura do orifício (µm) | 25 | 25 | 25 | 25 |
| Capacitância típica da membrana (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tabela 1: Características dos formatos de abertura disponíveis do BLMchipMM. Diâmetro do orifício, espessura da septa na região da abertura e valores típicos de capacitância da membrana para dispositivos BLMchipMM com aberturas de 50, 75, 100 e 140 µm. Os valores de capacitância da membrana são mostrados para bicamadas formadas a partir de lipídios de 1,2-difitanoil-sn-glicerol-3-fosfocolina.
Normalmente, as câmaras de gravação utilizadas em laboratórios são unidades caseiras ou dispositivos comercialmente disponíveis. No primeiro caso, a construção do sistema envolve a montagem de vários componentes e o desenvolvimento de um método confiável para criar a abertura na séptula, o que pode limitar o acesso para muitos laboratórios. Mesmo quando dispositivos comerciais são utilizados, muitas vezes é necessária a integração manual de múltiplos componentes antes de cada experimento. Em contraste, o BLMchipMM vem pré-montado e não requer desmontagem entre experimentos para procedimentos rotineiros de limpeza. A mesma unidade pode ser lavada e reutilizada em múltiplos experimentos sem comprometer a qualidade da formação da membrana, desde que os solventes utilizados sejam compatíveis com os materiais do dispositivo. Isso reduz a variabilidade dependente do usuário e minimiza o risco de vazamentos associados a elementos de vedação manuais. O uso de eletrodos externos de fio de prata, substituíveis e passíveis de recondicionamento, prolonga ainda mais a vida útil do sistema, especialmente em condições experimentais que aceleram o consumo dos eletrodos.
Além disso, dispositivos caseiros frequentemente possuem volumes grandes de compartimentos, aumentando a quantidade de componentes biológicos e químicos necessários para os experimentos. Em contraste, a miniaturização do BLMchipMM permite a redução dos volumes experimentais, diminuindo significativamente o consumo de reagentes, proteínas e outros compostos. Isso é particularmente vantajoso ao trabalhar com proteínas de membrana de difícil expressão ou baixo rendimento, ou quando o alto custo da síntese de compostos-teste aumenta o custo total dos experimentos. Importante ressaltar que o BLMchipMM possibilita a formação de bicamadas com quantidade mínima de solvente e suporta configurações de membranas assimétricas, nas quais cada folheto pode ser composto por espécies lipídicas diferentes5,22, facilitando o estudo da função de proteínas de membrana em condições controladas.
Tradicionalmente, as medições de corrente são realizadas usando amplificadores projetados para experimentos de patch-clamp, que frequentemente exigem conexão a um digitizador separado para aquisição de dados e controle por meio de interfaces gráficas. Esses sistemas não são apenas volumosos e caros, mas também geralmente envolvem procedimentos de configuração não intuitivos para usuários não especializados. Além disso, devido ao tamanho da câmara de gravação e ao design dos amplificadores padrão — que normalmente não possuem blindagem embutida para proteger a entrada do estágio inicial contra interferência eletrostática — o uso de uma gaiola de Faraday externa é muitas vezes necessário. A qualidade e o aterramento dessa gaiola podem afetar significativamente o desempenho do sistema em termos de ruído. O BLMchipMM, quando usado com um amplificador integrado compacto, simplifica essa configuração ao reduzir a necessidade de componentes externos. A digitalização do sinal ocorre dentro do próprio dispositivo, e o invólucro do sistema fornece blindagem que reduz a suscetibilidade à interferência eletromagnética ambiente.
Para demonstrar a aplicabilidade desta plataforma, o canal semelhante a K2P ancTREK1, um membro ancestral derivado computacionalmente da subfamília TREK (Figura Suplementar 1), foi utilizado como proteína-teste para validar o sucesso da reconstrução e da gravação de canais individuais. Os canais K2P formam canais de vazamento de potássio diméricos que regulam o potencial de membrana em repouso e a excitabilidade celular, sendo os canais TREK uma subfamília bem caracterizada.
Protocolo
Este estudo não envolveu participantes humanos, materiais derivados de humanos ou animais de experimentação. Consequentemente, a aprovação ética não foi necessária de acordo com as diretrizes institucionais e nacionais.
1. Prepare o Equipamento de Eletrofisiologia
- Calibração do instrumento
Embora a calibração formal não seja necessária porque o sistema é configurado de fábrica, verifique o funcionamento adequado do sistema antes da formação da membrana.- Meça a resistência de entrada em condições de circuito aberto (ou seja, sem o BLMchipMM inserido). A resistência medida deve ser ≥1 TΩ, confirmando a integridade da entrada do amplificador.
- Verifique a resposta do sistema utilizando uma célula modelo contendo um resistor de 1 GΩ. A resistência medida deve ser de 1 GΩ dentro de ±30%, compatível com a tolerância do resistor integrado.
- Meça o ruído de fundo em condições de circuito aberto com tensão constante (0 mV). O ruído RMS deve ser ≤300 fA com taxa de amostragem de 10 kHz e largura de banda de 5 kHz, confirmando o desempenho de baixo ruído do sistema.
- Preparar os eletrodos de Ag/AgCl
- Para o primeiro uso, lave os fios de prata com etanol e água bidestilada.
- Para fios previamente utilizados, use uma lixa de grão extrafino para remover a camada antiga de Ag/AgCl da superfície do fio até que a superfície apresente prata brilhante uniforme com brilho metálico limpo e sem resíduos visíveis. Em seguida, lave com etanol e água bidestilada.
- Clorine a parte terminal dos fios de prata mergulhando-os em hipoclorito de sódio (NaOCl) a 1%–5% (Figura 3A) até que fiquem cinza-claros, normalmente por 15–30 min. Monitore os fios clorinados ao longo do tempo quanto à degradação durante o uso, que se manifesta como mudança de cor, deriva na corrente de fundo ou ambos.
NOTA: A cloração pode ser realizada usando água sanitária doméstica comum (NaOCl a 1%–5%).
ATENÇÃO: Não clorine os fios ao longo de todo o seu comprimento. Deixe a parte terminal que se encaixa no soquete da PCB sem cloração para garantir uma conexão elétrica adequada.
ATENÇÃO: Os soquetes na PCB são projetados para fios de prata com diâmetro de 0,5 mm. Outros diâmetros podem não se encaixar corretamente ou podem resultar em conexões instáveis.
- Montar o BLMchipMM
- Insira a parte terminal não clorinada dos dois fios de prata nos soquetes da PCB. Use pinças, se necessário, para posicioná-los corretamente (Figura 3B).
- Coloque as extremidades clorinadas dos fios nos canais fluidicos perfurados no componente de PMMA (Figura 3C).
- Gire suavemente o BLMchipMM e monte-o na PCB encaixando o dente inferior da câmara de gravação de PMMA na ranhura dedicada (Figura 3D).
- Verifique a posição dos fios e certifique-se de que eles alcancem o final dos canais fluidicos. Se necessário, empurre suavemente os fios até que as pontas apareçam na parte inferior dos compartimentos (Figura 3E).
ATENÇÃO: Posicione os fios o mais próximo possível do componente de PMMA. Uma curvatura excessiva pode causar contato com a tampa do amplificador, resultando em curto-circuito e saturação do sinal.
- Preparar os lipídios e a solução de gravação
- Prepare 100 µL de uma solução de hexadecano a 1% (v/v) em n-hexano a 100% para pré-tratamento da abertura do septo. Armazene esta solução a −20°C por até uma semana.
- Resuspenda os lipídios de 1,2-difitanoil-sn-glicerol-3-fosfocolina (DPhPC) em n-pentano a 100% até uma concentração final de 15 mg/mL. Armazene esta solução a −20°C por até 24 h.
- Prepare a solução eletrolítica de gravação em temperatura ambiente (TA; 20°C–25°C) misturando 3 mL de uma solução estoque de KCl 1 M com 150 µL de uma solução estoque de ácido 4-(2-hidroxietil)-1-piperazinaetanosulfônico 1 M (pH 7,4 ajustado com KOH usando um pHmetro). Adicione água bidestilada para atingir o volume final de 15 mL. Armazene a solução a 4°C por até uma semana (Tabela 2).
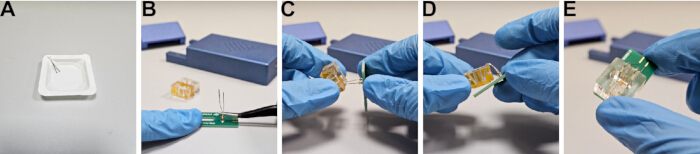
Figura 3: Montagem do dispositivo BLMchipMM. (A) Cloração dos fios de Ag por imersão em água sanitária. (B) Inserção dos fios de Ag nos soquetes da PCB. (C) Posicionamento dos fios de Ag nos canais microfluídicos. (D) Colocação da câmara de registro sobre a PCB. (E) Verificação do posicionamento adequado dos eletrodos dentro dos canais fluídicos. Clique aqui para visualizar uma versão maior desta figura.
| Reagente | Concentração final | Volume |
| Água bidestilada | — | Completar até 15 mL |
| Cloreto de potássio (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tabela 2: Solução eletrolítica para gravação. Composição da solução eletrolítica utilizada para gravações em PLB, incluindo concentrações de reagentes e volumes de preparação. O volume final é ajustado para 15 mL com água bidestilada. A solução de gravação deve ser filtrada utilizando um filtro de seringa de 0,2 µm antes do uso.
OBSERVAÇÃO: Filtre a solução de gravação utilizando um filtro de seringa de 0,2 µm antes do uso. Os lipídios DPhPC podem ser fornecidos como pó seco ou dissolvidos em clorofórmio. Armazene ambas as formas a −20°C em frascos de vidro selados sob gás inerte para prevenir oxidação. Deixe o pó seco atingir o equilíbrio à temperatura ambiente antes de abrir. Prepare soluções frescas a partir do pó seco e utilize-as dentro de 24 h. Se estiver usando estoques em clorofórmio, evapore completamente o solvente sob nitrogênio antes da ressuspenduição, pois o clorofórmio residual pode desestabilizar a membrana.
2. Formar a BLP pelo método de Montal–Mueller
Os seguintes passos descrevem a formação de membranas artificiais utilizando o método de dobramento, também conhecido como técnica de Montal–Mueller5 (Figura 4). Esta abordagem envolve o pré-tratamento da abertura do septo com uma fina camada de hexadecano a 1% (v/v) em n-hexano, a deposição de uma solução lipídica para formar monocamadas na interface ar–água e o dobramento das monocamadas sobre a abertura conforme o nível da solução eletrolítica é aumentado sequencialmente nos compartimentos da câmara.
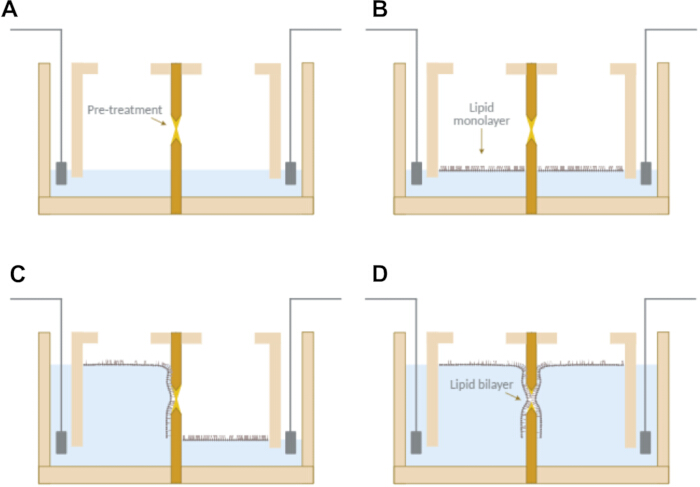
Figura 4: Formação de BLPs utilizando o método de Montal–Mueller. (A) Pré-tratamento da abertura com 1% de hexadecano em n-hexano e preenchimento dos compartimentos até o nível da abertura. (B) Formação de monocamadas lipídicas na interface ar–água. (C e D) Elevação sequencial do nível do tampão em cada compartimento, levando à dobragem das monocamadas e formação de uma bicamada lipídica livre de solvente através da abertura. Clique aqui para visualizar uma versão maior desta figura.
- Formar a membrana
- Pré-tratar a abertura do septo com uma solução de hexadecano a 1% (v/v) em n-hexano usando uma ponteira de pipeta. Aplicar aproximadamente 2 µL por lado (Figura 4A).
- Deixar o solvente evaporar por 5 min a 23°C–25°C e 45%–50% de umidade relativa.
- Inserir o BLMchipMM montado no amplificador.
- Conectar o amplificador ao computador por meio de um cabo USB e abrir o software de aquisição.
- Definir a faixa de corrente em 2 nA e ativar a ferramenta de estimativa RC para monitorar a capacitância e resistência da membrana.
NOTA: As configurações da estimativa RC são definidas por padrão, mas podem ser ajustadas se necessário. - Encher cada compartimento com 30 ± 2 µL de solução de registro até a margem inferior da abertura (Figura 4A).
CAUTELA: Não permitir que a solução de registro molhe a região ao redor da abertura. - Aplicar gota a gota 2,5 ± 0,1 µL de solução lipídica sobre a superfície da fase aquosa em cada compartimento (Figura 4B).
- Deixar o solvente evaporar por 2 min.
- Posicionar uma ponteira de pipeta no fundo de um compartimento em um ângulo aproximado de 90° e adicionar 80 ± 2 µL de solução de registro. Repetir para o segundo compartimento (Figura 4C e Figura 4D).
NOTA: Os tempos de evaporação do solvente referem-se a condições de 23°C–25°C, ar estático e 45%–50% de umidade relativa. - Fechar a tampa da gaiola de Faraday e monitorar o sinal de corrente. Valores de resistência da membrana acima de 200 GΩ indicam formação bem-sucedida da bicamada e boa integridade da membrana.
NOTA: A formação bem-sucedida da membrana é indicada por um sinal de corrente em forma de onda quadrada flutuando em torno de zero, com amplitude proporcional à capacitância da membrana (Figura 5A).
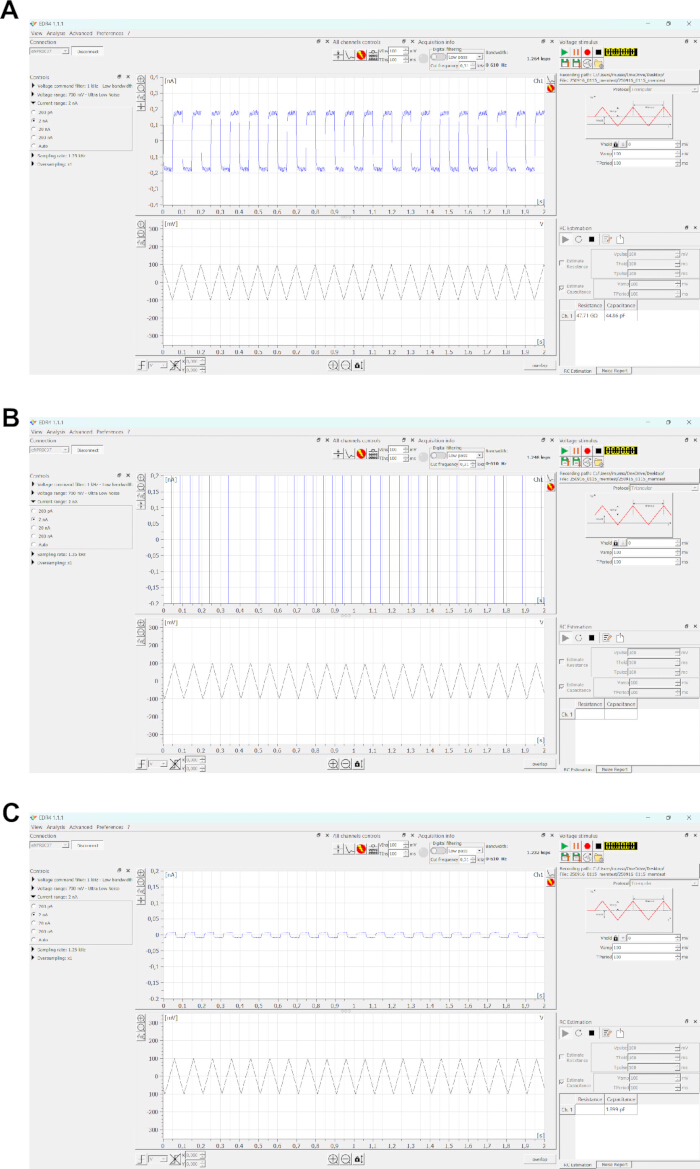
Figura 5: Monitoramento da formação da membrana utilizando a interface do software de aquisição. (A) Traçado representativo mostrando a formação bem-sucedida da membrana. Uma forma de onda de tensão triangular (100 mV pico a pico, 10 Hz) produz uma corrente capacitiva em forma de onda quadrada proporcional à capacitância da membrana (~45 pF). (B) Traçado representativo indicando ausência de formação da membrana, caracterizada pela saturação do sinal de corrente. (C) Sinal capacitivo correspondente à capacitância parasita quando a bicamada não é formada, como quando a abertura está exposta. Clique aqui para visualizar uma versão maior desta figura.
OBSERVAÇÃO: Um sinal alternando entre os limites da faixa de corrente indica falha na membrana (Figura 5B).
OBSERVAÇÃO: O ruído RMS aumenta com a capacitância da membrana e, portanto, com o tamanho da abertura. As faixas típicas de ruído medidas sob condições de voltagem constante (0 mV), com taxa de amostragem de 5 kHz e largura de banda de 2,5 kHz, são: 0,48–2,00 pA (50 µm); 0,74–2,62 pA (75 µm); 1,00–3,52 pA (100 µm); e 1,59–5,27 pA (140 µm).
OBSERVAÇÃO: Baixar e elevar o nível do tampão em um compartimento pode promover a formação da membrana caso as tentativas iniciais falhem.
OBSERVAÇÃO: Aplique uma bolha de ar sobre a abertura por aproximadamente 5 s usando a ponta de uma pipeta para facilitar a formação da bicamada, se necessário.
OBSERVAÇÃO: Reduzir o nível do tampão abaixo da abertura ou aplicar uma bolha de ar pode gerar um sinal correspondente à capacitância parasita (Figura 5C). Se a saída se assemelhar à Figura 5B, o pré-tratamento pode ter sido ineficaz. Aplique novamente a solução de pré-tratamento e os lipídios, ou limpe o dispositivo e repita o procedimento.
ATENÇÃO: Realize a compensação do deslocamento de tensão somente na ausência de uma membrana. Se uma membrana estiver presente, rompa-a utilizando a função ZAP antes de compensar.
OBSERVAÇÃO: Os experimentos podem ser realizados em uma bancada de laboratório padrão; no entanto, uma mesa antivibração pode ser utilizada, se necessário.
3. Limpe o BLMchipMM
- Remova a câmara de gravação da PCB.
- Lave ambos os compartimentos e os canais fluidicos com álcool isopropílico a 100% (IPA).
CAUTION: Não exceda 1 min de exposição ao IPA.
CAUTION: Não use acetona ou etanol a 100%, pois esses solventes podem danificar o material de vedação da câmara.
NOTE: Verifique a compatibilidade de quaisquer solventes adicionais com PMMA antes do uso. - Enxágue abundantemente com água bidestilada.
- Seque completamente a câmara de gravação usando um fluxo suave de ar comprimido até que não restem gotículas visíveis de água.
NOTE: Inspecione a câmara sob uma lupa iluminada para garantir que não haja filmes oleosos residuais. Se necessário, repita o procedimento de limpeza e secagem.
NOTE: Certifique-se de que a câmara esteja completamente limpa e seca antes de iniciar um novo experimento.
4. Expresse e purifique o canal iônico sintético (ancTREK1)
- Prepare o construto de expressão
Os passos a seguir descrevem estratégias de clonagem, expressão heteróloga em células Freestyle-293F e purificação da proteína ancTREK1.
Construa o vetor de expressão utilizando amplificação por PCR, digestão com enzima de restrição, ligação e transformação em células competentes quimicamente de Escherichia coli23,24. Expresse a sequência ancTREK1 (Figura Suplementar 1) usando um vetor mamífero contendo uma etiqueta GFP na extremidade C-terminal e uma etiqueta His₈, permitindo detecção baseada em fluorescência25,26 e purificação por afinidade em dois passos utilizando resina de ácido nitrilotriacético com níquel (Ni2⁺-NTA)27,28,29, seguida por resina com nanocorpo anti-GFP30,31,32. - Amplifique o DNA ancTREK1 por PCR
- Dilua os iniciadores de PCR e o molde de DNA para concentrações finais de 10 µM e ~20 ng/µL utilizando água estéril bidestilada.
- Descongele todos os reagentes em gelo.
- Prepare uma reação de PCR de 50 µL contendo 10 µL de tampão 5×, 2,5 µL de cada iniciador 10 µM, 2 µL de molde de DNA, 1 µL de dNTPs 10 mM, 0,5 µL de polimerase de DNA de alta fidelidade e água bidestilada estéril até completar o volume (Tabela 3). Misture suavemente e centrifugue brevemente.
- Realize a PCR nas seguintes condições: desnaturação inicial a 98°C por 3 min; 30 ciclos de 98°C por 30 s, 68°C por 30 s e 72°C por 30 s; extensão final a 72°C por 3 min (Tabela 4).
- Execute o produto da PCR em gel de agarose 1% (p/v) em tampão TAE 1× a 60 V por 90 min e recorte a faixa correta.
NOTA: Purifique os produtos da PCR utilizando um método de extração em gel, meça a concentração de DNA em 260 nm e armazene os produtos purificados a −20°C, se necessário.
- Realize a digestão por restrição
- Prepare reações de digestão contendo 2 µg do produto de PCR e 2 µg de DNA plasmidial em tubos separados. Adicione 5 µL de tampão 10×, 0,5 µL de enzima de restrição EcoRI e 0,5 µL de NotI e complete o volume para 50 µL com água bidestilada (Tabela 5).
- Misture suavemente e incube a 37°C por 3 h.
- Inative as enzimas por calor a 65°C por 20 min.
- Adicione 1 µL de fosfatase alcalina à digestão do vetor e incube a 37°C por 1 h.
- Execute os produtos digeridos em gel de agarose 1% e extraia as faixas desejadas.
NOTA: Purifique os fragmentos de DNA utilizando métodos apropriados de purificação e armazene o DNA purificado a −20°C, se necessário.
- Realize a ligação e transformação
- Prepare uma reação de ligação de 20 µL contendo vetor e inserto (razão molar 3:1), 2 µL de tampão 10× para ligase e 1 µL de enzima ligase (Tabela 6).
- Incube à temperatura ambiente (RT) por 1 h.
- Descongele células competentes quimicamente de E. coli em gelo.
- Adicione 5 µL da mistura de ligação a 50 µL de células e incube em gelo por 20 min.
- Submeta ao choque térmico a 42°C por 1 min, depois retorne ao gelo por 2 min.
- Adicione 450 µL de meio LB e incube a 37°C com agitação por 1 h.
- Centrifugue a 3.000 × g por 1 min e ressuspenda o pellet em 50 µL.
- Plaque em ágar seletivo e incube durante a noite a 37°C.
NOTA: Confirme a clonagem bem-sucedida por sequenciamento.
- Transfete células HEK293F
- Semente 250 mL de células 293F a 0,5 × 10⁶ células/mL em meio de suspensão sem soro e incube a 37°C com 6% de CO₂.
- Prepare 250 µg de DNA em um volume final de 3 mL de meio com soro reduzido.
- Prepare 750 µg de polietilenimina (PEI) em água a 1 mg/mL, ajuste o pH para 6,9–7,1 com NaOH, filtre esterilmente a solução e complete o volume final para 3 mL com meio com soro reduzido.
- Misture as soluções de DNA e PEI, agite suavemente e incube por 10 min à temperatura ambiente.
- Adicione a mistura gota a gota às células.
- Adicione butirato de sódio a uma concentração final de 10 mM após 4 h.
- Recolha as células após 48 h por centrifugação a 500 × g por 15 min.
- Armazene os pellets celulares a −80°C.
- Solubilize proteínas de membrana
- Descongele os pellets celulares de 100 mL de cultura de HEK293 em gelo.
- Ressuspenda o pellet celular em tampão de lise na proporção 1:10 (p/v) (Tabela 7).
Adicione detergente às concentrações finais de 1% de n-dodecil-β-D-maltosídeo (DDM) e 0,1% de hemissuccinato de colesterol (CHS). - Incube com rotação a 4°C por 2 h.
- Centrifugue a 100.000 × g por 1 h a 4°C.
- Recolha o sobrenadante.
CAUTELA: Realize todos os passos a 4°C utilizando tampões pré-resfriados.
- Realize a purificação por IMAC
- Empacote 500 µL de resina Ni2⁺-NTA em uma coluna por gravidade.
- Equilibre a resina com dois volumes de coluna (CVs) de tampão de equilibração (Tabela 8).
- Carregue a amostra e incube com mistura suave a 10 rpm e 4°C por 3 h.
- Posicione a coluna verticalmente e recolha o fluxo passante por gravidade.
- Lave a resina com 10 CVs de tampão de lavagem contendo 30 mM de imidazol.
- Elua a proteína com 10 CVs de tampão de eluição contendo 300 mM de imidazol.
NOTA: Analise as frações por SDS-PAGE (Figura 6). Guarde as frações de fluxo passante e de lavagem para análise. Armazene a proteína a 4°C durante a noite, se necessário.
- Realize a purificação anti-GFP
- Empacote 1 mL de resina anti-GFP em uma coluna por gravidade.
- Equilibre a resina com 2 CVs do Tampão 1 (Tabela 9). Carregue o eluato de IMAC e incube com mistura suave a 10 rpm e 4°C por 3 h.
- Posicione a coluna verticalmente e recolha o fluxo passante por gravidade.
- Lave a resina sequencialmente com 10 CVs do Tampão 1, 10 CVs do Tampão 2 e 10 CVs do Tampão 1.
- Dilua a protease HRV-3C em 2 mL do Tampão 1 numa razão protease:proteína de 1:50.
- Adicione o Tampão 1 suplementado com a protease HRV-3C à resina, misture suavemente e incube durante a noite a 4°C em posição vertical estática.
- Recolha a proteína clivada na fração de eluição.
- Concentre a amostra utilizando um concentrador centrífugo com corte de 50 kDa a 3.000 × g e 4°C até atingir um volume final de aproximadamente 500 µL.
NOTA: Analise as frações por SDS-PAGE (Figura 7). Ressuspenda periodicamente a proteína durante a concentração para evitar agregação. Armazene a proteína purificada a −80°C após congelamento rápido. Aproximadamente 60 µg de proteína podem ser obtidos a partir de 100 mL de cultura.
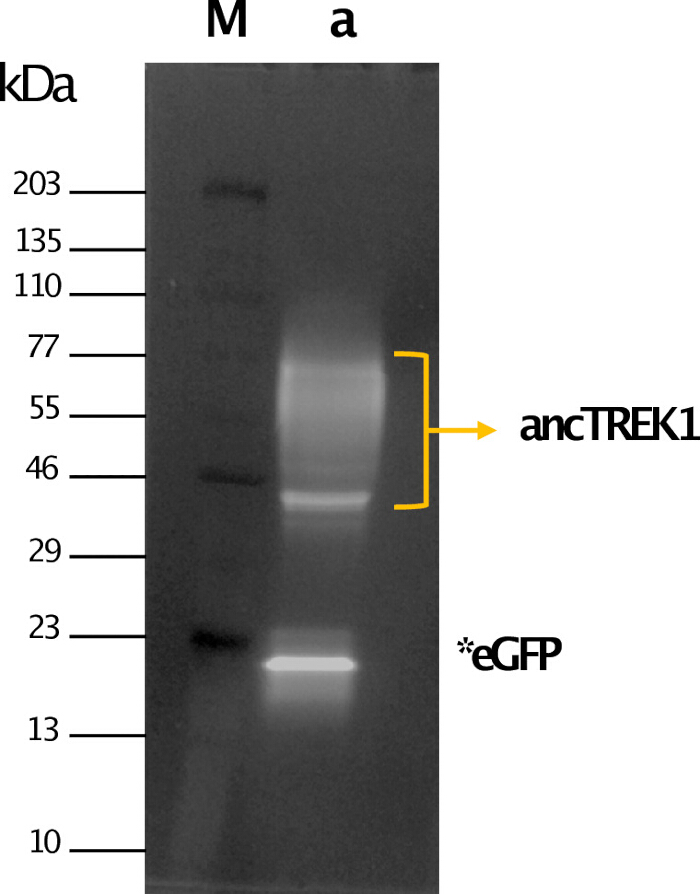
Figura 6: Purificação de ancTREK1 por cromatografia de afinidade com íons metálicos imobilizados (IMAC). Análise por eletroforese em gel de poliacrilamida com dodecilsulfato de sódio (SDS-PAGE) das frações de eluição da IMAC com detecção de fluorescência. Pista M: marcador de peso molecular. Pista a: fração de eluição da IMAC mostrando ancTREK1 com marcação de proteína verde fluorescente (GFP) (seta amarela). A GFP livre resultante da autoclívagem é indicada (*eGFP). Clique aqui para visualizar uma versão maior desta figura.
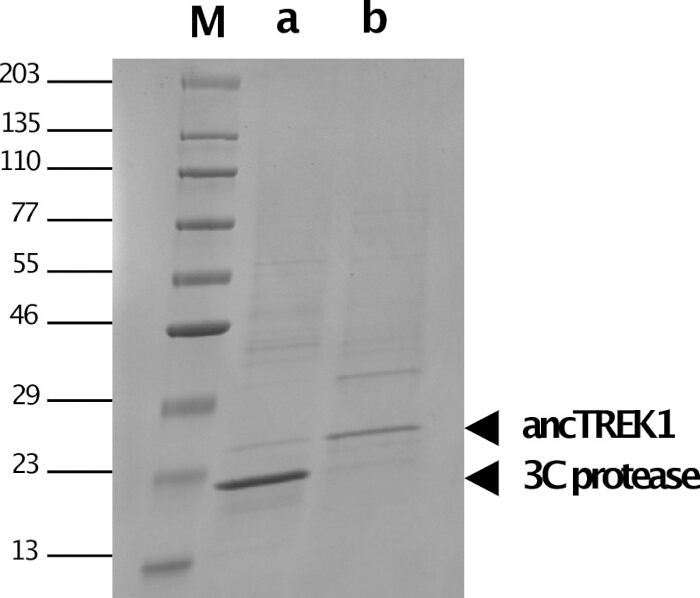
Figura 7: Purificação de ancTREK1 por cromatografia de afinidade com nanocorpo anti-GFP. Análise por SDS-PAGE das frações eluídas coradas com Azul de Coomassie. Pista M: marcador de peso molecular. Pista a: fração eluída com anti-GFP mostrando a presença da protease 3C. Pista b: ancTREK1 purificado após concentração. Clique aqui para visualizar uma versão maior desta figura.
| Reagente | Volume para reação de 50 µL | Concentração final |
| Água destilada duas vezes | Completar até 50 µL | — |
| Tampão 5× PhusionTM GC | 10 µL | 1× |
| dNTPs (10 mM cada) | 1 µL | 200 µM cada |
| Primer direto (10 µM) | 2,5 µL | 0,5 µM |
| Primer reverso (10 µM) | 2,5 µL | 0,5 µM |
| ADN molde (20 ng/µL) | 2 µL | 0,8 ng/µL |
| Polimerase PhusionTM High-Fidelity DNA | 0,5 µL | 0,02 U/µL |
Tabela 3: Configuração da reação de reação em cadeia da polimerase (PCR) para amplificação de ancTREK1. Composição dos reagentes, volumes e concentrações finais utilizados para a amplificação por PCR da sequência de DNA ancTREK1 utilizando um sistema de polimerase de alta fidelidade.
| Etapa | Temperatura | Tempo | Ciclos |
| Desnaturação inicial | 98°C | 3 min | 1 |
| Desnaturação | 98°C | 30 s | 30 |
| Anelamento | 68°C | 30 s | 30 |
| Extensão | 72°C | 30 s | 30 |
| Extensão final | 72°C | 3 min | 1 |
| Manutenção | 12°C | Manter | — |
Tabela 4: Condições de ciclagem de PCR para amplificação de ancTREK1. Parâmetros de ciclagem térmica utilizados para amplificação da sequência de DNA de ancTREK1, incluindo etapas de desnaturação, anelamento, extensão e extensão final.
| Componente | Digestão do inserto (50 µL) | Digestão do vetor e desfosforilação (50 µL) |
| ddH₂O | Até 50 µL | Até 50 µL |
| Tampão 10× ANZA Red | 5 µL | 5 µL |
| ADN | Produto de PCR ancTREK1 (2 µg) | ADN do vetor pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0,5 µL | 0,5 µL |
| Anza™ NotI | 0,5 µL | 0,5 µL |
| Fosfatase alcalina Anza™ | — | 1 µL |
Tabela 5: Digestão com enzimas de restrição do inserto e do vetor para clonagem do ancTREK1. Condições da reação para digestão com enzimas de restrição do produto de PCR do ancTREK1 e do vetor de expressão utilizando as enzimas EcoRI e NotI. A digestão do vetor inclui uma etapa adicional de desfosforilação utilizando fosfatase alcalina para prevenir a autoligação.
| Componente | Quantidade (reação de 20 µL) |
| ddH₂O | Até 20 µL |
| Tampão 10× da T4 DNA Ligase | 2 µL |
| ADN do inserto ancTREK1 (843 pb) | 10 ng |
| ADN do vetor pEG BacMam C-term 3C eGFP His8 (7673 pb) | 30 ng |
| T4 DNA Ligase | 1 µL |
Tabela 6: Condições de ligação vetor-inserção para clonagem de ancTREK1. Mistura de reação para ligação da inserção ancTREK1 no vetor de expressão pEG BacMam em uma proporção molar de 1:3 utilizando ligase de DNA T4.
| Componente | Concentração final | Quantidade (para 5 mL) |
| ddH₂O | — | Para 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| Inibidor de protease PMSF (100 mM) | 1 mM | 50 µL |
| Inibidor de protease leupeptina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inibidor de protease aprotinina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inibidor de protease pepstatina A (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2,5 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 1% | 500 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,10% | 250 µL |
Tabela 7: Composição do tampão de lise para extração de proteínas de membrana. Formulação do tampão de lise utilizada para solubilização de proteínas de membrana, incluindo sais, agentes tamponantes, inibidores de protease, nucleases e detergentes. Observação: os tampões devem ser preparados recentemente antes do uso.
| Tampão de equilíbrio (volume total de 10 mL) | ||
| Componente | Concentração final | Quantidade |
| ddH₂O | — | Para 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 0,05% | 50 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Tampão de lavagem (volume total de 10 mL) | ||
| Componente | Concentração final | Quantidade |
| ddH₂O | — | Para 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 0,05% | 50 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Imidazol pH 8 (5 M) | 30 mM | 60 µL |
| Tampão de eluição (volume total de 10 mL) | ||
| Componente | Concentração final | Quantidade |
| ddH₂O | — | Para 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 0,05% | 50 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Imidazol pH 8 (5 M) | 300 mM | 600 µL |
Tabela 8: Composições dos tampões de CMAI para a purificação de ancTREK1. Formulações dos tampões de equilíbrio, lavagem e eluição utilizados na purificação por cromatografia de afinidade com íons metálicos imobilizados de ancTREK1. Observação: as soluções podem ser armazenadas a 4 °C por até seis meses.
| Tampão 1 (volume total de 10 mL) | ||
| Componente | Concentração final | Quantidade |
| ddH₂O | — | Para 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 0,05% | 50 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
| Tampão 2 (volume total de 10 mL) | ||
| Componente | Concentração final | Quantidade |
| ddH₂O | — | Para 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecil-β-D-maltosídeo (DDM, 10%) | 0,05% | 50 µL |
| Hemissuccinato de colesterol (CHS, 2%) | 0,01% | 50 µL |
Tabela 9: Composições dos tampões para cromatografia de afinidade com nanocorpo anti-GFP. Formulações dos tampões utilizados para a purificação de ancTREK1 por cromatografia de afinidade com nanocorpo anti-GFP. Observação: as soluções podem ser armazenadas a 4 °C por até seis meses.
5. Registrar a Atividade do Canal Iônico
- Avalie a qualidade da membrana
- Feche a tampa da gaiola de Faraday.
- Aplique uma forma de onda de tensão triangular (100 mV, 10 Hz) para avaliar a capacitância da membrana.
- Aplique degraus de tensão (incrementos de ±20 mV até ±200 mV) para avaliar a resistência da membrana.
- Monitore os valores de corrente e ruído.
NOTA: Utilize uma taxa de amostragem de 5 kHz e filtragem passa-baixa de 2,5 kHz, salvo quando exigido de outra forma.
- Registre a atividade de ancTREK1
- Dilua a proteína ancTREK1 na solução de registro até ~2 µg/mL.
NOTA: Durante a diluição, realize diluições intermediárias no Tampão 1 conforme necessário para manter a concentração do detergente acima de sua concentração micelar crítica (CMC) antes da diluição final na solução de registro. - Adicione 1 µL da solução proteica diluída à câmara cis próxima à abertura do septo.
NOTA: O potencial da membrana é definido como Vcis − Vtrans. A orientação do canal não foi diretamente determinada neste estudo; portanto, os registros são descritos em relação à polaridade da tensão aplicada, e não à face atribuída da membrana. - Aplique degraus de tensão em incrementos de ±20 mV até ±120 mV.
- Monitore eventos de inserção do canal.
NOTA: A inserção do canal é indicada por transições discretas de corrente entre os estados fechado e aberto. Se nenhuma inserção ocorrer, adicione mais proteína ou reconstitua a membrana. Se múltiplos canais se inserirem, rompa a membrana e reduza a concentração de proteína.
- Dilua a proteína ancTREK1 na solução de registro até ~2 µg/mL.
Resultados
Características corrente-tensão (I-V) de membranas PLB
A natureza hidrofóbica intrínseca das membranas bicamada as torna impermeáveis a espécies carregadas. No entanto, a aplicação de um campo elétrico externo pode induzir a formação de poros transitórios de tamanho nanométrico, afetando assim a permeabilidade e a condutância da membrana33. Para avaliar a qualidade das bicamadas artificiais formadas a partir de lipídios de 1,2-difitanoil-sn-glicerol-3-fosfocolina, foram avaliadas a capacitância, a resistência e as características corrente-tensão (I–V) da membrana na ausência de proteínas inseridas. Uma série de degraus de tensão variando de ±20 a ±200 mV (em incrementos de ±20 mV) foi aplicada, e as correntes transmembrana resultantes foram registradas. Os dados foram amostrados a 5 kHz e filtrados passa-baixa em 2,5 kHz.
A capacitância da membrana (Cm) e a resistência da membrana (Rm) representam parâmetros-chave para avaliar a qualidade da bicamada. A PLB pode ser descrita por um circuito equivalente resistor–capacitor (RC), no qual a membrana se comporta como um capacitor em paralelo com um resistor34. O componente capacitivo reflete a capacidade da membrana de armazenar carga, enquanto o componente resistivo reflete a permeabilidade a íons. A aplicação de uma forma de onda de tensão triangular gera uma resposta de corrente capacitiva com formato quadrado, que é proporcional à capacitância da membrana segundo:
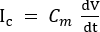 (1)
Aqui, Cm é a capacitância da membrana, V é a tensão aplicada e t é o tempo. Após a formação da membrana, os valores de capacitância podem aumentar ao longo do tempo devido ao adelgaçamento progressivo da bicamada35. Considerando a membrana como um capacitor de placas paralelas, a capacitância relaciona-se com a área e a espessura da membrana segundo:
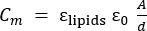 (2)
Aqui, εlipids é a constante dielétrica do núcleo lipídico (~2), ε0 é a permissividade do espaço livre, A é a área da membrana e d é a espessura da membrana36,37.
A resistência da membrana foi determinada usando a lei de Ohm33:
 (3)
Aqui, V é a tensão aplicada e Rm é a resistência da membrana. Na ausência de canais iônicos, a corrente da membrana permanece próxima de 0 pA, correspondendo a valores de resistência na faixa de giga-ohm (GΩ)33.
A relação I–V exibiu comportamento linear (ôhmico) entre 0 e ±200 mV para dispositivos BLMchipMM com aberturas de 75 e 100 µm. O ajuste linear dos dados forneceu valores de resistência da membrana de 847 ± 16 GΩ (n = 6) para a abertura de 75 µm (Figura 8A, círculos) e 980 ± 32 GΩ (n = 7) para a abertura de 100 µm (Figura 8A, quadrados). Os valores de ruído RMS, medidos em segmentos de 3 s do traçado da corrente, foram de 3,1 ± 2 pA (n = 7) para a abertura de 100 µm e 2,6 ± 0,1 pA (n = 6) para a abertura de 75 µm. A estabilidade da membrana foi avaliada mediante medição da resistência em intervalos de aproximadamente 2 min durante um período total de 1 h (Figura 8B). Membranas bem formadas permaneceram consistentemente estáveis por mais de 1 h, o que é suficiente para a maioria dos experimentos eletrofisiológicos. As membranas geralmente toleraram potenciais aplicados até ±200 mV sem sinais de instabilidade, enquanto a ruptura ocorreu entre ±220 e ±300 mV, dependendo da bicamada individual. Considerou-se que as membranas eram adequadas para inserção de proteínas quando os valores de capacitância variavam de 40 a 60 pF para aberturas de 75 µm e de 60 a 90 pF para aberturas de 100 µm, com valores de corrente de ≤0,5 pA a 100 mV.
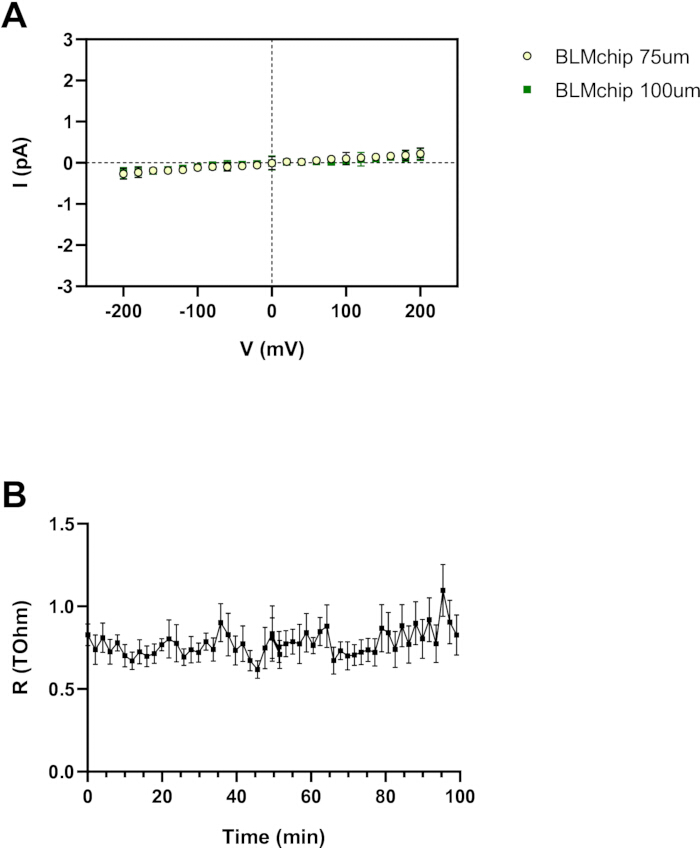
Figura 8: Caracterização elétrica de BLPs. (A) Relações corrente–tensão (I–V) de bicamadas formadas em aberturas de 75 µm e 100 µm, demonstrando comportamento linear (ôhmico) entre ±200 mV. A regressão linear fornece valores de resistência da membrana de 847 ± 16 GΩ (n = 6) e 980 ± 32 GΩ (n = 7), respectivamente. (B) Estabilidade da membrana avaliada por meio do monitoramento da resistência durante 1 h em intervalos de 2 min. As membranas permanecem estáveis até ±200 mV e rompem em tensões entre ±220 e ±300 mV. Os dados são apresentados como média ± erro padrão da média (EPM). Clique aqui para visualizar uma versão maior desta figura.
Caracterização inicial do comportamento de canais individuais de ancTREK1
O ancTREK1 sintético foi purificado e reconstruído em bicamadas lipídicas planares (PLBs), e a atividade de canais individuais foi monitorada usando protocolos de degrau de tensão que variaram de −120 a 120 mV em incrementos de 20 mV. Os registros de canal único (Figura 9A e Figura 9B) revelaram o comportamento característico de oscilação típico dos canais K2P38. Em 80 mV, a amplitude média da corrente foi de 13,02 ± 0,78 pA (n = 5), enquanto em −80 mV a amplitude da corrente aumentou para −18,72 ± 0,25 pA (n = 5) (Figura 9C). A relação I–V resultante mostrou correntes mensuráveis de canal único em potenciais positivos e negativos sob condições simétricas de potássio 200 mM livres de Mg2+ (Figura 9D). Como as amplitudes das correntes foram estimadas a partir de histogramas de todos os pontos dos registros adquiridos a 5 kHz e filtrados em baixa frequência a 2,5 kHz, essa relação I–V é apresentada como uma prova descritiva de princípio, e não como uma caracterização biofísica exaustiva.
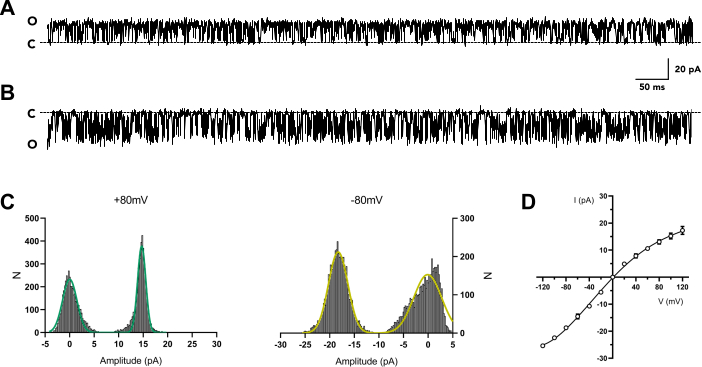
Figura 9: Atividade de canal único do ancTREK1 sintético. (A e B) Traços representativos de corrente de canal único registrados a 80 mV e −80 mV, respectivamente. Linhas tracejadas indicam o nível de canal fechado. (C) Histogramas de amplitude de todos os pontos para potenciais positivos (esquerda) e negativos (direita). (D) Relação I–V do ancTREK1 sob condições simétricas de potássio (K+) 200 mM na ausência de cátions bivalentes. A curva foi ajustada utilizando um polinômio de quarta ordem, e os valores de condutância foram derivados da inclinação em ±80 mV. Clique aqui para visualizar uma versão maior desta figura.
Embora o ancTREK1 não possua regiões N- e C-terminal estendidas em comparação com os canais TREK1 de mamíferos, ele manteve atividade funcional após a reconstrução. Em contraste com o TREK1 de mamíferos, que exibe modos de alta e baixa condutância (132 ± 5 pS e 41 ± 5 pS em potenciais positivos, respectivamente)39, o ancTREK1 exibiu apenas o modo de alta condutância. A condutância unitária em potenciais positivos foi de 112,8 ± 10,8 pS (80 mV, n = 5), consistente com os valores relatados para canais TREK (85–130 pS sob condições simétricas de potássio)38,39,40,41. Em potenciais negativos, a condutância aumentou para 205,6 ± 2,05 pS (−80 mV, n = 5), em concordância com o comportamento previamente descrito para o TREK139. Notavelmente, o ancTREK1 exibiu uma probabilidade de abertura normalizada (NPo) mais alta em comparação com medições de TREK1 obtidas usando configurações de "excised patch"42. A relação NPo–tensão mostrou aumento da atividade do canal em potenciais positivos, atingindo 0,78 ± 0,02 (n = 5) a 80 mV. Em contraste, o NPo diminuiu em potenciais negativos, com valores de 0,53 ± 0,04 a −80 mV e 0,28 ± 0,03 a −120 mV (Figura 10).
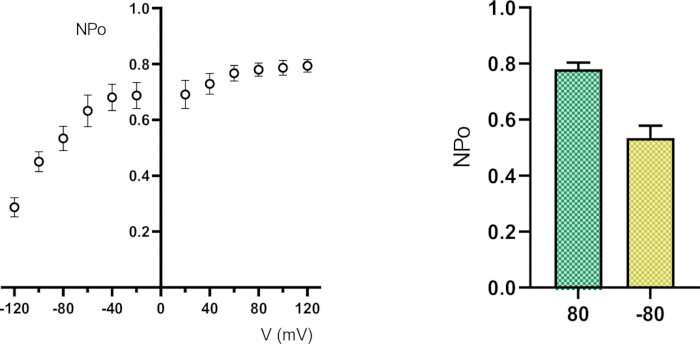
Figura 10: Análise da dependência de voltagem da atividade de canais únicos de ancTREK1. Probabilidade de abertura normalizada (NPo) em função do potencial da membrana (esquerda) e comparação da NPo em 80 mV e −80 mV (direita), mostrando aumento na abertura do canal em potenciais positivos. Clique aqui para visualizar uma versão maior desta figura.
Figura Suplementar 1. Sequência de aminoácidos do canal de potássio sintético ancestral de domínio duplo com dois poros (K2P) (ancTREK1). A sequência completa de aminoácidos do ancTREK1 utilizada para gravações eletrofisiológicas. A sequência foi reconstruída por inferência de sequência ancestral a partir de um conjunto de dados curado de membros da família TREK/TRAAK, incluindo sequências ortólogas coletadas dos bancos de dados UniProt e NCBI, filtradas por motivos conservados do poro, alinhadas e analisadas usando filogenética de máxima verossimilhança.Clique aqui para baixar este arquivo.
Discussão
Neste estudo, utilizamos a técnica PLB para avaliar as propriedades eletrofisiológicas de um canal K2P sintético em nível de molécula única. Entre os diversos modelos lipídicos planares descritos na literatura científica, focamos na formação de membranas lipídicas bilaminares (BLMs), que são pintadas sobre uma abertura com diâmetro entre 50 e 140 µm, perfurada em uma superfície não polar vertical que separa dois compartimentos aquosos. Essa configuração permite simular o ambiente da membrana celular mantendo o controle sobre parâmetros experimentais, incluindo a preparação da membrana lipídica e a composição do eletrólito (por exemplo, força iônica e pH)3. Recriamos as BLMs utilizando o método de Montal–Mueller (por dobramento)5, no qual a membrana se autoorganiza espontaneamente quando duas monocamadas lipídicas, previamente espalhadas na interface ar–água das duas soluções aquosas, se unem sobre a abertura mediante o aumento do nível da água.
O protocolo apresentado aqui para a formação da membrana é altamente intuitivo; no entanto, várias etapas críticas influenciam fortemente o sucesso experimental. Para garantir uma conexão elétrica adequada entre o BLMchipMM e o amplificador, é essencial evitar a cloração das extremidades dos fios de Ag/AgCl que são inseridos nos conectores da PCB. Durante a montagem do BLMchipMM, o posicionamento inadequado dos fios pode resultar em contato com a carcaça do amplificador, levando a curtos-circuitos e saturação do sinal. O procedimento de pré-tratamento da abertura é outro fator crítico: a aplicação excessiva de força durante a aplicação da solução de pré-tratamento pode danificar o septo de poliimida, enquanto o manuseio inadequado da solução eletrolítica—especialmente molhar a região da abertura—pode comprometer a formação da membrana. Além disso, a limpeza cuidadosa da câmara de gravação do BLMchipMM é essencial para a reprodutibilidade. O uso de álcool isopropílico a 100%, seguido por enxágue completo e secagem total, garante que resíduos não interfiram em experimentos subsequentes.
Várias modificações ao protocolo são possíveis. Embora a cloração por imersão em água sanitária represente uma abordagem prática e amplamente utilizada, métodos alternativos, como a eletrodeposição, também podem ser empregados43. Da mesma forma, variações no pré-tratamento e na preparação dos lipídios são viáveis. As soluções padrão de pré-tratamento normalmente consistem em alcanos de cadeia longa dissolvidos em solventes hidrocarbonetos voláteis36; embora uma solução de 1% de hexadecano em n-hexano seja comumente usada, outros solventes podem ser adequados. A composição lipídica também pode ser adaptada conforme as necessidades experimentais. Embora os lipídios DPhPC proporcionem estabilidade ideal da membrana, misturas lipídicas alternativas, incluindo composições naturais ou sintéticas, podem ser utilizadas36. Uma vantagem importante das bicamadas lipídicas verticais formadas pelo método de dobramento é a capacidade de gerar membranas assimétricas, nas quais cada folheto é composto por espécies lipídicas diferentes5,22, uma característica conhecida por influenciar a função de proteínas de membrana.
O diagnóstico de problemas na formação da membrana geralmente envolve ajustes nos níveis da fase aquosa. Se a formação da membrana não ocorrer inicialmente, a diminuição e elevação repetidas do nível do tampão em um compartimento podem facilitar a montagem da bicamada. Se esse procedimento for infrutífero, a aplicação de uma bolha de ar sobre a abertura pode promover a redistribuição dos lipídios e a formação da membrana. A falha persistente geralmente indica problemas relacionados ao pré-tratamento ou à contaminação, caso em que se recomenda limpar a câmara de registro e reiniciar o experimento.
Os componentes principais deste sistema incluem o amplificador compacto eNPR de 100 kHz e o BLMchipMM. O amplificador é um sistema compacto de clamp de tensão com baixo ruído que elimina a necessidade de dispositivos externos adicionais, como gaiolas de Faraday externas, já que o próprio invólucro do amplificador fornece blindagem eletromagnética eficaz. O BLMchipMM é uma câmara de gravação miniaturizada e pré-montada, integrada a uma placa de circuito impresso (PCB) para conexão direta ao amplificador. Ele consiste em dois compartimentos em forma de C separados por um septo de poliimida com uma abertura cônica perfurada a laser, onde a membrana artificial é formada. As dimensões reduzidas do sistema, com volumes dos compartimentos de aproximadamente 110 µL, diminuem significativamente o consumo de reagentes e reduzem a capacitância intrínseca, melhorando assim a qualidade do sinal. Além disso, o dispositivo pode ser reutilizado várias vezes sem desmontagem, desde que os procedimentos adequados de limpeza sejam seguidos, reduzindo a variabilidade e aumentando a reprodutibilidade experimental.
Apesar dessas vantagens, algumas limitações devem ser consideradas. A configuração atual não inclui módulos integrados para controle de temperatura, pressão ou perfusão. Relatou-se que a tensão intrínseca da membrana influencia canais mecanossensíveis, como o TREK144,45,46; no entanto, a configuração atual não permite a manipulação controlada da tensão da membrana, e nenhuma conclusão mecanicista é feita aqui. De modo geral, esta plataforma fornece um sistema robusto e acessível para o registro da atividade de canais iônicos em membranas artificiais. Neste estudo, investigamos o canal K2P sintético ancTREK1, um canal ancestral derivado computacionalmente da subfamília TREK. Os dados registrados demonstram que o ancTREK1 purificado, quando reconstruído em BLPs, exibe comportamento de canal único consistente com as propriedades de condutância semelhantes às do TREK1 já descritas. Em condições simétricas de potássio 200 mM sem Mg2+, o canal exibe uma relação I–V mensurável, com valores de amplitude de aproximadamente 13 pA em 80 mV e −19 pA em −80 mV. Além disso, o ancTREK1 exibe o modo característico de alta condutância observado em canais TREK1, com condutância maior em potenciais negativos (~205,6 pS) em comparação com potenciais positivos (~112,8 pS). Notavelmente, o ancTREK1 mostra um NPo aumentado em potenciais positivos (0,78 em 80 mV) e um NPo reduzido em potenciais negativos (0,53 em −80 mV e 0,28 em −120 mV), diferindo das observações em configurações de "excised patch"42. Esses achados apoiam o uso deste sistema para o registro, como prova de princípio, da atividade de canais únicos de proteínas de membrana reconstruídas.
Divulgações
F.T. e A.P. são o CEO e um funcionário da Elements S.r.l., respectivamente. Todos os demais autores declaram não ter conflitos de interesses.
Agradecimentos
Agradecemos a Sofia Diletta Guzzeloni pela ajuda com o procedimento de transfeção celular. Somos gratos aos funcionários da Elements, Dra. Leon Juarez e Dra. Michelangelo Paci. Este trabalho foi apoiado pelo Departamento de Medicina Molecular da Universidade de Pavia, Itália, no âmbito da iniciativa Dipartimenti di Eccellenza (2023–2027), pela Fundação Cariplo (#2019-1809) e pelo Programa de Pesquisa PNRR CN00000013 “Centro Nacional de HPC, Big Data e Computação Quântica” concedido a M.L.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 1,2-difitanoil-sn-glicerol-3-fosfocolina (DPhPC) | Avanti Polar Lipids | 850356P | Formação de bicamadas lipídicas artificiais |
| 2-Propanol (≥99,5%) | Honeywell | 24137-5L | Limpeza do dispositivo BLMchipMM |
| Agarose | Fisher BioReagents | BP160-500 | Preparação de géis de agarose |
| Sistema de eletroforese horizontal em gel de agarose | BTLabSystems | BT102 | Separacão de fragmentos de DNA |
| Ampicilina | Fisher BioReagents | BP1760-25 | Seleção de bactérias transformadas |
| Resina de Sepharose com nanocorpo anti-GFP (caseira) | — | — | Purificação por afinidade de proteínas marcadas com GFP |
| Fosfatase alcalina Anza | Invitrogen | IVGN2208 | Desfosforilação de vetor |
| Anza EcoRI | Invitrogen | IVGN0116 | Digestão por restrição |
| Anza NotI | Invitrogen | IVGN0014 | Digestão por restrição |
| Tampão vermelho Anza (10×) | Invitrogen | IVGN2008 | Tampão para digestão por restrição |
| Inibidor de protease aprotinina | Fisher Scientific | 15996008 | Prevenção da degradação proteica |
| Centrífuga de bancada | Eppendorf | EP5420000164 | Pelotização celular e preparação de amostras |
| BLMchipMM | Elements s.r.l. | — | Formação de bicamadas lipídicas planares |
| Hemissuccinato de colesterol (CHS) | Anatrace | CH210 | Estabilização de proteínas de membrana |
| Azul brilhante de Coomassie | Sigma-Aldrich | 1125530025 | Coloração de proteínas |
| Água sanitária doméstica comum | — | — | Cloração de fios de Ag |
| DNase I | Sigma-Aldrich | 11284932001 | Redução da viscosidade do lisado |
| Água bidestilada | — | — | Preparação de tampões e soluções |
| Etanol (puro, 99,9%) | Girelli Alcool s.r.l. | — | Limpeza de fios de Ag/AgCl |
| Brometo de etídio | Sigma-Aldrich | 1116080030 | Coloração de DNA |
| Papel de lixa de grão extrafino | — | — | Remoção do revestimento de Ag/AgCl dos fios |
| Amplificador eNPR 100 kHz | Elements s.r.l. | — | Registros eletrofisiológicos |
| Kit Gel-Out para extração de DNA de agarose | A&A Biotechnology | 023-250 | Purificação de DNA |
| Escada de DNA GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | Referência de tamanho de DNA |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Expressão da proteína ancTREK1 |
| HEPES (≥99,5%) | Sigma-Aldrich | H3375-500G | Agente tampão |
| Hexadecano (≥99%) | Sigma-Aldrich | H6703-100ML | Pré-tratamento de aberturas |
| Hexano (≥99%) | Sigma-Aldrich | 139386-100ML | Solvente lipídico |
| Corante de carregamento de DNA 5× caseiro | — | — | Preparação de amostras de DNA |
| Tampão SDS Laemmli 6× caseiro (redutor) | — | — | Preparação de amostras proteicas |
| Solução de descoloração caseira | — | — | Descoloração de géis SDS-PAGE |
| Protease HRV-3C caseira | — | — | Clivagem de proteínas de fusão |
| Tampão de corrida SDS-PAGE 10× caseiro | — | — | Tampão para eletroforese SDS-PAGE |
| Imidazol | Alfa Aesar | A10221 | Eluição de proteínas com marcação His |
| Colunas de purificação em lote | — | — | Fluxos de trabalho de purificação proteica |
| Incubadora agitadora Innova44 | New Brunswick Innova | M1282 | Cultivo de culturas celulares |
| KCl | Honeywell | 31248-1KG | Preparação de eletrólito e tampão |
| Caldo LB (Lennox) | Condalab | 1231 | Cultura bacteriana |
| Inibidor de protease leupeptina | Thermo Scientific | 78435 | Prevenção da degradação proteica |
| Cloreto de magnésio hexaidratado | Acros Organics | 447700010 | Componente do tampão |
| Espectrofotômetro Nanodrop | DeNovix | DS-11 | Quantificação de DNA e proteínas |
| n-Dodecil-β-D-maltosídeo (DDM) | NeoBiotech | NB-19-0056-25G | Solubilização de proteínas de membrana |
| Resina Ni Sepharose High Performance | Cytiva | 17526801 | Purificação IMAC |
| Computador portátil | — | — | Controle de instrumento e aquisição de dados |
| Ultracentrífuga Optima LE-80K | Beckman | 365668 | Isolamento de fração de membrana |
| Pentano (≥99%) | Sigma-Aldrich | 236705-100ML | Solvente lipídico |
| Inibidor de protease pepstatina A | Thermo Scientific | 78436 | Prevenção da degradação proteica |
| Tampão Phusion GC (5×) | Thermo Fisher Scientific | F519 | Tampão para PCR |
| Polimerase de DNA de alta fidelidade Phusion | Thermo Fisher Scientific | F530S | Amplificação por PCR |
| Inibidor de protease PMSF | Thermo Scientific | 36978 | Proteção proteica durante a lise |
| Polietilenimina (PEI) | Clinisciences | 24765-100 | Reagente de transfeção |
| Gel pré-moldado ProteinEle Tris-Glicina (4–20%) | TransGen Biotech | DG101-01-V2 | Separacão de proteínas |
| Sistema de eletroforese em gel SDS-PAGE | Bio-Rad | 1658002FC | Eletroforese proteica |
| Butirato de sódio | Fisher Scientific | A11079 | Potencializador da expressão proteica |
| Ligase de DNA T4 | Thermo Fisher Scientific | EL0011 | Ligação de DNA |
| Tampão de ligase de DNA T4 (10×) | Thermo Fisher Scientific | B69 | Tampão de ligação |
| Ciclador térmico (Mastercycler Nexus) | Eppendorf | 6331000025 | Amplificação por PCR |
| Base de Tris | Sigma-Aldrich | T1503-1KG | Preparação de tampão |
| Ágar triptona SOYA com lecitina e polissorbato 80 | HiMedia | M449-5KG | Plaqueamento bacteriano |
| Dois fios de Ag | Elements s.r.l. | — | Elétrodos para eletrofisiologia |
| Concentrador ultracentrífugo (corte de 50 kDa) | Merck Amicon | UFC8050 | Concentração de proteínas |
| Vetor de expressão pEG BacMam | Addgene | 160687 | Expressão proteica |
| Cabo USB | — | — | Conexão entre amplificador e computador |
Referências
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve