Este estudo identificou genes compartilhados, vias biológicas, associações imunes e potenciais alvos terapêuticos subjacentes ao diabetes mellitus tipo 2 e à doença cardiovascular aterosclerótica por meio de bioinformática integrada e validação experimental.
Artigo de investigação
Mecanismos moleculares comuns e alvos candidatos a fármacos no Diabetes Mellitus Tipo 2 e na Doença Cardiovascular Aterosclerótica
Neste artigo
Resumo
Resumo
Este estudo examinou os mecanismos subjacentes à comorbidade entre o diabetes mellitus tipo 2 (DM2) e a doença cardiovascular aterosclerótica (DCASCV), identificando possíveis alvos terapêuticos. Genes comuns expressos diferencialmente (C-DEGs) entre DT2DM e DCASCV foram extraídos dos conjuntos de dados GSE78721 e GSE12288. Foram realizadas análises de enriquecimento de vias da Ontologia Genética (GO) e da Kyoto Encyclopedia of Genes and Genomes (KEGG), construção de redes de interação proteína-proteína (PPI), identificação de genes hub e análise do Banco de Dados de Interação Medicamento-Gênico (DGIdb). A associação entre os C-DEGs centrais e as células imunoinfiltrantes foi analisada usando o método CIBERSORT. Os níveis de expressão dos C-DEGs hub foram quantificados por meio de análises qRT-PCR e Western blot. Um total de 32 C-DEGs foram identificados, compreendendo 20 genes com regulação máxima e 12 genes com regulação negativa. Os C-DEGs foram predominantemente enriquecidos em vias chave, incluindo miocardite viral, cardiomiopatia arritmogênica do ventriculo direito, cardiomiopatia hipertrófica e cardiomiopatia dilatada. A análise de PPI revelou 29 nós e 39 arestas, levando à identificação de oito C-DEGs hub (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C e CS) em ambos os conjuntos de dados. Além disso, os C-DEGs hub (TOP3A, SLPI, NCF4, PRF1 e PLAU) demonstraram correlações significativas com os níveis celulares imunoinfiltrantes. Medicamentos especificamente direcionados a esses C-DEGs centrais apresentam candidatos promissores para o tratamento de DMT2 e DCASC. Além disso, a expressão dos C-DEGs hub tanto nos níveis de mRNA quanto de proteína foi validada em pacientes com DMT2 e DCASC. Uma análise integrada de bioinformática facilitou a triagem de alvos terapêuticos candidatos, mecanismos e medicamentos para DMT 2 e DCASCV, oferecendo novos insights sobre terapias moleculares para essas condições.
Introdução
Diabetes mellitus (DM) é uma doença crônica com uma etiologia complexa influenciada por vários fatores genéticos e ambientais, atualmente afetando cerca de 463 milhões de pessoas no mundo todo, com previsão de que o número suba para 700 milhões até 2045 1,2. Diabetes mellitus tipo 2 (DMT2) é uma condição multifatorial caracterizada por resistência à insulina e deficiência relativa de insulina resultante de falência das células beta, levando à hiperglicemia e dislipidemia, representando 90% dos casos deDM 3,4,5. A resistência à insulina atua como um precursor fundamental para inúmeras anormalidades metabólicas cardiovasculares que, coletivamente, facilitam o desenvolvimento da doença cardiovascular aterosclerótica (DCVES) e podem impactar seuprognóstico 6,7. A doença arterial coronariana (DAC) surge principalmente do acúmulo progressivo de material aterosclerótico, resultando em estreitamento luminal e obstrução do fluxosanguíneo 8. A aterosclerose é impulsionada por múltiplos fatores, incluindo hipercolesterolemia e diabetes 9,10. Os significativos encargos humanos e financeiros associados à T2DM e à CAD, juntamente com desafios em sua gestão a longo prazo, destacam a necessidade urgente de estratégias preventivas eficazes.
Pacientes com CAD e DM T2 concomitante enfrentam um risco marcadamente maior de eventoscardíacos 11. A doença cardiovascular (DCV) é uma complicação comum da DM T2 e representa a principal causa de mortalidade entre pacientes com DMD 2, com aproximadamente 32,2% afetados pelaDCV12. O subestudo sobre LoDoCo2 confirma que a DMT2 concomitante está correlacionada com um risco aumentado de eventos adversos graves em populações crônicas de CAD13. Indivíduos com DM T2 têm risco elevado para DSCV14,15, e aqueles com DAC crônica que também têm diabetes carregam um risco significativamente maior de eventos cardiovascularessubsequentes16, destacando uma necessidade crítica não atendida de opções de tratamento inovadoras.
Um número crescente de grupos de pesquisa está fazendo triagem para novos genes diferencialmente expressos (DEGs) em DT2DM e DCASCV por meio de análises abrangentes de dados transcriptômicos de diversos bancos de dados. Os esforços estão focados em elucidar a conexão entre essas doenças e identificar funções biológicas eficazes. Estudos recentes em bioinformática exploraram a DT2 em relação a outras condições; por exemplo, Song et al. identificaram DEGs compartilhados entre DMT2 eosteoartrite 17, Castillo-Velázquez et al. previram a relação entre doença de Alzheimer e DM18, e genes e vias importantes na DMD 2 e na síndrome dos ovários policísticos foram reconhecidos por meio de análisebioinformática 19. No entanto, os mecanismos moleculares que ligam DME2 e DCASP permanecem pouco compreendidos, destacando a importância de identificar novos alvos terapêuticos potenciais para tratar a progressão de ambas as condições.
Este estudo visa identificar sistematicamente vias moleculares compartilhadas e potenciais alvos terapêuticos entre T2DM e DCACV, conduzindo uma análise integrada de bioinformática dos dados transcriptômicos dos conjuntos de dados GSE78721 (DM2DM) e GSE12288 (DCA). Esses conjuntos de dados foram escolhidos por fornecer amostras de pacientes e controle combinadas para cada doença, utilizando plataformas de microarray comparáveis para permitir uma análise comparativa robusta. A abordagem atual envolvia identificar DEGs comuns (C-DEGs), realizar análises de enriquecimento funcional e interação proteica, avaliar associações com infiltração imune e prever fármacos interagentes. Além disso, foi realizada uma validação experimental preliminar. Este trabalho fornece novos insights e alvos candidatos para entender a comorbidade da DMT2 e da DCASC.
Protocolo
Este protocolo de estudo foi revisado e aprovado pelo Conselho de Revisão Institucional da Universidade Médica de Ningxia para ética (Número de Referência do Conselho de Revisão Interna: Ética [2023]-YCSKT-002) e estava em conformidade com os princípios estabelecidos na Declaração de Helsinque. O consentimento por escrito foi obtido de todos os pacientes envolvidos no estudo antes de sua participação.
Fontes de dados de expressão para T2DM e DCASCV
Os dados de expressão gênica para T2DM e ASCVD foram obtidos dos conjuntos de dados GSE78721 e GSE12288, respectivamente, obtidos do banco de dados GEO. Ambos os conjuntos de dados utilizaram dados de microarrays das plataformas Affymetrix Human Gene Expression Array [PrimeView] e Affymetrix Human Genome U133A Array [HG-U133A]. O conjunto de dados GSE78721 incluiu dados de expressão de 68 pacientes com DMT 2 e 62 amostras normais (detalhes na Tabela Suplementar 1), enquanto o conjunto de dados GSE12288 compreendia dados de expressão de 110 amostras de DCASCV e 112 controles normais (detalhes na Tabela Suplementar 2). As sondas genéticas eram convertidas para seus símbolos gênicos correspondentes com base nas informações de anotação da plataforma.
Identificação de genes diferencialmente expressos em DMT2 e DCASE
Após o download dos dados do banco de dados GEO, as matrizes de expressão brutas para T2DM e ASCVD foram corrigidas e normalizadas usando o pacote de software "limma" para identificar DEGs. Foi aplicado um limite de P < 0,05 para a triagem DEG. Os resultados de expressão diferencial foram visualizados usando os pacotes R 'heatmap' e 'ggplot2' para gerar um mapa de calor e um gráfico de vulcão, respectivamente. C-DEGs entre T2DM e DCA-A-A-Scorp foram identificados por meio de um diagrama de Venn.
Análise funcional da Ontologia Genética (GO) e da Enciclopédia de Genes e Genomas de Kyoto (KEGG) para enriquecimento de vias de C-DEGs
As funções e vias biológicas foram determinadas por meio de análises de enriquecimento das vias GO e KEGG. A organização do pacote R. Hs.eg.db foi usado para converter nomes de C-DEG em IDs de genes, e a análise de enriquecimento GO foi realizada usando os pacotes R clusterProfiler, enrichplot, ggplot2 e GOplot para explorar funções biológicas comuns dos C-DEGs. Posteriormente, a análise KEGG foi conduzida para identificar vias significativas compartilhadas envolvidas nos mecanismos moleculares subjacentes à comorbidade de DM2 e DCASC. Os resultados de enriquecimento GO e KEGG foram apresentados em gráficos de barras ilustrando contagem de genes, descrições funcionais e valores P , com significância estatística definida como P < 0,05.
Análise de redes de interação proteína-proteína (PPI) de C-DEGs
C-DEGs e genes hub foram definidos como genes compartilhados neste estudo. Para avaliar associações funcionais entre esses genes compartilhados, foi construída uma rede de IBP utilizando o banco de dados STRING (https://string-db.org). A análise começou selecionando "Múltiplas proteínas" na função "SEARCH" e inserindo os nomes C-DEG enquanto especificava a espécie como "Homo sapiens." Parâmetros básicos para os C-DEGs foram configurados para exibir a rede regulatória PPI. A visualização da rede PPI foi realizada usando o software Cytoscape (versão 3.9.1) (https://apps.cytoscape.org/), fornecendo uma representação gráfica das interações entre os C-DEGs. Hubs C-DEGs foram identificados dentro da rede PPI utilizando o plugin CytoHubba no Cytoscape, com base no algoritmo de classificação de grau.
Análise de infiltração de células imunes
Para examinar as diferenças na infiltração de células imunes entre o grupo T2DM e o grupo controle normal, o método CIBERSORT foi empregado para avaliar a abundância de vários tipos celulares imunoinfiltrantes. O algoritmo do teste de Wilcoxon foi posteriormente aplicado para comparar as proporções dessas células imunes infiltrantes entre amostras de DT2 e controle, facilitando a avaliação das diferenças observadas. A visualização dos dados foi realizada por meio de gráficos de violino. Para validar a correlação entre C-DEGs e células infiltradoras imunológicas, pacotes R como limma, scales, tidyverse e ggplot2 foram utilizados para calcular os coeficientes de correlação de Spearman. Essa etapa quantificou a relação entre a expressão do C-DEG e os níveis de infiltração das células imunológicas, com os resultados exibidos como mapas de calor. Um valor P inferior a 0,05 foi considerado estatisticamente significativo.
Análise de interação de C-DEGs hub com potenciais fármacos-alvo
O Banco de Dados de Interação Medicamento-Gene (DGIdb) fornece um catálogo abrangente de interações fármaco-gene e perfis genéticos de agentes terapêuticos aprovados e potenciais. Neste estudo, a lista de C-DEGs hub foi inserida no banco de dados para recuperar informações de interação entre os C-DEGs hub e seus potenciais medicamentos-alvo, o que foi então visualizado usando o software Cytoscape.
Validação experimental de genes centrais por amostras clínicas
Para validar experimentalmente os genes centrais, amostras de sangue periférico foram coletadas de sujeitos clínicos. A coorte do estudo incluiu um grupo experimental e um grupo controle. O grupo experimental consistiu em 15 pacientes diagnosticados tanto com DMT tipo 2 quanto com DCASC, representando uma condição comórbida. O grupo controle era composto por 10 voluntários saudáveis, de idade e sexo, sem histórico de diabetes, DCV ou outras doenças sistêmicas graves. Todos os pacientes do grupo experimental foram diagnosticados definitivamente seguindo as diretrizes clínicas estabelecidas para DMT2 e DCASC.
Reação em cadeia quantitativa da polimerase em tempo real (qRT-PCR)
O RNA total foi isolado usando reagente TRIzol, e o cDNA da primeira fita foi sintetizado com um Kit do Sistema de Transcrição Reversa. O cDNA foi então diluído para qRT-PCR usando a mistura mestre SYBR-green PCR, com o GAPDH atuando como controle interno. As mudanças relativas de dobra na expressão foram calculadas pelo método 2−ΔΔCt . Os espoletadores usados para a análise foram os seguintes: TUBA1C-forward: 5′-GACCTCGTGTTGGACCGAAT-3′ e reverse: 5′-CGAGGTGAACCCAACCAG-3′; NCF4 para frente: 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′ e para trás: 5′-GAATTCCTGAAAGGGCTCCTG-3′; PRF1-frente: 5′-CCCAGTGGACACACAAAGGTT-3′ e reverso: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-frontal: 5′-CCCTTCCTGTGCTGCTT-3′ e reverso: 5′-CCTCCTTGTTGGGTGGTTGG-3′; HSP90B1 para frente: 5′-CCGAAGAAGAACCTGAAGAG-3′ e para trás: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-forward: 5′-GGGGAGATGAAGTTTGAGGTG-3′ e reverso: 5′-GCAATGTTGTGTGGTGGTGGG-3′; GAPDH-frente: 5′-CAGGGCTGCTTTTAACTGG-3′ e reverso: 5′-GGGTGGAATCATATTGGAACA-3′.
Ensaio Western blot
A proteína total foi isolada, diluída em tampão de carga e separada por 10% de SDS-PAGE, seguida pela transferência para membranas PVDF. As membranas foram bloqueadas e sondadas com anticorpos primários específicos, incluindo anti-TUBA1C (1:1000, ab222849), anti-HSP90B1 (1:1000, ab238126), anti-NCF4 (1:1000, 14648-1-AP), anti-PRF1 (1:1000, ab256453), anti-SLPI (1:1000, ab46763), anti-PLAU (1:1000, 17968-1-AP) e anti-GAPDH (1:5000, 10494-1-AP). Anticorpos secundários conjugados com peroxidase de raiz-forte (HRP) (1:2000, ab6721) foram aplicados, e as bandas foram visualizadas usando substrato quimioluminescente (ECL) aprimorado.
Análise estatística
A análise estatística foi realizada usando o software GraphPad Prism, com dados apresentados como média ± SD. As diferenças entre os grupos foram avaliadas usando o teste t de Student, e um valor P inferior a 0,05 foi considerado estatisticamente significativo.
Resultados
Identificação de DEGs
Dois conjuntos de dados, GSE78721 e GSE12288, foram utilizados para análise de bioinformática neste estudo. Em GSE78721, um total de 2.266 DEGs foram identificados entre pacientes com DM T2 e amostras normais, compreendendo 1.209 genes regulados para cima e 1.057 genes para baixo (Figura 1A). Em GSE12288, 924 DEGs foram verificados entre pacientes com DSCV e controles, incluindo 403 genes superexpressos e 521 que foram regulados negativamente (Figura 1C). Os 50 principais DEGs identificados em ambos os conjuntos de dados estão representados em mapas de calor mostrados na Figura 1B,D. Ao intersectar esses dois conjuntos de dados, foram identificados 32 C-DEGs, consistindo em 20 genes regulados para cima e 12 genes para baixo (Figuras 2A,B).
Enriquecimento dos C-DEGs em GO e KEGG
Para elucidar as funções biológicas e as principais vias associadas aos 32 C-DEGs, foram realizadas análises GO e KEGG. Os dez principais termos relacionados a processos biológicos (BP), componente celular (CC) e função molecular (MF) entre os C-DEGs são apresentados na Figura 3A. As funções do BP incluem predominantemente a regulação da ativação do plasminôgeno, regulação da fibrinólise, regulação positiva da diferenciação de cardiocitos, regulação negativa da ligação de proteínas e diferenciação de cardioblastos. As funções CC referem-se ao complexo endopeptidase do tipo serina, complexos proteicos envolvidos na adesão à matriz celular, cromossomo condensado, membrana granular específica e corpo PML. A MF abrange constituintes estruturais do citoesqueleto, atividade ativadora da oxidase de NADPH geradora de superóxidos, atividade intramolecular de transferase (fosfotransferases), atividade de exopeptidase do tipo serina e ligação à IgG (Figura 3A). Em termos de análise KEGG, os C-DEGs estiveram principalmente envolvidos em vias críticas, incluindo miocardite viral, cardiomiopatia arritmogênica do ventrículo direito, cascatas de complemento e coagulação, câncer de próstata, cardiomiopatia hipertrófica, cardiomiopatia dilatada, apoptose, fagosomo e processamento de proteínas no retículo endoplasmático (Figura 3B).
Construção de redes de IBP e triagem gênica central
Entre os 32 C-DEGs, três genes não apresentaram interações conhecidas com outros C-DEGs no banco de dados STRING e, portanto, foram excluídos da construção da rede PPI. A plataforma STRING foi empregada para análise de PPI dos 29 C-DEGs restantes, revelando uma rede composta por 29 nós e 39 arestas, visualizada usando o Cytoscape (Figura 4A). Posteriormente, oito C-DEGs do hub (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C e CS) foram identificados com base em seu grau de conectividade (Figura 4B).
Diferenças na infiltração de células imunes e sua correlação com os C-DEGs hub
Esta análise focou exclusivamente no conjunto de dados T2DM (GSE78721) para investigar preliminarmente as mudanças no microambiente imunológico no contexto da T2DM e sua relação com genes hub. Gráficos de violino foram utilizados para visualizar a relação entre o conjunto de dados T2DM e os níveis de infiltração de 22 tipos de células imunes (Figura 5A; detalhes na Tabela Suplementar 3). A análise de infiltração de células imunes indicou uma proporção maior de células dendríticas ativadas no grupo T2DM em comparação com o grupo controle (P = 0,049), enquanto a proporção de células dendríticas em repouso foi significativamente menor no grupo T2DM (P = 0,023). Além disso, a relação entre os níveis de expressão dos oito C-DEGs hub e os níveis de infiltração dos 22 diferentes tipos de células imunes foi visualizada usando um mapa de calor (Figura 5B). Notavelmente, a expressão de TOP3A exibiu forte correlação positiva com o nível de infiltração das células T reguladoras (Tregs) (P < 0,001), enquanto a expressão do SLPI foi fortemente correlacionada positivamente com a infiltração das células T gama delta (P < 0,001). Por outro lado, a expressão de NCF4 mostrou forte correlação negativa com o nível de infiltração das células NK ativadas (P < 0,001), a expressão de PRF1 foi fortemente correlacionada negativamente com o nível de infiltração dos macrófagos M2 (P < 0,001), e a expressão de PLAU esteve fortemente relacionada negativamente ao nível de infiltração das células B naïves (P < 0,001).
Rede candidata de fármacos-alvo para C-DEGs hub
Entre os oito C-DEGs centrais identificados, CS e TOP3A não foram listados como alvos de medicamentos conhecidos no banco de dados DGIdb e, portanto, foram excluídos da análise subsequente de rede candidata-alvo de fármacos. Para identificar medicamentos com potenciais papéis terapêuticos no DT2DM e na DCASC, os seis C-DEGs hubs restantes foram submetidos ao banco de dados DGIdb (detalhes na Tabela Suplementar 4). Posteriormente, o Cytoscape foi empregado para construir uma rede candidata-fármaco-alvo ilustrando as associações entre C-DEGs hub e fármacos candidatos-alvo (Figura 6). Essa rede era composta por seis C-DEGs hub, 136 medicamentos moleculares e 137 arestas. Especificamente, 82, 5, 3, 4, 1 e 42 fármacos-alvo candidatos foram identificados para TUBA1C, NCF4, PRF1, SLPI, HSP90B1 e PLAU, respectivamente, com a maioria classificada como agentes antineoplásicos, anti-inflamatórios e antitrombóticos.
Validação da expressão dos C-DEGs hub
Devido à ausência de CS e TOP3A como alvos candidatos a fármacos no banco de dados DGIdb e à falta de relação direta com suas funções biológicas com estratégias terapêuticas no contexto da pesquisa sobre T2DM e DCASC, o estudo focou nos seis C-DEGs centrais restantes (HSP90B1, PLAU, SLPI, NCF4, PRF1 e TUBA1C) para validação experimental. Para explorar mais profundamente os papéis desses C-DEGs hub, foram realizados ensaios qRT-PCR e western blot para avaliar os níveis de expressão dos genes centrais em diferentes grupos (Figura 7 e Figura 8). Os níveis de expressão de TUBA1C, NCF4, SLPI, HSP90B1 e PLAU foram significativamente aumentados em pacientes com DM 2 e DCS em comparação com grupos controle saudáveis correspondentes, enquanto a expressão de PRF1 foi reduzida. Esses achados sugerem que esses genes centrais podem desempenhar um papel significativo na progressão de pacientes com DMO2 e DCASC.
DISPONIBILIDADE DE DADOS:Os conjuntos de dados de expressão gênica GSE78721 e GSE12288 usados para análise de bioinformática neste estudo estão disponíveis no banco de dados público NCBI GEO. Os dados brutos da parte de validação experimental gerados neste estudo são fornecidos no Arquivo Suplementar 1.
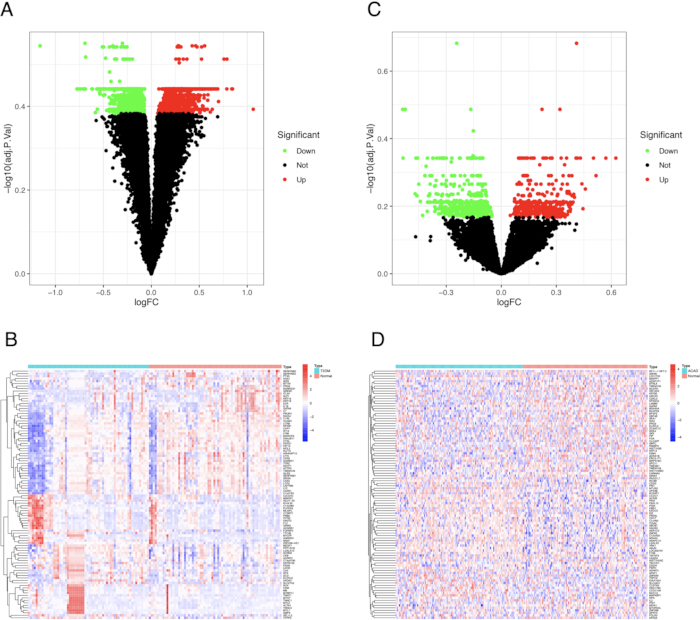
Figura 1: Identificação de DEGs nos conjuntos de dados GSE78721 e GSE12288. (A,C) Os gráficos vulcânicos dos DEGs em GSE78721 e GSE12288, respectivamente. |logFC|≥ 0,5 e P < 0,05 foram estabelecidos como limiar de triagem; Os genes regulados para cima foram marcados como vermelhos, e os genes com efeito negativo foram marcados como verdes. (B,D) Mapas de calor dos 50 principais DEGs em GSE78721 e GSE12288, respectivamente. Por favor, clique aqui para ver uma versão ampliada desta figura.
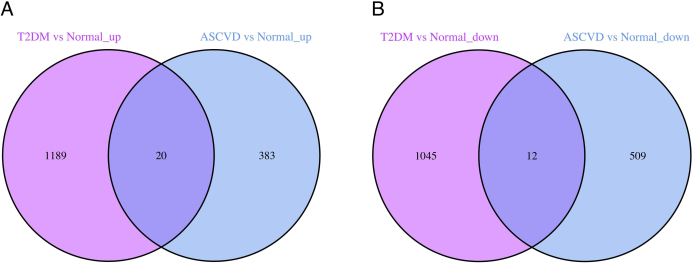
Figura 2: Diagrama de Venn dos C-DEGs de dois conjuntos de dados. (A) Diagrama de Venn dos C-DEGs aumentados de T2DM e ASCVD em conjuntos de dados GSE78721 e GSE12288. (B) Diagrama de Venn dos C-DEGs sob regulação reduzida de T2DM e ASCVD em conjuntos de dados GSE78721 e GSE12288. Por favor, clique aqui para ver uma versão ampliada desta figura.
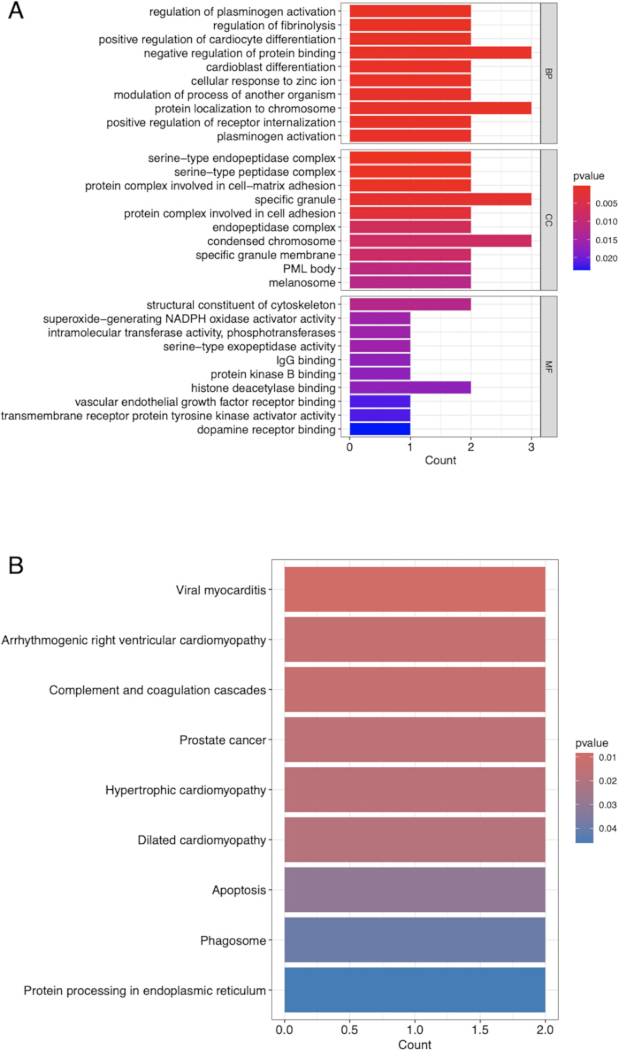
Figura 3: Análise de enriquecimento funcional e de vias de C-DEGs. Gráficos de barras das análises de enriquecimento GO (A) e KEGG (B). Coordenadas verticais indicam a descrição de diferentes itens GO ou caminhos KEGG, e coordenadas horizontais indicam o número de C-DEGs enriquecidos. Por favor, clique aqui para ver uma versão ampliada desta figura.
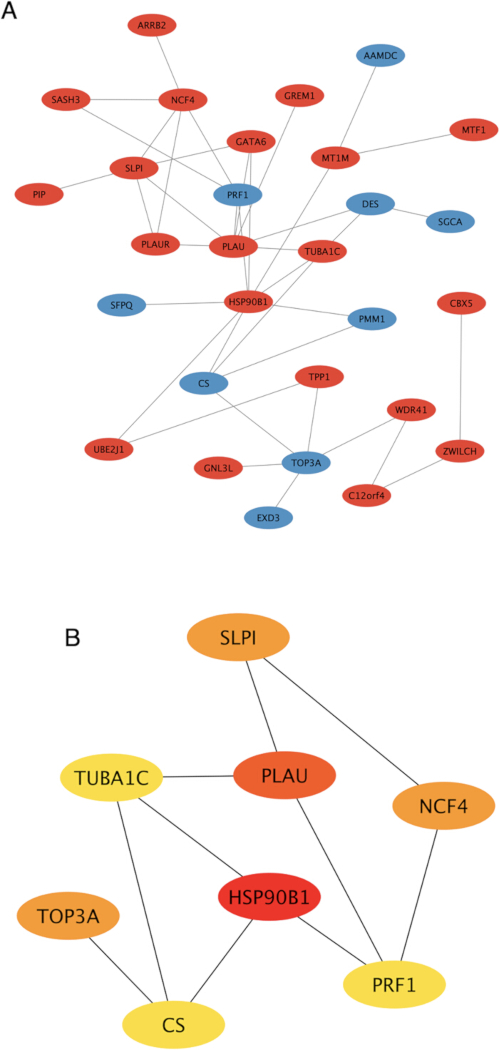
Figura 4: Rede de PPI e triagem gênica central de C-DEGs. (A) A rede de PPI dos C-DEGs. Vermelho e azul representam, respectivamente, os C-DEGs regulados para cima e para baixo. (B) Oito genes hub foram identificados entre os C-DEGs. Nós representam um C-DEG, e as arestas representam a interação entre C-DEGs. Por favor, clique aqui para ver uma versão ampliada desta figura.
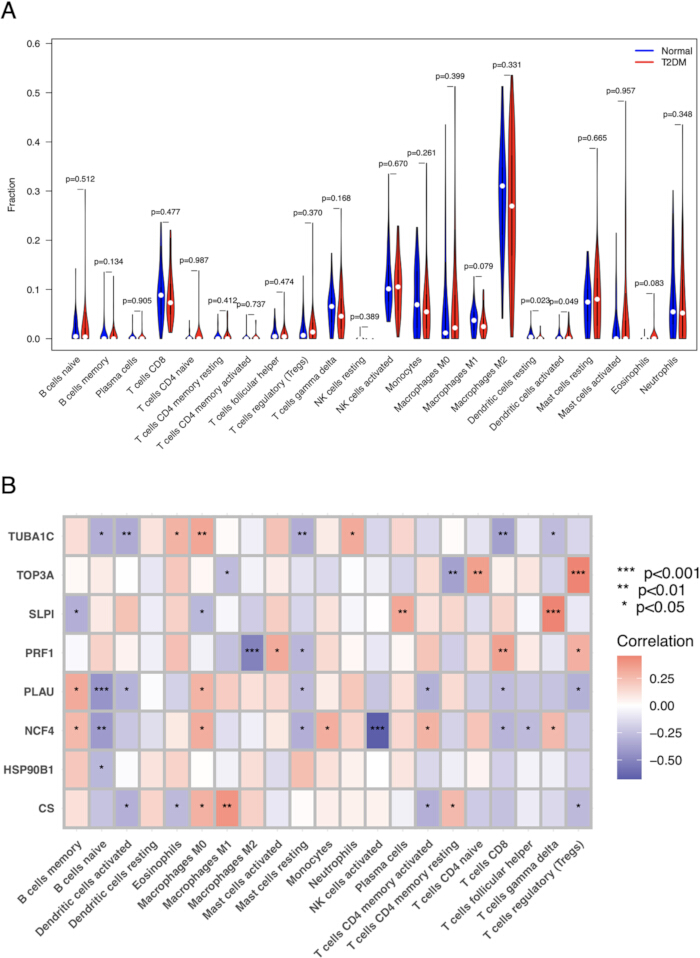
Figura 5: Análise de infiltração de células imunes. (A) Diferenças na infiltração de 22 tipos de células imunes entre o grupo T2DM e o grupo controle. Eixo horizontal: subtipos de células imunes; Eixo vertical: nível relativo de infiltração das células imunes. (B) Mapa de calor de correlação da expressão de 8 C-DEGs hub e os níveis de infiltração de 22 tipos de células imunes. Quadrados vermelhos: correlação positiva; Quadrados azuis: correlação negativa. Cores mais escuras indicam correlações mais fortes. Por favor, clique aqui para ver uma versão ampliada desta figura.
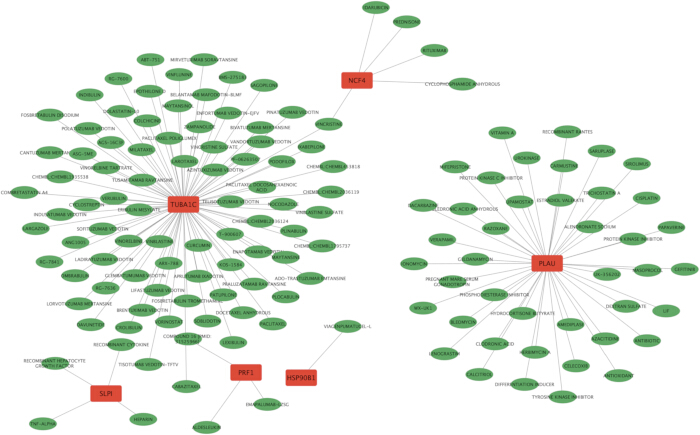
Figura 6: Rede de fármacos candidatos para seis C-DEGs hub. Nós vermelhos representam os C-DEGs do hub, nós verdes representam drogas candidatas-alvo, e as bordas entre eles representam pares de interação. Por favor, clique aqui para ver uma versão ampliada desta figura.
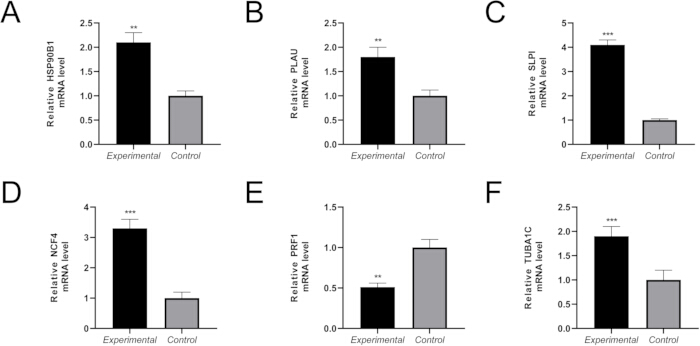
Figura 7: Validação da expressão gênica central em pacientes com DMT 2 e DCASCV por qRT-PCR. Os níveis de expressão de mRNA HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) e TUBA1C (F) foram detectados por qRT-PCR. Por favor, clique aqui para ver uma versão ampliada desta figura.
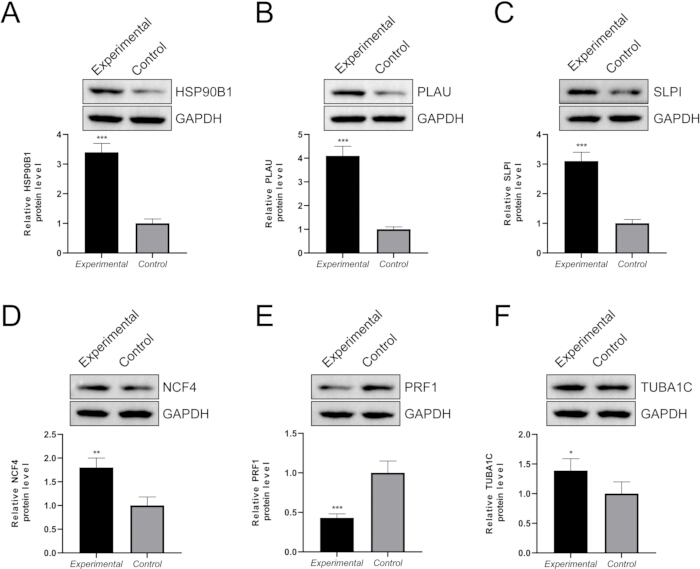
Figura 8: Validação da expressão gênica central em pacientes com DM2 e DCASCV por Western blot. Os níveis de expressão proteica HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) e TUBA1C (F) foram detectados por ensaios Western blot. Por favor, clique aqui para ver uma versão ampliada desta figura.
Tabela Suplementar 1. Matriz de expressão gênica para o conjunto de dados GSE78721, usada para a análise transcriptômica T2DM neste estudo. Por favor, clique aqui para baixar este arquivo.
Tabela Suplementar 2. Matriz de expressão gênica para o conjunto de dados GSE12288, utilizada para a análise transcriptômica de DCASCV neste estudo. Por favor, clique aqui para baixar este arquivo.
Tabela suplementar 3: Análise de infiltração de células imunes no conjunto de dados GSE78721. Por favor, clique aqui para baixar este arquivo.
Tabela Suplementar 4: Interações candidatas fármaco-alvo para genes comuns diferencialmente expressos. Por favor, clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Os dados brutos da parte de validação experimental gerados neste estudo. Por favor, clique aqui para baixar este arquivo.
Discussão
DMT2 e DCASCV são doenças complexas, com evidências emergentes sugerindo uma associação significativa entre as duas. A resistência à insulina atua como precursor fundamental para várias anomalias metabólicas cardiovasculares, incluindo a DMT 2, que coletivamente contribuem para o desenvolvimento da DCASP e podem impactar seu prognóstico 6,7. Além disso, a DM é um fator motriz na progressão da aterosclerose20. Indivíduos com DM T2 enfrentam um risco aumentado de CAD21, mas ainda persistem dúvidas sobre os mecanismos subjacentes da comorbidade. Este estudo tem como objetivo explorar a relação e os mecanismos que ligam essas duas doenças, além de identificar potenciais biomarcadores por meio de análise bioinformática e validação experimental.
Neste estudo, um total de 32 C-DEGs foram identificados entre T2DM e ASCVD, compreendendo 20 genes com regulação positiva e 12 genes com regulação negativa. As análises de enriquecimento GO e KEGG revelaram que esses C-DEGs estavam predominantemente enriquecidos em vias metabólicas críticas intimamente relacionadas tanto à CAD quanto à T2DM22,23. Oito C-DEGs do cubo (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C e CS) foram examinados nas duas condições. Notavelmente, os C-DEGs do hub (TOP3A, SLPI, NCF4, PRF1 e PLAU) estiveram significativamente associados aos níveis de infiltração das células imunes. HSP90B1 foi implicado na progressão do câncer24 e também pode ter associações com oDT2DM 25. O PLAU demonstrou desempenhar um papel na prevenção do envelhecimento vascular precoce associado aoDT2DM 26 e é fundamental na progressão da placa aterosclerótica, fornecendo insights para biomarcadores de alerta precoce e elucidando mecanismos subjacentes à progressão daCAD 27. A expressão da SLPI aumenta com disfunção metabólicaprogressiva 28 e foi identificada como uma C-DEG associada à tolerância à glicose prejudicada e àDT2DM 29. O NCF4 estabeleceu ligações com o CAD30 e contribui para a regulação da atividade da NADPH oxidase e da ativação doinflamassoma 31. Devido ao papel fundamental do PRF1 no monitoramento imunológico e na regulação32, ele possui potencial diagnóstico, distinguindo entre infarto do miocárdio e CAD33 estável. Além disso, o PRF1 atua como um ator regulador imunológico crítico na resistência à insulinarelacionada à obesidade 34. TUBA1C também tem sido associado a cânceres e está ligado à infiltração imune no microambientetumoral 35. Foi identificado como um gene de suscetibilidade para doençacoronariana 36. No entanto, a relação entre DSCV e DM T2 ainda é pouco explorada.
A análise KEGG revelou o envolvimento desses genes candidatos em vias como "Complemento e Cascatas de Coagulação" e "Processamento de Proteínas no Retículo Endoplasmático." A validação experimental de genes-chave dentro dessas vias, especificamente PLAU (uma serina protease envolvida na fibrinólise e coagulação) e HSP90B1 (uma chaperona do retículo endoplasmático), confirmou sua desregulação em nosso modelo T2DM. Essas descobertas situam nossa pesquisa dentro de um arcabouço molecular específico, sugerindo que desequilíbrios na resposta ao estresse do retículo endoplasmático e nas vias trombolíticas podem ser parte integrante da patologia diabética, indo além dos processos inflamatórios amplamente reconhecidos.
Pesquisas extensas documentaram respostas imunes disfuncionais em pacientesdiabéticos 37. A ativação anormal das células imunes desempenha um papel fundamental na progressão da DM238,39. A análise de infiltração imune revelou uma alteração significativa no compartimento celular dendrítico no DT2DM, caracterizada por uma proporção aumentada de células dendríticas ativadas e uma proporção reduzida de células dendríticas em repouso (Figura 5A). Isso indica um estado de apresentação de antígenos aprimorados e ativação imunológica no DT2, potencialmente contribuindo para danos inflamatórios crônicos nos tecidos-alvo. Além disso, fortes correlações observadas entre genes hub específicos (por exemplo, NCF4 com células NK ativadas, PRF1 com macrófagos M2) (Figura 5B) sugerem ligações mecanicistas entre a expressão gênica nos tecidos metabólicos e a composição local do microambiente imunológico, identificando assim novos alvos para intervenções imunomoduladoras.
Além disso, foi realizada uma análise de rede fármaco-alvo para prever potenciais alvos terapêuticos, mecanismos subjacentes e medicamentos para DMT2 e DCASC. Essa rede candidata-alvo de fármacos abrangia seis C-DEGs hub, 136 fármacos moleculares e 137 arestas. A análise resultou em 82, 5, 3, 4, 1 e 42 fármacos-alvo candidatos para TUBA1C, NCF4, PRF1, SLPI, HSP90B1 e PLAU, respectivamente. A maioria desses medicamentos é classificada como agentes antineoplásicos, anti-inflamatórios e antitrombóticos. Notavelmente, alguns medicamentos, incluindo Rituximabe, Prednisona, antioxidantes, verapamil, antibióticos, colchicina e heparina, demonstraram funções terapêuticas tanto noDT2DM 15,40,41,42,43,44,45,46 quanto no CAD 15,47,48,49,50.51, 52, 53, 54, 55, indicando seus potenciais efeitos terapêuticos em pacientes com DM tipo 2 e DQ. Além disso, vários medicamentos como Alendronato de sódio, calcitriol, celecoxibo, masoprocol, mifepristona e curcumina demonstraram apresentar funções terapêuticas especificamente no T2DM 56,57,58,59,60,61,62,63, o que também pode ser benéfico para a DCASC. Também foi realizada a validação da expressão desses C-DEGs centrais em T2DM e ASCVD.
Este estudo apresenta várias limitações. Primeiro, os tamanhos das amostras clínicas dentro do experimento de validação foram insuficientes e deveriam ser ampliados. Segundo, mais pesquisas experimentais são necessárias para fornecer insights valiosos sobre a ligação entre DMT2 e DCASCV. Trabalhos futuros envolverão validar os resultados com coortes clínicas maiores e conduzir estudos experimentais mais abrangentes para elucidar os mecanismos moleculares e as vias patológicas que conectam essas duas doenças. Na seção de validação experimental, amostras de pacientes com DMD 2 e DCASE foram agrupadas em um único "grupo experimental" para comparação com controles saudáveis. Embora esse desenho tenha facilitado a validação das mudanças gerais de expressão nos C-DEGs centrais identificados na condição comórbida, ele não diferencia se essas alterações de expressão são específicas para DMT2, DCAST ou compartilhadas por ambos. Estudos subsequentes devem comparar grupos distintos de pacientes com DM 2, pacientes com DCS e indivíduos com comórbidos de DMT 2 com DCAE para delimitar com mais precisão os papéis específicos desses genes em doenças individuais versus o estado comórbido. Além disso, a análise de infiltração de células imunes foi realizada exclusivamente no conjunto de dados T2DM (GSE78721) e não realizada em paralelo para o conjunto de dados ASCVD (GSE12288). Assim, as correlações relatadas entre os C-DEGs hub e os níveis de infiltração de células imunes (por exemplo, TOP3A com Tregs, SLPI com células T gama delta) refletem apenas seus potenciais papéis imunomoduladores dentro do contexto patológico da DMT2. Outra limitação é a ausência de validação funcional para as interações previstas entre fármaco e alvo. Investigações futuras devem incorporar simulações de acoplamento molecular para avaliar a afinidade de ligação, juntamente com experimentos in vivo usando modelos animais para avaliar a eficácia terapêutica desses fármacos candidatos.
Em conclusão, essa análise integrada de bioinformática, complementada por validação experimental preliminar, identificou vários genes e vias centrais compartilhadas entre T2DM e DCASCV e propõe potenciais candidatos a medicamentos que visam esses genes. Esses achados oferecem novas hipóteses e alvos candidatos para uma exploração mecanicista e terapêutica adicional da complexa interação entre DMT2 e DCASC.
Divulgações
Os autores declaram não haver interesses concorrentes.
Agradecimentos
Os autores agradecem com gratidão o apoio financeiro fornecido pelo Programa da Fundação de Ciências Naturais de Ningxia (Bolsa nº 2023AAC03498) e pelo Projeto de Inovação em Ciência e Tecnologia de Yinchuan (Bolsa nº 2024SF005). Os autores também agradecem a todos os participantes e pesquisadores cujas contribuições tornaram este estudo possível.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Referências
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.