Esta revisão delimita o eixo imunometabólico intestino–fígado na doença hepática esteatótica associada à disfunção metabólica e seu fenótipo inflamatório-fibrótico (MASH), abrangendo a falha da barreira para ativação inflammasoma, e avalia produtos naturais multi-alvo e estratégias estratificadas por biomarcadores para intervenção precisa.
Artigo de revisão
Modulação do eixo intestino-fígado na Medicina Tradicional Chinesa: Da Ruptura da Barreira à Ativação do Inflamassoma no MASLD/MASH
Neste artigo
Resumo
Resumo
A doença hepática esteatótica associada à disfunção metabólica (MASLD) e seu fenótipo inflamatório-fibrótico (MASH) apresentam acoplamento imunometabólico pronunciado. Esta revisão sintetiza evidências ao longo do eixo intestino-fígado, desde a junção estreita epitelial e a falha da barreira vascular intestinal (GVB) até a amplificação TLR4–MyD88/TRIF–NF-κB e ativação do inflammassoma NLRP3, e delineia a lógica do espectro de exposição derivado do intestino — lipopolissacarídeo (LPS), etanol endógeno, ácidos biliares (BS), ácidos graxos de cadeia curta (SCFAs) e trimetilamina N-óxido (TMAO). Posicionamos BA-FXR/TGR5, SCFAs-GPR41/43 e AMPK/Nrf2 como moduladores upstream/downstream que resetam limiares inflamatórios e conferem dependência de estágio de medicamentos. Com base no mapeamento nó-via, resumimos os mecanismos e sinais translacionais para berberina (BBR), Qushihuayu (QSHY), Decocção Da-Chai-Hu (DCHD) e polissacarídeos (por exemplo, Astrágalo, Ganoderma), enfatizando restrições farmacocinéticas e de local de exposição que apoiam ações "intestinais primeiro". Propomos um conjunto mínimo de biomarcadores companheiros — LBP/sCD14, perfis BA com dinâmica FGF19–C4 e IL-1β/GSDMD-N — emparelhados com portões de imagem hierárquicos (≥30% de declínio relativo de MRI-PDFF; MRE/ELF) para fundamentar a digitação de resposta e decisões de go/no-go. Por fim, destacamos lacunas críticas (leituras diretas de GVB humanas; multi-ômicas longitudinais conectadas aos resultados clínicos) e delineamos um caminho multi-braço multi-estágio (MAMS) orientado por biomarcadores para o desenvolvimento adaptativo e estratificado de intervenções de medicina tradicional multi-alvo em MASLD/MASH.
Introdução
A doença hepática esteatótica associada à disfunção metabólica (MASLD) e seu fenótipo inflamatório-fibrótico, MASH, são cada vez mais enquadrados não como distúrbios metabólicos isolados, mas como condições sistêmicas impulsionadas por acoplamento imunometabólico desregulado. Evidências convergentes colocam o eixo intestino-fígado no centro da evolução da doença: quando a integridade da barreira intestinal afrouxa, padrões moleculares e sinais metabólicos associados ao patógeno luminal acessam mais facilmente a circulação portal, iniciando e amplificando respostas imunes intra-hepáticasinatas. Mecanicamente, a disfunção da barreira engloba a remodelação epitelial da junção estreita e a ruptura da barreira vascular intestinal (BVB), aumentando a entrega portal de sinais derivados de microrganismos e dietas que diminuem o limiar de ativação da imunidade hepática inata.
Abaixo do epitélio, a barreira vascular intestinal (BVB) funciona como um segundo ponto de controle com princípios de seletividade análogos à barreira hematoencefálica. Dados experimentais e translacionais indicam que a desestabilização da GVB pode preceder a esteatohepatite aberta, e que a estabilização da barreira está mecanicamente ligada à redução da carga inflamatória portal.
Endotoxina circulante (lipopolissacarídeo, LPS) apresenta a associação positiva mais consistente com progressão de MASLD para MASH e fibrose avançada, ancorando uma ligação em nível populacional entre carga molecular derivada do intestino e lesãohepática 1. Uma via de "autocerveja" também é causal: Klebsiella pneumoniae , produtora de álcool elevado, associa-se ao MASLD, e a colonização experimental induz fígado gorduroso na ausência de etanolexógeno 2. Metabólitos derivados do intestino adicionais (por exemplo, ácidos biliares, SCFAs e TMAO) moldam o tônus imunometabólico do hospedeiro e podem contribuir para a heterogeneidade interindividual nas trajetórias da doença e na resposta ao tratamento.
Nos níveis de receptor e via, as entradas portas são detectadas no senoide por TLR4/MD-2, que sinaliza através do MyD88/TRIF→IKK para ativar o NF-κB, regulando para cima o TNF-α, IL-1β e CCL2 e provocando infiltração leucocytária e lesãoparênquimata 3. O TLR4 ainda reduz ainda mais o pseudorreceptor TGF-β BAMBI em células estreladas hepáticas, sensibilizando a sinalização fibrogênica, e recruta monócitos via eixo CCL2/CCR2, fazendo a ponte entre inflamação efibrose 4,5. A jusante, o inflammassoma NLRP3 requer priming mediado por NF-κB (sinal 1) juntamente com sinais de ativação de ROS mitocondrial, ATP–P2X7 ou cristais de colesterol (sinal 2) para ativar a caspase-1, liberar IL-1β/IL-18 e executar a pirooptose; a inibição farmacológica (por exemplo, MCC950) é eficaz em vários modelos, mas o benefício histológico não é uniforme em contextos de alto teor de gordura/colesterol alto, indicando que a "medicamentabilidade" é limitada pela composição e pelo momentoDAMP 6,7,8. Paralelamente, as vias BA–FXR/TGR5, SCFA–GPR41/43 e AMPK/Nrf2 modulam a coluna em múltiplos níveis, reajustando limiares inflamatórios e conferindo resposta dependente doestágio 9,10,11.
Essa estrutura delimita nós acionáveis para intervenção multi-alvo. A berberina (BBR) exemplifica uma estratégia de baixa exposição sistêmica que inibe a BSH bacteriana, remodela o pool de BA e ativa o eixo ileal FXR–FGF15 para recalibrar "remotamente" as leituras imunometabólicasintra-hepáticas 12,13; seu complexo iônico BUDCA/HTD1801 reduziu a RM-PDFF em um ensaio clínico randomizado de fase 2 (ECR)14. Fórmulas, como a Qushihuayu (QSHY), mostraram respostas coordenadas microbioma–metabólito com melhorias nas enzimas hepáticas e substitutos de fibrose em randomizaçãomulticêntrica 15. A Decocção Da-Chai-Hu (DCHD) e polissacarídeos (por exemplo, Astrágalo, Ganoderma) mapeiam para estabilização da GVB e para imunidade mucosa/plasticidade inflammasoma,respectivamente 16,17,18. No entanto, o cenário evidenciário da medicina tradicional chinesa (MTC) no MASLD/MASH permanece desigual, abrangendo um pequeno número de ensaios randomizados com desfechos heterogêneos e qualidade de relato variável, além de um corpo maior de trabalhos pré-clínicos e geradores de hipóteses.
Assim, um objetivo central desta revisão é fornecer uma síntese estruturada e crítica das evidências da MTC, separando dados humanos robustos da inferência pré-clínica e avaliando o desenho do ensaio, risco de viés, tamanhos de efeito, sinais de segurança e durabilidade da resposta. Enfatizamos ainda as restrições práticas translacionais que são particularmente relevantes para intervenções em MTC, incluindo padronização de produtos, consistência de lote a lote e estruturas de marcadores Q, bem como considerações regulatórias que regem limiares probatórios para desenvolvimento e adoção clínica.
Nesse contexto, a resenha segue três linhas. Primeiro, traçamos o contínuo desde a falha epitelial/GVB até a ativação do TLR4–NF-κB e NLRP3, integrando evidências-chave nos níveis humano, animal e celular. Segundo, sintetizamos farmacologia de sistemas e dados clínicos/translacionales representativos sobre agentes derivados da MTC e outros naturais que visam a coluna barreira-receptor-inflamasomo e sua comunicação imunometabólica, com alinhamento explícito da farmacocinética, exposição e mecanismo. Terceiro, delineamos biomarcadores mensuráveis e esquemas de tipagem de resposta que se combinam com essas vias para melhorar a interpretabilidade e a reprodutibilidade externa em coortes heterogêneas de MASLD/MASH. Ao vincular o mecanismo à intervenção e a leituras quantificáveis, o eixo imune intestino-fígado é transformado em uma estrutura translacional testável que pode informar futuras terapias estratificadas (Figura 1). Sínteses recentes posicionam ainda mais estratégias centradas no microbioma como um eixo translacional importante no MASLD/MASH, abrangendo modulação baseada em dieta, pré/pro/sinbióticos, transplante de microbiota fecal e abordagens emergentes como bactérias e bacteriófagos modificados, reforçando a relevância clínica de intervenções direcionadas aointestino 19.
Revisão e perspetiva
Eixo intestino-fígado: da falha da barreira até a ativação do inflamassoma
Desequilíbrio da barreira epitelial e aumento do vazamento paracelular
A barreira epitelial intestinal é mantida por uma camada de muco luminal baseada em MUC2, juntamente com complexos de junção apertada apical (TJ); ZO-1, ocludina e múltiplos claudins definem a seletividade paracelular e, assim, limitam os encontros diretos entre padrões moleculares associados a microrganismos luminais e receptores imunes inatos epiteliais. Em estados metabolicamente inflamados, o fator de necrose tumoral α (TNF-α) engaja um programa dependente de NF-κB que aumenta a miosina quinase de cadeia leve (MLCK), impulsionando a endocitose ocludina e a reorganização perijuncional da actomiosina para criar uma via de "vazamento" — efeito demonstrado tanto em modelos in vivo quanto in vitro 20,21.
Essas observações mecanicistas estão alinhadas com fenótipos clínicos. Estudos em humanos demonstram consistentemente aumento da permeabilidade intestinal na MASLD, que se correlaciona com esteatose e gravidade inflamatória. Em estudos fisiológicos ligados a biópsias, pacientes com doença hepática gordurosa não alcoólica (agora dentro do arcabouço MASLD) apresentam aumento da permeabilidade a 51Cr-EDTA, além de anomalias da TJ e crescimento bacteriano excessivo do intestino delgado, com permeabilidade positivamente correlacionada com esteatose e atividade inflamatória. Uma revisão sistemática subsequente dos testes de permeabilidade a açúcar duplo confirmou permeabilidade do intestino delgado significativamente maior em MASLD em comparação com controles saudáveis, consolidando a lesão da barreira epitelial como uma característica reprodutível em nível populacional. Nesse contexto, PAMPs luminais e sinais metabólicos acessam mais facilmente a circulação portal, fornecendo entradas a montante que preparam a sinalização hepática TLR4–NF-κB e licenciam a ativação inflammasoma NLRP3.
Acoplamento microbiota-barreira intestinal na homeostase e MASLD/MASH
Em condições fisiológicas, a microbiota intestinal contribui para a manutenção das barreiras por meio de efeitos coordenados sobre muco, junções tensas e imunidade mucosa. A estrutura da comunidade comensal influencia as propriedades da barreira mucosa, enquanto as interações epiteliais–microbianas moldam a remodelação das junções apertadas e a permeabilidade trans-epitelial, limitando assim a translocação microbiana do produto sobhomeostase 22,23,24. As SCFAs produzidas pela fermentação microbiana atuam como metabólitos sinalizadores que podem apoiar programas de barreira epitelial e amortecer respostas inflamatórias transcricionais, proporcionando resiliência funcional contra a ruptura dabarreira 23,25.
No MASLD/MASH, disbiose e alteração da produção funcional microbiana podem corroer esses programas estabilizadores e amplificar a disfunção da barreira. Permeabilidade alterada e translocação microbiana de produtos aumentam a exposição portal e diminuem o limiar para ativação imunológica hepática inata, criando um eixo de avanço desde a disbiose até a falha da barreira e amplificaçãoinflamatória 23. Uma ilustração mecanicamente direta é a produção endógena de etanol por Klebsiella pneumoniae, produtora de alto teor de álcool, que pode impulsionar fenótipos do fígado gorduroso sem álcool exógeno, ligando uma função microbiana específica à lesão metabólica do hospedeiro e à suscetibilidade inflamatóriaposterior 2.
Esta subseção consolida a ligação "microbiota → tónus de barreira → exposição a portais" para fornecer um ponto de entrada explícito para interpretar intervenções de MTC intestino-proximal que alegam restauração da barreira ou remodelação da microbiota.
Perturbação da barreira vascular intestinal e exposição precoce ao portal
Situada sob o epitélio, a barreira vascular intestinal (BVG) é formada por células endoteliais capilares submucosas e seus complexos de junção; Funcionalmente análoga à barreira hematoencefálica, ela restringe a translocação de bactérias e macromoléculas através da parede intestinal para a circulaçãoporta 26. Modelos experimentais de esteatohepatite demonstram que a perturbação da BVB precede a inflamação hepática, enquanto o reforço farmacológico da sinalização endotelial FXR–β-catenina mitiga a carga inflamatóriaportal 27.
Juntos, esses achados operacionalizam um modelo de interceptação em camadas — "barreira epitelial → GVB → exposição portal" — e indicam o GVB como um nó patológico precoce tratável no MASLD/MASH 28. Mecanicamente, a integridade do GVB reflete a intercomunicação entre as vias Wnt/β-catenina e FXR; a regulação para cima da proteína associada à vesícula plasmalemémica (PLVAP/PV-1) marca a abertura do fenestral e se correlaciona com a fuga26,27. O compromisso combinado da barreira epitelial e vascular aumenta a entrega efetiva de sinais inflamatórios pelo portal, reduzindo assim o limiar para a detecção e amplificaçãointra-hepática 27.
Fluxo de moléculas derivadas do intestino e o cenário de exposição senoidal hepática
No nível populacional, a endotoxina circulante (LPS) é o sinal molecular mais consistentemente associado à progressão da MASLD. Uma meta-análise recente mostra níveis mais altos de LPS no MASLD do que nos controles, correlacionando-se com o estágio da doença e os indicadores inflamatórios, apoiando assim uma cadeia de evidência de "falha da barreira → endotoxemia → inflamação hepática" 1. O etanol endógeno representa uma segunda entrada chave: Klebsiella pneumoniae, com alta produção de álcool, é enriquecido em uma coorte chinesa de MASLD, e a colonização oral é suficiente para induzir fígado gorduroso na ausência de etanol exógeno, estabelecendo uma ligação causal entre uma cepa específica, seu metabólito e lesãohepática 2. Outros metabólitos derivados do intestino (por exemplo, ácidos biliares e SCFAs) modulam limiares inflamatórios, mas aqui são tratados como reguladores contextuais, e não como motores primários de exposição 29,30,31.
Ativação e programas efetores da cascata hepática TLR4–MyD88/TRIF–NF-κB
Uma vez que as entradas portal alcançam os senos hepáticos, os complexos TLR4/MD-2 nas células de Kupffer, hepatócitos e células endoteliais sinusoidais hepáticas detectam LPS e ligandos lipídicos, recrutam adaptadores MyD88 ou TRIF para engajar o complexo IKK e conduzem a translocação nuclear NF-κB, induzindo assim TNF-α, IL-1β e CCL2, culminando em infiltração monocícito-macrófago e lesãoparênquimal-parênquima 3,32.
A sinalização TLR4 também amplifica a lesão por meio de eixos quimiotáticos e fibrogênicos. A via CCL2/CCR2 recruta monócitos derivados da medula óssea para o fígado, e o bloqueio farmacológico ou genético do CCR2 reduz a infiltração de monócitos Ly6C⁺ e atenua inflamação e fibrose nos modelos MASHdietéticos 4. Em células estreladas hepáticas, o TLR4 regula negativamente o pseudorreceptor TGF-β BAMBI, sensibilizando as células ao TGF-β e acoplando a ativação imune inata à programação fibrogênica através das vias5. Assim, ao avaliar intervenções da MTC, evidências de atenuação do eixo TLR4–NF-κB–CCL2 (e sensibilização fibrogênica a jusante) são tratadas como mecanicamente de valor mais alto do que mudanças isoladas em marcadores inflamatórios gerais.
Ativação por sinal duplo do inflammassoma NLRP3 e piroptose
A sinalização TLR–NF-κB fornece a etapa de ativação (sinal 1) para NLRP3 e pro-IL-1β/IL-18, enquanto ROS mitocondrial, ativação de ATP–P2X7 e colesterol livre ou cristalino atuam como sinais de ativação (sinal 2) que montam o complexo NLRP3–ASC–caspase-1, resultando na formação de poros maduros de IL-1β/IL-18 e gasdermina-D (GSDMD) para executar a piroptose e impulsionar a progressão inflamatória-fibrótica33. Nos modelos MASH e tecidos humanos, a hiperativação do NLRP3 acompanha a gravidade inflamatória e fibrótica, e os cristais de colesterol constituem um DAMP chave e fonte de sinal 2 naesteatoheite 6,34.
O estágio da doença e o contexto do modelo são qualificadores críticos. Em ambientes de alto teor de gordura e colesterol (HFHC), tanto a deficiência de Nlrp3 quanto o tratamento com MCC950 falharam em melhorar os desfechos histológicos, indicando que a composição e a janela de dosagem do DAMP determinam a medicamentabilidade do inflamasomo; dentro da história natural do MASLD/MASH, o NLRP3 é melhor visto como um amplificador chave do que como um passo limitador universal de taxa, com implicações diretas para intervenções estratificadas ecombinadas 8,35. Essa dependência de estágio motiva a separação explícita de (i) alegações pré-clínicas de direcionamento ao inflamassoma de (ii) evidências humanas que vinculam leituras de inflamassoma (por exemplo, IL-1β/IL-18, GSDMD-N) a desfechos clinicamente relevantes.
Caminhos moduladores de diafonia
As vias BA–FXR/TGR5, SCFA–GPR41/43 e AMPK/Nrf2 modulam os limiares inflamatórios ao longo dessa cascata. Em vez de expandir essas vias em detalhes, as mantemos como camadas modulatórias que influenciam a dependência de estágio da coluna vertebral da barreira – TLR4–NLRP3 9,27.
Quando as defesas epiteliais e vasculares falham sequencialmente, moléculas derivadas do intestino amplificam a sinalização imune intra-hepática inata, culminando em piroptose impulsionada pelo inflammassoma e progressão fibrótica 6,27,36. Esse andaime mecanicista simplificado serve de base para as intervenções da MTC avaliadas nas seções seguintes (ver Tabela 1).
| Nó do eixo (nível anatômico) | Evento mecanicista central | Contribuição para a ativação e inflamação do inflamassoma | Leituras translacionais | Estudos representativos |
| Ecologia da microbiota intestinal | A disbiose altera produtos microbianos (carga de endotoxinas, produção de etanol, transformação de ácidos biliares, saída de SCFA) | Aumenta a carga inflamatória portal e reduz o limiar de ativação imunitária hepática inata | Microbioma fezal (16S/metagenômica); metaboloma de banquinho; LBP/sCD14 circulante | Yuan et al., 20192; Tilg et al, 201637 |
| Camada de muco e junções apertadas epiteliais | remodelação de TJ dependente de TNF–NF-κB–MLCK; endocitose de ocludina; Formação dos poros de Claudin-2 | Permeabilidade paracelular aprimorada facilita a translocação PAMP (priming do sinal 1) | Expressão de ZO-1/ocludina; testes de permeabilidade de açúcar duplo; 51Cr-EDTA; LBP/sCD14 | Ye et al., 200638; Marchiando et al., 201021 |
| Barreira vascular intestinal (GVB) | Fuga endotelial via via Wnt/β-catenina e vias dependentes de FXR; Regulação para cima do PLVAP/PV-1 | Amplifica a entrega por portal de sinais inflamatórios microbianos e metabólicos | Coloração com PLVAP; marcadores portal/inflamatórios pareados; Índices de imagem ligados à exposição | Mouries et al., 201927 |
| Exposição molecular portal | Elevação circulante de endotoxinas; etanol endógeno; Ambiente alterado de BA/SCFA | Reforça o priming TLR4; Modula a permissividade do inflammassoma | LPS (dependente do método); LBP; sCD14; Perfil de bacharelado; Quantificação SCFA | Farhadi et al., 200839; Yuan et al., 20192 |
| Sinalização hepática TLR4 | TLR4–Ativação MyD88/TRIF–NF-κB; Redução da regulação BAMBI; Indução CCL2 | Sinal 1 de preparação do NLRP3; quimiotaxia; Sensibilização das células estreladas para TGF-β | Alvos hepáticos TLR4/NF-κB; CCL2; α-SMA; Transcrições de colágeno | Seki et al., 20075; Sharifnia et al., 20153 |
| Ativação do inflammassoma NLRP3 | Priming NF-κB (sinal 1) + gatilhos DAMP (ROS, ATP–P2X7, cristais de colesterol) (sinal 2) | ativação da Caspase-1; liberação de IL-1β/IL-18; Amplificação piropótica | IL-1β; IL-18; atividade da caspase-1; Clivagem GSDMD | Wree et al., 201440; Mridha et al., 20177 |
| Nódulos metabólicos-imunes de diafonia cruzada | BA–FXR/TGR5; SCFA–GPR41/43; Vias AMPK/Nrf2 | Resetar limiares inflamatórios e dependência de medicamentos dependentes do estágio | FGF19–C4; Assinaturas de BA; Níveis SCFA; Alvos AMPK/Nrf2 | Neuschwander-Tetri et al., 20159; Kimura et al., 201325 |
Tabela 1: Pontos de verificação mecanicistas que ligam a falha da barreira à ativação do inflamassoma hepático em MASLD/MASH.
Farmacologia de sistemas e mecanismos moleculares das intervenções da MTC
Uma estrutura de sistemas-farmacologia com validação multi-ômica
Usar farmacologia de sistemas/redes como gerador de hipóteses — projetando relações "composto–alvo–caminho" na patobiologia do MASLD/MASH e depois fechando o ciclo com multi-ômica e experimentação em escala cruzada — oferece uma rota manejável para reivindicações mecanicistasreproduzíveis 41.
No entanto, nesta Revisão, a farmacologia de sistemas é explicitamente tratada como geradora de hipóteses, e não como confirmatória. Inferências derivadas de redes são consideradas ancoradas na translação apenas quando alinhadas com (i) dados clínicos humanos, (ii) plausibilidade dose-exposição, (iii) local de ação anatomicamente consistente e (iv) leituras de vias reprodutíveis.
A triagem e o enriquecimento baseados em bancos de dados sozinhos são propensos a taxas inflacionadas de falsos positivos; Portanto, as redes propostas precisam ser testadas sob estresse contra restrições dose–exposição, local e tempo de ação, e ligação clínica antes de serem avançadas como modelosexplicativos 42.
Esse fluxo de trabalho já possui suporte paradigmático para berberina (BBR). A BBR administrada por via oral inibe a hidrolase de sal biliar microbiano (BSH), aumenta os ácidos biliares conjugados luminais como o ácido taurocólico (TCA), ativa o eixo ileal FXR–FGF15 e regula a baixa os programas de absorção de lipídios hepáticos (por exemplo, Cd36), melhorando coletivamente o manejo dos lipídios hepáticos e reduzindo a carga inflamatória intestino-fígadoa jusante 12,13. Em estudos integrados animal–ômica, a cascata inferida BSH→TCA→FXR/FGF15 está alinhada com as respostas transcripcionais hepáticas, apontando para um locus de ação intestinal em vez de uma eficácia impulsionada por alta exposiçãosistêmica 12,43,44.
Evidências no nível da fórmula estão surgindo. Em um ensaio randomizado duplo-cego, o Qushihuayu (QSHY) melhorou as enzimas hepáticas e os índices de fibrose substituta, acompanhados por mudanças coordenadas no microbioma intestinal e nos perfis de metabólitos, apoiando a viabilidade de uma tríade de validação de "endpoints clínicos em rede→multiômicos→clínicos" 15,45. No entanto, entre as intervenções de MTC em MASLD/MASH, o número de ECRs com potência adequada permanece limitado, os desfechos são frequentemente baseados em substitutos, e o relato de ocultação/cegueira e terapia concomitante varia, exigindo uma graduação estruturada da força das evidências.
Dimensões de classificação de evidências e risco de viés. Para abordar a heterogeneidade e possibilitar uma síntese estruturada, classificamos as evidências em quatro níveis: Nível 1, ensaios clínicos randomizados com desfechos pré-especificados; Nível 2, estudos clínicos em humanos não randomizados ou observacionais; Nível 3, modelos animais; e Nível 4, inferência in vitro, computacional ou baseada emredes 46,47. As dimensões de risco de viés consideradas incluem randomização e ocultação de alocação, cegueira, hierarquia e multiplicidade de endpoints, duração do acompanhamento, pré-registro, atrito, adesão e controle da terapia de fundo. Além do tipo de estudo, a força das evidências nesta Revisão é interpretada como um composto de (i) hierarquia do desenho do estudo, (ii) domínios de validade interna e risco de viés, (iii) consistência entre estudos independentes, (iv) alinhamento entre engajamento mecanicista dos nós e desfechos clínicos, e (v) plausibilidade farmacocinética da exposição ao alvo. Coerência mecanicista sem alinhamento de desfechos humanos é considerada geradora de hipóteses, enquanto sinais clínicos sem concordância de vias são interpretados cautelosamente como efeitos potencialmente inespecíficos. Essa avaliação integrativa é aplicada em todas as intervenções da MTC discutidas abaixo.
Mapeamento de intervenção ao longo da coluna imune intestino-fígado
No nível de barreira, o MASLD/MASH inicial apresenta perturbação do epitélio intestinal e da barreira vascular intestinal (BVB), elevando a carga portal dos PAMPs. O agonismo do FXR estabiliza a GVB por meio da sinalização endotelial Wnt/β-catenina, reduzindo assim a exposição hepática a jusante e a ativação inflamatória — um eixo validado nos modelos dietéticosMASH 27,48. Nas intervenções da medicina tradicional chinesa (MTC), polissacarídeos aumentam a expressão de ZO-1/ocludina, reduzem a permeabilidade e diminuem o influxo de endotoxinas portais, constituindo uma estratégia de "desexposição" amontante 49. A maioria das alegações de proteção contra barreiras permanece como evidência de Nível 3, a menos que seja apoiada por medidas de permeabilidade humana ou proxies de portais/exposição combinados com desfechos clínicos.
O módulo TLR4–MyD88–NF-κB atua como amplificador inicial para programas hepáticos pró-inflamatórios e quimiotáticos. Em células estreladas hepáticas, a sinalização TLR4 regula negativamente o pseudorreceptor TGF-β BAMBI, sensibilizando as células ao TGF-β e facilitando a transição da inflamação para afibrose 5,50. Consistente com o direcionamento deste nó, polissacarídeos de astrágalo (APS) suprimem TLR4 e fosfo-NF-κB tanto no intestino quanto no fígado e reduzem as saídas a jusante de TNF-α/IL-6, indicando inibição acoplada ao longo do contínuo49 da "barreira→TLR4". Para inferência translacional, leituras consistentes com via (por exemplo, atenuação no eixo TLR4–NF-κB–CCL2 com substitutos de fibrose) são mais ponderadas do que mudanças isoladas nos marcadores inflamatóriosgerais 51,52,53.
Como plataforma de segundo impacto, o inflamassoma NLRP3 requer priming dependente de NF-κB (regulação para cima de NLRP3 e pro-IL-1β), juntamente com sinais de ativação de lipotoxicidade, ROS ou cristais de colesterol. Em amostras clínicas e múltiplos modelos murinos de MASH, a inibição ou bloqueio de sua ativação pelo NLRP3 reduz a inflamação hepática e a fibrose, embora os tamanhos de efeito variem entre dietas e contextos metabólicos — implicando a composição e o momento do DAMP como determinantes damedicamentabilidade 7,40. Em estudos orientados à MTC, a APS diminui a sinalização do NLRP3 e a maturação/liberação de IL-1β/IL-18, resultando em dupla contenção na ativação e preparação; Polissacarídeos derivados de ganodermia remodelam a microbiota e atenuam endotoxemia de baixo grau, reduzindo indiretamente a propensão a desencadear aNLRP3 49,54. Esses achados são predominantemente evidências de Nível 3; A ligação com os desfechos da fibrose humana ou com medidas de imagem permanece escassa e deve ser interpretada com cautela. No nível da diafonia de vias cruzadas, BA–FXR/TGR5 e SCFA–GPR41/43 ajustam conjuntamente o acoplamento imunometabólico; Os SCFAs engajam seus receptores para estabilizar a energia e a homeostase imune, modulando assim a vulnerabilidadehepática 25. Integrando esses gânglios, leituras de barreira (ZO-1/ocludina, permeabilidade, LBP/EAA), saídas pró-inflamatórias (TNF-α, IL-6 e eixos quimiotáxico associados), saídas de inflamassoma (IL-1β/IL-18, caspase-1/GSDMD) e leituras de receptores nucleares/metabólicos (perfis de BA com alvos FXR/TGR5; SCFAs com GPR41/43) podem ser co-registradas entre camadas multi-ômicas para fortalecer a validade externa da inferênciamecanicista 25,27,49. Nesta Revisão, tal co-registro é usado para avaliar a coerência mecanicista, mas o alinhamento dos pontos finais humanos permanece como o principal determinante da força das evidências.
Restrições farmacocinéticas e do local de exposição na inferência mecanicista
Em ratos, a biodisponibilidade oral absoluta da berberina (BBR) é de ~0,36%–0,68%, limitada pela eliminação intestinal na primeira passagem e pelo efluxo de P-gp; Distribuição tecidular revela alta partição hepática apesar dos baixos níveisplasmaticos 55,56,57. Essas características definem o BBR como um modulador local do eixo intestino-fígado cuja exposição luminal é suficiente para engajar a cascata BSH→BA→FXR/FGF1555,57. Estratégias de formulação que aumentam significativamente a exposição sistêmica podem alterar o principal local de ação e a janela de segurança; Reivindicações mecanicistas devem, portanto, relatar concentrações portal e sistêmicas junto com as relações exposição–resposta 57.
A baixa exposição sistêmica não impede que a BBR reduza a entrada de PAMP portal por meio de um eixo microbiota–ácido biliar–receptor nuclear e diminua a propensão hepática à ativação do TLR4/NLRP3 — achados repetidamente apoiados por experimentos multi-ômicos e específicosde segmento 12,13,58. Em contraste, polissacarídeos/oligossacarídeos permanecem em grande parte luminais após o parto oral, com eficácia impulsionada pela reparação de barreiras e produtos de fermentação microbiana (SCFAs). Sua eficácia depende da dose luminal alcançável, cinética de fermentação e das janelas temporais dos ácidos biliares secundários e dos SCFAs; assim, metabolômicas de séries temporais BA/SCFA acopladas a proteínas barreira e métricas de permeabilidade fornecem leituras apropriadas paraatribuição 25,59,60. A falha em integrar a plausibilidade farmacocinética (exposição luminal, cinética de fermentação, janelas de metabólitos temporais) é uma fraqueza recorrente na atribuição mecanicista em estudos de MTC e contribui para uma reprodutibilidade limitada.
Hierarquia de evidências, biomarcadores companheiros e controle de qualidade
Sinais translacionais surgiram em múltiplos níveis. Em um ensaio clínico randomizado de fase 2 do complexo iônico berberina–ursodesoxicolato (HTD1801/BUDCA), a RM-PDFF diminuiu significativamente junto com melhorias nos parâmetros metabólicos, consistente com a transferibilidade populacional da modulação imunometabólica ligada a BA–FXR 14,61. No nível da fórmula, um ECR multicêntrico duplo-cego do Qushihuayu (QSHY) demonstrou mudanças concordantes nos perfis do microbioma intestinal e dos metabólitos, juntamente com melhorias nas enzimas hepáticas e na FIB-4, destacando como biomarcadores companheiros fortalecem a interpretabilidade causal dos resultadosclínicos 15. Quando disponíveis, os desfechos de Nível 1 (substitutos de gordura ou fibrose baseados em imagem) são priorizados em relação aos resultados apenas bioquímicos.
Achados neutros e negativos devem ser incorporados para mitigar a divulgação seletiva. Em subconjuntos de MASLD, a berberina não superou o controle para enzimas hepáticas ou lipídios, com a heterogeneidade plausivelmente impulsionada pelo fenótipo metabólico basal, status de permeabilidade, medicamentos concomitantes e diferenças de dose/exposição — argumentando por tipagem de resposta pré-especificada e estratificação liderada por biomarcadores em ensaiosfuturos 62. Uma meta-análise clínica atualizada em 2024 relata melhorias gerais em enzimas hepáticas, lipídios e sensibilidade à insulina com a berberina, mas destaca a heterogeneidade do estudo e a necessidade de ECRs de maior qualidade para definir limitespopulacionais 63. Em todas as intervenções, a variabilidade no desenho do estudo, seleção de desfechos substitutos, duração do acompanhamento e terapia de base complicam a comparabilidade entre ensaios. Os tamanhos de efeito são frequentemente modestos, e o relato dos domínios de risco de viés é inconsistente.
Para reprodutibilidade, marcadores de qualidade (Q-markers) e controle de qualidade de ponta a ponta — ligando a base do material e a exposição in vivo a leituras farmacodinâmicas — foram propostos como elementos fundamentais para padronizar investigações da MTC; Aliado a avanços em farmacologia de sistemas/redes e validação multi-ômica, essa estrutura pode melhorar a reprodutibilidade externa e a tradulibilidadeclínica 41. Padronização, consistência de lote a lote e alinhamento regulatório são determinantes críticos da escalabilidade e do estudo cruzado da comparabilidade, sendo tratados aqui como componentes integrais da credibilidade translacional, e não como considerações auxiliares. Em conjunto, o corpo atual de evidências apoia a plausibilidade biológica para múltiplas intervenções de MTC ao longo da coluna barreira TLR4–NLRP3. No entanto, apenas um subconjunto (por exemplo, formulações baseadas em berberina e ensaios selecionados de fórmulas) atende aos critérios de Nível 1 com desfechos humanos suportados por imagem, e mesmo esses são limitados por tamanhos de efeito modestos e heterogeneidade. A maioria das alegações em nível de via — especialmente aquelas envolvendo modulação de inflamassoma ou estabilização de GVB — permanece apoiada principalmente por dados pré-clínicos de Nível 3 e deve ser considerada mecanicamente coerente, porém clinicamente provisória.
Intervenções representativas: Evidência translacional ao longo da barreira – eixo TLR4 – NLRP3
A berberina restaura a função da barreira intestinal e atenua a sinalização do inflammassoma NLRP3
Berberina administrada por via oral apresenta baixa exposição sistêmica com alta disponibilidade luminal: em roedores, a biodisponibilidade oral absoluta é de ~0,36%–0,68%, limitada pela eliminação intestinal na primeira passagem e pelo efluxo de P-glicoproteína55,57. A microbiota intestinal pode reduzir a BBR para diidroberberina, uma forma mais absorvível, consistente com uma trajetória de exposição "intestino primeiro, fígado em segundo"64. Essas características farmacocinéticas e biotransformadas posicionam a BBR para modular processos intestino-fígado a montante que moldam a transdução inflamatória hepática a jusante.
Na interface da barreira, a BBR mitiga a localização incorreta induzida por endotoxinas/citocinas pro-inflamatórias de ZO-1/ocludina/claudins e reduz o vazamento paracelular, em parte por meio da inibição do eixo NF-κB–MLCK; isso reduz indiretamente a carga de LPS portal e a exposição senoidal hepáticaem 65. A BBR também suprime a atividade de NF-κB na mucosa do cólon e nos macrófagos da lâmina própria, diminuindo o TNF-α e a IL-6 e amortecendo ainda mais a cascata TLR4–MyD88–NF-κB66,67. Esses efeitos de barreira e eixo TLR4 são predominantemente apoiados por evidências de Nível 3 (animais), com quantificação limitada de permeabilidade direta em coortes humanas de MASLD.
No nó inflamasomo, o BBR restringe a ativação e a pirooptose do NLRP3 em modelos de estresse nutricional/lipotóxico, em parte modulando para baixo o eixo ROS–TXNIP que integra os sinais de ativação e preparação, reduzindo assim a ativação da caspase-1 e a liberação68 do IL-1β/IL-18. Embora mecanicamente coerentes, esses achados inflamasoma permanecem em grande parte pré-clínicos e requerem validação contra fibrose humana ou desfechos de imagem.
A BBR atua ainda através do eixo endócrino dos ácidos biliares (BA): a inibição da hidrolase de sais biliares microbianos (BSH) aumenta os BA conjugados luminais, notadamente o ácido taurocólico, ativa a via ileal FXR–FGF15 e regula programas de captação hepática de lipídios, como o Cd36 — ligando a reprogramação metabólica à redução da suscetibilidade ainflamassomas 12. Esse mecanismo BA–FXR fornece plausibilidade biológica para efeitos em escala cruzada, mas não estabelece, por si só, eficácia clínica.
Em estudos clínicos, um ECR de fase 2 do complexo iônico berberina–ursodesoxicolato (BUDCA/HTD1801) demonstrou reduções significativas na ressonância magnética-PDFF com benefícios metabólicos concomitantes em relação ao placebo, consistente com a translação-escala cruzada do eixo intestino–BA–FXR para leituras lipotóxicas/inflamatóriashepáticas 14. Meta-análises recentes relatam tamanhos de efeito moderados para ALT/AST e esteatose hepática, enquanto observam heterogeneidade entre ECRs em dose, formulação e perfis de inscrição — ressaltando a necessidade de biomarcadores companheiros e estratificação por tipode resposta 63,69. Considerações de risco de viés incluem cegamento variável, duração limitada do acompanhamento e dependência de pontos finais substitutos. Os dados de segurança são geralmente favoráveis, mas a vigilância de hepatotoxicidade de longo prazo e o perfil de interação medicamento-fármaco (por exemplo, modulação CYP/P-gp) permanecem incompletamente caracterizados.
Para o desenho translacional, índices de permeabilidade, LBP e MRI-PDFF fornecem marcadores companheiros racionais. Ensaios futuros se beneficiariam de tipagem de resposta pré-especificada e relatórios de tamanho de efeito estratificados por permeabilidade basal ou status de ativação do inflamasoma. No geral, a berberina representa uma das poucas intervenções derivadas da MTC apoiadas por evidências baseadas em imagem de Nível 1, embora com tamanhos de efeito moderados, heterogeneidade entre as formulações e confirmação histológica limitada. Alegações mecanicistas além da modulação de ácidos biliares/FXR — particularmente a supressão de inflamassomas — permanecem em grande parte pré-clínicas e devem ser consideradas plausíveis por translação, mas ainda não clinicamente estabelecidas.
Qushihuayu (QSHY): Evidências clínicas e multi-ômicas multicêntricas ao longo do eixo barreira–ácido biliar–TLR4
Em estudos pré-clínicos, QSHY e sua fórmula progenitora QHD restauram as junções tensas do cólon e limitam a translocação de LPS; o perfil fosfoproteômico do cólon aponta para a sinalização MAPK como um regulador a montante, consistente com a sequência "reparo de barreiras → redução da carga PAMP portal → sinalização TLR hepática amortecida"70. No nível hepatocelular, a QHD ativa a AMPK, potencializa a oxidação β dependente de CPT-1A e, assim, reduz o impulso lipotóxico e as entradas inflamatóriassecundárias 71,72. Análises multi-ômicas mostram ainda remodelação concomitante da microbiota intestinal e dos perfis de lipídios/metabólitos séricos, indicando que a intervenção abrange múltiplos nós da interface metabólicaintestino-fígado 73. Coletivamente, esses achados constituem predominantemente evidências mecanicistas de Nível 3 que apoiam plausibilidade biológica, mas não definem o tamanho ou a durabilidade do efeito clínico em humanos.
Clinicamente, um ECR multicêntrico, duplo-cego e duplo fictício (n=246) de 2024, usando VCTE-LFC e ALT como co-desfechos primários, considerou o QSHY superior ao controle para ALT, AST e FIB-4, com assinaturas de microbioma e metabólitos acompanhando a resposta clínica — ligando as mudanças "microbiota–metabólitos" às leituras de transaminase eelastográfica 15, mas a interpretação é limitada pela dependência dos desfechos substitutos, a duração de 24 semanas, e possíveis resíduos de confusão devido a cointervenções no estilo de vida. Os efeitos em vários desfechos secundários de imagem foram limitados, e a heterogeneidade entre os sujeitos (incluindo permeabilidade basal e status inflamatório) provavelmente diluiu o sinal, apoiando a estratificação baseada em permeabilidade/inflamação em ensaios subsequentes. Quando disponível, o relato de ocultação de alocação, adesão e desvios ao protocolo é fundamental para contextualizar o risco de viés para os tamanhos de efeito observados.
Duas prioridades translacionais se seguem. Primeiro, biomarcadores companheiros e estratos pré-especificados: pacientes com LBP basal elevado, proporções anormais de ácido biliar secundário nas fezes ou IL-1β mais alto têm, teoricamente, maior probabilidade de se beneficiar da inibição coordenada ao longo do eixo barreira BA–TLR4 15. Segundo, qualidade e rastreabilidade da exposição: adote marcadores Q baseados em impressões digitais (flavonoides/ácidos fenólicos representativos) e mapee-os para a exposição in vivo e efeitos farmacodinâmicos. Dada a natureza baseada em fórmulas do QSHY, consistência de lote a lote e caracterização transparente das frações ativas são pré-requisitos para comparabilidade de estudos cruzados e desenvolvimento de grauregulatório 74,75. As estratégias combinadas são complementares anatomicamente e mecanicamente — o resmetirom tem como alvo predominante os desfechos do manuseio/fibrose hepatocelular, enquanto agonistas do receptor GLP-1 atuam sobre peso e resistência à insulina — tornando o desenvolvimento conjunto com o QSHY um caminho racional para uma cobertura de respostamais ampla 76,77. Tais combinações devem ser avaliadas com monitoramento de segurança pré-especificado e documentação de fundo da terapia consciente da interação, especialmente quando medicamentos metabólicos concomitantes são comuns em coortes MASLD/MASH. Em resumo, o QSHY é apoiado por evidências de Nível 1 para resultados bioquímicos e baseados em elastografia, mas sua magnitude e durabilidade do efeito ainda precisam ser confirmadas em ensaios mais longos, centrados em imagem ou baseados em histologia. A maioria das alegações de mapeamento mecanicista de nós permanece no Nível 3, e o avanço regulatório dependerá da padronização e replicação entre coortes independentes.
Decocção Da-Chai-Hu (DCHD): Manutenção da barreira vascular intestinal e reajuste da diafonia PPARα/AMPK–NF-κB
A DCHD melhora os lipídios, a resistência à insulina e a histologia hepática em modelos HFD-MASLD, acompanhada por remodelação da microbiota intestinal e do metaboloma sérico, consistente com ação coordenada na barreira a montante e nos linfonodos imunometabólicosintra-hepáticos 16,78. Na "segunda barreira", a barreira vascular intestinal (GVB), a DCHD preserva a integridade endotelial sob sobrecarga de nutrientes em modelos de interação intestino-fígado, reduz o fluxo portal de moléculas patogênicas e reduz os eventos de translocação hepática, destacando a plasticidade do PLVAP/PV-1 e das junções endoteliais; embora derivados em contexto de metástase intestino-fígado, esses achados fornecem suporte mecanicista de Nível 3 para estabilização de GVB e motivam testes em ambientes relevantes para MASLD com desfechos ligados à permeabilidade/endotoxinas. No centro de sinalização hepática, os efeitos do DCHD se alinham com a modulação na interseção PPARα/AMPK–NF-κB, indicando influência em nível de sistema sobre o acoplamento imunometabólico79. No geral, as evidências atuais para DCHD permanecem predominantemente pré-clínicas e geradoras de hipóteses, com dados humanos limitados de Nível 1–2 diretamente ancorados em desfechos concordantes com vias.
Com base em evidências, uma revisão sistemática de 2024 sugere benefício geral da DCHD em transaminases, lipídios e algumas medidas de imagem, enquanto enfatiza limitações da qualidade dos estudos e da heterogeneidade dos desfechos; os estudos clínicos disponíveis são heterogêneos em seu design, frequentemente dependem de desfechos substitutos e fornecem relatos de desfechos em níveis limitados (MRI-PDFF/ELF/MRE), restringindo a inferência sobre o tamanho e durabilidade do efeito80. Preocupações com risco de viés incluem cegamento/ocultação de alocação variável, controle de terapêuticos de fundo e relatos incompletos de adesão e atrito, que complicam a comparabilidade entre ensaios. Um próximo passo translacional é um ECR enriquecido por mecanismos que tem como alvo duplo a GVB e os desfechos da barreira epitelial — por exemplo, permeabilidade fecal/sérica — marcadores de endotoxinas mais PDFF/ELF — e enriquece prospectivamente participantes com alta carga de PAMP portal, aumentando a probabilidade de detectar benefício clínico concordante comvia 80. Dada a probabilidade de medicamentos metabólicos concomitantes (por exemplo, estatinas, metformina) em coortes MASLD/MASH, documentação consciente da interação e monitoramento de segurança pré-especificado devem ser incorporados ao desenho do ensaio. Em conjunto, a DCHD atualmente se baseia predominantemente em dados mecanicistas de Nível 3 e sinais clínicos heterogêneos. Seu posicionamento como uma intervenção moduladora da GVB é biologicamente coerente, mas permanece clinicamente provisório enquanto aguarda validação do desfecho humano concordante com vias.
Polissacarídeos da Medicina Tradicional Chinesa (Astragalus, Ganoderma): Aprimoramento da imunidade mucosa e supressão coordenada do TLR4–NF-κB–NLRP3
Polissacarídeos da MTC são predominantemente expostos à lumina e, portanto, bem posicionados para atuar em programas de barreira imunológica mucosal e na comunicação cruzada entre microbiota e metabólitos. Polissacarídeos de astrágalo (APS) remodelam a homeostase dos ácidos biliares e o acoplamento microbiota–BA em modelos HFD-MASLD, melhorando a esteatose hepática e as leituras inflamatórias e indicando atividade através da ponte "barreira–BA–fígado" 18,81. Polissacarídeos de ganoderma aumentam a IgA secretora, restauram células do cáliz e junções apertadas, e aumentam os transcritos TLR2/4/6 em ambientes imunossupressores, consistente com a "redução de ruído" a montante da imunidade mucosa–barreira – tomTLR 82. No fígado, os polissacarídeos de ganoderma suprimem o inflammassoma NLRP3 e reduzem a saída de IL-1β/IL-18, apoiando a interrupção do relé piroptose-fibrose17. Uma síntese recente catalogou mecanismos multidimensionais pelos quais polissacarídeos melhoram a MASLD pelo eixo intestino-fígado e propôs padrões para definição de marcadores Q e mapeamento deexposição-efeito 83. Coletivamente, esses dados são predominantemente evidências de Nível 3 (pré-clínicas); Estudos robustos em humanos de Nível 1–2 com desfechos centrados em imagem ou fibrose continuam limitados.
Várias restrições merecem esclarecimento. A maioria dos estudos com polissacarídeos permanece pré-clínica ou em fase inicial; A heterogeneidade da fabricação e as distribuições de peso molecular variam amplamente, e concentrações alcançáveis in vivo com consistência lote a lote são gargalos recorrentes. Essa heterogeneidade complica a reprodutibilidade, porque "polissacarídeo" frequentemente denota uma mistura com espectros de peso molecular, pureza e bioatividade variáveis entre preparações. Achados neutros em exames de imagem ou desfechos inflamatórios ocorrem e são plausivelmente impulsionados por diferenças na formulação, duração subótima e medicamentos concomitantes. Assim, resultados negativos ou neutros devem ser relatados e incorporados para mitigar o viés de publicação e a superestimação da eficácia. Para a tradução clínica, um esquema de resposta dominante na barreira — permeabilidade elevada, LBP alto e sIgA baixo no início — combinado com pontos finais em níveis (sIgA/microbiota/SCFAs → LBP/16S rDNA → MRI-PDFF/ELF) fornece uma cadeia auditável de atribuição, enquanto impressões digitais polissacarídicas e espectros de peso molecular podem servir como primitivos de marcadores Q alinhados à exposição e efeitos farmacodinâmicos84,85. Além disso, a caracterização química/estrutural (por exemplo, composição de monossacarídeos, perfil de ligação glicosídica e distribuição de peso molecular) pode fortalecer a rastreabilidade e a padronização de grau regulatório além das medidas grosseiras de "conteúdo polissacarídico" 86,87. Estratégias combinadas com agonistas do resmetirom ou receptor GLP-1 são mecanicamente complementares, sendo que a primeira enfatiza o manuseio de lipídios hepatocelulares e leituras de fibrose, e a segunda peso e resistência àinsulina 74,88,89. Tais combinações devem ser avaliadas com monitoramento de segurança pré-especificado e documentação cuidadosa de terapêuticas de antecedentes, especialmente em populações que recebem múltiplos agentes metabólicos.
Em quatro classes de intervenção, os nós ancoradores ao longo da coluna da barreira – TLR4–NLRP3 são distintos, porém convergentes em fluxo de evidências — desde farmacocinética e local de ação passando por leituras multi-ômicas até os desfechos populacionais. A berberina atua por meio de alta exposição intestinal e sinalização BA–FXR; O QSHY oferece controle coordenado ao longo do eixo barreira–ácido biliar–TLR4; A DCHD estabelece uma defesa dupla na BVB e na barreira epitelial com reajuste imunometabólico; Polissacarídeos reduzem o ruído a montante através dos circuitos imunidade–barreira–inflammassoma da mucosa. Elevar marcadores mecanicistas (permeabilidade/LBP, sIgA, perfis BA, IL-1β/IL-18) juntamente com extremidades de imagem em níveis (MRI-PDFF e ELF/MRE quando possível) para stratificadores pré-especificados pode melhorar a interpretabilidade e reduzir a heterogeneidade; Incorporar esses elementos no controle de qualidade guiado por marcadores Q e na ligação exposição–efeito é essencial para reprodutibilidade e tradução de grau regulatório. Ensaios futuros devem fixar desfechos hierárquicos que combinem índices barreira/GVB com MRI-PDFF/ELF/MRE e enriquezcam a priori subgrupos "alta permeabilidade–inflamação" para aprimorar a via sinal-desfecho. Assim, embora polissacarídeos demonstrem coerência imunomoduladora convincente através dos gânglios de barreira e inflammasoma, a base de evidências atual permanece em grande parte pré-clínica. A validação clínica com preparações padronizadas, marcadores Q reprodutíveis e desfechos de imagem em níveis é necessária antes que se possam tirar conclusões firmes sobre a eficácia.
Entre as intervenções, a força das evidências é desigual. Formulações baseadas em berberina atualmente possuem os dados mais fortes suportados por imagens humanas, enquanto o QSHY demonstra suporte emergente a RCT multicêntrico principalmente para endpoints substitutos. A DCHD e os polissacarídeos permanecem mecanicamente coerentes, mas predominantemente apoiados por evidências pré-clínicas ou clínicas heterogêneas. Essa assimetria ressalta a importância da graduação estruturada, replicação e formulações padronizadas antes que afirmações translacionais amplas sejam avançadas (ver Tabela 2).
| Classe de intervenção | Nó primário na coluna vertebral | Principais alegações mecanicistas | Leituras translacionais relatadas em estudos originais | Status de evidência humana | Nível de evidência | Estudos representativos |
| Formulação à base de berberina / berberina (HTD1801/BUDCA) | Barrier/BA–FXR; TLR4/NLRP3 a jusante (principalmente pré-clínico) | Inibição microbiana de BSH → BA conjugada ↑tauro (por exemplo, TCA) → ativação ileal FXR–FGF15 → ↓hepática Cd36; Proposta de atenuação de barreira/eixo TLR4 e contenção de inflammassomas | Imagem: MRI-PDFF; Bioquímicos: ALT/AST, parâmetros metabólicos; Mecanicista: alvos ileais FXR/FGF15, perfis BA | ECR de fase 2 controlado por placebo com redução de ressonância magnética (PDFF) (mais desfechos metabólicos) | Nível 1–2 para imagens e desfechos bioquímicos; Nível 3 para alegações de inflamassoma | Harrison, et.al, 202114; Dom, et.al 201712; Nejati, et.al, 202262; Nie, et.al, 202463 |
| Qushihuayu (QSHY) / progenitor QHD | Barreira; Ajuste metabólico relacionado a BA/AMPK; Eixo TLR4 (mecanicista) | Restauração de TJ e redução da translocação LPS; regulação upstream relacionada ao MAPK (pré-clínica); FAO ligada a AMPK/CPT-1A e reprogramação metabólica; Remodelação microbiota–lipidoma | Humano: ALT/AST, FIB-4; VCTE-LFC (co-principal com o ALT); assinaturas de microbioma/metabólito que acompanham a resposta; Pré-clínico: leituras AMPK/CPT-1A/FAO; Alterações de microbioma + lipidômicos | ECR multicêntrico, duplo cego, duplo simultâneo, com co-primários (VCTE-LFC + ALT), substitutos secundários de fibrose | Nível 1 para endpoints clínicos de substituição + associação ômica; Nível 3 para reivindicações de nós mecanicistas | Liu, et.al, 202415; Feng, et.al, 201371; Dom, et.al de2022 72 |
| Decocção Da-Chai-Hu (DCHD) | GVB; barreira a montante; PPAR/AMPK–NF-κB (pré-clínico) | Preserva a integridade da GVB (ligada a PLVAP/PV-1) sob hipernutrição; reduz eventos de fluxo de portal/translocação; melhora fenótipo metabólico e inflamatório em modelos de NAFLD | Pré-clínico: histologia, lipídios/medidas de RI; microbiota intestinal + metabolômica sérica; Marcadores de integridade GVB (PLVAP/PV-1) | Evidências clínicas principalmente provenientes de estudos heterogêneos resumidos em revisão sistemática; Extremidades limitadas de nível de imagem | Predominantemente Nível 3; Sinais clínicos heterogêneos | Cui, et.al, 202016; Wang, et.al, 202378; Mou, et.al,2024 80 |
| Polissacarídeos da MTC (Astragalus, Ganoderma) | imunidade/barreira mucosa; TLR4–NF-κB; NLRP3 (principalmente pré-clínico) | Reforço de barreira (proteínas TJ), modulação imune mucosa (sIgA); redução da endotosxemia; Relatada contenção de inflammasomasmas; Acoplamento microbiota/BA em modelos NAFLD | Pré-clínicas: proteínas TJ (ZO-1/ocludina), sIgA, citocinas; composição da microbiota intestinal; Homeostase de BA (incluindo leituras focadas em via de B); Fígado: marcadores inflamassomas (IL-1β/IL-18/NLRP3 em modelos de lesão) | Ensaios robustos centrados em imagem humana/fibrose são limitados; evidências principalmente mecanicísticas/pré-clínicas | Predominantemente Nível 3 | Zheng, et.al, 202418; Ying, et.al,2020 82; Zhong, et.al, 202249 |
Tabela 2: Intervenções representativas mapeadas para o eixo barreira–TLR4–NLRP3 e relataram leituras translacional.
Biomarcadores e tipagem de resposta ancorados na coluna imune intestino-fígado
Painel mínimo de biomarcadores e definições de limiar
Operacionalizar a coluna "barreira–TLR4–NLRP3" requer um painel mínimo e in vivo repetível, que acompanhe os resultados de imagem e clínicos. Para a carga molecular derivada do intestino, revisão sistemática e meta-análise indicam que lipopolissacarídeo circulante sobe ao longo do espectro de MASLD a MASH e fibrose avançada, apoiando seu uso para estratificação e como leitura de exposiçãoproximal 1,90,91. Como a quantificação do LPS é metodologicamente heterogênea, estudos comumente utilizam proteína ligadora ao LPS e CD14 solúvel (sCD14) como substitutos; ambos se correlacionam com a atividade do LPS, mas carecem de especificidade e são sensíveis à flutuação pós-prandial, defendendo a base de jejum pareada e a amostragem padronizada pós-prandial, com relato explícito de tempo e ressalvasinterpretativas 1,92. Além disso, a diversidade estrutural nos lipídios A altera os limiares de disparo do TLR4, portanto, comparações cruzadas devem especificar a fonte e o formato do ensaio LPS para evitar o viés de "mesmo nome, molécula diferente" 93.
Assim, em ensaios clínicos orientados para MTC, a seleção de biomarcadores deve priorizar a reprodutibilidade do ensaio e a comparabilidade entre coortes em vez da completude teórica, e a transparência metodológica deve acompanhar todas as leituras de exposição.
O perfil de ácidos biliares oferece uma janela para a desregulação de BA–FXR/TGR5. No MASH, os totais de BA fecal e plasmático e espécies específicas (por exemplo, ácido cólico, ácido quenodesoxicólico) são frequentemente elevados e associados ao estágio de fibrose e resistência à insulina, sustentando um subtipo94 "dominante em BA–FXR". No plasma, o 7α-hidroxi-4-colesteno-3-uma (C4) reflete a síntese de BA e tipicamente acompanha inversamente o feedback ileal FXR–FGF19; leituras que integram FGF19 com C4 ajudam a resolver o status dinâmico do FXR e podem ser usadas para medir a resposta a intervenções direcionadas ao BA–FXR 95,96,97. Para ácidos graxos de cadeia curta (SCFAs), as associações com esteatose e fibrose dependem direcionalmente da dieta e da ecologia; o emparelhamento de SCFAs fecais ou plasmáticas com capacidade funcional metagenômica (vias biossintéticas de SCFA) e leituras de receptores (GPR41/43) melhora a validade externa98.
Como as medições de BA e SCFA são sensíveis à ingestão alimentar, ecologia do microbioma e variabilidade da plataforma LC-MS, protocolos de amostragem pré-especificados e pipelines analíticos são essenciais para que esses marcadores sirvam como biomarcadores complementares em ensaios de MTC.
Medidas diretas de "permeabilidade" permanecem incertas. A zonulina humana corresponde à pré-haptoglobina-2, mas as ELISAs comumente usadas carecem de especificidade e podem reagir cruzadamente com properdina ou outros membros da família "zonulina", resultando em resultados instáveis entre coortes; A zonulina é melhor tratada como exploratória e validada cruzadamente com testes de permeabilidade funcional ou assinaturas transcricionais de barreira para minimizar a orientação de falsospositivos 99.100. A evidência molecular de translocação bacteriana (rDNA 16S circulante ou hepático) é intrinsecamente baixa biomassa e propensa à contaminação por reagentes e lotes; Controles rigorosos negativos e pipelines de descontaminação são obrigatórios, e a interpretação causal deve ser cautelosa mesmo quando diferenças são relatadas no tecido hepático metabólico/obeso 101.
Imagens com limiar e leituras de fibrose fornecem portões padronizados de "vai/não vai". Uma redução relativa de ≥30% na RM-PDFF correlaciona-se com a resposta histológica (melhora do NAS/resolução MASH) e é adequada para tomada de decisão intermédia de 4 a 12 semanas e planejamento em tamanhoamostral 102.103. Limiares de Fibrose Hepática (ELF) aprimorados de 9,8 e 11,3 apoiam a estratificação de risco e gatilhos de vigilância a longo prazo. A rigidez hepática por ressonância magnética (MRE) em torno de 3,3 kPa, quando combinada com FIB-4 ≥ 1,6 como regra da MEFIB, enriquece a fibrose ≥F2 com alta confiança entre coortes, permitindo a identificação rápida de populações de alto risco e orientando o registrode 104. Para o desenvolvimento da MTC, o acoplamento de marcadores imunes proximais (por exemplo, LBP, IL-1β) com limiares de imagem em níveis fornece uma estrutura hierárquica que reduz a dependência apenas de substitutos bioquímicos.
Tipagem de resposta ancorada à coluna imune
Usando a sequência "epitélio/GVB → LPS–TLR4–NF-κB → NLRP3" como estrutura organizadora, MASLD/MASH pode ser operacionalmente dividido em três subtipos que podem ser adaptados à intervenção. Um fenótipo dominante na barreira é caracterizado por jejum elevado ou por LBP/sCD14 pós-prandial padronizado, uma tendência para proporções mais altas de ácidos biliares primários/secundários e desequilíbrio imunológico mucoso. As imagens tipicamente mostram um alto nível de RM-PDFF com MRE/ELF ainda em faixas de risco baixo a intermediário, favorecendo estratégias de primeira linha que reforçam a integridade epitelial e da GVB, remodelam a microbiota e normalizam o pool de ácidos biliares; a resposta precoce é melhor avaliada por quedas acopladas em LBP/sCD14 juntamente com uma reduçãoPDFF 1,92.
Esse subtipo é particularmente relevante para estratégias de MTC que enfatizam estabilização de barreiras e remodelação microbiota (por exemplo, polissacarídeos ou fórmulas semelhantes a QSHY), e fornece uma base racional para o enriquecimento em ensaios direcionados a barreiras. Um fenótipo dominante em inflamassoma apresenta elevação de IL-1β no sangue ou fígado, assinaturas positivas de NLRP3 e piroptose (GSDMD-N) no nível de transcrito/proteína, e piora concordante das leituras de fibrose. Tecidos humanos e modelos animais mostram que o GSDMD-N aumenta com a atividade da doença e fibrose, e que a inibição seletiva do NLRP3 reduz a inflamação hepática e a fibrose, ao mesmo tempo em que exerce efeitos limitados sobre a esteatose — destacando um risco de desajuste em que a redução de gordura não equivale a melhora inflamatória/fibrótica. Neste subtipo, o emparelhamento do bloqueio NLRP3–caspase-1–IL-1β com a reprogramação metabólica guiada por AMPK/Nrf2 pode aumentar a probabilidade de resposta 7,36.
Em contextos de MTC, esse fenótipo se alinha mecanicamente com agentes relatados como moduladores da sinalização do inflammassoma (por exemplo, BBR, APS) e destaca o risco de que desfechos "apenas de gordura" possam não captar o benefício concordante com vias. Um fenótipo desregulado em BA e FXR é indicado por composição anormal de BA fecal/plasma e dinâmica perturbada de FGF19/C4, implicando um estado não fisiológico do circuito intestino-fígado BA–FXR/TGR5. Além das medidas de barreira/microbiota, esse subtipo exige avaliação explícita da resposta e margens de segurança do FXR/TGR5; A eficácia deve ser avaliada pelo realinhamento fisiológico dos perfis de BA juntamente com melhorias concordantes no PDFF eMRE 94,95. Para intervenções de MTC que influenciam as piscinas de ácidos biliares ou a atividade do FXR, esse subtipo oferece uma estratégia de enriquecimento biologicamente coerente, desde que margens de segurança e efeitos dos ácidos biliares fora do alvo sejam monitorados.
Alinhamento estratificado e acompanhamento longitudinal
Para traduzir o mecanismo → biomarcadores → os desfechos no nível individual, recomenda-se uma estrutura de três pontos de tempo: basal → desfecho intermediário (4–12 semanas) → (≥24–48 semanas). A avaliação inicial deve incluir o painel mínimo (LBP/sCD14, perfil BA e—quando informativo—SCFAs e 16S rDNA rigorosamente descontaminado), imagens com MRI-PDFF/MRE e classificação de risco (por exemplo, MEFIB), com endpoints secundários comuns e específicos de subtipo pré-especificados derivados do esquemade três classes 105. No intervalo, a ressonância magnética (MRI-PDFF) funciona como um sinal de ir/não: uma redução relativa de ≥30% em 4–12 semanas, acompanhada de quedas síncronas em LBP/sCD14, indica que o braço barreira foi ativado de forma eficaz. Se o PDFF declinar, mas IL-1β/GSDMD-N ou ELF/MRE não melhorarem, o padrão sugere um descompasso dominante entre inflammasomas e deve desencadear adição ou mudança para estratégias dirigidas a NLRP3–caspase-1102,103.
A janela de desfechos prioriza MRE/ELF e os desfechos clínicos ao longo de ≥24–48 semanas para capturar a dinâmica da fibrose; Limiares ELF de 9,8/11,3 e uma porta MRE em torno de 3,3 kPa—combinados com FIB-4 ≥1,6 na regra MEFIB—apoiam a reestratificação de riscos e a adjudicaçãode eventos 104. Apoiando a viabilidade da estratificação de risco ancorada em múltiplos ômicos, um estudo recente sobre microbioma–metaboloma fecal em cirrose identificou assinaturas microbianas e metabólicas dependentes de complicações com bom desempenho diagnóstico e correlações com marcadores clínicos, ilustrando como os cômicos derivados do intestino podem ser acoplados a resultados clinicamentesignificativos 78. Para ensaios intrinsecamente baixos em biomassa, controles negativos e dutos de descontaminação devem ser divulgados; A zonulina deve permanecer exploratória e ser validada cruzadamente com testes de permeabilidade funcional ou assinaturas de barreira epitelial para evitar a orientação101 de falso positivo.
Dentro desse contexto, o painel mínimo de biomarcadores e os limiares de imagem em níveis sustentam um sistema coerente para tipagem de resposta e acompanhamento. As classes dominante na barreira, dominante em inflamassoma e desregulada por BA–FXR correspondem a estratégias acionáveis—proteção epitelial/GVB com remodelação microbiota–BA; Inibição de NLRP3–caspase-1 com reajuste metabólico; e modulação FXR/TGR5, respectivamente — com validação por meio de mudanças coordenadas em LBP/sCD14, perfis BA, IL-1β/GSDMD-N e MRI-PDFF/MRE/ELF. Dessa forma, a coluna imune é transformada em critérios testáveis de "quem se beneficia" que informam regras de parada provisória, enriquecimento e vigilância dentro dosensaios 1.103. Ao vincular explicitamente subtipo, classe de intervenção e desfechos hierárquicos, a coluna imune é convertida em critérios testáveis de "quem se beneficia", que podem melhorar a eficiência do ensaio, reduzir a heterogeneidade e fortalecer a atribuição causal em estudos de MTC.
Exemplos ilustrativos, em nível de protocolo, para projetos guiados por biomarcadores
Para melhorar a implementabilidade dos conceitos propostos de biomarcador e design adaptativo, fornecemos dois exemplos trabalhados em nível de protocolo que estão ancorados em desenhos de ensaios publicados e limiares validados de imagem/biomarcadores, em vez de escolhas hipotéticas de parâmetros. O objetivo é demonstrar como a subtipagem mecanicista pode ser operacionalizada com endpoints pré-especificados, regras de decisão intermediárias e ensaios reproduzíveis.
Exemplo resolvido 1: Ensaio de fórmula enriquecida com barreira (QSHY) com portão de imagem e leitura de fibrose.
Uma implementação prática do esquema dominante da barreira pode aproveitar o desenho existente de ensaios randomizados multicentros, duplo-cegos e duplos simulados do Qushi Huayu (QSHY) em populações com NAFLD, que usaram desfechos co-primários alinhados com o teor de gordura hepática por elastografia transitória controlada por vibração e ALT às 24 semanas. Um protocolo enriquecido poderia pré-especificar critérios de entrada para esteatose basal por MRI-PDFF (por exemplo, ≥10%) e exposição associada à barreira elevada (LBP e/ou sCD14 acima do tertil/quartil superior da coorte triada), mantendo a mesma estrutura de cegamento e comparador para viabilidade einterpretabilidade 15. Uma decisão provisória na semana 12 usaria o MRI-PDFF como porta: um declínio relativo de ≥30% seria definido como um sinal de resposta precoce baseado em evidências meta-analíticas que ligam esse limiar à resposta histológica e à resoluçãoNASH 102 e às chances de regressãofibrosis 103. Os participantes continuariam até a semana 24–48 com desfechos focados em fibrose priorizados (ELF e/ou MRE), utilizando camadas prognósticas estabelecidas de ELF (por exemplo, <9,8 vs ≥11,3) para reclassificação de risco e interpretaçãode desfechos 104. Quando se deseja enriquecimento de fibrose, a regra MEFIB (MRE ≥3,3 kPa mais FIB-4 ≥1,6) pode ser pré-especificada no início da linha de partida, seja como um estrato de elegibilidade ou como um subgrupo-chave para fortalecer o poder da inferência relevante parafibrose 105. Biomarcadores companheiros (LBP/sCD14, IL-1β/GSDMD-N exploratório) seriam coletados no início e na semana 12 para testar o engajamento das vias e apoiar a interpretação mecanicista de trajetórias de imagem dissonante/bioquímicas.
Exemplo 2 funcionado: ensaio de intervenção enriquecido com BA–FXR (formulação baseada em berberina) com portão PDFF e co-endpoints metabólicos.
Uma implementação desregulada em relação ao BA e FXR pode ser ancorada no ensaio de fase 2, controlado por placebo, com berberina ursodesoxicolato (HTD1801/BUDCA), que demonstrou redução significativa por ressonância magnética (MRI-PDFF) juntamente com melhorias metabólicas na presumida NASH com diabetestipo 2 14. Um protocolo realizável preespecificaria o enriquecimento no eixo BA usando perfis BA de referência e/ou dinâmicas FGF19–C4 (conforme descrito no manuscrito), mantendo o MRI-PDFF como o principal ponto final de imagem inicial. Uma barreira intermediária de 12 a 18 semanas poderia novamente adotar o limite relativo de declínio do PDFF de ≥30% para apoiar decisões de avançar/não ir e planejar o tamanho da amostra, consistente com a evidênciainicial 102. Como sinais clínicos com produtos de berberina mostram heterogeneidade — incluindo ECRs relatando efeitos neutros sobre enzimas hepáticas e medidas metabólicas em subconjuntos da NAFLD — os protocolos devem pré-especificar tipagem de resposta e análises de heterogeneidade planejadas, em vez de tratar sinais nulos como surpresas posthoc 62. Uma meta-análise recente também destaca a variabilidade entre os ensaios com berberina na formulação, dosagem e perfis dos pacientes, apoiando a necessidade de biomarcadores companheiros e interpretaçãoestratificada 63. O monitoramento de segurança deve ser definido prospectivamente com atenção especial à tolerabilidade gastrointestinal e ao potencial de interação medicamento-medicamento em coortes metabolicamente tratadas, alinhados com os padrões de eventos adversos relatados no HTD1801ensaio 14.
Modelo de implementação: MAMS simplificado orientado por biomarcadores
Uma abordagem pragmática multibraço e múltiplos estágios pode ser enquadrada como três portas pré-especificadas e clinicamente familiares, em vez de uma plataforma adaptativa altamente parametrizada: A Etapa 1 seleciona intervenções por resposta precoce à gordura hepática (MRI-PDFF ≥declínio relativo de 30%) usando portões baseadosem evidências 102; Estágio 2 avalia a dinâmica da fibrose usando ELF e/ou ERM (com enriquecimento opcional de MEFIB) ao longo de 24–48 semanas104,105; O estágio 3 confirma durabilidade com um resultado composto pré-especificado e perfil de segurança. Os relatórios devem seguir a Extensão CONSORT (ACE) dos projetos adaptativos para garantir transparência das adaptações pré-planejadas, regras de parada e controle de errostipo I 106. Esse "modelo de execução" mantém a estrutura implementável enquanto preserva o enriquecimento mecanicista por meio de biomarcadores companheiros (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N).
Conclusões
Ao longo da sequência contígua de falha da barreira epitelial e vascular intestinal, influxo molecular portal, amplificação de TLR4–NF-κB e piroptose mediada por NLRP3, as evidências atuais delineiam uma arquitetura imunometabólica de doença para MASLD/MASH. A reorganização das junções epiteliais apertadas junto com o vazamento de GVB reduz o limiar de ativação da imunidade inata sinusoidal; entradas derivadas do intestino — LPS, etanol endógeno e perfis de ácidos biliares desordenados — são então detectadas pelo TLR4 hepático e propagadas por cascatas inflamatórias, convergindo finalmente para a sinalização NLRP3–caspase-1–IL-1β/IL-18 para impulsionar inflamação efibrose 26,27,33. Essa espinha é acoplada hierarquicamente aos circuitos BA–FXR/TGR5, SCFA–GPR41/43 e AMPK/Nrf2, permitindo sintonia bidirecional entre metabolismo e imunidade 9,10. Dentro desse contexto biológico, agentes naturais multi-alvo permitem a intervenção "coaxial" em barreiras, nós receptor-sinalização e limiares metabólicos: a berberina, ao inibir a BSH bacteriana, remodelar o pool de ácidos biliares e ativar o eixo ileal FXR–FGF15, exerce controle de baixa exposição sistêmica sobre leituras imunometabólicas intra-hepáticas e reduz a RM-PDFF em um ensaio de fase 2 de seu complexo iônico12,13. Terapias baseadas em fórmula e polissacarídeos adicionam sinais translacionais para reparação de barreiras e contenção doinflamassoma 15,17. Juntos, o eixo intestino-fígado fornece uma base prática para alinhar mecanismos, biomarcadores e pontos clínicos dentro de um único sistema de coordenadas.
Traduzir esse conhecimento em resultados requer três desenvolvimentos principais. Primeiro, são necessárias evidências humanas diretas para a GVB e leituras funcionais reprodutíveis. Medidas compostas que capturam a ruptura epitelial-endotelial coordenada — perfilamento em série temporal do jejum e a LBP/sCD14 pós-prandial padronizada vinculada à dinâmica FGF19/C4 de síntese de ácidos biliares e feedback ileal — embutidas em imagens longitudinais e acompanhamento clínico estabeleceriam uma cadeia verificável de "barreira → exposição → órgão"26,27. Segundo, as pontes da multi-ômica para os pontos finais em níveis devem ser explicitadas: metagenômica/transcriptômica prospectiva com espectros de BA plasmático e fecal e SCFAs alinhados aos limiares de imagem — ≥30% de declínio relativo de MRI-PDFF entre 12 e 24 semanas como porta intermediária, e ERM (~3,3–3,5 kPa) com ELF (9,8/11,3) entre 24 e 48 semanas para fibrose e estratificação prognóstica — de modo que os sinais mecanicistas ocupem o mesmo referencial que as leituras estruturais e de resultado102, 105. Terceiro, hipóteses de estratificação devem ser pré-especificadas e falsificáveis: indivíduos no quartil superior do jejum ou no LBP/sCD14 pós-prandial padronizado devem ter maior probabilidade de alcançar ≥30% de redução da PDFF com proteção coordenada de barreira/GVB e normalização microbiota–BA, acompanhados por declínios concordantes de LBP/sCD14; aqueles com assinaturas elevadas de IL-1β ou NLRP3/piroptose (GSDMD-N) devem apresentar preferencialmente melhora ELF/MRE quando o bloqueio NLRP3–caspase-1 for acoplado à retunagem AMPK/Nrf2; A dependência de estratégias apenas de barreira na biologia dominante com inflammassoma representa o descompasso familiar da redução da esteatose sem benefícioda fibrose 1,7,102.
Metodologicamente, projetos adaptativos multi-braço, múltiplos estágios e baseados em biomarcadores podem aumentar a eficiência e a reprodutibilidade em programas multimecanismo. Um estágio inicial bloqueado por ≥30% de declínio de MRI-PDFF pode triagem de braços de baixa probabilidade; um segundo estágio incorporando ELF/MRE pode atualizar a randomização em camadas dominantes na barreira, dominantes em inflamassomas e desreguladas em BA–FXR; Um terceiro estágio pode avaliar os desfechos clínicos e de imagem compostos a 48 semanas. Limites de gate, regras de parada e alocação de α devem ser pré-registrados e reportados de forma transparente; ensaios de baixa biomassa (por exemplo, rDNA 16S circulante ou tecido) exigem controles rigorosos negativos e pipelines de descontaminação, e marcadores Q devem garantir consistência e rastreabilidade em lotes entre bases, exposição in vivo e leituras farmacodinâmicas101,106. A integração da coluna barreira–imunidade inata–metabólica com estratos pré-especificados, desfechos hierárquicos e ensaios adaptativos pode mover intervenções multi-alvo de prova de conceito para benefício duradouro em populações definidas, iluminando a heterogeneidade biológica em MASLD/MASH e fornecendo uma estrutura operacional para terapia combinada precisa e traduzível.
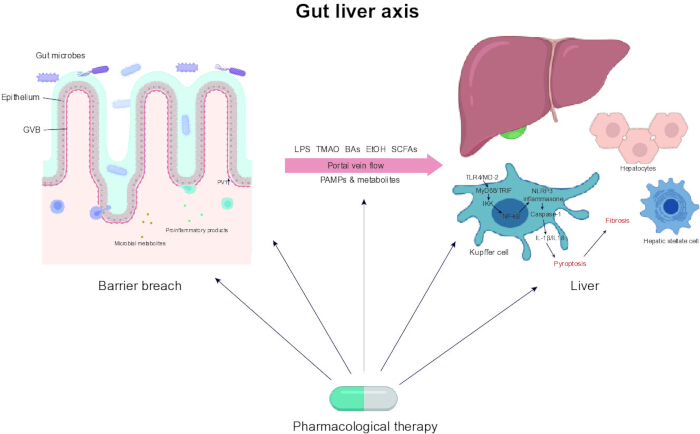
Figura 1: Resumo gráfico do eixo intestino-fígado em MASLD/MASH. Este diagrama resume os principais mecanismos e implicações terapêuticas do eixo intestino-fígado na MASLD e sua progressão para a MASH. Ele ilustra como substâncias derivadas do intestino (por exemplo, LPS, BS, SCFAs, TMAO) se translocam para o fígado via veia porta em caso de comprometimento da barreira intestinal, ativando respostas imunes (por exemplo, TLR4–NF-κB, inflamassoma NLRP3) que provocam inflamação, lesão hepatótica e fibrose. O arcabouço também destaca terapias multi-alvo, sustentando uma estratégia para intervenção estratificada guiada por biomarcadores no MASLD/MASH. Abreviações: MASLD = doença hepática esteatótica associada à disfunção metabólica; MASH = esteatohepatite associada à disfunção metabólica; LPS = lipopolissacarídeo; BA = ácidos biliares; SCFAs = ácidos graxos de cadeia curta; TMAO = trimetilamina N-óxido; TLR4 = Receptor tipo Toll 4; NF-κB = fator nuclear kappa B; NLRP3 = proteína contendo domínios NOD, LRR e pirina 3. Por favor, clique aqui para ver uma versão ampliada desta figura.
Divulgações
Os autores não têm conflitos de interesse a revelar.
Agradecimentos
Esse trabalho foi apoiado pelo Programa Provincial de Ciência e Tecnologia da Medicina Tradicional Chinesa de Zhejiang (nº 2024ZL1181) e pelo Programa Municipal de Ciência e Tecnologia de Jinhua, Projeto-Chave para o Desenvolvimento Social (nº 2024-3-071).
Referências
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).