Esse protocolo apresenta um método detalhado para isolar suspensões unicelulares de alta qualidade tanto de tecido pulmonar murino saudável quanto de tumores. Esse protocolo pode ser aplicado ao scRNA-seq, análise de citometria de fluxo e isolamento de células primárias.
Artigo de método
Preparação otimizada de tecido pulmonar inteiro portador de tumor murino para citometria de fluxo e sequenciamento de RNA unicelular
Neste artigo
Resumo
Resumo
O NSCLC representa aproximadamente 85% dos cânceres de pulmão, e o sarcoma de rato de Kirsten (KRAS) é o gene mais comumente mutado no NSCLC. Embora a gestão do NSCLC tenha avançado significativamente nos últimos anos, sua heterogeneidade e plasticidade permanecem incompletamente compreendidas. O sequenciamento de RNA de célula única (scRNA-seq) tornou-se uma ferramenta essencial para dissecar a heterogeneidade celular em tecidos complexos como o pulmão. No entanto, gerar suspensões unicelulares de alta qualidade a partir de tecido pulmonar contendo tumores é desafiador, especialmente durante a formação tumoral, quando o tecido se torna fibrótico e heterogêneo. Um requisito fundamental para o sucesso do scRNA-seq é a preparação de células individuais viáveis com estresse ou dano induzido pelo processamento mínimo. Aqui, é apresentado um protocolo detalhado passo a passo para isolar suspensões unicelulares de alta qualidade tanto de tecido pulmonar de camundongos saudáveis quanto tumorais em um KrasG12D; Modelo de rato repórter tdTomate. O procedimento inclui perfusão de tecidos, digestão enzimática controlada, dissociação mecânica suave, lise de glóbulos vermelhos, filtração e avaliação de viabilidade, alcançando >85% de células viáveis antes do scRNA-seq. Por fim, as células tumorais de tdTomato+ são isoladas de forma eficiente pelo FACS e podem ser detectadas como clusters distintos por scRNA-seq usando esse protocolo.
Introdução
O câncer de pulmão é uma das principais causas de mortes relacionadas ao câncer no mundo todo. Pode ser amplamente classificado em dois subtipos principais: câncer de pulmão de pequenas células (SCLC) e câncer de pulmão não de pequenas células (NSCLC)1. O NSCLC representa aproximadamente 85% de todos os casos de câncer de pulmão, sendo o adenocarcinoma o subtipohistológico 2 mais comum. Embora as estratégias terapêuticas para CPNPC tenham melhorado substancialmente nas últimas décadas, a taxa de mortalidade por câncer de pulmão permanecealta. Quimioterapia e imunoterapia são as duas principais modalidades de tratamento utilizadas na prática clínica; no entanto, muitos pacientes apresentam resistência a medicamentos ou não respondem à imunoterapia 4,5.
O microambiente tumoral (TME) desempenha um papel fundamental na iniciação, progressão e resistência terapêuticado tumor 6. Evidências crescentes sugerem que a composição do TME muda dinamicamente aolongo do tempo 7,8. As células imunes antitumorais são tipicamente enriquecidas na TME durante os estágios iniciais da tumorigênese, enquanto populações celulares imunossupressoras e associadas ao câncer tornam-se predominantes à medida que o tumor sedesenvolve. Portanto, compreender a heterogeneidade e plasticidade da EMT durante a progressão do câncer de pulmão é essencial para elucidar os mecanismos da doença e melhorar os resultados terapêuticos.
O sequenciamento de RNA de célula única (scRNA-seq) permite o perfil de alta resolução da expressão gênica no nível celular individual, possibilitando a caracterização abrangente de transcriptomas teciduaiscomplexos 10. Essa técnica tornou-se indispensável para estudar a heterogeneidade celular e identificar mecanismos subjacentes à progressão tumoral e à resistência a medicamentos no câncerde pulmão 11. A preparação de uma suspensão de célula única de alta qualidade é um componente crítico para o sucesso do scRNA-seq, pois o estresse ou dano celular durante a dissociação pode levar a resultadosimprecisos 12,13.
Esse protocolo permite sequenciar RNA de todas as células individuais purificadas de pulmões inteiros portadores de tumores, agnóstico em relação ao tamanho celular e sem descartar subpopulações de células vivas. Muitos estudos anteriores relataram sequenciamento de células únicas de pulmões com tumores, que focou em células tumorais e células descartadas CD45+ 14, 15, 16 ou focou em células imunes ou outros tipos celulares específicos17 e células tumorais descartadas. Esse protocolo visa dissociar eficientemente todos os tipos celulares do tecido pulmonar inteiro murino portador de tumores, garantindo a liberação de células malignas e preservando a viabilidade das células normais. Ao incluir todas as células vivas individuais, esse protocolo possibilita o estudo de todos os tipos celulares relevantes dentro do microambiente pulmonar portador de tumores, incluindo células macrófagas associadas ao câncer (CAMLs)18. Etapas opcionais de separação celular ativada por fluorescência (FACS) estão incluídas para controle de qualidade e enriquecimento de populações celulares específicas. Orientações adicionais são fornecidas para coloração por anticorpos, marcação de 4',6-diamidino-2-fenilindol (DAPI) e procedimentos de fixação de curto prazo quando a separação imediata não é viável.
Uma possível limitação desse protocolo é que ele foi otimizado e validado para tecidos pulmonares contendo tumores em estágio inicial e com carga tumoral abaixo de 40%. Para pulmões que contêm tumores de grau mais alto ou em que a carga tumoral ultrapassa 50%, a eficiência da dissociação pode ser comprometida pela presença de componentes estromais densos e fibroseextensa, que pode bloquear a liberação completa de células malignas.
Protocolo
Todos os experimentos relacionados a animais foram realizados de acordo com as diretrizes da Scripps Research para o cuidado e uso de animais e aprovados pelo Comitê Institucional de Cuidados e Uso Animal da Scripps Research sob o protocolo #10-0019. O KrasLSL-G12D/+; Ratos TdTomato+/- foram gerados cruzando ratos Kras LSL-G12D/+ com ratos repórteres TdTomato. KrasLSL-G12D/+ com nove ou dez semanas; Os camundongos TdTomato+/- foram usados como modelos para câncer de pulmão. Eles são infectados intratraquealmente com lentivírus que expressa Cre recombinase, com um título viral de 5 ×10 5 unidades formadoras de placas por camundongo. Tecidos pulmonares com tumores foram coletados após 25 semanas. Possíveis problemas digestivos e solução de problemas estão listados na Tabela Suplementar 1. Os reagentes e os equipamentos utilizados estão listados na Tabela de Materiais.
1. Preparação de Buffers
- Meio DMEM/F12: Prepare FBS inativado por calor a 2% (v/v) em meio DMEM/F12.
- Buffer de lavagem celular: Prepare 2% (v/v) de FBS inativado por calor em PBS livre de Ca+/Mg+ (pH 7,4).
- Tampão de perfusão: PBS livre de Ca+/Mg+ pré-resfriado (pH 7,4).
- Soluções enzimáticas de estoque: Dissolver 10 mg (1600 U/mg) de colagenase IV em 1 mL de DMEM/F12 para obter uma solução de colagenase IV de 16000 U/mL; Dissolver 42 mg (1,19 U/mg) de Dispase II em 1 mL de meio DMEM/F12 para obter uma solução estocada de Dispase II de 50 U/mL; Dissolva 5 mg de DNase I em 1 mL de meio DMEM/F12 para obter uma solução estocada de 5 mg/mL de DNase I.
- Meio digestivo: Misture 250 μL de colagênase IV, 200 μL de Dispase II e 100 μL de soluções de DNase I em meio de 5 mL DMEM/F12 para obter uma concentração final de 800 U/mL de colagênase IV, 2 U/mL de Dispase II e 0,1 mg/mL de DNase I.
- Buffer de ressussão: Misture 1 μL de 0,5 M EDTA (10 μM), 1 mL de FBS inativado por calor (2% v/v) em 50 mL PBS livre de Ca+/Mg+ (pH 7,4).
- Solução de BSA de estoque: Dissolva 0,5 g de BSA em 100 mL de PBS livre de Ca+/Mg+ para obter uma solução de BSA de 0,5% (p/v).
- Tampão FACS: Misture 2,5 mL de 1 M HEPES, 200 μL de 0,5 M EDTA em solução original de 100 mL de BSA para obter uma concentração final de 25 mM HEPES e 1 mM EDTA.
2. Coleta de tecido pulmonar murino
NOTA: Todos os instrumentos cirúrgicos são desinfetados com 70% de etanol entre as amostras. As amostras são mantidas no gelo entre cada etapa, e todo o material plástico é certificado livre de DNase/RNase.
- Eutanasiar o camundongo em uma câmara deCO2 (seguindo protocolos institucionalmente aprovados). Coloque o mouse de costas em uma tapete de dissecação e prenda os pés. Borrife generosamente com 70% de etanol.
- Faça uma incisão na linha média de 2 a 3 cm de largura através da pele e dos músculos da parte inferior do abdômen. Abra cuidadosamente o tórax e evite cortar os pulmões ou o coração.
- Conecte uma agulha multifly de segurança de 21 G a uma seringa de 50 mL e aspire um tampão de perfusão de 30 mL.
- Insira a agulha no ventrículo esquerdo e corte uma pequena incisão no átrio direito usando a tesoura afiada e reta.
- Perfundao corpo inteiro 21 com buffer de perfusão de 15 mL.
NOTA: O clareamento do fígado indica que a perfusão corporal total foi concluída. - Remova os pulmões do tórax e corte o excesso de tecido preso aospulmões 22. Coloque os pulmões em 10 mL de PBS pré-resfriado sem Ca+/Mg+ para lavar o excesso de sangue.
- Transfira os pulmões para um tubo de 1,5 mL contendo 500 μL de DMEM/F12 gelado.
3. Preparação da suspensão de célula única pulmonar
- Corte o tecido pulmonar em pedaços pequenos (1–2 mm3) com uma tesoura reta extra estreita por 2–3 minutos.
- Transfira o tecido pulmonar picado para uma placa de 6 cm contendo meio digestivo de 5 mL.
- Coloque uma antena de 6 cm em um agitador termostático a 50 rpm por 25 minutos a 37 °C. Misture a suspensão usando uma pipeta de 1 mL a cada 8 minutos.
- Coloque uma peneira de malha de 100 μm em uma placa de 10 cm. Pré-molhe o coador com 1 mL de DMEM/F12 medium.
- Transfira a suspensão digerida para o peneiro. Empurra o tecido através do filtro com a ponta de borracha de um êmbolo de seringa estéril.
- Coloque um filtro de malha de 70 μm sobre um tubo de centrífuga de 50 mL. Pré-molhe o coador com 1 mL de DMEM/F12 medium.
- Filtre a suspensão da célula através de um filtro e enxágue o filtro com meio DMEM/F12 de 5 mL.
- Centrifuge a suspensão filtrada com célula a 400 g por 10 minutos a 4 °C e remova cuidadosamente o sobrenadante. Resuspenda o pellet celular em 1 mL de Tampão de Lisagem de Glóbulos Vermelhos por 2 minutos em temperatura ambiente.
- Adicione um buffer de lavagem de célula de 14 mL e centrifuge a 400 g por 10 min a 4 °C.
NOTA: Se o pellet ainda estiver vermelho após a lavagem, repita os passos 8 e 9. - Descarte o sobrenadante e ressuspenda as células em um buffer de ressuspension de 20 mL.
- Misture 10 μL de suspensão de célula única com volume igual de azul de tripano e adicione 10 μL da mistura à lâmina da câmara de contagem de células. Verifique a viabilidade da célula viva, número da célula e status de célula única usando um contador de células.
4. Análise de citometria de fluxo
- Resuspenda as células em um buffer FACS gelado e transfira 100 μL de suspensão celular para tubos de 1,5 mL contendo 1 μL de anticorpo Fc block (1:100). Incube amostras por 15 minutos no gelo.
- Centrifuge amostra a 500 g por 5 minutos e descarte o sobrenadante. Resuspenda as células em 200 μL do anticorpo CD326-APC (1:100) e incube por 45 minutos no escuro a 4 °C.
- Centrifuge amostra a 500 g por 5 minutos e descarte o sobrenadante. Ressuspenda células em 500 μL de buffer FACS contendo coloração DAPI (1:5000).
- Transfira todas as amostras para tubos FACS e proteja-as da luz.
- Analise as amostras usando o citômetro de fluxo. Os seguintes fluoróforos foram utilizados: DAPI-V450, Tdtomato-YG585, CD326-APC. A estratégia de barreira é mostrada na Figura 1.
Resultados
Alta viabilidade de célula foi alcançada na suspensão de célula única preparada usando esse protocolo otimizado. Mudanças que melhoraram a viabilidade celular para pulmões portadores de tumores incluíram a otimização da concentração de enzimas (Tabela Suplementar 2), agitação e mistura das amostras durante a incubação a 37 °C. Além disso, o uso de um filtro de malha adicional de 40 μm no passo 6 foi eliminado para reduzir o estresse de cisalhamento mecânico que aumenta a probabilidade de dano celular; incluir o filtro adicional pode reduzir a formação de múltiplos. Em média, a viabilidade celular ultrapassou 85%, em comparação com menos de 80% antes da otimização (Tabela 1). As variações na concentração celular foram atribuídas principalmente a diferenças no tamanho dos pulmões e no meio de suspensão utilizado entre as réplicas.
Neste modelo murino de adenocarcinoma pulmonar conduzidopor Kras G12D, há nódulos tumorais presentes, e as cargas tumorais variam entre 10% e 40% vinte e cinco semanas após o início dotumor 23. Duas suspensões unicelulares de pulmão inteiro foram submetidas a scRNA-seq na plataforma 10x Genomics. A avaliação de qualidade do Cell Ranger identificou 23.488 e 21.436 células estimadas nas duas amostras, respectivamente (Tabela 2). O gráfico de código de barras indicou contaminação mínima por RNA ambiente, provavelmente refletindo a alta viabilidade celular (Figura 2A,B).
A análise de componentes principais (PCA) e a aproximação e projeção uniforme de variedades (UMAP) revelaram agrupamentos bem definidos, com todos os principais tipos celulares pulmonares representados (Figura 3A). Gráficos de pontos de genes marcadores representativos confirmaram que biomarcadores canônicos estavam altamente expressos em seus tipos celulares correspondentes (Figura 3B). Além disso, células TdTomato+ foram enriquecidas em agrupamentos relacionados à epitelial, e células TdTomato+/EpCAM+ foram isoladas com sucesso por FACS (Figura 1).
Em resumo, esse protocolo otimizado permite a dissociação eficiente do tecido pulmonar murinho portador de tumores, resultando em alta viabilidade celular, baixa contaminação por RNA e representação celular abrangente.
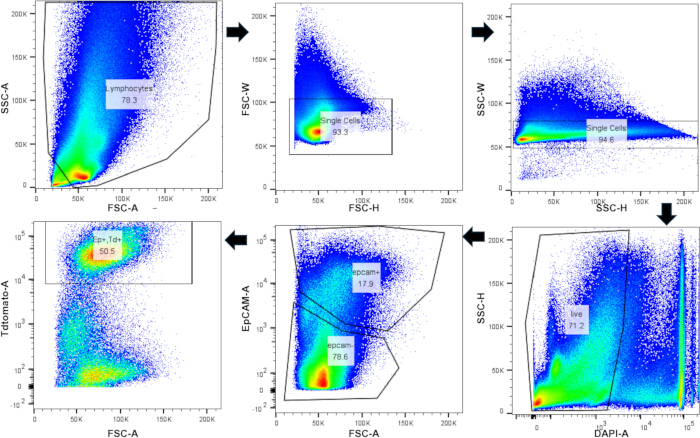
Figura 1: Isolamento de células TdTomato+/CD326 (EpCAM+) por citometria de fluxo. Estratégia de filtração por citometria de fluxo para suspensão unicelular do pulmão murino. Por favor, clique aqui para ver uma versão ampliada desta figura.
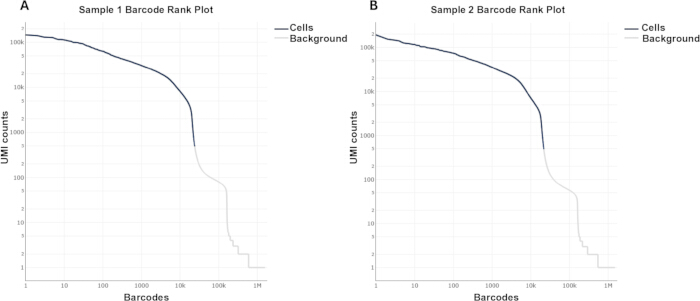
Figura 2: Gráfico de classificação do código de barras ScRNA-seq de pulmões com tumor murino. KrasLSL-G12D/+; Os pulmões de camundongos TdTomato+/- foram coletados 25 semanas após a infecção com lentivírus-Cre. (A,B) Gráfico de classificação do pulmão portador de tumores a partir da análise do Cellranger Clique aqui para ver uma versão maior desta figura.
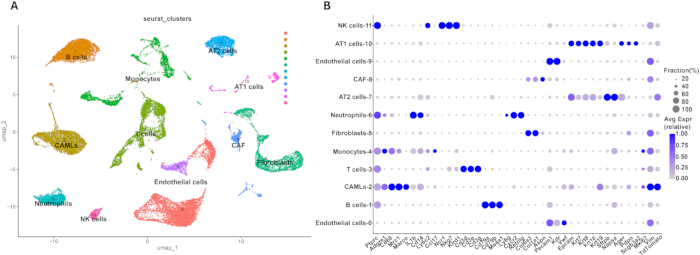
Figura 3: Análise transcriptômica de célula única de pulmões portadores de tumores murinos. (A) Projeção UMAP de conjuntos de dados completos de pulmões portadores de tumores. (B) Gráfico de pontos dos genes clássicos usados para anotações de clusters. Por favor, clique aqui para ver uma versão ampliada desta figura.
| Antes da otimização | Após a otimização | |||
| Repita 1 | Repetir 2 | Repita 1 | Repetir 2 | |
| Número total de células | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Células vivas | 9,8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Porcentagem de células vivas | 76% | 77% | 83% | 89% |
Tabela 1: Viabilidade das células em suspensão unicelular dos pulmões portadores de tumores antes e depois da otimização. A concentração celular e a porcentagem de células vivas determinadas antes e depois do uso desse protocolo.
| Exemplo 1 | Exemplo 2 | |
| Número estimado de células | 23,488 | 21,436 |
| Leituras médias por célula | 18,354 | 20,542 |
| Genes medianos por célula | 2,565 | 2,513 |
| Total de Genes Detectados | 30,893 | 30,556 |
| Contagens medianas de UMI por célula | 6,864 | 6,583 |
| Códigos de Barras Válidos | 95.90% | 95.80% |
| Saturação de Sequenciamento | 26.10% | 28.20% |
| Leituras de Fração nas Células | 94.10% | 95.40% |
Tabela 2: Análise de controle de qualidade ScRNA-seq por Cell Ranger. As estimativas principais dos dados de célula única obtidas do Cell Ranger
Tabela suplementar 1: Soluções de solução de problemas. Soluções são sugeridas para resolver problemas que podem ocorrer durante o processo digestivo. Por favor, clique aqui para baixar este arquivo.
Tabela suplementar 2: Componentes do coquetel enzimático pré-otimização e pós-otimização. As concentrações finais do coquetel enzimático usado antes e depois da otimização. Por favor, clique aqui para baixar este arquivo.
Discussão
Este protocolo fornece um procedimento detalhado passo a passo para preparar suspensões unicelulares de alta qualidade a partir de tecido pulmonar murino. São necessários vários passos críticos para alcançar resultados ideais.
Antes da digestão enzimática, é necessário realizar uma perfusão corporal total para remover o sangue dos pulmões. Isso garante que as células imunes detectadas pelo scRNA-seq se originem do tecido pulmonar, e não do sangue circulante. Durante a perfusão, é essencial inserir a agulha no ventrículo esquerdo para evitar que o perfusado entre na circulação pulmonar e danifice as células pulmonares. Para preservar a viabilidade celular, todos os tampões, incluindo soluções de lavagem, ressuspensão e perfusão, devem ser pré-resfriados em gelo. Dada a heterogeneidade inerente do tecidopulmonar 24, as amostras devem ser mantidas em meio DMEM/F12 antes e durante a digestão, pois esse meio fornece nutrientes essenciais que sustentam a viabilidade celular.
Alta viabilidade celular e agrupamentos celulares bem definidos observados neste protocolo confirmam que a combinação enzimática é tanto leve quanto eficaz. Íons de cálcio e magnésio são conhecidos por promover o agrupamento celular e aumentar a atividadeenzimática 25,26. Portanto, o PBS livre de Ca+/Mg+ é usado para preparar a maioria dos tampões e minimizar aglomerações, enquanto o DMEM/F12 contendo esses íons é usado como meio basal para o tampão de digestão para manter a eficiência enzimática equilibrada.
Embora estudos anteriores tenham descrito pulmões murinos dissociados ou tecidos tumorais, eles frequentemente apresentam variabilidade significativa ou uma descrição incompleta da seleção e concentração deproteases 11,15,27. Por exemplo, Han et al.11 usaram coquetéis enzimáticos sem reportar concentração, o que dificulta a replicação. Por outro lado, um método altamente especializado descrito por Chen et al.28 é eficaz para dissociação de células Alveolares Tipo II (AT2), mas envolve um fluxo de trabalho complexo, o que é impraticável se vários camundongos precisarem ser coletados ao mesmo tempo.
Um desafio crítico na pesquisa em oncologia pulmonar é a heterogeneidade estrutural do pulmão portador de tumores, que consiste tanto em células normais frágeis quanto em células tumorais malignas. Protocolos padrão ou kits comerciais são frequentemente projetados para amostras de tecido normal ou tumor especificamente. Elas resultam em digestão incompleta, falha em liberar células cancerígenas do núcleo tumoral, ou em excesso de digestão, o que induz estresse significativo e morte celular no tecido normal mais sensível em amostras pulmonares com tumores.
Esse protocolo resolve isso ajustando finamente o coquetel enzimático (Colanase IV, Dispase II e DNase I) para alcançar uma dissociação equilibrada. Essa otimização garante a liberação de células malignas enquanto preserva a viabilidade das células normais. Isso é apoiado pela análise de citometria de fluxo, onde identificamos e resolvemos com sucesso duas células epiteliais distintas. As células epiteliais estão bem separadas em células TdTomato+ ou TdTomato-. Esse nível de resolução demonstra que esse método é adequado para estudar todo o microambiente pulmonar portador de tumores sem sacrificar a integridade do tecido hospedeiro. Ao incluir todas as células vivas individuais na análise, esse protocolo possibilita o estudo de todos os tipos celulares relevantes dentro do microambiente pulmonar portador de tumores, incluindo células macrófagas associadas ao câncer (CAMLs) (Figura 3), que não foram amplamente relatadas em estudosanteriores 15,16,17.
Após a digestão, análises de scRNA-seq demonstraram que esse procedimento isola com sucesso diversos tipos celulares. As soluções enzimáticas devem ser preparadas na hora do dia do experimento. Todos os parâmetros digestivos são otimizados para um único pulmão murinho inteiro. Ao usar apenas um lobo ou vários pulmões, o tempo de digestão deve ser ajustado para garantir alta viabilidade celular e dissociação completa do tecido. A contaminação por RNA ambiente e a formação de múltiplos são dois fatores principais que afetam a qualidade doscRNA-seq 29. Embora kits de remoção de células mortas sejam frequentemente usados para aumentar a viabilidade, esse protocolo consistentemente gera mais de 80% das células vivas após a digestão, tornando essa etapa opcional. O gráfico de classificação do código de barras confirmou contaminação mínima por RNA ambiente mesmo sem remoção de células mortas.
O estudo atual valida essa metodologia no contexto de todo o pulmão murino portador de tumores. Essa digestão enzimática otimizada fornece um modelo para estudar vários outros tecidos portadores de tumores caracterizados por microambientes semelhantes. Além disso, a alta viabilidade celular e preservação de todos os tipos celulares alcançados por esse protocolo o tornam adequado para tecnologias avançadas de sequenciamento, como CITE-seq para mapeamento de proteínas de superfície e ATAC-seq para perfil epigenético.
Embora esse protocolo produza suspensões unicelulares de alta qualidade a baixo custo, o estresse celular induzido pelo processo ainda pode ocorrer durante a digestão enzimática. Para minimizar artefatos de expressão gênica relacionados ao estresse, um único operador deve processar no máximo quatro amostras simultaneamente.
Divulgações
Os autores declaram que não têm interesses concorrentes.
Agradecimentos
Esse trabalho foi apoiado pelo National Institute of Health, pelo National Eye Institute (NEI), EUA, com bolsas 5R01EY026202, R01EY035333; as bolsas do Instituto Nacional de Pesquisa Dentária e Craniofacial (NIDCR) R01DE031044, 2R01DE014756, e o Instituto Nacional do Câncer (NCI) R01CA271500 e 2R01CA211187.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Cultura celular |
| Colanase Tipo IV | Sigma Aldich | C5138 | Enzimas digestivas |
| Dispase II | Sigma Aldich | D4693 | Enzimas digestivas |
| DNase I | Roche | 11284931001 | Remover DNA |
| Filtro Falcon 70 Cell | Falcon | 352350 | Remova tecido não digerido |
| Tesoura Estéril | FST | 14088-10 | Tecidos cortados |
| Amortecedor de lise de glóbulos vermelhos | Sigma Aldich | R7757 | Remover células sanguíneas |
| FBS inativado ao calor | Phoenix Scientific | PS100 | Proteger células |
| PBS livre de Ca+/Mg+ | Thermo Fisher | 10010023 | Enzimas dissolvidas/Células de lavagem |
| Agulha 21G de segurança multifly | Sarstedt | 3051524 | Perfusão corporal total |
| 50 mL seringa | BD | 300866 | Perfusão corporal total |
| Antena de 6 cm | Corning | 430116 | Tecidos digestivos |
| Prato de 10 cm | Corning | 430167 | Tecidos digestivos |
| Anticorpo de bloqueio Fc | BD | 553141; RRID:AB_394655 | Citometria de fluxo |
| DAPI | BD | 564907; RRID:AB_2869624 | Citometria de fluxo |
| CD326 | BD | 563478; RRID:AB_2738234 | Citometria de fluxo |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U de Iowa-7556 | Lentiviro |
| Citômetro de fluxo ZE5 (Yeti) | Bio-Rad | Análise de citometria de fluxo | |
| Mouse KrasLSL-G12D/+ | Laboratório Jackson | 008179; RRID:IMSR_JAX:008179 | |
| Rato repórter do TdTomato | Laboratório Jackson | 007909; RRID:IMSR_JAX:007909 |
Referências
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Reimpressões e permissões
