SNRNP70 mostra potencial como marcador diagnóstico para osteoartrite (OA), com expressão consistentemente menor nos tecidos OA do que nos controles. Também pode exercer efeitos anti-inflamatórios, sugerindo uma via terapêutica. Estudos mecanicistas futuros podem ajudar a avançar na gestão da OA.
Artigo de investigação
SNRNP70 está associada a assinaturas focais relacionadas a aderências e inflamação de condrócitos na osteoartrite
* These authors contributed equally
Neste artigo
Resumo
Resumo
A osteoartrite (OA) é uma doença degenerativa das articulações marcada por degradação progressiva da cartilagem e inflamação sinovial, mas os principais fatores moleculares de sua patogênese permanecem incompletamente compreendidos. Aqui, foi realizado o exame para determinar se SNRNP70 — um componente central do complexo snRNP U1 essencial para a empalmagem pré-mRNA — contribui para a progressão da OA. A análise de dez conjuntos de dados transcriptômicos públicos mostrou que SNRNP70 foi consistentemente reduzida na cartilagem da artrosis em comparação com controles normais. Uma meta-análise indicou ainda boa precisão diagnóstica para a OA, com um AUC agregado de 0,92. Nos condrócitos primários de rato estimulados com interleucina-1β (IL-1β), SNRNP70 expressão foi suprimida em condições inflamatórias. A expressão forçada de SNRNP70 não apenas reduziu a produção de mediadores pró-inflamatórios (IL-6 e MMP-13), mas também restaurou componentes chave da matriz extracelular (ECM) (ACAN e COL2A1) e promoveu a migração de condrócitos e a cicatrização de feridas. A correlação de Pearson, seguida pelo enriquecimento KEGG, indicou que a sinalização de adesão focal era uma via associada à regulação SNRNP70 . Experimentos de resgate apoiaram a ideia de que SNRNP70 aumenta a capacidade reparadora dos condrócitos, ao menos em parte, ao ativar essa via. Juntas, esses achados sugerem que SNRNP70 pode servir como um regulador anteriormente não reconhecido da função inflamatória dos condrócitos e da homeostase da cartilagem. Eles também levantam a possibilidade de uma ligação mecanicista entre a atividade dos esfilescomos e a síntese da matriz mediada por adesão focal, justificando uma avaliação adicional da SNRNP70 como marcador diagnóstico candidato ou alvo terapêutico na OA.
Introdução
A osteoartrite (OA) representa uma doença articular prevalente que afeta predominantemente indivíduos com 65 anos ou mais, afetando aproximadamente 7% da população mundial 1,2. Surpreendentemente, entre 1990 e 2019, a prevalência mundial da artrite arquivante aumentou impressionantes 113,25%, passando de 247,51 milhões de casos para 527,81milhões 3. A OA é caracterizada principalmente pela progressão insidiosa de alterações degenerativas nos tecidos articulares, com destaque para a degradação da cartilagem e inflamaçãosinovial 4,5,6. Notavelmente, a sobrecarga mecânica e o inexorável passar do tempo foram estabelecidos como os dois fatores de risco mais pronunciados que contribuem para suapatogênese 7,8. Além disso, um número crescente de estudos ressalta o papel fundamental desempenhado pela degeneração meniscal como elemento integral na complexa patologia daAO9. Investigações anteriores demonstraram de forma convincente que lesões menicais afetam de 68% a 90% dos pacientes comOA 10,11.
No nível molecular, um corpo crescente de evidências indica que a OA não é apenas uma consequência do estresse biomecânico e do envelhecimento, mas também uma doença impulsionada por alterações complexas na regulação gênica e no controle pós-transcricional 12,13,14. Entre esses mecanismos, o esfilescomo tem atraído uma atenção crescente em vários contextos de doenças. Curiosamente, embora tenha sido foco de extensas pesquisas sobre a patogênese da inflamação, o papel do esfilosoma na OA permaneceu notavelmente poucoestudado 15,16,17. Em essência, o espliciossomo pode ser conceituado como uma ribozima metálicadirigida a proteínas 18,19. Entre esses mecanismos, a emenda de RNA emergiu como um determinante crítico do fenótipo de condrócitos e da homeostase da CLE. A emenda precisa garante a expressão correta das proteínas estruturais e de sinalização essenciais para a integridade da cartilagem, enquanto a emenda aberrante pode interromper a renovação da MEC, promover vias catabólicas e acelerar a degeneraçãoda cartilagem 20,21,22.
Estudos recentes destacaram proteínas espielososômicas como reguladores-chave da homeostase dos tecidos articulares, mas o papel dessas proteínas na patogênese da OA permanece amplamenteinexplorado 23. Em particular, SNRNP70, um componente central do complexo de ribonucleoproteína nuclear pequena U1, governa o reconhecimento dos sítios de emenda 5′ durante o processamento pré-mRNA e, assim, influencia a inclusão ou exclusão de exons específicos24,25. A desregulação da SNRNP70 tem sido implicada em várias condições patológicas, mas sua contribuição para a degeneração da cartilagem não havia sido caracterizada anteriormente. Um alvo potencial da regulação mediada por espielossomos é a quinase de adesão focal (FAK), uma molécula central de sinalização que integra sinais mecânicos e bioquímicos para controlar a adesão dos condrócitos, dinâmica do citoesqueleto, sobrevivência e mecantransdução26. A atividade aumentada da FAK tem sido associada ao aumento da sinalização focal de adesão, o que, por sua vez, promove a síntese de MEE e a regulação para cima de proteínas específicas da cartilagem chave, incluindo aggrecan (ACAN) e colágeno tipo II alfa 1 (COL2A1)27,28. Essas proteínas são indispensáveis para manter a estrutura e a função da cartilagem, e sua regulação negativa é uma marca da progressão da OA.
Apesar dos avanços na pesquisa transcricional e epigenética na OA, o papel da regulação da FAK mediada por espíciossomos no controle da sinalização de adesão focal e do metabolismo da ECM permanece pouco definido. Com base nessas observações, argumentou-se que SNRNP70 poderia afetar o comportamento dos condrócitos e a homeostase da ECM modulando a emenda alternativa FAK e, posteriormente, a sinalização de adesão focal. Para testar essa ideia, a primeira questão foi se SNRNP70 expressão é alterada na OA; Seu potencial como marcador diagnóstico foi avaliado, e suas possíveis ligações com respostas inflamatórias e vias focais relacionadas à aderência em condrócitos foram exploradas.
Protocolo
O protocolo de estudo com animais foi aprovado pelo Comitê de Ética da Universidade Médica de Guangxi e do Primeiro Hospital Afiliado da Universidade Médica de Guangxi (código de protocolo 202109001, NO.2022-KY-E-252).
ATENÇÃO: Todos os procedimentos devem seguir diretrizes institucionais e nacionais de cuidado animal. Pessoal treinado deve usar EPI (luvas, máscaras, jalecos) ao manusear animais ou amostras. As cirurgias exigem anestesia adequada e monitoramento pós-operatório. Relate eventos adversos (sangramento, infecção, mudanças comportamentais) prontamente. Descarte carcaças e materiais contaminados corretamente. Realize inspeções regulares nas instalações para garantir a conformidade. Os detalhes comerciais dos animais, reagentes e equipamentos usados neste estudo estão listados na Tabela de Materiais.
Pacientes e conjuntos de dados de expressão gênica
Para investigar os padrões de expressão de SNRNP70 na OA, conjuntos de dados de sequenciamento de RNA (RNA-seq) e microarrays disponíveis publicamente foram sistematicamente recuperados do banco de dados Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. A estratégia de busca incorporou as seguintes palavras-chave: "SNRNP70 OU RPU1 OU SNP1 OU U1AP OU U170K OU U1RNP OU RNPU1Z OU SNRP70 OU U1-70K" combinado com "OA." Os critérios de inclusão foram definidos da seguinte forma: (i) conjuntos de dados derivados de amostras humanas; (ii) estudos focados especificamente em artrosis, excluindo artrite reumatoide e outras doenças inflamatórias das articulações; (iii) disponibilidade de pelo menos três réplicas biológicas independentes tanto em grupos OA quanto em grupos controle normal (NC), permitindo assim o cálculo das diferenças médias padronizadas (SMD). Fluxo de processamento de dados: Após identificar conjuntos de dados elegíveis, os dados brutos de expressão e os metadados clínicos correspondentes foram baixados. Para conjuntos de dados de microarrays, os dados em nível de sonda foram normalizados usando o algoritmo robusto de média multi-array (RMA), e as sondas foram anotadas com símbolos genéticos oficiais usando os arquivos de anotação da plataforma. Para conjuntos de dados RNA-seq, as contagens brutas foram convertidas em valores de transcritos por milhão (TPM) e depois transformadas log2 para garantir a comparabilidade entre conjuntos de dados. Quando múltiplas sondas mapeavam para o mesmo gene, a sonda com maior variância de expressão entre amostras era mantida. Controle de qualidade e harmonização: Para minimizar os efeitos de lote em diferentes estudos, foi aplicada a função ComBat do pacote "sva" R. A análise de componentes principais (PCA) foi realizada tanto antes quanto após a correção para avaliar a eficácia da remoção por efeito de lotes. Conjuntos de dados que apresentaram baixa qualidade, anotações incompletas ou que não distinguiam entre grupos OA e NC foram excluídos de análises adicionais.
Identificação de SNRNP70 diferencialmente expressas em OA e tecidos normais de cartilagem
Para avaliar a expressão diferencial da SNRNP70 entre OA e tecidos de cartilagem normal (NC), foi empregada uma abordagem analítica em múltiplas etapas. Primeiro, os dados de expressão para SNRNP70 foram extraídos dos conjuntos de dados disponíveis. Comparações estatísticas entre grupos de OA e NC foram realizadas usando o teste t de Student para determinar se os níveis médios de expressão diferiram significativamente. Para avaliar ainda mais o poder discriminatório da SNRNP70, curvas de característica operacional do receptor (ROC) foram geradas usando o GraphPad Prism 8.0 e a plataforma Sangerbox (http://vip.sangerbox.com/). A área sob a curva (AUC) foi calculada para quantificar a eficiência diagnóstica dos níveis de expressão SNRNP70 .
Em seguida, uma meta-análise foi realizada usando o Stata 14.0 para integrar os achados em múltiplos conjuntos de dados. A heterogeneidade estatística foi avaliada usando o teste Q de Cochran e a estatística I2 . Quando a heterogeneidade era baixa (p > 0,01 e I2 < 50%), foi aplicado um modelo de efeitos fixos; caso contrário, foi adotado um modelo de efeitos aleatórios. A diferença média padronizada (DME) com seu correspondente intervalo de confiança (IC) de 95% foi calculada para quantificar a expressão diferencial SNRNP70 entre OA e tecidos NC. Para precisão diagnóstica, uma meta-análise diagnóstica foi realizada usando o módulo Midas no Stata. Esta análise estimou a sensibilidade agrupada, especificidade, razão de verossimilhança positiva (PLR), razão de verosimilhança negativa (NLR) e razão de probabilidades diagnósticas (DOR) para SNRNP70. Além disso, foi construída uma curva de característica operacional resumida do receptor (sROC) para fornecer uma avaliação geral do desempenho diagnóstico. Por fim, análises de sensibilidade foram realizadas excluindo sequencialmente conjuntos de dados individuais para avaliar a robustez e estabilidade dos resultados agrupados. O possível viés de publicação foi avaliado usando o teste de assimetria do funil plot de Deeks. Utilizando essa estrutura analítica integrada, os padrões de expressão e o potencial diagnóstico da SNRNP70 em tecidos de artrite opositoria em comparação com tecidos de NC foram avaliados sistematicamente.
Isolamento e cultura celular
Condrócitos primários foram isolados da cartilagem articular de ratos Sprague–Dawley do dia pós-natal. Um total de seis ratos neonatais foram usados para cada isolamento. Como os animais foram coletados em estágio pós-natal inicial, o sexo não foi determinado. Para cada preparação celular independente, os tecidos de cartilagem dos seis ratos foram colhidos e agrupados antes da cultura. Cada preparação isolada de condrócitos — derivada de um conjunto separado de animais — foi tratada como uma única réplica biológica. Réplicas técnicas, incluindo poços repetidos ou reações qRT-PCR repetidas da mesma preparação celular, não foram consideradas réplicas biológicas independentes.
Em resumo, ratos neonatais foram eutanasiados em condições estéreis, e as articulações do joelho foram dissecadas para expor a cartilagem articular. O tecido da cartilagem foi cuidadosamente separado do osso subcondral usando tesouras microcirúrgicas, triturado em fragmentos de aproximadamente 1 mm³ e então digerido sequencialmente com enzimas. Os fragmentos de tecido foram inicialmente incubados com 0,25% de tripsina–EDTA por 30 minutos a 37 °C para remover o tecido conjuntivo residual. Após lavagem com soro tampão fosfatado, os fragmentos restantes foram digeridos com 0,2% de colagênase tipo II em DMEM sem soro por 4–6 horas a 37 °C com agitação suave. A suspensão celular resultante foi filtrada por um peneiro de células de 70 μm, centrifugada a 300 × g por 5 minutos e ressuspensa em DMEM completo suplementado com 10% de soro fetal bovino, 100 U/mL de penicilina e 100 μg/mL de estreptomicina. As células foram semeadas em frascos de cultura e mantidas a 37 °C em uma incubadora umidificada com 5% de CO₂. O meio era trocado a cada 2–3 dias. Apenas os condrócitos de passagem 1 ou 2 foram usados em experimentos subsequentes para minimizar a desdiferençação.
A identidade e pureza dos condrócitos foram confirmadas antes do uso experimental. Morfologicamente, as células primárias apresentaram uma aparência típica de condrócitos poligonais ou semelhantes a paralelepípedos sob microscopia de contraste de fase. No nível molecular, a identidade dos condrócitos foi verificada pela expressão de marcadores associados à cartilagem, incluindo COL2A1 e ACAN, usando Western blot. No modelo inflamatório in vitro , os condrócitos primários foram estimulados com interleucina-1β (IL-1β) recombinante de rato a 10 ng/mL por 48 horas. Células não tratadas, cultivadas sob condições idênticas, serviram como grupo controle normal. Para SNRNP70 experimentos de superexpressão, condrócitos de preparações biológicas independentes foram transfectados separadamente, e cada réplica biológica foi processada de forma independente durante a transfecção, estimulação de IL-1β, extração de RNA/proteína e análise estatística.
PCR quantitativa em tempo real (qRT-PCR)
O RNA total foi isolado de culturas subconfluentes de condrócitos (~80% de confluência) usando o kit RNAfast200. A pureza do RNA foi avaliada em um NanoDrop 2000, aceitando apenas amostras com razão A260/280 de 1,8–2,0, e a integridade foi confirmada por eletroforese em gel de agarose de 1%. O cDNA da primeira fita foi transcrito reversamente a partir de 1 μg de RNA total usando o kit qPCR RT em uma reação de 20 μL contendo primers aleatórios e dNTPs. O perfil térmico para transcrição reversa foi de 42 °C por 30 minutos, seguido por 95 °C por 5 minutos. A qPCR foi realizada com uma pré-mistura baseada em SYBR Green em um sistema de PCR em tempo real. Cada reação de 20 μL consistia em 10 μL de SYBR Green Master Mix, 0,5 μL de espoletas diretas e reversas (10 μM), 2 μL de cDNA e 7 μL de água livre de nuclease. As condições de ciclismo foram: 95 °C por 30 s, depois 40 ciclos de 95 °C por 5 s e 60 °C por 30 s. A análise da curva de fusão foi realizada após a amplificação para verificar a especificidade de um único produto. O GAPDH serviu como referência interna, e a expressão relativa foi calculada pelo método 2−ΔΔCt . Reações foram realizadas em triplicado com três réplicas biológicas independentes. As sequências de espoletas estão listadas na Tabela 1.
Western blot
A expressão proteica de ACAN, COL2A1 e MMP13 foi avaliada em condrócitos após tratamento com IL-1β e superexpressão SNRNP70. As células foram lavadas duas vezes com soro salino fosfatado tamponado gelado (PBS) e lisadas em inibidores de protease e fosfatase contendo tampão RIPA. Os lisados foram incubados no gelo por 30 minutos com vórtices periódicos, depois centrifugados a 12.000 × g por 15 minutos a 4 °C. As concentrações de proteína nos supernadantes eliminados foram determinadas usando um kit de BCA. Quantidades iguais de proteína (30 μg por pista) foram separadas por 10% de SDS-PAGE e transferidas para as membranas do PVDF por transferência úmida. As membranas foram bloqueadas com leite desnatado a 5% em TBST em temperatura ambiente por 1 hora, depois sondadas durante a noite a 4 °C com anticorpos primários contra ACAN (1:1000), COL2A1 (1:1000) ou MMP13 (1:1000). Após três lavagens TBST (10 min cada), as membranas foram incubadas com anticorpos secundários conjugados com HRP (1:5000) por 1 hora em temperatura ambiente. O sinal foi desenvolvido usando reagente ECL e capturado em um sistema ChemiDoc XRS+. A densitometria em banda foi realizada com ImageJ, e todos os sinais de proteína alvo foram normalizados para GAPDH como controle de carga. Os dados são apresentados como níveis relativos de proteína em comparação com o grupo controle.
Transfecção
Condrócitos foram transfectados com um plasmídeo de superexpressão SNRNP70 (OE-SNRNP70) assim que as culturas atingiram cerca de 80% de confluência. Para a transfecção, as células foram semeadas em placas de 6 poços a 2 × 10⁵ células por poço e deixadas para se fixar durante a noite em meio de crescimento padrão (DMEM suplementado com 10% de soro fetal bovino e 1% de penicilina/estreptomicina) a 37 °C em 5% de CO₂. As transfecções foram realizadas usando o LipoFiter 3.0 seguindo as instruções do fabricante. Brevemente, 2–3 μg de DNA plasmídico por poço foram diluídos em 100 μL de meio livre de soro e misturados com a quantidade apropriada de reagente lipídico. Os complexos DNA-lipídios foram incubados por 15–20 minutos em temperatura ambiente para permitir a formação de complexos, depois adicionados suavemente a cada poço contendo condrócitos em meio fresco e sem soro. Após 6 horas, o meio foi substituído por meio de crescimento completo para reduzir a citotoxicidade.
A eficiência da transfecção e a expressão SNRNP70 foram avaliadas 48–72 horas após a transfecção. SNRNP70 níveis de mRNA foram medidos por PCR quantitativa em tempo real (qRT-PCR), com o GAPDH como controle interno. A expressão proteica foi avaliada usando o Sistema Automático Western de Western Simple de acordo com o protocolo do fabricante. Em resumo, lisados celulares foram preparados, as concentrações de proteínas medidas e as amostras foram carregadas em cartuchos capilares para separação automatizada e imunodetecção com anticorpos anti-SNRNP70. A eficiência da transfecção foi calculada comparando a expressão SNRNP70 em células transfectadas por oe-SNRNP70 com a das células controle transfectadas com o vetor vazio.
Imunofluorescência
A imunofluorescência foi usada para examinar os níveis de proteínas IL-6 e MMP-13 em condrócitos oe-SNRNP70 após estimulação com IL-1β. Brevemente, as células foram semeadas em coberturas de vidro estéreis em placas de 24 poços e cultivadas em condições padrão até atingirem 70–80% de confluência. Depois, foram fixados com paraformaldeído a 4% por 15 minutos em temperatura ambiente e lavados três vezes com PBS. Para permeabilização, Triton X-100 0,1% em PBS foi aplicado por 10 minutos em temperatura ambiente. Locais de ligação inespecíficos foram bloqueados pela incubação das células em albumina sérica bovina (BSA) a 5% em PBS por 1 hora à temperatura ambiente.
Após o bloqueio, as células foram incubadas durante a noite a 4 °C com anticorpos primários contra IL-6 e MMP-13 (diluído em 1:200 em 1% de BSA/PBS). Após três lavagens com PBS para remover anticorpos primários não ligados, as células foram incubadas com anticorpos secundários conjugados com fluoróforos específicos da espécie (diluídos em 1:500) por 1 hora em temperatura ambiente no escuro. Os núcleos foram contra-coloridos com 4′,6-diamidino-2-fenilindol (DAPI) por 5 minutos. As lâminas de cobertura eram montadas em lâminas de vidro com meio de fixação antidesvanecimento, e imagens de fluorescência eram capturadas usando um microscópio de fluorescência com ampliação de 20×. Para análise quantitativa, 10 células selecionadas aleatoriamente por amostra foram analisadas no ImageJ para medir a intensidade de fluorescência das proteínas-alvo. A intensidade média de fluorescência foi calculada para cada grupo e usada para comparação estatística.
Ensaio de fechamento de feridas por arranhão celular
Foi realizado um ensaio de fechamento de ferida com arranhão para avaliar a capacidade dos condrócitos de fechar uma lacuna artificial sob diferentes condições de tratamento. Condrócitos primários foram semeados em placas de 6 poços com uma densidade de 1 × 10células 5 por poço e cultivados até que aproximadamente 90% de confluência fosse atingida. Um risco linear foi gerado na monocamada da célula usando uma ponta estéril de pipeta de 200 μL. As células descoladas foram removidas lavando duas vezes com PBS, e um meio de cultivo completo e fresco contendo os tratamentos indicados foi então adicionado. As células foram atribuídas aos seguintes grupos: controle normal, IL-1β tratado e IL-1β mais SNRNP70 superexpressão. Imagens da mesma área da ferida foram capturadas em pontos de 6 h e 12 h após o arranhão usando um microscópio invertido (Figura Suplementar 1). O fechamento da ferida foi calculado como a redução percentual da área da ferida em relação à área inicial da ferida em 0 h usando a seguinte fórmula:
Fechamento da ferida (%) = [(área da ferida em 0 h - área da ferida no momento indicado) / área da ferida em 0 h] × 100. (1)
Análise estatística
Todos os dados quantitativos são apresentados como a média ± desvio padrão (SD) de três réplicas biológicas independentes (n = 3), salvo indicação em contrário. Análises estatísticas foram realizadas usando o GraphPad Prism 8.0. Para comparações entre dois grupos, foi utilizado um teste t de Student sem pareamento. A significância estatística foi indicada da seguinte forma: *p < 0,05 e **p < 0,01.
Resultados
SNRNP70 expressão nos tecidos da cavidade articular
Para investigar de forma abrangente o papel da SNRNP70 na OA, foi realizada uma triagem sistemática de 10 conjuntos de dados de RNA-seq e microarray disponíveis publicamente que atenderam a critérios rigorosos de inclusão e exclusão (Tabela 2). SNRNP70 níveis de expressão foram cuidadosamente extraídos e analisados entre esses conjuntos de dados. De forma notável, em 6 de 10 coortes, a expressão SNRNP70 foi significativamente reduzida nos tecidos da artrosioa em comparação com os controles normais (p < 0,05), sugerindo um padrão consistente de supressão transcricional (Figura 1).
Vale ressaltar que três conjuntos de dados (GSE114007, GSE169077 e GSE19060) não revelaram diferenças estatisticamente significativas entre amostras de OA e controle. Em vez de desconsiderar essas discrepâncias, estratégias de correção por lotes e integração de conjuntos de dados foram aproveitadas para aumentar a robustez e confiabilidade da análise. Especificamente, conjuntos de dados derivados de plataformas idênticas de sequenciamento foram combinados para aumentar o poder estatístico. Por exemplo, GSE114007 foi combinado com GSE89408 para gerar GSE114007-89408, enquanto GSE169077, GSE12021 e GSE55457 foram fundidos em GSE169077-12021-55457 (Figura 1). Essa abordagem integrativa minimizou a variabilidade entre estudos e fortaleceu a reprodutibilidade dos achados. Em resumo, análises de conjuntos de dados humanos revelam uma regulação consistente para baixo da SNRNP70 nos tecidos articulares da OA, sugerindo seu potencial como biomarcador diagnóstico. No entanto, se essa diminuição impulsiona diretamente a desregulação da emenda ou a degeneração da cartilagem em humanos é incerto e aguarda verificação, preferencialmente em modelos de tecidos humanos.
Capacidade diagnóstica clínica da SNRNP70
Para avaliar rigorosamente o valor diagnóstico da SNRNP70 na OA, foi realizada uma meta-análise abrangente integrando dados de 165 amostras de OA e 125 controles normais. Isso representa, na melhor medida do conhecimento disponível, a avaliação sistemática da SNRNP70 como um potencial biomarcador diagnóstico na OA. A análise de heterogeneidade revelou heterogeneidade significativa entre os conjuntos de dados (I2 = 72,9%; p = 0,001), exigindo um modelo de efeitos aleatórios. A análise agrupada demonstrou uma redução robusta e consistente da expressão SNRNP70 nos tecidos OA em comparação com controles normais, com uma diferença média padronizada (DME) de -1,07 (IC 95%: -1,34 a -0,80) (Figura 2A–B). Além do perfil de expressão, o desempenho diagnóstico da SNRNP70 foi avaliado adicionalmente. Os resultados combinados dos testes diagnósticos revelaram uma sensibilidade combinada de 0,82 (IC 95%: 0,57–0,94) e especificidade de 0,88 (IC 95%: 0,73–0,95), ressaltando sua forte capacidade discriminatória (Figura 3A). Consistentemente, a curva da característica operacional sumária do receptor (SROC) forneceu uma área sob a curva (AUC) de 0,92 (IC 95%: 0,90–0,94), destacando ainda mais a alta precisão da SNRNP70 na distinção de pacientes com OA de indivíduos saudáveis (Figura 3B).
Para garantir a robustez desses achados, foi realizada uma análise de sensibilidade, confirmando que a exclusão sequencial de conjuntos de dados individuais não alterou materialmente o tamanho do efeito total (Figura 4A). Importante, tanto o teste de assimetria do funil plot de Deek (p = 0,41) quanto o teste de Egger não indicaram viés significativo de publicação, reforçando a credibilidade dos resultados (Figura 4B). Juntos, esses dados mostram que a expressão SNRNP70 é reduzida na OA e sugerem que ela pode servir como biomarcador diagnóstico. Dito isso, a heterogeneidade entre os conjuntos de dados e a ausência de uma coorte de validação independente merecem cautela. Esses achados são, portanto, considerados preliminares, aguardando estudos adicionais para esclarecer a utilidade clínica da SNRNP70 no diagnóstico e manejo da artrite ardomia.
SNRNP70 modulação da expressão gênica inflamatória na OA
Para delinear o papel regulador da SNRNP70 na sinalização inflamatória durante a progressão da OA, um modelo in vitro de OA foi inicialmente estabelecido expondo condrócitos à IL-1β, uma citocina pró-inflamatória bem caracterizada. A análise qRT-PCR realizada após 48 horas de estimulação com IL-1β revelou uma regulação significativa para baixo dos níveis de SNRNP70 mRNA em comparação com o grupo NC (Figura 5). Essa supressão da expressão de SNRNP70 em condições inflamatórias foi consistente com dados transcriptômicos de conjuntos de dados de OA disponíveis publicamente, fornecendo assim evidências robustas de que SNRNP70 é consistentemente reprimida na inflamação associada à OA. Para investigar mais a fundo se restaurar a expressão SNRNP70 poderia modular o fenótipo inflamatório dos condrócitos, as células foram transfectadas usando um plasmídeo de superexpressão SNRNP70 (oe-SN). Notavelmente, a expressão forçada de SNRNP70 aliviou substancialmente a inflamação induzida por IL-1β, refletida tanto por mudanças transcricionais quanto traducionais. Especificamente, a qRT-PCR mostrou uma redução robusta nos níveis de mRNA de IL-6 e MMP-13 no grupo oe-SN em comparação com controles tratados com IL-1β (Figura 5).
Além dessas descobertas moleculares, a coloração por imunofluorescência forneceu evidências celulares diretas do potencial anti-inflamatório da SNRNP70. Em células tratadas com IL-1β, a IL-6 apresentou acúmulo citoplasmático pronunciado, consistente com um estado inflamatório ativado. Notavelmente, a superexpressão de SNRNP70 levou a uma atenuação notável da intensidade da coloração citoplasmática da IL-6 (Figura 6A), destacando assim sua capacidade de reverter a resposta inflamatória no nível celular. Um padrão semelhante foi observado para MMP-13, onde o tratamento com IL-1β aumentou sua expressão, mas SNRNP70 superexpressão suprimiu marcadamente a localização e intensidade do sinal de MMP-13 (Figura 6B).
Diferentemente de investigações anteriores que focaram principalmente em danos estruturais à cartilagem, os dados in vitro de condrócitos de rato sugerem que SNRNP70 atua como regulador da expressão gênica inflamatória. Especificamente, a expressão forçada de mediadores pró-inflamatórios atenuados com IL-1β, incluindo IL-6 e MMP-13, SNRNP70 atenuados neste modelo de rato. Importante destacar que, como esses experimentos foram conduzidos exclusivamente em um modelo inflamatório de ratos, eles não recapitulam diretamente os achados do conjunto de dados humanos. No entanto, esses resultados oferecem uma estrutura conceitual, indicando que SNRNP70 pode funcionar não apenas como um fator de emenda, mas também como um potencial modulador da inflamação — uma possibilidade que merece uma exploração adicional em tecidos humanos.
Identificação de vias relacionadas à SNRNP70 na AO
Para explorar vias biológicas associadas à expressão SNRNP70 na osteoartrite, a análise de correlação de Pearson foi realizada separadamente nos conjuntos de dados transcriptômicos públicos GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 e GSE82107-19060. Genes com coeficiente absoluto de correlação (|r|) > 0,8 e p < 0,05 foram considerados significativamente correlacionados com SNRNP70 expressão em cada conjunto de dados. Foi gerada a união de genes correlacionados entre todos os conjuntos de dados, resultando em 929 genes relacionados à SNRNP70.
A análise de enriquecimento de vias KEGG foi posteriormente realizada usando o pacote clusterProfer, com ajustes para múltiplos testes via método Benjamini–Hochberg. Essa análise revelou enriquecimento significativo dos genes identificados em várias vias, incluindo a via de adesão focal (Figura 7). Essa cascata de sinalização é conhecida por regular a adesão dos condrócitos, a mecanotransdução e a remodelação da MEC, todos processos fundamentais na progressão da OA. Juntas, esses achados sugerem uma ligação entre a expressão SNRNP70 e assinaturas de expressão gênica relacionadas à adesão focal em conjuntos de dados de OA.
SNRNP70 media a reparação inflamatória dos condrócitos via via da via focal de adesão
Para avaliar o papel da SNRNP70 na capacidade de cicatrização de feridas de condrócitos inflamatórios, foi realizado um ensaio de fechamento de ferida com arranhão utilizando condrócitos primários. As células foram divididas em três grupos: controle normal, tratado com IL-1β e IL-1β mais superexpressão SNRNP70. A estimulação com IL-1β reduziu a extensão do fechamento do gap de arranhão em comparação com o grupo controle normal, indicando capacidade de cicatrização da ferida comprometida em condições inflamatórias. Em contraste, SNRNP70 superexpressão promoveu o fechamento do gap de arranhão em condrócitos tratados com IL-1β em relação ao tratamento apenas com IL-1β (Figura 8A). Coletivamente, esses resultados indicam que SNRNP70 superexpressão potencializa a resposta de fechamento de feridas dos condrócitos tratados com IL-1β.
No nível molecular, análises Western blot demonstraram que o tratamento com IL-1β suprimiu a expressão das proteínas da matriz cartilaginosa ACAN e COL2A1, ao mesmo tempo em que promoveu a regulação para cima da enzima degradativa MMP13. Importante, SNRNP70 superexpressão não apenas restaurou os níveis de ACAN e COL2A1 , mas também reduziu significativamente a MMP13, preservando assim a integridade da ECM (Figura 8B). Mecanisticamente, in vitro, os efeitos benéficos da SNRNP70 estiveram intimamente associados à ativação da via de sinalização de adesão Focal.
Coletivamente, análises de conjuntos de dados humanos revelam que SNRNP70 é reduzida na OA e que sua expressão correlaciona-se com genes envolvidos na via de adesão focal. Em condrócitos de rato expostos à estimulação de IL-1β, a expressão forçada de SNRNP70 promove a reparação celular inflamatória e a síntese de MEC, além de se associar à sinalização focal de adesão. Embora essas observações in vitro de um modelo de ratos sejam sugestivas, elas não comprovam diretamente os achados derivados de conjuntos de dados humanos. No entanto, essas linhas convergentes de evidências apoiam um modelo no qual SNRNP70 contribui para a patogênese da artrosis humana por meio da sinalização de adesão focal — uma hipótese que agora aguarda confirmação definitiva em tecidos humanos ou modelos in vivo com relevância humana.
DISPONIBILIDADE DE DADOS:
Os conjuntos de dados utilizados e analisados neste estudo estão disponíveis no conjunto de dados GEO (https://www.ncbi.nlm.nih.gov/geo/). Todos os dados gerados ou analisados durante este estudo foram totalmente apresentados e discutidos dentro do manuscrito. Os dados brutos deste estudo são enviados como um Arquivo Suplementar.
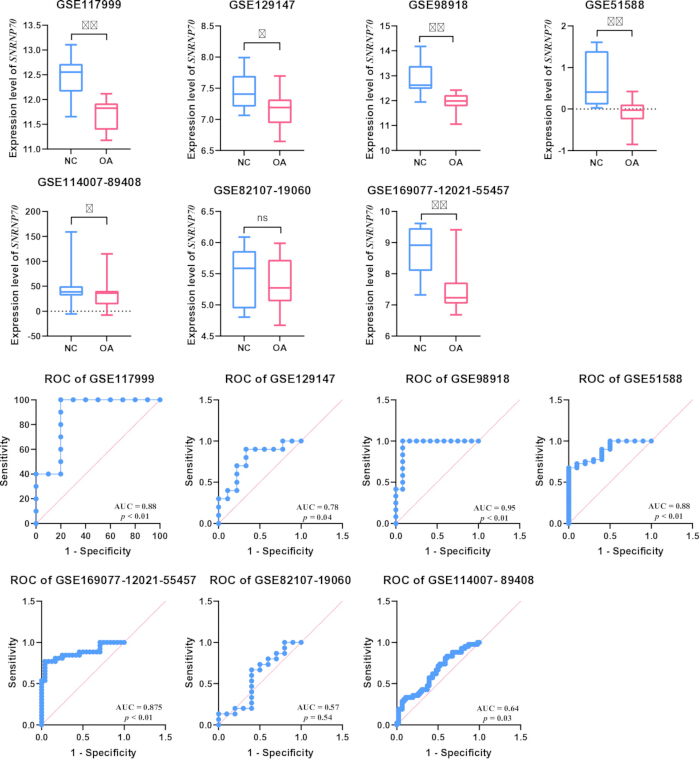
Figura 1: O teste t dos alunos e a curva ROC para sete estudos. Os resultados sugeriram que a expressão SNRNP70 foi menor nos tecidos OA do que nos tecidos NC em GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 e GSE169077-12021-55457 (p < 0,05), e o AUC ROC indicou alta viabilidade. p < 0,05 (*), p < 0,01(**). Por favor, clique aqui para ver uma versão ampliada desta figura.
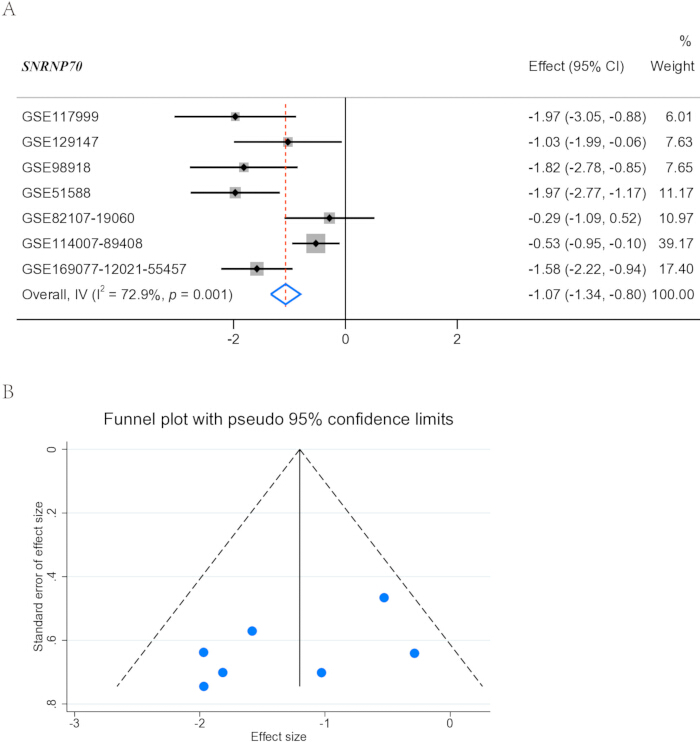
Figura 2: A meta-análise para sete conjuntos de dados. (A) Os resultados mostraram que I2 = 72,9%, p = 0,001, e a DMS geral foi -1,07. (B) O diagrama do funil foi avaliado quanto ao viés de publicação na meta-análise. Foi constatado que é basicamente simétrico. Por favor, clique aqui para ver uma versão ampliada desta figura.
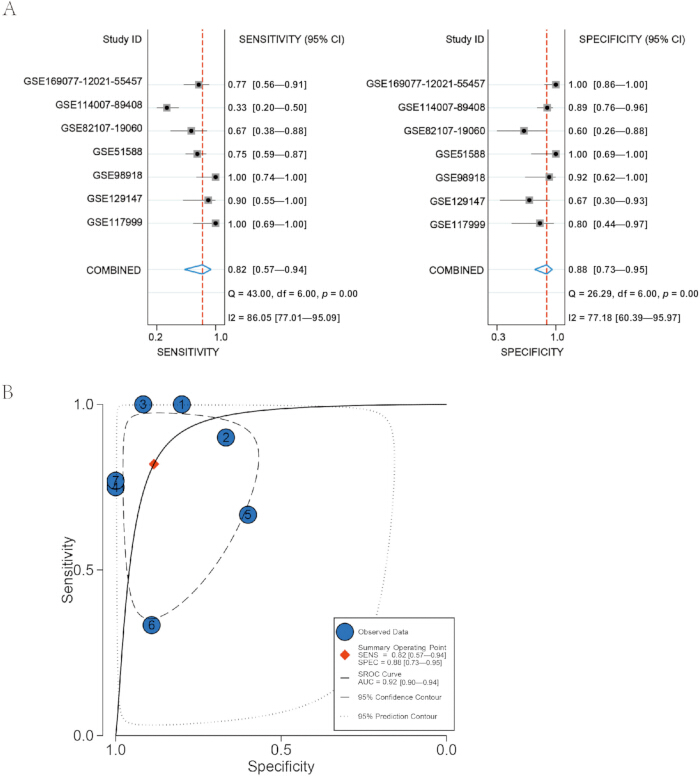
Figura 3: O desempenho diagnóstico de SNRNP70. (A) O teste Q revelou que tanto a sensibilidade quanto a especificidade tinham valores p < 0,05, com valores de I2 de 86,05% e 77,18%, respectivamente, indicando heterogeneidade substancial. O estudo relatou sensibilidade de 0,82 e especificidade de 0,88, destacando seu desempenho notável. (B) O AUC do sROC foi 0,92, indicando alto nível de confiança na pesquisa. Por favor, clique aqui para ver uma versão ampliada desta figura.
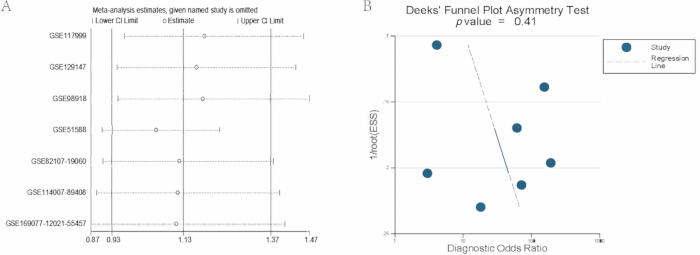
Figura 4: Análise de influência e gráfico do funil de Deek. (A) A análise de influência indicou que excluir qualquer estudo individual não afetou significativamente os resultados gerais. (B) Em sete estudos, todos os resultados não mostraram viés significativo (p = 0,41). Por favor, clique aqui para ver uma versão ampliada desta figura.
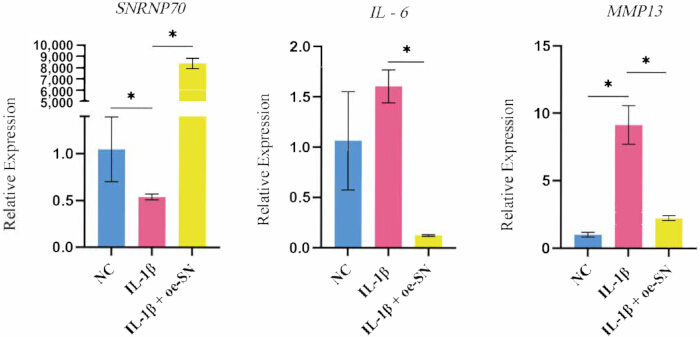
Figura 5: Os resultados da qRT-PCR indicam uma redução significativa na expressão SNRNP70 nos condrócitos após o tratamento com IL-1β. No grupo oe-SN, houve uma diminuição notável nos níveis de expressão dos marcadores inflamatórios IL-6 e MMP13 em comparação com o grupo IL-1, sugerindo que a superexpressão de SNRNP70 pode reverter os marcadores inflamatórios nos condrócitos tratados com IL-1β. Os dados são apresentados como média ± DS a partir de n = 3 réplicas biológicas independentes. valores p < 0,05 (*), valores p < 0,01(**). Por favor, clique aqui para ver uma versão ampliada desta figura.
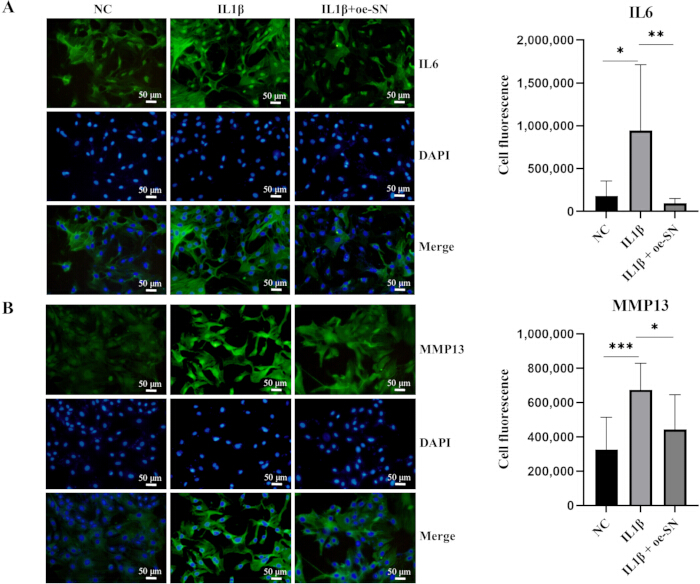
Figura 6: A análise de FI de condrócitos tratados com IL-1β após o tratamento com IL-1β, mostrando a intensidade de fluorescência. (A) A intensidade de fluorescência de IL-6 e (B) MMP13 aumentou significativamente. No entanto, a superexpressão de SNRNP70 levou a uma redução significativa na intensidade de fluorescência dos marcadores inflamatórios IL-6 e MMP13. Esses resultados sugerem que SNRNP70 superexpressão pode mitigar a inflamação em condrócitos tratados com IL-1β. Todas as imagens microscópicas foram tiradas com ampliação de 10x. Os dados são apresentados como média ± DS a partir de n = 3 réplicas biológicas independentes. valores p < 0,05 (*), valores p < 0,01(**). Barra da escala = 50 μm. Por favor, clique aqui para ver uma versão maior desta figura.
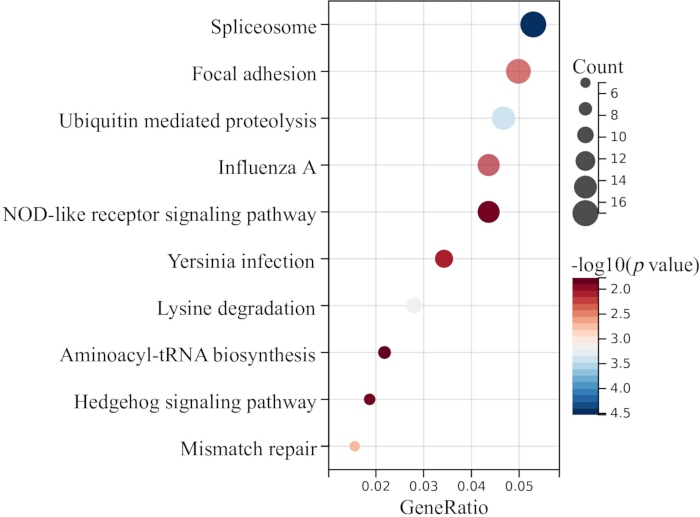
Figura 7: Análise de enriquecimento KEGG baseada em correlação de genes associados à SNRNP70 em conjuntos de dados de osteoartrite. As 10 principais vias enriquecidas identificadas pelo clusterProfiler (correção de Benjamini–Hochberg). Tamanho da bolha = contagem de genes; cor = significado (-log10(valor p )). A via de adesão focal (destacada) media a adesão dos condrócitos, a mecanotransdução e a remodelação de ECM na OA. Por favor, clique aqui para ver uma versão ampliada desta figura.
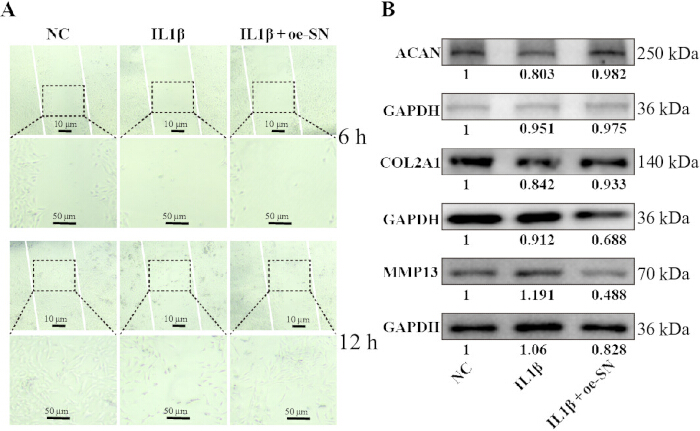
Figura 8: SNRNP70 superexpressão restaura a reparação da ECM em condrócitos tratados com IL-1β. (A) Imagens do fechamento da ferida arranhada no controle, tratamento com IL-1β e condrócitos por superexpressão de IL-1β mais SNRNP70. (B) Manchas ocidentais representativas da matriz cartilaginosa chave e proteínas catabólicas. As membranas foram sondadas para detectar ACAN, COL2A1 e MMP13. O GAPDH é mostrado como um controle de carregamento. As ampliações são as seguintes: grupos NC, IL-1β e IL-1β+oe-SN: A 4x de ampliação: barra de escala = 10 μm. Com ampliação de 10x: barra de escala = 50 μm. Por favor, clique aqui para ver uma versão maior desta figura.
Figura suplementar 1: Análise quantitativa do fechamento de feridas e densitometria de Western blot. (A) Quantificação do fechamento por arranhão em condrócitos primários dos grupos NC, IL-1β e IL-1β + oe-SNRNP70 . (B) Quantificação densitométrica das bandas ocidentais de ACAN, COL2A1 e MMP13. As intensidades das bandas foram quantificadas usando ImageJ e normalizadas para GAPDH. Os dados são apresentados como média ± DS a partir de n = 3 réplicas biológicas independentes. *p < 0,05, **p < 0,01. Por favor, clique aqui para baixar este arquivo.
| Gene-alvo | Sequência de primer frontal | Sequência de primer frontal |
| GAPDH | 5'-TCTCTGCTCCTCCCTCTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCAATGCG-3' |
Tabela 1: Os primers para os genes-alvo. Sequências de primer para frente e para trás para GAPDH, SNRNP70, IL6 e MMP13 usadas na qRT-PCR são mostradas, todas nas orientações 5′ > 3′. O GAPDH era o controle interno.
| Identificação de Estudo | Plataforma | NC (n) | OA (n) | Tecidos |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Cartilagens |
| GSE117999 | GPL20844 | 10 | 10 | Cartilagens |
| GSE129147 | GPL15207 | 9 | 10 | Cartilagens |
| GSE169077 | GPL96 | 5 | 6 | Cartilagens |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Menesco |
| GSE98918 | GPL20844 | 12 | 12 | Menesco |
| GSE51588 | GPL13497 | 10 | 40 | Osso subcondral |
Tabela 2: Os conjuntos de dados deste estudo do banco de dados GEO. Resumo de 11 conjuntos de dados GEO disponíveis publicamente que atendem aos critérios de inclusão. Para cada conjunto de dados, ID de acesso, plataforma e números de amostras de controle normal (NC) e osteoartrite (OA) são fornecidos, juntamente com o tipo de tecido. n = número de amostras.
Discussão
O presente trabalho sugere que SNRNP70 pode funcionar como um gene protetor na patogênese da OA, uma doença articular multifacetada que representa um desafio global significativo para a saúde29,30. Este estudo é o primeiro a relatar o papel da SNRNP70 na OA. Neste estudo, demonstramos uma redução significativa da expressão de SNRNP70 em tecidos de OA, evidenciado pela análise dos dados GEO (DME global = -1,07, IC 95%: -1,34, -0,80; Figura 2). Importante destacar que esse achado foi posteriormente validado em condrócitos tratados com IL-1β. Além disso, este estudo explorou o papel da SNRNP70 na resposta inflamatória dos condrócitos tratados com IL-1β. Como gene protetor associado à OA, SNRNP70 apresentou a capacidade de impedir a progressão da OA ao suprimir a expressão de IL-1 e MMP13. Até o momento, este é o primeiro estudo experimental a relatar uma disparidade perceptível nos níveis de expressão SNRNP70 entre tecidos de OA e NC, sugerindo um possível papel da SNRNP70 na patogênese da OA. Essa observação intrigante nos leva a considerar as possíveis implicações diagnósticas da SNRNP70 na OA.
A meta-análise que realizamos, incorporando múltiplos conjuntos de dados e arrays de RNA-seq, forneceu evidências da possível relevância diagnóstica do SNRNP70. A DME de -1,07 ressaltou a regulação consistente da SNRNP70 em tecidos de artrosis, aumentando a possibilidade de sua utilidade como candidata diagnóstica. A análise da curva ROC enfatizou ainda mais esse potencial, com uma AUC de 0,92, indicativa de um poder discriminatório robusto. Além disso, os valores combinados de sensibilidade e especificidade apoiaram a ideia de que SNRNP70 pode permitir um diagnóstico OA mais precoce e preciso. Além de sua promessa diagnóstica, SNRNP70 continua sendo um candidato de interesse no contexto da gestão da OA. A patogênese da AO é um processo multifatorial envolvendo sobrecarga mecânica, envelhecimento, predisposição genética einflamação 31,32. Entre esses fatores, a inflamação ganhou reconhecimento crescente como um dos principais fatores que impulsionam a progressão daOA 33,34. Ela orquestra uma cascata de eventos, incluindo degradação da cartilagem, inflamação sinovial e alteração da homeostase articular.
Este estudo explorou o potencial anti-inflamatório da SNRNP70, motivada por seu papel como componente doespíciosomo, 35,36. Usando um modelo in vitro, os condrócitos foram tratados com IL-1β recombinante de rato para imitar o microambiente inflamatório nas articulações OA. Esses achados sugerem que SNRNP70 pode desempenhar um papel na modulação da inflamação em condrócitos estimulados por IL-1β. Os ensaios de FI forneceram mais suporte para as propriedades anti-inflamatórias do SNRNP70. Condrócitos tratados com IL-1β apresentaram aumento na expressão de proteínas inflamatórias, que foram atenuadas pela oe-SN. Essa modulação da expressão inflamatória de proteínas pela SNRNP70 destaca uma possível ligação com a cascata inflamatória associada à patogênese da OA.
Embora este estudo forneça evidências observacionais do potencial diagnóstico e terapêutico da SNRNP70 na OA, os mecanismos precisos subjacentes aos seus efeitos permanecem uma área deintriga 37. SNRNP70 é um componente crítico do esliceossomo, um complexo envolvido na emenda de RNA, um processo fundamental na regulação da expressão gênica. A emenda de RNA desempenha um papel fundamental na expressão gênica ao remover regiões não codificantes (introns) e unir regiões codificantes (exons) das moléculas de mRNA, formando finalmente o proteoma 38,39,40. É plausível que o envolvimento de SNRNP70 na combinação de RNA possa impactar a expressão de genes associados à patogênese da OA. Os alvos específicos de RNA e os eventos de splicing regulados pela SNRNP70 nos tecidos afetados pela OA ainda precisam ser esclarecidos. Compreender esses mecanismos pode oferecer insights valiosos sobre as bases moleculares da OA e alvos candidatos para investigação adicional. Além disso, pesquisas futuras devem explorar a interação da SNRNP70 com outras moléculas implicadas na patogênese da OA. Investigar sua diafonia cruzada com vias de sinalização envolvidas em inflamação, degradação da cartilagem e remodelação do tecido articular poderia fornecer uma compreensão mais abrangente de seus múltiplos efeitos.
Este estudo possui certas limitações que merecem consideração. Embora a meta-análise tenha incorporado um número substancial de conjuntos de dados, variações no desenho dos estudos, na demografia dos pacientes e no processamento de dados podem introduzir heterogeneidade. Além disso, os conjuntos de dados incluídos variaram em origem tecidística (por exemplo, cartilagem versus sinóvia) e em plataformas de processamento, o que pode explicar parcialmente a heterogeneidade observada entre estudos (I2 = 73,3%). Além disso, essa análise integrativa baseou-se em conjuntos de dados humanos disponíveis publicamente, enquanto os experimentos funcionais usaram condrócitos isolados de ratos neonatais. Essa discrepância entre espécies limita até que ponto os achados in vitro podem ser diretamente extrapolados para a fisiopatologia da artrosofia humana. Outra ressalva é a dependência de um modelo agudo de estimulação IL-1β, que captura apenas a resposta inflamatória inicial e não recapitula totalmente a natureza crônica, progressiva e multifatorial da OA em humanos. Além disso, os experimentos funcionais foram limitados a abordagens de ganho de função (SNRNP70 superexpressão); Experimentos de perda de função (por exemplo, SNRNP70 knockdown) não foram realizados, o que representa uma limitação do estudo atual. Por fim, embora as análises de correlação impliquem SNRNP70 na via de adesão focal, eventos de emenda FAK não foram examinados diretamente, e não foram fornecidas evidências experimentais de que a sinalização de adesão focal é alterada a jusante de SNRNP70 . Portanto, validação em coortes maiores de pacientes e modelos animais é necessária para fortalecer a robustez desses achados. Além disso, os experimentos in vitro utilizaram um modelo de cultura celular, que pode não recapitular totalmente o microambiente complexo in vivo das articulações OA. Estudos futuros devem explorar os efeitos da SNRNP70 em modelos animais da OA para avaliar seu potencial terapêutico em um contexto fisiologicamente mais relevante.
Divulgações
Os autores não têm conflitos de interesse.
Agradecimentos
Esta pesquisa foi financiada pela Guangxi Key Research, China (GuiKe AB22035014), pelo Fundo Especial da Equipe de Inovação Característica do Primeiro Hospital Afiliado da Universidade Médica de Guangxi (YYZS2022003) e pelo Projeto Conjunto Provincial de Inovação em Ciência e Tecnologia em Saúde de Hainan (WSJK2026QN087).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Anticorpo primário, diluição 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Anticorpo primário, diluição 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibióticos para cultura celular |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Anticorpo primário, diluição 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Determinação de concentração total de proteína |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Sistema de detecção de PCR em tempo real |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Sistema de imagem por quimiluminescência |
| Collagenase type II | Sigma-Aldrich | C6885 | Digestão de tecido cartilaginoso, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Contracor nuclear |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Meio de cultura celular basal |
| ECL reagent | Thermo Fisher Scientific | 34580 | Reagente de quimiluminescência aprimorada |
| Fetal bovine serum | Gibco | 10082147 | Concentração de 10% como suplemento de cultura |
| Fluorescent microscope | Olympus | BX53 | Imagem de imunofluorescência (magnificação de 20x) |
| GEO database | NCBI | N/A | Conjuntos de dados públicos de RNA-seq e microarray |
| GraphPad Prism 8.0 | GraphPad | N/A | Análise de curva ROC |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Anticorpo secundário |
| ImageJ software | NIH | N/A | Software de análise densitométrica |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Reagente de transfecção |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Medição de pureza e concentração de RNA (razão A260/280) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Plasmídeo de superexpressão |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiótico para cultura celular |
| Primer-BLAST | NCBI | N/A | Design de primers específicos de genes |
| Primers (synthesized) | Sangon Biotech | N/A | Síntese comercial de primers de PCR |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail de inibidores de protease e fosfatase |
| PVDF membrane | Millipore | IPVH00010 | Membrana de transferência de proteínas |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Síntese de cDNA de primeira fita |
| RIPA buffer | Beyotime | P0013B | Meio de lise celular com inibidores de protease e fosfatase |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Indução de resposta inflamatória em condrócitos |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | Análise de curva ROC |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Sistema automatizado de detecção de expressão de proteínas |
| Stata 14.0 | Stata | N/A | Meta-análise |
| Streptomycin | Thermo Fisher Scientific | Antibiótico para cultura celular | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | PCR quantitativa em tempo real |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Extração total de RNA de condrócitos |
| Trypsin-EDTA | Gibco | 25200072 | Descolamento celular, 0,25% trypsin-EDTA |
Referências
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).