Neste estudo, por meio da comparação dos resultados de detecção de 24 suspensões bacterianas cultivadas de Helicobacter pylori (H. pylori) obtidas pelos métodos de detecção de antígeno e PCR digital, analisamos suas correlações para investigar seu significado na caracterização de materiais de referência de H. pylori e na avaliação diagnóstica in vitro.
Artigo de investigação
Correlação entre o Título de Antígeno de H. pylori e a Quantificação por Reação em Cadeia da Polimerase Digital: Avaliação Analítica de Isolados Cultivados e Inativados
Neste artigo
Resumo
Resumo
A padronização do diagnóstico de Helicobacter pylori (H. pylori) permanece desafiadora diante da heterogeneidade dos ensaios de detecção disponíveis. A imunocromatografia detecta antígenos específicos de H. pylori, mas fornece apenas resultados qualitativos, suscetíveis à interferência de proteínas bacterianas solúveis não alvo por meio de ligação não específica ou inibição competitiva. Por outro lado, a PCR digital (dPCR) permite a quantificação precisa de cópias de DNA genômico, identificando tanto bactérias viáveis quanto não viáveis. Este estudo comparou as titulações finais obtidas por imunocromatografia (valores semi-quantitativos calculados como o inverso da maior diluição seriada em duas vezes detectável) com os números de cópias de ácido nucleico quantificados por dPCR. Vinte e quatro suspensões bacterianas de H. pylori, cultivadas por 72 h a 37 °C em ágar Brucella suplementado com 5% de sangue de carneiro desfibrinado, em condições microaerofílicas (85% N2, 10% CO2, 5% O2), foram submetidas a testes paralelos de antígeno e medição por dPCR. A correlação de Pearson e a regressão linear foram aplicadas para avaliação estatística. Observamos uma correlação positiva significativa entre o título de antígeno e o número de cópias genômicas (r = 0,536, n = 24, P = 0,007). No entanto, o baixo coeficiente de determinação (R2 = 0,287) demonstrou poder preditivo limitado, já que o título de antígeno explicou apenas 29% da variância medida por dPCR e não permite predição robusta em amostras individuais. Perfis discordantes com alta dPCR e baixo título podem originar-se de detritos bacterianos não viáveis ou de DNA genômico livre. Ensaios baseados em antígeno e em ácido nucleico quantificam analitos biologicamente relacionados, mas não intercambiáveis. Sugere-se a caracterização multiparamétrica combinando unidades formadoras de colônias, títulos de antígeno e números de cópias genômicas para o desenvolvimento de materiais de referência e validação de ensaios diagnósticos. Este trabalho destaca a necessidade de diretrizes consensuais específicas para H. pylori a fim de resolver discrepâncias diagnósticas.
Introdução
Helicobacter pylori (H. pylori) é um bacilo Gram-negativo microaerófilo que comumente coloniza o trato gastrointestinal humano, particularmente no antro gástrico. Ele é a principal causa de gastrite crônica, úlceras pépticas e câncer gástrico1,2. A transmissão de H. pylori entre humanos ocorre principalmente por vias oral-oral ou fecal-oral, sendo globalmente prevalente, com taxas de infecção que variam conforme a região. Em países desenvolvidos, a taxa de infecção é de aproximadamente 50%, enquanto em alguns países em desenvolvimento pode atingir até 80%3. Em 1994, a Organização Mundial da Saúde (OMS) classificou H. pylori como um carcinógeno do Grupo 1 para câncer gástrico4. Fatores-chave de virulência, como CagA (antígeno associado à citotoxina A) e VacA (citotoxina vacuolante A), induzem inflamação crônica e danos epiteliais, contribuindo para os mecanismos patogênicos que fundamentam sua classificação como carcinógeno do Grupo 1. Em 2018, o número de casos de câncer atribuídos à infecção por H. pylori atingiu 810.000, superando o número combinado de casos de câncer cervical e hepático causados pelo vírus do papiloma humano (HPV), vírus da hepatite B (HBV) e vírus da hepatite C (HCV)5. Essa estatística destaca o risco substancial de câncer associado ao H. pylori, que, se não tratado, pode levar ao câncer gástrico com uma probabilidade aproximada de 1%–3%, segundo algumas pesquisas. A alta prevalência global da infecção por H. pylori torna a precisão na quantificação — e não apenas na detecção — uma prioridade de saúde pública, pois a avaliação precisa da carga bacteriana pode orientar decisões terapêuticas e ajudar a evitar terapias de erradicação desnecessárias ou falhas. Portanto, a detecção e quantificação precisas de H. pylori são de grande importância para investigações epidemiológicas, seleção de planos de tratamento e avaliação da eficácia terapêutica.
Dado o considerável impacto do câncer atribuível ao H. pylori, a detecção e quantificação precisas são fundamentais para vigilância epidemiológica, seleção de tratamento e monitoramento terapêutico. Os métodos não invasivos atuais incluem o teste de antígeno nas fezes (SAT), o teste da respiração com ureia e ensaios moleculares. Embora a PCR digital (dPCR) ofereça alta precisão e quantificação absoluta, sua aplicação clínica é limitada pelo custo mais elevado, complexidade técnica e requisitos de equipamentos em comparação com o SAT. Essa disparidade é a razão pela qual a correlação entre os dois métodos precisa ser estudada, com o objetivo de aprimorar a padronização do SAT utilizando a dPCR como referência quantitativa.
A PCR digital (dPCR), uma tecnologia emergente de quantificação absoluta, pode detectar diretamente o número absoluto de cópias de genes-alvo sem depender de uma curva padrão. Na pesquisa com H. pylori, a dPCR tem sido utilizada para a quantificação bacteriana em amostras de mucosa gástrica, saliva e fezes6,7.
No desenvolvimento, avaliação da qualidade e regulação de reagentes diagnósticos in vitro, a preparação e calibração de materiais de referência são fundamentais para garantir a precisão, comparabilidade e rastreabilidade dos resultados. Para reagentes diagnósticos bacterianos in vitro (como reagentes de detecção de antígeno/anticorpo de H. pylori), os materiais de referência frequentemente precisam conter cepas ou amostras clínicas com concentrações bem definidas ou unidades de atividade. O método tradicional de quantificação bacteriana é Unidades Formadoras de Colônia (UFC/mL), que reflete diretamente o número de bactérias viáveis com capacidade proliferativa e é comumente usado para a atribuição de valor de substâncias-padrão bacterianas, avaliação da sensibilidade de reagentes e comparação metodológica8. Embora a contagem de UFC ainda seja amplamente utilizada, apresenta limitações evidentes em termos de tempo de detecção, consumo de materiais e custos trabalhistas9.
Com o uso mais amplo de tecnologias diagnósticas in vitro, métodos moleculares como a dPCR agora quantificam patógenos com maior precisão e sensibilidade. Simultaneamente, métodos imunológicos, como a titulação de antígenos, estão sendo cada vez mais aplicados na prática clínica. No entanto, em operações práticas, a maioria dos isolados clínicos coletados ou das amostras-padrão preparadas são amostras inativadas ou preservadas por longo período, o que torna difícil ou impossível realizar o cultivo bacteriano viável e a contagem de UFC10. Ao preparar os materiais de referência, para atender aos requisitos de biossegurança e garantir a estabilidade prolongada dos materiais, é necessário realizar a inativação. Assim, métodos quantitativos baseados em antígenos ou ácidos nucleicos tornam-se meios essenciais para a determinação de valores8,11.
Isso levanta uma questão prática quanto à correlação e equivalência dessas duas abordagens quantitativas distintas: ao utilizar a detecção de antígenos e a PCR digital para avaliar substâncias padrão, existe uma relação estável e quantificável entre os resultados desses dois métodos? Experimentos preliminares utilizando um conjunto limitado de amostras de H. pylori inativadas demonstraram uma correlação positiva consistente entre a intensidade do sinal dos ensaios imunocromatográficos e o número de cópias de DNA quantificado por meio da PCR digital. Formulamos a hipótese de que existe uma correlação positiva significativa e consistente entre o título de antígeno de H. pylori, medido por ensaios imunocromatográficos, e o número de cópias de DNA, quantificado pela PCR digital, em amostras bacterianas inativadas. Caso essa correlação exista, será possível converter resultados qualitativos baseados em antígenos em equivalentes quantitativos de ácidos nucleicos. Isso fornecerá uma base importante para a avaliação de desempenho de reagentes, o estabelecimento de padrões, a atribuição de materiais de referência e a interpretação de resultados de testes clínicos quando o cultivo tradicional não for viável.
Atualmente, a pesquisa sobre a relação entre os resultados de antígenos de H. pylori e o conteúdo de ácido nucleico é insuficiente, e há uma falta de dados sistemáticos para apoiar trabalhos de revisão, regulação e padronização. Para testar essa hipótese, este estudo realizou testes paralelos em 24 suspensões bacterianas cultivadas de H. pylori para analisar sistematicamente a correlação entre a titulação de antígeno detectada pelo método imunocromatográfico coloidal e o resultado quantitativo absoluto da dPCR. Com base em nossos achados, apresentamos opiniões de referência sobre a avaliação de desempenho de reagentes de detecção de H. pylori e a atribuição de valores de materiais padrão.
Protocolo
Todos os isolados de Helicobacter pylori incluídos neste estudo foram originalmente isolados de biópsias gástricas humanas e espécimes fecais pelo Quinto Hospital Afiliado da Universidade de Zhengzhou, que forneceu suspensões bacterianas totalmente processadas e anonimizadas para nossos experimentos in vitro. Todos os procedimentos originais (coleta de espécimes clínicos, isolamento bacteriano e criopreservação inicial) foram aprovados pelo Comitê de Ética do Quinto Hospital Afiliado da Universidade de Zhengzhou (Número de Aprovação Ética: KY2026080). O consentimento informado foi obtido de todos os participantes antes da coleta dos espécimes, e todos os procedimentos seguiram rigorosamente a Declaração de Helsinque e as diretrizes éticas nacionais relevantes para pesquisas biomédicas. Todas as informações identificáveis dos pacientes foram permanentemente removidas pelo hospital de origem antes da transferência das amostras, e nenhuma identidade individual do paciente pode ser deduzida a partir dos materiais experimentais ou dos resultados relatados neste estudo.
O presente estudo não exige aprovação ética independente adicional nem consentimento informado. Todos os experimentos envolvem apenas ensaios in vitro utilizando suspensões bacterianas anonimizadas, sem acesso a espécimes humanos originais, prontuários clínicos de pacientes ou informações pessoais privadas. De acordo com as regulamentações nacionais de ética em pesquisa biomédica, pesquisas in vitro não intervencionais que utilizam isolados microbianos totalmente anonimizados atendem aos critérios para isenção ética. A aprovação ética original emitida pelo Quinto Hospital Afiliado da Universidade de Zhengzhou já abrange todas as aplicações acadêmicas secundárias legítimas dessas cepas anonimizadas, o que foi oficialmente confirmado pelo comitê de ética institucional.
Todos H. pylori in vitro os experimentos foram realizados em laboratórios com certificação válida de biossegurança (Nível de Biossegurança 2, BSL-2, Registro de Biossegurança de Laboratório da Comissão de Saúde do Distrito Dongcheng de Pequim [2020] nº 059), seguindo os procedimentos operacionais padrão institucionais e atendendo a todos os requisitos de avaliação e autorização em biossegurança. A aprovação de biossegurança para este estudo abrange todos os procedimentos que envolvem o vírus inativado por calor H. pylori material, incluindo trabalho com material que não foi completamente inativado (ou seja, contendo organismos viáveis residuais conforme caracterizado pela PCR de viabilidade). A adesão rigorosa às práticas microbiológicas padrão, aos requisitos de equipamento de proteção individual (EPI) e aos procedimentos de descontaminação de resíduos foi mantida ao longo de todo o estudo. Todas as amostras bacterianas foram adequadamente inativadas antes da eliminação, conforme as diretrizes institucionais para o gerenciamento de resíduos biológicos. Os detalhes de todos os reagentes, equipamentos e softwares utilizados para análise estatística estão listados na Tabela de Materiais.
Estirpe e cultivo
ATENÇÃO: H. pylori é um patógeno humano do Grupo de Risco 2. Todas as manipulações de culturas viáveis (inoculação, incubação e preparação de suspensão) devem ser realizadas em uma cabine de segurança biológica certificada dentro de instalações BSL-2, utilizando jaleco de laboratório, luvas e proteção ocular.
Inativação por calor em 56 °C por 25 min reduz drasticamente, mas não elimina completamente, organismos viáveis (ver seção 1); as suspensões parcialmente inativadas devem continuar sendo manipuladas sob condições de BSL-2. Todos os resíduos biológ游戏副本os e materiais descartáveis contaminados devem ser autoclavados (121 °C, ≥30 min) ou desinfetado de acordo com os procedimentos institucionais de biossegurança antes da eliminação. O trabalho em BSL-2 descrito aqui foi autorizado no âmbito do mesmo registro de biossegurança (Registro de Biossegurança em Laboratório da Comissão de Saúde do Distrito de Dongcheng, Pequim [2020] n.º 059).
O Helicobacter pylori as cepas utilizadas neste estudo foram 24 suspensões bacterianas cultivadas, inicialmente obtidas a partir de biópsias gástricas e espécimes fecais pelo Quinto Hospital Afiliado da Universidade de Zhengzhou e posteriormente transferidas na forma de suspensão bacteriana para a coleção de cepas do In Vitro Departamento Diagnóstico de Doenças Infecciosas nos Institutos Nacionais de Controle de Medicamentos (NIDC), Pequim, China, e todo o trabalho experimental deste estudo foi realizado no NIDC (Pequim, China). Essas cepas foram inoculadas em placas de meio Brucella suplementado com 5% de sangue de carneiro desfibrinado e cultivadas em condições microaerófilas (85% N₂, 10% CO₂₂, 5% O₂₂) em 37 °C por 72 h. Esse tempo de cultivo corresponde à fase de crescimento estacionária, durante a qual a expressão de antígenos de cada linhagem é relativamente estável. As suspensões bacterianas foram então coletadas.
A inativação pelo calor foi realizada utilizando um banho-maria digital em 56 °C por 25 min. Este tratamento foi realizado para atender aos requisitos de biossegurança e garantir a estabilidade de longo prazo dos materiais de referência. A inativação pelo calor em 56 °C por 25 min reduz drasticamente a viabilidade bacteriana, mas não elimina completamente todos os organismos viáveis, conforme confirmado por análise subsequente de PCR de viabilidade, que mediu uma fração viável residual mediana de 4,6% (intervalo de 0,00%–33,00%) nas 24 suspensões bacterianas cultivadas (ver seção Resultados 6 e Discussão). A aprovação de biossegurança para este estudo abrange o trabalho com material que não está totalmente inativado (ver Declaração Ética e de Biossegurança). O impacto potencial da inativação térmica na detecção de antígenos é considerado mínimo, já que o tratamento térmico está abaixo do limiar de desnaturação da maioria das H. pylori antígenos de superfície; no entanto, pode afetar a integridade de alguns antígenos proteicos termolábeis. Para a quantificação de DNA, a inativação térmica não degrada o DNA genômico e pode, na verdade, melhorar a eficiência de extração ao romper as membranas celulares.
Detecção de antígeno
As 24 suspensões bacterianas coletadas foram diluídas 100 vezes com PBS para preparar amostras de detecção de antígeno. Uma diluição inicial de 100 vezes ajusta a concentração de antígeno à faixa de detecção linear dos kits comerciais e minimiza a interferência da matriz, garantindo assim resultados de detecção confiáveis e precisos. A diluição também conserva o volume da amostra. Essas amostras foram testadas utilizando oito kits registrados de detecção de antígeno de H. pylori (Tabela 1), incluindo o método de ouro coloidal, método de látex e método imunocromatográfico. Se o resultado fosse positivo, a amostra diluída era submetida a diluições seriadas (1:2, 1:4, 1:8, etc.) e testada até que o resultado fosse negativo. A maior razão de diluição que permanecia positiva era registrada e definida como a "razão final de diluição positiva do antígeno" (por exemplo, 1:64). As diluições seriadas em duas vezes foram preparadas em solução salina tamponada com fosfato (PBS, 0,01 M, pH 7,2–7,4). Após a aplicação da amostra, cada tira foi incubada à temperatura ambiente por 15–20 min antes da leitura; o resultado foi lido visualmente por um operador treinado em comparação com a linha de controle, e o ponto final foi registrado como a maior diluição que apresentava uma linha de teste visível. Como as tiras de ouro coloidal são lidas visualmente, o ponto de corte depende do operador.
Para cada amostra testada utilizando múltiplos kits comerciais de detecção de antígenos, a título final é definido como a mediana de todos os títulos individuais dos kits. Como os oito kits deste estudo foram desenvolvidos com antígenos-alvo e princípios de detecção heterogêneos, o Kappa de Cohen ou o CV% não foram utilizados para quantificar a concordância entre os kits, pois esses indicadores pressupõem a existência de um padrão de referência comum. Assim, a variabilidade observada entre os kits reflete a verdadeira heterogeneidade biológica e analítica, e não erros de medição. A mediana, como medida robusta de tendência central, pode efetivamente resistir a desvios específicos de cada kit. Nas 24 amostras, a dispersão intraamostra entre os títulos mais altos e mais baixos variou de 2 vezes a 16 vezes (mediana, 4 vezes): seis amostras diferiram em 2 vezes, quatorze em 4 vezes, três em 8 vezes e uma em 16 vezes entre os kits. Os títulos mínimos, medianos e máximos por kit para cada amostra estão listados na Tabela Suplementar 1.
Detecção quantitativa por PCR digital
As 24 suspensões bacterianas coletadas foram diluídas 500 vezes com PBS e então utilizadas como amostras para detecção quantitativa por dPCR. A quantificação absoluta dessas amostras diluídas foi realizada por quatro laboratórios de dPCR (Tabela 2). A dPCR foi realizada utilizando conjuntos específicos da plataforma de primers e sondas proprietários direcionados a sequências genômicas conservadas de H. pylori. Os kits de detecção por dPCR utilizados neste estudo são kits de reagentes universais aplicáveis a múltiplos patógenos e múltiplos alvos. Cada plataforma projetou e otimizou independentemente as sequências específicas dos primers/sondas e as regiões gênicas-alvo, que constituem sua propriedade intelectual principal. Essas sequências não foram divulgadas aos usuários finais. Apenas fomos informados de que o alvo específico de detecção para H. pylori é uma região genômica conservada que foi verificada como capaz de detecção específica. As sequências do gene 23S rRNA de 24 cepas de Helicobacter pylori foram submetidas ao NCBI GenBank sob o número de BioProject PRJNA1520048. Essas sequências foram submetidas para confirmação da identidade das cepas e não são o alvo de quantificação por dPCR. Como o desenho dos primers/sondas, a química de amplificação e a contagem de partição baseada na distribuição de Poisson são proprietários de cada plataforma, essas etapas são dependentes da plataforma e não podem ser reproduzidas sem acesso ao fabricante; em contraste, os procedimentos de diluição da amostra, replicação da extração e agregação de dados descritos acima são independentes da plataforma e totalmente especificados. Os números absolutos de cópias foram calculados utilizando o algoritmo de distribuição de Poisson implementado no software de análise proprietário do instrumento. Os parâmetros computacionais específicos e o código-fonte são proprietários do fabricante e não foram divulgados aos usuários finais. Por fim, o número absoluto de cópias (cópias/mL) do gene-alvo na solução original foi calculado com base na distribuição de Poisson e no fator de diluição.
Quatro laboratórios independentes de dPCR (Sniper, Jiangsu Bioperfectus Technologies Co., Ltd., Ustar Biotechnologies Ltd. e TargetingOne) participaram deste estudo, cada um utilizando kits de extração e reagentes de dPCR proprietários otimizados para sua plataforma instrumental, todos visando sequências genômicas conservadas de H. pylori. Cada plataforma recebeu a suspensão bacteriana não diluída e preparou as amostras de acordo com seu próprio protocolo: a Ustar utilizou a suspensão não diluída diretamente, enquanto Sniper, Jiangsu Bioperfectus Technologies Co., Ltd. e TargetingOne a diluíram 500 vezes em PBS antes da extração. Para cada isolado em cada plataforma, foram realizadas duas extrações independentes de ácidos nucleicos a partir da mesma suspensão bacteriana diluída 500 vezes, e cada extrato foi testado em triplicata, gerando seis medições por isolado por plataforma (com uma exceção na Ustar, em que uma extração gerou apenas duas réplicas válidas). Uma reação foi classificada como inválida e excluída se o número de gotículas positivas ficou abaixo do limite inferior de detecção do instrumento ou se o controle sem molde apresentou amplificação inespecífica; as reações inválidas foram repetidas uma vez, e falhas persistentes levaram à exclusão de toda a extração. Os dados brutos específicos de cada plataforma estão disponíveis na Tabela Suplementar 1.
A agregação de dados seguiu um procedimento em dois níveis: primeiro, todas as medições brutas válidas (cópias/µL) dentro de cada plataforma foram médias e convertidas para a concentração original da suspensão bacteriana não diluída (cópias/mL), utilizando fórmulas de conversão específicas para cada plataforma; segundo, as quatro concentrações derivadas das plataformas para cada isolado foram médias (média aritmética) para gerar o valor final único de número de cópias. Esta estrutura assegura contribuição igualitária de todas as plataformas, independentemente da variação entre réplicas dentro de cada plataforma, ao mesmo tempo que reduz os vieses sistemáticos inerentes a instrumentos ou sistemas de reagentes individuais.
Cada suspensão bacteriana cultivada foi quantificada em paralelo em quatro plataformas de PCR digital, e o coeficiente de variação (CV) dos números de cópias transformados em log₁₀ entre as plataformas foi calculado para cada isolado, a fim de avaliar a variabilidade interlaboratorial. Os resultados correspondentes são apresentados na seção Resultados.
Análise estatística
O H. pylori O título de antígeno foi definido como o recíproco do maior fator de diluição da amostra no qual foi observado um resultado positivo (por exemplo, uma diluição de 1:64 corresponde a um título de 64). Para cada isolado, os oito títulos de antígeno específicos ao kit foram agregados por sua mediana, e as quatro concentrações de dPCR específicas à plataforma foram agregadas por sua média aritmética, a fim de obter um único valor representativo por isolado para análise de correlação subsequente. Essa estratégia de redução de dados é metodologicamente justificada porque: (i) os oito kits de antígeno detectam o mesmo analito utilizando princípios de imunoensaio comparáveis, e a mediana fornece um estimador robusto, resistente a leituras esporádicas de valores discrepantes; (ii) cada uma das quatro plataformas de dPCR quantifica um alvo conservado H. pylori locus genômico, e a média aritmética das estimativas de concentração com distribuição log-normal fornece uma tendência central não tendenciosa; e (iii) essa agregação está alinhada ao objetivo principal do estudo — avaliar a concordância entre as modalidades de quantificação baseadas em título de antígeno e em DNA ao nível do isolado —, em vez de avaliar o desempenho analítico entre kits ou entre plataformas. A correlação entre o título de antígeno e a quantificação por dPCR (cópias/mL) foi inicialmente avaliada por meio de análise de correlação de Pearson. Ambas as variáveis apresentam distribuição aproximadamente normal após transformação logarítmica (assimetria: log10 dPCR = −0,66; log2 título do antígeno = −0,60; assimetria dos resíduos da regressão = −0,16), atendendo às premissas para a correlação de Pearson. O título do antígeno foi transformado em log2 para refletir a linearização de uma diluição seriada em duas vezes, enquanto os resultados da dPCR foram transformados em log10, o que também está em conformidade com o formato de relato do padrão de carga bacteriana. Posteriormente, para avaliar a associação linear, foram realizadas análises de correlação de Pearson e de regressão linear utilizando o título do antígeno transformado em log2 e os resultados da dPCR transformados em log10. Para todas as análises, um nível de significância (α) de 0,05 foi aplicado, com P < 0,05 considerado estatisticamente significativo. Todas as análises estatísticas foram realizadas utilizando a plataforma online de análise estatística SPSSPRO.
Resultados
Comparison of H. pylori antigen titer and dPCR absolute quantification results
Among the total of 24 cultured bacterial suspensions, the antigen titer ranged from 8 to 256, with a median of 32 (Table 1). The dPCR quantification results ranged from 2.67 × 10⁷ copies/mL to 2.04 × 10⁹ copies/mL, with a median of log₁₀ = 8.61 (≈4.09 × 10⁸ copies/mL) (Table 2). The relationship exhibited non-linear characteristics in the raw data, suggesting a power-law or exponential association, which justified the subsequent logarithmic transformations applied to both antigen titer and dPCR quantification values.
Linear association between log-transformed antigen titer and dPCR quantitative results
To test whether there is a significant correlation between the results of the two detection methods, we applied logarithmic transformation and performed Pearson correlation analysis, as both variables are approximately normally distributed after log transformation. As shown in Figure 1, after transformation, the antigen titer (log2-transformed) and the absolute quantitative result of dPCR (log10-transformed) exhibited a significant moderate positive linear correlation (r = 0.536, n = 24, P = 0.007).
Quantitative modeling of the relationship between antigen titer and dPCR copy number
To quantify the relationship between the two detection methods and assess the potential for mutual prediction, we applied linear regression analysis to the log-transformed data, so as to utilize the regression model to predict bacterial load through antigen titer in the future. The analysis reveals a linear relationship between log2 (antigen titer) and log10 (dPCR), yielding the equation: log10(dPCR) = 0.1588 × log2(titer) + 7.7988 (R2 = 0.287). The regression coefficients (with standard errors and 95% confidence intervals) were: slope 0.1588 ± 0.053 (95% CI 0.048–0.270) and intercept 7.7988 ± 0.292 (95% CI 7.193–8.404); the residual standard error was 0.318 log10 units, and the overall regression was significant (F(1,22) = 8.84, P = 0.007). This indicates that for every doubling of the antigen titer, the dPCR copy number only increases by 1.441 times (100.1588). However, for a given antigen titer, the 95% prediction interval of the dPCR results can span nearly two orders of magnitude (for example, at a titer of 1:32, the prediction interval is approximately 8.3 × 10⁷ to 1.85 × 10⁹copies/mL). This indicates that in practical applications, the antigen titer alone cannot accurately predict the copy number of nucleic acid in a single sample, but using this model may provide a coarse estimation of the order of magnitude for group-level comparisons, though it is limited for individual sample prediction due to the moderate explanatory power (R2 = 0.287).
Inter-platform variability of dPCR quantification and sensitivity analysis of the correlation
Interlaboratory variability was assessed on log10-transformed concentrations to account for the log-normal distribution of microbial quantification data. The CV% across the four platform-derived log10 concentrations ranged from 0.9% to 8.3% (median 1.8%, mean 2.5%) across 24 isolates. One outlier (Hp06, CV = 8.3%) showed a >30-fold discrepancy between Sniper (5.93 × 10⁸ copies/mL) and TargetingOne (1.50 × 10⁷ copies/mL); excluding this isolate, CVs ranged from 0.9% to 6.4%. To ensure that this outlier did not drive the observed antigen–dPCR correlation, a sensitivity analysis was performed excluding Hp06, which yielded r = 0.479, R2 = 0.230, and P = 0.021 (n = 23) — comparable to the primary analysis including all 24 isolates — confirming that the headline correlation does not depend on this isolate. This dispersion reflects systematic differences among platforms in extraction efficiency, reagent sensitivity, and instrument calibration rather than random measurement error, which supports cross-platform averaging to reduce platform-specific bias.
Defining and classifying results using dual-method thresholds
Based on the analyses above and on exploratory, dataset-specific criteria, this study set the median titer of antigen detection at 1:32 as the threshold for high antigen detection, due to the non-normal distribution of antigen titer data, and selected the actual median log₁₀(dPCR) = 8.61 (≈4.09 × 10⁸ copies/mL) as the threshold for high nucleic acid content. These thresholds are exploratory, dataset-specific cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. Consequently, any application of these cutoffs to other sample collections or analytical contexts would require re-derivation from the corresponding data rather than direct transfer.
Using the exploratory thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), the four-quadrant classification of the 24 cultured bacterial suspensions (Figure 2, Table 3) is as follows: 9 samples (Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25) fall into the high antigen–high nucleic acid category (37.5%); 3 samples (Hp09, Hp26, Hp27) are classified as low antigen–high nucleic acid (12.5%); 8 samples (Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17) exhibit high antigen–low nucleic acid (33.3%); and 4 samples (Hp06, Hp07, Hp12, Hp20) belong to the low antigen–low nucleic acid category (16.7%). Because the 24 isolates were divided into six titer groups with an average of only 4 samples per group, formal inter-group comparison (e.g., Kruskal-Wallis testing) would lack sufficient statistical power; therefore, only descriptive summaries of dPCR quantitative results across titer groups are reported.
Residual viable fraction after heat inactivation (viability PCR)
To quantify residual viable bacteria following heat inactivation, a viability PCR reagent system was used for all 24 isolates. Briefly, each heat-inactivated suspension (200 µL) was incubated with the membrane-impermeable Viability PCR Reagent (10 µM final concentration) at 37 °C for 75 min, with a parallel reagent-omitted control (−VR) processed identically. The reagent was then chemically inactivated by adding Viability PCR Neutralization Buffer (20 µL, 10×) and incubating at room temperature for 15 min. Genomic DNA was extracted from both the +VR and −VR aliquots, and dPCR was performed on each extract; the viable fraction was calculated as the ratio of +VR to −VR copy numbers × 100%. The median viable fraction was 4.6% (range 0.00%–33.00%; full per-isolate results in Supplementary Table 2). The viable percentage did not correlate significantly with antigen titer (r = 0.03, P = 0.90) or with dPCR copy number (r = 0.37, P = 0.08).
DATA AVAILABILITY:
The 23S rRNA gene sequences of 24 Helicobacter pylori strains have been deposited in NCBI GenBank under BioProject accession PRJNA1520048. These sequences were used solely for strain identity confirmation and do not represent the dPCR quantification target, which is a manufacturer-proprietary conserved genomic region, as described in Protocol.
The raw kit-specific antigen titers from eight commercial colloidal gold immunochromatographic kits and the platform-specific dPCR quantitative values from four digital PCR instruments cannot be deposited in a public repository because of commercial sensitivity, manufacturer confidentiality agreements, and regulatory restrictions associated with CE-marked/National Medical Products Administration-approved in vitro diagnostic products.
Additional restricted data may be made available confidentially when necessary, subject to the applicable confidentiality and regulatory restrictions.
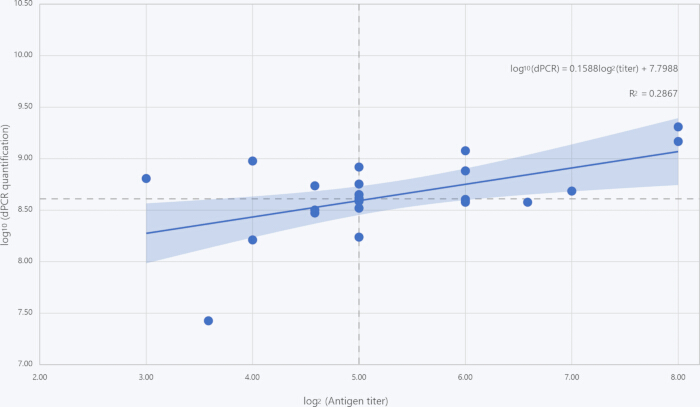
Figure 1: Correlation between Helicobacter pylori antigen titer and digital polymerase chain reaction (dPCR) quantification. A scatter plot with a regression line is presented to illustrate the relationship between antigen titer and DNA copy numbers in 24 cultured bacterial suspensions (n = 24). Antigen titers were ascertained via a colloidal gold immunochromatographic assay with visual reading. Serial dilutions of each sample were examined, and the titer is expressed as the highest dilution factor that yields a positive result (presented on the x-axis as log2-transformed, dimensionless values). DNA copy numbers were quantified through dPCR and are presented on the y-axis as log10-transformed concentrations (log10 copies/mL). Each dot represents an individual bacterial suspension sample. The blue solid line represents the linear regression fit. The shaded band around the regression line represents the 95% confidence interval of the fitted mean response. The dashed vertical and horizontal lines indicate the exploratory classification thresholds (log₂ titer = 5, i.e., 1:32; log₁₀ dPCR = 8.61, i.e., 4.09 × 10⁸ copies/mL) used in Figure 2 and Table 3. Correlation was evaluated using the Pearson correlation coefficient, resulting in r = 0.536, P = 0.007, R2 = 0.287, which indicates a statistically significant positive correlation between the two methods. Please click here to view a larger version of this figure.
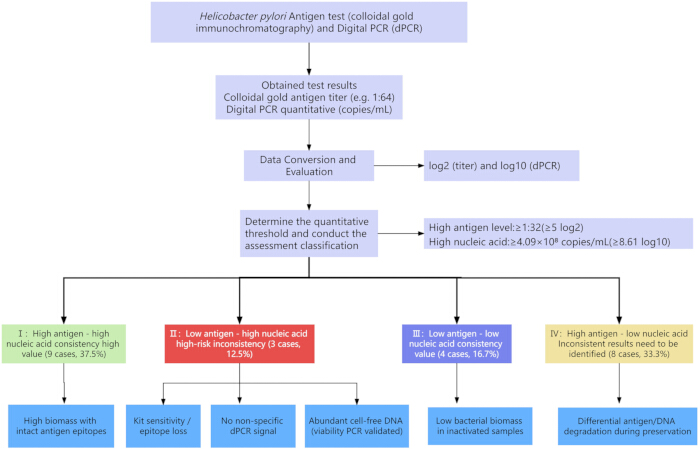
Figure 2: Analytical classification framework for H. pylori testing combining antigen test results with dPCR quantification. This figure depicts the four-quadrant classification of 24 cultured bacterial suspensions (n = 24) based on the concordance between immunochromatographic antigen titer and dPCR quantitative results. Using exploratory, dataset-specific thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), samples are classified into: high antigen–high nucleic acid (n = 9, 37.5%), high antigen–low nucleic acid (n = 8, 33.3%), low antigen–high nucleic acid (n = 3, 12.5%), and low antigen–low nucleic acid (n = 4, 16.7%). These thresholds are exploratory cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. The classification framework illustrates the agreement and discordance between immunological and molecular detection methods. Categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation. This framework is intended for analytical comparison purposes and does not constitute clinical diagnostic or treatment recommendations. Please click here to view a larger version of this figure.
| No. | Detection reagent | Manufacturer |
| 1 | Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd |
| 2 | Gastric Helicobacter pylori (HP) Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron BIOTECH Co., Ltd |
| 3 | Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd |
| 4 | Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetecton & Biocontrol Ltd |
| 5 | Helicobacter pylori antigen detection kit (colloidal gold method) | JIANGSU COWIN BIOTECH CO., LTD |
| 6 | Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | Helicobacter pylori (HP) antigen detection reagent (immunochromatographic method) | GUANGZHOU WONDFO BIOTECH CO., LTD |
| 8 | Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd |
Table 1: List of Helicobacter pylori Antigen Detection Reagents and Their Manufacturers. The table enumerates eight commercially accessible immunochromatographic assays for the detection of H. pylori antigen, which were assessed in this study. For each product, the No. (as supplied by the manufacturer), the commercial designation of the detection reagent, and the manufacturer's name are presented. These kits were chosen on the basis of their extensive utilization in clinical diagnostics and point-of-care testing. All information was retrieved from the manufacturers' product inserts and official websites (accessed in March 2026). The inclusion of these reagents does not signify an endorsement; they are representative of the diversity of available tests.
| No. | Instrument model | Digital PCR Platforms |
| 1 | DQ24 | Sniper |
| 2 | Bio Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 Digital PCR System | TargetingOne |
Table 2: List of Digital PCR (dPCR) Platforms and Instrument Models. This table enumerates four laboratory platforms equipped with dPCR systems, along with the corresponding instrument models employed for testing. These platforms were chosen in consideration of their technological diversity and representativeness of the current implementation of dPCR. All information is provided by each respective platform. The inclusion of these platforms does not signify an endorsement; they simply represent the scope of existing dPCR systems.
| Type | Number of cases | Proportion | Sample number |
| High antigen - High nucleic acid | 9 | 37.5% | Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25 |
| Low antigen - High nucleic acid | 3 | 12.5% | Hp09, Hp26, Hp27 |
| Low antigen - Low nucleic acid | 4 | 16.7% | Hp06, Hp07, Hp12, Hp20 |
| High antigen - Low nucleic acid | 8 | 33.3% | Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17 |
Table 3: Classification and Proportion of Antigen Test and Nucleic Acid Test Results in This Study. This table classifies 24 cultured bacterial suspensions according to the concordance between antigen titer (determined by immunochromatographic assay, expressed as the highest dilution factor resulting in a positive result) and absolute quantitative digital polymerase chain reaction (dPCR) results (expressed as log₁₀ copies/mL). Using an antigen titer cutoff of 1:32 (high ≥ 1:32, low ≤ 1:16) and a dPCR quantification cutoff of 4.09 × 10⁸ copies/mL (log₁₀ = 8.61) as exploratory, dataset-specific thresholds, isolates were classified into four subgroups: High Antigen-High Nucleic Acid, Low Antigen–High Nucleic Acid, High Antigen–Low Nucleic Acid, and Low Antigen-Low Nucleic Acid. Among the 24 samples, 9 were categorized as High Antigen–High Nucleic Acid (37.5%; Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25), 3 as Low Antigen–High Nucleic Acid (12.5%; Hp09, Hp26, Hp27), 8 as High Antigen–Low Nucleic Acid (33.3%; Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17), and 4 as Low Antigen–Low Nucleic Acid (16.7%; Hp06, Hp07, Hp12, Hp20). For each category, the table shows the number of cases (n), the proportion relative to the total sample size (%), and the sample numbers within each category. This classification illustrates the agreement and discordance between immunological and molecular detection methods; categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation, offering insights for the interpretation of analytical test results.
Supplementary Table 1: Aggregated dataset of antigen detection and dPCR quantification for the 24 Helicobacter pylori isolates. Sheet 1 (Antigen Detection): per-kit endpoint titers from the eight commercial colloidal gold immunochromatographic kits for each isolate, with the per-sample minimum, median, and maximum titer and within-sample fold range. Sheet 2 (Digital PCR Quantitative Detection): platform-specific dPCR concentrations (copies/mL) for each isolate, with inter-platform summary statistics (median, minimum, maximum, and CV% of log₁₀-transformed concentrations). Sheet 3 (Correlation and Regression Analysis): strain-level log₂-transformed antigen titers and log₁₀-transformed dPCR concentrations, Pearson correlation and linear regression results (r, R2, regression equation), sensitivity analysis excluding the outlier Hp06, and detailed regression statistics (standard errors, 95% confidence intervals, residual standard error, F-statistic, and P-value). Kit-specific and platform-specific identifiers are anonymized for commercial confidentiality; the dataset contains all values required to reproduce Figures 1–2 and Table 3.Please click here to download this file.
Supplementary Table 2: Viability PCR results for the 24 Helicobacter pylori isolates. Per-isolate dPCR copy numbers of the viability reagent–treated (+VR) and reagent-omitted (−VR) aliquots after heat inactivation at 56 °C for 25 min, with the calculated viable fraction (%) and equivalent ΔCq for each isolate. The median viable fraction across all isolates was 4.6% (range 0.00%–33.00%).Please click here to download this file.
Discussão
Neste estudo com 24 isolados cultivados de H. pylori, o título de antígeno por imunocromatografia e o número genômico de cópias por dPCR apresentaram uma correlação positiva moderada, porém significativa (r = 0,536, P = 0,007); contudo, o título de antígeno explicou apenas 29% da variância no número de cópias por dPCR (R2 = 0,287), indicando que as duas medidas estão relacionadas, mas não são intercambiáveis. A principal limitação deste estudo é o tamanho reduzido da amostra (n = 24), o que limita o poder estatístico e justifica o caráter exploratório dos limiares de classificação utilizados a seguir.
Este estudo analisou quantitativamente a titulação de antígenos em culturas de H. pylori e os números de cópias de ácido nucleico detectados por dPCR, revelando uma correlação moderada, porém significativa, entre os resultados de detecção desses dois métodos (r = 0,536, P = 0,007). Embora uma correlação significativa entre os dois métodos seja observada no nível populacional, discrepâncias no nível individual são frequentemente encontradas na prática clínica. Isso ocorre porque diferentes alvos de detecção refletem características biológicas distintas dos patógenos. Especificamente, os testes de antígeno detectam proteínas que podem persistir após a eliminação bacteriana, enquanto os testes de ácido nucleico detectam DNA que pode permanecer em níveis baixos mesmo após a eliminação de bactérias viáveis. Essa discordância já foi amplamente documentada em diversas doenças infecciosas. Por exemplo, no diagnóstico clínico da infecção por Clostridioides difficile, alguns portadores apresentam resultados positivos na detecção do gene da toxina, mas resultados negativos na detecção do antígeno proteico da toxina, o que leva ao diagnóstico incorreto como pessoa infectada e provoca tratamento excessivo e o surgimento de resistência a medicamentos. Por isso, a Sociedade de Doenças Infecciosas da América (IDSA)12 distinguiu claramente o significado clínico da "detecção da toxina" e da "detecção do gene da toxina" para Clostridioides difficile nas diretrizes. Não é suficiente diagnosticar a infecção apenas com testes de ácido nucleico, sendo recomendado adotar métodos capazes de detectar diretamente a proteína da toxina ativa. Além disso, na pneumonia adquirida na comunidade após tratamento com antibióticos, a carga de DNA bacteriano no escarro do paciente diminui rapidamente, enquanto o antígeno urinário permanece positivo após a recuperação e persiste por várias semanas a vários meses13. Fenômenos semelhantes também são observados no diagnóstico e tratamento da infecção por H. pylori. Em 2022, os Laboratórios da Mayo Clinic avaliaram que, em 223 pacientes em acompanhamento após tratamento com antibióticos, a PCR foi relativamente sensível na detecção de DNA residual em baixo nível em amostras fecais. Alguns pacientes, embora clinicamente recuperados e com antígeno negativo, ainda apresentaram resultados positivos na PCR por várias semanas14. Todos esses achados confirmam ainda mais as diferenças biológicas entre diferentes alvos de detecção.
Neste estudo, a identificação de uma correlação quantitativa e equivalência entre o título antigênico de H. pylori detectado pelo método imunocromatográfico e os valores de quantificação por dPCR oferece orientação prática para a caracterização de materiais de referência de H. pylori e para a avaliação de reagentes diagnósticos in vitro. 1) Promover a atualização do modelo de avaliação de desempenho de produtos: atualmente, a avaliação clínica de reagentes para detecção de antígeno de H. pylori adota comparação cega e sincrônica com "padrões-ouro" clínicos, como histologia, cultura ou teste da ureia marcada15. Esta pesquisa propõe que os órgãos reguladores exijam que as empresas forneçam dados de correlação pertinentes entre seus resultados de teste e métodos quantitativos de ácido nucleico nos materiais de submissão durante o processo de avaliação, definindo claramente o desempenho dos seus produtos na "faixa de resultados incongruentes", a fim de refletir de forma mais realista a capacidade de detecção do produto em cenários clínicos complexos e definir de maneira mais abrangente o LOD do reagente. 2) Isso fornece uma nova abordagem para a atribuição de materiais de referência bacterianos: materiais de referência para controle de qualidade e calibração podem ser transformados de um único valor de "UFC" para "valores característicos multidimensionais"8 que incluem título antigênico e números de cópias de ácido nucleico. O modelo de regressão estabelecido neste estudo pode fornecer uma estimativa aproximada da ordem de grandeza da relação entre esses dois valores, oferecendo uma base quantitativa para o uso de materiais de referência e para comparações interlaboratoriais.
Recomendamos que os fabricantes incluam não apenas o limite de detecção (LOD) em unidades analíticas (por exemplo, UFC/mL ou título de antígeno), mas também seu equivalente em cópias genômicas — determinado por PCR digital (dPCR) — para que os resultados possam ser comparados e alinhados entre laboratórios e plataformas. A apresentação de resultados em unidades duplas é compatível com os requisitos de rastreabilidade metrológica da ISO 175118 e com a estrutura de avaliação da capacidade de detecção do CLSI EP17-A216.
As possíveis razões para a ocorrência de amostras com "baixo antígeno–alto ácido nucleico" são as seguintes: 1) Variação genética da cepa: Se o aminoácido no epítopo antigênico for substituído, ou se a proteína secretora for bloqueada durante o transporte e secreção, pode ocorrer um fenômeno de "escape" na detecção antigênica17. 2) A dPCR foi projetada para direcionar e amplificar sequências genéticas conservadas. O gene específico alvo da dPCR neste estudo não foi divulgado na documentação do fabricante. No entanto, kits comerciais de detecção de antígenos podem direcionar diferentes antígenos de H. pylori (por exemplo, VacA, urease, proteínas flagelares ou antígenos de células inteiras), e qualquer discrepância entre o gene-alvo da dPCR e o antígeno reconhecido por um determinado kit pode se manifestar como discordância quantitativa nos quatro quadrantes do gráfico de dispersão — alta dPCR/baixo antígeno, baixa dPCR/alto antígeno, concordância alta-alta ou concordância baixa-baixa — em vez de discrepâncias binárias positivo/negativo18. 3) Limitações do método de detecção: A tecnologia de detecção de antígenos é limitada por concentrações extremamente baixas ou extremamente altas de antígenos, o que enfraquece o sinal devido à afinidade insuficiente com os anticorpos ou à sobressaturação, além de ser afetada pela matriz da amostra. 4) Assimetria no desempenho do limite de detecção: O limite inferior de detecção (LOD) da dPCR pode alcançar 10–100 cópias/mL, enquanto o limite de detecção do método imunocromatográfico coloidal para urease é aproximadamente 104–105 UFC/mL. Quando a quantidade bacteriana está no valor crítico, a ocorrência do fenômeno "baixo antígeno–alto ácido nucleico" é mais provável. 5) A influência do estado de infecção nos resultados clínicos é significativa, especialmente na distinção entre infecções bacterianas e virais. No processo de infecção, o número de cópias gênicas e o nível de expressão do antígeno não apresentam uma relação correspondente constante. Após tratamento bem-sucedido, os níveis de ácido nucleico podem diminuir rapidamente, enquanto a eliminação do antígeno pode ser retardada por algum tempo19.
As suspensões bacterianas utilizadas neste estudo foram obtidas tanto de espécimes de biópsia gástrica quanto de amostras fecais, representando ambientes matriciais distintos com diferentes perfis de interferência. Os isolados derivados de biópsia gástrica são amplamente livres de inibidores da PCR associados às fezes, mas podem estar sujeitos à exposição residual à pepsina durante o processamento das amostras. Em contraste, as amostras fecais contêm inibidores da PCR (por exemplo, sais biliares, polissacarídeos complexos, produtos de degradação da hemoglobina) que podem reduzir a eficiência de amplificação e levar à subestimação da quantificação por dPCR, bem como proteases intestinais que podem degradar antígenos-alvo mesmo quando o DNA bacteriano permanece intacto. Esses efeitos específicos da matriz atuam independentemente dos mecanismos de desalinhamento na região-alvo descritos acima e indicam que os protocolos de preparação e a validação do método devem ser adaptados ao tipo de espécime ao interpretar discrepâncias quantitativas entre espécimes clínicos.
Para quantificar experimentalmente a proporção de bactérias viáveis em relação às não viáveis após inativação térmica, foi realizada PCR de viabilidade utilizando um sistema de reagentes para PCR de viabilidade em todos os 24 isolados cultivados. Esse reagente atua de maneira análoga ao monoazida de propídio (PMA): ele penetra seletivamente em células com membranas comprometidas e modifica covalentemente seu DNA genômico, bloqueando a amplificação subsequente. A porcentagem de bactérias viáveis foi calculada pela fórmula: Porcentagem viável = (cópias de DNA/µL tratadas com reagente de viabilidade (VR)) / (cópias de DNA/µL sem VR) × 100. Em todos os isolados, a fração viável mediana após inativação térmica foi de 4,6% (intervalo: 0,00%–33,0%), confirmando que nossa inativação térmica a 56 °C durante 25 minutos reduz drasticamente a viabilidade bacteriana, mas não elimina completamente organismos viáveis. Esses dados de viabilidade apoiam fortemente nossa interpretação de que perfis discordantes de alta dPCR e baixo título de antígeno originam-se principalmente de DNA livre de células e de DNA presente em partículas bacterianas não viáveis, e não de H. pylori intactos e viáveis. Os resultados completos da quantificação de viabilidade para as 24 cepas estão resumidos na Tabela Suplementar 2.
Neste estudo, a classificação em quatro quadrantes (baseada em limiares exploratórios específicos do conjunto de dados) revelou que 8 amostras exibiram alto antígeno–baixo ácido nucleico e 4 amostras pertenceram à categoria baixo antígeno–baixo ácido nucleico, além de 9 categorias concordantes alto–alto e 3 baixo–alto. A presença de amostras com alto antígeno–baixo ácido nucleico (n = 8) sugere que a expressão de antígenos e o conteúdo de ácido nucleico nem sempre correspondem, mesmo em culturas puras. Os 24 isolados foram coletados na fase estacionária de crescimento (cultivo de 72 h; ver seção 1 do Protocolo). Na fase estacionária, a replicação do DNA praticamente cessou, enquanto antígenos estruturais e metabólicos persistem ou até continuam a se acumular; esse desacoplamento relacionado à fase de crescimento oferece uma base biológica plausível para a assimetria entre a classe abundante de alto antígeno–baixo ácido nucleico (n = 8) e a classe pequena de baixo antígeno–alto ácido nucleico (n = 3), embora não exclua por si só outros mecanismos, como diferenças entre cepas na expressão de antígenos ou lise parcial durante a inativação térmica. A existência de amostras com baixo antígeno–alto ácido nucleico (n = 3) confirma que uma baixa titulação de antígeno não corresponde inevitavelmente a uma baixa carga de ácido nucleico, demonstrando que o teste de ácido nucleico complementa o teste de antígeno em cenários específicos. Esses limiares são exploratórios e específicos do conjunto de dados, e não representam critérios clínicos diagnósticos validados.
Este estudo tem como limitação o pequeno tamanho da amostra (n = 24), o que torna o poder estatístico insuficiente para sustentar uma análise de subgrupos robusta. A amostra foi dividida em seis grupos de título, com uma média de apenas 4 amostras em cada grupo, de modo que comparações formais entre grupos não possuem poder estatístico suficiente para detectar diferenças significativas. Por isso, o teste de Kruskal-Wallis não foi aplicado, a fim de evitar a apresentação de resultados estatísticos inferenciais com poder insuficiente. Além disso, todas as amostras eram isolados cultivados e não abrangeram os efeitos matriciais mais complexos encontrados em amostras clínicas, como mucosa gástrica, fezes ou saliva.
Divulgações
Os autores não têm nada a declarar.
Nenhuma ferramenta de inteligência artificial foi utilizada na redação, edição, análise estatística, desenvolvimento de código ou preparação de figuras deste manuscrito.
CONTRIBUIÇÃO DOS AUTORES:
Todos os autores confirmaram suas respectivas contribuições para este trabalho. Os papéis individuais dos autores estão listados abaixo. Todos os autores leram e aprovaram o manuscrito final submetido e assumem total responsabilidade pela precisão e integridade dos dados de pesquisa. Wenwen Sun: Investigação, Curadoria de dados, Análise formal, Metodologia, Redação – rascunho inicial, Aquisição de financiamento; Xiaona Han: Investigação, Metodologia; Jin Zhang: Investigação, Metodologia; Xinxin Duan: Investigação, Metodologia; Tingting Li: Conceitualização, Supervisão; Manyu Li: Conceitualização, Supervisão, Redação – revisão e edição; Haiwei Zhou: Conceitualização, Supervisão, Redação – revisão e edição.
Agradecimentos
Este estudo é financiado pela Fundação de Pesquisa para o Desenvolvimento Juvenil dos Institutos Nacionais de Controle de Drogas (NIDC) (número do convênio: 2025C5).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 2X dPCR Probe Master Mix Plus (Rox) | Sniper | RT021096A | Reagente de Detecção Quantitativa de PCR Digital |
| Kit de Extração de DNA Genômico Bacteriano | Tiangen Biochemical Technology (Pequim) Co., Ltd. | Y2213/DP302-02 | Extração de ácido nucleico bacteriano |
| Sistema Bio-Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | Detecção Quantitativa de PCR Digital |
| Máquina Integrada de PCR Digital | Sniper | DQ24 | Detecção Quantitativa de PCR Digital |
| Máquina Integrada de PCR Digital | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | Detecção Quantitativa de PCR Digital |
| Banho-Maria Digital | Yiheng Scientific Instrument Co., Ltd. | DK-8D | Inativação térmica de suspensões bacterianas a 56 °C |
| Primer direto | Sangon Biotechnology (Xangai) Co., Ltd. | / | Amplificação de ácido nucleico por PCR Digital |
| Kit de Detecção de Antígeno de Helicobacter pylori Gástrico (Método de Ouro Coloidal) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | Detecção de antígeno de H. pylori |
| Meio de Ágar para Helicobacter pylori (sólido) | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | Meio de cultura para H. pylori |
| Kit de detecção de antígeno de Helicobacter pylori (método de ouro coloidal) | Bioneovan Co., Ltd. | 202403001 | Detecção de antígeno de H. pylori |
| Kit de detecção de antígeno de Helicobacter pylori (método de ouro coloidal) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | Detecção de antígeno de H. pylori |
| Kit de detecção de antígeno de Helicobacter pylori (método de ouro coloidal) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | Detecção de antígeno de H. pylori |
| Kit de detecção de antígeno de Helicobacter pylori (método de ouro coloidal) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | Detecção de antígeno de H. pylori |
| Kit de detecção de antígeno de Helicobacter pylori (método de ouro coloidal) | Beijing Core Technology Co., Ltd. | 2415810 | Detecção de antígeno de H. pylori |
| Reagente de detecção de antígeno de Helicobacter pylori (método imunocromatográfico) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | Detecção de antígeno de H. pylori |
| Reagente de detecção de antígeno de Helicobacter pylori (método de látex) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | Detecção de antígeno de H. pylori |
| Incubadora Heracell com Três Gases | Thermo Fisher Scientific | N/A | Cultura microaerófila; composição gasosa: 5% O2, 10% CO2, 85% N2 |
| Tubos de Microcentrífuga (1,5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | Diluição de amostras e extração de ácido nucleico |
| Reagentes de extração ou purificação de ácido nucleico | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | Extração de ácido nucleico bacteriano |
| Reagente de extração de ácido nucleico | TargetingOne | Pathogens TNA-B1 (11019) | Extração de ácido nucleico bacteriano |
| PBS, 1X (pH 7,2-7,4, 0,01 M, cultura celular) | Solarbio Science & Technology Co., Ltd. | P1020 | Diluição de amostra |
| Placas de Petri (90 mm) | Beekman Biotech | N/A | Placas de cultura estéreis para isolamento e subcultura bacteriana |
| Pipetas Descartáveis (10 µL / 200 µL / 1000 µL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | Pontas filtradas estéreis para diluição de amostras e dispensação de reagentes |
| Probe | Sangon Biotechnology (Xangai) Co., Ltd. | / | Amplificação de ácido nucleico por PCR Digital |
| Primer reverso | Sangon Biotechnology (Xangai) Co., Ltd. | / | Amplificação de ácido nucleico por PCR Digital |
| Plataforma Online de Análise Estatística SPSSPRO | SPSSPRO | Baseada na web (https://www.spsspro.com/; acesso em agosto de 2026) | Análise estatística: correlação de Pearson, regressão linear |
| Sangue de Ovelha Defibrinado e Esterilizado | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | Suplemento para placas de cultura de H. pylori |
| Sistema TD-1 de PCR Digital | TargetingOne | TD-1 | Detecção Quantitativa de PCR Digital |
| Sistema de Reagentes de PCR de Viabilidade | Promega | A8881 | Avaliação por PCR de viabilidade de H. pylori inativado pelo calor |
| Misturador Vortex | Scientific Industries Inc. | SI-0256 | Homogeneização de suspensões bacterianas |
Referências
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.