Este artigo descreve protocolos detalhados para a manutenção de uma colônia laboratorial de Carausius morosus, incluindo procedimentos essenciais para manejo animal, manipulação de ovos, cuidados com ninfas recém-eclodidas, métricas representativas de desempenho e uma visão geral da longevidade e características biológicas da espécie.
Artigo de método
Um Protocolo Padronizado para a Criação de Carausius morosus (Phasmatodea, Insecta) em Ambientes Laboratoriais
Neste artigo
Resumo
Resumo
Carausius morosus, o inseto-pau indiano, é um inseto delgado e semelhante a um graveto, endêmico da Índia. Embora amplamente introduzido por meio de cativeiro ao redor do mundo e comumente utilizado em laboratórios ou mantido como animal de estimação doméstico, faltam protocolos padronizados de manejo animal em laboratório. Aqui relatamos condições detalhadas de cultivo em laboratório para C. morosus. Mantemos os estoques em 23 °C, 70% de umidade relativa e fotoperíodo luz-escuridão de 12:12 h. Este cultivo tem sido mantido com sucesso sob essas condições por mais de dois anos, com protocolos padronizados para alimentação e configuração das gaiolas. Também relatamos métodos para o cuidado de ovos e filhotes para apoiar experimentos contínuos com C. morosus. Sob nossas condições de cultivo, 105 lotes monitorados de ovos postos no mesmo período de 24 horas eclodiram dentro de um intervalo consistente de 12 dias, e 13,9% das ninfas recém-eclodidas atingiram com sucesso a fase adulta. Esses métodos padronizados melhoram a reprodutibilidade e a acessibilidade, permitindo o uso mais amplo de C. morosus como um sistema modelo em laboratório para uma ampla gama de estudos, incluindo análises de desenvolvimento, comportamento e fisiologia.
Introdução
Com o aumento do interesse por sistemas modelo alternativos não mamíferos, os insetos oferecem a oportunidade de explorar uma ampla gama de diversidade biológica, além de fornecer modelos de pesquisa de menor custo, requisitos mais simples de manejo e barreiras regulatórias reduzidas em comparação com modelos mamíferos1. Sistemas modelo emergentes baseados em insetos permitem investigar fenômenos biológicos únicos, incluindo, por exemplo, a partenogênese em insetos-pau como Carausius morosus (Sinéty, 1901)2. Embora a mosca-das-frutas Drosophila melanogaster tenha moldado nossa compreensão dos processos de desenvolvimento e genéticos desde o início do século XX3, outros sistemas modelo de insetos, como C. morosus, apresentam uma oportunidade singular não apenas para a biologia do desenvolvimento, mas também para investigar controle motor, locomoção e sistemas regulados por neuro-hormônios4.
Além disso, dentro do campo da biologia evolutiva do desenvolvimento, os insetos hemimetábolos (que se desenvolvem diretamente) permanecem sub-representados, com o inseto D. melanogaster, holometábolo (que se desenvolve indiretamente ou passa por metamorfose), servindo como o modelo mais estudado. O estudo de espécies de insetos que se desenvolvem diretamente, como C. morosus, que passa por diversos estágios ninfais antes de atingir a maturidade sexual5, permite preencher lacunas filogenéticas essenciais na pesquisa de biologia evolutiva do desenvolvimento. Isso possibilita a comparação entre insetos hemimetábolos e holometábolos, que divergiram precocemente na evolução dos insetos, mas não são igualmente representados nos atuais sistemas modelo laboratoriais. O uso mais amplo de C. morosus como organismo de laboratório tem sido limitado por condições de criação inconsistentes, irreprodutíveis, e pela ausência de parâmetros claros para desenvolvimento e sobrevivência. Aqui, descrevemos um protocolo passo a passo com condições de cultivo definidas e resultados esperados que podem ser aplicados em diferentes laboratórios, apoiando múltiplas aplicações, incluindo o rastreamento da embriogênese, o desenvolvimento longitudinal e experimentos de produtividade reprodutiva.
C. morosus é fácil de criar em cativeiro, tornando-se muito adequado tanto para pesquisa laboratorial quanto para ambientes educacionais. Sua capacidade de se reproduzir por partenogênese6 elimina a necessidade de montagens complexas de cruzamento, reduzindo as exigências de manutenção e simplificando o manejo populacional. Embora o sucesso na criação se beneficie de condições ambientais controladas, seu manejo permanece simples e economicamente viável em comparação com muitos outros modelos laboratoriais. C. morosus se alimenta prontamente de material vegetal comum, como hera (Hedera helix), amora-brava (Rubus fruticosus) ou folhas de rosa (Rosa spp.). Outras vantagens desse sistema incluem a autotomia, a capacidade de regenerar patas7, o grande tamanho corporal e a habilidade de se alimentar de diversas plantas hospedeiras. No entanto, esta espécie também apresenta limitações, como a ausência de uma sequência genômica disponível publicamente, tempo de desenvolvimento relativamente longo e um exocório embrionário duro, o que pode dificultar as injeções8. Apesar dessas limitações, C. morosus oferece um modelo prático e eficaz para aplicações em pesquisa e ensino.
Protocolos padronizados de criação para C. morosus são essenciais para produzir resultados consistentes e reprodutíveis em estudos de pesquisa. Embora diversos estudos laboratoriais com C. morosus tenham sido relatados na literatura6,9,10,11,12, até onde sabemos, nenhum protocolo detalhado para a criação de C. morosus em laboratório foi publicado até o momento. Neste estudo, estabelecemos com sucesso um conjunto abrangente de protocolos padronizados para culturas laboratoriais de C. morosus, incluindo a criação de ovos, ninfas recém-eclodidas e adultos reprodutivamente maduros. Com estes métodos, pretendemos tornar este inseto mais acessível à comunidade mais ampla de pesquisa biológica.
Protocolo
1. Environmental rearing conditions
- Maintain the laboratory culture in a climate-controlled room or incubator with environmental settings as follows: 23 °C, relative humidity 70%, light-dark photoperiod of 12:12 h.
NOTE: Under these conditions, C. morosus eggs are expected to hatch approximately 74-80 days after being laid.
2. Establishment and maintenance of mesh enclosures
NOTE: Mesh insect enclosures with fabric mesh ventilation on three sides are recommended for housing C. morosus. An enclosure measuring 61 x 61 x 91.5 cm is suitable for maintaining up to 50 adults or, when establishing a new colony, up to 500 hatchlings.
- Select a mesh enclosure of appropriate size. Ensure the container is clean and free of debris before introducing the animals.
- For establishing a new colony using mature adults, place 25–50 adult females into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Mesh openings should be in the range of 0.2–1.0 mm to prevent escape of the small first instar hatchlings. - For establishing a new colony using hatchlings, transfer up to approximately 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
3. Feeding and maintenance
- During cage cleanings, let the insects stay in the enclosure; gently take them off foliage and place them on the bottom of the mesh enclosure while cleaning around them.
NOTE: Expect cleaning to take roughly 10–20 min per cage. - Provide fresh foliage such as ivy, bramble, or rose once per week. Ensure all plant material is pesticide-free. Wash foliage with tap water prior to addition to cages to remove surface debris and contaminants.
- Trim stems to fit vessels (small jars or bottles) filled with tap water to maintain leaf hydration. Place the prepared foliage inside the enclosure, making sure leaves are elevated and accessible to the insects. Carefully close the enclosure after placement.
- During weekly cage cleanings, remove wilted or dried foliage and any accumulated excrement from the bottom of the enclosure.
NOTE: Replace foliage when leaves show signs of dehydration, such as dryness, brittleness, wilting, or discoloration. Maintaining a clean environment is essential for colony health and well-being. - Lightly mist each enclosure daily with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Reduce density if rapid food depletion occurs.
4. Collection and maintenance of Carausius morosus hatchlings
NOTE: In this study, we use “hatchling” to refer to individuals immediately after emerging from the egg (first instar), while “nymph” refers to juvenile stages following postembryonic molts.
- Gather 6 cm Petri dishes with newly emerged hatchlings.
- Using blunt plastic forceps, gently transfer no more than 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Collect only fully emerged, stretched out nymphs that have completed exoskeleton expansion. Disturbing the nymphs before they have fully emerged from the egg may impair body extension and lead to premature death. For similar reasons, try to minimize direct handling of nymphs following transfer to the mesh enclosure. - Provide fresh foliage as described in section 3.
- Label new colony enclosures with the following information: egg batch collection date(s), date of hatching or range of hatching dates, and number of hatchlings added.
NOTE: This tracks enclosure age and predicts the start of reproductive maturity. - Lightly mist each enclosure immediately after hatchling transfer, and daily thereafter, with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Hatchlings may remain in the same enclosure throughout development until adulthood. Under the laboratory conditions described in section 1, approximately 13% of hatchlings survive to adulthood in 4–5 months (Table 1). - Remove any dead or damaged hatchlings during weekly cage cleaning to prevent contamination.
5. Collection and maintenance of C. morosus eggs
- Open an enclosure containing adult females.
- Using a gloved hand, gently sweep the substrates on the bottom of the cage, which contain both eggs and fecal matter, towards the front opening.
- Carefully transfer the material using a gloved hand to a 15 cm Petri dish for egg retrieval.
6. Termination of insects and disposal of enclosure waste
NOTE: When C. morosus are no longer needed for experiments, have died, or eggs are not required:
- Euthanasia/Disposal of insects: Transfer live or dead insects no longer needed for culture or experiments into an autoclavable waste bag, and store in a -20 °C freezer for at least 72 h.
- Egg destruction: To prevent overpopulation, remove any eggs not used for experiments from cages or Petri dishes, place them in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- Waste handling: Place any contaminated waste from enclosures or materials used for egg or insect collection in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- After freezing materials, transfer the autoclavable waste bag to a biohazard bin for proper disposal.
NOTE: As C. morosus is an invasive species outside of India, it is crucial that all materials are properly disposed of as described above to prevent accidental release into the environment.
7. Egg retrieval
- Using blunt plastic forceps, carefully pick up each egg and place it into a clean 6 cm Petri dish.
NOTE: Mature eggs are protected by a hardened exochorion and are dark brown, resembling plant seeds. Using a white background can help differentiate droppings from eggs when sorting. - Label the dish with the date and time of collection for tracking purposes. Keep the lid off during incubation to allow ventilation.
NOTE: A 6 cm Petri dish is sufficient for storing up to 200 eggs. - Approximately 1 week before the expected hatching window (74–80 days after egg laying; Kovacikova & Extavour, unpublished data), replace the Petri dish cover.
- Begin daily monitoring of egg containers before the expected hatching date to observe emerging hatchlings.
8. Life expectancy
- After hatching, monitor individuals as they undergo five to six molts before reaching reproductive maturity, which under the laboratory conditions described in Section 1, happens on average 139 days after hatching (Table 1).
- To follow this protocol, define developmental timing under these culture conditions as follows: embryogenesis duration (egg laying to hatching) is 74–80 days; time from hatching to sexual maturity (onset of oviposition) is approximately 135 days, corresponding to approximately 200 days from egg laying to sexual maturity, and total lifespan from egg laying to death is approximately 9.5 months.
Resultados
Coletamos dados documentando o sucesso na criação em laboratório de C. morosus desde ovos até adultos reprodutivamente maduros entre setembro de 2024 e novembro de 2025. Durante esse período de 14 meses, estabelecemos, mantivemos e monitoramos cinco gaiolas quanto a um ou mais dos seguintes parâmetros: mortalidade de adultos, ovos postos, momento da eclosão dos ovos e sobrevivência das ninfas até a fase adulta. Nosso método permite a manutenção de colônias a longo prazo sem sinais evidentes de doenças relacionadas a patógenos ou declínio reprodutivo, fatores que constituiriam resultados subótimos. Após mais de dois anos de cultivo contínuo, não observamos mortes em massa aparentemente relacionadas a patógenos, e a produção de ovos e ninfas permaneceu estável ao longo das gerações.
Os dados apresentados na Figura 1 e na Figura 2 mostram observações das cinco gaiolas monitoradas, desde a montagem até a fase adulta dos filhotes, incluindo os ovos postos e a mortalidade de adultos em cada gaiola. Após os indivíduos fundadores em cada gaiola atingirem a maturidade sexual e começarem a pôr ovos, registramos o número de adultos presentes em cada gaiola para estabelecer a população inicial no início da oviposição. O número de adultos em cada gaiola ao longo do tempo é mostrado na Figura 1 e na Tabela 1. Interpretamos a diminuição constante na sobrevivência como mortalidade relacionada à idade.
Monitoramos a produção de ovos em paralelo nas mesmas cinco gaiolas monitoradas quanto à sobrevivência dos adultos (Figura 1 e Figura 2). As contagens diárias de ovos por gaiola foram mais altas durante os primeiros 30–50 dias de postura e diminuíram gradualmente após esse período. Embora a produção total de ovos tenha variado entre as gaiolas (Tabela 2), esse padrão geral foi consistente em todas as cinco gaiolas replicadas. Monitoramos a dinâmica de eclosão de ovos ao longo de um período de 50 dias para 105 lotes de ovos no total, sendo que cada lote de ovos corresponde a um grupo de ovos ovipostos na mesma gaiola dentro de um período de 24 horas. Para as análises de tamanho do lote apresentadas na Figura 3, 75 lotes foram agrupados em categorias pequena, média e grande. Descobrimos que, uma vez eclodido o primeiro ovo de um lote, a conclusão da eclosão de 90% dos ovos foi alcançada em até 12 dias após a emergência da primeira cria (Figura 3D), independentemente do tamanho do lote (Figura 3B). Utilizando o termo “conclusão da eclosão” para descrever a proporção de ovos em um lote que eclodiram até um determinado momento após a emergência da primeira cria do lote, observamos que a distribuição dos lotes de ovos pelo dia da conclusão de 90% da eclosão indica que a maioria dos lotes atingiu esse limiar entre os dias 10 e 14 de eclosão (Figura 3C) após a emergência da primeira cria.
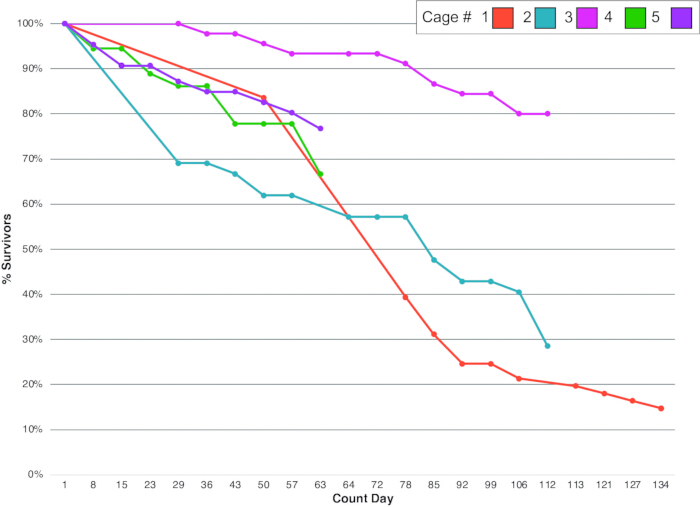
Figura 1. Dinâmica da mortalidade adulta. Trajetórias de sobrevivência ao longo do tempo em cinco gaiolas experimentais replicadas de C. morosus. A porcentagem de sobrevivência é representada ao longo do tempo para os indivíduos de cada gaiola monitorada. Veja as métricas resumidas na Tabela 1. Clique aqui para visualizar uma versão maior desta figura.
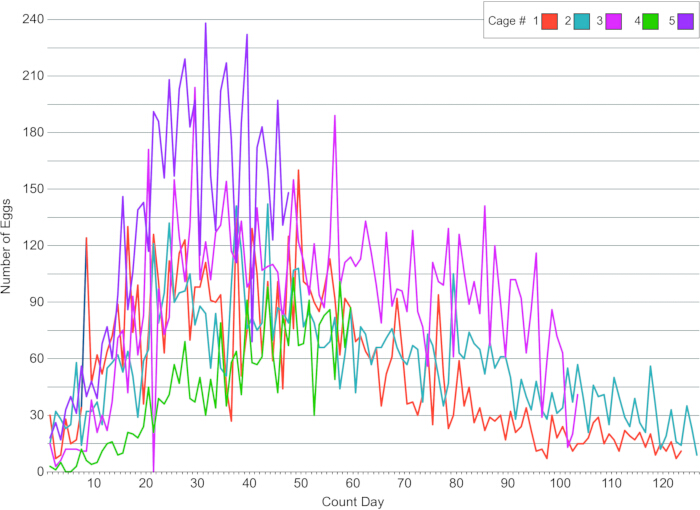
Figura 2. Dinâmica da produção de ovos. Número de ovos coletados das mesmas cinco gaiolas monitoradas na Figura 1. As gaiolas 1 a 5 foram monitoradas diariamente por 47, 58, 106, 129 e 132 dias, respectivamente. O gráfico mostra os dados dos primeiros 126 dias de postura. Veja as métricas resumidas na Tabela 2. Clique aqui para visualizar uma versão maior desta figura.
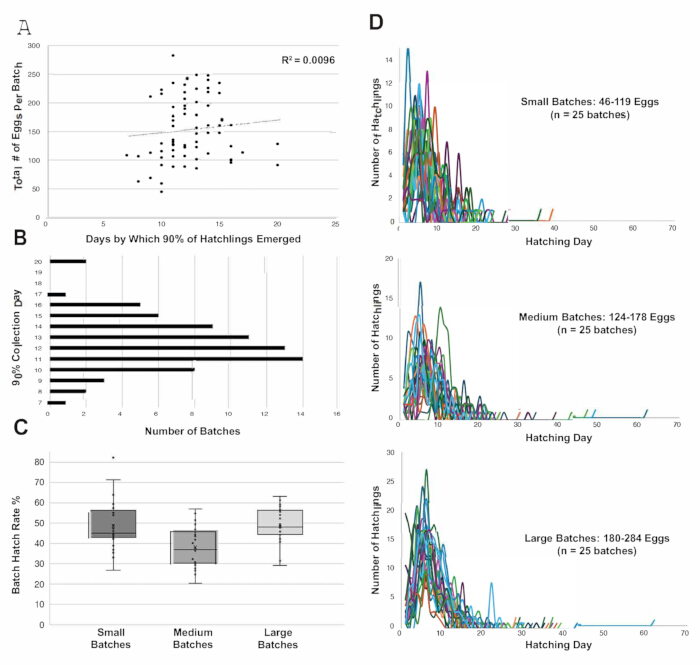
Figura 3. Dinâmica da eclosão dos ovos. (A) Relação entre o número total de ovos por lote e o número de dias necessários para atingir 90% de conclusão da eclosão. (B) Distribuição dos lotes de ovos pelo dia em que atingiram 90% de conclusão da eclosão, ao longo dos dias 7 a 20 de eclosão. (C) Distribuição da taxa de eclosão por lote entre lotes pequenos, médios e grandes de ovos. n = 25 lotes por categoria de tamanho de lote. (D) Trajetórias de eclosão ao longo de um período de coleta de 70 dias para os 75 lotes de ovos utilizados na análise de tamanho de lote. Um total de 105 lotes de ovos foi monitorado; para as análises apresentadas aqui, 75 lotes foram agrupados pelo número total de ovos utilizando cortes por tercis. Clique aqui para visualizar uma versão maior desta figura.
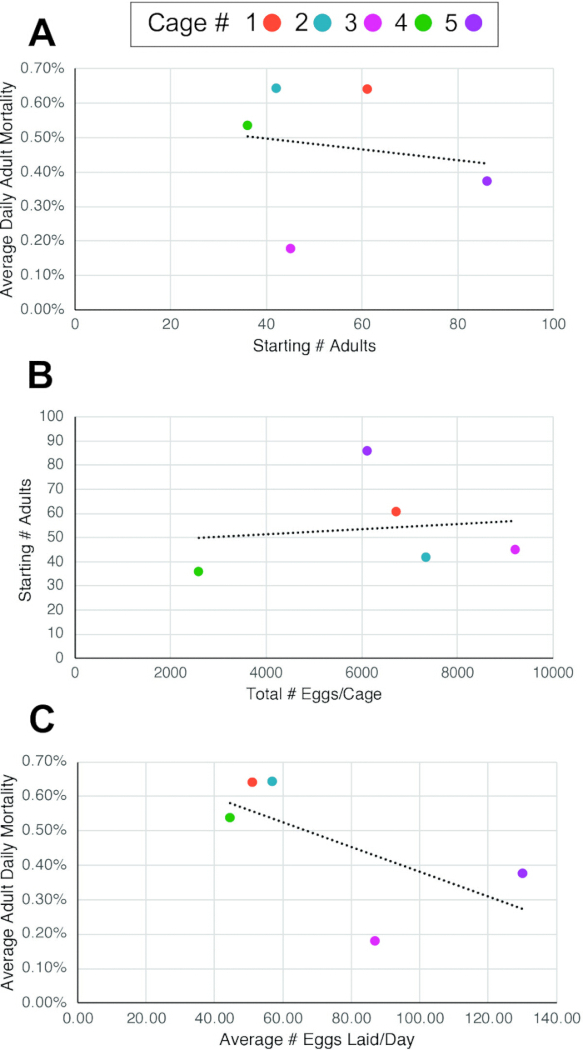
Figura 4. Relações entre o número de adultos, mortalidade de adultos e produção de ovos por gaiola. (A) Não há relação significativa (R2 = 0,025) entre a mortalidade diária média de adultos e o número de adultos fundadores em uma gaiola. (B) Não há relação significativa (R2 = 0,017) entre a produção total de ovos e o número de adultos fundadores em uma gaiola. (C) Há uma correlação negativa moderada (R2 = 0,411) entre a produção diária média de ovos e a mortalidade diária média de adultos. Mortalidade diária média de adultos = (% de mortalidade total) / (número total de dias monitorados). Clique aqui para visualizar uma versão maior desta figura.
| Nº da gaiola | número da gaiola antiga # | Primeiro dia de eclosão filhotes adicionados à gaiola fundadora | Último dia de eclosão filhotes adicionados à gaiola fundadora | # Eclosão filhotes adicionados à gaiola | Intervalo de dias de eclosão foram adicionadas linhas | Tempo Médio entre o Início da Gaiola e a Contagem de Adultos # | Primeiro Dia de Contagem de Adultos | Primeiro Dia em que os Adultos Começaram a Pôr Ovos | Tempo Decorrido Entre a Eclosão e a Idade Adulta | Tempo Decorrido Entre a Eclosão e a Postura dos Ovos | Número inicial de adultos | Sobrevivência da Eclosão até a Idade Adulta capela | Último Dia de Contagem de Adultos | Número final de adultos | Tempo de Monitoramento do Adulto # [dias] | Mortalidade Média de Adultos Durante o Período Monitorado [%] | Mortalidade Diária Média de Adultos [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | ND | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | ND | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | ND | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Médias | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tabela 1: Dinâmica de sobrevivência e mortalidade de adultos em diferentes gaiolas experimentais. Resultados de sobrevivência de adultos em cinco gaiolas experimentais replicadas. Para cada gaiola, são apresentados o período de data de montagem da gaiola, o número de recém-eclodidos utilizados para montar cada gaiola (para 2 das 5 gaiolas), a sobrevivência dos recém-eclodidos até a fase adulta (para 2 das 5 gaiolas), o intervalo de tempo entre a montagem da gaiola, o início das contagens de adultos e o início da postura de ovos, a duração do monitoramento de adultos, os tamanhos populacionais iniciais e finais de adultos, a mortalidade de adultos durante o período monitorado e a mortalidade diária média. A sobrevivência dos recém-eclodidos até a fase adulta foi calculada apenas para as gaiolas com número inicial de recém-eclodidos conhecido.
| Nº da Gaiola | Data de Início da Coleta de Ovos | Data de Término da Coleta de Ovos | Duração da Coleta de Ovos [dias] | Nº Total de Ovos/Gaiola | Média de Ovos Postos/Dia | Nº Inicial de Indivíduos Adultos | Total de Ovos/Adultos Iniciais | Média de Ovos/Adulto Inicial/Dia |
| 1 | 29/5/2025 | 8/10/ 2025 | 132,00 | 6721,00 | 50,92 | 61,00 | 110,18 | 0,83 |
| 2 | 4/7/2025 | 10/11/2025 | 129,00 | 7333,00 | 56,84 | 42,00 | 174,60 | 1,35 |
| 3 | 27/7/2025 | 10/11/2025 | 106,00 | 9198,00 | 86,77 | 45,00 | 204,40 | 1,93 |
| 4 | 13/9/2025 | 10/11/2025 | 58,00 | 2583,00 | 44,53 | 36,00 | 71,75 | 1,24 |
| 5 | 24/9/2025 | 10/11/2025 | 47,00 | 6104,00 | 129,87 | 86,00 | 70,98 | 1,51 |
| Médias | 94,40 | 6387,80 | 73,79 | 54,00 | 126,38 | 1,37 |
Tabela 2: Produção de ovos nas gaiolas experimentais. Produção de postura de cinco gaiolas experimentais replicadas contendo adultos maduros. Para cada gaiola, relatamos as datas inicial e final da coleta de ovos, a duração total da coleta de ovos, a produção acumulada de ovos por gaiola e o número médio de ovos postos por dia.
Discussão
Os métodos de criação detalhados aqui fornecem uma estrutura simples e reprodutível para manter populações laboratoriais de C. morosus. Embora C. morosus tenha sido mantido por longo tempo em laboratórios ou como animal de estimação doméstico, os protocolos de criação para pesquisas laboratoriais têm variado entre estudos6,9,10,11,12. Garantir condições ambientais e práticas alimentares consistentes é importante para tornar C. morosus um organismo modelo confiável em pesquisas sobre desenvolvimento, fisiologia e evolução.
Tempo de desenvolvimento em C. morosus em relação a outros insetos modelo
Em comparação com insetos holometábolos, como a mosca-das-frutas Drosophila melanogaster, C. morosus apresenta taxas de desenvolvimento mais lentas e uma fase juvenil mais prolongada. Enquanto D. melanogaster completa a embriogênese em aproximadamente 24 h e atinge maturidade reprodutiva em 10–12 dias a 25 °C13, nas nossas condições de criação, C. morosus necessita de 74–80 dias para a embriogênese e cerca de 135–139 dias após a eclosão para alcançar maturidade reprodutiva, o que corresponde a aproximadamente 200 dias desde a postura do ovo até a maturidade reprodutiva a 23 °C (dados não mostrados). Esse cronograma prolongado reflete diferenças fisiológicas e evolutivas fundamentais entre insetos hemimetábolos e holometábolos14,15 e é encontrado repetidamente ao longo do grupo Phasmatodea16,17,18. Embora outros insetos hemimetábolos, como o grilo Gryllus bimaculatus, completem a embriogênese e alcancem maturidade sexual em um período mais curto (dez dias e seis semanas, respectivamente, a 29 °C19), o desenvolvimento mais lento de C. morosus oferece uma oportunidade única para pesquisas reproduzíveis e estudos detalhados, longitudinais, da embriogênese e do desenvolvimento juvenil.
Fonte de folhagem e práticas de alimentação
Neste protocolo, relatamos o uso de hera (Hedera helix) como fonte alimentar principal para a nossa colônia de C. morosus, com folhagem coletada de um local consistente no campus durante todo o ano. Embora a hera possa não estar acessível a todos os laboratórios, várias fontes alternativas de alimento vegetal foram relatadas como adequadas para manter colônias de C. morosus, incluindo amora-brava (Rubus spp.), ligústro (Ligustrum spp.), tramazeira (Pyracantha spp.), rosa (Rosa spp.), aveleira (Crataegus monogyna), carvalho (Quercus spp.) e avelã (Corylus spp.)20. Uma consideração importante ao usar folhagem coletada de fontes externas é que o conteúdo nutricional é menos controlado do que em sistemas laboratoriais que dependem de dietas padronizadas (por exemplo, Drosophila melanogaster), o que pode introduzir variabilidade nutricional. Para ajudar a limitar isso, utilizamos a mesma espécie vegetal do mesmo local em todas as estações e fornecemos folhagem para todas as gaiolas uma vez por semana durante a manutenção rotineira das gaiolas. Os ramos de hera usados para alimentação geralmente apresentavam uma mistura de folhas jovens e maduras; não selecionamos ramos por um estágio específico de desenvolvimento foliar. Todas as folhas foram lavadas antes de serem adicionadas às gaiolas. O nosso cronograma semanal de substituição, que removia toda a folhagem e a substituía no mesmo dia, foi implementado para garantir consistência e gerenciar a escala da colônia. A folhagem cortada de hera foi mantida em recipientes com água dentro das gaiolas para manter a hidratação ao longo da semana. Na maioria dos casos, as folhas permaneceram em boas condições durante toda a semana, embora ocasionalmente pudesse ocorrer secagem ou esgotamento, situação em que substituíamos a folhagem antes de uma semana.
Tamanho das colônias, taxas de sobrevivência e reprodução de adultos
A configuração adequada da colônia e o manejo cuidadoso da densidade populacional foram fundamentais para manter os estoques saudáveis. Manter um máximo de aproximadamente 500 recém-eclodidos ou 50 adultos por recinto de 61 cm x 61 cm x 91,5 cm favoreceu condições estáveis, a manutenção da colônia e observações reprodutíveis do desenvolvimento.
A comparação da mortalidade diária média com o número de adultos fundadores em uma gaiola (Figura 4A e Tabela 1) revelou nenhuma relação previsível entre esses dois parâmetros. Da mesma forma, não houve uma relação preditiva forte entre o número total de adultos fundadores e a produção total de ovos (Figura 4B, Tabela 1 e Tabela 2). Em vez disso, gaiolas com menor mortalidade diária média de adultos apresentaram uma leve tendência a ter maior produção diária média de ovos (Figura 4C). No entanto, as diferenças entre as gaiolas sugerem que a produção de ovos variou entre os adultos (Tabela 1 e Tabela 2), o que pode indicar que fatores além da sobrevivência dos adultos contribuem para os padrões de fecundidade, e que fêmeas individuais também podem variar no número de ovos que põem a cada dia.
A produção de ovos em todas as gaiolas monitoradas geralmente diminuiu ao longo do experimento (Figura 2). A maioria das gaiolas apresentou as maiores taxas diárias de postura no início do período reprodutivo (primeiros 50 dias), após o qual a produção diminuiu gradualmente (Figura 2). Esse padrão é consistente com nossa observação de que os indivíduos geralmente atingem a maturidade sexual e começam a pôr ovos aproximadamente 135 dias após a eclosão, e que a mortalidade começa cerca de 90 dias depois (~225 dias após a eclosão; dados não mostrados).
Tempo e dinâmica da eclosão
Entre os lotes de ovos monitorados, a maioria da eclosão ocorreu dentro de um período consistente de 12 dias após o início da emergência (Figura 3D). Da mesma forma, não houve correlação entre o tamanho do lote e o momento da conclusão de 90% da eclosão (Figura 3A), e a maioria dos lotes atingiu 90% de conclusão da eclosão entre os dias 10 e 14 após a emergência da primeira ninfa (Figura 3B). Esse período previsível de eclosão é uma característica útil no manejo de colônias de C. morosus, pois permite agrupar as ninfas em coortes de idade semelhante, melhorando o estadiamento do desenvolvimento e reduzindo a variabilidade experimental. Saber quando ocorrerá a eclosão em massa também permite um melhor planejamento da rotatividade dos recintos e da alocação de recursos, incluindo a preparação oportuna de recintos, folhagem e materiais de rastreamento, o que é especialmente importante em estudos de larga escala ou de longo prazo. Embora espécies de Phasmatodea tanto sexuadas quanto partenogenéticas tenham sido estudadas, não conhecemos nenhuma evidência de que o modo reprodutivo por si só determine diferenças no tempo de embriogênese. Em vez disso, a variação no desenvolvimento tem sido descrita como específica da espécie e influenciada por condições ambientais2.
Manuseio de ovos e considerações sobre o substrato
Nosso método de manipulação de ovos envolve a coleta de ovos diretamente do piso do recinto e a incubação em placas de Petri ventiladas. Essa abordagem permite observar facilmente os ovos, ao contrário dos sistemas com grilos, que coletam ovos em substratos como fibra de coco ou pavios de algodão21. O exocório duro dos ovos de C. morosus oferece proteção durante a manipulação e contra a dessecação, permitindo uma incubação segura em placas de Petri sem substrato adicional sob nossas condições de cultivo. Em conjunto, esses procedimentos padronizados fornecem uma abordagem estruturada para manter populações saudáveis de C. morosus para pesquisas reprodutíveis em desenvolvimento, comportamento, genética ou fisiologia. Controles ambientais consistentes (23 °C, 70% UR, 12:12 LD), manutenção regular dos recintos e cronogramas de desenvolvimento previsíveis tornam C. morosus um sistema modelo acessível e de baixo custo. Importante ressaltar que, ao contrário de alguns sistemas com grilos, nos quais o lotação excessiva, canibalismo ou carga de patógenos podem desestabilizar rapidamente as colônias22, C. morosus é fácil de manter, sendo especialmente adequado para experimentos em larga escala e estudos que abrangem múltiplas gerações. À medida que C. morosus passa a ser mais amplamente adotado como espécie modelo hemimetabólica, o uso de métodos padronizados deve promover a reprodutibilidade e comparabilidade entre estudos em diversas áreas da biologia de insetos.
Sobrevivência da eclosão até a fase adulta
A sobrevivência desde o nascimento até a idade adulta em nosso estudo (~13%) é substancialmente menor do que a relatada por outro estudo quantitativo sobre a sobrevivência de ninfas de C. morosus em condições controladas de laboratório, no qual 68% dos indivíduos sobreviveram até a idade adulta sob restrição calórica e até 87% com alimentação ab libitum23. Especulamos que a menor sobrevivência observada em nossa colônia (~13%) em comparação com o estudo anterior seja devida a diferenças na forma como os animais foram criados, as quais, por sua vez, refletem os diferentes objetivos de nossos cultivos e do estudo anterior. Nosso protocolo foi projetado para manter colônias grandes e continuamente reprodutivas, em vez de maximizar a sobrevivência de grupos individuais. Assim, mantivemos os animais em densidades relativamente altas, em contraste com o estudo anterior, que criou animais isolados desde o ovo até a idade adulta em gaiolas individuais23. Especulamos que o método de cultivo em alta densidade descrito aqui possa aumentar a mortalidade em comparação com a criação em isolamento, especialmente durante os estágios iniciais de ninfa, quando os indivíduos podem ser mais sensíveis ao aglomeramento ou à competição. Em nossas gaiolas maiores, a variação na qualidade das plantas também pode ter desempenhado um papel, em comparação com a abordagem de criação individual, que fornecia aos indivíduos discos de tamanho controlado cortados de folhas de plantas23. No entanto, apesar de sua taxa de sobrevivência comparativamente menor, nossa colônia produziu consistentemente grande número de ovos e permaneceu estável ao longo do tempo (Figura 1, Figura 3, Tabela 1 e Tabela 2). Isso sugere que a abordagem descrita aqui é eficaz para manter um cultivo de laboratório de longo prazo.
Fatores que influenciam a sobrevivência e limitações do protocolo
Vários fatores neste protocolo provavelmente influenciam a sobrevivência e devem ser cuidadosamente controlados. A densidade populacional é um parâmetro importante, pois o excesso de lotação pode reduzir a sobrevivência, especialmente durante os estágios iniciais de ínstar. Outro parâmetro que influencia a sobrevivência é a hidratação adequada, particularmente durante os estágios iniciais de ínstar. Todos os procedimentos e cronogramas descritos no protocolo baseiam-se nas condições ambientais específicas utilizadas neste estudo. No entanto, alterações na umidade, temperatura, fluxo de ar ou tipo de planta podem afetar a frequência da nebulização de água, a frequência com que a folhagem precisa ser substituída, o tempo de eclosão dos ovos e a sobrevivência geral. Por exemplo, em condições de cultivo mais secas, pode ser necessário nebulizar água e substituir as plantas com maior frequência para manter a hidratação. Diferentes espécies vegetais também podem influenciar a alimentação e o desenvolvimento. Esses fatores devem ser ajustados conforme as condições de criação e os objetivos experimentais. Para aplicações que exigem alta sobrevivência de juvenis, rastreamento individual ou ensaios comportamentais, densidades iniciais mais baixas podem ser preferíveis.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Este projeto foi apoiado pelo prêmio da National Science Foundation IOS 22207477 concedido a CGE, que é pesquisador do Howard Hughes Medical Institute. Reconhecemos que se acredita que Carausius morosus tenha origem em Tamil Nadu, Índia, e que culturas laboratoriais dessa espécie têm sido mantidas fora da Índia desde pelo menos 1908. Agradecemos sinceramente a Stanislav Gorb e Thies Büscher (Universidade de Kiel) pelo fornecimento do grupo inicial de adultos utilizado para estabelecer nossa cultura, e a todos os membros do laboratório Extavour pelo apoio, incluindo o ex-membro do laboratório Dr. Upendra Bhattarai (afiliação atual: Universidade de Brown), que montou a colônia inicial.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Sacos autoclaváveis de polipropileno, 30,5 cm × 61 cm | VWR | 95042-554 | Para descarte de insetos, ovos e resíduos de recintos |
| Lixeira para resíduos biológicos | N/A | N/A | Para descarte após congelamento |
| Pinça plástica romba | Amazon | B07YZ5FB27 | Para coleta e manipulação de ovos e ninfas |
| Sala climatizada ou incubadora | N/A | N/A | Para manter 23 °C, 70% UR e fotoperíodo de 12:12 h luz-escuridão |
| Luvas descartáveis | N/A | N/A | Para coleta de ovos e manipulação de resíduos |
| Placas de Petri descartáveis, 150 × 15 mm | VWR | 25384-326 | Para coleta de ovos |
| Placas de Petri descartáveis, 60 × 15 mm | VWR | 25384-092 | Para incubação de ovos |
| Folhagem fresca (hera, amora ou folhas de rosa) | N/A | N/A | Fonte alimentar livre de pesticidas |
| Freezer, -20 °C | N/A | N/A | Para eutanásia/descarte e congelamento de ovos ou resíduos antes do descarte |
| Recintos para insetos com malha | Amazon | B09GS2CH1G | Usados para abrigar insetos |
| Garrafa com pulverizador, 250 mL | Amazon | B000H88PCU | Para umedecer os recintos com malha |
| Recipiente de vidro alto, altura de 18–23 cm | N/A | N/A | Usado para conter água e hastes de plantas |
| Água da torneira | N/A | N/A | Para pulverização e manutenção da hidratação da folhagem |
| Superfície ou bandeja branca para separação | N/A | N/A | Para diferenciar ovos das fezes durante a separação |
Referências
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Reimpressões e permissões
