Este protocolo fornece uma abordagem padronizada de corte dentro da câmara para determinar o início, o momento do pico e a cinética das emissões voláteis induzidas por ferimento, juntamente com medidas simultâneas de trocas gasosas.
Artigo de método
Um Método de Corte Intracâmara para a Quantificação em Tempo Real de Voláteis de Ferimento Foliar e Trocas Gasosas
31 visualizações
⸱
11 de setembro de 2026
Neste artigo
Resumo
Resumo
Compostos orgânicos voláteis (COVs) liberados por folhas de plantas desempenham papéis fundamentais na sinalização de estresse, nas interações planta–atmosfera e na defesa vegetal. Dentre esses, os COVs induzidos por lesão (COVs-iL) são emitidos em segundos após danos mecânicos, herbivoria ou perturbações ambientais. A dinâmica dessas emissões depende fortemente do momento, da gravidade e do método de rompimento do tecido. Contudo, a quantificação precisa ainda é desafiadora devido a artefatos mecânicos, condições variáveis de exposição e atrasos entre a lesão e a medição. Este estudo apresenta um protocolo padronizado de excisão foliar dentro de uma câmara para monitoramento em tempo real de COVs-iL e trocas gasosas. Um cortador de grau cirúrgico foi integrado a uma câmara portátil de troca gasosa, permitindo cortes limpos e controlados no interior de uma câmara selada, sob condições estáveis de luz, umidade, CO2 e temperatura. Um espectrômetro de massas com tempo de voo e reação de transferência de próton (PTR-TOF-MS) mediu continuamente as emissões voláteis na saída da câmara, minimizando atrasos e distorções do sinal. Esta configuração permite resolver com alta fidelidade temporal o início da emissão, o momento do pico, a taxa máxima de elevação e a liberação total. A aplicação do método em Quercus rubra, Acer platanoides e Gossypium hirsutum demonstrou sua capacidade de distinguir padrões distintos de emissão induzida por lesão em tipos foliares contrastantes. Ao eliminar os atrasos associados a métodos convencionais de amostragem, este método resolve a trajetória cinética completa das emissões induzidas por lesão e supera limitações significativas de abordagens anteriores. Ele fornece uma base sólida para o estudo de respostas rápidas ao estresse na fisiologia vegetal, bioquímica ecológica e interações planta–atmosfera.
Introdução
As plantas respondem a lesões liberando um sinal químico rápido, mas a captura precisa desse sinal permanece tecnicamente desafiadora. Em segundos após herbivoria, dano causado pelo vento ou perturbação mecânica, as plantas liberam um surto transitório de compostos orgânicos voláteis (COVs) que ativam defesas internas e preparam plantas vizinhas1,2,3,4Esses VOCs induzidos por ferimento (wVOCs) incluem voláteis do tipo folha verde (GLVs), metanol, álcoois e aldeídos de cadeia curta, terpenoides e derivados de oxilipinas. Eles surgem seja da síntese de novo em células do parênquima foliar, seja da ruptura de estruturas de armazenamento, como ductos resiníferos e tricomas. Como sinais imediatos de estresse, os wVOCs coordenam defesas fisiológicas, mediam a comunicação entre plantas e interagem com a química atmosférica.1,5,6,7.
Como a herbivoria natural combina dano mecânico com elicitação salivar e microbiana, estudos experimentais utilizam ferimento simulado para isolar respostas apenas ao dano físico8. No entanto, a natureza transitória dos VOCs induzidos por ferimento os torna intrinsecamente difíceis de capturar. Métodos convencionais, como a amostragem estática do espaço superior acoplada à cromatografia gasosa-espectrometria de massas (GC-MS), frequentemente perdem o pico inicial de emissão e distorcem seu perfil cinético9,10. Atrasos na equilibração, temperaturas elevadas de incubação e linhas de amostragem prolongadas aumentam o tempo de residência e distorcem o sinal registrado, especialmente para compostos reativos como sesquiterpenos9,11,12. Em conjunto, esses artefatos reduzem a magnitude do sinal e obscurecem a dinâmica temporal das emissões voláteis induzidas por ferimento, complicando assim a interpretação das respostas das plantas ao estresse.
Muitos estudos também interrompem a medição para ferir folhas fora da câmara. Essa interrupção desestabiliza o fluxo de gás, altera o momento do ferimento e reduz o controle sobre a precisão do corte13,14,15. Como resultado, os primeiros minutos após a lesão muitas vezes se perdem ou distorcem-se13, justamente quando as taxas de emissão atingem o pico e surgem padrões cinéticos característicos3,6,16,17. Algumas abordagens realizaram a excisão da folha dentro de câmaras de grande volume utilizando lâminas de teflon ou perfuradores mecânicos12,18,19. No entanto, essas configurações frequentemente provocaram instabilidade no vedamento, comprimentos de corte inconsistentes e incisões irregulares devido ao deslocamento do cortador ou diferenças na resistência da folha. O grande volume da câmara ainda atrasou a renovação do ar e ampliou o sinal de voláteis16. Juntos, esses limites experimentais impedem a caracterização precisa da dinâmica temporal das emissões induzidas por ferimento sob condições fisiológicas estáveis.
Para superar esses desafios, este estudo apresenta um protocolo de ferimento em tempo real dentro da câmara que integra um cortador de grau cirúrgico a um sistema de troca gasosa acoplado à espectrometria de massas com tempo de voo e transferência de prótons (PTR-TOF-MS). O protocolo permite o ferimento foliar sincronizado e a detecção de voláteis sob condições ambientais controladas, ao mesmo tempo em que mede simultaneamente os fluxos de voláteis e a troca gasosa com alta resolução temporal. Ao realizar a excisão foliar dentro da câmara de medição, o protocolo minimiza os atrasos de amostragem associados às abordagens convencionais, preserva a dinâmica temporal dos voláteis induzidos por ferimento que são rapidamente emitidos e ilustra um procedimento padronizado de corte em folhas com diferentes propriedades mecânicas. Essa resolução temporal permite a caracterização direta do início, do momento do pico e da cinética específica por espécie das emissões de voláteis induzidos por ferimento.
O protocolo foi avaliado utilizando três espécies com características anatômicas e fisiológicas contrastantes (Quercus rubra, Acer platanoides e Gossypium hirsutum) para demonstrar sua aplicabilidade em diversos tipos de folhas. A aplicação de condições idênticas de medição em todas as espécies demonstra que o protocolo pode resolver as dinâmicas de VOCs induzidos por ferimento ao longo de uma ampla variedade de padrões de emissão, minimizando ao mesmo tempo a variabilidade experimental. A abordagem é amplamente aplicável a estudos que exigem medidas de alta resolução temporal de VOCs induzidos por ferimento em condições ambientais controladas. Em conjunto, essas características fornecem uma estrutura padronizada para investigar respostas rápidas ao estresse em plantas e facilitam a aplicação do protocolo entre espécies e sistemas experimentais.
Protocolo
Todas as plantas foram cultivadas em condições de ambiente controlado em câmaras de crescimento. Os reagentes e o equipamento utilizados estão listados na Tabela de Materiais.
1. Construção e instalação do cortador de folhas dentro da câmara
- Construa um cortador de folhas rotativo projetado para se ajustar às dimensões internas (4 cm × 2 cm) da cabeça de medição padrão.
- Fixe uma lâmina de barbear a uma haste de aço inoxidável (diâmetro de 1 mm) utilizando solda de prata para garantir estabilidade mecânica.
CAUTION: As lâminas de barbear são extremamente afiadas. Use luvas resistentes a cortes durante o manuseio. Após o uso, descarte as lâminas de barbear de acordo com os procedimentos institucionais de segurança laboratorial para objetos cortantes. Realize a soldagem com prata em local com ventilação adequada e use proteção ocular. - Insira a haste com a lâmina em uma agulha de seringa de aço inoxidável (diâmetro externo de 1,6 mm) para permitir rotação axial livre.
- Selar ambas as extremidades da agulha utilizando uma rolha de politetrafluoretileno (PTFE) de baixa emissão para manter condições herméticas, preservando a rotação.
- Monte um botão giratório manual na extremidade proximal da haste para permitir rotação controlada do cortador interno.
- Fixe dois suportes flexíveis feitos de chapa de latão mola (espessura de 0,2 mm) à superfície externa da agulha para prender o cortador à metade inferior da câmara.
- Realize uma incisão triangular na junta da câmara inferior para permitir a inserção da lâmina sem contato com a superfície da folha.
- Selar o ponto de inserção utilizando massa vedante de baixa emissão para evitar vazamento de gás.
NOTE: Antes de prosseguir, verifique se a instalação do cortador não comprometeu a vedação da câmara. Confirme que a câmara fecha completamente, que o termopar permanece em contato com a superfície da folha e que o sistema de troca gasosa indica fluxo de ar estável, sem sinais de vazamento. Prossiga apenas após a confirmação de condições estáveis na câmara. Escolha o comprimento da lâmina para produzir um corte de aproximadamente 10 mm. A mecânica integrada de corte e sua posição dentro da câmara de folha são mostradas na Figura 1B.
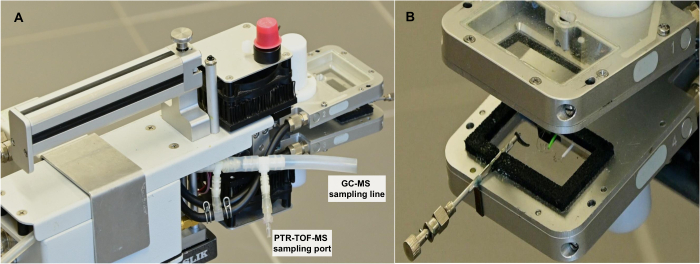
Figura 1: Sistema modificado de troca gasosa com cortador de folhas integrado na câmara e linhas de amostragem de voláteis. (A) Visão geral do sistema modificado de troca gasosa, mostrando a porta de amostragem do PTR-TOF-MS e a linha de amostragem do GC–MS posicionada próxima à saída da câmara para coleta de compostos voláteis. (B) Vista ampliada da câmara aberta, mostrando o mecanismo de corte integrado e a região onde a folha é posicionada durante o ferimento. O cortador é integrado hermeticamente à câmara, permitindo o ferimento da folha sem abrir o compartimento durante a medição. Essa configuração permite o monitoramento em tempo real das emissões de voláteis e da troca gasosa sob condições ambientais controladas. Clique aqui para visualizar uma versão maior desta figura.
2. Configuração dos caminhos de amostragem de compostos voláteis
- Instale uma peça em T de teflon (diâmetro interno de 1/16″ ou 1/8″) adjacente à saída da câmara (Figura 1A) para minimizar o comprimento do tubo entre a câmara e o analisador de compostos voláteis.
- Conecte a saída ao sistema de coleta de COVs utilizando tubos inertes (por exemplo, FEP ou PTFE; diâmetro interno de 1,6 mm). Instale a peça em T imediatamente adjacente à saída da câmara para manter o tubo entre a câmara e o analisador de voláteis o mais curto possível, minimizando assim o volume interno, o tempo de residência e as perdas por adsorção.
- Mantenha o fluxo de ar na câmara em 750 µmol s-1.
NOTA: Tubos inertes curtos reduzem a adsorção e o tempo de residência de compostos reativos.
3. Preparação do material vegetal
- Cultive Quercus rubra, Acer platanoides e Gossypium hirsutum em câmara de ambiente controlado a 25 °C durante o dia / 20 °C à noite, 60% de umidade relativa, intensidade luminosa de 1000 µmol m-2 s-1 e fotoperíodo de 16 h/8 h durante 4 meses.
- Mantenha as plantas sob concentração atmosférica ambiente de CO2 (~430 ppm) durante todo o experimento.
- Regue todas as plantas a cada dois dias até que o solo atinja a capacidade de campo.
- Selecione folhas totalmente expandidas e não senescentes para experimentos em estágio de desenvolvimento comparável.
4. Experimentos de ferimento foliar e coleta de COVs
- Feche a folha e defina as condições ambientais
- Feche uma folha totalmente expandida e ainda presa na cubeta equipada com o cortador interno.
- Defina a temperatura do bloco para 25 °C, a umidade relativa do ar para 60%, a intensidade da luz ativa para 1000 µmol m-2 s-1 (90% vermelha, 10% azul) e o fluxo de ar para 750 µmol s-1.
- Permita que a folha se aclimate às condições ambientais selecionadas até que sejam alcançados valores em estado estacionário de assimilação líquida de CO2, condutância estomática e sinais de compostos orgânicos voláteis (COVs) de base, geralmente dentro de 20–30 min após o fechamento da folha.
- Realize monitoramento de trocas gasosas, fluorescência e COVs
- Inicie medições simultâneas de trocas gasosas e COVs com resolução de 1 Hz.
- Após concluir as medições de trocas gasosas, registre o rendimento de fluorescência em estado estacionário (Fs) e, em seguida, aplique um pulso saturante (8000 µmol m-2 s-1, 0,6 s) via o fluorímetro da câmara (3055-FL) para determinar o rendimento máximo de fluorescência (Fm′) em folhas adaptadas à luz.
- Desligue a luz ativa e deixe a folha em escuro por 20 min.
- Registre a taxa de respiração foliar no escuro.
- Meça a fluorescência inicial (F₀) usando uma luz de medição modulada fraca (0,03 µmol m-2 s-1), seguida por um pulso saturante para obter a fluorescência máxima em folhas adaptadas ao escuro (Fm).
- Ligue novamente a luz ativa.
- Continue as medições de COVs e trocas gasosas nas mesmas condições ambientais até que a linha de base pré-corte esteja estável.
OBSERVAÇÃO: Antes do corte, confirme que as condições ambientais selecionadas permanecem estáveis e que a assimilação líquida de CO₂, a transpiração e os sinais de COVs de base atingiram valores em estado estacionário. Prossiga apenas após essas condições terem sido mantidas nas configurações de medição escolhidas.
- Corte da folha e coleta de COVs
- Insira o primeiro cartucho de COVs na linha de saída e conecte-o a uma bomba portátil de amostragem de ar com fluxo constante. Passe o ar da câmara através do cartucho a uma taxa constante de 200 mL min-1. Utilize um cartucho adsorvente de aço inoxidável com múltiplas camadas (10,5 cm de comprimento, 3 mm de diâmetro interno), adequado para captura de voláteis C3–C17, preenchido com Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) e Carbotrap X 20/40 mesh (0,1 g), dispostos da menor para a maior força de adsorção no sentido do fluxo de amostragem.
OBSERVAÇÃO: Antes da amostragem, condicione os cartuchos passando hélio de alta pureza através deles a 200 mL min-1 por 3 h a 250 °C. A coleta em cartuchos permite análise posterior por GC-MS para identificação de compostos, quando exigido pelos objetivos experimentais. Embora a coleta em cartuchos faça parte do fluxo de trabalho descrito aqui, os resultados representativos apresentados neste estudo foram obtidos por medições contínuas com PTR-TOF-MS. Escolha o adsorvente de acordo com a faixa de volatilidade e polaridade dos COVs-alvo, bem como com as condições de amostragem. - Colete COVs pré-corte por 15 min a 200 mL min-1.
- Substitua o cartucho e colete COVs por 2 min.
- Gire o cortador interno 360° para excisar a folha sem abrir a câmara e retorne a lâmina à sua posição inicial.
OBSERVAÇÃO: Posicione a folha dentro da câmara de modo que o corte seja feito na lâmina fechada, mantendo o selamento completo da câmara. Sempre que permitido pelo tamanho e morfologia da folha, evite cortar a nervura principal e mantenha a posição do corte tão consistente quanto possível entre as amostras. Danos à nervura principal podem aumentar substancialmente as emissões de voláteis induzidas por ferimento; portanto, a colocação consistente do ferimento melhora a reprodutibilidade experimental5.
CAUTELA: Certifique-se de que a câmara esteja completamente selada antes do corte. - Continue a coleta de COVs com o mesmo cartucho por 13 min.
- Insira um terceiro cartucho e colete COVs por 15 min.
- Opere o PTR-TOF-MS continuamente durante todos os períodos para detecção em tempo real.
OBSERVAÇÃO: Antes e após cada medição em planta, colete uma amostra de fundo com a câmara vazia nas mesmas condições ambientais. Utilize essas medições de fundo para correção da linha de base dos dados de emissão de COVs durante a análise.
- Insira o primeiro cartucho de COVs na linha de saída e conecte-o a uma bomba portátil de amostragem de ar com fluxo constante. Passe o ar da câmara através do cartucho a uma taxa constante de 200 mL min-1. Utilize um cartucho adsorvente de aço inoxidável com múltiplas camadas (10,5 cm de comprimento, 3 mm de diâmetro interno), adequado para captura de voláteis C3–C17, preenchido com Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) e Carbotrap X 20/40 mesh (0,1 g), dispostos da menor para a maior força de adsorção no sentido do fluxo de amostragem.
5. Detecção de voláteis e operação do instrumento
- Defina a temperatura da entrada e do tubo de deriva do PTR-TOF-MS como 80 °C, fluxo de entrada de 100 mL min-1, fluxo de vapor d'água de 4,0 mL min-1, corrente iônica de 4,0 mA, pressão da câmara de derivação de 2,1 mbar, razão de densidade do campo do tubo de derivação de 115 Td e pressão do módulo TOF-MS de 1,2 × 10⁻⁷ mbar.
- Registre os sinais voláteis com uma resolução temporal de 1 Hz e um intervalo de amostragem de 400 ps.
- Calibre o PTR-TOF-MS antes de cada experimento utilizando uma mistura padrão de gás certificada contendo VOCs representativos das principais classes de voláteis vegetais. Processe os dados de calibração e calcule as concentrações de VOCs usando o software PTR-MS Viewer, seguindo os procedimentos descritos13,16.
6. Análise offline por GC-MS de amostras de cartucho
NOTA: O procedimento a seguir descreve a análise off-line de amostras de cartucho coletadas durante o fluxo de trabalho descrito acima. A análise por GC-MS fornece identificação complementar de compostos, enquanto os resultados representativos apresentados neste estudo são baseados em medições contínuas por PTR-TOF-MS.
- Desorver termicamente as cartuchas utilizando uma unidade automatizada de desorção térmica acoplada a um sistema de CG-EM, seguindo o procedimento descrito por Kännaste et al.20.
- Identificar os compostos por comparação com padrões autênticos e com a biblioteca espectral de massas do NIST. Realizar a detecção por espectrometria de massas utilizando ionização por impacto eletrônico (70 eV) e confirmar as identidades dos compostos comparando os tempos de retenção e os espectros de massas com padrões autênticos, quando disponíveis.
NOTA: A amostragem com cartuchas segue o protocolo modificado de Kännaste et al.20 para captura de voláteis C3–C17.
7. Análise de dados
- Subtraia o fundo da câmara vazia de todos os traços de emissão antes da análise. Defina a linha de base pré-lesão para cada massa monitorada como o sinal médio durante um intervalo fixo imediatamente antes do corte.
- Utilize o momento do corte como ponto de referência comum para todas as massas monitoradas. Determine o início da emissão como o primeiro aumento detectável no sinal de COV corrigido pela linha de base após o corte da folha.
NOTA: O início da emissão foi definido como o primeiro aumento consecutivo acima da linha de base pré-lesão que se manteve na fase ascendente da explosão de emissão, excluindo assim flutuações isoladas atribuíveis ao ruído instrumental. - Calcule o tempo até o pico como o intervalo entre o momento do corte e o sinal máximo de emissão. Calcule a inclinação máxima da explosão de emissão a partir da primeira derivada do sinal corrigido pela linha de base, utilizando a média das inclinações progressiva e regressiva entre pontos de dados adjacentes13. Defina a magnitude do pico como o valor máximo de emissão observado durante a explosão.
Resultados
Para avaliar se a posição da amostragem de voláteis influencia a detecção do sinal, comparamos duas configurações utilizando injeções controladas de gás na câmara foliar. Em uma configuração, os voláteis foram amostrados diretamente na saída da câmara de troca gasosa modificada (Figura 1). Em contraste, na outra, o ar passava pelos tubos do analisador de troca gasosa antes de atingir o detector. O registro simultâneo de ambos os sinais permitiu a comparação direta de suas dinâmicas temporais.
A injeção de compostos voláteis puros produziu respostas rápidas do detector com picos de emissão distintos (Figura 2). Quando amostrados diretamente na saída da câmara, os sinais aumentaram imediatamente após a injeção, atingiram máximos acentuados e decaíram rapidamente. Quando amostrados após a tubulação do analisador, os mesmos compostos produziram respostas atrasadas e atenuadas.
Para o isopreno (m/z 69), o atraso temporal entre as posições de amostragem foi mínimo, e as magnitudes dos picos permaneceram semelhantes (Figura 2A). Para o Z-3-hexen-1-ol (m/z 83), a passagem pelo tubo reduziu a altura do pico e alargou a curva de decaimento em relação à amostragem direta (Figura 2B). Esse efeito foi mais acentuado para o α-pineno (m/z 137), em que a passagem pelo tubo atenuou fortemente o pico em comparação com o sinal medido diretamente na saída da câmara (Figura 2C).
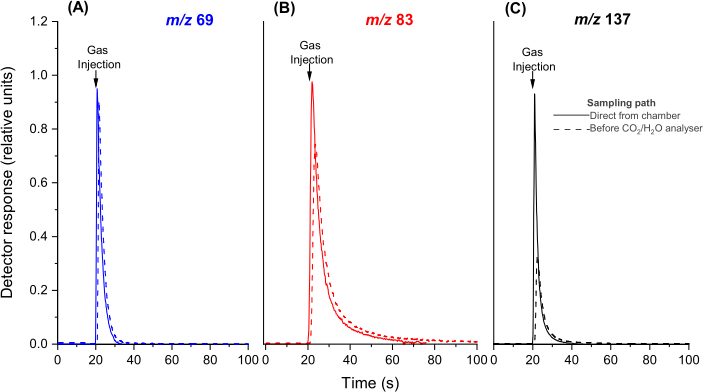
Figura 2: Efeito da posição de amostragem na resposta temporal da detecção de voláteis. As respostas à injeção de (A) isopreno puro (m/z 69), (B) Z-3-hexen-1-ol, detectado principalmente como o íon fragmento m/z 83, e (C) α-pineno (m/z 137) foram registradas em duas posições de amostragem. As linhas contínuas representam a amostragem imediatamente após a saída da câmara, enquanto as linhas tracejadas representam a posição padrão de amostragem, antes dos analisadores de CO₂/H₂O, após a passagem pelo tubo do sistema de troca gasosa. As setas indicam a injeção do gás. As respostas foram normalizadas ao sinal máximo detectado pelo PTR-QMS amostrando ao lado da câmara. Para visualização das diferenças na forma da resposta, os cursos temporais da amostragem padrão foram deslocados em 0,9 s em relação à amostragem direta. Esta figura foi modificada de Rasulov et al.16. Clique aqui para visualizar uma versão maior desta figura.
O corte das folhas provocou emissões rápidas e específicas de voláteis em todas as espécies (Quercus rubra, Acer platanoides e Gossypium hirsutum), e o sistema detectou essas emissões em segundos. Como a configuração dentro da câmara resolveu diretamente o início e o pico das emissões, foi possível quantificar a cinética específica por composto sem interromper a medição.
Em todas as espécies, o sinal dominante induzido por ferimento detectado por PTR-TOF-MS ocorreu em m/z 99, atribuído provisoriamente a compostos do tipo hexenal derivados da LOX com base em estudos anteriores de PTR-TOF-MS (Figura 3, Figura 4 e Figura 5). As emissões máximas variaram de 24–300 nmol m-2 s-1 entre as três espécies, demonstrando a capacidade do protocolo em resolver a dinâmica de COVs induzidos por ferimento em uma ampla faixa de intensidades de emissão (Figura 3, Figura 4 e Figura 5). Em todos os casos, m/z 99 aumentou em segundos após o corte, atingiu o pico em aproximadamente 39–57 s e apresentou a subida mais acentuada entre as massas monitoradas (Tabela 1), identificando-o como o componente agudo predominante do pico de resposta ao ferimento.
A massa 69 permaneceu desprezível antes do corte em A. platanoides (Figura 4B) e G. hirsutum (Figura 5B) e aumentou apenas ligeiramente após a lesão. Em contraste, Q. rubra exibiu emissões basais substanciais antes do corte, seguidas por um aumento transitório moderado e subsequente estabilização, consistente com a liberação constitutiva de isopreno sobreposta à resposta à lesão (Figura 3B).
Outras massas monitoradas revelaram uma sequência temporal clara após o corte. Entre as espécies, m/z 43, 57, 69 e 99 definiram a fase inicial do pico, enquanto m/z 45 e 83 atingiram seu máximo mais tarde (Figura 3, Figura 4 e Figura 5; Tabela 1). Esse padrão foi mais acentuado em A. platanoides, onde m/z 45 começou a aumentar imediatamente após o corte, mas atingiu seu pico somente após cerca de 155 s, indicando uma resposta mais lenta e prolongada do que os fragmentos iniciais relacionados à LOX (Figura 4A; Tabela 1). De forma semelhante, m/z 83 atingiu seu pico mais tarde do que os fragmentos iniciais em todas as espécies e foi especialmente retardado em G. hirsutum, alcançando seu máximo somente após cerca de 223 s (Figura 5A; Tabela 1).
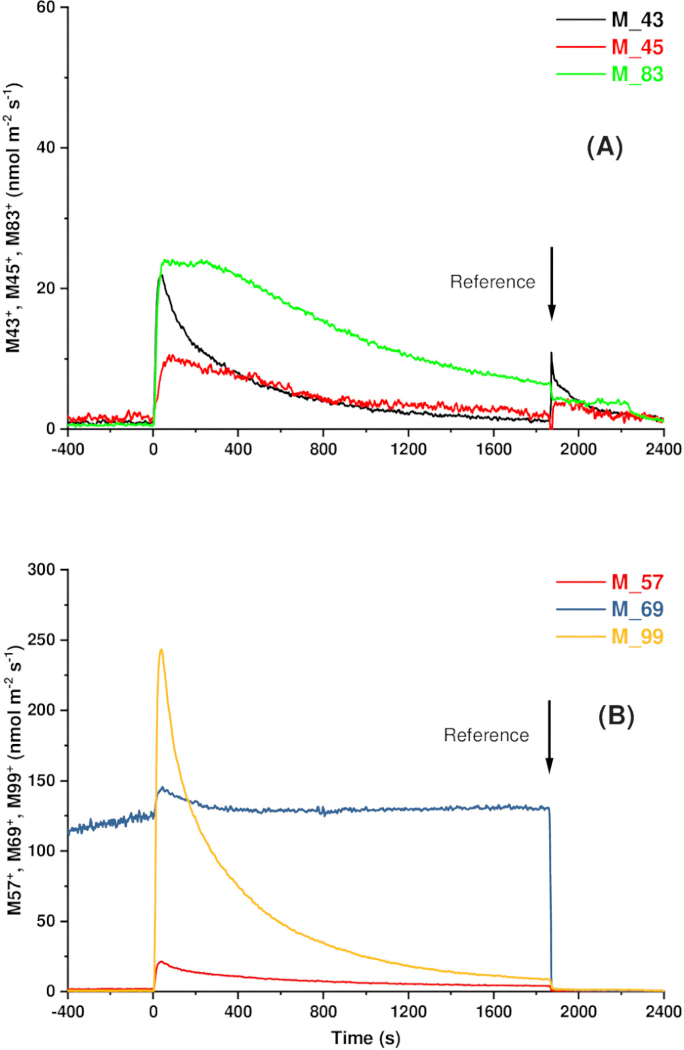
Figura 3: Emissões voláteis induzidas por ferimento com resolução temporal em uma folha representativa de Quercus rubra. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. Em t = 0, a folha foi cortada usando um cortador de folhas dentro da câmara, conforme mostrado na Figura 1, produzindo uma incisão de 10 mm. As emissões voláteis foram monitoradas continuamente com um espectrômetro de massas com tempo de voo por reação de transferência de próton (PTR-TOF-MS), e as taxas de troca gasosa foram medidas com um sistema Walz GFS-3000. Os sinais são apresentados como perfis de emissão representativos corrigidos em relação à linha de base, ilustrando a resolução temporal alcançável com o protocolo. Veja a Tabela 1 para descritores cinéticos representativos extraídos desses perfis de emissão. Clique aqui para visualizar uma versão ampliada desta figura.
Apesar dessas características compartilhadas, as medições representativas ilustram que as trajetórias de emissão podem diferir entre espécies. Em Q. rubra, os valores de m/z 43 e 57 aumentaram rapidamente, mas divergiram durante a fase de decaimento, com m/z 57 diminuindo mais lentamente do que m/z 43 (Figura 3A,B). Em A. platanoides, esse padrão se inverteu, sendo o declínio na fase tardia mais lento para m/z 43 (Figura 4A). Em G. hirsutum, todos os sinais foram menores em magnitude, e os perfis de emissão combinaram picos iniciais rápidos com decaimento mais gradual. Notavelmente, m/z 45 exibiu um pequeno aumento secundário durante a fase de decaimento (Figura 5A).
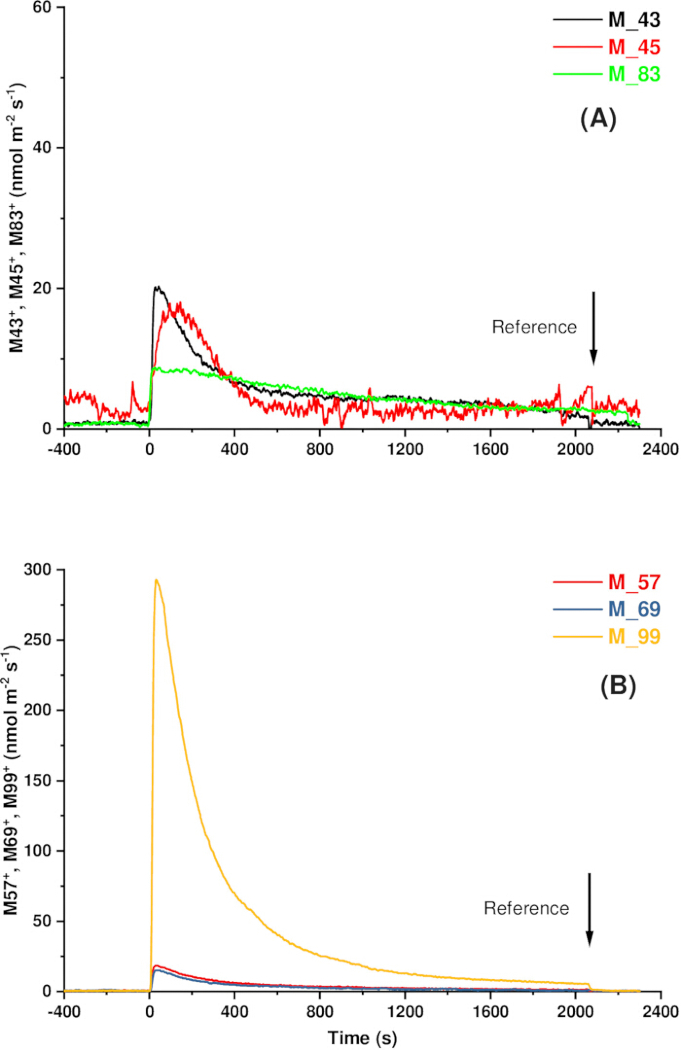
Figura 4: Liberação de voláteis induzida por ferimento com resolução temporal em uma folha representativa de Acer platanoides. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. A folha foi cortada no tempo t = 0 usando um cortador interno à câmara (Figura 1; incisão de 10 mm). As emissões de voláteis foram continuamente medidas com um espectrômetro de massas com tempo de voo e reação de transferência de prótons (PTR-TOF-MS), e as trocas gasosas foram medidas com o sistema Walz GFS-3000. Os sinais são apresentados como perfis de emissão representativos corrigidos em relação à linha de base, ilustrando a resolução temporal alcançável com o protocolo. Veja Tabela 1 para descritores cinéticos representativos extraídos desses perfis de emissão. Clique aqui para visualizar uma versão maior desta figura.
Juntos, esses padrões indicam que as emissões induzidas por ferimento seguem uma cascata específica por composto, e não uma única explosão sincrônica, com componentes iniciais acentuados seguidos por respostas mais amplas e tardias.
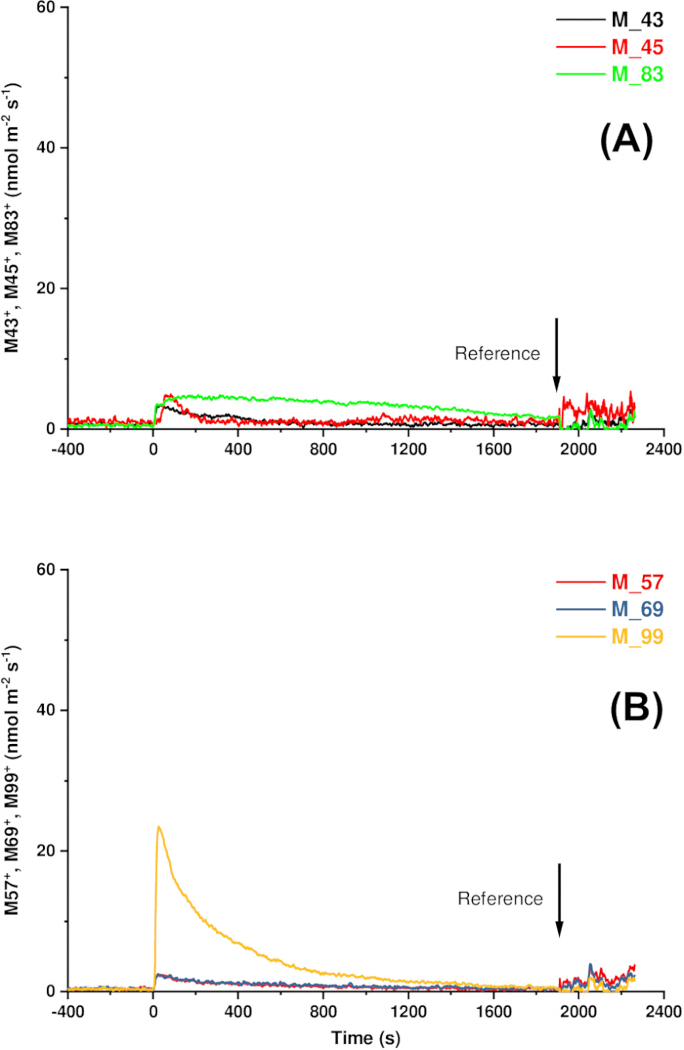
Figura 5: Emissões voláteis induzidas por ferimento com resolução temporal em uma folha representativa de Gossypium hirsutum. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. A folha foi cortada no tempo t = 0 usando um cortador interno à câmara (Figura 1; incisão de 10 mm). As emissões voláteis foram continuamente medidas com um espectrômetro de massas de tempo de voo com reação de transferência de prótons (PTR-TOF-MS), e a troca gasosa foi medida com o sistema Walz GFS-3000. Os sinais são apresentados como perfis de emissão representativos corrigidos em relação à linha de base, ilustrando a resolução temporal alcançável com o protocolo. Veja Tabela 1 para descritores cinéticos representativos extraídos desses perfis de emissão. Clique aqui para visualizar uma versão maior desta figura.
Discussão
O protocolo apresentado aqui permite a análise de alta resolução temporal das emissões voláteis induzidas por ferimento sob condições experimentais controladas. Ao integrar o evento de corte diretamente na câmara foliar e monitorar continuamente os sinais voláteis (Figura 1), o sistema capta a resposta de emissão sem as distorções introduzidas por amostragem tardia, abertura da câmara ou manipulação da folha fora do conjunto de medição. Essas perturbações podem alterar tanto o momento aparente quanto a magnitude dos picos de emissão em medições baseadas em câmaras fechadas3,6,13,17. Ao manter o ferimento e a medição na mesma câmara, o protocolo preserva a cronologia da emissão e permite a quantificação confiável, resolvida no tempo, das respostas voláteis induzidas por estresse.
| Espécies | Massa molecular protonada | Magnitude máxima (nmol m-2 s-1) | Início após o(s) corte(s) | Tempo do pico (s) | Inclinação Máxima (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tabela 1: Valores representativos da magnitude do pico, início da emissão, tempo até o pico e inclinação máxima extraídos de medições contínuas por PTR-TOF-MS após ferimento foliar. Os valores incluem magnitude do pico, início da emissão, tempo até o pico e inclinação máxima. Esses valores ilustram o tipo de descritores cinéticos gerados pelo protocolo e são fornecidos como exemplos de prova de conceito, e não como comparações estatísticas entre espécies. O início da emissão foi definido como o primeiro aumento detectável acima da linha de base pré-corte após o ferimento, o tempo até o pico como o intervalo entre o corte e o sinal máximo, e a inclinação máxima como a máxima derivada primeira do sinal corrigido em relação à linha de base.
A comparação das posições de amostragem mostrou que a configuração da amostragem afetou significativamente o sinal registrado (Figura 2). A amostragem direta na saída da câmara preservou a formação rápida dos picos, enquanto a amostragem após a tubulação do analisador atrasou a formação dos picos e atenuou a intensidade do sinal. Esse efeito foi desprezível para o isopreno (m/z 69), moderado para m/z 83 e mais acentuado para o α-pineno (m/z 137), o que está de acordo com uma distorção crescente relacionada ao transporte para compostos mais pesados ou mais reativos10,21. A adsorção às superfícies do tubo, o transporte retardado através da linha de amostragem e as interações químicas durante o transporte podem alargar ou atenuar os picos de emissão, alterando assim a interpretação da cinética dos voláteis9,12,21.
Uma vantagem central do presente protocolo é a sua capacidade de resolver a fase inicial das emissões voláteis induzidas por ferimento. Em todas as espécies, essa fase inicial surgiu em segundos após o corte e foi dominada por um pico em m/z 99, que apresentou tanto a maior magnitude de pico quanto a inclinação máxima mais acentuada (Figura 3, Figura 4 e Figura 5; Tabela 1). Os máximos dos picos ocorreram em cerca de 40–57 s após o corte, substancialmente antes dos 100–280 s normalmente relatados em estudos anteriores13,19,22. Esse deslocamento provavelmente reflete a sincronização entre o ferimento e a detecção dentro da câmara, minimizando atrasos causados pelo manuseio da folha e pelo transporte através da linha de amostragem.
Ao sincronizar o ferimento e a detecção dentro do mesmo compartimento, o protocolo também revelou uma cascata em nível de fragmentos na qual m/z 43 e 57 aumentaram imediatamente após o corte, enquanto m/z 45 atingiu seu pico mais tarde e exibiu dinâmica de decaimento mais ampla (Figura 3, Figura 4 e Figura 5; Tabela 1). Essa sequência permanece coerente com estudos anteriores baseados em PTR, apesar da ausência de separação em nível de compostos em comparação com a GC-MS, na qual as emissões iniciais são dominadas por aldeídos C6 derivados da lipoxigenase, seguidos por álcoois e produtos relacionados19,22. De acordo com estudos anteriores utilizando PTR-TOF-MS, o sinal dominante em m/z 99 corresponde a compostos do tipo hexenal, cujo fragmento de desidratação em m/z 81 foi identificado como um sinal inicial importante, enquanto m/z 83 reflete contribuições de hexenóis e hexanal22. Essa sequência reforça ainda mais uma hierarquia dependente do tamanho e da via metabólica, na qual compostos oxigenados menores e rapidamente formados são liberados antes de moléculas maiores ou mais complexas13,23.
Além dos fragmentos derivados da lipoxigenase, o sinal em m/z 69, atribuído provisoriamente ao isopreno, exibiu trajetórias de emissão distintas entre os exemplos representativosFigura 3, Figura 4, e Figura 5). Q. rubra apresentaram emissões substanciais na linha de base, enquanto A. platanoides e G. hirsutum produziram apenas níveis traço, consistentes com suas características conhecidas de emissão24,25. Entre espécies, o isopreno respondeu apenas fracamente à lesão, consistente com seu de novo síntese via a via MEP, que depende do metabolismo fotossintético e, portanto, é afetada indiretamente apenas por lesões mecânicas15.
Essas dinâmicas rápidas refletem respostas bioquímicas bem estabelecidas das folhas ao dano mecânico. A lesão mecânica ativa rapidamente a via da lipoxigenase, que produz pulsos transitórios de voláteis C6 e compostos oxigenados relacionados a partir da oxidação de lipídios de membrana5,7,17,22,23. Essas emissões apresentam dinâmica fortemente assimétrica, com um aumento rápido após a ruptura do tecido, seguido por uma fase de decaimento mais lenta16. Esse padrão assimétrico no sistema atual se desenvolve em uma escala de tempo de segundos a minutos, conforme ilustrado pelos descritores cinéticos representativos resumidos na Tabela 1, enquanto estudos que lesionam folhas fora da câmara relatam picos retardados13. Essa resolução mais precoce capta o sinal desde seu início, reduz o alargamento temporal e permite a quantificação direta das fases de aumento e de decaimento. Essas características cinéticas juntas definem a trajetória completa da emissão, que abordagens de amostragem discreta ou com atraso frequentemente subestimam5,15.
Padronizar o evento de corte dentro da câmara melhora ainda mais a reprodutibilidade experimental ao garantir geometria e gravidade consistentes da lesão, ambas determinadas pelo comprimento da incisão e que influenciam diretamente a magnitude da emissão de COVs5,18,22. No entanto, como a lâmina de corte ocupa uma posição fixa dentro da câmara, o posicionamento da incisão é influenciado pelo tamanho e morfologia da folha, bem como pela necessidade de manter um selamento hermético. Sempre que possível, a incisão deve ser posicionada na lâmina interveinal, evitando o nervo central e outras nervuras principais. Contudo, a exclusão completa das nervuras principaisnão pode ser sempre garantida, especialmente em folhas estreitas ou pequenas. Como os danos às nervuras principais podem alterar substancialmente as emissões de COVs induzidas por lesão5, a posição da incisão deve ser mantida tão consistente quanto possível entre as amostras dentro do mesmo experimento.
Manter condições ambientais estáveis é igualmente importante para obter medições reprodutíveis de COVs induzidos por ferimento. Como a produção, liberação e transporte de COVs são influenciados por condições ambientais, a temperatura, umidade, irradiância, concentração de CO2 e fluxo de ar na câmara foram mantidas constantes durante todas as medições. A padronização dessas variáveis reduz ainda mais a variabilidade experimental e melhora a reprodutibilidade da cinética de COVs induzidos por ferimento. Além disso, como o protocolo é totalmente compatível com medições simultâneas de trocas gasosas, aplicações futuras podem relacionar diretamente a dinâmica de emissão de COVs às alterações na fotossíntese e na transpiração sob condições experimentais idênticas26. Tais medições podem ajudar a distinguir a regulação bioquímica da produção de COVs de processos físicos que afetam a liberação de voláteis, incluindo a evaporação aumentada de compostos oxigenados solúveis em água a partir do tecido ferido16. Assim, as diferenças entre tratamentos ou espécies devem ser interpretadas apenas quando as condições ambientais, a geometria do ferimento e o material vegetal, incluindo o estágio de desenvolvimento da folha, forem padronizados ao longo do experimento12.
Embora abordagens anteriores com câmaras internas demonstrem a viabilidade de medições em tempo real de COVs induzidos por ferimento, elas também revelaram importantes limitações técnicas. Cortes irregulares, tamanho inconsistente do ferimento e perturbações no selamento da câmara introduziram variabilidade entre as medições18,19. Além disso, essas abordagens frequentemente dependiam de volumes relativamente grandes de câmara, o que reduzia a renovação do ar, atrasava a formação do pico e ampliava os perfis de sinal dos voláteis22,27. Tais efeitos tornam-se mais acentuados para compostos menos voláteis e podem variar com a temperatura21. Em contraste, a câmara menor utilizada no presente protocolo (~8 mL de volume interno) reduz o tempo de residência do ar, contribuindo para o início mais acentuado observado em nossas medições (Figura 1).
O protocolo foi desenvolvido para experimentos fisiológicos controlados, e não para o monitoramento direto in situ de ecossistemas florestais. As medições são realizadas em folhas ainda ligadas à planta, sob condições ambientais bem definidas, minimizando assim a variabilidade experimental e permitindo uma caracterização precisa da cinética de VOCs induzida por lesões. Aplicações em campo dependerão da disponibilidade de sistemas portáteis de troca gasosa e detecção de VOCs. No entanto, como o mecanismo integrado de corte pode ser adaptado a diferentes configurações de câmara com apenas pequenas modificações, a abordagem deverá ser facilmente transferível para plataformas portáteis de troca gasosa e outras plataformas experimentais à medida que essas tecnologias se tornarem disponíveis. Essa flexibilidade amplia as oportunidades para investigar respostas rápidas ao estresse em plantas, preservando ao mesmo tempo a resolução temporal necessária para uma caracterização precisa da dinâmica de emissão de VOCs, facilitando assim estudos mecanicistas das primeiras respostas fisiológicas e bioquímicas ao dano foliar.
Divulgações
Os autores declaram não haver conflitos de interesse.
Agradecimentos
Agradecemos o financiamento do Conselho de Pesquisa da Estônia (PRG2207) e do Ministério da Educação e Pesquisa da Estônia (Centro de Excelência Agro-CropFuture, “Agroecologia e novas culturas em climas futuros”, TK200U1).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Sistema GC-MS com desorvedor térmico TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | Sistema GC-MS com desorvedor térmico TD-20. www.shimadzu.com |
| Sistema de troca gasosa GFS-3000 | Walz GmbH | GFS-3000 | Medições de troca gasosa foliar. www.walz.com |
| Hélio de alta pureza (99,999%) | Fornecedor local | N/A | Utilizado para condicionamento do cartucho adsorvente e desorção térmica em GC-MS. www.airliquide.com (ou fornecedor equivalente). |
| Padrão de calibração de isopreno | Sigma-Aldrich Chemie GmbH | Custom | Padrão personalizado de calibração de isopreno (3,43 ppm). www.sigmaaldrich.com |
| Mastique selante de baixa emissão | Fornecedor local | N/A | Utilizado para selar o ponto de inserção do cortador na câmara. |
| Cartucho adsorvente multicamada de aço inoxidável | Supelco | Custom | Comprimento de 10,5 cm × diâmetro interno de 3 mm; preenchido com Carbotrap C (0,2 g, malha 20–40), Carbopack B (0,1 g, malha 40–60) e Carbotrap X (0,1 g, malha 20–40). Utilizado para identificação opcional off-line de COVs por GC-MS. www.sigmaaldrich.com |
| Bomba portátil de amostragem de ar com fluxo constante | SKC Inc. | 210-1003MTX | Bomba portátil de amostragem de ar com fluxo constante. |
| Espectrômetro de massas PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | Detecção de COVs. www.ionicon.com |
| Fio de solda prateada | Fornecedor local | N/A | Utilizado para fixar uma lâmina de barbear a uma haste de aço inoxidável. |
| Chapa de latão flexível (0,2 mm de espessura) | Fornecedor local | N/A | Suportes flexíveis utilizados para fixar o cortador. |
| Haste de aço inoxidável (1 mm de diâmetro) | Fornecedor local | N/A | Haste de suporte do cortador. |
| Agulha de seringa de aço inoxidável (1,6 mm de diâmetro externo) | Fornecedor local | N/A | Carcaça para lâmina de corte rotativa. |
| Tampões de teflon | Fornecedor local | N/A | Utilizados para selar a carcaça do cortador permitindo a rotação. |
| Conector em T de teflon | Fornecedor local | N/A | Instalado próximo à saída da câmara para reduzir o comprimento do tubo. |
| Tubos de teflon (FEP ou PTFE) | Fornecedor local | N/A | Linha de amostragem de COVs entre a câmara e os detectores. |
| Mistura gasosa de calibração de COVs | Ionimed GmbH | Custom | 1 ppm de cada composto em N2; utilizada para calibração do PTR-TOF-MS. www.ionimed.com |
Referências
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve