Este artigo apresenta um protocolo de transfeção reversa otimizado para a entrega eficiente de mRNA modificado de nucleosídeo da telomerase reversa humana (hTERT) (mRNA de hTERT) em fibroblastos humanos senescentes. O pré-revestimento das superfícies de cultura com complexos de mRNA de hTERT e lipídeos aumenta a captação, permitindo a ativação da telomerase, o alongamento dos telômeros e uma rejuvenescência parcial. As culturas acabam por reentrar na senescência ou em crise sem imortalização.
Artigo de método
Protocolo de Transfecção Reversa Otimizado para a Entrega de mRNA de Telomerase em Fibroblastos Humanos em Senescência Precoce
* These authors contributed equally
Neste artigo
Resumo
Resumo
A senescência celular está associada a alterações profundas na fisiologia celular, incluindo redução da fluidez da membrana, tráfego endossomal prejudicado, capacidade endocítica diminuída e aumento da atividade de RNase extracelular, todos os quais dificultam a entrega eficiente de mRNA. Essas barreiras têm limitado a aplicação de abordagens baseadas em RNA em células senescentes, particularmente para a entrega de transcritos terapêuticos grandes. Este protocolo descreve um método de transfeção reversa otimizado para a entrega eficiente de RNA mensageiro (mRNA) modificado em fibroblastos humanos senescentes. Embora o mRNA da transcriptase reversa telomerase humana (hTERT) tenha sido usado como transcrito modelo, o fluxo de trabalho é amplamente aplicável a outros mRNAs. Em contraste com os métodos convencionais de transfeção, nos quais os complexos RNA-lipídio são adicionados ao meio de cultura após a adesão celular, a transfeção reversa deposita os complexos na superfície de cultura antes da semeadura das células, permitindo a interação direta entre as células em adesão e os complexos de transfeção. Para maximizar a eficiência de transfeção, o protocolo incorpora mRNA modificado com nucleosídeos contendo pseudouridina e 5-metilcitidina, caudas poli(A) alongadas, cronometragem otimizada da formação de complexos, inibição de RNase, elevação transitória do pH endossomal com cloroquina, aumento da densidade de semeadura celular e períodos de incubação prolongados. Com esta abordagem, eficiências de transfeção de aproximadamente 50%–80% foram alcançadas em fibroblastos senescentes após a entrega de um transcrito de mRNA hTERT de 5 kb. A atividade máxima da telomerase foi detectada 24–48 h após a transfeção. Um único ciclo de transfeção produziu alongamento mensurável dos telômeros, enquanto três transfeções sequenciais resultaram em extensão substancial, mas finita, dos telômeros. A reversão parcial dos fenótipos associados à senescência foi detectável dentro de 72–96 h, incluindo redução da atividade da β-galactosidase associada à senescência, diminuição da expressão de p16 e p21, restauração da morfologia celular e prolongamento da longevidade replicativa. O mRNA hTERT entregue foi degradado dentro de 72–96 h, e nenhuma imortalização foi observada. Este protocolo fornece uma abordagem prática para a entrega transitória de mRNA em células senescentes e pode ser adaptado a uma ampla variedade de tipos celulares e espécies.
Introdução
A abordagem da transfeção reversa representa uma adaptação metodológica essencial para células senescentes, superando as barreiras fundamentais que essas células impõem aos métodos padrão de transfeção. Diferentemente da transfeção direta, na qual as células são semeadas previamente e deixadas aderirem antes da adição dos complexos de transfeção, a transfeção reversa envolve a adição de células em suspensão diretamente sobre complexos pré-formados de mRNA de hTERT com lipídeos. Essa técnica aumenta drasticamente a eficiência de transfeção em células senescentes, maximizando a exposição aos complexos de transfeção durante a fase crítica de adesão, quando a remodelação da membrana é mais ativa.
A mudança conceitual central do protocolo é tratar as células senescentes como um problema distinto de entrega, e não apenas como versões difíceis de transfectar de células jovens. Na senescência, alterações globais na composição lipídica da membrana, incluindo fosfolipídios, esfingolipídios e colesterol, modificam a fluidez da membrana, a curvatura e as interações proteína-lipídio, ao mesmo tempo em que contribuem para o fenótipo secretório associado à senescência1,2,3. As células senescentes também apresentam redução da endocitose mediada por clatrina e caveolas e alterações no tráfego endocítico, impulsionadas em parte pela subexpressão da anfifisina-1 e mudanças compensatórias na expressão da caveolina, o que atenua a captação e sinalização mediadas por receptores4,5,6. Paralelamente, o eixo do endossomo tardio-lisossomo regulado pela Rab7 e a rede mais ampla endossomal-autofágica-lisossomal (EAL) tornam-se disfuncionais, com a Rab7 atuando como reguladora principal da maturação endolisossomal e da fusão autofagossomo-lisossomo, processos perturbados no envelhecimento e na neurodegeneração7.
Células senescentes frequentemente regulam positivamente múltiplos componentes do sistema de processamento e adaptação lisossomal (LYPAS), incluindo a biogênese lisossomal mediada por TFEB/TFE3 e a autofagia mediada por chaperonas, aumentando assim a massa lisossomal. No entanto, lisossomos individuais frequentemente apresentam pH luminal elevado, danos na membrana e capacidade proteolítica alterada, contribuindo para a disfunção lisossomal apesar de sua abundância aumentada8,9,10,11. Em conjunto, essas alterações podem direcionar material internalizado de forma mais eficiente para compartimentos endolisossomais degradativos, aumentando a probabilidade de que o RNA ou proteína entregue seja degradado antes da liberação produtiva no citosol9,10,11. A transfeção reversa direciona-se diretamente à janela mais precoce em que as membranas estão em remodelação, durante a adesão, forçando um contato sustentado e de alta afinidade entre as células e os complexos de mRNA-lipídio, contornando pelo menos parcialmente a endocitose em estado estacionário prejudicada em células senescentes totalmente aderidas4,5,6,12.
Do ponto de vista do design do RNA, o protocolo parte do princípio de que, em um contexto de envelhecimento, uma simples base com cap e cauda é insuficiente: a modificação completa dos nucleosídeos (por exemplo, pseudouridina ou N1‑metilpseudouridina mais 5‑metilcitosina) é considerada imprescindível para desacoplar a tradução da detecção pelos receptores tipo Toll endossomais e da indução do interferon tipo I. Estudos fundamentais demonstraram que a incorporação de nucleosídeos modificados no RNA suprime a ativação de TLR3, TLR7 e TLR8 e reduz acentuadamente a produção de citocinas pelas células dendríticas, fornecendo uma base mecanicista para a menor imunogenicidade inata das atuais plataformas de mRNA com nucleosídeos modificados13. Revisões mais recentes sobre vacinas mRNA–LNP e medicamentos baseados em mRNA enfatizam a engenharia coordenada do cap 5′, das UTRs, da sequência codificante e da cauda poli(A) para aumentar a estabilidade e a tradução in vivo, ao mesmo tempo que se minimiza a ativação da imunidade inata14. Em particular, o comprimento e a arquitetura da cauda poli(A) surgiram como determinantes-chave da estabilidade e do rendimento traducional do mRNA transcrito in vitro, o que tem motivado o uso de designs poli(A) alongados ou engenheirizados em mRNA terapêutico15.
Sobreposto a isso, o protocolo incorpora explicitamente proteção contra RNases extracelulares e endossomais durante a formação e captação dos complexos, juntamente com uma janela definida de escape endossomal utilizando um agente lisossomotrópico transitório, como a cloroquina16,17. A cloroquina tem sido amplamente utilizada como sonda funcional para barreiras endossomais e pode aumentar significativamente o engajamento com o alvo e o silenciamento por siRNA ou oligonucleotídeos antissenso, promovendo a ruptura da membrana endossomal e a liberação da carga de ácidos nucleicos no citosol18. Ao mesmo tempo, imagens de células vivas e de super-resolução de mRNA entregue por LNPs demonstraram que a entrega produtiva é fortemente limitada por eventos raros de escape de endossomos iniciais/recicláveis, e não pela captação inicial em si, destacando a importância de projetar deliberadamente uma etapa de escape endossomal para terapêuticas baseadas em mRNA19.
Coletivamente, essas alterações associadas à senescência nas dinâmicas da membrana, no tráfego endocítico, no processamento lisossomal e na ativação da imunidade inata criam barreiras substanciais para a entrega eficiente de mRNA. A estratégia de transfeção reversa descrita aqui foi desenvolvida para superar essas limitações, combinando engenharia otimizada de mRNA, proteção contra RNases, escape endossomal aprimorado e exposição direta de células em adesão a complexos pré-formados de mRNA e lipídios. Embora o mRNA de hTERT seja utilizado como carga modelo, o fluxo de trabalho é amplamente aplicável à entrega de outros transcritos terapêuticos de mRNA de grande porte em populações celulares senescentes e difíceis de transfectar20,21,22.
Protocolo
1. Transcrição in vitro de mRNA de hTERT
- Transcrição in vitro (IVT) com ARCA e ΨUTP
- Prepare uma reação de IVT de 20 µL conforme a Tabela 1. Ajuste a reação linearmente se for necessário um rendimento maior.
- Combine todos os componentes da reação, exceto a polimerase de RNA T7, em um tubo livre de RNase. Adicione a polimerase de RNA T7 por último, misture suavemente e centrifugue brevemente o tubo.
- Incube a reação a 37 °C por 0,5–4 h.
NOTA: Ajuste o tempo de incubação de acordo com o comprimento do molde. Incube reações contendo moldes menores (aproximadamente 500 pb) por cerca de 30 min e reações contendo moldes maiores (aproximadamente 4 kb) por 3–4 h.
- Tratamento com DNase
- Adicione 1 µL de DNase I livre de RNase diretamente à mistura da reação de IVT.
- Incube a reação a 37 °C por 15 min.
NOTA: O tratamento com DNase deve ser realizado diretamente na reação de IVT, sem purificação prévia do mRNA sintetizado.
- Purificação do mRNA
- Adicione 115 µL de H₂O livre de nucleases para diluir a mistura da reação.
- Purifique o mRNA utilizando um kit de purificação de RNA conforme as instruções do fabricante.
- Elua o mRNA purificado em 20–30 µL de H₂O livre de nucleases.
- Meça a pureza do mRNA por espectrofotometria e verifique a integridade do RNA por eletroforese em gel de agarose desnaturante a 1,0–1,5% ou em gel de poliacrilamida de baixa porcentagem.
- Adição da cauda poli(A)
- Prepare uma reação de adição da cauda poli(A) de 50 µL conforme a Tabela 2. Misture suavemente os componentes da reação e incube a 37 °C por 30–60 min.
NOTA: Ajuste o tempo de incubação de acordo com a quantidade de RNA utilizado. - Termine a reação adicionando 2 µL de EDTA 0,5 M (pH 8,0).
- Prepare uma reação de adição da cauda poli(A) de 50 µL conforme a Tabela 2. Misture suavemente os componentes da reação e incube a 37 °C por 30–60 min.
- Purificação final e controle de qualidade
- Purifique o mRNA com cauda poli(A) utilizando um kit de purificação de RNA conforme as instruções do fabricante.
- Elua o mRNA purificado em 20–30 µL de H₂O livre de nucleases.
- Avalie a qualidade do mRNA antes de prosseguir para a transfeção
- Meça a concentração do mRNA a 260 nm e determine a pureza utilizando as razões A260/A280 e A260/A230. Utilize preparações de mRNA com valores de A260/A280 em torno de 2,0 e valores de A260/A230 superiores a 2,0.
- Avalie a integridade do mRNA por eletroforese em gel ou por sistema de análise de RNA conforme as instruções do fabricante.
- Confirme o comprimento da cauda poli(A) por RT-PCR ou análise no Bioanalyzer. Verifique se o comprimento da cauda poli(A) está entre 120 e 200 nucleotídeos.
- Aliquote o mRNA purificado e armazene os alíquotas a −80 °C para minimizar ciclos de congelamento-descongelamento.
2. Transfecção reversa
- Dia −1: Preparação pré-transfecção
- Verificar o fenótipo senescente
- Realizar coloração por β-galactosidase associada à senescência (SA-β-gal) em uma amostra representativa de células. Verificar que mais de 70% das células são positivas.
- Confirmar a expressão dos marcadores de senescência (p16 e p21) por qRT-PCR ou imunofluorescência.
- Determinar a viabilidade celular e verificar que a viabilidade excede 90%.
- Preparar reagentes
- Pré-aquecer o meio de cultura completo a 37 °C.
- Pré-aquecer a solução salina tamponada com fosfato (PBS) a 37 °C.
- Preparar meio Opti-MEM I fresco.
NOTA: Não adicionar inibidor de RNase ao Opti-MEM I antes do uso.
- Verificar o fenótipo senescente
- Dia 0: Dia da transfeção
NOTA: Permitir aproximadamente 3 h entre a preparação dos reagentes e a incubação das células transfectadas.- Preparação do mRNA de hTERT
- Descongelar o mRNA de hTERT em gelo. Medir a concentração do mRNA e utilizar preparações com concentrações entre 0,5 e 1,0 µg/µL.
- Diluir a quantidade desejada de mRNA de hTERT em Opti-MEM I de acordo com o formato de cultura utilizado (Tabela 3). Adicionar inibidor de RNase até uma concentração final de 0,5–1,0 U/µL e misturar suavemente.
- Mantém o mRNA diluído em gelo até a formação do complexo.
NOTA: Adicionar o inibidor de RNase imediatamente antes do uso. Não armazenar mRNA com inibidor de RNase, pois sua atividade diminui após o congelamento.
- Preparação do reagente de transfeção
- Combinar 6,0 µL do reagente de transfeção com 100 µL de Opti-MEM I em um tubo estéril livre de RNase. Misturar suavemente por pipetagem.
- Incubar a mistura à temperatura ambiente por 5 min.
NOTA: Para construtos grandes de mRNA de hTERT (~5 kb), otimizar as proporções de reagente para mRNA entre 0,4 e 0,6 µL de reagente por 100 ng de mRNA.
- Formação do complexo mRNA-lipídico
- Adicionar a solução diluída de mRNA de hTERT (100 µL) à solução diluída do reagente de transfeção (106 µL). Misturar suavemente pipetando 5–6 vezes.
- Incubar a mistura à temperatura ambiente por 15–20 min.
- Não exceder 30 min de complexação.
- Verificar a formação bem-sucedida do complexo pela aparência de uma solução levemente turva.
NOTA: Realizar a preparação das células durante o período de complexação.
- Preparação das células para transfeção reversa
- Aspirar o meio de cultura das culturas celulares senescentes.
- Lavar as células uma vez com PBS pré-aquecido (2 mL por poço de uma placa de 6 poços).
- Adicionar 500 µL de tripsina-EDTA 0,05% por poço.
- Incubar as células a 37 °C por 3–5 min.
- Neutralizar a tripsina com 3 mL de meio completo contendo soro.
- Triturar suavemente as células para obter uma suspensão unicelular.
- Determinar o número de células utilizando um hemocitômetro ou contador celular automatizado.
- Preparar uma suspensão contendo 2,0–2,5 × 10⁵ células por poço em meio completo.
NOTA: Evitar a tripsinização prolongada, pois as células senescentes são altamente suscetíveis ao estresse mecânico. Manter as células em suspensão; não pré-semear antes da transfeção reversa.
- Transfeção reversa
- Preparação da placa de cultura
- Adicionar 500 µL de poli-L-lisina 0,01% a cada poço de uma placa de 6 poços e incubar por 30 min à temperatura ambiente.
- Aspirar a solução de revestimento imediatamente antes do uso.
- Adicionar 200 µL do complexo mRNA-lipídico de hTERT ao centro de cada poço.
- Incubar a placa a 37 °C e 5% CO₂ por 30 min.
NOTA: Realizar o revestimento da placa em paralelo com a formação do complexo e a preparação das células.
- Preparação da suspensão celular
- Suspender 2,0–2,5 × 10⁵ células em 1800 µL de meio completo sem antibiótico.
- Resuspender suavemente as células para obter uma suspensão unicelular uniforme.
NOTA: Utilizar meio sem antibiótico durante a transfeção.
- Semeação celular sobre os complexos
- Adicionar 1800 µL da suspensão celular diretamente sobre os complexos pré-formados de mRNA-lipídico de hTERT.
- Inclinar suavemente a placa 2–3 vezes em cada direção para distribuir as células uniformemente.
NOTA: Não pipetar a suspensão após a adição das células, pois isso pode perturbar os complexos mRNA-lipídicos.
- Incubação celular
- Incubar as células a 37 °C em incubadora umidificada contendo 5% CO₂ por 6–8 h.
- Monitorar a adesão celular por microscopia de luz 2–3 h após a transfeção.
- Verificar que as células estão distribuídas uniformemente e começando a aderir à superfície de cultura.
NOTA: Um número excessivo de células flutuantes ou detritos celulares pode indicar citotoxicidade associada à transfeção.
- Preparação da placa de cultura
- Preparação do mRNA de hTERT
3. Mitigação da citotoxicidade
- Reduza o período de exposição à transfeção para 48 h se a perda celular exceder 20%.
- Suplemente os cultivos com inibidor de ROCK Y-27632 a 10 µM durante o período de transfeção para melhorar a sobrevivência celular.
- Após 6–8 h de transfeção, aspire cuidadosamente o meio de transfeção, minimizando a perturbação de células parcialmente aderidas. Deixe aproximadamente 100 µL de meio residual em cada poço.
- Adicione 1 mL de meio de crescimento completo fresco, pré-aquecido e suplementado com 15% de FBS, a cada poço.
- Adicione cloroquina para uma concentração final de 10–20 µM imediatamente após a troca do meio.
- Incube os cultivos por mais 2 h a 37 °C em incubadora umidificada contendo 5% de CO₂.
- Substitua o meio contendo cloroquina por meio de crescimento completo fresco.
- Retorne os cultivos à incubadora para crescimento contínuo.
NOTA: Monitore a morfologia e a viabilidade celular durante todo o período de recuperação. Desprendimento celular excessivo ou debris podem indicar citotoxicidade associada à transfeção.
4. Análise pós-transfeção
- Avalie a expressão da proteína TERT 24–48 h após a transfeção.
- Meça os níveis da proteína TERT por meio de western blot ou coloração por imunofluorescência, conforme procedimentos laboratoriais padrão.
- Meça a atividade da telomerase durante o mesmo intervalo utilizando um ensaio apropriado de atividade da telomerase.
NOTA: A atividade da telomerase geralmente diminui após 48 h devido à degradação do mRNA de hTERT entregue de forma transitória. - Avalie o comprimento dos telômeros 48–72 h após a transfeção utilizando PCR quantitativa multiplex monocromática (MMqPCR) ou outro método equivalente de análise de comprimento de telômeros.
NOTA: Pode-se observar alongamento detectável dos telômeros após entrega bem-sucedida do mRNA de hTERT. - Avalie fenótipos associados ao envelhecimento e à rejuvenescência 7 dias após a transfeção
- Meça a atividade da β-galactosidase associada ao envelhecimento (SA-β-gal).
- Meça os níveis de expressão de p16 e p21.
- Avalie a expressão de Ki67.
- Examine a morfologia celular por microscopia de luz.
NOTA: Compare culturas tratadas com controles senescentes não tratados ou submetidos à transfeção simulada para avaliar alterações em fenótipos associados ao envelhecimento e características proliferativas.
5. Protocolo de administração repetida de doses (Opcional)
- Realize a transfeção inicial conforme descrito nas Seções 2–4.
- Repita as transfeções de acordo com o seguinte cronograma: Dia 0: Primeira transfeção; Dia 5: Segunda transfeção; Dia 10–12: Terceira transfeção.
- Mantenha as células como culturas aderentes e não as tripsinize antes das transfeções subsequentes.
- Prepare complexos frescos de mRNA de hTERT com lipídeos conforme descrito nas Seções 2.2.1–2.2.3.
- Aspire o meio de cultura de cada poço.
- Adicione 200 µL de complexos de mRNA de hTERT com lipídeos diretamente a cada poço.
- Adicione 800 µL de meio F-10 completo fresco imediatamente após a adição dos complexos.
- Incube as células por 4–6 h a 37 °C em incubadora umidificada contendo 5% de CO₂.
- Substitua o meio de transfeção por meio completo fresco.
NOTA: Limite o tratamento a um máximo de três ciclos de transfeção para minimizar a citotoxicidade cumulativa associada à transfeção.
6. Protocolo de transfeção direta (2 µg/mL, formato de placa de 6 poços)
- Dia −1: Semeadura celular
- Desanexar fibroblastos senescentes ou pré-senescentes utilizando tripsina-EDTA a 0,05%.
- Neutralizar a tripsina com meio de cultura completo.
- Determinar o número e a viabilidade celular.
- Semeie as células em placas de 6 poços numa densidade de 2,0–2,5 × 10⁵ células por poço.
- Incubar as células durante a noite a 37 °C em incubadora umidificada contendo 5% de CO₂ até atingirem cerca de 60–80% de confluência.
- Dia 0: Preparação dos complexos de hTERT mRNA–reagente
- Descongele uma alíquota de hTERT mRNA modificado com nucleosídeos em gelo.
- Dilua o hTERT mRNA em Opti-MEM até uma concentração final de 2 µg/mL em um tubo estéril livre de RNase (Tubo A).
- Adicione inibidor de RNase ao Tubo A até uma concentração final de 0,5–1,0 U/µL e misture suavemente.
- Dilua o reagente de transfeção em Opti-MEM em um segundo tubo livre de RNase (Tubo B), utilizando 0,4–0,6 µL de reagente por 100 ng de mRNA.
- Adicione o conteúdo do Tubo B gota a gota ao Tubo A, misturando suavemente.
- Incube a mistura à temperatura ambiente por 15–20 min.
- Dia 0: Transfeção direta
- Confirme que as células estão com 60–80% de confluência e apresentam morfologia saudável.
- Aspire o meio de cultura.
- Lave as células uma vez com 1–2 mL de PBS pré-aquecido.
- Adicione 0,5 mL de meio completo ou com redução de soro, pré-aquecido, a cada poço.
- Opcionalmente, adicione cloroquina até uma concentração final de 10–20 µM.
- Adicione 0,5 mL dos complexos de hTERT mRNA–reagente preparados na Etapa 6.2.6 a cada poço.
- Balançe suavemente a placa para distribuir os complexos uniformemente.
- Incube as células por 4–6 h a 37 °C em incubadora umidificada contendo 5% de CO₂.
NOTA: Prolongue o período de incubação para 6–8 h para células senescentes, se necessário. - Aspire o meio de transfeção.
- Adicione 2,0 mL de meio completo fresco a cada poço.
- Realize as análises pós-transfeção conforme descrito na Seção 4.
NOTA: Utilize o mesmo lote de hTERT mRNA, reagente de transfeção e dose nominal ao comparar condições de transfeção direta e reversa.
Resultados
O modRNA d2EGFP-T2A-hTERT foi projetado como um quadro de leitura aberto híbrido no qual um repórter de EGFP instável (d2EGFP) foi ligado à TERT humana por meio de um peptídeo auto-clivável T2A. As sequências completas de nucleotídeos e proteínas de todas as construções estão fornecidas no Arquivo Suplementar 1. A sequência codificadora foi flanqueada por uma região não traduzida (UTR) 5′ sintética e pela UTR 3′ da β-globina humana para aumentar a eficiência traducional e a estabilidade do mRNA (Figura 1A). O cassete de expressão também continha uma sequência sintética estabilizadora de enzima (Es) e uma sequência sintética potencializadora da transcrição (TEs), projetadas para melhorar a processividade da polimerase T7 e reduzir a terminação prematura da transcrição. Após a clonagem a jusante de um promotor T7, a transcrição in vitro foi realizada utilizando análogo de capa anti-reversão (ARCA) e nucleotídeos modificados (m5CTP e ΨUTP), seguida de alongamento enzimático da cauda poli(A) (aproximadamente 120–200 nt) para gerar modRNA d2EGFP-T2A-hTERT com capa, poliadenilado e de alta integridade (Figura 1A).
A análise automatizada eletroforética de RNA confirmou a síntese eficiente do transcrito, revelando uma espécie predominantemente de RNA com o tamanho esperado e produtos mínimos de degradação em múltiplas quantidades de entrada, consistente com a geração bem-sucedida de modRNA de sequência completa (Figura 1B). Após a transfeção de fibroblastos LF1 em senescência precoce com 2 µg/mL de modRNA d2EGFP-T2A-hTERT, a proteína hTERT tornou-se detectável dentro de 24 h e permaneceu elevada por 48–96 h, indicando tradução sustentada do transcrito sintético (Figura 1C). A análise do repórter acoplado d2EGFP demonstrou fluorescência robusta após transfeção reversa, enquanto fluorescência substancialmente menor foi observada após transfeção direta (Figura 1D,E). Esses resultados indicam entrega e expressão aprimoradas de modRNA hTERT utilizando a abordagem de transfeção reversa em fibroblastos LF1 em senescência precoce.
A transfecção anterógrada (FT) repetida de fibroblastos LF1 em pré-senescência com modRNA d2EGFP-T2A-hTERT em intervalos de 5 dias produziu um aumento progressivo no comprimento médio dos telômeros (rT/S) em relação aos controles submetidos à transfecção simulada, conforme medido por PCR quantitativa multiplex monocromática (MMqPCR) (Figura 2A). A razão rT/S aumentou após cada ciclo de FT, com significância estatística melhorando de *P < 0,05 para **P < 0,01.
A aplicação do mesmo esquema de dosagem utilizando transfeção reversa (RT) resultou em um aumento mais acentuado no comprimento dos telômeros. A razão rT/S aumentou após cada ciclo de RT e atingiu diferenças altamente significativas em relação aos controles transfectados simuladamente (*P < 0,05 a ****P < 0,0001) (Figura 2B). A comparação direta entre FT e RT após três ciclos de tratamento demonstrou que ambas as abordagens aumentaram significativamente os valores de rT/S em relação aos controles transfectados simuladamente; no entanto, a RT produziu um aumento maior do que a FT sob condições idênticas de dosagem e cronograma (*P < 0,05, ***P < 0,001, ****P < 0,0001) (Figura 2C).
A análise de crescimento de longo prazo demonstrou ainda que a administração repetida de modRNA de hTERT prolongou a vida útil replicativa (Figura 2D). Células que receberam um, dois ou três ciclos de tratamento apresentaram duplicações populacionais cumulativas progressivamente maiores do que os controles transfectados com placebo. Os cultivos que receberam três rodadas de tratamento com modRNA de hTERT, particularmente pela RT, exibiram a maior divergência em relação às curvas de crescimento do controle ao longo de aproximadamente 250 dias (até ****P < 0,0001). Os cálculos de duplicação populacional são apresentados no Arquivo Suplementar 2.
Fibroblastos LF1 em senescência precoce transfectados com modRNA d2EGFP-T2A-hTERT exibiram forte padrão de escada no ensaio TRAP 48 h após a transfeção, enquanto células tratadas com modRNA de controle simulado (mock) e com modRNA de eGFP apresentaram apenas sinal de fundo, indicando que a atividade da telomerase originou-se da expressão exógena de hTERT (Figura 3A). O pré-tratamento térmico aboliu o padrão de escada, confirmando a especificidade do ensaio (Figura 3B).
A análise temporal demonstrou que a atividade da telomerase atingiu o pico entre 24 e 48 h após a transfeção e posteriormente diminuiu, retornando a níveis próximos à linha de base entre 72 e 96 h (Figura 3C). O aumento da concentração de modRNA de hTERT de 50 a 3.000 ng/mL produziu um aumento correspondente na intensidade do sinal TRAP, demonstrando ativação da telomerase dependente da dose (Figura 3D).
A análise funcional utilizando construtos de hTERT selvagem, inativo cataliticamente (CI) e deficiente no sinal de localização nuclear (ΔNLS) demonstrou que apenas o hTERT selvagem gerou atividade telomerase robusta. Ambas as variantes, CI e ΔNLS, falharam em induzir atividade comparável, apesar de condições semelhantes de entrega (Figura 3E). Em consonância com esses achados, a análise por MMqPCR revelou um aumento acentuado no comprimento médio dos telômeros (rT/S ≈ 1,4) apenas nas células que receberam modRNA de hTERT selvagem. Células que receberam hTERT-CI, hTERT-ΔNLS ou tratamento simulado permaneceram próximas aos níveis basais (rT/S ≈ 0,3; ****P < 0,0001) (Figura 3F).
Três rodadas sequenciais de transfeção reversa com modRNA de hTERT em intervalos de cinco dias reduziram significativamente a proporção de células positivas para β-galactosidase associada à senescência. A porcentagem de células positivas diminuiu de aproximadamente 85% em culturas tratadas com controle para aproximadamente 40% em culturas tratadas com hTERT quinze dias após a transfeção final (***P < 0,001) (Figura 4A).
A imunomarcação confocal revelou aumento da expressão de Ki67 em células submetidas a três rodadas de transfeção reversa de hTERT em comparação com controles tratados com placebo, indicando atividade proliferativa aumentada (Figura 4B). A análise por RT-qPCR demonstrou ainda redução na expressão dos marcadores associados à senescência p16 e p21 após o tratamento com hTERT. Em relação às células senescentes iniciais tratadas com placebo, a expressão de p16 diminuiu de aproximadamente 2,3 vezes para 0,7 vezes, e a expressão de p21 diminuiu de aproximadamente 11 vezes para 6 vezes (**P < 0,01; ****P < 0,0001) (Figura 4C,D). A Figura Suplementar 1 demonstra ainda que o tratamento com cloroquina (CQ) ou Y-27632 isoladamente não alterou significativamente a expressão de p16 ou p21 em células transfectadas com placebo. Em contraste, a combinação de CQ e Y-27632 durante três rodadas de transfeção reversa de hTERT produziu a maior redução na expressão de p16 e p21 em comparação com a transfeção reversa de hTERT isoladamente ou com cada agente individualmente, enquanto o tratamento com agente único produziu efeitos intermediários. Esses achados indicam que o uso combinado de CQ e Y-27632 potencializou a redução da expressão de marcadores associados à senescência após a transfeção reversa de mRNA de hTERT. Em conjunto, esses resultados demonstram que a transfeção reversa repetida de mRNA de hTERT promove o alongamento dos telômeros, reduz os marcadores associados à senescência e melhora as características proliferativas em fibroblastos LF1 senescentes iniciais.
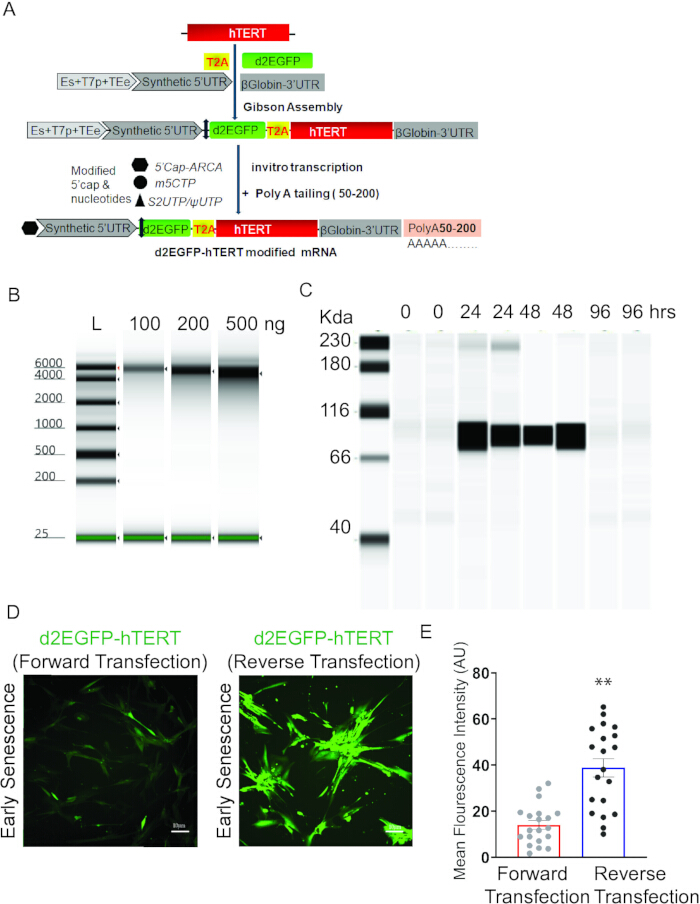
Figura 1: Projeto, síntese e validação funcional do mRNA d2EGFP‑T2A‑hTERT em fibroblastos LF1 pré-senescentes. (A) Projeto esquemático do construto híbrido de mRNA hTERT contendo o cassete d2EGFP ligado pelo peptídeo T2A para expressão simultânea de hTERT e EGFP instável. A ORF d2EGFP-T2A-hTERT é flanqueada pela região UTR 3’ do gene da β-globina humana (HBB) e pela UTR 5’ sintética. O mRNA foi sintetizado utilizando nucleotídeos modificados, e uma cauda poli(A) foi adicionada ao final. (B) Síntese eficaz de mRNA d2EGFP-T2A-hTERT de alta integridade por meio de transcrição in vitro, analisada por eletroforese automatizada de RNA. (C) Análise temporal da expressão da proteína hTERT utilizando um ensaio imunológico automatizado baseado em capilaridade após transfeção de 2 µg/mL de mRNA d2EGFP-T2A-hTERT. (D) A eficácia e expressão da transfeção de mRNA d2EGFP-T2A-hTERT, avaliada pela expressão de EGFP entre transfeção direta (FT) e transfeção reversa (RT), foram examinadas em fibroblastos diploides primários pré-senescentes (LF1). Barra de escala = 10 µm. (E) Quantificação da intensidade média de fluorescência (MFI) do sinal eGFP após transfeção direta ou reversa. Um total de 20 imagens individuais foi analisado para cada condição, abrangendo 4 áreas distintas de 5 réplicas biológicas. Os dados representam médias ± DP. **P < 0,01; avaliado pelo teste t não pareado com correção de Welch. Clique aqui para visualizar uma versão ampliada desta figura.
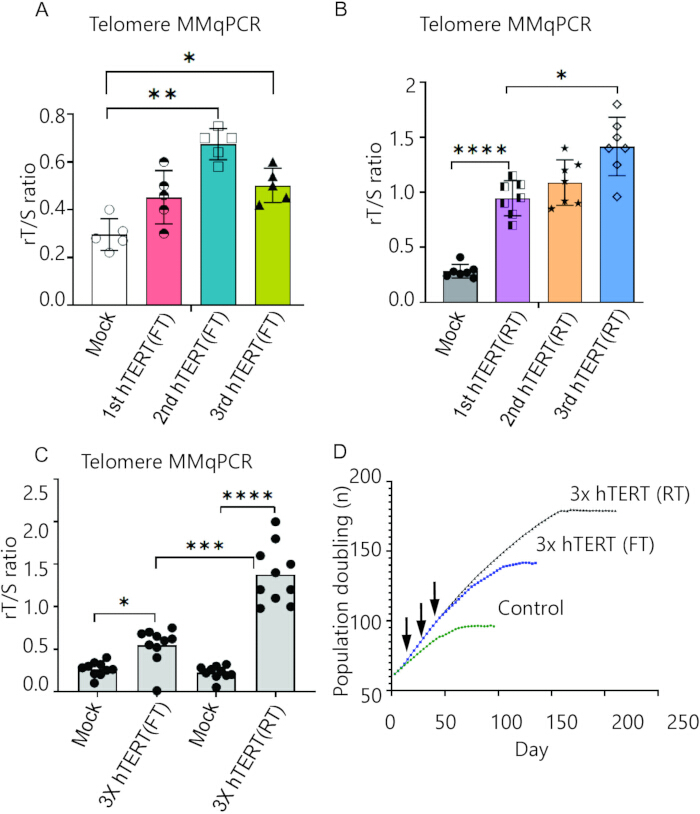
Figura 2: Dinâmica do comprimento dos telômeros e longevidade proliferativa após transfeções repetidas de mRNA de hTERT no sentido direto versus inverso em fibroblastos LF1 em senescência inicial. (A) Os comprimentos médios dos telômeros (rT/S) foram determinados utilizando o MMqPCR de telômeros. Fibroblastos em senescência inicial foram transfectados no sentido direto (FT) com mRNA de d2EGFP-T2A-hTERT três vezes consecutivas em intervalos de 5 dias, começando na Duplicação Populacional (PD) #76. A barra de erro indica o erro padrão da média (SEM); n = 5 réplicas biológicas; *P < 0,05, **P < 0,01 comparado com células tratadas apenas com controle simulado (mock). (B) Semelhante a (A), os valores de rT/S foram avaliados quando células em senescência inicial foram transfectadas repetidamente (RT) com mRNA de d2EGFP-T2A-hTERT três vezes consecutivas em intervalos de 5 dias, começando na Duplicação Populacional (PD) #76. A barra de erro representa o SEM; n = 7 réplicas biológicas; *P < 0,05, ****P < 0,0001 comparado com células tratadas somente com controle simulado. (C) Comparação do comprimento médio dos telômeros (rT/S) após 3 transfeções sucessivas no sentido direto e inverso em intervalos de 5 dias, ou apenas controle simulado. A barra de erro representa o SEM; n = 10 réplicas biológicas; *P < 0,05, ***P < 0,001, ****P < 0,0001. (D) Curvas de crescimento de fibroblastos LF1 transfectados com 2 µg/ml de mRNA de d2EGFP-T2A-hTERT ou apenas controle simulado, uma, duas ou três vezes consecutivas em intervalos de 5 dias, iniciando na PD# 76. As setas pretas indicam os momentos dos tratamentos. As curvas de crescimento foram replicadas três vezes, com cada população cultivada em triplicata. Três réplicas técnicas por amostra biológica; os dados representam médias ± DP. *P < 0,05, **P < 0,01; ****P < 0,0001, conforme avaliado pelo teste ANOVA de Brown-Forsythe e Welch Clique aqui para visualizar uma versão maior desta figura.
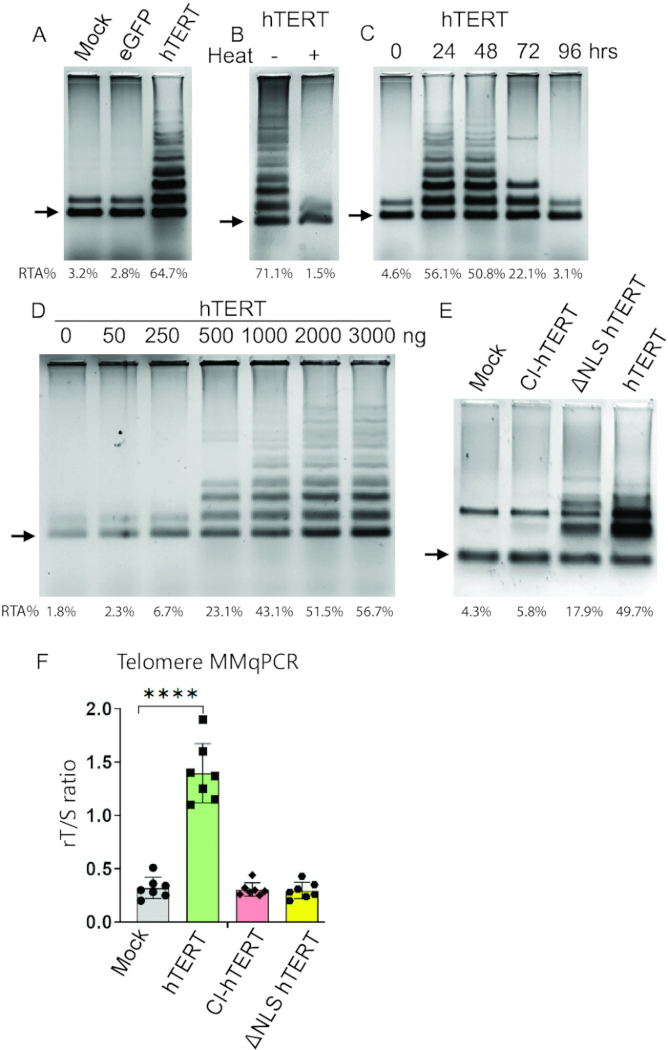
Figura 3: O mRNA de hTERT cataliticamente ativo e localizado no núcleo induz um aumento transitório e dependente da dose na atividade da telomerase, sendo por si só suficiente para promover extensão mensurável dos telômeros em fibroblastos LF1 em senescência precoce. (A) Células em senescência precoce foram transfectadas com mRNA mock, eGFP ou d2EGFP-T2A-hTERT. 48 h após a transfeção, extratos celulares foram preparados a partir de 20.000 células e submetidos ao ensaio TRAP. Os produtos da reação foram submetidos à eletroforese em gel nativo PAGE e corados com SYBR Green. (B) Inativação da telomerase mediada por calor, conforme medido pelo ensaio TRAP. (C) A análise da atividade da telomerase ao longo do tempo em células LF1 em senescência precoce após transfeção com mRNA de hTERT mostrou que a atividade retornou ao nível basal dentro de 72 h, indicando ativação transitória da enzima. (D) Células LF1 em senescência precoce receberam quantidades variáveis de mRNA d2EGFP-T2A-hTERT (0–3.000 ng/mL), demonstrando aumento da atividade da telomerase proporcional à dose. (E) A entrega de 2 µg/mL de TERT aumentou a atividade da telomerase em células LF1 em senescência precoce. ΔNLS aumentou parcialmente a atividade da telomerase sem induzir alongamento dos telômeros, pois atua no citoplasma e não transloca para o núcleo, enquanto o mRNA de TERT CI não provocou esse efeito, indicando resultados funcionais distintos. (F) Efeito da transfeção reversa com TERT funcional, TERT deficiente no sinal de localização nuclear (ΔNLS) e TERT cataliticamente inativo (CI) sobre os comprimentos médios dos telômeros (rT/S) de células LF1 em senescência precoce, indicando a importância do TERT cataliticamente ativo e localizado no núcleo na extensão dos telômeros. A barra de erro representa o DP; n = 7 réplicas biológicas; ****P < 0,0001 em comparação com células tratadas apenas com mocks, conforme avaliado por ANOVA unidirecional com correção de Welch. RTA% - Atividade telomerase relativa (% do controle) é indicada na parte inferior de cada poço. A razão entre os níveis de intensidade das escadas de amostras TRAP e a banda ITAS (controle interno - IC) foi calculada pela seguinte fórmula para cada poço: Atividade normalizada = intensidade da escada / intensidade do IC, e cada amostra foi normalizada em relação ao controle positivo como porcentagem (controle positivo; H1299 2.500 células) usando a seguinte fórmula: Atividade relativa (%) = Atividade normalizada (amostra) / Atividade normalizada (referência). A subtração do fundo foi aplicada em cada etapa. Clique aqui para visualizar uma versão ampliada desta figura.
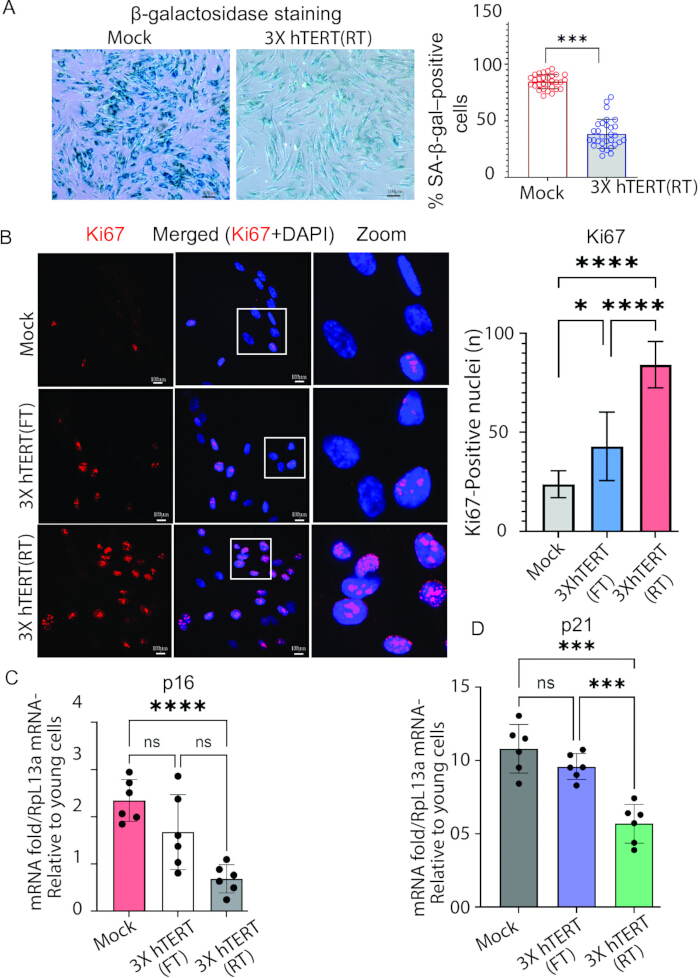
Figura 4: A transfeção reversa otimizada com mRNA de hTERT reverte parcialmente os fenótipos associados à senescência e restaura marcadores proliferativos em fibroblastos LF1 em estágio inicial de senescência. (AImagens representativas de células LF1 senescentes precoces expressando β-gal após transfeção modificada com mRNA de hTERT três vezes consecutivas em intervalos de 5 dias. Barra de escala = 100 µm. A expressão de β-gal foi analisada 15 dias após a última transfeção. Os experimentos foram realizados três vezes com >100 células por amostra pontuadas manualmente.B) Imagens representativas de confocal (aumento de 20x) de células LF1 senescentes precoces, coradas com o marcador de proliferação Ki67. Barra de escala = 100 µm. Aumento significativo na expressão de Ki-67 após três rodadas de transfeção reversa com hTERT. A porcentagem de núcleos positivos para Ki-67 aumenta significativamente após 3× hTERT (RT). O gráfico representa a média ± DP da contagem de núcleos positivos para Ki-67, normalizada à condição transfectada com controle Mock. Para cada condição, um total de 18 imagens foi analisado, sendo selecionados 6 campos distintos de cada um dos replicados biológicos, totalizando n = 3 replicados biológicos. ****P < 0.0001. (CExpressão de marcadores de senescência após 3× rejuvenescimento parcial mediado por hTERT, avaliada por RT-qPCR (n = 6). Todos os dados representam médias ± DP. **P < 0.01; ****P < 0,0001, conforme avaliado pelo teste t não pareado com correção de Welch. Clique aqui para visualizar uma versão maior desta figura.
| Componente | Volume/Concentração Final |
| ADN molde para PCR | 200 –1000 ng |
| Tampão 10× IVT | 2 μL |
| ATP (100 mM) | 2 μL (10 mM final) |
| GTP (100 mM) | 1,5 μL (7,5 mM final) |
| CTP (100 mM) | 2 μL (10 mM final) |
| m1Ψ-5′-TP (100 mM) | 2 μL (10 mM final) (Você pode aumentar a incorporação de pseudo-UTP incorporando UTP normal numa proporção de 1:4 a 2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (2 mM final) |
| Inibidor de RNase (40 U/μL) | 0,5 μL (20 U) |
| Polimerase de RNA T7 (50 U/μL) | 2 μL (100 U) |
| H₂O livre de nucleases | 20 μL |
Tabela 1: Composição da reação de transcrição in vitro (IVT) para a síntese de mRNA de hTERT modificado com nucleosídeos. Os componentes da reação e as quantidades finais utilizadas para a síntese IVT com capa ARCA são listados.
| Componente | Volume/Concentração final |
| RNA mensageiro purificado até 5 μg | ≤20 μL |
| Tampão 10× para poliadenilação | 5 μL |
| ATP (10 mM) | 5 μL (1 mM final) (Embora já esteja no tampão, a adição extra ajuda na estabilização da cauda de poli A.) |
| Polimerase de poli(A) (5 U/μL) | 1 μL (5 U) |
| Água livre de nucleases H₂O | Até completar 50 μL |
Tabela 2: Composição da reação de cauda poli(A) utilizada para modificação pós-transcricional do mRNA do hTERT. Os volumes dos reagentes e as condições da reação para a geração de uma cauda de poli(A) de 120–200 nucleotídeos são apresentados.
| Parâmetro | Formato de 12 poços | Formato de 6 poços |
| Área da superfície de crescimento | ~3,8 cm² | ~9,5 cm² |
| Meio por poço | 1,0 mL | 2,0 mL |
| Número de semeadura celular | 5× 10⁴–6,5× 10⁴ células/mL | 2,0–2,5 × 10⁵ |
| Número médio de células (em confluência de 100%) | 5,7× 10⁴–7,2× 10⁴ células/mL | 2,9–3 × 10⁵ |
| Quantidade de transfeção de mRNA | 750–1000 ng | 2000–3500 ng |
| Agente de transfeção de mRNA | 1,5–3,0 µL | 4,75–7 µL |
| Volume final de mRNA + agente de transfeção em Opti-MEM | 50 µL | 200 µL |
Tabela 3: Parâmetros recomendados de transfeção para entrega de mRNA de hTERT em formatos de cultura de 6 poços e 12 poços. São apresentadas as densidades de semeadura celular, quantidades de mRNA, volumes de reagente de transfeção e volumes de formação de complexos utilizados em experimentos de transfeção direta e reversa.
Figura Suplementar 1: Efeito da cloroquina e da Y-27632 na expressão de p16 e p21 associada à senescência após transfeção reversa repetida de mRNA de hTERT. (A) Análise por RT-PCR quantitativa da expressão de mRNA de p16 em fibroblastos LF1 tratados com placebo e submetidos à transfeção reversa de hTERT (RT) três vezes, após tratamento com cloroquina (CQ), Y-27632 ou sua combinação, conforme indicado. (B) Análise por RT-PCR quantitativa da expressão de mRNA de p21 nas mesmas condições experimentais. Os níveis de transcritos foram normalizados em relação a RpL13a e expressos em relação às células-controle jovens (PD#12). Cada ponto de dados representa réplicas biológicas. Os dados representam médias ± DP de n = 2 réplicas biológicas, com 5 réplicas técnicas por réplica biológica. A significância estatística é indicada na figura; ns, não significativo. *P < 0,05, **P < 0,01, ****P < 0,0001, determinado pelo teste ANOVA de Brown–Forsythe e Welch. Abreviações: CQ, cloroquina; RT, transfeção reversa; Y-27632, inibidor da quinase associada à Rho (ROCK).Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Sequências de DNA e proteína dos construtos de expressão de hTERT.Clique aqui para baixar este arquivo.
Arquivo Suplementar 2: Cálculo da duplicação populacional (PD). As duplicações populacionais (PD) foram calculadas usando a fórmula PD = log₂ (Nf/N₀), em que N₀ é o número de células semeadas e Nf é o número de células viáveis colhidas. O PD cumulativo foi determinado pela soma dos valores de PD ao longo das passagens.Clique aqui para baixar este arquivo.
Discussão
Este estudo reinterpreta a senescência celular como um problema distinto de entrega, e não como uma simples variação da fisiologia proliferativa, e desenvolve uma estratégia de transfeção de mRNA de telomerase adaptada às restrições biofísicas e imunológicas do estado senescente. Células senescentes exibem membranas rigidificadas e enriquecidas em colesterol, além de atividade endocítica reduzida, criando uma barreira significativa para a entrega eficiente de ácidos nucleicos. Ao adotar uma abordagem de transfeção reversa, este protocolo aproveita o período transitório de adesão no qual as células senescentes passam por remodelação da membrana e apresentam maior plasticidade membranar, sincronizando assim o contato entre célula e complexo com um período de potencial aumentado de captação3,4. Resultados representativos demonstram que esta estratégia melhora a entrega e expressão de modRNA de hTERT em comparação com a transfeção direta convencional, resultando em maior alongamento dos telômeros e fenótipos mais acentuados associados à rejuvenescência.
Uma característica central do método é uma estratégia de engenharia de mRNA multicamadas projetada para enfrentar três barreiras principais em células senescentes: sinalização imune inata elevada, degradação aumentada de RNA e capacidade translacional prejudicada23,24,25. A incorporação de pseudouridina e 5-metilcitidina reduz a ativação das vias de sinalização TLR3, TLR7/8 e RIG-I, ao mesmo tempo que aumenta a estabilidade do transcrito e a eficiência translacional13,26. A capagem com ARCA e a otimização da cauda poli(A) melhoram ainda mais a estabilidade do transcrito e a produção traducional, permitindo uma expressão transitória, porém robusta, de hTERT. Em consonância com estudos anteriores, essas modificações favorecem uma expressão eficiente da telomerase, minimizando ao mesmo tempo a ativação do sistema imune inato associada à entrega de RNA exógeno.
O protocolo também aborda o ambiente extracelular rico em RNase, característico de culturas senescentes27. A proteção do RNA é aumentada por meio da modificação de nucleosídeos, formação de complexos lipídicos e adição imediata do inibidor de RNase antes da transfeção. Além disso, o momento da transfeção reversa é ajustado à cinética mais lenta de adesão das células senescentes, permitindo uma interação prolongada entre as células e os complexos mRNA-lipídios durante a adesão celular. Essas modificações, em conjunto, melhoram a probabilidade de captação bem-sucedida do material genético em uma população celular que, de outra forma, seria difícil de transfectar.
A fuga endossomal representa um segundo gargalo crítico para a entrega de mRNA em células senescentes. Células senescentes exibem aumento do conteúdo lisossomal e tráfego aprimorado de cargas endocitadas em direção a compartimentos degradativos17,28. A exposição transitória à cloroquina durante o período inicial pós-transfecção melhora a entrega funcional ao promover a fuga endossomal e reduzir a degradação lisossomal do mRNA internalizado. Embora a dose ideal e a duração da exposição possam variar entre os tipos celulares, os resultados apresentados aqui indicam que o aprimoramento da fuga endossomal melhora substancialmente a eficiência de entrega em fibroblastos senescentes.
Em nível funcional, a administração repetida de modRNA de hTERT produziu aumentos cumulativos no comprimento relativo dos telômeros, prolongou a longevidade replicativa e reduziu múltiplos fenótipos associados à senescência. Células que receberam tratamento repetido com hTERT exibiram atividade reduzida de SA-β-gal, diminuição da expressão de p16 e p21, aumento da expressão de Ki67 e capacidade proliferativa aprimorada em relação aos controles transfectados com placebo. É importante destacar que a atividade da telomerase permaneceu transitória, retornando a níveis próximos aos basais em alguns dias após a transfeção. Esse perfil de expressão transitória evita a modificação genética permanente, ao mesmo tempo que fornece atividade suficiente de telomerase para promover efeitos biológicos mensuráveis. Deve-se notar, no entanto, que as medidas de comprimento relativo dos telômeros obtidas por MMqPCR não quantificam diretamente a extensão absoluta dos telômeros. Estudos futuros que incorporem análise de fragmentos de restrição terminais, hibridização fluorescente in situ quantitativa, Flow-FISH ou metodologias TeSLA fornecerão uma avaliação mais precisa da dinâmica do comprimento dos telômeros após a entrega de mRNA de hTERT.
Várias limitações merecem consideração. As populações de células senescentes são inerentemente heterogêneas e podem variar em sua resposta à entrega de mRNA, dependendo do método de indução da senescência, da fonte do doador e da história de cultivo. Consequentemente, a eficiência de transfeção e os resultados de rejuvenescimento podem diferir entre sistemas experimentais. Além disso, a reativação da telomerase aborda principalmente os aspectos dependentes dos telômeros no envelhecimento celular e não corrige diretamente todas as características da senescência. Alterações associadas ao envelhecimento, como deriva epigenética, disfunção mitocondrial, proteostase alterada e sinalização inflamatória crônica, podem persistir apesar do alongamento bem-sucedido dos telômeros29,30. Portanto, este protocolo deve ser visto como uma ferramenta direcionada para o estudo e reversão parcial da senescência impulsionada por telômeros, e não como uma estratégia abrangente de rejuvenescimento.
Os parâmetros descritos neste protocolo destinam-se a ser diretrizes práticas para células humanas senescentes e foram desenvolvidos por meio de otimização iterativa fundamentada em estudos publicados e na experiência experimental. Fatores como densidade celular, razão entre o reagente de transfeção e o mRNA, tempo de complexação e condições de escape endossomal podem exigir ajustes conforme o tipo celular e as condições experimentais específicas. Os pesquisadores devem, portanto, considerar as condições relatadas como um ponto de partida para otimização, e não como pontos finais universalmente aplicáveis.
Em resumo, este protocolo fornece uma estrutura reproduzível para a entrega de mRNA modificado de hTERT a células humanas senescentes utilizando uma estratégia de transfeção reversa otimizada para as características fisiológicas da senescência. A abordagem permite a reativação transitória da telomerase, alongamento mensurável dos telômeros, extensão da longevidade replicativa e reversão parcial dos fenótipos associados à senescência. Estudos futuros devem avaliar a aplicabilidade dessa estratégia a outros tipos de células senescentes, investigar abordagens combinadas com intervenções complementares de rejuvenescimento e explorar a transposição para plataformas de entrega in vivo. Assim, este método fornece uma ferramenta valiosa para investigar a biologia dos telômeros, o rejuvenescimento celular e os mecanismos de senescência na pesquisa do envelhecimento.
Divulgações
J.M.S. é cofundador e presidente do conselho consultivo científico da Transposon Therapeutics.
Agradecimentos
Este trabalho foi apoiado por subsídios dos National Institutes of Health (NIH) P01 AG051449, R01 AG016694 e R01 AG078925 concedidos a JS.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Meio Nutriente Ham's F-10 | Thermo Fisher | 11550043 | Meio de cultura celular. |
| Análogo da Estrutura do Cap 3´-O-Me-m7G(5')ppp(5')G de RNA | New England Biolab | S1411L | Para a maioria dos RNAs, a estrutura do cap aumenta a estabilidade, diminui a suscetibilidade à degradação por exonuclease e promove a formação de complexos de iniciação do mRNA. |
| 5-Metil-Citidina-5´-Trifosfato (5-Metil-CTP) | New England Biolab | N0432S | NTPs modificados são comumente usados para reduzir a imunogenicidade do RNA transcrito in vitro. |
| Placa de 6 Poços | Corning | 351146 | Para cultivar e tratar volumes médios a grandes de células aderentes ou em suspensão em condições experimentais independentes. |
| Anticorpo Anti-Ki67 (SP6) | abcam | ab16667 | O Ki67 é principalmente expresso em células proliferantes. |
| Kit de Ensaio de Senescência Celular (Coloração SA-beta-gal) | cellbiolabs | CBA-230 | Identificação de células senescentes com o ensaio de coloração SA-β-gal |
| Tubos DNA LoBind de 0,5 ml | Eppendorf | 022431005 | Para recuperar eficientemente DNA e RNA sem qualquer perda |
| Tubos DNA LoBind de 1,5 ml | Eppendorf | 22431021 | Para recuperar eficientemente DNA e RNA sem qualquer perda |
| DNase I, livre de RNase (1 U/μL) | Thermo Fisher | EN0521 | A DNase I, livre de RNase, é uma endonuclease que digere DNA de fita simples e dupla. |
| Polimerase de Poli(A) de E. coli | New England Biolab | M0276S | Em Escherichia coli, a Poli(A) Polimerase I (PAP I) atua principalmente como catalisadora da adição independente de molde de resíduos de monofosfato de adenosina (AMP) à extremidade 3' de moléculas de RNA. |
| Soro Fetal Bovino | Thermo Fisher | A5256701 | Suplemento para meio de cultura celular |
| Kit HiScribe T7 ARCA mRNA | New England Biolab | E2065S | O Kit HiScribe T7 ARCA mRNA (com alongamento) é projetado para produção rápida de mRNA com cap ARCA e cauda de poli(A) in vitro. Os mRNAs com cap são sintetizados pela incorporação co-transcricional do Análogo do Cap Reverso (ARCA) usando a Polimerase de RNA T7. |
| Kit HiScribe T7 mRNA com Reagente CleanCap AG | New England Biolab | E2080S | os Kits HiScribe T7 mRNA com Reagente CleanCap AG permitem a produção rápida e simplificada de um ou vários transcritos com rendimentos típicos de ≥90 μg por reação, |
| LongAmp Hot Start Taq DNA Polimerase | New England Biolab | M0534S | A LongAmp Hot Start Taq DNA Polimerase oferece desempenho excepcional com amplicons longos. |
| Transcriptase Reversa M-MuLV | New England Biolab | M0253L | A Transcriptase Reversa M-MuLV sintetiza uma fita complementar de DNA iniciando a partir de um primer, utilizando RNA (síntese de cDNA) ou DNA de fita simples como molde. |
| Kit Monarch Spin RNA Cleanup (50 μg) | New England Biolab | T2040L | A função principal do Kit Monarch® Spin RNA Cleanup (50 μg) é purificar e concentrar até 50 μg de RNA de alta qualidade proveniente de reações enzimáticas ou misturas de extração. |
| NEBuilder HiFi DNA Assembly Master Mix | New England Biolab | E2621L | O NEBuilder HiFi DNA Assembly Master Mix permite a montagem contínua de múltiplos fragmentos de DNA, independentemente do comprimento do fragmento ou compatibilidade das extremidades. É útil para a comunidade de biologia sintética, bem como para clonagem em uma única etapa de múltiplos fragmentos, devido à sua facilidade de uso, flexibilidade e formato simples de master mix. |
| Opti-MEM - Meio com Redução de Soro | Thermo Fisher | 31985070 | Para maximizar a eficiência de transfeção celular durante a formação do complexo lipídio-carga. Serve como um ambiente otimizado e quimicamente definido que mantém as células de mamíferos altamente viáveis, reduzindo a necessidade de suplementação padrão com soro |
| PBS, pH 7,4 | Thermo Fisher | 10010023 | O uso funcional principal do Salina Tamponada com Fosfato (PBS) em pH 7,4 é manter um pH estável e equilíbrio osmótico para células de mamíferos e moléculas biológicas. |
| Tiras de PCR | Thermo Fisher | AB0776 | O uso funcional principal das tiras de tubos de PCR (geralmente em formato de 8 ou 12 tiras) é conter reações líquidas de pequeno volume durante ciclagem térmica de alto rendimento. |
| Poli-L-Lisina Hidrobrometo | Millipore Sigma | P4707-50ML | O uso funcional principal do Poli-L-Lisina (PLL) Hidrobrometo para adesão celular é revestir superfícies sólidas negativamente carregadas (como vidro ou plástico) para criar um substrato altamente adesivo e positivamente carregado. |
| Pseudouridina-5´-Trifosfato (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | A Pseudouridina-5´-Trifosfato (Pseudo-UTP) é comumente usada para reduzir a imunogenicidade do RNA transcrito in vitro. |
| Conjunto de Soluções de Ribonucleotídeos | New England Biolab | N0450L | Quatro soluções separadas de ATP, GTP, CTP e UTP |
| Inibidor ROCK Y-27632 (Dihidrocloridrato) | Stem cell technologies | 72302 | O Y-27632 é um inibidor permeável às células, altamente potente e seletivo da quinase associada à Rho, contendo alça em espiral (ROCK). O Y-27632 inibe tanto a ROCK1 (Ki = 220 nM) quanto a ROCK2 (Ki = 300 nM) competindo com o ATP pela ligação ao sítio catalítico |
| Água Grau RT-PCR | Thermo Fisher | AM9935 | O uso funcional principal da Água Grau RT-PCR (frequentemente rotulada como Água Livre de Nucleases) é servir como solvente ultra-puro para ensaios enzimáticos sensíveis, nos quais qualquer contaminação degradaria a amostra ou inibiria a amplificação. |
| SUPERase·In Inibidor de RNase | Thermo Fisher | AM2694 | O SUPERase In Inibidor de RNase é um inibidor baseado em proteína de origem não humana que se liga não covalentemente e inibe as RNases mais comuns e problemáticas, incluindo RNase A, B, C, 1 e T1. |
| Corante SYBR Green I para Eletroforese de Ácidos Nucléicos | Thermo Fisher | S7563 | O uso funcional principal do Corante SYBR™ Green I para géis de ácidos nucléicos é visualizar e quantificar DNA de dupla fita (dsDNA) em géis de agarose ou poliacrilamida. |
| Kit de Transfeção TransIT-mRNA | Mirusbio/ Millipore Sigma | MIR 2250 | Um reagente de transfeção de alta eficiência e baixa toxicidade para RNA de grande porte |
| Kit de Detecção de Telomerase TRAPeze | Millipore Sigma | S7700 | O ensaio TRAP (Protocolo de Amplificação de Repetições Teloméricas) é um método amplamente utilizado e sensível baseado em PCR para detectar e medir a atividade da telomerase em células e amostras de tecidos de mamíferos. Envolve três etapas principais: alongamento de repetições teloméricas pela telomerase, amplificação desses produtos por PCR e detecção subsequente. |
| Tripsina-EDTA (0,05%), vermelho de fenol | Thermo Fisher | 25300054 | Para destacar células aderentes de mamíferos dos frascos de cultura durante a passagem rotineira (subcultivo) e colheita. |
Referências
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.