Este protocolo visa avaliar o desenvolvimento de melanoma em xenoenxertos de peixe-zebra usando ressonância paramagnética eletrônica in vivo (espectroscopia para detectar e analisar radicais de melanina), oferecendo uma abordagem inovadora para pesquisa pré-clínica de melanoma e avaliação terapêutica.
Artigo de método
Ressonância Paramagnética Eletrônica em Banda X para Monitoramento de Mudanças Radicais Associadas à Melanina em Xenoenxertos de Melanoma de Peixe-Zebra In Vivo
Neste artigo
Resumo
Resumo
Este protocolo apresenta uma aplicação inovadora in vivo da espectroscopia de ressonância paramagnética eletrônica em banda X (9,5 GHz) para monitoramento da dinâmica dos radicais associados à melanina em modelos de xenoenxerto de melanoma do peixe-zebra (Danio rerio). O objetivo desse método é possibilitar a avaliação direta, sem rótulo e quantitativa das alterações redox associadas à melanina durante o desenvolvimento embrionário, e das interações tumor-hospedeiro em um modelo vertebrado fisiologicamente relevante.
Ao aproveitar as propriedades paramagnéticas intrínsecas da melanina, essa abordagem fornece informações bioquímicas complementares que não podem ser obtidas apenas com imagens convencionais baseadas em fluorescência. Importante destacar que o sinal de ressonância paramagnética eletrônica detectado reflete a fração redox ativa do polímero de melanina e, portanto, serve como uma leitura sensível ao redox, em vez de uma medida direta da abundância total de pigmento.
O desempenho do método foi validado por meio da detecção seletiva de radicais associados à melanina em embriões do tipo selvagem pigmentados, ausência de sinal em controles albinos, mudanças estatisticamente significativas no desenvolvimento no sinal normalizado de ressonância paramagnética eletrônica entre réplicas biológicas independentes e resultados comparáveis obtidos usando suportes alternativos de amostras e amostras congeladas.
Ao combinar espectroscopia de ressonância paramagnética eletrônica em banda X com modelos de xenoenxertos de peixe-zebra, esse protocolo fornece uma plataforma escalável, eticamente favorável e transferível para pesquisas pré-clínicas sobre melanoma, estudos de biologia redox e avaliação de intervenções moduladoras de melanogênese.
Introdução
O objetivo geral deste estudo é desenvolver e validar um método in vivo confiável para a detecção e quantificação de radicais de melanina em embriões de peixe-zebra (Danio rerio) modelo xenoenxerto combinado com espectroscopia de ressonância paramagnética eletrônica na banda X (9,5 GHz). Essa abordagem visa permitir a avaliação direta e quantitativa dos processos redox associados à melanina durante o desenvolvimento do melanoma e em resposta a intervenções farmacológicas.
A melanina é um grupo heterogêneo de biopolímeros responsáveis pela pigmentação na pele, cabelo e olhos em uma ampla gama de organismos. Entre suas formas, a eumelanina e a feomelanina desempenham papéis distintos na biologia. A eumelanina apresenta propriedades antioxidantes e fotoprotetoras, enquanto a feomelanina pode promover a geração de espécies reativas de oxigênio (ROS), especialmente sob exposição à luz UV 1,2,3. Tanto as ações antioxidantes quanto as prooxidantes estão relacionadas à formação de radicais de melanina. No nível molecular, a melanina é um polímero heterogêneo ativo em redox composto por subunidades endólicas e contendo quinona, que podem existir em múltiplos estados físico-químicos, incluindo quinona totalmente oxidada, semiquinona parcialmente reduzida e hidroquinona totalmentereduzida formas 4,5,6. A abundância relativa de espécies radicais semiquinona é dinâmica e depende das condições fisicoquímicas locais, incluindo disponibilidade de oxigênio, espécies reativas de oxigênio (ROS), interações de íons metálicos, pH, grau de polimerização e maturação dos melanossomos 7,8,9.
Assim, métodos que permitam a avaliação quantitativa dessas concentrações radicais são necessários para uma melhor compreensão das mudanças no estado redox da melanina. No melanoma, a desregulação da melanogênese nos melanócitos contribui para a iniciação e progressão do melanoma. Essa desregulação está frequentemente relacionada a mudanças no estado redox, dependendo das condições microambientais locais. Isso torna a atividade redox da melanina um fator importante na biologiatumoral 10. Portanto, métodos que permitem a avaliação direta dos radicais melaninosos são essenciais para entender a patogênese e a resposta terapêutica do melanoma.
Embriões de peixe-zebra representam um modelo in vivo poderoso para estudar pigmentação e melanoma. Até 5 dias após a fertilização (120 horas após a fertilização, hpf), eles não são classificados como animais protegidos pela Diretiva 2010/63/UE, permitindo experimentos de alta taxa sem aprovação ética formal. O rápido desenvolvimento, a transparência óptica e os protocolos estabelecidos tornam o peixe-zebra altamente adequado para estudos toxicológicos efarmacológicos 11,12. Importante destacar que esse peixe compartilha semelhanças genéticas e fisiológicas significativas com os humanos, e vias principais envolvidas na melanogênese sãoconservadas 13. Enquanto os peixes-zebra selvagens produzem predominantemente eumelanina e servem como modelo para a pigmentação fisiológica, os modelos de xenoenxertos — baseados na implantação de linhagens celulares de melanoma que produzem eumelanina e feomelanina — possibilitam a investigação da progressão tumoral dos mamíferos e das respostas a fármacos em um microambiente fisiologicamenterelevante 14,15.
Atualmente, a imagem baseada em fluorescência é o método padrão usado em estudos de xenoenxerto de melanoma do peixe-zebra. Essa abordagem permite visualização em tempo real do crescimento, migração e resposta ao tratamento tumoral por meio de corantes fluorescentes, por exemplo, diclorodidiidrofluoresceína diacetato (DCFDA) ou linhas transgênicas (Grx1-roGFP2, HyPer)16,17. No entanto, as técnicas de fluorescência fornecem principalmente informações morfológicas e espaciais e são limitadas em sua capacidade de capturar processos bioquímicos e relacionados à redox. Além disso, suas leituras podem ser afetadas por fotobranqueamento, vazamento de corante, interferência de compostos fluorescentes de medicamentos e possíveis alterações na fisiologia celular causadas pela marcação. De forma crítica, métodos baseados em fluorescência não fornecem informações diretas sobre radicais de melanina ou seu comportamento dinâmico redox.
A espectroscopia de ressonância paramagnética eletrônica oferece uma abordagem analítica única e poderosa, pois permite a detecção e quantificação direta de espécies paramagnéticas, incluindo radicais estáveis associados à melanina. Tanto eumelanina quanto feomelanina contêm semiquinoneas que geram sinais característicos de ressonância paramagnética eletrônica, e a contribuição relativa desses sinais tem sido explorada como biomarcador do estado de pigmentação e da progressão domelanoma 18,19. Importante ressaltar que, como apenas a fração de semiquinona redox ativa contribui diretamente para o sinal detectado, a espectroscopia de ressonância paramagnética eletrônica fornece informações complementares aos ensaios convencionais relacionados à melanogênese, como quantificação do teor de melanina, atividade da tirosinase ou análise de pigmentação. Assim, a intensidade do sinal de ressonância paramagnética eletrônica deve ser interpretada como uma leitura sensível ao redox do estado funcional da melanina, influenciada por condições fisicoquímicas locais, e não como uma medida direta da abundância total de pigmento.
Enquanto a maioria dos estudos in vivo de ressonância paramagnética eletrônica foi realizada usando sistemas na banda L (uma forma de espectroscopia de ressonância paramagnética eletrônica que utiliza micro-ondas de baixa frequência (cerca de 1–2 GHz) para estudar espécies paramagnéticas, especialmente em amostras maiores onde é necessária penetração mais profunda do sinal)20— a ressonância paramagnética eletrônica na banda X proporciona maior resolução espectral e sensibilidade para amostras de pequeno volume, tornando-o particularmente adequado para embriões de peixe-zebra. Além disso, desenvolvimentos técnicos recentes, incluindo sistemas de detecção multiharmônica, melhoram significativamente a qualidade do sinal e permitem medições confiáveis em amostras biológicas desafiadoras (pequenas e mais hidratadas) 21,22. O tamanho do ressonador na banda X é o tamanho adequado para alguns embriões de peixe-zebra, o que, combinado com resolução maior do que para o sistema da banda L, permite a redução do número de animais utilizados. Isso é especialmente importante ao trabalhar com modelos de xenoenxertos.
Apesar dessas vantagens, a aplicação da ressonância paramagnética eletrônica em banda X a embriões vivos de peixe-zebra e xenoenxertos de melanoma neste modelo permanece amplamente inexplorada. Estudos in vitro usando linhagens celulares de melanoma, como B16F10, forneceram insights valiosos sobre propriedades dos radicais de melanina; no entanto, eles carecem do contexto fisiológico complexo de um organismovivo 23,24. Em particular, o microambiente do peixe-zebra introduz fatores críticos — como gradientes de oxigênio, interações célula-célula e atividade metabólica dinâmica — que podem influenciar significativamente o comportamento dos radicaismelanina 25,26. Portanto, há uma necessidade clara de desenvolver e validar uma metodologia in vivo que permita a medição direta dos radicais de melanina sob condições fisiologicamente relevantes.
Neste estudo, apresentamos um protocolo detalhado para aplicar espectroscopia de ressonância paramagnética eletrônica em banda X a embriões de peixe-zebra, incluindo modelos de xenoenxertos contendo linhagens celulares de melanoma B16F10 e B16F1. Esse método oferece uma abordagem complementar à imagem baseada em fluorescência, permitindo a avaliação quantitativa do conteúdo de radicais melaninas, proporcionando assim uma visão sobre a dinâmica redox. Ao integrar informações estruturais e espaciais de técnicas de fluorescência com insights bioquímicos da ressonância paramagnética eletrônica, essa estratégia combinada aprimora o poder analítico dos modelos de peixe-zebra para pesquisas pré-clínicas de melanoma. Importante, o sinal de ressonância paramagnética eletrônica detectado neste protocolo reflete a fração redox-ativa do polímero de melanina. Assim, a intensidade do sinal deve ser interpretada como uma leitura sensível ao redox, e não como uma medida direta do teor total de melanina, e considerada em combinação com o teor total de pigmento como indicação de deslocamentos redox associados à melanina. Devido à abordagem de medição do organismo inteiro e ao número limitado de células de melanoma injetadas, o sinal detectado representa principalmente mudanças radicais globais associadas à melanina no nível de todo o embrião/larva do peixe-zebra, em vez de um sinal específico do melanoma originado exclusivamente do xenoenxerto. Essa distinção é particularmente relevante em sistemas biológicos dinâmicos, onde mudanças no estado de oxidação da melanina podem ocorrer independentemente das mudanças na quantidade total de pigmento.
Protocolo
Embriões de peixe-zebra (Danio rerio) foram usados neste estudo até 5 dias após a fertilização (120 hpf). Neste estágio de desenvolvimento, embriões não são considerados animais protegidos pela Diretiva 2010/63/UE e, portanto, experimentos não requerem autorização formal por um comitê de ética. No entanto, todo o trabalho foi realizado de acordo com boas práticas laboratoriais e diretrizes institucionais para o cuidado e uso do peixe-zebra.
1. Preparação de reagentes e manutenção das linhas celulares de melanoma de camundongos B16F1 e B16F10
- Preparação do meio completo
- Adicione 50 mL de soro fetal bovino (FBS) e 5,5 mL de solução de penicilina-estreptomicina a 500 mL do Médio Eagle Modificado (DMEM) da Dulbecco.
- Aqueça o meio completo a 37 °C antes do uso.
NOTA: Use soluções pré-aquecidas para minimizar o estresse térmico durante o manuseio das células.
- Descongelamento e início da cultura a partir de células congeladas
- Descongele rapidamente o frasco congelado com as células em um banho-maria a 37 °C (~1–2 min).
- Desinfete o exterior do frasco com 70% de etanol. Realize todas as etapas subsequentes sob condições assépticas.
- Transfira a suspensão da célula para um tubo cônico de 15 mL contendo 9 mL de meio completo pré-aquecido. Mantenha uma pequena alíquota da suspensão original para o teste de micoplasma.
- Células centrífugas no tubo da centrífuga a 200 × g por 5 minutos em temperatura ambiente.
- Aspire o sobrenadante para remover o residuo de dimetil sulfóxido (DMSO; do meio congelante).
- Resuspenda a célula em 10 mL de meio completo fresco e pré-aquecido.
- Transfira as células para uma placa de Petri de ⌀�9 cm e gire suavemente em um movimento em forma de oito para distribuir uniformemente as células.
- Incube as células a 37°C, 5% de CO₂ e ≥95% de umidade durante a noite.
- Substitua o meio de cultivo por meio completo fresco pré-aquecido após 16–24 horas.
- Continue a incubação até que as células atinjam >80% de confluência. Prossiga para a subcultura (veja passo 1.3).
NOTA: Alternativamente às placas de Petri, vasos de cultura estéreis (por exemplo, frascos em T) podem ser usados. Se forem preferidos pratos ou frascos menores, divida as células proporcionalmente para manter a mesma área relativa de superfície de cultura.
- Subcultura de células
- Remova o meio de cultivo da monocamada celular. Mantenha uma pequena alíquota para o teste de micoplasma.
- Adicione 10 mL de soro salino tamponado com fosfato (PBS) ao recipiente de cultura.
- Deixe o PBS agir sobre as células em temperatura ambiente por 3 a 5 minutos para permitir a remoção completa das proteínas séricas.
- Aspire suavemente o PBS, tomando cuidado para não deslocar as células.
- Adicione 1 mL de reagente de dissociação celular e incube a 37°C até que as células se juntem e se desprendam (não exceda 5 minutos de tempo de incubação).
- Adicione 1 mL de meio completo pré-aquecido para evitar a dissociação enzimática.
- Pipete suavemente a suspensão da célula para cima e para baixo várias vezes para obter uma suspensão de célula única.
- Transfira as células para uma nova placa de Petri ou frasco em T contendo um meio completo pré-aquecido em uma proporção dividida de 1:4 a 1:10. Gire suavemente em um movimento em forma de oito para distribuir uniformemente as células.
- Incube as células a 37 °C, 5% de CO₂ e ≥95% de umidade.
NOTA: Use soluções pré-aquecidas (37 °C) e realize todos os procedimentos em condições assépticas em um armário de segurança biológica Classe II, usando o equipamento de proteção individual adequado. Subcultura de células a cada 2–3 dias ou com confluência de 80–90%. Use células de passagem baixa (
- Criopreservação (Armazenamento) de células
- Use células saudáveis, que crescem exponencialmente (~70%–80% confluentes).
- Colhe as células conforme descrito nos passos 1.3.1–1.3.7 e transfira a suspensão celular para um tubo cônico de 15 mL.
- Centrifuge as células a 300 × g por 2 minutos.
- Remova o sobrenadante e resuspenda as células em meio de criopreservação a 1–5 × 10⁶ células/mL.
- Suspensão celular aliquota em crioviais marcados (linhagem celular, número de passagem, data).
- Congele frascos durante a noite a -80°C usando um recipiente de congelamento de taxa controlada.
- Como alternativa, utilize um método de isolamento aninhado: insira os frascos em um pequeno suporte de isopor projetado para tubos de 1,5/2,0 mL, que fica então dentro de uma caixa maior de poliestireno.
NOTA: Esta configuração de dupla camada foi projetada para fornecer o buffer térmico necessário para alcançar uma taxa gradual de resfriamento, o que é fundamental para a criopreservação bem-sucedida.
NOTA: Materiais criogênicos devem ser manuseados com luvas isolantes e proteção facial. Siga as diretrizes institucionais para o manuseio de nitrogênio líquido e resíduos perigosos.
- Como alternativa, utilize um método de isolamento aninhado: insira os frascos em um pequeno suporte de isopor projetado para tubos de 1,5/2,0 mL, que fica então dentro de uma caixa maior de poliestireno.
- Após incubação durante a noite a -80 °C, transfira frascos para nitrogênio líquido para armazenamento a longo prazo. Os cryovials podem ser armazenados a -80 °C para armazenamento de curto prazo.
- Teste de micoplasma
- Colete uma pequena alíquota de meio de cultura ou suspensão celular durante o descongelamento, subcultura ou criopreservação.
- Avalie a contaminação por micoplasma usando um kit validado de detecção de micoplasma baseado em PCR ou enzimático, conforme as instruções do fabricante.
- Use culturas micoplasma-negativas para experimentos ou armazenamento de linhagem celular.
- Registre os resultados e descarte ou isole quaisquer culturas contaminadas até que sejam liberadas.
NOTA: Teste regularmente para contaminação por micoplasma.
2. Transplante de células cancerígenas em larvas de peixe-zebra
- Preparar células cancerígenas para transplante
- Faça as células crescerem até ~80% de confluência.
- Colhe as células conforme descrito nos passos 1.3.1–1.3.7.
- Transfira a suspensão da célula para um tubo microcentrífuga de 2 mL.
- Centrifuge as células a 300 × g por 2 minutos em temperatura ambiente.
- Remova o sobrenadante e lave a célula com 1 mL de PBS estéril.
- Repita os passos 2.1.4–2.1.5 e resuspenda as células no PBS restante. Uma suspensão mais densa gera menos sedimentação.
- Pipete a suspensão suavemente para cima e para baixo até obter uma suspensão homogênea de célula única.
NOTA: Uso de ponta de pipeta de 200 μL pré-umedecida (preparada) com uma solução de polivinilpirrolidona (PVP) a 45%, pois ajuda a prevenir a sedimentação celular dentro da microagulha de injeção. - Mantenha a suspensão celular no gelo até a injeção.
NOTA: Se ocorrer aglomeração celular, passe a suspensão celular por um penador celular de 35–40 μm e/ou trate as células com 0,01–0,05 mg/mL de DNase I.
- Produção de ovos de peixe-zebra
- Na noite anterior à coleta esperada de ovos, coloque o peixe-zebra adulto em tanques de reprodução contendo água do sistema (preparados para a desova).
- Mantenha os tanques em total escuridão durante a noite; Isso garante que a desova seja acionada pela manhã do dia seguinte, quando as luzes são acesas.
- Os peixes desovam após o início da luz no dia seguinte. Recolha os ovos despejando a água do aquário por um coador de chá.
- Enxágue os ovos cuidadosamente com medium E3 (5 mM NaCl, 0,17 mM KCl, 0,33 mMCaCl 2, 0,33 mMMgSO 4).
- Transfira os óvulos fertilizados para placas de Petri de 9 cm contendo 20–25 mL de meio E3. Coloque no máximo 50 embriões em cada recipiente.
- Incubar os embriões a 28 °C até novo uso.
NOTA: Tenha cuidado para manter os ovos sempre úmidos.
- Preparação de embriões de peixe-zebra
- Remova manualmente os corions dos embriões a aproximadamente 36 hpf.
- Use dois pares de pinças ultrafinas da Joia nº 5. Com um par, belisque firmemente, mas suavemente, o corion para estabilizar o ovo. Use o segundo par de pinças para segurar o córion próximo ao primeiro par.
- Puxe suavemente a pinça em direções opostas para criar um pequeno rasgo. Alargar cuidadosamente a abertura até que o embrião deslize para fora.
- Anestesiar larvas dechorionadas com solução tricaína recém-preparada de acordo com os protocolos estabelecidos parapeixes-zebra 27.
NOTA: Embriões sem corions são frágeis, pegajosos e devem ser impedidos de exposição ao ar. Use pipetas de vidro e placas de Petri revestidas com agarose ao trabalhar com peixe-zebra <3 dpf.
- Remova manualmente os corions dos embriões a aproximadamente 36 hpf.
- Prepare agulhas de microinjeção
- Retire capilares de vidro sem filamento usando um puxador com parâmetros definidos de acordo com as diretrizes do fabricante.
- Usando pinças finas, quebre a ponta da agulha em dois passos: primeiro, faça uma pequena quebra na ponta fina da agulha. Depois, faça uma segunda quebra exatamente onde as células ficam presas. Isso cria uma abertura ideal que é apenas grande o suficiente para as células passarem, permanecendo o menor possível.
- Preencha a agulha com a suspensão celular usando um microlader longo – uma dica para preencher microcapilares de vidro. Evite introduzir bolhas de ar.
- Use a maior densidade celular possível (concentração máxima) para a suspensão; A dose celular específica é controlada pelas configurações do injetor.
- Carregue a agulha frequentemente com pequenas alíquotas, limitando a coluna de suspensão dentro da agulha a uma altura máxima de 2 mm. Isso minimiza a sedimentação celular dentro da agulha, garantindo uma distribuição mais homogênea e entrega consistente durante as injeções.
- Monte a agulha carregada em um suporte do aparelho de microinjeção.
- Ajuste a pressão de injeção e a duração do pulso para entregar o número desejado de células por injeção (o volume total da suspensão celular injetada não deve exceder o tamanho do olho do embrião de peixe-zebra no momento da injeção).
NOTA: Exemplos detalhados de metodologia de microinjeção de xenoenxertos de peixe-zebra foram descritos anteriormente por outrosautores 28.
- Procedimento de microinjeção
- Injete a suspensão celular no saco vitelino ou na circulação conforme o desenho experimental.
- Entregue mais de 1000 células por embrião sob condições de injeção calibradas.
NOTA: Inclua embriões injetados com soro sorológico tamponado com fosfato (PBS) como controles negativos.
- Manuseio pós-injeção
- Mantenha embrião/larvas injetadas entre 28-32 °C
- Monitore diariamente a sobrevivência larvaria e a progressão do desenvolvimento sob um escopo de dissecação.
- Avalie a proliferação e migração de células tumorais nos pontos experimentais selecionados.
- Prossiga com a medição de ressonanse paramagnética eletrônica (EPR) conforme descrito na seção 3.1 ou armazene a amostra conforme descrito na seção 2.7
NOTA: Descarte larvas com trauma de injeção ou injeção inadequada. Siga todas as diretrizes institucionais de biossegurança e cuidado animal. Manuseie tricaína e resíduos biológicos conforme protocolos de segurança. Descarte materiais perigosos conforme as regulamentações.
- Coleta de amostras para congelamento
- Eutanasie as larvas por imersão em uma solução de tricaína gelada por pelo menos 3 minutos.
- Transfira grupos de 10 larvas para tubos microcentrífugas de 1,5 mL. Remova o excesso de meio de cada tubo.
- Armazene as amostras a -20 °C até a análise de ressonância paramagnética eletrônica.
3. Detecção de radicais de melanina por espectroscopia de ressonância paramagnética eletrônica
- Detecção de radicais melanina em larvas de peixe-zebra in vivo
- Ligue o espectrômetro de ressonância paramagnética de elétrons na banda X e permita que o sistema se estabilize conforme as instruções do fabricante.
- Transfira de 20 a 30 larvas de peixe-zebra (3–5 dias após a fertilização, dpf) para um tubo microcentrífuga de 1,5 mL.
- Preencha o capilar plano para larvas de peixe-zebra com 100 μL de meio E3.
- Sele uma das extremidades do capilar com uma tampa plástica e certifique-se de que a coluna líquida permaneça confinada à câmara plana.
- Transfira várias larvas junto com um pequeno volume de meio E3 para um capilar hematócrito de 100 μL.
- Deposite suavemente as larvas a partir do capilar do hematócrito no topo da parte plana.
NOTA: Tome cuidado para preservar a continuidade da solução. Não devem haver bolhas de ar na parte plana ou perto do topo dela. - Remova o excesso de líquido da seção tubular externa do capilar, mantendo contato contínuo com o líquido dentro da câmara plana.
- Repita os passos 3.1.5–3.1.7 até que 20–30 larvas sejam carregadas no capilar plano.
- Remova o líquido residual das seções tubulares do capilar.
- Insira o capilar no espectrômetro de ressonância paramagnética eletrônica e posicione a amostra no centro do ressonador.
- Defina os parâmetros de aquisição no software do espectrômetro da seguinte forma: campo central = 335 mT; largura de varredura = 10 mT; amplitude de modulação = 500 μT; potência de micro-ondas = 1,6 mW; número de varreduras = 32; tempo de varrimento = 11 s; constante de tempo = 0.
- Adquira o espectro de ressonância paramagnética dos elétrons.
- Remova o capilar do ressonador e libere as larvas em meio E3 fresco em uma placa de Petri.
NOTA: Evite introduzir bolhas de ar durante o carregamento da amostra, pois descontinuidades na coluna de líquido podem reduzir a reprodutibilidade do sinal. Se a detecção multiharmônica não estiver disponível, reduza a amplitude de modulação e otimize os parâmetros de aquisição para maximizar a intensidade do sinal sem distorção espectral.
- Detecção de radicais de melanina em larvas de peixe-zebra congeladas
- Descongele uma amostra congelada contendo 10 larvas de peixe-zebra eutanasiadas em temperatura ambiente por 5–10 minutos.
- Adicione 100 μL de meio E3 à amostra descongelada.
- Transfira as larvas junto com o meio para um capilar hematócrito de 100 μL.
- Remova o excesso de líquido do capilar até que a amostra ocupe apenas o volume do ressonador ativo (cerca de 1 cm de comprimento).
- Sele o capilar com um composto de vedação.
- Insira o capilar no espectrômetro de ressonância paramagnética eletrônica e posicione a amostra no centro do ressonador.
- Defina os parâmetros de aquisição no software do espectrômetro da seguinte forma: campo central = 335 mT; largura de varredura = 10 mT; amplitude de modulação = 500 μT; potência de micro-ondas = 1,6 mW; número de varreduras = 32; tempo de varrimento = 11 s; constante de tempo = 0.
- Adquira e salve o espectro de ressonância paramagnética eletrônica.
NOTA: Certifique-se de que a borda superior da amostra permaneça abaixo da borda superior do ressonador para evitar distorção do sinal. Se a detecção multiharmônica não estiver disponível, reduza a amplitude de modulação e otimize a potência das micro-ondas para maximizar a intensidade do sinal sem distorção espectral.
- Extração de dados de ressonância paramagnética eletrônica de softwares de analisadores multiharmônicos e pós-processamento de espectros
- Abra o espectro de ressonância paramagnética eletrônica registrada no software de análise multiharmônica.
- Ative o processamento de sinal de canal duplo selecionando Usar dois canais.
- Defina o número de harmônicos processados para 30.
- Ajuste o parâmetro fase/grau de micro-ondas até que componentes simétricos de absorção e dispersão sejam obtidos.
- Ajuste o parâmetro de fase/grau de modulação até que o Canal 1 exiba um sinal de absorção pura e o Canal 2 exiba um sinal de dispersão pura.
- Ajuste o parâmetro amplitude/G de modulação até que a linha espectral mais estreita e não distorcida seja obtida.
- Defina o parâmetro passa-baixa/Hz para reduzir o ruído de alta frequência enquanto preserva a forma da linha espectral.
- Selecione a aba Supressão de Ruído e clique em Ativar supressão de ruído. Ajuste os parâmetros do fator de suavização e do refinamento da linha estreita até que a relação sinal-ruído seja melhorada sem distorção visível da linha espectral.
- Selecione a aba Artefatos e ative a correção de Outliers e a correção de largura de banda.
- Salve espectros em um formato usado pelo software de análise de dados para análises posteriores.
- Calcule a intensidade do sinal duplamente integrada usando integração numérica em softwares adequados de análise de dados.
NOTA: Ao trabalhar com ressonadores de alta Q, a correção de largura de banda melhora a reconstrução de componentes harmônicos mais altos. A reconstrução multiharmônica permite a recuperação de espectros não distorcidos a partir de dados brutos supermodulados e melhora a relação sinal-ruído em amostras biológicas de baixa intensidade.
Resultados
Uma visão geral esquemática do fluxo de trabalho experimental é apresentada na Figura 1. Embriões de peixe-zebra foram coletados, transplantados com células de melanoma B16F10, incubados sob condições controladas e monitorados por microscopia de campo claro ou fluorescência antes da análise por ressonância paramagnética eletrônica em banda X. Embriões vivos foram posteriormente carregados em um capilar/suporte plano para amostras para medições de ressonância paramagnética de elétrons em organismos inteiros, permitindo a detecção não invasiva de sinais radicais associados à melanina. Após a aquisição por ressonância paramagnética eletrônica, embriões foram liberados em um meio E3 fresco, permitindo medições longitudinais nos mesmos espasmes biológicos.
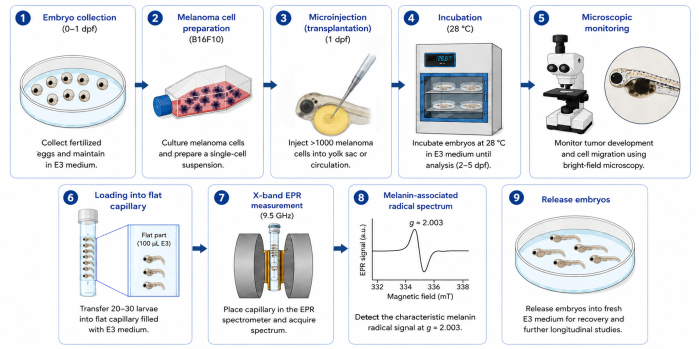
Figura 1: Visão gráfica do fluxo experimental para monitoramento in vivo de radicais associados à melanina em xenoenxertos de melanoma de peixe-zebra, utilizando espectroscopia de ressonância paramagnética eletrônica (EPR) em banda X. Embriões de peixe-zebra são coletados, transplantados com células de melanoma, incubados e monitorados microscópicamente antes de serem carregados em um capilar plano personalizado para medições de EPR de organismos inteiros. Após a detecção do sinal radical característico associado à melanina (g ≈ 2,003), as larvas são liberadas para medições longitudinais de acompanhamento. Por favor, clique aqui para ver uma versão ampliada desta figura.
Para validar a especificidade do método, foram realizadas medições em embriões de peixe-zebra selvagem (WT) e albinos. Embriões de WT começam a desenvolver pigmentação visível em aproximadamente 27 hpf. Correspondentemente, espectros de ressonância paramagnética eletrônica adquiridos de embriões WT exibem um sinal característico de linha única centrado em g ≈ 2,003, consistente com radicais semiquinônicos derivados da eumelanina (por exemplo, DHI/DHICA). Em contraste, embriões albinos, que não possuem síntese funcional de melanina, não apresentam sinal detectável de ressonância paramagnética eletrônica na mesma região espectral, mesmo 5 dias após a fertilização (dpf). Isso confirma que o sinal observado se origina especificamente de radicais de melanina e representa um controle negativo validando a seletividade do método (Figura 2).
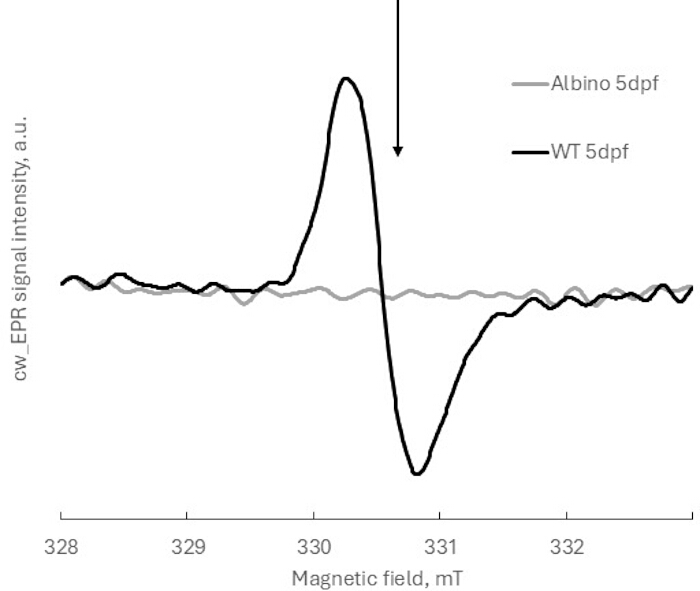
Figura 2: Espectros representativos de ressonância paramagnética eletrônica em banda X de embriões de peixe-zebra selvagem (WT) e albinos, a 5dpf. A seta indica a posição de ressonância (g ≈ 2,003) do sinal radical associado à melanina proveniente de embriões de peixe-zebra WT 5dpf. Por favor, clique aqui para ver uma versão ampliada desta figura.
O método permite o monitoramento quantitativo da formação de radicais de melanina durante o desenvolvimento. À medida que a pigmentação progride, observa-se um aumento claro na intensidade do sinal de ressonância paramagnética eletrônica. A comparação de embriões de WT de 2 dpf para 5 dpf mostra um aumento substancial no sinal de ressonância paramagnética eletrônica duplamente integrada normalizado por embrião. A normalização foi feita dividindo as intensidades brutas do sinal de ressonância paramagnética eletrônica pelo número de embriões na amostra antes de calcular a integral dupla (Figura 3A).
A análise estatística foi realizada usando o teste de Kruskal–Wallis, seguido pelo teste de comparações múltiplas de Dunn. A análise de seis réplicas biológicas independentes (cada uma composta por 7–10 embriões) demonstrou diferenças estatisticamente significativas no sinal normalizado de ressonância paramagnética eletrônica entre os estágios de desenvolvimento (p < 0,05), confirmando a sensibilidade do método.
A integral dupla dos espectros de ressonância paramagnética dos elétrons é proporcional ao número de spins de elétrons desemparelhados. Assim, seu aumento indica um aumento na população de radicais associados à melanina durante o desenvolvimento. Importante destacar que esse aumento provavelmente reflete mudanças no equilíbrio redox de melanina associadas à melanogênese progressiva, e não apenas ao acúmulo de pigmento.
A reprodutibilidade do protocolo foi avaliada adicionalmente comparando espectros representativos de ressonância paramagnética eletrônica adquiridos de amostras contendo diferentes números de embriões (7 versus 10) no mesmo estágio de desenvolvimento (5 dpf). Como esperado, os espectros brutos mostraram diferenças na amplitude do sinal proporcionais ao tamanho da amostra (Figura 3B). Após a normalização de cada espectro para o número de embriões por amostra, os espectros se sobrepuseram quase completamente (Figura 3C), e a variabilidade entre lotes permaneceu abaixo de 10%. Esses resultados destacam a importância da normalização por embrião e confirmam a robustez do método para estudos comparativos.
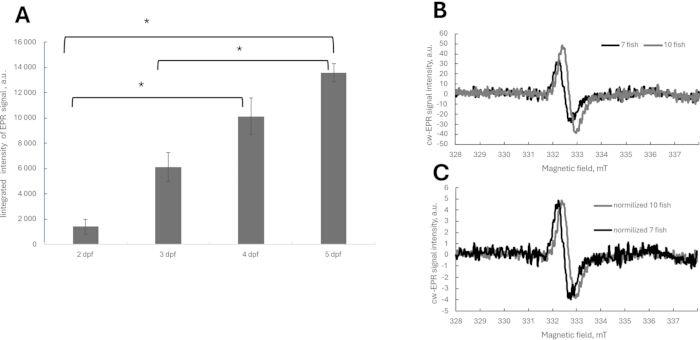
Figura 3: Monitoramento quantitativo da dinâmica radical associada ao desenvolvimento da melanina e normalização dos espectros de ressonância paramagnética eletrônica. (A) Sinal de ressonância paramagnética de elétrons em banda X duplamente integrado obtido de embriões de peixe-zebra do tipo selvagem (WT) aos 2, 3, 4 e 5 dias após a fertilização (dpf). A intensidade do sinal foi normalizada ao número de embriões por amostra. Os dados representam a média ± DS de seis réplicas biológicas independentes, cada uma composta por 7–10 embriões. Diferenças estatisticamente significativas - *p < 0,05. (B) Espectros representativos de ressonância paramagnética de elétrons brutos adquiridos de embriões de 5 dpf WT usando amostras contendo 7 e 10 embriões. A amplitude do sinal aumenta proporcionalmente ao número de embriões na amostra. (C) Os mesmos espectros de ressonância paramagnética eletrônica mostrados no painel B após a normalização, ou seja, as intensidades espectrais brutas, são divididos pelo número de embriões no capilar. Por favor, clique aqui para ver uma versão ampliada desta figura.
Para avaliar se o protocolo depende do capilar plano personalizado usado para medições in vivo de peixe-zebra, a detecção de radicais associada à melanina foi realizada usando tanto o capilar plano personalizado quanto um capilar comercial padrão disponível para análise ex vivo . Espectros representativos de ressonância paramagnética de elétrons adquiridos usando ambos os suportes da amostra mostraram formato de linha e posição de ressonância altamente comparáveis (Figura 4A), indicando que a detecção confiável de radicais associados à melanina não se restringe ao design capilar personalizado. Os sinais dos capilares planos, após normalização por embrião, foram 2 vezes menores do que aqueles recalculados a partir do capilar padrão.
Para avaliar ainda mais a flexibilidade do manuseio da amostra, embriões de peixe-zebra foram medidos imediatamente após a coleta e após o congelamento, seguidos por análise ex vivo usando capilares padrão. Não foram observadas diferenças estatisticamente significativas entre amostras frescas e congeladas em seis réplicas biológicas independentes (Figura 4B). Esses resultados demonstram que o protocolo pode ser adaptado para suportes de amostras de ressonância paramagnética eletrônica comumente disponíveis e suporta análise ex vivo atrasada, aumentando significativamente a acessibilidade, flexibilidade e reprodutibilidade do método em laboratórios com diferentes espectrômetros de ressonância paramagnética eletrônica.
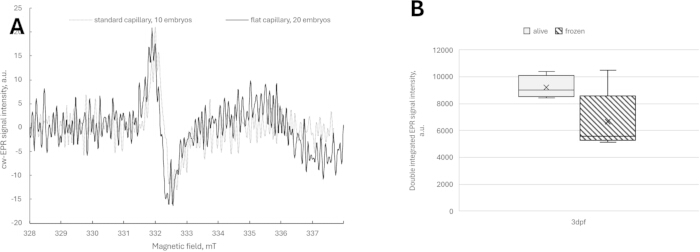
Figura 4: Compatibilidade do protocolo. (A) Espectros de ressonância paramagnética eletrônica bruta medidos em capilares padrão e planos de peixes-zebra WT 2dpf. (B) Comparação das mesmas réplicas biológicas (3 dpf WT peixe-zebra) medidas vivas e congeladas em capilares padrão. Por favor, clique aqui para ver uma versão ampliada desta figura.
Para determinar se o sinal de ressonância paramagnética eletrônica detectado poderia ser atribuído diretamente aos radicais de melanina derivados do melanoma, embriões de peixe-zebra albinos foram usados como fundo livre de melanina e injetados com células de melanoma B16F10. Medições de ressonância paramagnética eletrônica foram realizadas 4 dias após a fertilização (dpf) sob as mesmas condições de aquisição usadas para embriões do tipo selvagem. Como esperado, embriões albinos não injetados não apresentaram sinal detectável de ressonância paramagnética eletrônica na região espectral específica da melanina. Importante destacar que nenhum sinal detectável de ressonância paramagnética eletrônica associado à melanina foi observado em embriões albinos com células B16F10 injetadas (Figura 5A), apesar do enfratimento celular bem-sucedido confirmado por microscopia brilhante (Figura 5B).
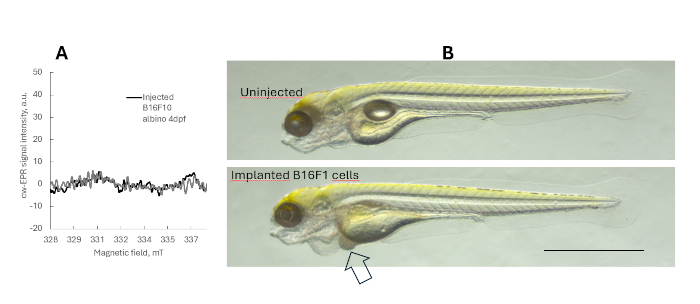
Figura 5: Avaliação da detecção de radicais associados à melanina derivados diretamente de melanoma em xenoenxertos de peixe-zebra albinos. (A) Sinal de ressonância paramagnética eletrônica associado à melanina em medições de xenoenxerto albino 4df e albino-B16F10 medido com um espectrômetro de ressonância paramagnética eletrônica em banda X. Foram usadas três réplicas biológicas de 10 embriões cada. (B) Imagem em campo claro de 4 dpf de albino e xenoenxerto albino, com B16F10 três dias após a implantação de células cancerígenas. Por favor, clique aqui para ver uma versão ampliada desta figura.
Esses resultados indicam que, sob as condições experimentais atuais, o número de células de melanoma injetadas está abaixo do limiar direto de detecção da ressonância paramagnética eletrônica em banda X. Portanto, o sinal associado à melanina detectado nas medições de organismos inteiros reflete principalmente mudanças globais no status redox de melanina do embrião/larva do peixe-zebra, em vez de um sinal específico do melanoma originado exclusivamente do xenoenxerto.
Em experimentos com xenoenxertos, a eficiência do enfermimento e crescimento das células de melanoma dependia fortemente do local da injeção. A injeção na circulação (corrente sanguínea) resultou em um desenvolvimento tumoral mais consistente e permitiu uma detecção confiável de sinais de ressonância paramagnética eletrônica associada às células do melanoma. Em contraste, a injeção no saco vitelino levou a desenvolvimento embrionário prejudicado e crescimento tumoral pobre, resultando em sinais fracos ou inconsistentes. Portanto, recomenda-se a injeção na corrente sanguínea para obter resultados robustos e interpretáveis (Figura 6).
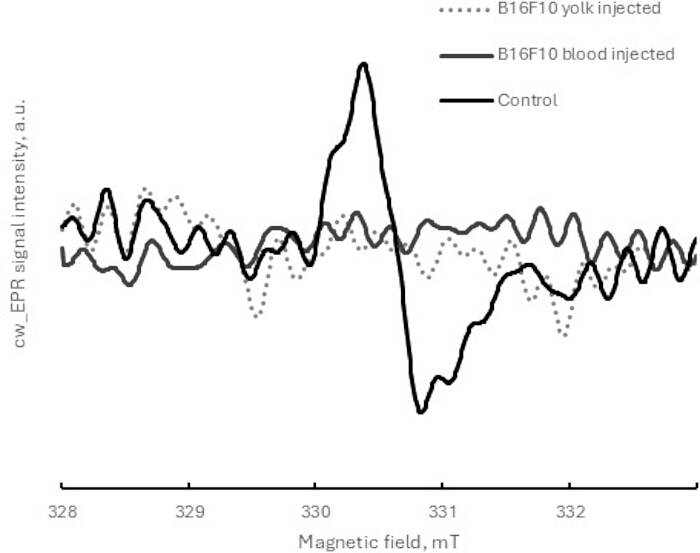
Figura 6: Efeito do sítio de injeção de células de melanoma no embrião de 2 dpf e no desenvolvimento de xenoenxertos de peixe-zebra medido com ressonância paramagnética de elétrons em banda X. Espectros representativos de ressonância paramagnética eletrônica de embriões de peixe-zebra injetados com células de melanoma B16F10 no saco vitelino ou circulação. Por favor, clique aqui para ver uma versão ampliada desta figura.
Para demonstrar ainda mais a aplicabilidade do método em modelos de melanoma, comparamos o sinal de ressonância paramagnética eletrônica obtido de embriões de peixe-zebra selvagem (WT) e embriões WT injetados com células de melanoma B16F10 em diferentes momentos de desenvolvimento.
Nos embriões de WT, o sinal de ressonância paramagnética dos elétrons aumentou progressivamente com o tempo, refletindo o acúmulo natural de eumelanina durante o desenvolvimento. Em contraste, embriões portando xenoenxertos B16F10 apresentaram dinâmica alterada do sinal, com um sinal de ressonância paramagnética eletrônica modificado em comparação com WT nos pontos temporais correspondentes (Figura 7). Essas diferenças provavelmente refletem a modulação induzida pelo tumor da melanogênese do hospedeiro e condições redox sistêmicas, em vez da detecção direta apenas dos radicais de melanina derivados do melanoma. Como as células B16F10 produzem principalmente eumelanina, nenhum sinal de feomelanina foi detectado.
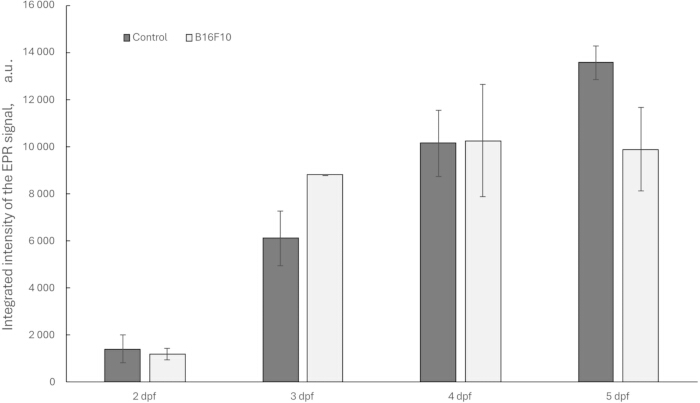
Figura 7: Comparação representativa da dinâmica do sinal EPR de organismos inteiros em embriões de peixe-zebra com WT e WT B16F10. Sinal de ressonância paramagnética eletrônica em banda X dupla integração obtido de embriões de peixe-zebra do tipo selvagem (WT) e xenoenxertos WT B16F10 em 2, 3, 4 e 5 dias após a fertilização (dpf). A intensidade do sinal foi normalizada ao número de embriões por amostra. Os dados representam a média ± DS de seis réplicas biológicas independentes (para controle) e três para xenoenxertos B16F10, cada um com 7–10 embriões. Por favor, clique aqui para ver uma versão ampliada desta figura.
No geral, a implementação bem-sucedida deste protocolo é indicada por: (i) detecção de um sinal claro de ressonância paramagnética eletrônica de linha única em g ≈ 2 em embriões pigmentados, (ii) ausência de sinal nos controles albinos, (iii) aumento da intensidade do sinal com o estágio de desenvolvimento e (iv) reprodutibilidade entre replicações biológicas após normalização.
Discussão
Este estudo apresenta um protocolo robusto e sensível para a detecção in vivo de radicais associados à melanina em embriões de peixe-zebra, utilizando espectroscopia de ressonância paramagnética eletrônica em banda X. O método permite o monitoramento não invasivo, sem marcador, das alterações redox associadas à melanina durante melanogênese fisiológica, desenvolvimento de xenoenxertos de melanoma e intervenção farmacológica. Ao combinar a alta sensibilidade da espectroscopia de ressonância paramagnética eletrônica em banda X com a plataforma de xenoenxerto de peixe-zebra, essa abordagem amplia as capacidades analíticas dos modelos atuais de melanoma de peixe-zebra além da imagem morfológica convencional, rumo à caracterização bioquímica direta de espécies de melanina com atividade redox. Ao contrário da imagem baseada em fluorescência, que fornece principalmente informações estruturais e espaciais, a espectroscopia de ressonância paramagnética eletrônica detecta diretamente radicais semiquinona paramagnéticos estáveis, fornecendo insights funcionais complementares sobre a biologia redox da melanina.
O fluxo de trabalho apresentado tem ampla aplicabilidade em pesquisas sobre pigmentação e melanoma. As aplicações potenciais incluem avaliação de terapias antimelanomas, investigação de alterações induzidas por fármacos no equilíbrio redox, avaliação de compostos moduladores de melanogênese, como agentes despigmentantes ou de resposta UV, e análise das interações tumor-hospedeiro in vivo. Além disso, a integração com imagens de fluorescência e outros ensaios fenotípicos pode fornecer uma plataforma multimodal que combine informações espaciais, morfológicas e bioquímicas, aumentando assim o valor preditivo dos modelos de peixe-zebra em pesquisas pré-clínicas e desenvolvimento terapêutico.
Vários parâmetros experimentais são críticos para obter resultados confiáveis. Em experimentos de xenoenxertos, a injeção na circulação proporcionou medições de entraltos mais consistentes e ressonância paramagnética de elétrons reproduzíveis do que a injeção de saco vitelino, o que está de acordo com estudosanteriores 29,30. A escolha da temperatura de incubação desempenha um papel importante. Embora xenoenxertos de peixe-zebra possam normalmente ser mantidos a 32 °C para favorecer a cinética celulardos mamíferos 31, as linhas murinas de melanoma B16F10 empregadas neste estudo parecem suficientemente agressivas para demonstrar robustas capacidades proliferativas e migratórias a 28 °C. Como um ambiente de 32 °C poderia acelerar significativamente o desenvolvimento do peixe-zebra — potencialmente levando a um comportamento alimentar independente antes do quinto dia após a fertilização — manter as larvas a 28 °C garantiria que os organismos permanecessem dentro dos estágios dedesenvolvimento não protegidos 32. Consequentemente, essa escolha de temperatura pode permitir a observação bem-sucedida da progressão tumoral e da metástase, mantendo-se em conformidade com as regulamentações de bem-estar animal que protegem as larvas quando atingem o estágio de alimentação independente. Outro ponto crítico é que a normalização precisa do número de embriões e a estadiamento consistente do desenvolvimento são essenciais para minimizar a variabilidade biológica. Sinais fracos ou inconsistentes podem resultar de pigmentação insuficiente, baixa carga tumoral, posicionamento subótimo da amostra dentro do ressonador ou preenchimento capilar incompleto. Nesses casos, aumentar o número de embriões por amostra, otimizar a eficiência do transplante e verificar a colocação da amostra dentro do volume do ressonador ativo pode melhorar a detecção de sinais. Um número maior de embriões é necessário para medições in vivo em capilar plano devido às perdas dielétricas e ao fator de preenchimento reduzido associado a medições de organismos inteiros em amostras biológicas aquosas. Ainda assim, esse método poderia ser usado com capilares padrão ex vivo. Essas descobertas demonstram que o protocolo é compatível com configurações de espectroscopia de ressonância paramagnética eletrônica em banda X amplamente disponíveis e suporta análise ex vivo retardada, aumentando a acessibilidade e a reprodutibilidade entre laboratórios que utilizam diferentes instrumentos.
Apesar de suas vantagens, o método apresenta várias limitações. Uma consideração biológica importante é que o sinal de ressonância paramagnética eletrônica detectado reflete a fração redox ativa do polímero de melanina, e não apenas o conteúdo totalde pigmento 15,21,33. Assim, mudanças na intensidade do sinal de ressonância paramagnética eletrônica devem ser interpretadas como alterações no equilíbrio redox associado à melanina, e não como um substituto direto da abundância de melanina. Os experimentos com xenoenxertos albinos demonstraram ainda que, sob as condições experimentais atuais, o número de células de melanoma injetadas permanecia abaixo do limiar direto de detecção da espectroscopia de ressonância paramagnética eletrônica em banda X. Portanto, o sinal do organismo inteiro detectado em larvas portadoras de xenoenxertos reflete principalmente mudanças globais no status redox associado à melanina do hospedeiro induzidas por interações tumor-hospedeiro, em vez do sinal específico do melanoma originado exclusivamente do xenoenxerto. Importante destacar que o microambiente do peixe-zebra introduz gradientes dinâmicos de oxigênio, interações metabólicas e condições de estresse oxidativo que podem modular ainda as populações radicais de melanina in vivo19,20. Em aplicações de xenoenxertos, o método atualmente é limitado a modelos de melanoma altamente pigmentado, pois é necessária concentração suficiente de melanina para a detecção confiável do sinal. Tumores amelanóticos ou fracamente pigmentados podem não produzir sinaisdetectáveis 27. Além disso, as linhas celulares de melanoma usadas neste estudo (B16F10) produzem predominantemente eumelanina, resultando em uma única linha de ressonância paramagnética eletrônica. Em modelos com contribuição significativa de feomelanina, a sobreposição espectral podeocorrer 13. Nesses casos, seriam necessárias simulações espectrais avançadas e deconvolução para distinguir entre sinais de eumelanina e feomelanina.
No entanto, o fluxo de trabalho apresentado oferece amplo potencial para estudar a biologia do melanoma, a modulação induzida por fármacos da melanogênese, o estresse oxidativo e as interações tumor-hospedeiro in vivo. A integração da espectroscopia de ressonância paramagnética eletrônica com imagens de fluorescência, repórteres genéticos e outros ensaios fenotípicos pode aumentar ainda mais o valor preditivo dos modelos de peixe-zebra na pesquisa pré-clínica de melanoma e no desenvolvimento terapêutico.
Divulgações
O autor Mikołaj Baranowski trabalha na Novilet, que fabrica componentes do espectrômetro usado neste estudo (analisador multiharmônico). Os autores restantes declaram não haver interesses concorrentes.
Agradecimentos
O projeto "Um novo capilar e um método para determinar o radical melanina para uso em estudos pré-clínicos de potenciais medicamentos para melanoma no modelo embrionário Danio rerio " FENG.02.07-IP.05-0059/23 foi realizado dentro do programa FENG POC da Fundação para a Ciência Polonesa, cofinanciado pela União Europeia sob os Fundos Europeus para Economia Inteligente 2021–2027 (FENG). Essa pesquisa foi apoiada pela União Europeia no âmbito do Programa de Operação de Crescimento Inteligente (número do projeto POIR.01.02.00-00-0077/18).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 1.5 mL ou 0.5 mL tubos eppendorf | Eppendorf | 0030120086, 0030121023 | Para transferência de larvas de peixe-zebra para capilar |
| Pipetas Pasteur descartáveis de 3 mL | Medlab Products | 76-1303-2 | Para classificação e transferência de embriões e larvas |
| Espectrômetro EPR X-band de bancada MiniScope MS200 | Magnettech | Bruker.com | Registro de espectros EPR |
| Cloreto de cálcio, di-hidratado | Chempur | 363-118748706 | Para preparar o meio E3 |
| Lâminas de contagem de células (por exemplo, EVE ou EVE PLUS) | Nanoentek Inc | NC2200445 | Para contador de células |
| CellTracker Green | Thermo Fisher | C2925 | Corante fluorescente para rastreamento celular, para marcação de células |
| CM-DiI | Thermo Fisher | C7000 | Corante fluorescente para rastreamento celular, para marcação de células |
| Incubadora de CO2 ICO240med | Memmert | N/A | Para manutenção de células, configurada para 37°C, 5% CO2, ≥95% umidade |
| Contador Automático de Células Countess II | Invitrogen | AMQAX1000 | Para contar células e densidade celular |
| Caixas de armazenamento criogênico CryoKING | Biologix | BGX-ID81 | Para armazenamento de peixes-zebra com xenoenxertos |
| Meio de criopreservação CM-1 | Cytion | #800150 | Para congelar células de cancro |
| Meio de Eagle Modificado de Dulbecco (DMEM), alta glicose, glutamina, sem piruvato de sódio | Gibco | #11965-092 | para manutenção da cultura celular |
| Meio E3 | In house | N/A | Para manutenção de embriões/larvas de peixe-zebra, preparado de acordo com Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Incubadora de ovos | Incubato | 10130024 | Para a incubação de embriões/larvas de peixe-zebra, configurado para 28–32°C |
| software eSpect+ | Novilet | https://novilet.eu/products/espect/ | Para analisador multiarmônico |
| Soro Bovine Fetal (FBS) | Gibco | A5256701 | Suplemento para DMEM |
| Pinças finas, revestidas de cerâmica, Dumont #5, 11 cm | Dumont SA | 11252-50 | Para decorionation de embriões de peixe-zebra |
| Capilares de vidro plano projetados para peixes-zebra (Número de Aplicação: 21 736) | N/A | N/A | Para medições EPR de embriões de peixe-zebra |
| Agulhas de capilar de vidro | Harvard Apparatus | GB100-10 | Sem filamento, para microinjeções |
| Capilares de hematócrito (pipetas microdisposáveis BRAND BLAUBRAND), volume 50 e 100 μL | BRAND | 41121500 | Para medições EPR ou para transferência de larvas de peixe-zebra para capilar plano |
| Cloreto de magnésio, hexa-hidratado | Chempur | 363-116120500 | Para preparar o meio E3 |
| Sistema de microinjeção com micromanipulador FemtoJet | Eppendorf | EPE5252000021 | Para carregar células em microagulhas |
| Dicas de carregamento de microloader para carregamento de agulha | Eppendorf | #5242956003 | Para sistema de microinjeção |
| Linha celular de melanoma de rato B16-F1 | Cytion | CLS-400122 | Para xenoenxertos |
| Linha celular de melanoma de rato B16-F10 | Cytion | 305157 | Para xenoenxertos |
| Analisador multiarmônico eSpect+ | Novilet | https://novilet.eu/products/espect/ | Para espectrômetro EPR, para aumentar a sensibilidade |
| Solução de Penicilina-Estreptomicina | Sigma | P0781-50ml | Opcional, suplemento para DMEM para cultura celular |
| Placa de Petri, 55 mm | Medlab Products | 51-0056-0A-NX | Para incubação de ovos, embriões e larvas de peixe-zebra |
| Soro Salino Fosfato (PBS), sem cálcio e magnésio | Sigma | D8537-500ml | Para lavagem de células |
| Cloreto de potássio | Chempur | 363-117397402 | Para preparar o meio E3 |
| Kit de vedação para capilares de hematócrito - Critoseal | Noxygen | NOX-A.3-VPC | Para medições EPR de embriões de peixe-zebra |
| Cloreto de sódio | Chempur | 363-117941206 | Para preparar o meio E3 |
| Recipiente de armazenamento estático de nitrogênio líquido | Biobase | YDS-47-127-FS | Para armazenamento de culturas celulares |
| Estereomicroscópio | Optatech | SK Series | Para avaliação do desenvolvimento de embriões de peixe-zebra |
| Tubos Falcon estéreis de 15 mL | SPL Life Sciences | S50015 | Para colheita de células (centrifugação) |
| Pratos de Petri estéreis de 90 nm | Googlab Scientific | GP508 | Para culturas celulares |
| Crioviais estéreis: Tubo CryoPure 1,0 mL | Sarstedt | 72.377 | Para congelar células |
| Pipetas Pasteur estéreis de cultura de tecido (Pipetas Serológicas Corning Falcon), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 | Para culturas celulares |
| Tricaine (MS-222) | Sigma | 886-86-2 | Solução de 4 g/L preparada recentemente, para anestesia e eutanásia de peixes-zebra |
| TrypLE Express (1×) ou Trypsin-EDTA (0,05%) | Gibco | #12605-010 | Para desagregação celular |
Referências
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve