A nefropatia diabética (ND) envolve disfunção mitocondrial. Utilizando transcriptômica, farmacologia de rede e aprendizado de máquina, identificamos CAT, FABP1, MAOA e MAOB como biomarcadores candidatos relacionados às mitocôndrias para o Ligustri Lucidi Fructus. Em camundongos db/db, o LLF regulou positivamente CAT e MAOA, apoiando investigações mecanicistas adicionais.
Artigo de investigação
Identificação de Biomarcadores Candidatos Relacionados às Mitocondrias do Ligustri Lucidi Fructus na Nefropatia Diabética
Neste artigo
Resumo
Resumo
A disfunção mitocondrial e o estresse oxidativo excessivo dentro das mitocôndrias são fatores patológicos-chave que impulsionam a lesão tubular renal na nefropatia diabética (ND). Embora o Ligustri Lucidi Fructus (LLF) seja tradicionalmente usado para tratar a ND, os mecanismos envolvidos, particularmente aqueles relacionados a genes e vias associados às mitocôndrias, permanecem pouco compreendidos. Este estudo utilizou análise de expressão diferencial do conjunto de dados GSE142025 para identificar genes diferencialmente expressos (GDEs) relacionados à ND. Genes característicos foram selecionados mediante comparação cruzada dos resultados de quatro modelos de aprendizado de máquina. Genes que apresentaram expressão diferencial significativa e padrões de expressão consistentes em ambos os conjuntos de dados foram posteriormente avaliados por análise da curva característica de operação do receptor (ROC). Aqueles com área sob a curva (AUC) > 0,7 em ambos os conjuntos de dados foram definidos como biomarcadores candidatos. Foram realizadas análises de enriquecimento funcional, infiltração imune, construção de redes e acoplamento molecular. Um modelo de camundongo com ND foi utilizado para avaliar glicose sanguínea, microalbumina urinária, histopatologia e expressão por RT-qPCR dos biomarcadores candidatos. CAT e MAOA foram significativamente superexpressos in vivo. Os biomarcadores candidatos foram enriquecidos em vias relacionadas à função do ribossomo, degradação de valina, leucina e isoleucina, interações citocina-receptor de citocina e peroxissomos. Eles apresentaram correlação negativa com células T CD8+ e mastócitos ativados, e correlação positiva com células NK ativadas e linfócitos B ingênuos. Taxifolina, beta-sitosterol e eriodictiol apresentaram energias de ligação abaixo de -5 kcal/mol com os biomarcadores candidatos. CAT e MAOA são candidatos promissores que justificam investigações mecanicistas adicionais.
Introdução
A nefropatia diabética (ND), a principal causa de doença renal em estágio terminal em todo o mundo, é uma das complicações mais comuns do diabetes melito. Do ponto de vista patológico, caracteriza-se pelo acúmulo excessivo de matriz extracelular nos compartimentos glomerular e tubular, juntamente com espessamento e esclerose dos vasos sanguíneos intrarrenais2. A ND está comumente associada à proteinúria e hipertensão3. Seu desenvolvimento está estreitamente ligado ao dano das células endoteliais vasculares, resposta inflamatória exacerbada e estresse oxidativo acentuado decorrentes da hiperglicemia prolongada4. A incidência de ND está aumentando em todo o mundo, especialmente entre indivíduos diabéticos de meia-idade e idosos. À medida que a doença progride, pode levar à insuficiência renal em estágio terminal e até a complicações cardiovasculares, comprometendo significativamente a qualidade de vida e o prognóstico dos pacientes5. Apesar dos avanços nos métodos diagnósticos e terapêuticos para a ND, biomarcadores candidatos precoces e precisos para o diagnóstico ainda são difíceis de identificar, e estratégias terapêuticas eficazes para reverter os processos patológicos ainda são insuficientes. Portanto, existe uma necessidade urgente de desenvolver novas drogas anti-ND direcionadas.
As mitocôndrias são essenciais para a bioenergética celular, síntese de precursores metabólicos, homeostase de cálcio, produção de espécies reativas de oxigênio (ROS), sinalização imunológica e apoptose, todos os quais são fundamentais para manter a estabilidade celular e do organismo6. Como as usinas energéticas da célula, as mitocôndrias desempenham um papel fundamental em processos básicos como a glicólise, o ciclo do ácido tricarboxílico e a fosforilação oxidativa7. A obesidade interrompe o ciclo de Krebs e a cadeia respiratória mitocondrial, levando à disfunção mitocondrial e aumento da produção de ROS. Níveis elevados de ROS na cadeia respiratória mitocondrial podem induzir estresse oxidativo, o que agrava a resposta inflamatória associada à obesidade e promove a apoptose8. Pesquisas recentes destacaram o papel significativo da disfunção mitocondrial na patogênese e progressão da DN, incluindo distúrbios no metabolismo energético, geração excessiva de ROS e sinalização aumentada de apoptose9. A disfunção mitocondrial crônica acelera a progressão da doença renal10. Assim, melhorar a função mitocondrial poderia representar uma estratégia protetora crucial contra a DN.
Ligustri Lucidi Fructus (LLF) é um fruto seco e maduro da família Luteaceae conhecido por suas propriedades nutritivas para o fígado e os rins, bem como por sua capacidade de escurecer os cabelos e melhorar a visão. Um heteropolissacarídeo natural extraído do LLF foi identificado, revelando seu potencial para proteger os rins contra a fibrose11. Nos últimos anos, tem havido um crescente interesse pelo uso do LLF no tratamento da nefropatia diabética (DN), com efeitos renoprotetores notáveis demonstrados11,12,13. Além disso, a relação complexa entre o LLF e as mitocôndrias tem sido amplamente investigada e validada. Notavelmente, um estudo mostrou que o LLF exerce seus efeitos benéficos modulando a função mitocondrial por meio da ativação da via de sinalização AMPK14. Esse mecanismo protege efetivamente as mitocôndrias contra danos causados pelo estresse oxidativo. Essas descobertas enfatizam ainda mais o papel essencial do LLF na manutenção do metabolismo energético celular e na melhoria da resistência das células ao estresse oxidativo. No entanto, o mecanismo terapêutico exato, particularmente em relação à recuperação da função mitocondrial, permanece pouco compreendido.
O objetivo deste estudo foi elucidar os mecanismos biológicos subjacentes ao efeito terapêutico do LLF sobre a função mitocondrial na DN. Bancos de dados públicos foram pesquisados utilizando ferramentas de bioinformática para identificar biomarcadores candidatos associados aos efeitos renoprotetores do LLF, integrando dados transcriptômicos e informações sobre ingredientes ativos. Análises adicionais, incluindo infiltração imune, associação com características clínicas, modificação de RNA por m6A, enriquecimento funcional, construção de rede regulatória e acoplamento molecular, sugeriram que esses biomarcadores candidatos desempenham um papel fundamental na regulação da função mitocondrial durante o tratamento da DN. A validação in vivo confirmou ainda mais sua importância. Essa análise abrangente aprofunda nossa compreensão dos mecanismos pelos quais o LLF trata a DN e fornece uma base sólida para o desenvolvimento de novos alvos terapêuticos baseados na disfunção mitocondrial.
Protocolo
Coleta de dados
A matriz de expressão gênica e os dados clínicos correspondentes dos conjuntos de dados GSE142025 e GSE96804, relacionados à DN, foram obtidos do banco de dados Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)15. O conjunto de treinamento (GSE142025) incluiu amostras de tecido renal de 27 pacientes com DN e nove controles, sequenciados utilizando a plataforma GPL20301. O conjunto de validação (GSE96804) compreendeu dados de sequenciamento de 41 pacientes com DN e 20 controles, processados utilizando a plataforma GPL17586. Ambos os conjuntos de dados concentram-se em tecido renal; o conjunto de dados GSE96804 examina especificamente o glomérulo, a unidade primária de filtração do rim (Figura 1). O conjunto de dados GSE142025 (conjunto de treinamento) compreende amostras de tecido renal inteiro e fornece uma visão abrangente da paisagem transcritômica da DN. O conjunto de dados GSE96804 (conjunto de validação), por outro lado, foca especificamente no tecido glomerular, que é o local primário da lesão na filtração glomerular. Como esses dois conjuntos de dados não foram diretamente mesclados devido às diferenças na plataforma e no tecido, a correção de efeito de lote não foi aplicada. Em vez disso, a validação cruzada entre conjuntos de dados foi realizada de forma independente. Genes com alterações direcionais consistentes e uma área sob a curva (AUC) maior que 0,7 em ambos os conjuntos de dados foram selecionados como candidatos robustos, o que apoia a generalização entre compartimentos renais.
Um total de 1.136 genes relacionados às mitocôndrias (MRGs) foi extraído do banco de dados MitoCarta3.0 (https://www.broadinstitute.org/mitocarta). Os ingredientes ativos do LLF foram previstos utilizando o banco de dados Traditional Chinese Medicine Systems Pharmacology (TCMSP) (http://sm.nwsuaf.edu.cn/lsp/tcmsp.php), com base em um limiar de biodisponibilidade oral (OB) de ≥30% e um limiar de semelhança com fármacos (DL) de ≥0,18. Posteriormente, os genes-alvo potenciais para os constituintes ativos foram previstos utilizando o banco de dados Swiss Target Prediction (http://www.swisstargetprediction.ch/).
Análise de expressão diferencial
A análise de expressão diferencial de GSE142025 (DN versus controle) foi realizada utilizando o pacote limma (v3.54.1), com critérios de significância definidos em P.adj < 0,05 e |log2FoldChange| > 0,516. Os gráficos de vulcão e mapas de calor foram visualizados utilizando os pacotes ggplot2 (v 3.3.6) e ComplexHeatmap (v 2.14.0)17,18, respectivamente. Os genes diferencialmente expressos (DEGs), genes relacionados a resistência (MRGs) e os genes-alvo potenciais dos ingredientes ativos foram intersectados, e os genes sobrepostos foram definidos como genes candidatos. A rede que liga os ingredientes ativos aos genes candidatos foi construída utilizando o software Cytoscape (v 3.9.0)19.
Análise de enriquecimento funcional e construção da rede de interação proteína-proteína (PPI)
As análises de enriquecimento da Ontologia Genética (GO) e do Banco de Dados Kyoto de Genes e Genomas (KEGG) para os genes candidatos foram realizadas utilizando o pacote clusterProfiler (v 4.6.2) para explorar suas funções biológicas e vias de sinalização associadas (P.adjust < 0,05). Os genes candidatos foram então inseridos no banco de dados STRING (https://cn.string-db.org/) para recuperar as interações de PPI (nível de confiança ≥ 0,4), seguido pela construção de uma rede de PPI utilizando o Cytoscape (v 3.9.0)20.
Aprendizado de máquina
Quatro algoritmos de aprendizado de máquina, incluindo floresta aleatória (RF), k-vizinhos mais próximos (KNN), mínimos quadrados parciais (PLS) e máquina de vetores de suporte com kernel base radial (SVM), foram implementados usando o pacote caret (v6.0-93) com base no conjunto de dados GSE142025. Os genes candidatos identificados na análise anterior foram utilizados como variáveis preditoras, e o status da doença (DN ou controle) foi utilizado como resultado. Para o modelo KNN, foi implementada uma validação cruzada de 10 dobras usando a função trainControl, com tuneLength = 10. O modelo RF foi ajustado com 20 árvores (ntree = 20); os modelos PLS e SVM foram ajustados usando as configurações implementadas no fluxo de trabalho original do caret.
As distribuições residuais do modelo foram avaliadas utilizando o pacote DALEX (v2.4.3). Em seguida, foi realizada a avaliação de variáveis baseada em permutação usando a função variable_importance do DALEX, com o erro quadrático médio (RMSE) especificado como função de perda. O dropout_loss resultante representa o RMSE obtido após a permutação da variável correspondente21,22. No fluxo analítico original, as variáveis com dropout loss < 0,281 em todos os modelos foram mantidas, e os genes comuns aos quatro modelos foram definidos como genes de características consenso para validação subsequente.
Os quatro modelos de aprendizado de máquina foram utilizados principalmente para priorização de características, e não para a construção de um classificador clínico final. Assim, a discriminação diagnóstica foi posteriormente avaliada ao nível do gene individual por meio de análise ROC nos conjuntos de dados de descoberta e de validação.
Identificação de biomarcadores candidatos
Em GSE142025 e GSE96804, as diferenças de expressão dos genes característicos entre amostras DN e controles foram avaliadas utilizando o teste de Wilcoxon. Apenas genes com expressão diferencial significativa (P < 0,05) e tendências de expressão concordantes nos dois conjuntos de dados foram selecionados para análise da curva característica de operação do receptor (ROC). O pacote pROC (v1.18.0) foi utilizado para gerar as curvas ROC e calcular a área sob a curva (AUC), sendo os genes com AUC > 0,7 em ambos os conjuntos de dados classificados como biomarcadores candidatos23.
Análise de enriquecimento de conjuntos de genes (GSEA)
As funções biológicas e as vias de sinalização associadas aos biomarcadores candidatos foram exploradas mais a fundo utilizando a análise de enriquecimento genômico (GSEA) no conjunto de dados GSE142025. Primeiramente, foi realizada uma análise de correlação de Spearman entre os biomarcadores candidatos e todos os demais genes utilizando o pacote psych (v2.2.9).24. Os coeficientes de correlação foram calculados e ordenados (do mais alto para o mais baixo). O conjunto de genes de referência utilizado foi c2.cp.kegg.v2023.1.Hs.symbols.gmt do Molecular Signatures Database (MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/). Em seguida, foi realizada a análise GSEA (enriquecimento de conjuntos de genes) para avaliar o enriquecimento dos genes ordenados no conjunto de genes de referência, utilizando o pacote clusterProfiler (v4.6.2). Foi aplicada a correção para testes múltiplos. via o método FDR e ajustado P-valores (denotados como P.ajustado) foram considerados significativos se < 0.05.
Análise de modificações m6A
Para investigar modificações de metilação no RNA dos biomarcadores candidatos, utilizou-se o banco de dados SRAMP (http://www.cuilab.cn/sramp/) para prever os sítios de modificação m6A nos biomarcadores candidatos, com foco em posições de alta confiança dentro de suas estruturas secundárias. Em seguida, utilizou-se o banco de dados ENCORI (https://starbase.sysu.edu.cn/) para identificar proteínas modificadas por m6A que interagem com os biomarcadores candidatos, empregando o parâmetro |HepG2 (shRNA)| > 1 para selecionar as proteínas-chave. Posteriormente, utilizou-se o banco de dados RPISeq (http://pridb.gdcb.iastate.edu/RPISeq/) para prever a probabilidade de interações entre as proteínas-chave e os biomarcadores candidatos. As sequências de RNA de ambos foram enviadas em formato de texto simples para gerar pontuações de predição pelos classificadores RF e SVM. Considerou-se significativa uma interação quando a pontuação excedeu 0,525. A análise no SRAMP foi realizada com o limiar definido como ‘Alto’ para a predição de sítios de m6A, utilizando o modo ‘Transcript’ e parâmetros padrão. A análise no ENCORI utilizou a função de interação ‘miRNA-mRNA’ com o parâmetro ‘HepG2 (shRNA)’ > 1. A análise no RPISeq utilizou o classificador RF com parâmetros padrão; pontuações > 0,5 indicaram interação positiva. Trata-se de predições computacionais, não de evidência experimental de modificação m6A ou de interações RNA-proteína em tecido renal. O critério HepG2 shRNA foi obtido a partir de conjuntos de dados pré-calculados do ENCORI e pode não refletir regulação específica do rim.
Análise da infiltração imune
O algoritmo CIBERSORT foi aplicado para estimar as proporções de 22 tipos de células imunes em amostras de controle e de DN provenientes de GSE142025, com visualização por meio de um mapa de calor gerado usando o pacote ggplot2 (v3.3.6)26. O CIBERSORT foi executado utilizando a matriz de assinatura LM22, com 1.000 permutações e normalização por quantis desativada (como recomendado para dados de microarranjo). Amostras com p < 0,05 no CIBERSORT foram mantidas para análises adicionais. O CIBERSORT estima frações de células imunes a partir da expressão em tecido renal total, o que não permite distinguir infiltração específica por compartimento (por exemplo, glomerular versus tubulointersticial) nem diferenciar leucócitos infiltrantes de células imunes residentes. Assim, as correlações relatadas são ao nível do tecido e devem ser validadas por métodos espaciais. A análise de correlação de Spearman entre células imunes diferencialmente abundantes e biomarcadores candidatos foi realizada utilizando o pacote psych.
Construção de redes e docking molecular
MicroRNAs (miRNAs) que interagem com biomarcadores candidatos foram previstos utilizando o banco de dados miRNet (https://www.mirnet.ca). Posteriormente, RNAs longos não codificantes (lncRNAs) que direcionam os miRNAs identificados foram previstos por meio dos bancos de dados TarBase (http://www.diana.pcbi.upenn.edu/tarbase) e starbase (http://starbase.sysu.edu.cn/). Os lncRNAs comuns a ambos os bancos de dados foram selecionados para a construção da rede. Uma rede regulatória lncRNA-miRNA-mRNA foi então construída utilizando o software Cytoscape. Ingredientes ativos potenciais que direcionam biomarcadores candidatos foram escolhidos para construir uma rede ingrediente ativo-biomarcador. Além disso, ingredientes ativos, biomarcadores candidatos e vias identificadas na GSEA foram incorporados ao Cytoscape para criar uma rede ingrediente ativo-biomarcador-via.
A análise de docking molecular foi realizada para avaliar a afinidade de ligação entre ingredientes ativos potenciais e biomarcadores candidatos. As estruturas tridimensionais das proteínas biomarcadoras foram obtidas do Protein Data Bank do Research Collaboratory for Structural Bioinformatics (RCSB PDB, https://www.rscb.org/pdb) no formato de arquivo PDB. As estruturas bidimensionais dos ingredientes ativos potenciais foram recuperadas no formato SDF a partir do banco de dados PubChem (http://pubchem.ncbi.nlm.nih.gov). O docking molecular foi conduzido utilizando a plataforma CB-Dock (http://clab.labshare.cn/cb-dock/php/blinddock.php). Uma energia de ligação inferior a -5 kcal/mol indicou uma afinidade de ligação forte27.
Preparação e autenticação de Ligustri Lucidi Fructus
Aqui, Ligustri Lucidi Fructus (LLF) refere-se ao fruto maduro seco de Ligustrum lucidum W. T. Aiton (Oleaceae). O material botânico foi autenticado de acordo com a Farmacopeia Chinesa, e um espécime-testemunha nº 20240506,20240911,20241103 foi depositado na Universidade de Medicina Tradicional Chinesa de Shanxi.
Para a preparação da decocção, 200 g de fatias qualificadas de LLF foram embebidas em 1.000 mL de água destilada por 30 min à temperatura ambiente. A mistura foi fervida vigorosamente e depois mantida em fervura suave por 60 min. O filtrado foi coletado, e os resíduos das plantas foram submetidos novamente à decocção com outros 1.000 mL de água destilada por 60 min. Os dois filtrados foram combinados, filtrados, centrifugados e concentrados sob pressão reduzida para obter uma concentração final de estoque de 1 g de droga bruta/mL (volume total de 100 mL). A decocção preparada foi armazenada a 4 °C para uso de curto prazo ou a −20 °C para conservação de longo prazo. A qualidade do LLF e de sua decocção foi rigorosamente identificada e verificada de acordo com os padrões da Farmacopeia Chinesa para garantir a confiabilidade e reprodutibilidade experimentais.
Para identificação qualitativa, realizou-se a cromatografia em camada delgada. Resumidamente, um volume apropriado da decocção preparada foi centrifugado e o sobrenadante foi extraído com metanol. Após a filtração, a solução da amostra e a solução padrão de referência de especnuezhenídeo foram aplicadas na mesma placa de gel de sílica G. Após a eluição, secagem e inspeção sob luz ultravioleta, a mancha da solução da amostra apresentou cor e posição consistentes com o composto de referência, confirmando a presença do componente bioativo característico do LLF.
Para controle de qualidade quantitativo, foi realizada a detecção por cromatografia líquida de alta eficiência. A análise foi realizada utilizando uma coluna C18 com metanol–água como fase móvel. O comprimento de onda de detecção foi ajustado em 224 nm. O teor de especnuezhenídeo na decocção foi determinado com base na curva padrão. Os resultados demonstraram composição química estável e uniforme da decocção preparada, garantindo qualidade constante do medicamento durante todo o experimento de intervenção em animais.
Experimentos com animais
Doze camundongos machos db/db de grau SPF (8–9 semanas de idade) e seis camundongos db/m de idade correspondente foram mantidos na instalação animal SPF da Universidade de Medicina Tradicional Chinesa de Shanxi. Antes dos experimentos, os animais foram aclimatados por 7 dias em ciclo de 12 h de luz/12 h de escuro com acesso ad libitum a alimento e água. O estudo foi aprovado pelo Comitê de Ética da Universidade de Medicina Tradicional Chinesa de Shanxi (Número de Aprovação: 2022DW167). Animais que apresentaram perda de peso corporal >20%, condição moribunda ou incapacidade de acessar alimento ou água foram eutanasiados de forma humanitária antes do término planejado do estudo. Ao final do estudo, todos os camundongos remanescentes foram eutanasiados por injeção intraperitoneal de pentobarbital sódico seguida de fratura cervical, conforme os protocolos institucionais.
Após o período de aclimatização, o estabelecimento de um modelo de DN em camundongos db/db foi confirmado por meio de nível de glicose no sangue da veia da cauda ≥ 16 mmol/L e microalbuminúria, conforme indicado por uma tira reagente positiva para microalbumina urinária. Após a confirmação bem-sucedida do modelo de DN, os camundongos db/db foram divididos aleatoriamente em dois grupos (n = 6 por grupo): o grupo modelo de DN (DN) e o grupo tratado com LLF (Tratamento). Além disso, camundongos db/m (n = 6) foram utilizados como grupo controle (Controle). A dose foi escolhida com base em estudos farmacodinâmicos prévios de LLF em ratos diabéticos e foi convertida para a dose equivalente em humanos utilizando a normalização pela área de superfície corporal28. Os grupos Controle e DN receberam água destilada, enquanto o grupo tratado recebeu 3,5 g/kg de LLF durante 8 semanas. Após 8 semanas de administração, todos os camundongos foram eutanasiados para coleta de soro, urina e tecido renal para testes subsequentes.
Indicadores sanguíneos e urinários
Os níveis séricos de glicose foram analisados utilizando um Analisador Automático de Bioquímica Sanguínea. A concentração de microalbumina urinária foi medida de acordo com as instruções do kit (Arquivo Suplementar 1).
Observação patológica de tecidos renais de camundongo
Os tecidos renais foram processados para exame histopatológico. Após fixação em paraformaldeído a 4%, os tecidos foram lavados, desidratados, emblocados em parafina e seccionados. Em seguida, foi realizada a coloração com hematoxilina e eosina (HE), e as lâminas coradas foram examinadas ao microscópio óptico para avaliação das alterações patológicas.
Reação em cadeia da polimerase quantitativa com transcriptase reversa (RT-qPCR)
A RT-qPCR foi utilizada para determinar a expressão dos biomarcadores candidatos em tecido renal de camundongo. O RNA total foi extraído de acordo com as instruções do fabricante, após o que a concentração e qualidade do RNA foram avaliadas (Tabela 1). O cDNA foi sintetizado a partir do RNA extraído utilizando o Kit de Síntese de cDNA. A amplificação foi realizada com os pares de primers listados na Tabela 1, utilizando GAPDH como gene de referência. Os níveis relativos de expressão foram calculados pelo método 2−ΔΔCt13,26.
Análise estatística
Todas as análises estatísticas foram realizadas utilizando o software R (versão 4.2.2) juntamente com o software necessário para os procedimentos experimentais correspondentes. Salvo indicação em contrário, todos os testes estatísticos foram bicaudais, e as diferenças foram consideradas estatisticamente significativas em P < 0,05. A análise de expressão diferencial transcriptômica foi realizada utilizando o pacote limma. Genes com P ajustado < 0,05 e mudança absoluta no log2 da razão maior que 0,5 foram definidos como diferencialmente expressos.
Para comparações da expressão de genes candidatos entre amostras independentes de DN e controles, foram utilizados testes não paramétricos de postos de Wilcoxon, conforme indicado no fluxo analítico original. As correlações entre biomarcadores candidatos e frações de células imunes foram avaliadas utilizando a correlação de postos de Spearman.
Os dados experimentais são apresentados como média ± DP. As comparações entre os três grupos independentes de animais foram realizadas utilizando análise de variância unidirecional quando as premissas da análise paramétrica foram atendidas. Para comparações post hoc, o teste da menor diferença significativa foi utilizado quando as variâncias eram homogêneas, enquanto o teste T3 de Dunnett foi utilizado quando as variâncias eram desiguais. As medidas farmacodinâmicas basais e na semana 8 foram analisadas e apresentadas separadamente; nenhuma inferência sobre interação grupo-por-tempo foi feita. Os scripts em R e os dados brutos utilizados para as análises de bioinformática e aprendizado de máquina estão disponíveis no Arquivo Suplementar 1.
Resultados
Para investigar sistematicamente possíveis biomarcadores candidatos relacionados às mitocôndrias para LLF no tratamento de DN, projetamos um fluxo de trabalho analítico em quatro fases (Figura 1). Na Fase I, integramos dados transcriptômicos do conjunto de dados GSE142025 (conjunto de treinamento, rim inteiro, n=36) e GSE96804 (conjunto de validação, glomérulo, n = 61) com 1.136 genes relacionados às mitocôndrias provenientes do banco de dados MitoCarta 3.0 e 517 alvos previstos de 9 ingredientes ativos do banco de dados TCMSP. A sobreposição desses três conjuntos de genes gerou 9 genes candidatos. Na Fase II, quatro modelos de aprendizado de máquina (RF, KNN, PLS e SVM) foram aplicados para priorizar genes de interesse utilizando RMSE < 0,281 como limiar. A validação entre conjuntos de dados por meio de análise ROC (AUC > 0,7 em ambos os conjuntos) identificou quatro biomarcadores candidatos: CAT, FABP1, MAOB e MAOA. Na Fase III, realizamos análise de enriquecimento por GSEA para identificar vias KEGG enriquecidas, análise de infiltração imune utilizando CIBERSORT, predição de modificações m6A e construímos redes lncRNA-miRNA-mRNA, ingrediente ativo–biomarcador e ingrediente ativo–biomarcador–via, seguidas por docking molecular. Na Fase IV, os efeitos farmacodinâmicos de LLF e as alterações na expressão de mRNA dos quatro biomarcadores candidatos foram avaliados em um modelo de camundongo db/db de DN.
Triagem de genes candidatos para o tratamento de DN pela LLF
No conjunto de dados GSE142025, identificaram-se 3.810 genes diferencialmente expressos (DEGs) entre os grupos com DN e controle, incluindo 1.904 DEGs regulados para cima e 1.906 regulados para baixo (Figura 2A,B). Treze ingredientes ativos da LLF foram previstos utilizando a base de dados TCMSP, a saber, beta-sitosterol, kaempferol, taxifolina, Lucidumoside D, Lucidumoside D_qt, (20S)-24-eno-3,20-diol-3-acetato, eriodictiol, sirinjaresinol diglicosídeo_qt, Lucidusculine, Olitoriside, Olitoriside_qt, luteolina e quercetina (Tabela 2). Quatro ingredientes ativos — Lucidumoside D_qt, (20S)-24-eno-3,20-diol-3-acetato, sirinjaresinol diglicosídeo_qt e Olitoriside_qt — não apresentaram previsão de quaisquer genes-alvo potenciais, enquanto os nove ingredientes restantes previram 517 genes-alvo potenciais. A partir da sobreposição dos 3.810 DEGs, 1.136 MRGs e 517 genes-alvo potenciais, nove genes candidatos foram identificados: GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2 e FABP1 (Figura 2C). Uma rede entre ingredientes ativos e genes candidatos foi posteriormente construída (Figura 2D). Esses nove genes candidatos foram enriquecidos em 341 termos GO, incluindo resposta a substâncias tóxicas, processo catabólico de compostos hidroxilados orgânicos e detoxificação celular (Figura 2E). Adicionalmente, estavam associados a 52 vias KEGG, tais como metabolismo do triptofano, vias neurodegenerativas e metabolismo da histidina (Figura 2F).
Triagem de biomarcadores candidatos para o tratamento de DN em LLF
A rede de interação proteína-proteína revelou sete nós e oito conexões, com MAOA, ALDH2, MAOB e AKR1B10 interagindo (Figura 3A). Os genes com valores de RMSE inferiores a 0,281 em quatro modelos de aprendizado de máquina foram identificados como genes característicos: CAT, MAOB, MAOA, BAX e FABP1 (Figura 3B-E). A análise de expressão mostrou que CAT, FABP1, MAOB e MAOA apresentavam diferenças significativas entre os grupos com DN e o grupo controle, sendo consistentes tanto no conjunto de dados GSE142025 quanto no GSE96804 (Figura 3F,G). Além disso, seus valores de AUC na análise da curva ROC excederam 0,7 em ambos os conjuntos de dados, indicando que esses genes poderiam diferenciar eficazmente amostras de DN de amostras controle e atuar como biomarcadores candidatos para o tratamento de DN em LLF (Figura 4A-H).
Enriquecimento significativo de biomarcadores candidatos em vias inflamatórias e relacionadas ao sistema imunológico
A análise de enriquecimento genético (GSEA) identificou quatro biomarcadores candidatos acentuadamente enriquecidos na via de sinalização de quimiocinas e nas interações citocina-receptor de citocina (Figura 5A-D). Dentre estes, a via de sinalização da peroxidase mostrou associação significativa com CAT, MAOA e MAOB.
Correlação de biomarcadores candidatos com células imunes
Diferenças notáveis na expressão de nove tipos de células imunes — linfócitos B ingênuos, macrófago M0, macrófago M1, macrófago M2, mastócito ativado, célula NK ativada, célula T CD4+ de memória em repouso, célula T CD4+ ingênua e célula T CD8+ — foram observadas entre as amostras DN e controle (P < 0,05) (Figura 6A,B). Uma correlação positiva significativa (cor = 0,6) foi encontrada entre linfócitos B ingênuos e células NK ativadas, enquanto uma correlação negativa significativa (cor = -0,69) foi detectada entre linfócitos B ingênuos e mastócitos ativados (Figura 6C). Todos os biomarcadores candidatos exibiram fortes correlações negativas com células T CD8+ e mastócitos ativados, e correlações positivas com células NK ativadas e linfócitos B ingênuos (Figura 6D).
Interação de proteínas-chave modificadas por m6A com biomarcadores candidatos
A modificação da metilação de RNA por m6A afeta profundamente a síntese e o metabolismo do RNA e está implicada na patogênese de diversas doenças29. As localizações dos sítios de modificação m6A nos biomarcadores candidatos e suas posições de alta confiança nas estruturas secundárias são ilustradas na Figura 7A-H. A análise adicional revelou que as proteínas-chave modificadas por m6A que interagem com CAT incluíram AQR e RBM22, enquanto FABP1 interagiu com SF3A3 e AQR. Verificou-se que MAOA interage com IGF2BP3 e IGF2BP2, e MAOB com TIA1 (Tabela 3).
Previsões favoráveis de ligação in silico para taxifolina, beta-sitosterol e eriodictiol no tratamento de DN com LLF
No miRNet, previu-se que CAT interage com 24 miRNAs, enquanto FABP1 estava associado a cinco miRNAs. Além disso, MAOB e MAOA estavam ligados a 29 e 26 miRNAs, respectivamente. Dentre estes, 23 lncRNAs foram identificados tanto nos bancos de dados TarBase quanto Starbase. Em seguida, foi construída uma rede regulatória lncRNA-miRNA-mRNA, incorporando quatro biomarcadores candidatos, 74 miRNAs e 23 lncRNAs (Figura 8A). Os ingredientes ativos potenciais que visavam os biomarcadores candidatos incluíram luteolina, beta-sitosterol, eriodictiol, kaempferol, quercetina e taxifolina (Figura 8B). Além disso, foi estabelecida uma rede ingrediente ativo-biomarcador-via metabólica com base nos ingredientes ativos, biomarcadores candidatos e nas cinco principais vias identificadas na GSEA (Figura 8C). Por exemplo, a taxifolina visava CAT na via dos peroxissomos. As energias de ligação entre CAT e taxifolina (-8,8 kcal/mol), FABP1 e beta-sitosterol (-8,1 kcal/mol) e MAOB e eriodictiol (-9,8 kcal/mol) estavam todas abaixo de -5 kcal/mol, sugerindo fortes afinidades entre esses biomarcadores candidatos e seus respectivos ingredientes ativos27. Taxifolina, beta-sitosterol e eriodictiol foram identificadas como ingredientes ativos potenciais com previsões favoráveis de ligação in silico no tratamento de DN com LLF (Figuras 8D-F). Contudo, são apresentadas como constituintes previstos por banco de dados, e não como intermediários bioativos confirmados dos efeitos observados in vivo.
Validar biomarcadores candidatos no modelo murino de DN
Avaliação farmacodinâmica do LLF no tratamento de camundongos com DN
Durante o período de administração, os níveis de glicose no sangue e de microalbumina urinária em camundongos foram monitorados (Figura 9A-D). Em comparação com o grupo controle, a glicose no sangue e a microalbumina urinária no grupo modelo de DN foram significativamente aumentadas (P < 0,01); em comparação com o grupo modelo de DN, a glicose no sangue dos camundongos no grupo de tratamento foi significativamente reduzida após 4 semanas de administração (P < 0,01) e a microalbumina urinária dos camundongos no grupo de tratamento foi significativamente reduzida após 8 semanas de administração (P < 0,05). Os resultados sugerem que o LLF pode ser benéfico no tratamento da DN.
Avaliação patológica do LLF no tratamento de camundongos com DN
Após a coloração com HE, o grupo controle exibiu estruturas glomerulares claras no tecido renal. Em contraste, o grupo modelo de DN apresentou pícnose nuclear e hipercromasia glomerular, juntamente com infiltração de células inflamatórias ao redor dos glomérulos, em comparação com o grupo normal. O tratamento com LLF atenuou os danos patológicos nos rins de camundongos db/db (Figura 9E).
Análise por RT-PCR da expressão de biomarcadores candidatos em camundongos com DN
Após o estabelecimento bem-sucedido de um modelo de camundongo com DN e a observação de melhora significativa dos sintomas com o tratamento com LLF, a RT-qPCR foi utilizada para analisar as alterações nos biomarcadores candidatos. Em comparação com o grupo controle, o grupo com DN apresentou expressão significativamente reduzida de CAT e MAOA (P < 0,05 ou P < 0,001). Por outro lado, o grupo tratado mostrou expressão de CAT e MAOA significativamente maior do que o grupo com DN (P < 0,05). No entanto, nenhuma diferença estatisticamente significativa foi observada na expressão de MAOB e FABP1 entre os grupos (Figura 9F-I).
Disponibilidade de dados
Os conjuntos de dados de expressão gênica analisados neste estudo estão disponíveis publicamente no Gene Expression Omnibus (GEO) sob os números de acesso GSE142025 e GSE96804. Os scripts em R utilizados para as análises de bioinformática, juntamente com os dados experimentais de origem (glicemia, microalbumina urinária e dados de RT-qPCR), estão disponíveis no Arquivo Suplementar 1. Todos os demais bancos de dados, softwares e recursos web utilizados neste estudo estão listados na Tabela de Materiais.
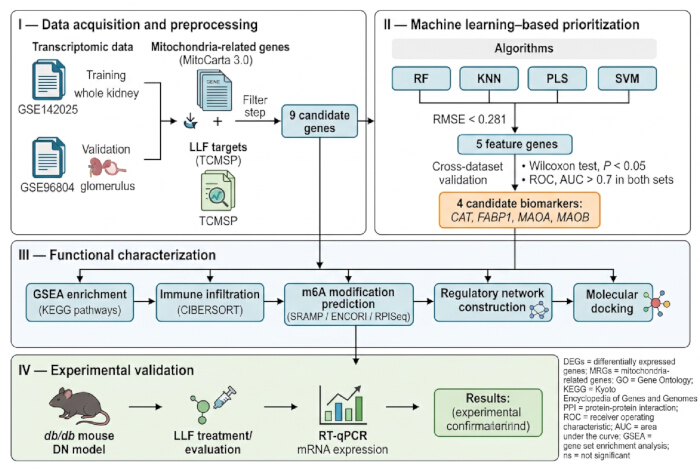
Figura 1: Fluxo de trabalho do estudo. Conjuntos de dados transcriptômicos, genes relacionados às mitocôndrias e alvos previstos do Ligustri Lucidi Fructus foram integrados para identificar genes candidatos. Em seguida, quatro algoritmos de aprendizado de máquina foram utilizados para priorizar os genes característicos, seguidos por validação cruzada entre conjuntos de dados, caracterização funcional e validação experimental em camundongos db/db. Abreviações: DN = nefropatia diabética; DEGs = genes diferencialmente expressos; MRGs = genes relacionados às mitocôndrias; LLF = Ligustri Lucidi Fructus; RF = floresta aleatória; KNN = k-vizinhos mais próximos; PLS = mínimos quadrados parciais; SVM = máquina de vetores de suporte; RMSE = erro quadrático médio; GSEA = análise de enriquecimento de conjuntos de genes; RT-qPCR = reação em cadeia da polimerase quantitativa com transcrição reversa. Clique aqui para visualizar uma versão maior desta figura.
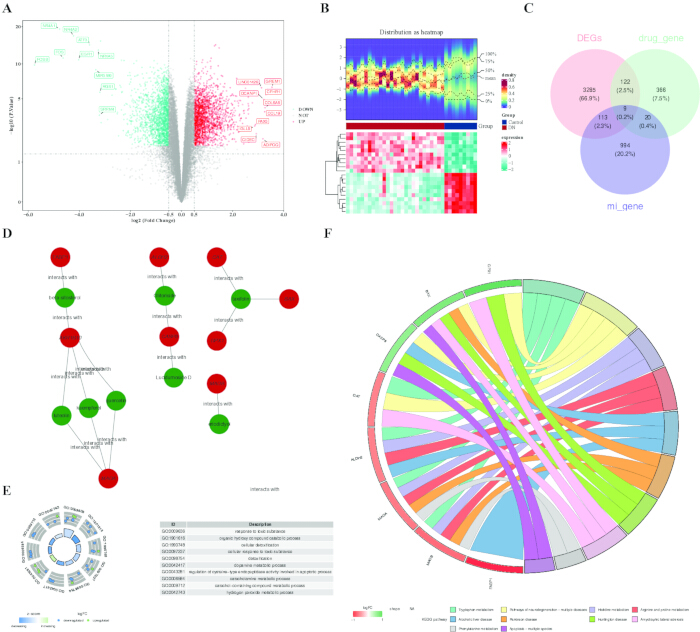
Figura 2: Triagem e caracterização funcional de genes candidatos para o tratamento de DN com LLF. (A) Gráfico de vulcão mostrando os genes diferencialmente expressos entre amostras de DN e controle em GSE142025. (B) Mapa de calor dos 10 principais genes superexpressos e dos 10 principais genes subexpressos, classificados por |log2FC|. (C) Diagrama de Venn mostrando a intersecção entre DEGs, MRGs e genes-alvo preditos de LLF. (D) Rede entre ingrediente ativo e gene candidato. (E) Análise de enriquecimento da Ontologia Genética dos genes candidatos. A altura das barras representa a significância do enriquecimento, e o escore z indica a direção predita da regulação funcional. (F) Análise de enriquecimento de vias do Enciclopédia de Genes e Genomas de Kyoto (KEGG) dos genes candidatos. Abreviações: DN = nefropatia diabética; LLF = Ligustri Lucidi Fructus; DEGs = genes diferencialmente expressos; MRGs = genes relacionados à mitocôndria; GO = Ontologia Genética; KEGG = Enciclopédia de Genes e Genomas de Kyoto. Clique aqui para visualizar uma versão maior desta figura.
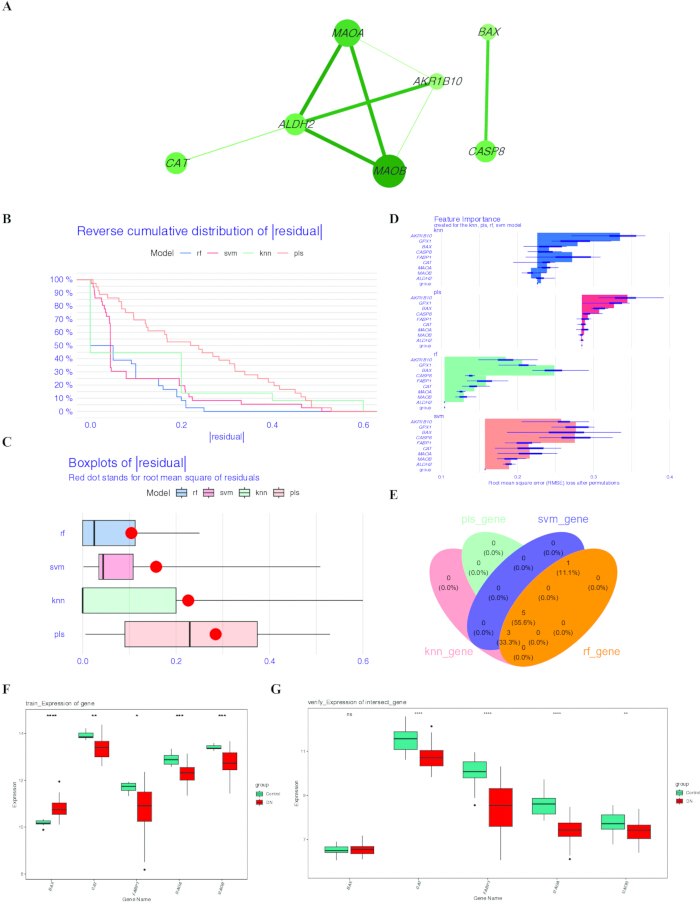
Figura 3: Identificação baseada em aprendizado de máquina de biomarcadores candidatos. (A) Rede de interação proteína-proteína das proteínas codificadas pelos genes candidatos. (B) Distribuição cumulativa reversa dos resíduos para os modelos RF, KNN, PLS e SVM. (C) Diagramas de caixa mostrando as distribuições de resíduos dos quatro modelos; o ponto vermelho indica o erro quadrático médio. (D) Importância baseada no RMSE dos genes candidatos nos quatro modelos de aprendizado de máquina. (E) Interseção dos genes descritores que atendem ao critério RMSE < 0,281 em todos os quatro modelos. (F,G) Expressão dos genes descritores selecionados em GSE142025 e GSE96804, respectivamente. Abreviações: RF = floresta aleatória; KNN = k-vizinhos mais próximos; PLS = mínimos quadrados parciais; SVM = máquina de vetores de suporte; RMSE = erro quadrático médio. Clique aqui para visualizar uma versão maior desta figura.
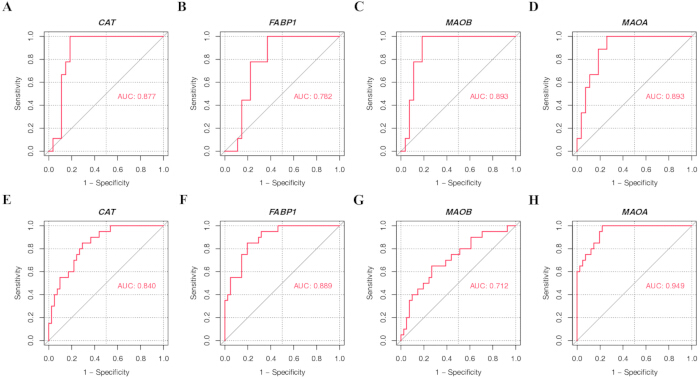
Figura 4: Curvas da característica operacional do receptor dos quatro biomarcadores candidatos. Curvas ROC para CAT, FABP1, MAOB e MAOA nos conjuntos de dados de (A-D) treinamento GSE142025 e (E-H) validação GSE96804. A AUC representa a área sob a curva da característica operacional do receptor. Abreviações: ROC = característica operacional do receptor; AUC = área sob a curva. Clique aqui para visualizar uma versão maior desta figura.
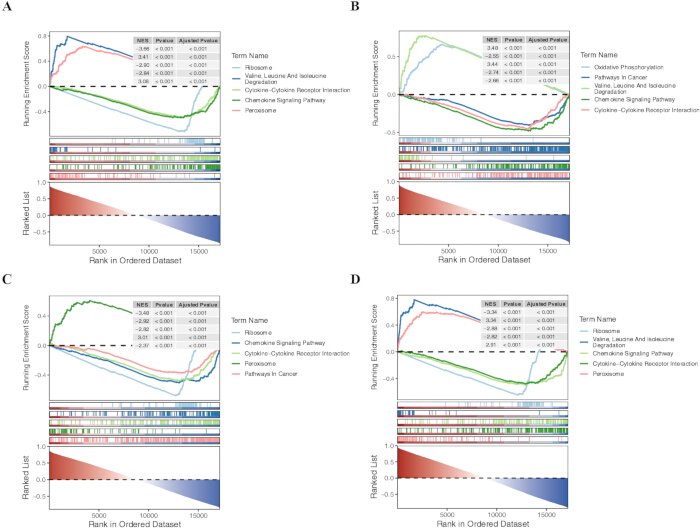
Figura 5: Análise de enriquecimento de conjuntos de genes de biomarcadores candidatos. GSEA mostrando vias KEGG significativamente enriquecidas associadas a (A) CAT, (B) FABP1, (C) MAOA e (D) MAOB no conjunto de dados GSE142025. Abreviações: GSEA = análise de enriquecimento de conjuntos de genes; KEGG = Enciclopédia de Kyoto de Genes e Genomas. Clique aqui para visualizar uma versão maior desta figura.
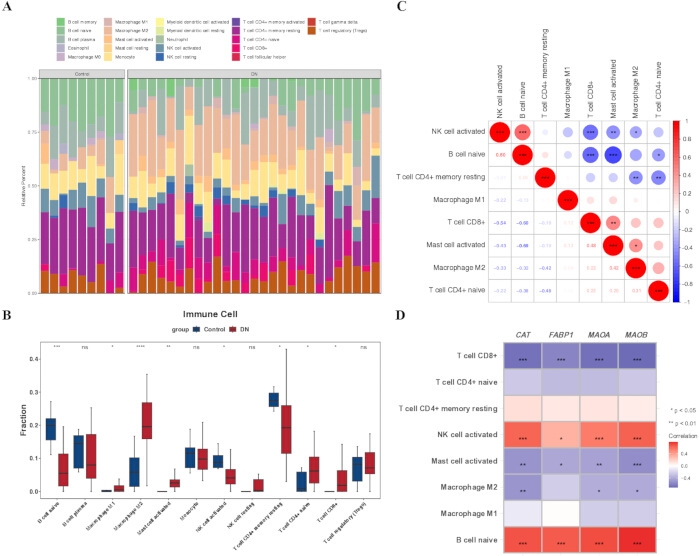
Figura 6: Infiltração de células imunes e sua associação com biomarcadores candidatos na DN. (A) Proporções relativas de 22 tipos de células imunes estimadas pelo CIBERSORT em amostras de DN e controles. (B) Comparação das frações de células imunes significativamente diferentes entre os grupos com DN e controle. (C) Matriz de correlação entre os tipos de células imunes diferencialmente abundantes. (D) Correlações de Spearman entre a expressão de CAT, FABP1, MAOA e MAOB e os tipos de células imunes diferencialmente abundantes. Abreviações: DN = nefropatia diabética. Clique aqui para visualizar uma versão maior desta figura.
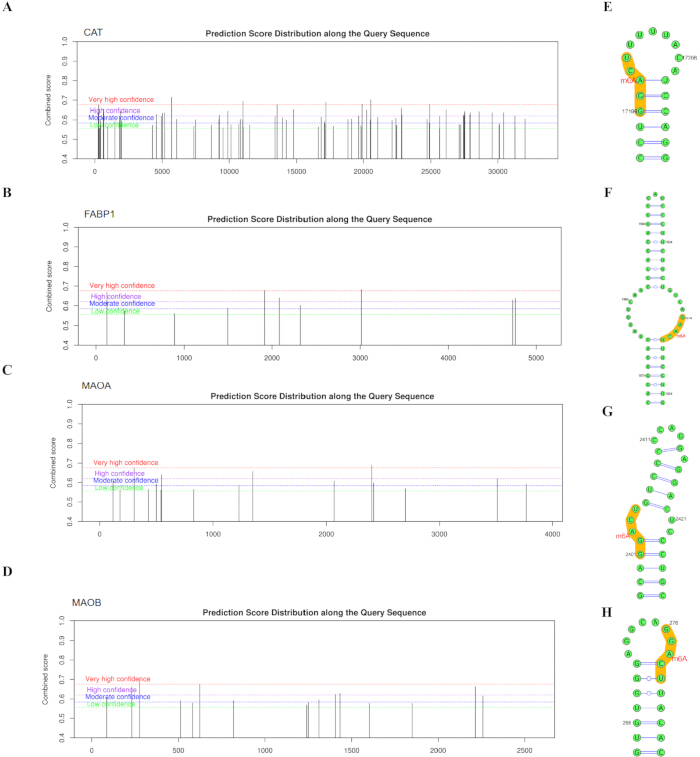
Figura 7: Locais previstos de modificações m6A e estruturas secundárias do RNA dos transcritos de biomarcadores candidatos. Locais previstos de modificações m6A em (A) CAT, (B) FABP1, (C) MAOA e (D) MAOB. Estruturas secundárias previstas do RNA mostrando regiões associadas a m6A com alta confiança em (E) CAT, (F) FABP1, (G) MAOA e (H) MAOB. Regiões destacadas em amarelo indicam as regiões de sequência previstas contendo locais de modificações m6A. Abreviação: m6A = N6-metiladenosina. Clique aqui para visualizar uma versão maior desta figura.
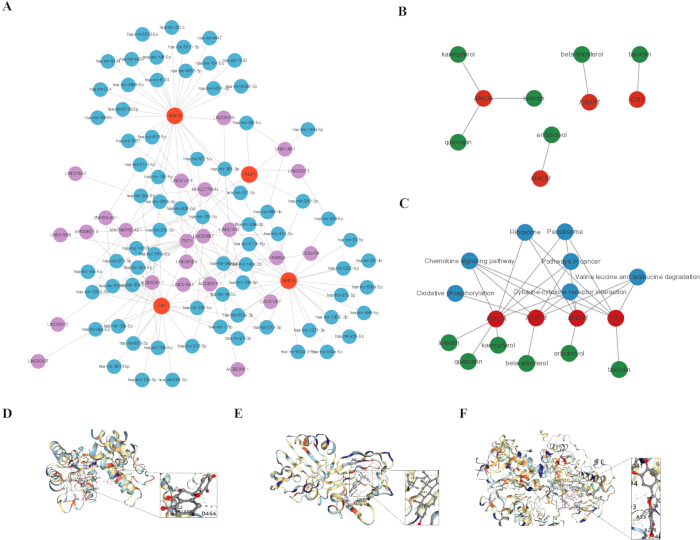
Figura 8: Redes regulatórias e acoplamento molecular dos ingredientes ativos potenciais do LLF. (A) Rede regulatória predita lncRNA–miRNA–mRNA envolvendo os biomarcadores candidatos. (B) Rede de ingredientes ativos potenciais do LLF e biomarcadores candidatos. (C) Rede ingrediente ativo–biomarcador–via metabólica com base nos resultados da análise de enriquecimento de conjuntos de genes (GSEA). (D-F) Conformações preditas de acoplamento molecular de (D) CAT com taxifolina, (E) FABP1 com beta-sitosterol e (F) MAOB com eriodictiol. Abreviações: LLF = Ligustri Lucidi Fructus; lncRNA = RNA não codificante longo; miRNA = microRNA; GSEA = análise de enriquecimento de conjuntos de genes. Clique aqui para visualizar uma versão maior desta figura.
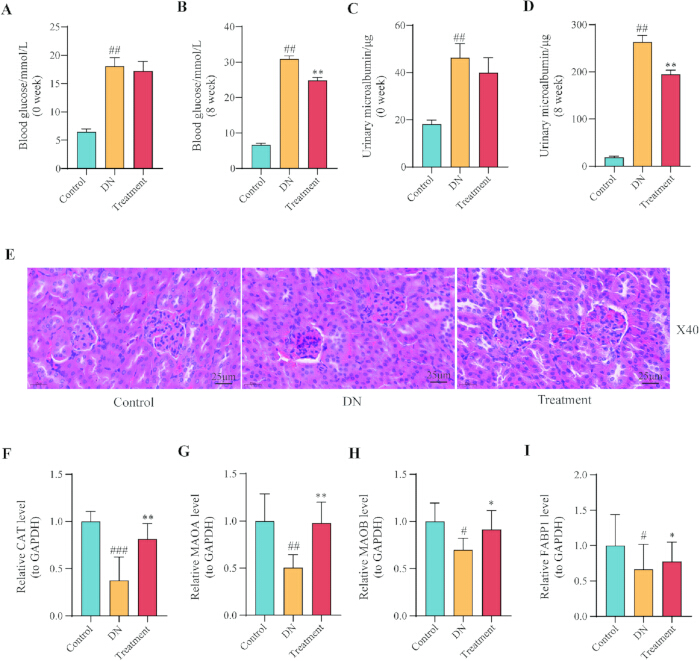
Figura 9: Efeitos do tratamento com LLF sobre indicadores bioquímicos, histopatologia renal e expressão de biomarcadores candidatos em camundongos db/db. (A,B) Níveis de glicose no sangue na linha de base e na semana 8, respectivamente. (C,D) Níveis urinários de microalbumina na linha de base e na semana 8, respectivamente. (E) Cortes representativos de rins corados com hematoxilina e eosina dos grupos Controle, DN e Tratamento (aumento, ×40; barra de escala = 25 µm). (F-I) Níveis relativos de expressão de mRNA renal de Cat, Maoa, Maob e Fabp1, respectivamente, medidos por RT-qPCR. #P < 0,05, ##P < 0,01 e ###P < 0,001 em comparação com o grupo Controle; *P < 0,05, **P < 0,01 e ***P < 0,001 em comparação com o grupo DN. Abreviaturas: LLF = Ligustri Lucidi Fructus; DN = nefropatia diabética; RT-qPCR = reação em cadeia da polimerase quantitativa com transcrição reversa. Clique aqui para visualizar uma versão ampliada desta figura.
| primer | sequências |
| CAT F | TCACTGACGAGATGGCACAC |
| CAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCACAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
Tabela 1: Sequências de iniciadores utilizadas na análise de tecidos renais de camundongos por RT-qPCR. Abreviações: F = iniciador direto; R = iniciador reverso; RT-qPCR = reação de transcrição reversa seguida de reação em cadeia da polimerase quantitativa.
| ID da molécula | Nome da molécula | OB (%) | DL | Número de alvos |
| MOL000358 | beta-sitosterol | 36.91 | 0.75 | 100 |
| MOL000422 | kaempferol | 41.88 | 0.24 | 103 |
| MOL004576 | taxifolin | 57.84 | 0.27 | 92 |
| MOL005146 | Lucidumoside D | 48.87 | 0.71 | 104 |
| MOL005147 | Lucidumoside D_qt | 54.41 | 0.47 | 0 |
| MOL005169 | (20S)-24-ene-3,20-diol-3-acetate | 40.23 | 0.82 | 0 |
| MOL005190 | eriodictyol | 71.79 | 0.24 | 101 |
| MOL005195 | syringaresinol diglucoside_qt | 83.12 | 0.8 | 0 |
| MOL005209 | Lucidusculine | 30.11 | 0.75 | 105 |
| MOL005211 | Olitoriside | 65.45 | 0.23 | 100 |
| MOL005212 | Olitoriside_qt | 103.23 | 0.78 | 0 |
| MOL000006 | luteolin | 36.16 | 0.25 | 102 |
| MOL000098 | quercetin | 46.43 | 0.28 | 103 |
Tabela 2: Treze ingredientes ativos de Ligustri Lucidi Fructus identificados utilizando o banco de dados TCMSP. Abreviações: OB = biodisponibilidade oral; DL = semelhança a fármaco.
| RNA mensageiro | Proteína | RF | SVM |
| CAT | AQR | 0.7 | 0.98 |
| CAT | RBM22 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
Tabela 3: Interações previstas entre quatro RNAs mensageiros de biomarcadores mitocondriais e proteínas ligadoras de RNA relacionadas ao m6A. CAT, FABP1, MAOA e MAOB indicam RNAs mensageiros humanos de biomarcadores; AQR, RBM22, SF3A3, IGF2BP2, IGF2BP3 e TIA1 indicam proteínas ligadoras de RNA. Pontuações RF e SVM > 0,5 indicam interações previstas entre RNA e proteína. Abreviações: RF = floresta aleatória; SVM = máquina de vetores de suporte.
Arquivo Suplementar 1. Scripts de bioinformática e dados experimentais brutos. Este arquivo contém os scripts em R utilizados para o processamento de dados, análise de expressão diferencial, enriquecimento funcional, aprendizado de máquina, análise de característica operacional do receptor, análise de enriquecimento de conjuntos de genes, análise de correlação de Spearman e análise de infiltração de células imunes pelo CIBERSORT, juntamente com os dados brutos de glicemia, microalbuminúria e experimentos de RT-qPCR. Clique aqui para baixar este arquivo.
Discussão
LLF é uma medicina tradicional chinesa comumente utilizada, empregada principalmente para nutrir o fígado e os rins e para tratar diabetes e suas complicações. Atualmente, não existem medicamentos ou terapias específicas para DN, e seu tratamento baseia-se principalmente em abordagens hipoglicemiantes, hipolipemiantes e anti-hipertensivas30,31,32. No entanto, esses tratamentos só conseguem retardar a progressão da lesão renal em uma pequena proporção de pacientes33. Demonstrou-se que o LLF exerce efeitos renoprotetores em modelos de ratos com DN, corrigindo distúrbios do metabolismo da glicose e dos lipídios e atenuando o estresse oxidativo34. Notavelmente, como um órgão com conteúdo mitocondrial excepcionalmente alto e elevado consumo de oxigênio, a dinâmica mitocondrial anormal nos rins desempenha um papel fundamental na patogênese da DN35. Este estudo revela um novo mecanismo pelo qual o LLF pode influenciar a função mitocondrial por meio de biomarcadores candidatos específicos (CAT, FABP1, MAOB e MAOA) no tratamento da DN.
Estudos anteriores indicaram que a catalase (CAT), a proteína de ligação a ácidos graxos 1 (FABP1), a monoamina oxidase B (MAOB) e a monoamina oxidase A (MAOA) estão implicadas na DN em diversos graus. CAT participa do sistema de defesa antioxidante, protegendo o rim de danos induzidos por estresse oxidativo36. A CAT, uma enzima antioxidante fundamental no organismo, participa da regulação do surgimento e da progressão da DN mediante a modulação de processos fisiológicos relacionados às mitocôndrias37. A CAT catalisa especificamente a decomposição do peróxido de hidrogênio (H₂O₂) em água e oxigênio, eliminando efetivamente as ERO provenientes das mitocôndrias. Isso reduz os danos ao estrutura e função mitocondriais induzidos por estresse oxidativo, mantém a estabilidade do potencial da membrana mitocondrial e a eficiência da fosforilação oxidativa, atenuando assim a lesão celular renal induzida por altas concentrações de glicose e retardando a progressão da DN38. Além disso, a diminuição da expressão de CAT leva à eliminação insuficiente de ERO mitocondriais, agravando a fragmentação mitocondrial e a ruptura das cristas. Isso inibe a fusão mitocondrial enquanto promove a fissão, desestabilizando ainda mais a dinâmica mitocondrial. Consequentemente, células intrínsecas, como células mesangiais e podócitos, desenvolvem distúrbios metabólicos, acelerando assim a fibrose do tecido renal39.
FABP1, como membro da família de proteínas ligadoras de ácidos graxos, participa principalmente do transporte, metabolismo e sinalização intracelular de ácidos graxos de cadeia longa. Sua expressão anormal tem sido demonstrada como estreitamente associada a diversas doenças metabólicas e lesão renal, desempenhando um papel regulador crucial no desenvolvimento e progressão da nefropatia diabética (ND)40. Pesquisas indicam que o FABP1 modula a progressão da ND ao perturbar o metabolismo lipídico. No diabetes, a expressão anormal de FABP1 interrompe o transporte e metabolismo de ácidos graxos. Ácidos graxos livres em excesso e seus metabólitos se acumulam no tecido renal, danificando diretamente as células endoteliais glomerulares e epiteliais tubulares, exarcebando assim a inflamação e fibrose renal41. Concomitantemente, o FABP1 exacerba a lesão do tecido renal ao mediar o estresse oxidativo e os danos induzidos por hipóxia. Sua excreção urinária pode aumentar antes dos níveis anormais de albumina urinária, oferecendo um novo alvo para triagem e diagnóstico precoce da ND41,42. Além disso, o FABP1 desempenha um papel regulador central no metabolismo mitocondrial de ácidos graxos43. Estudos indicam que a superexpressão de FABP1 aumenta significativamente a eficiência do transporte de ácidos graxos para as mitocôndrias, eleva a atividade da β-oxidação mitocondrial e a atividade das enzimas do ciclo do ácido tricarboxílico, melhorando assim o metabolismo energético celular44. No entanto, o mecanismo pelo qual o FABP1 influencia a patogênese da ND por meio de processos relacionados às mitocôndrias permanece pouco claro. Em outras condições relacionadas à ND, MAOB e MAOA, como enzimas envolvidas no metabolismo de neurotransmissores, têm sido associadas à progressão da ND, contribuindo para um desequilíbrio no estado redox tecidual. Este estudo confirma ainda mais o papel fundamental desses quatro biomarcadores candidatos na ND, cujos níveis de expressão diminuem no grupo com ND. Hipotetiza-se que a modulação da expressão desses biomarcadores candidatos possa ajudar a reduzir a inflamação e o estresse oxidativo na ND.
Com base na análise de enriquecimento por GSEA, quatro biomarcadores candidatos — CAT, FABP1, MAOB e MAOA — foram enriquecidos em múltiplas vias, incluindo a via de sinalização de quimiocinas, a interação citocina-receptor de citocina e as vias de peroxissomos. As quimiocinas são componentes-chave da resposta imune, promovendo a inflamação. A via da peroxidase (POD) está associada ao estresse oxidativo45. Relatou-se que a baicalina alivia a DN reduzindo o estresse oxidativo e a inflamação, com seu mecanismo potencialmente envolvendo a ativação da via de sinalização antioxidante mediada por NrF2 e a inibição da via inflamatória mediada por MAPK45. Além disso, a desregulação de FABP1 no metabolismo lipídico pode contribuir para a esclerose glomerular e a fibrose intersticial na DN9. Esses achados sugerem que os biomarcadores candidatos desempenham um papel crítico nos processos inflamatórios e de estresse oxidativo na DN. O direcionamento desses biomarcadores candidatos para modular as vias que influenciam poderia atenuar a inflamação e o estresse oxidativo associados à DN, mitigando, assim, sua progressão.
A análise bioinformática mostrou que os níveis de infiltração de subpopulações imunes, como linfócitos T CD8+, no tecido renal com DN alteraram-se significativamente, e o aumento nos linfócitos T CD8+ correlacionou-se negativamente e de forma significativa com a expressão de quatro biomarcadores candidatos relacionados às mitocôndrias (CAT, FABP1, MAOB, MAOA). Essas previsões computacionais são consistentes com os resultados das observações patológicas dos experimentos em animais: cortes corados com HE dos rins de camundongos no grupo modelo de DN mostraram infiltração evidente de células inflamatórias ao redor dos glomérulos; após a intervenção com LLF, a infiltração de células inflamatórias renais no grupo tratado reduziu-se significativamente, e os danos patológicos foram atenuados. Isso sugere que o aumento da infiltração de células inflamatórias é uma característica-chave da lesão renal na DN, e que o LLF pode exercer um papel protetor ao regular a infiltração imune. Esse achado está de acordo com estudos anteriores: a infiltração de linfócitos T CD8+ está associada ao desenvolvimento da DN, e a inibição de sua resposta pode aliviar a doença46, o que também agrava a lesão renal na nefropatia induzida por adriamicina47. Além disso, diversos tipos de células imunes, como linfócitos B, macrófagos M1/M2 e células NK, apresentam alterações na patologia da DN48. O biomarcador CAT pode afetar a função de células imunes na DN49, e o MAOA também pode influenciar o microambiente imune ao regular a polarização de macrófagos. Esses resultados indicam que o efeito renoprotetor do LLF está estreitamente relacionado à sua capacidade de regular a infiltração imune anormal, incluindo a dos linfócitos T CD8+, reduzindo assim os danos inflamatórios. As correlações negativas entre os quatro biomarcadores candidatos e os linfócitos T CD8+ e mastócitos ativados sugerem que esses genes podem modular o microambiente imune renal. A expressão de CAT já foi associada à polarização de macrófagos e à atividade de linfócitos T em tecidos metabólicos. No entanto, nossas estimativas pelo CIBERSORT derivam de transcriptomas de tecido renal total, o que não permite distinguir subtipos de células imunes que infiltrem os compartimentos glomerulares versus tubulointersticiais. As correlações observadas devem ser interpretadas como associações geradoras de hipóteses, e não como evidência de regulação imune causal. Estudos futuros utilizando imunohistoquímica multiplex ou RNA-seq de célula única serão necessários para localizar essas interações entre imunidade e biomarcadores.
Estudos anteriores relataram biomarcadores relacionados às mitocôndrias na DN, incluindo OPA1, MFN2, DRP1, PGC-1α e SOD2. Nossas descobertas sobre CAT e MAOA complementam a literatura existente ao destacar vias peroxissomais e de monoamina oxidase que receberam menos atenção no contexto mitocondrial da DN. Notavelmente, embora SOD2 e GPX1 sejam enzimas clássicas que eliminam ERO, a CAT atua especificamente sobre o H2O2 peroxissomal, sugerindo um compartimento subcelular distinto na regulação do estresse oxidativo.
Como um flavonoide natural, a taxifolina (TA) demonstrou reduzir significativamente os níveis de glicose no sangue, ácido úrico, creatinina e insulina sérica em ratos diabéticos, além de atenuar alterações renais patológicas nesses animais50. O β-sitosterol pode melhorar a DN indiretamente ao regular o equilíbrio lipídico e exercer efeitos anti-inflamatórios. Os componentes de β-sitosterol na decocção Huangqi Gegen (HGD) participam de vias relacionadas à DN, atingindo moléculas como o Fator de Crescimento Endotelial Vascular A (VEGFA) e a Interleucina-6 (IL-6). Esses efeitos incluem ações anti-inflamatórias, antiapoptóticas, antioxidantes e autofágicas, que reduzem a fibrose renal e os danos ao córtex renal e melhoram a função renal, retardando, por fim, a progressão da DN51. A eriodictiol, outro flavonoide natural, demonstrou proteger contra acidente vascular isquêmico (AVC) ao equilibrar o estresse oxidativo e a inflamação52. Embora existam poucos estudos sobre a eriodictiol no contexto da DN, dada a associação da doença com inflamação e estresse oxidativo, hipotetiza-se que ela possa aliviar a DN por meio de mecanismos semelhantes. As previsões de fármacos neste estudo também sugerem que taxifolina, β-sitosterol e eriodictiol possuem efeitos terapêuticos potenciais na DN. A simulação de acoplamento molecular prevê possíveis conformações e afinidades de ligação, mas não estabelece o engajamento do alvo in vivo, biodisponibilidade ou atividade farmacológica. Esses resultados devem ser interpretados como geradores de hipóteses, e não como conclusivos.
Estudos anteriores de farmacologia de rede sobre nefropatia diabética (DN) concentraram-se amplamente em vias de sinalização individuais (por exemplo, AGE-RAGE, PI3K-AKT e MAPK) e não consideraram a disfunção mitocondrial nem empregaram aprendizado de máquina multimodelo para priorizar biomarcadores. Nosso estudo introduz três avanços metodológicos e biológicos: (1) a integração de genes diferencialmente expressos em todo o transcriptoma (DEGs) com conjuntos de genes mitocondriais e predições de alvos medicamentosos; (2) a aplicação de quatro modelos distintos de aprendizado de máquina com validação cruzada entre conjuntos de dados para priorizar candidatos robustos; e (3) a identificação de vias peroxissomais (CAT) e de monoamina oxidase (MAOA/MAOB)—menos estudadas nos contextos mitocondriais da DN—como eixos terapêuticos candidatos.
A ausência de alterações estatisticamente significativas na expressão de MaoB e Fabp1 no rim de camundongo pode ser atribuída a diversos fatores. Primeiro, os dois conjuntos de dados do Gene Expression Omnibus (GEO) utilizados para a priorização dos candidatos foram obtidos de amostras renais humanas (rim inteiro e glomérulo, respectivamente), enquanto nosso experimento animal utilizou tecido renal de camundongo. Diferenças específicas da espécie na regulação gênica podem afetar os níveis basais de expressão e a resposta ao fármaco. Segundo, o tamanho relativamente pequeno da amostra (n = 6 por grupo) pode ter limitado o poder estatístico para detectar efeitos de magnitude moderada. Terceiro, o tecido foi coletado 8 semanas após o tratamento, o que pode não ter capturado a janela ideal para detectar alterações transcritômicas em MaoB e Fabp1, já que esses genes podem ser regulados ao nível da proteína ou da atividade, e não ao nível do mRNA. Em quarto lugar, a heterogeneidade tecidual — entre o rim inteiro e compartimentos específicos — pode contribuir para as discrepâncias. É necessário investigar mais a fundo essas possibilidades.
Este estudo utilizou uma abordagem integrativa de bioinformática e aprendizado de máquina para identificar CAT, FABP1, MAOA e MAOB como genes candidatos mitocondriais potenciais para LLF na DN. Experimentos in vivo confirmaram que LLF regula significativamente para cima CAT e MAOA no tecido renal, sugerindo que esses genes são alvos promissores para investigações mecanicistas e terapêuticas futuras. Em contraste, MAOB e FABP1 apresentaram tendências não significativas na mesma direção, enfatizando a importância da validação experimental ao priorizar previsões computacionais. Esses achados fornecem uma justificativa para estudos futuros explorarem estratégias terapêuticas relacionadas a mitocôndrias na DN.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Gostaríamos de expressar nossa sincera gratidão a todas as pessoas e organizações que nos apoiaram e auxiliaram ao longo desta pesquisa. Este estudo foi financiado pela Fundação Nacional de Ciências Naturais da China (nº 81973486 e 82173974), pelos projetos de pesquisa da Administração de Medicina Tradicional Chinesa da Província de Shanxi (nº 2024ZYYA021), pelo Projeto de Disciplina da Universidade de Medicina Chinesa de Shanxi (nº 2026XK24) e pelo projeto de Fundo de Pesquisa Científica da Universidade de Medicina Chinesa de Shandong (nº KYZK2024Q13). Agradecemos a Qinqing Li, Professora Adjunta da Universidade de Medicina Chinesa de Shanxi, pela autenticação do material botânico.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Solução Fixadora de Tecidos com Paraformaldeído 4% | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| Etanol Absoluto | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| Medidor de Glicemia | Sinocare Inc. | GA-3 | |
| Kit de Ensaio de Nitrogênio Ureico no Sangue (BUN) | Instituto de Engenharia Biomédica Nanjing Jianwei | C03-2-1 | |
| Camundongos C57BLKS/J db/db | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Camundongos C57BLKS/J db/m | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Centrífuga | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| Hidrato de Cloral | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| Banco de Dados para Previsão de Modificação m6A | http://www.cuilab.cn/sramp/ | ||
| Banco de Dados de Ingredientes Ativos na Medicina Tradicional Chinesa | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| Kit de Coloração com Hematoxilina e Eosina (HE) | Servicebio | C0105S | |
| Centrífuga de Alta Velocidade | Labnet, USA | C2500-R-230V | |
| Ferramenta de Análise de Infiltração Imune | https://cibersort.stanford.edu/ | ||
| Ligustri Lucidi Fructus | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| Agitador Magnético | Jintan Zhongtian Instrument Factory, Jiangsu | T8-1 | |
| Microscópio | Olympus | BX53 | |
| Microtomo | Leica, Germany | RM 2016 | |
| Espectrofotômetro de Microvolume | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| Pacote R para Interpretação de Modelos | https://cran.r-project.org/package=DALEX | ||
| Plataforma de Encaixe Molecular | http://clab.labshare.cn/cb-dock/ | ||
| Kit ELISA para Microalbuminúria em Camundongos | Fine Test | EM0632 | |
| Tira Reagente para Teste de Microalbuminúria em Camundongos | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| Kit ELISA de Creatinina Sérica em Camundongos | Abmart | AB5990A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| Ciclador Térmico para PCR | Roche | Roche LightCycler 480 | |
| Software R (v4.2.2) + Pacotes R | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| Kit de Extração de RNA | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| Kit de RT-qPCR | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| Salidroside | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| Kit de Ensaio de Creatinina Sérica | Instituto de Engenharia Biomédica Nanjing Jianwei | C011-2-1 | |
| Instalação para Animais SPF | Shanxi University of TCM | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| STRING | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| Tezhi Pigan | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| Banho Flutuante para Tecidos | Wuhan Junjie | JK-6 |
Referências
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.