Este protocolo descreve a preparação de bancada das grades de afinidade de monocamadas lipídicas Ni-NTA para microscopia eletrônica criogênica (crio-EM). Esta modificação da superfície da grade por microscopia eletrônica de transmissão (MET) captura seletivamente complexos proteicos solúveis marcados com poli-histidina, melhorando assim a determinação estrutural ao concentrar amostras diluídas e amarrar partículas para longe da interface ar–água.
Artigo de método
Preparação detalhada de grades de afinidade de monocamadas lipídicas Ni-NTA para análise estrutural crio-EM de complexos proteicos solúveis marcados com poliistidina
Neste artigo
Resumo
Resumo
A preparação criogénica de amostras continua sendo um grande desafio técnico para a determinação estrutural de alta resolução de complexos proteicos. Interações na interface ar-água podem induzir desnaturação ou orientação preferencial da proteína, limitando assim a resolução alcançável. Além disso, amostras diluídas ou alvos de baixa abundância frequentemente apresentam densidade de partículas insuficiente, o que dificulta a coleta eficiente de dados. Grades de afinidade baseadas em lipídios fornecem uma estratégia eficaz para enfrentar essas limitações. Este artigo apresenta um protocolo passo a passo para preparar grades de afinidade de monocamadas lipídicas Ni-NTA para a análise estrutural de complexos proteicos solúveis marcados com poli-histidina. As principais etapas do protocolo incluem preparar uma mistura lipídica, lançar a mistura lipídica na superfície de um reservatório tampão, transferir a monocamada lipídica resultante para grades TEM, opcionalmente secar e armazenar as grades lipídicas por até 1 semana, e crio-pundering das grades lipídicas com a amostra. A implementação bem-sucedida desse protocolo resulta em crio-redes contendo uma única camada de partículas bem dispersas com maior densidade de partículas em relação às grades preparadas sem monocamada lipídica. O procedimento pode ser concluído em poucas horas em um laboratório equipado com um desentupidor criogênico, uma capela química e ferramentas padrão comumente usadas para preparação de amostras criogênicas. Ao combinar instruções detalhadas escritas com demonstrações em vídeo, este trabalho visa melhorar a acessibilidade, reprodutibilidade e adoção mais ampla das grades de afinidade de monocamada lipídica Ni-NTA dentro da comunidade crio-EM.
Introdução
Técnicas experimentais para determinação da estrutura de proteínas, incluindo cristalografia por raios X, ressonância magnética nuclear (RMN) e microscopia eletrônica criogênica (crio-EM), dependem de preparação cuidadosa da amostra. Na análise de partícula única (SPA) crio-EM, a qualidade da amostra é frequentemente o principal fator que limita a resolução da reconstrução final. À medida que os avanços tecnológicos em microscópios eletrônicos de crio-transmissão (cryo-TEMs) e detectores de elétrons diretos continuam a melhorar a eficiência da coleta de dados e a resolução alcançável, o principal desafio na crio-EM de alta resolução se desloca cada vez mais da aquisição de imagem para a preparação e qualidade da amostra 1,2,3,4,5,6,7.
A preparação tradicional de crio-grade geralmente envolve a aplicação de alguns microlitros de amostra na superfície de uma grade de microscopia eletrônica de transmissão (MET), a aplicação de papel de filtro na grade e a imersão rapidamente em um criogênio, tipicamente etano líquido ou uma mistura de propano-etano. Idealmente, a crio-grade resultante contém gelo vítreo fino com partículas monodispersas. Na prática, alcançar esse resultado é frequentemente difícil e pode exigir múltiplas rodadas de otimização para gerar grades adequadas para determinação estrutural de alta resolução. Problemas comuns incluem desnaturação de proteínas na interface ar-água (AWI)8,9, orientaçãopreferencial 10 e baixa densidade de partículas dentro da camadade gelo 11,12. Este último desafio é particularmente significativo para complexos proteicos altamente dinâmicos, de curta duração ou difíceis de isolar em concentrações micromolares. Diversas estratégias foram desenvolvidas para enfrentar essas limitações, incluindo óxido degrafeno 13, carbono14 ultrafino contínuo e nanoesferas revestidas com estreptavidina para captura de alvos biotinilados15.
Uma abordagem alternativa envolve modificar grades TEM com superfícies de afinidade projetadas para ligar seletivamente moléculas-alvo. Essas grades de afinidade podem concentrar partículas na superfície da grade enquanto reduzem a exposição ao AWI, melhorando assim a distribuição das partículas e preservando a integridade estrutural. Além disso, o efeito de concentração pode enriquecer complexos macromoleculares de baixa abundância a partir de amostras diluídas ou heterogêneas.
Na última década, várias estratégias de grade de afinidade foram desenvolvidas para a SPA cryo-EM. Essas abordagens podem ser categorizadas pela modificação da superfície da grade TEM e pela estratégia de funcionalização correspondente. Superfícies comumente utilizadas incluem monocamadas lipídicas de carbono14 ou óxido de grafeno amorfo ultrafino, 13,16 ou nanotubos lipídicos 17,18 e cristais bidimensionais de estreptavidina cultivados em monocamadaslipídicas 19,20. Entre essas abordagens, as grades bidimensionais de afinidade por estreptavidina têm sido particularmente bem-sucedidas em permitir a determinação da estrutura proteicaem alta resolução 21,22,23,24,25,26,27,28,29 . Metodologias relacionadas incluem o uso de estreptavidina monodispersa de partícula única ligada a monocamadas lipídicas, que foi recentemente aplicada para determinar a estrutura do complexo de manutenção de mini-cromossomos ligado ao DNA de fita dupla (dsDNA)30.
Apesar desses avanços, métodos acessíveis e reprodutíveis para preparação de grade de afinidade continuam limitados. Cada técnica possui requisitos únicos de amostra para ligação seletiva de alvos, e nenhuma está disponível comercialmente, exigindo protocolos especializados de fabricação e modificações químicas. Essas etapas adicionais podem aumentar substancialmente a complexidade técnica dos fluxos de trabalho crio-EM da SPA. Assim, este artigo apresenta um protocolo detalhado, passo a passo, destinado a facilitar a preparação da tecnologia de grade de afinidade descrita aqui. O protocolo de grade de afinidade de monocamadas lipídicas Ni-NTA foi rotineiramente implementado anteriormente17 e pode ser facilmente adotado para estudos estruturais crio-EM de complexos proteicos solúveis marcados com poli-histidina, abrangendo uma ampla faixa de peso molecular (97–470 kDa) (Figura 1). O método é compatível com concentrações de proteína que variam de 0,05 a 0,2 mg/mL em tampões sem detergente.
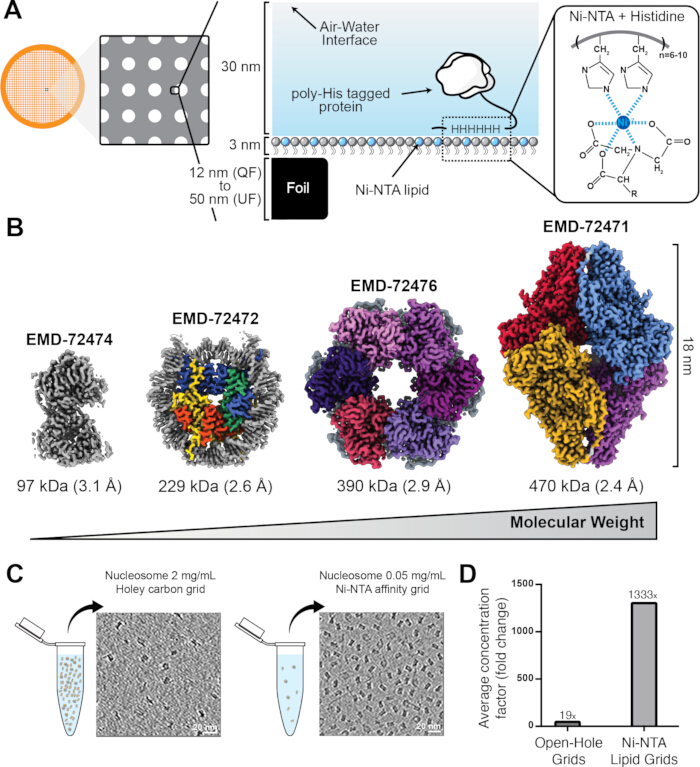
Figura 1: Visão geral do design da grade de afinidade lipídica Ni-NTA. (A) Esquema de uma crio-grade lipídica Ni-NTA de 20%. A grade criogênica é mostrada à esquerda, com uma vista transversal da monocamada lipídica ilustrando as dimensões do filme de carbono, monocamada lipídica, gelo vítreo e partículas anexadas (centro). A interação entre as cadeias laterais da histidina e os lipídios Ni-NTA é representada à direita. (B) Exemplos de proteínas marcadas com poli-histidina resolvidos usando grades de afinidade lipídica. Os mapas são desenhados em escala relativa uns aos outros, com peso molecular, tamanho, resolução e número de acesso EMDB indicados. (C) Fatias tomográficas representativas de nucleossomos marcados com poli-histidina preparadas usando criossomos não lipídicos a 2 mg/mL (direita) e crio-grades de afinidade lipídica Ni-NTA a 0,05 mg/mL (esquerda). (D) Fator médio de concentração de crio-redes não-lipídicas comparadas às crio-redes de afinidade lipídica Ni-NTA, demonstrando a capacidade do filme lipídico de concentrar proteínas marcadas com poli-histidina longe da interface ar-água (IL). Partes dessa figura foram adaptadas das Figuras 1A, B e 2A, B em Skrajna et al.17 com permissão da Elsevier. Por favor, clique aqui para ver uma versão ampliada desta figura.
Protocolo
Este estudo não envolveu participantes humanos, dados clínicos ou animais vivos. Os reagentes e os equipamentos utilizados estão listados na Tabela de Materiais.
NOTA: DOPC refere-se a 18:1 (Δ9-cis) PC. O lipídio Ni-NTA refere-se a 18:1 DGS-NTA(Ni). Buffer de baixo teor de sal refere-se a 10 mM de HEPES (pH 7,4) com 50 mM de NaCl. Buffer de diluição refere-se a 20 mM de HEPES (pH 7,4) com 150 mM de NaCl.
1. Lavagem de vidros reutilizáveis (~30 min)
- Reúna duas pequenas placas de Petri, duas pequenas tampas para placa de Petri, um frasco volumétrico de 25 mL com tampão e um frasco volumétrico de 1 mL com tampão. Coloque os itens perto da pia.
- Dissolva um pó de surfactante aniônico em água morna da torneira em uma tina plástica de 11,4 L.
- Mergulhe delicadamente os vidros na solução de surfactante.
- Ao usar luvas de nitrila, esfregue todas as superfícies acessíveis de vidros com uma escova de laboratório. Enxágue bem com água ultrapura.
- Remova a água residual batendo suavemente nos copos nos papéis toalha.
- Seque os vidros com um secador de cabelo até não restar umidade visível.
NOTA: Armazene vidros lavados em um ambiente limpo e sem poeira.
2. Equilíbrio dos lipídios à temperatura ambiente (1–4 h)
NOTA: Se os estoques lipídicos já foram preparados, pule esta seção.
- Coloque uma ampola selada de 25 mg de pó DOPC e uma ampola selada de 1 mg de pó lipídico Ni-NTA em uma coifa química.
- Equilibre os lipídios à temperatura ambiente por pelo menos 1 hora.
3. Montar a estação de limpeza de solventes (~10 min)
ATENÇÃO: O clorofórmio é um líquido perigoso e volátil que atua como depressor do sistema nervoso central e irritante para pele, olhos e respiratórios. Realize todas as etapas que envolvam mais de 100 μL de clorofórmio em um exaustor químico enquanto usa o equipamento de proteção individual (EPI) adequado, incluindo luvas, jaleco e proteção ocular. Remova e descarte luvas de nitrilo contaminadas em até 1 minuto após a exposição, pois o clorofórmio penetra rapidamente no nitrilo. Não combine resíduos de clorofórmio com outros fluxos de resíduos químicos.
- Reúna 99,8% de clorofórmio, uma garrafa de resíduos de clorofórmio com tampa, 99,5% etanol, uma garrafa de etanol com tampa, um recipiente para objetos cortantes, duas pequenas placas de Petri, duas pequenas tampas para placas de Petri, uma grande placa de Petri contendo papel filtrante grau 1, três ou mais2 pedaços de filme autovedante de 1–2 cm e papel toalha. Organize todos os materiais na exaustão química (Figura 2).
- Enxágue as placas de Petri com 20–30 mL de clorofórmio. Descarte o enxágue no frasco de lixo apropriado. Repita com etanol. Seca a louça ao ar.
- Encha uma pequena placa de Petri com clorofórmio e a outra com etanol. Cubra ambos os pratos para minimizar a evaporação.
- Reabasteça as placas de Petri durante todo o experimento, especialmente quando o clorofórmio ficar visivelmente turvo com contaminantes.
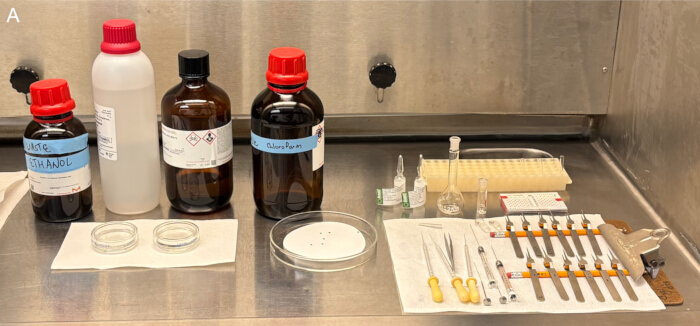
Figura 2: Exaustor químico contendo ferramentas e reagentes para preparação de misturas lipídicas. Imagem da estação de limpeza de solventes e ferramentas limpas, vidros e grades TEM. Garrafas da esquerda para a direita: resíduos de etanol, etanol, clorofórmio e resíduos de clorofórmio. Placas de Petri da esquerda para a direita: etanol, clorofórmio e grades TEM em papel filtrante. Itens adicionais da esquerda para a direita e de cima para baixo incluem tubos de cultura em um suporte de tubos, ampolas lipídicas, frascos volumétricos com tampões, grades TEM armazenadas, pipetas de vidro com bulbos, pinças de ponta fina, seringas de vidro e pinças anticapilares com espaçadores (tocos de lápis) inseridos. Por favor, clique aqui para ver uma versão ampliada desta figura.
4. Ferramentas de limpeza, vidros e grades TEM com solventes (~20 min)
- Reúna um par de pinças de ponta fina, doze pares de pinças anticapilares auto-fechantes, três pipetas de vidro, uma seringa de vidro de 25 μL, uma seringa de vidro de 2,5 μL, três tubos de cultura de vidro em um suporte de tubos, um frasco volumétrico de 25 mL com tampão, um frasco volumétrico de 1 mL com tampão, vinte a vinte e cinco frascos de vidro rosqueados de 3,7 mL com tampas fenólicas, e doze grades TEM de buraco e carbono em malha dourada. Coloque os materiais próximos à estação de limpeza de solventes na exaustão química.
NOTA: Mantenha um espaçador, como um toco de lápis, inserido em cada par de pinças anticapilares quando não estiver em uso, para evitar malformações e desalinhamento nas pontas. Descarte pinças dobradas. - Limpe a pinça mergulhando as pontas no clorofórmio várias vezes. Repita com etanol. Seca ao ar.
- Limpe as pipetas de vidro aspirando e dispensando clorofórmio várias vezes. Repita com etanol. Seca ao ar.
- Limpe as seringas aspirando e dispensando clorofórmio até que o êmbolo se mova suavemente. Repita com etanol. Retire o êmbolo do cano da seringa e seque ao ar.
- Limpe os tubos de cultura adicionando e removendo o clorofórmio várias vezes com uma pipeta de vidro. Repita com etanol. Remova o líquido residual invertendo os tubos e batendo-os suavemente em papel toalha. Seca ao ar.
- Limpe os frascos volumétricos adicionando clorofórmio com uma pipeta de vidro, tampondo o frasco e agitando suavemente para enxaguar as superfícies internas. Descarte o solvente no frasco de resíduo. Repita com etanol. Deixe os frascos sem tampas e secos ao ar.
- Limpe os frascos adicionando clorofórmio com uma pipeta de vidro, tamponando o frasco e agitando suavemente para enxaguar as superfícies internas. Descarte o solvente. Repita com etanol. Deixe os frascos sem tampa e secos ao ar.
- Limpe as grades TEM segurando a borda externa reforçada com pinças de ponta fina, evitando danos ao filme de carbono. Submerga as grades verticalmente em clorofórmio três vezes e depois em etanol três vezes.
- Coloque a grade TEM com o lado carbono para cima no papel de filtro e deixe secar ao ar.
5. Resfriamento do buffer de conjuração (>20 min)
- Coloque pelo menos 50 mL de tampão com baixo teor de sal sobre o gelo.
- Deixe o buffer com calma por pelo menos 20 minutos.
6. Preparação de soluções separadas de clorofórmio de 1 mg/mL de DOPC e lipídio Ni-NTA (~20 min)
NOTA: Se os estoques de lipídios já foram preparados, vá para a Seção 8, "Preparando a mistura lipídica 80% DOPC/20% Ni-NTA."
- Certifique-se de que os pós lipídicos DOPC e Ni-NTA tenham se equilibrado com a temperatura ambiente.
ATENÇÃO: Lâminas e vidro quebrado são perigos afiados. Tenha cuidado ao usar uma navalha e quebrar ampolas de vidro. - Para melhorar a visibilidade do pó DOPC, remova o rótulo da ampola cortando-a com uma lâmina e retirando-a. Repita para a ampola lipídica Ni-NTA.
- Com ambas as mãos e trabalhando sobre o recipiente de objetos cortantes, abra cuidadosamente a ampola contendo 25 mg de DOPC. Descarte o pescoço da ampola no recipiente para sharps. Coloque o corpo da ampola próximo ao recipiente de clorofórmio. Repita para a ampola lipídica Ni-NTA de 1 mg.
- Escove cuidadosamente fragmentos de vidro das luvas e superfícies de trabalho para dentro do recipiente de objetos cortantes. Troque as luvas danificadas imediatamente.
- Rotule uma pipeta de vidro para clorofórmio, uma para DOPC e uma para lipídios de Ni-NTA.
- Encha uma pequena placa de Petri limpa com solvente com clorofórmio.
- Use a pipeta DOPC para transferir 2–5 mL de clorofórmio para a ampola DOPC. Aspire e dispense a solução até que o lipídio na parte inferior e nas laterais se dissolva completamente.
- Transfira a solução DOPC para o frasco volumétrico de 25 mL usando a pipeta DOPC. Leve o frasco a um volume final de 25 mL com clorofórmio usando a pipeta de clorofórmio.
- Descarte a ampola DOPC no recipiente de objetos cortanteados.
- Transfira menos de 1 mL de clorofórmio para o frasco volumétrico de 1 mL usando a pipeta de clorofórmio.
- Use a pipeta lipídica Ni-NTA para transferir o clorofórmio do balão volumétrico de 1 mL para a ampola lipídica Ni-NTA. Aspire e dispense a solução até que o lipídio na parte inferior e nas laterais se dissolva completamente.
- Transfira a solução lipídica Ni-NTA para o frasco volumétrico de 1 mL usando a pipeta lipídica Ni-NTA. Leve o frasco a um volume final de 1 mL com clorofórmio usando a pipeta de clorofórmio.
- Descarte a ampola lipídica Ni-NTA no recipiente de objetos cortanteiros.
7. Preparação de pequenas alíquotas de lipídios para armazenamento a longo prazo (~15 min)
- Use a pipeta DOPC para aliquotar 1–2 mL de estoque DOPC em vários frascos de vidro. Tampe e rótule os frascos.
- Use a pipeta lipídica Ni-NTA para aliquotar 0,2–0,5 mL de lipídios Ni-NTA em vários frascos de vidro. Tampe e rótule os frascos.
ATENÇÃO: O nitrogênio líquido (LN2) é um criógeno que pode inicialmente causar um breve efeito de Leidenfrost antes de causar dor intensa, dormência, bolhas e congelamento. A gravidade da lesão aumenta com a duração da exposição e pode progredir de queimaduras de primeiro para quarto grau em menos de 1 minuto. Objetos resfriados por LN2 podem causar lesões semelhantes. Tenha atenção à condução térmica através de ferramentas criogênicas ao manuseá-las no LN2. Use uma viseira facial para proteger contra respingos. Não mergulhe as mãos no LN2, mesmo usando luvas crioprotetoras, pois o LN2 preso pode permanecer em contato com a pele. Não confunda vapor d'água atmosférico condensado com vapor LN2. O LN2 se expande aproximadamente 700× de volume quando é transformado em um asfixiante gasoso invisível e inodoro. Certifique-se de que todos os tanques e dewars de LN2 estejam devidamente ventilados para evitar o acúmulo de pressão. Use o LN2 apenas em áreas bem ventiladas e evapore o LN2 não utilizado em uma exaustão química. - Encha um pequeno dewar de criogênio com LN2.
- Remova a tampa de um frasco aliquot, despeje vapor de nitrogênio no frasco, recubra o frasco e o sele com filme auto-vedante. Repita para todos os frascos de aliquota.
NOTA: Armazene estoques de lipídios aliquotas a −20 °C por até 3 meses.
8. Preparando a mistura de lipídios 80% DOPC/20% Ni-NTA (~15 min)
- Certifique-se de que as alíquotas lipídicas do DOPC e Ni-NTA estejam equilibradas com a temperatura ambiente.
- Rotule um tubo de cultura de vidro para DOPC, um para lipídio Ni-NTA e um para a mistura de lipídios.
- Use a pipeta DOPC para transferir 50–100 μL (2–3 gotas) de material DOPC para o tubo de cultura DOPC. Sele o tubo com filme auto-vedante.
- Use a pipeta lipídica Ni-NTA para transferir 20–50 μL (1–2 gotas) de lipídios Ni-NTA para o tubo de cultura lipídica Ni-NTA. Sele o tubo com filme auto-vedante.
- Use a seringa de 25 μL para puxar 20 μL de alíquota DOPC para o corpo da seringa. Confirme que o barril não contém bolhas e retire novamente a amostra se necessário. Dispense a alíquota no tubo da mistura lipídica. Repita uma vez para um volume total de 40 μL.
- Limpe a seringa com clorofórmio seguido de etanol.
- Use a seringa para extrair 10 μL de alíquota lipídica Ni-NTA. Confirme que o barril não contém bolhas e retire novamente a amostra se necessário. Dispense a alíquota no tubo da mistura lipídica, elevando o volume total final para 50 μL.
- Misture os lipídios aspirando e dispensando a solução várias vezes. Sele o tubo com filme auto-vedante.
- Limpe a seringa com clorofórmio seguido de etanol. Seca ao ar.
9. Fundir uma monocamada lipídica e transferir para as grades TEM (~10 min)
- Certifique-se de que o tampão com baixo teor de sal esteja gelado.
- Reúna uma pequena lâmpada LED, o tampão gelado com baixo teor de sal, um frasco tampão com tampa, etanol reagente, um frasco de resíduos de etanol, um frasco de óleo de rancino com conta-gotas, a mistura lipídica, uma pequena placa de Petri, uma seringa de 2,5 μL, doze pares de pinças anticapilares, doze grades TEM e lenços de baixo fiapo. Organize os materiais em uma bancada preta bem iluminada (Figura 3).
- Oriente o braço plano de cada par de pinças anticapilares para o lado carbono de uma grade TEM. Prenda a grade ao longo da borda externa reforçada. Repita para todas as grades.
- Encha a pequena placa de Petri até a borda com um tampão gelado com baixo teor de sal (Figura 4A). Coloque uma gota de óleo de rícino no centro da superfície tampão (Figuras 4B, 4C).
NOTA: Prossiga rapidamente pelos passos a seguir, pois a monocamada lipídica gradualmente se afasta do centro do óleo de rórcio ao longo do tempo, reduzindo a eficiência de transferência. Flutuações de temperatura e vibrações aceleram esse processo. - Use a seringa de 2,5 μL para extrair 1 μL da mistura lipídica. Abaixe a ponta da agulha da seringa para o centro do óleo de rancino. Dispense a mistura lipídica como uma gota pendurada no chanfro da agulha logo acima da superfície, depois toque suavemente a gota no óleo de rícino (Figura 4D).
- Use a lâmpada LED para confirmar a formação de um círculo lipídico plano de 2–3 cm de diâmetro cercado por um anel de óleo de rancino (Figura 4E). Se essa morfologia não for observada, reinicie o prato de fundição descartando o tampão, enxaguando o prato com etanol reagente, secando com tecidos de baixo fiapo e reaplicando uma mistura de tampão com baixo teor de sal, óleo de rícino e lipídios.
NOTA: O excesso de óleo de rúcno dificulta a formação da monocamada lipídica, enquanto a falta de óleo de rúcno não consegue conter a monocamada. A fluidez lipídica depende da temperatura. Se o tampão estiver muito frio, o lipídio não se espalha para uma monocamada. Se o buffer estiver muito quente, os lipídios e o óleo de rúcno migram em direção à borda do recipiente e colapsam. Despeje o tampão gelado em uma placa de Petri à temperatura ambiente para alcançar a propagação ótima dos lipídios. Reajuste o prato de fundição conforme necessário após cada transferência de grade. Certifique-se de que o recipiente de fundição esteja completamente livre de óleo antes de adicionar um novo tampão. - Transfira a monocamada lipídica para uma grade TEM abaixando a grade TEM fixada para o centro da fundição lipídica com o lado do carbono voltado para baixo. Toque suavemente toda a superfície do carbono com a monocamada lipídica sem submergir ou liberar a grade (Figura 4F).
- Inspecionar a grade lipídica para confirmar cobertura total de líquidos e ausência de óleo de rícino (Figura 5). Descarte grades oleosas.
- Repita o procedimento de transferência para todas as grades TEM.
NOTA: Grades lipídicas presas podem secar em 5–10 minutos. As grades lipídicas podem permanecer presas no tampo durante a noite antes da reidratação. Alternativamente, as grades lipídicas secas podem ser colocadas em uma caixa de grade e armazenadas em um dessecador em temperatura ambiente por até 1 semana antes de serem recolhidas e reidratadas.
CRÍTICO: Prossiga somente se o congelamento por mergulho ocorrer dentro de 2 horas. Caso contrário, atrase os passos restantes.
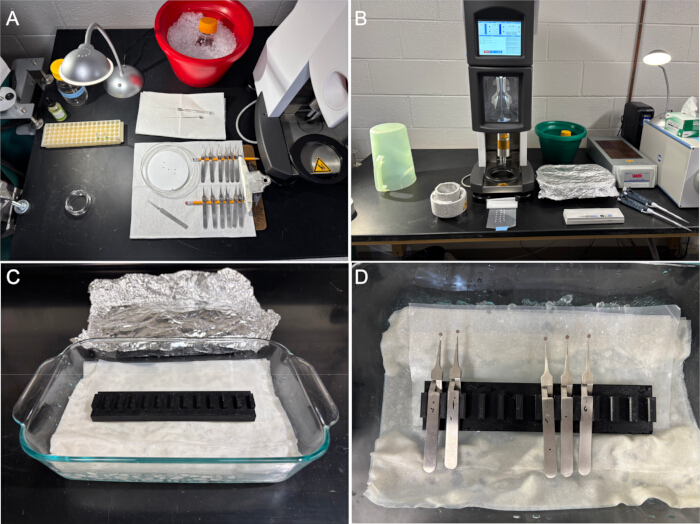
Figura 3: Montagem de bancada para fundição de monocamadas lipídicas e congelamento por mergulho. (A) Os itens mostrados da esquerda para a direita e de cima para baixo incluem um frasco conta-gotas de óleo de rícino, frasco de resíduos amortecedores, lâmpada LED, tampão gelado com baixo teor de sal sobre gelo, suporte de tubos contendo alíquotas lipídicas e mistura lipídica, seringa de vidro de 2,5 μL, placa de Petri vazia, placa de Petri contendo grades TEM em papel filtrante, pinças de ponta fina e pinças anticapilares com espaçadores inseridos. (B) Os itens mostrados incluem um desentupidor criogênico refrigerado e umidificado, um potinho criogênico montado, um balde de gelo contendo buffer de diluição e amostra, uma câmara de umidade de bancada coberta com folha de alumínio, um filme selado e autovedante com linhas de gotas tampão de diluição, pinças crio-pêtulos e micropipetas. (C) Câmara de umidade de bancada contendo gelo, papel toalha úmido, filme auto-vedante e um suporte para pinça de bancada. (D) Grades lipídicas fixadas por pinças anticapilares dentro da câmara de umidade da bancada. Por favor, clique aqui para ver uma versão ampliada desta figura.
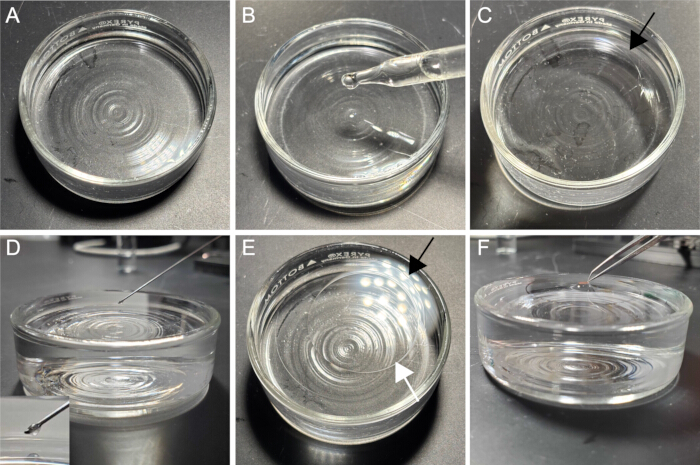
Figura 4: Fundindo uma monocamada lipídica e transferindo-a para grades TEM. (A) Travessa de lançamento preenchida com tampão de baixo teor de sal. (B) Distribuição de 1 gota de óleo de rancino para a placa de fundição. (C) Círculo de óleo de rícino flutuando na superfície do amortecedor; A seta preta indica a fronteira do óleo de rancino. (D) Agulha de seringa centrada acima do óleo de rimitino com o bisel voltado para baixo; 1 μL de gota de mistura lipídica suspensa da ponta da agulha. (E) Mistura lipídica espalhada dentro de um anel de óleo de rancino; a seta preta indica a fronteira do óleo de rúcino, e a seta branca indica a fronteira da monocamada lipídica. (F) Transferência da monocamada lipídica para o lado de carbono de uma grade TEM. Por favor, clique aqui para ver uma versão ampliada desta figura.
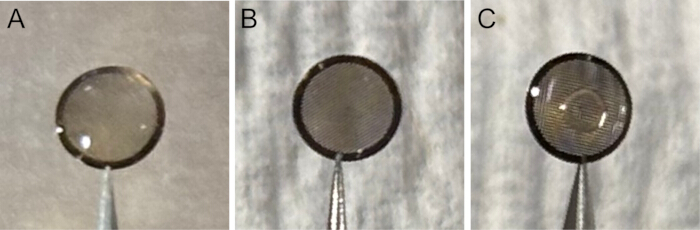
Figura 5: Exemplos de grades TEM após transferência de monocamada lipídica. (A) Transferência de lipídios bem-sucedida com buffer distribuído por toda a superfície da grade. (B) Transferência de lipídios bem-sucedida após secagem ao ar por 1 h. (C) Transferência de lípidos contaminada com óleo de rancino, visível no centro da grade. Por favor, clique aqui para ver uma versão ampliada desta figura.
10. Incubação de papel blot em um desentupidor criogênico a 4 °C e 100% de umidade (>1 h)
- Ajuste a câmara de umidade do desentupidor criogênico para 4 °C e 100% de umidade.
- Instale papel manchante nas pastilhas. Incube o papel de mancha em alta umidade por pelo menos 1 hora.
11. Resfriamento do buffer de diluição (~20 min)
- Coloque pelo menos 20 mL de tampão de diluição sobre gelo.
- Deixe o buffer com calma por pelo menos 20 minutos.
12. Buffer de diluição incubadora nas grades lipídicas (>15 min)
- Junte uma assadeira, uma versão de um suporte para pinça impresso em 3D (Arquivos Suplementares 1–3), uma tira de filme autovedante de 10 cm de largura de 25–35 cm, uma tira de papel alumínio de 30,4 cm de largura, gelo e papel toalha. Coloque os materiais próximos ao desentupidor criogênico (Figura 3).
- Posicione a assadeira no sentido do comprimento ao lado do desentupidor criogênico. Encha o recipiente até a metade com gelo e depois cubra com papel toalha. Molhar levemente as toalhas de papel com água da torneira.
- Posicione a tira de filme auto-vedante no sentido do comprimento na metade oposta da assadeira, diretamente sobre as toalhas de papel molhadas.
- Posicione o suporte para pinça impresso em 3D no sentido do comprimento, no centro da assadeira, diretamente sobre as toalhas de papel molhadas e o filme autovedante.
- Cubra a assadeira com papel alumínio (Figura 3).
- Substitua o gelo derretido durante todo o experimento.
- Coloque as grades lipídicas prensadas na câmara de umidade do balcão sobre o filme auto-vedante com o lado lipídico voltado para cima (Figura 3).
NOTA: Evite mover a câmara de umidade da bancada ou tocar nas grades lipídicas com a ponta de uma pipeta, pois essas ações podem desalojar as grades. Recupere quaisquer grades que caiam sobre o filme auto-vedante se as grades permanecerem intactas. - Aplique 2 μL de tampão de diluição da amostra em cada superfície lipídica. Cubra a câmara com papel alumínio para minimizar a evaporação.
- Mantenha a hidratação de cada grade lipídica aplicando 2 μL adicionais de tampão de diluição sempre que restar menos de 1 μL de líquido na grade.
- Equilibre as grades lipídicas hidratadas na câmara de umidade refrigerada da bancada por pelo menos 15 minutos.
13. Incubação da amostra nas grades lipídicas (>15 min)
- Certifique-se de que as grades lipídicas tenham sido hidratadas continuamente com buffer de diluição por pelo menos 15 minutos.
- Certifique-se de que o buffer de diluição original esteja totalmente resfriado.
- Aplique 3 μL de amostra marcada com poliistidina em cada grade lipídica hidratada. Cubra a câmara com papel alumínio para minimizar a evaporação.
- Mantenha a hidratação de cada grade lipídica aplicando 2 μL adicionais de tampão de diluição sempre que restar menos de 2 μL de líquido na grade.
- Incube as grades por pelo menos 15 minutos.
14. Preparando o potinho crio-plunger (>15 min)
- Monte o potenciômetro crio-êmbolo, incluindo o eixo usado para resfriamento indireto da copa de latão.
- Rotule as caixas da grade criogênica e coloque-as dentro do potenciômetro criogênico.
- Encha o potenciômetro criogênico com LN2. Cubra a panela para minimizar a contaminação do gelo.
- Mantenha o nível de LN2 acima das caixas da grade criogênica adicionando periodicamente LN2 adicional.
- Resfrie os componentes metálicos e as caixas da grade criogénica para a temperatura LN2 por pelo menos 10 minutos.
ATENÇÃO: Propano líquido e etano são criógenos altamente inflamáveis que causam lesões semelhantes ao LN2, mas não possuem efeito perceptível de Leidenfrost. Como resultado, o contato pode causar lesão imediata e persistente. Evite respingar durante o manuseio. Se o propano-etano contaminar o LN2, manuseie o LN2 contaminado com as mesmas precauções elevadas do propano líquido e do etano. Após o uso, coloque o potinho criogênico em uma coifa química para permitir que os criógenos evaporem com segurança. - Encha o copo de latão com uma mistura líquida de propano e etano 60:40.
- Equilibre a mistura de propano e etano à temperatura LN2 por pelo menos 5 minutos.
15. Congelamento por mergulho das grades lipídicas (~1 h)
- Certifique-se de que o papel de borrão tenha se equilibrado em 4 °C e 100% de umidade por pelo menos 1 hora.
- Certifique-se de que as grades lipídicas tenham incubado com a amostra marcada com poli-histidina por pelo menos 15 minutos.
- Confirme que a temperatura propano-etano está abaixo de −190 °C, e então remova o fuso.
- Dispense três gotas de 50 μL de tampão de diluição em linha sobre uma peça segurade 10 cm de 2 filmes auto-selantes (Figura 3).
- Lave uma grade lipídica presa tocando sequencialmente a superfície lipídica em cada gota de diluição e liberando a grade na gota final.
- Use a pinça crio-desentupidor para captar a grade lipídica flutuante. Monte a grade no desentupidor criogênico.
- Absorva as gotas tampão usadas com um papel sem fiapos e descarte.
- Aplique as seguintes configurações crio-plunger na grade lipídica antes de congelar por mergulho na mistura de propano-etano: tempo de espera, 0 s; mancha total, 1; força de blot, −10; tempo de borracha, 4 s; e tempo de drenagem, 0 s.
- Transfira a grade criogênica do copo de propano-etano para uma ranhura disponível em uma caixa de grade criogênica.
- Repita o procedimento de congelamento por mergulho para todas as grades lipídicas.
Resultados
Para ilustrar os resultados esperados desse protocolo, uma série de experimentos foi realizada. Grades TEM R1.2/1.3 de carbono holey-carbono com e sem 20% de monocamadas lipídicas Ni-NTA foram congeladas por mergulho com amostra e analisadas usando um crio-TEM de 200 keV. Para cada condição, 3 a 9 quadrados de grade foram visualizados. A espessura do gelo variou entre grades individuais e quadrados de grade, com regiões ótimas contendo gelo vítreo fino e partículas bem incorporadas, conforme comprovado por anéis característicos de Thon na transformada rápida de Fourier (FFT)31.
No primeiro experimento, Staphylococcus aureus glutamato sintase (saGS) marcada com poli-histidina purificada foi usada para demonstrar a preparação ideal e o desempenho esperado de 20% de grades de afinidade de monocamadas lipídicas Ni-NTA (Figura 6). As monocamadas lipídicas foram transferidas para grades TEM de malha dourada. As grades lipídicas foram secas e armazenadas em um dessecador por 1 semana antes da reidratação. Após reidratação completa, o SAGS a 0,1 mg/mL foi incubado nas grades por 15–30 minutos para permitir a ligação das partículas. As partículas de SaGS, com uma contagem média de 274 partículas por micrografia (N = 7), apareceram distribuídas uniformemente pela monocamada lipídica, com sobreposição mínima ou nenhuma.
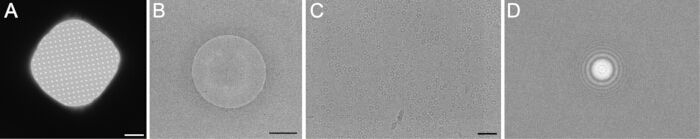
Figura 6: Imagens crio-TEM representativas de uma grade de afinidade lipídica Ni-NTA de 20%. A monocamada lipídica foi seca por 1 semana e reidratada com um tampão com baixo teor de sal, conforme descrito no protocolo. Imagens representativas foram coletadas com ampliações baixas (A), intermediárias (B) e altas (C), com a correspondente FFT mostrada em (D). Partículas, com uma média de 274 partículas por micrografia (N = 7), são distribuídas uniformemente pela superfície da grade dentro de uma camada fina de gelo vítreo. Barras de escala: 10 μm, 500 nm e 50 nm. Por favor, clique aqui para ver uma versão ampliada desta figura.
No segundo experimento, amostras de SaGS exibindo empilhamento de partículas foram usadas para demonstrar os efeitos das grades lipídicas na agregação de proteínas (Figura 7). Quatro condições de criograde foram examinadas: saGS em 1,0 mg/mL em grades de malha de cobre sem lipídios, saGS em 0,1 mg/mL em grades de malha de cobre sem lipídios, saGS em 0,1 mg/mL em grades de malha dourada com lipídios nunca secos, e saGS em 0,1 mg/mL em grades de malha dourada com lipídios secos por 1 semana antes da reidratação. Grades lipídicas apresentavam maior densidade de partículas, com médias de 40 ou 46 partículas por micrografia (N = 12), em relação às grades não lipídicas preparadas na mesma concentração de proteína, que tinham média de 2 partículas por micrografia (N = 12). Esses achados demonstraram um efeito claro de concentração em relação às grades TEM não modificadas, confirmando que a monocamada lipídica de Ni-NTA de 20% permaneceu intacta. Embora o empilhamento de partículas ainda fosse observado, partículas em grades lipídicas apresentavam sobreposição mínima e permaneciam dentro de um plano focal semelhante. Em contraste, partículas em grades não lipídicas apareceram em profundidades focais substancialmente diferentes, com partículas agregadas observadas na concentração mais alta de 1 mg/mL.
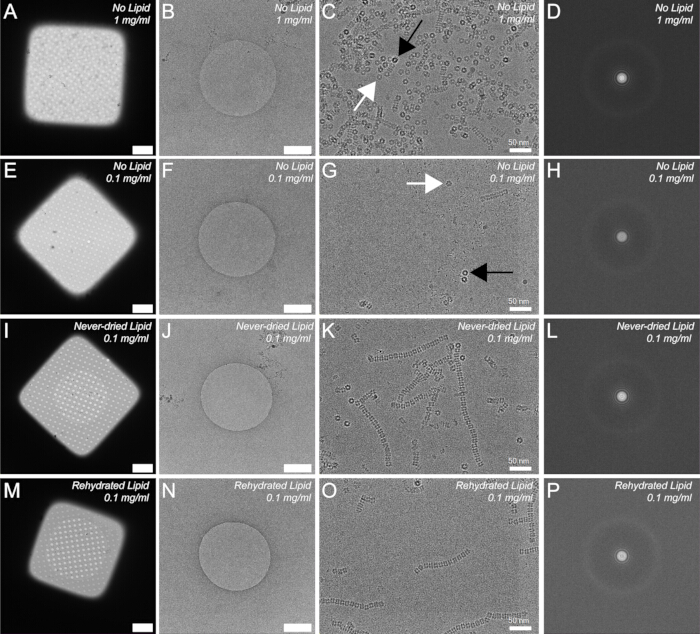
Figura 7: Imagens crio-TEM de saGS empilhados marcados com poli-histidina em grades lipídicas e não lipídicas de Ni-NTA com 20%. (A–D) Grade não lipídica preparada com saGS a 1,0 mg/mL, mostrada em ampliações baixas (A), intermediárias (B) e altas (C), com correspondente FFT (D). (E–H) Grade não lipídica preparada com saGS a 0,1 mg/mL. (I–L) Grade lipídica nunca seca preparada com saGS a 0,1 mg/mL.
(M–P) Grade lipídico reidratado preparado com SAGS a 0,1 mg/mL. A densidade de partículas em grades não lipídicas foi menor do que a observada nas respectivas grades de afinidade lipídica, com média de 2 partículas por micrografia, comparado a 46 e 47 partículas por micrografia, respectivamente (N = 12). Flechas pretas indicam partículas fortemente desfocadas. Setas brancas indicam partículas próximas ao foco. Barras de escala: 10 μm, 500 nm e 50 nm. Por favor, clique aqui para ver uma versão ampliada desta figura.
No terceiro experimento, grades lipídicas foram expostas ao N-dodecil-β-D-maltosídeo (DDM). O saGS purificado a 0,1 mg/mL foi usado como amostra. O detergente rompeu a monocamada lipídica. Crio-redes lipídicas contendo 0,05% de DDM no tampão (Figura 8) apresentaram lacunas na monocamada lipídica, micelas lipídicas na superfície da grade e redução da densidade de partículas em relação à condição de controle.
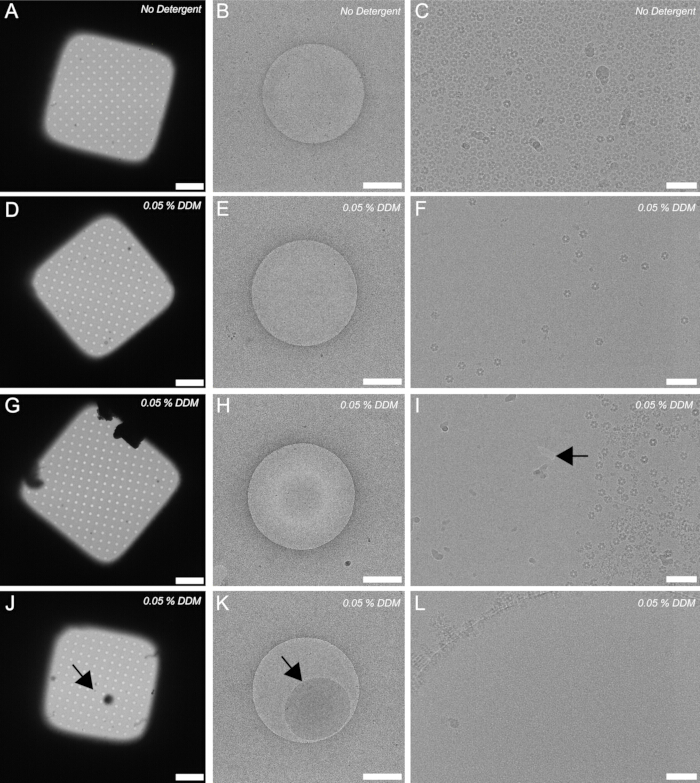
Figura 8: Imagens representativas de 20% de grades lipídicas Ni-NTA expostas a 0,05% de N-dodecil-β-D-maltosídeo (DDM). As crio-redes foram imagens em ampliações baixas, intermediárias e altas. (A–C) Imagens de uma grade de afinidade lipídica Ni-NTA de 20% reidratada com buffer de diluição da amostra. (D–L) Imagens de uma grade de afinidade lipídica Ni-NTA de 20% reidratada com buffer de diluição amostral contendo 0,05% de DDM. A densidade de partículas do saGS era menor em grades TEM tratadas com detergente. A seta no painel I indica um buraco na monocamada lipídica. Setas nos painéis J e K indicam a mesma micela lipídica. Barras de escala: 10 μm, 500 nm e 50 nm. Por favor, clique aqui para ver uma versão ampliada desta figura.
A espessura do gelo variava tanto entre as grades quanto dentro dos quadrados individuais da grade. Em alguns casos, o gelo era muito fino ou ausente de partes do quadrado da grade (Figura 9A), distribuído de forma desigual (Figura 9B) ou excessivamente grosso para imagem (Figura 9C). Em algumas regiões, a espessura do gelo era menor que o diâmetro do complexo proteico. Áreas secas ou regiões contendo gelo muito fino, definidas como mais finas que o diâmetro da partícula, devem ser evitadas durante a coleta de dados porque as proteínas nessas regiões provavelmente estão desnaturadas. Com base na experiência com esse protocolo, espera-se que aproximadamente 25%–50% das cryo-grids contenham gelo suficientemente fino adequado para coleta de dados SPA em múltiplos quadrados de grade. A espessura do gelo pode ser otimizada ajustando o tempo de absorção ou modificando o volume final do buffer na grade antes do mergulho por congelamento.
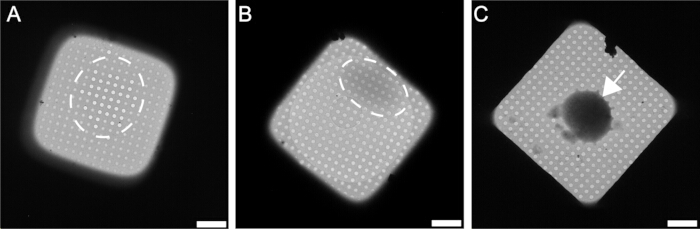
Figura 9: Exemplos de grades de afinidade Ni-NTA subótimas. Micrografias crio-TEM representativas de crio-redes de afinidade Ni-NTA subótimas. (A) Filme lipídico ausente do centro do quadrado da grade, indicado pelo círculo branco tracejado ao redor dos buracos vazios. (B) Quadrado de grade contendo gelo irregular, com gelo mais espesso próximo à região indicada pelo círculo branco tracejado. (C) Quadrado da grade contendo gelo muito espesso para imagem, indicado pela seta. Barras de escala: 10 μm. Por favor, clique aqui para ver uma versão maior desta figura.
Quando preparadas corretamente, as grades de afinidade contêm uma monocamada lipídica com uma camada predominantemente única de partículas adsorvidas no filme. Espera-se que a densidade de partículas supere a observada em grades não lipídicas preparadas usando concentrações amostrais semelhantes. A falha em transferir a monocamada lipídica para uma grade TEM resulta em crio-grades contendo furos vazios (Figura 10A) ou furos contendo gelo vítreo sem filme lipídico e exibindo poucas ou nenhuma partícula (Figura 10B, C).
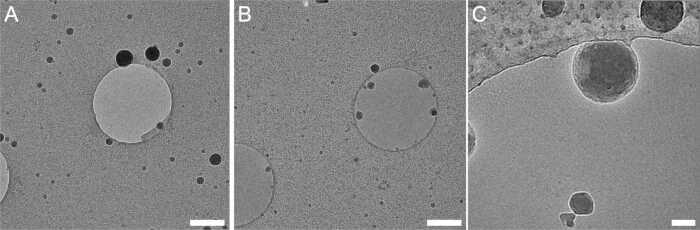
Figura 10: Exemplo de uma grade TEM sem uma monocamada lipídica. Imagens crio-TEM mostrando a falha na transferência da monocamada lipídica para a superfície da grade TEM. Nucleossomos humanos marcados com polihistidina são adsorvidos no filme de carbono. (A) Região do quadrado da grade contendo buracos vazios. (B) Diferentes regiões da mesma grade contendo buracos preenchidos com gelo vítreo, mas sem partículas visíveis ou filme lipídico. (C) Imagem de alta ampliação de um orifício sem filme lipídico, mas contendo gelo vítreo; partículas são visíveis no grosso filme de suporte de carbono. Barras de escala: 1 μm e 50 nm. Por favor, clique aqui para ver uma versão ampliada desta figura.
Arquivo Suplementar 1: Instruções para impressão 3D do suporte para pinças. Este arquivo suplementar contém instruções detalhadas para impressão 3D de suportes personalizados para pinças usados durante a hidratação da grade lipídica e incubação da amostras. Por favor, clique aqui para baixar este arquivo.
Arquivo suplementar 2: Arquivo STL para impressão 3D de suporte de pinça de bancada. Este arquivo suplementar contém o arquivo de estereolitografia (STL) necessário para impressão 3D da versão com suporte de pinça usada para incubar grades lipídicas hidratadas em uma câmara de umidade de bancada (Figura 3C, 3D). Por favor, clique aqui para baixar este arquivo.
Arquivo Suplementar 3: Arquivo STL para impressão 3D do suporte de pinça crio-pêlping. Este arquivo suplementar contém o arquivo de estereolitografia (STL) necessário para impressão 3D da versão do suporte de pinça usada para incubar grades lipídicas hidratadas em uma câmara de umidade crio-plunger. Por favor, clique aqui para baixar este arquivo.
Discussão
Este estudo apresenta um protocolo detalhado passo a passo para preparar grades de afinidade de monocamadas lipídicas Ni-NTA e destaca considerações práticas importantes e vantagens dessa abordagem para a determinação rotineira de estruturas crio-EM de complexos proteicos solúveis marcados com poli-istitidina. Várias etapas do protocolo são tecnicamente desafiadoras e suscetíveis a erros do usuário, especialmente para usuários de primeira viagem.
A modificação da monocamada lipídica pode ser concluída em aproximadamente 2 horas, e as grades lipídicas resultantes podem ser secas e armazenadas para uso posterior. Com mais 2 horas e acesso a um desentupidor criogênico, as crio-redes podem ser preparadas posteriormente. Assim, esse método é bem adequado para instalações multiusuário e laboratórios de crio-EM. Usando essa abordagem, estruturas de complexos proteicos solúveis variando de 97 a 470 kDa foram determinadas com resolução abaixo de 3 Å17. A ligação eficiente à monocamada lipídica Ni-NTA requer um componente marcado com poli-istitidina contendo um linker flexível. Embora algum grau de orientação preferida em relação à monocamada tenha sido observado para certas amostras, incluindo nucleossomos e glutamato sintase, essas orientações não limitaram a resolução nem introduziram artefatos de estiramento nas reconstruções finais. A interação entre a monocamada lipídica Ni-NTA e proteínas marcadas com poliistidina promove a captura eficiente de partículas na superfície da grade TEM. Consequentemente, a análise estrutural pode ser realizada usando amostras relativamente diluídas e pipelines padrão de processamento crio-EM, como RELION e cryoSPARC, sem etapas adicionais de preparação da amostra.
O manuseio cuidadoso das grades TEM e a preparação de misturas lipídicas são essenciais para resultados reprodutíveis. As monocamadas lipídicas são altamente sensíveis a contaminantes, incluindo detergentes residuais, óleos e poeira. A limpeza completa de todos os vidros é, portanto, crítica. É fortemente recomendado lavar com um surfactante aniônico, seguido de um enxágue extensivo com água ultrapura e secagem completa ao ar, antes do enxágue subsequente com clorofórmio e etanol imediatamente antes do uso.
O protocolo utiliza grades TEM gold-mesh porque elas não são reativas em uma ampla gama de condições de amostra e buffer. Para acomodar diferentes amostras, os tampões usados durante a fundição lipídica, reidratação da grade lipídica, incubação da amostra e lavagem antes do congelamento por mergulho podem ser modificados conforme necessário. Amostras de tampão contendo glicerol ou outros aditivos podem ser removidas durante a etapa de lavagem antes da vitrificação. Buffers contendo ditiotreitol (DTT) devem ser evitados porque a DTT reduz oníquel 32 e interfere na ligação entre proteínas marcadas com poli-histidina e a monocamada lipídica Ni-NTA. Detergentes também não são recomendados porque 0,05% de N-dodecil-β-D-maltosídeo (DDM) desintegrou a monocamada lipídica, e outros detergentes comumente usados em estudos estruturais membrana-proteína devem produzir efeitos semelhantes (Figura 8D–L). Se concentrações mais baixas de detergente ou detergentes de baixa concentração de micela crítica também prejudicam a integridade das camadas simples, ainda precisa ser determinado.
A parte mais tecnicamente exigente do protocolo é a fundição e transferência da monocamada lipídica para a grade TEM. Essa etapa é altamente sensível à temperatura, vibração e técnicas de manuseio. Resultados ótimos foram obtidos fundindo filmes lipídicos em temperatura ambiente (~22 °C) usando tampão pré-refrigerado. Perturbações mecânicas devem ser minimizadas porque as vibrações podem desestabilizar a monocamada. Assim, a placa de Petri deve permanecer estacionária após a fundição lipídica. Durante a transferência, a monocamada de óleo de rícino e lipídios pode migrar gradualmente pela superfície do tampão, aumentando a probabilidade de transferência de óleo de rícino em vez da monocamada lipídica (Figura 5C). O enchimento adequado da placa de Petri e o controle cuidadoso da orientação da grade são necessários para garantir uma transferência completa e uniforme da monocamada. A falha em transferir o filme lipídico para a superfície da grade TEM produz uma superfície hidrofóbica, fazendo com que o buffer forme-se gotas na superfície de carbono.
Neste estudo, apenas um desentupidor criogênico utilizando blot bilateral foi avaliado. No entanto, outros métodos de absorção, incluindo o manual ou unilateral, devem produzir resultados comparáveis, desde que o filme lipídico permaneça intacto. Ao adaptar esse protocolo, as grades lipídicas devem ser tratadas de forma semelhante às grades TEM padrão, com várias considerações importantes. A limpeza por plasma deve ser evitada, e as grades lipídicas devem permanecer continuamente hidratadas por pelo menos 15 minutos antes da aplicação da amostra. As amostras devem ser incubadas na grade lipídica por no mínimo 15 minutos para permitir a adsorção superficial, e a grade deve ser contato com pelo menos uma gota de buffer de diluição antes de ser absorvida para normalizar o volume final do buffer na superfície da grade. Manter a hidratação da monocamada lipídica Ni-NTA durante a incubação da amostra é fundamental, pois a evaporação pode aumentar as concentrações locais de sal e potencialmente alterar a estrutura da proteína ou a montagem complexa. Tempos de incubação mais longos (>30 min) podem aumentar a densidade de partículas na grade, embora a incubação prolongada deva ser equilibrada com a possível degradação da amostra. A mistura líquida 60:40 de propano e etano descrita neste protocolo é recomendada, mas não estritamente obrigatória. Proporções alternativas de propano-etano ou etano puro também podem ser usadas em conjunto com um desentupidor criogênico equipado com um sistema de aquecimento por copo de etano para manter o criogênio em estado líquido durante todo o experimento. Por fim, a distribuição das partículas é influenciada pela espessura do gelo. Em alguns casos, partículas podem ser excluídas de regiões contendo gelo especialmente fino, especialmente próximo ao centro dos quadrados da grade. Portanto, as condições de blot podem precisar ser otimizadas para cada dispositivo de vitrificação. No geral, as grades de afinidade de monocamadas lipídicas Ni-NTA fornecem uma estratégia robusta e acessível para a determinação estrutural de complexos proteicos solúveis marcados com polihistidina. Com uma implementação cuidadosa do procedimento passo a passo descrito aqui, esse método pode ser facilmente integrado aos fluxos de trabalho padrão de crio-EM.
Agradecimentos
Os autores agradecem a Caleb Fisher, Rob McGinty, Nicholas Wright, Blake Fordyce e Bryan Roth, da Universidade da Carolina do Norte em Chapel Hill, por fornecerem os tampões usados nesses experimentos. A Instalação Central de CrioEM da UNC-Chapel Hill e o Comitê de Defesa da Instalação Central da UNC são reconhecidos por seu apoio técnico e financeiro. A Instalação de Microscopia Crio-Eletrônica Biomolecular do Departamento de Química e Bioquímica da Universidade da Califórnia, Santa Cruz (RRID: SCR_021755), é reconhecida por sua assistência técnica. Esse trabalho foi apoiado pelo Instituto Nacional do Câncer dos Institutos Nacionais de Saúde sob o prêmio número P30CA016086 e pela R35GM150960 concedida a Richard W. Baker.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter Syringe, removable needle (RN), no needle included |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Class B clear glass threaded vial with attached closure, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box Round With Lid |
| 11.4 L plastic tub | Sterilite 12 qt dishpan, multi-purpose plastic wash tub | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter Syringe, removable needle (RN), includes 22s gauge, 52 mm curved beveled needle |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagent, absolute, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminum foil, 30.4 cm width | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionic powder detergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart deep glass baking dish | |
| Blot paper | Ted Pella | 47000-100 | Standard Vitrobot filter paper, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Organic castor oil with dropper, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-phosphocholine powder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade Tweezers, style 5, polished stainless steel |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand disposable flint glass tube with plain end, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand disposable borosilicate glass Pasteur pipet, 14.6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman qualitative filter paper, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX reusable petri dish with cover, 150 mm diameter, 15 mm height |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate task wipers, 1-ply |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nickel salt) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubber bulb, natural, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagent alcohol ≥89% (GC), contains 5% isopropyl alcohol and 5% methyl alcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillary reverse tweezers, Biology Grade, style 5ACN, stainless steel |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M wrapping film, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX reusable petri dish with cover, 60 mm diameter, 15 mm height |
| Syringe needle | Hamilton | 7803-01 | 27 gauge small-hub removable needle (RN), beveled, 75 mm length, 45° angle |
Referências
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve