A imunoblotagem de LC3 é um método amplamente utilizado para monitorar autofagia, mas exige uma otimização cuidadosa. Este protocolo descreve uma abordagem robusta para detecção e quantificação da LC3-II em células de câncer pancreático derivadas de KPC, incluindo considerações técnicas essenciais e um fluxo de trabalho padronizado para análise densitométrica utilizando o Fiji.
Artigo de método
Análise por Western Blot da Proteína Associada a Microtúbulos Leve 3 para Monitorar a Dinâmica Autofagossomal em Células de Câncer Pancreático Derivadas de Camundongos
Neste artigo
Resumo
Resumo
A autofagia desempenha um papel complexo no adenocarcinoma ductal pancreático (PDAC), contribuindo para a progressão tumoral, adaptação ao estresse e resistência à terapia. A avaliação precisa da dinâmica autofagossomal é, portanto, essencial para estudos de biologia do câncer. Entre os métodos disponíveis, a imunodetecção por blotting da proteína associada a microtúbulos, cadeia leve 3 (LC3), é amplamente utilizada para monitorar a dinâmica autofagossomal, distinguindo entre as formas citosólicas (LC3-I) e ligadas a lipídeos, associadas ao autofagossomo (LC3-II). No entanto, o baixo peso molecular da LC3 e a pequena diferença na mobilidade eletroforética entre essas isoformas apresentam desafios técnicos que exigem otimização cuidadosa. Apresenta-se aqui um protocolo reprodutível para análise semi-quantitativa dos níveis de LC3-II por Western blot em células murinas de câncer pancreático derivadas de KPC. O método incorpora condições otimizadas para lise celular, eletroforese, transferência proteica e detecção baseada em anticorpos, garantindo separação e detecção confiáveis das isoformas de LC3. Além disso, é fornecido um fluxo de trabalho padronizado para análise densitométrica das bandas de LC3-II utilizando o Fiji (ImageJ). A sensibilidade do método é demonstrada pela detecção do aumento nos níveis de LC3-II em condições de indução da autofagia (tratamento com gemcitabina) e de fluxo autofágico prejudicado (silenciamento de VMP1). Parâmetros técnicos críticos que influenciam a interpretação dos dados, incluindo a composição do tampão de lise e a especificidade do anticorpo, também são examinados, juntamente com armadilhas experimentais comuns. Embora a imunodetecção de LC3 isoladamente seja insuficiente para definir completamente o fluxo autofágico, quando combinada com ensaios complementares, fornece uma abordagem robusta e acessível para monitorar a atividade autofágica. O protocolo pode ser adaptado a outros contextos experimentais, facilitando estudos mecanicistas da autofagia em modelos de câncer.
Introdução
A macroautofagia (doravante referida como autofagia) é uma via degradativa regulada pela qual as células degradam material citoplasmático, incluindo proteínas e organelas disfuncionais. Uma característica marcante da autofagia é a formação de uma estrutura de dupla membrana conhecida como autofagossomo, que sequestra o conteúdo celular e posteriormente o entrega aos lisossomos para degradação1,2,3. Em células normais, a autofagia contribui para a renovação controlada de proteínas e organelas, limitando assim o estresse oxidativo e reduzindo o risco de desenvolvimento tumoral. Em células cancerosas, no entanto, esse processo pode ser cooptado para apoiar a sobrevivência em condições de alta demanda metabólica, privação de nutrientes e hipóxia. Ao facilitar a adaptação a um microambiente hostil, a autofagia também contribui para a resistência à quimioterapia, em parte ao atenuar os danos celulares induzidos pelo tratamento4,5.
O câncer de pâncreas é a terceira principal causa de mortalidade relacionada ao câncer nos Estados Unidos. Aproximadamente 90% dos cânceres pancreáticos são classificados como adenocarcinoma ductal pancreático (ADP). Diferentemente de várias outras neoplasias, para as quais a detecção precoce e os avanços terapêuticos melhoraram a sobrevida dos pacientes, o ADP é diagnosticado em estágio avançado em mais de 80% dos casos. Essa apresentação em estágio tardio, combinada à biologia tumoral agressiva e à acentuada resistência à terapia, resulta em uma taxa de sobrevida geral de cinco anos de aproximadamente 11%6.
O modelo de camundongo KPC, baseado na ativação específica do pâncreas do Kras oncogênico e na deleção condicional do Trp53 mediada pela recombinase Cre, é um dos modelos de adenocarcinoma ductal pancreático geneticamente modificados mais amplamente utilizados. Esses camundongos desenvolvem espontaneamente tumores que se assemelham estreitamente à doença humana, progredindo de neoplasia intraepitelial pancreática (PanIN) para carcinoma invasivo. Importante, este modelo reproduz características-chave do câncer pancreático, incluindo um estroma desmoplásico denso e um microambiente tumoral imunossupressor. Células tumorais isoladas de camundongos KPC (células derivadas de KPC) fornecem um sistema in vitro complementar que mantém muitas das características genéticas e fenotípicas dos tumores originais, permitindo estudos mecanicistas e avaliação controlada das respostas terapêuticas7,8.
A VMP1 é uma proteína essencial relacionada à autofagia que inicia o processo por meio de sua interação com a Beclin-1 e recrutamento do complexo PI3KC39,10. Além da iniciação, a VMP1 participa de múltiplas etapas da autofagia, incluindo a formação do autofagossomo10, o fechamento11 e processos seletivos como a mitofagia12 e a zimofagia13. A VMP1 permanece envolvida durante todo o fluxo autofágico e pode exercer funções adicionais como uma scramblase de fosfolipídios14. No pâncreas, a expressão da VMP1 é normalmente baixa, mas é fortemente induzida em condições de estresse, incluindo pancreatite e transformação oncogênica, nas quais promove a autofagia downstream do sinal proveniente do KRAS mutante15,16. A VMP1 está superexpressa no câncer de pâncreas17, e modelos experimentais em camundongos demonstraram que a autofagia dependente de VMP1 coopera com o KRAS para promover a iniciação tumoral e a formação de PanIN18. Além disso, a VMP1 contribui para a resistência à quimioterapia, pois sua upregulação por agentes como a gemcitabina19 estimula a autofagia19 e sustenta a sobrevivência das células tumorais17, destacando seu papel pró-tumorigênico15.
Os autofagossomos são caracterizados pela presença da proteína relacionada à autofagia, cadeia leve do microtúbulo associada à proteína 3 (LC3)20. Em condições basais, a LC3 está predominantemente presente em uma forma solúvel (LC3-I) distribuída por todo o citoplasma e núcleo. Após a ativação da autofagia, a LC3 sofre lipidificação por meio da conjugação com fosfatidiletanolamina, gerando a forma associada à membrana LC3-II1,21. Embora a LC3-II tenha um peso molecular mais alto do que a LC3-I devido a essa modificação, ela migra mais rapidamente durante a eletroforese em gel de poliacrilamida contendo dodecil sulfato de sódio (SDS-PAGE), provavelmente por causa de sua maior hidrofobicidade. Consequentemente, a conversão de LC3-I em LC3-II reflete lipidificação e não processamento proteolítico, sendo a LC3-I geralmente detectada em aproximadamente 16 kDa e a LC3-II em aproximadamente 14 kDa. Como os níveis de LC3-II correlacionam-se com a abundância de autofagossomos, a imunodetecção de LC3 é amplamente utilizada para monitorar a atividade autofágica22. A avaliação precisa da dinâmica da LC3 é, portanto, essencial para interpretar achados experimentais relacionados à autofagia.
Este estudo detalha a padronização e a otimização técnica de um protocolo clássico de imunoblot para LC3 em uma linhagem celular de câncer pancreático derivada de KPC. A otimização é particularmente importante porque a LC3 é uma proteína de baixo peso molecular, as formas LC3-I e LC3-II diferem em apenas cerca de 2 kDa na mobilidade eletroforética, e a LC3-II é uma espécie lipidada21,22. Consequentemente, pequenas variações procedimentais podem comprometer a detecção da LC3 e levar a resultados subótimos. Além disso, a origem das espécies das amostras representa um fator importante para se alcançar imunorreatividade ideal. O protocolo otimizado é suficientemente sensível para detectar níveis aumentados de LC3-II após tratamento com o agente quimioterápico gemcitabina e após silenciamento de VMP1, condições conhecidas por estimular a autofagia e prejudicar o fluxo autofágico, respectivamente. Por fim, dois problemas técnicos potenciais são destacados para demonstrar seu impacto na qualidade dos dados e na interpretação dos resultados. Uma visão geral deste fluxo experimental é ilustrada na Figura 1.
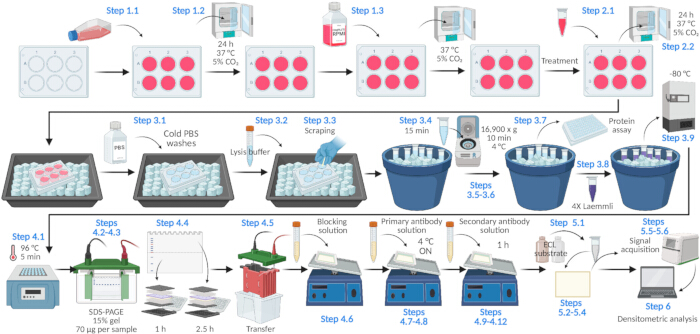
Figura 1: Representação esquemática do protocolo de imunoblotagem de LC3 em células derivadas de KPC. Visão geral esquemática do protocolo utilizado para detectar e quantificar os níveis de LC3-II por imunoblotagem. Células de câncer pancreático derivadas de KPC são cultivadas e submetidas a tratamentos experimentais, seguidos por lise celular, quantificação proteica, eletroforese em gel de poliacrilamida com dodecil sulfato de sódio (SDS–PAGE), transferência para membrana, detecção por anticorpos da proteína LC3, aquisição do sinal quimioluminescente e análise densitométrica das bandas de LC3-II normalizadas a um controle de carga. O fluxo de trabalho destaca as principais etapas do procedimento e os pontos críticos necessários para uma avaliação confiável da dinâmica da LC3. Criado com BioRender.com. Clique aqui para visualizar uma versão maior desta figura.
Protocolo
Todos os procedimentos envolvendo animais foram realizados de acordo com as diretrizes institucionais e aprovados pelo Comitê Institucional de Cuidado e Uso de Animais (IACUC) do Hospital Geral de Massachusetts sob o protocolo nº 2019N000111. A linhagem celular de câncer pancreático derivada de KPC utilizada neste estudo foi previamente estabelecida no laboratório Mostoslavsky sob este protocolo aprovado. A lista de reagentes, produtos químicos e informações sobre equipamentos está fornecida na Tabela de Materiais.
1. Preparação das células
- Seme células tumorais pancreáticas derivadas de KrasG12D; Trp53f/+; p48-Cre (aqui referidas como KPC) em uma placa de 6 poços contendo meio Roswell Park Memorial Institute (RPMI 1640) suplementado com 10% de soro bovino fetal, 100 U/mL de penicilina e 100 µg/mL de estreptomicina. Ajuste a densidade de semeadura para obter uma confluência de 70%–90% no dia da lise.
NOTA: Uma densidade de semeadura de 3,5 × 10⁵ células por poço resultou em cerca de 80% de confluência após 72 h. Como o crescimento pode variar entre laboratórios e modelos KPC, determine a densidade de semeadura ideal empiricamente antes de realizar o experimento.
NOTA: Para gerar linhagens celulares com silenciamento estável de VMP1, produza partículas lentivirais por meio da co-transfecção de células HEK293T com plasmídeos de empacotamento e o vetor lentiviral respectivo utilizando polietilenimina (PEI). Recolha os sobrenadantes lentivirais 72 h após a transfeção, centrifugue a 300 × g durante 10 min a 4 °C para remover detritos celulares e filtre através de um filtro de seringa de 0,45 µm. Submeta as células KPC a uma única rodada de transdução com os sobrenadantes virais coletados. Selecione células transduzidas de forma estável mediante tratamento com 2,5 µg/mL de puromicina (diluição 1:4.000 a partir de uma solução estoque de 10 mg/mL) por 72 h. - Cultive as células a 37 °C em incubadora umidificada com 5% de dióxido de carbono (CO₂).
- Substitua o meio por meio fresco e continue a incubação nas mesmas condições.
2. Tratamento com gemcitabina 20 µM
- Prepare uma solução de gemcitabina a 10 mM em meio RPMI um dia antes da lise. Trate cada poço com 4 µL da solução a 10 mM para obter uma concentração final de 20 µM.
- Incube as células por 24 h a 37 °C em um incubador umidificado com 5% de dióxido de carbono (CO₂).
3. Lisados celulares
- Coloque a placa sobre gelo e lave três vezes com solução salina tamponada com fosfato fria (PBS; 137 mM NaCl, 2,7 mM KCl, 8 mM Na₂HPO₄ e 2 mM KH₂PO₄).
- Adicione 80 µL de tampão de lise (50 mM Tris-HCl, pH 8,0, 150 mM NaCl, 1% Triton X-100 e 0,1% SDS) suplementado com inibidores de protease.
NOTA: Se forem observados diferentes níveis de confluência entre os poços, ajuste o volume do tampão de lise para obter concentrações proteicas comparáveis. Como orientação, utilize ~10 µL de tampão de lise por 10% de confluência (por exemplo, 70 µL para 70% de confluência e 90 µL para 90% de confluência). - Usando a extremidade larga (proximal) da ponteira de pipeta P200, raspe completamente toda a superfície de cada poço para destacar e coletar as células no tampão de lise.
- Recolha o lisado em um tubo de microcentrífuga e mantenha-o em gelo por 15 min.
- Centrifugue as amostras a 16.900 × g a 4 °C por 10 min.
- Transfira o sobrenadante para um tubo de microcentrífuga limpo.
- Retire uma alíquota para quantificação proteica e mantenha-a em gelo até a análise.
NOTA: Para quantificação proteica, dilua 2,5 µL do lisado em 7,5 µL de tampão de lise e misture com 200 µL do reagente de ácido bicinconínico. Outros métodos de quantificação proteica também podem ser utilizados. - Adicione tampão amostra 4× Laemmli (250 mM Tris-HCl, pH 6,8, 8% SDS, 40% glicerol, 0,04% azul de bromofenol e 20% β-mercaptoetanol) aos lisados e misture bem. Para 77,5 µL de lisado, adicione 25,8 µL de tampão amostra Laemmli.
- Armazene as amostras a −80 °C.
NOTA: O protocolo pode ser interrompido nesta etapa. As amostras podem ser armazenadas a −80 °C por até duas semanas antes da SDS–PAGE.
4. Eletroforese em gel de poliacrilamida com dodecil sulfato de sódio (SDS-PAGE) e Western blot
- Aqueça as amostras a 96 °C por 5 min.
- Carregue 70 µg de cada amostra em um gel de SDS–PAGE a 15% (espessura de 1,5 mm) e realize a eletroforese a 90 V até que a frente do corante entre no gel resolvedor. Utilize um gel resolvedor de poliacrilamida a 15% preparado em laboratório, contendo acrilamida/bis-acrilamida a 15%, Tris-HCl 375 mM (pH 8,8) e 0,1% de SDS.
- Aumente a voltagem para 120 V e continue a eletroforese até que a frente do corante alcance ou saia pela base do gel. Interrompa a corrida antes que o marcador de 10 kDa da escala de peso molecular saia do gel.
- Corte o gel em aproximadamente 25 kDa para separar as porções superior e inferior.
- Transfira as proteínas para uma membrana de PVDF de 0,2 µm previamente ativada com metanol, em tampão de transferência (25 mM de base de Tris, 192 mM de glicina e 20% [v/v] de metanol), a 200 mA por 1 h para a porção inferior do gel (<25 kDa) e por 2,5 h para a porção superior do gel (>25 kDa).
- Bloqueie a membrana por 1 h no tampão de bloqueio com agitação suave.
- Prepare uma solução de anticorpo primário anti-LC3 na diluição de 1:1.000 no tampão de bloqueio contendo 0,1% de Tween-20.
NOTA: O anticorpo primário anti-LC3 foi utilizado na diluição de 1:1.000, e o anticorpo de controle de carga anti-actina foi utilizado na diluição de 1:4.000. - Incube a membrana durante a noite a 4 °C com o anticorpo primário anti-LC3 sob agitação suave.
- Lave a membrana quatro vezes por 5 min com TBS-T (0,1% de Tween-20 em TBS; Tris-HCl 20 mM, pH 7,6, e NaCl 150 mM).
- Prepare uma solução de anticorpo secundário conjugado à peroxidase do rábano a 1:2.000 no tampão de bloqueio.
- Incube a membrana com o anticorpo secundário por 1 h à temperatura ambiente sob agitação suave.
- Lave a membrana quatro vezes por 5 min com TBS-T.
- Lave a membrana duas vezes com TBS.
5. Detecção quimioluminescente
- Prepare o substrato quimioluminescente melhorado de dois componentes misturando volumes iguais do Reagente A (solução de luminol/realçador) e do Reagente B (solução de peróxido) imediatamente antes do uso.
- Remova suavemente o excesso de líquido da membrana usando um lenço de laboratório.
- Coloque a membrana em uma caixa opaca.
- Adicione a solução quimioluminescente melhorada à membrana, feche a caixa e incube por 5 min.
- Deixe escorrer o excesso de solução da membrana e posicione a membrana no sistema de imagem para detecção do sinal.
- Adquira as imagens de acordo com as instruções do fabricante para o sistema de imagem.
6. Análise densitométrica usando Fiji
- Arraste e solte o arquivo de imagem na janela do Fiji para abri-lo.
- Converta a imagem para escala de cinza de 8 bits (Image → Type → 8-bit).
- Se necessário, rotacione a imagem para alinhar as bandas horizontalmente (Image → Transform → Rotate).
- Habilite a Pré-visualização e defina a grade com um número apropriado de linhas (por exemplo, 20).
- Ajuste o ângulo de rotação até que as bandas estejam adequadamente alinhadas.
- Use a ferramenta de seleção retangular para definir uma região de interesse (ROI) ao redor da primeira faixa, incluindo apenas a banda correspondente à LC3-II.
NOTA: A seleção não deve ter largura superior ao dobro de sua altura. Utilize as mesmas dimensões de ROI para todas as bandas incluídas na análise. - Selecione Analyze → Gels → Select First Lane.
- Mova a mesma ROI para a próxima faixa e posicione-a ao redor da banda correspondente.
- Selecione Analyze → Gels → Select Next Lane.
- Repita os passos 6.6 e 6.7 até que a última faixa seja selecionada.
- Gere os perfis de intensidade (Analyze → Gels → Plot Lanes).
- Use a ferramenta de linha reta para definir a linha de base de cada pico e quantifique a intensidade da banda usando a ferramenta de pipeta.
- Normalize os valores em relação a um controle de carga.
Resultados
Este protocolo descreve o Western blot para monitorar a dinâmica da LC3 em uma linhagem celular de câncer pancreático derivada de KPC sob diferentes condições experimentais. O protocolo gera imagens quimioluminescentes da LC3 e de um controle de carga. Neste estudo, a actina foi utilizada como controle de carga.
Duas aplicações representativas do protocolo são mostradas. Primeiro, células KPC controle foram comparadas com células KPC tratadas com gemcitabina. A gemcitabina é um agente quimioterápico previamente relatado por induzir autofagia em células de câncer pancreático19. Figura 2A mostra um imunoblotagem representativa de LC3, com actina utilizada como controle de carga. A quantificação obtida por análise densitométrica no Fiji é apresentada na Figura 2B. Os níveis de LC3-II foram normalizados em relação à actina. Um aumento significativo de 59% nos níveis de LC3-II foi observado nas células tratadas com gemcitabina, consistente com a indução de autofagia.
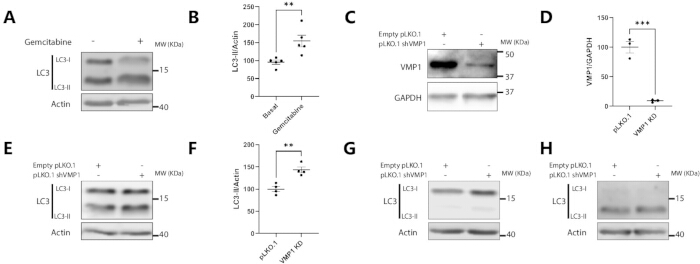
Figura 2: Análise por imunoblot de LC3 em células de câncer pancreático derivadas de KPC: (A-B) efeitos da gemcitabina, (C-F) redução da expressão de VMP1 e (G-H) condições técnicas subótimas. (A–B) Níveis de LC3 sob condições basais e tratadas com gemcitabina. Células de câncer pancreático derivadas de KPC foram tratadas com gemcitabina 20 µM por 24 h ou mantidas sem tratamento. Os lisados celulares foram imunomarcados para LC3 e actina como controle de carga. (A) São mostradas imagens representativas de imunoblot de LC3 e actina. (B) O gráfico mostra a quantificação da densitometria da banda LC3-II normalizada pela actina. Os dados são apresentados como média ± erro padrão da média (SEM). **p < 0,01 pelo teste t de Student não pareado. n = 4 por condição. (C–D) Validação do silenciamento de VMP1 mediado por shRNA. Células que expressam constitutivamente um plasmídeo pLKO.1 vazio (pLKO.1) ou um plasmídeo pLKO.1 que codifica um shRNA direcionado à sequência de VMP1 murino (VMP1 KD) foram lisadas e analisadas. (C) Imagem representativa de blot ocidental de VMP1, com GAPDH como controle de carga. (D) Quantificação dos níveis de expressão de VMP1 mostrando uma redução de aproximadamente 90% nas células VMP1 KD. Os dados são apresentados como média ± SEM. ***p < 0,001 pelo teste t de Student não pareado. n=3 por condição. (E–F) Efeito da redução de VMP1 no acúmulo de LC3-II. Células de câncer pancreático derivadas de KPC que expressam constitutivamente o plasmídeo pLKO.1 vazio ou plasmídeos shVMP1 foram lisadas e imunomarcadas para LC3 e actina como controle de carga. (E) São mostradas imagens representativas de imunoblot de LC3 e actina. (F) O gráfico mostra a quantificação da densitometria da banda LC3-II normalizada pela actina. Os dados são apresentados como média ± SEM. **p < 0,01 pelo teste t de Student não pareado. n = 5 por condição. (G-H). Experimentos subótimos. Células de câncer pancreático derivadas de KPC que expressam constitutivamente um plasmídeo pLKO.1 vazio ou um plasmídeo shVMP1 foram lisadas e imunomarcadas para LC3 e actina como controle de carga. (G) Imagens representativas de imunoblot de LC3 e actina obtidas a partir de lisados preparados usando um tampão de lise com baixa concentração de detergente. (H) Imagens representativas de imunoblot de LC3 e actina, nas quais LC3 foi detectado usando um anticorpo primário que não garante reatividade com a proteína murina. Clique aqui para visualizar uma versão ampliada desta figura.
Um segundo experimento foi realizado utilizando células de câncer pancreático derivadas de KPC que expressavam constitutivamente um plasmídeo pLKO.1 vazio (pLKO.1) ou um plasmídeo pLKO.1 codificando um shRNA direcionado à sequência de VMP1 murino (VMP1 KD). Primeiramente, foi verificada com sucesso a redução da expressão de VMP1. Figura 2C mostra um imunoblot representativo de VMP1 com GAPDH como controle de carga, e Figura 2D quantifica uma redução de 90% na expressão de VMP1 nas células VMP1 KD. Em seguida, os níveis de LC3-II foram avaliados nessas células. Um aumento no acúmulo de LC3-II era esperado, pois VMP1 é necessário para a formação de autofagossomos. Embora a redução de VMP1 não impeça a conversão de LC3-I em LC3-II, ela prejudica a formação de autofagossomos e a subsequente degradação de carga, resultando no acúmulo de LC3-II11,15. Imunoblots representativos de LC3 e actina são mostrados na Figura 2E, e a quantificação da razão LC3-II/actina é apresentada na Figura 2F. Um aumento significativo de 43% nos níveis de LC3-II foi observado nas células VMP1 KD em comparação com os controles pLKO.1.
Esses resultados demonstram que o protocolo permite a detecção e quantificação confiáveis dos níveis de LC3-II em um modelo de células de câncer pancreático derivado de KPC. No entanto, pequenas variações no protocolo podem levar a resultados subótimos.
Como a LC3-II é a forma lipídica da LC3, a extração eficiente exige um tampão de lise contendo uma concentração adequada de detergentes. Figura 2G mostra imagens representativas de imunoblotagem de LC3 e actina obtidas a partir do mesmo modelo experimental descrito na Figura 2E–F (pLKO.1 versus KD de VMP1), mas utilizando um tampão de lise com baixa concentração de detergente (50 mM Tris-HCl, pH 7,4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA e 0,1% Triton X-100). Embora o sinal da actina tenha permanecido aceitável, o sinal de LC3 foi subótimo. Apenas a banda LC3-I foi claramente visível, enquanto a banda LC3-II foi mal detectável e significativamente reduzida em relação à LC3-I.
Outra variável importante no imunoblot de LC3 é a seleção do anticorpo primário. Os imunoblot mostrados nas Figuras 2A, 2B, 2E, 2F, e 2G foram gerados utilizando um anticorpo primário que proporcionou detecção robusta de LC3 neste sistema experimental. Em contraste, a Figura 2H mostra um imunoblot de LC3 gerado com um anticorpo primário diferente, que resultou em desempenho subótimo. Nessas condições, LC3-I foi detectável apenas de forma marginal, e o sinal de LC3-II foi substancialmente mais fraco do que aquele obtido com o anticorpo utilizado nos experimentos anteriores.
Discussão
Este artigo descreve a otimização técnica e a padronização de um protocolo clássico de imunoblotagem de LC3 em células de câncer pancreático derivadas de KPC. Dado o papel cada vez mais reconhecido da autofagia e das proteínas relacionadas à autofagia no desenvolvimento e na progressão do câncer pancreático23, este fluxo de trabalho padronizado oferece uma abordagem confiável para monitorar a dinâmica da LC3. O protocolo pode ser aplicado para avaliar o compartimento autofagossomal sob diversas condições experimentais, incluindo quimioterapia, estresse oxidativo, hipóxia, estresse do retículo endoplasmático e manipulações genéticas, como superexpressão gênica, silenciamento, deleção ou mutação. Além da avaliação da dinâmica da LC3, o protocolo pode ser adaptado para investigar interações diretas ou indiretas entre a LC3 e proteínas de interesse. Por exemplo, pode-se realizar a imunoprecipitação de uma proteína alvo seguida da detecção de LC3 no eluato utilizando este fluxo de trabalho. Além disso, a imunoblotagem de LC3 pode ser aplicada à análise de vesículas extracelulares no contexto da autofagia secretora, um campo emergente com relevância crescente no adenocarcinoma ductal pancreático24,25.
Conforme ilustrado nas Figuras 2G–H, várias etapas críticas devem ser cuidadosamente controladas, pois pequenas variações podem resultar em resultados subótimos. Uma das considerações mais importantes é a composição do tampão de lise. A extração eficiente da LC3-II exige um tampão com uma concentração relativamente alta de detergente, como o tampão RIPA ou uma formulação semelhante. Tampões com menor teor de detergente, comumente utilizados em protocolos de imunoprecipitação para preservar interações proteína-proteína, podem não solubilizar adequadamente a LC3-II. Nessas condições, a LC3-I pode permanecer detectável, enquanto a LC3-II torna-se difícil ou impossível de detectar, comprometendo a interpretação dos dados.
Outro fator crítico é a seleção de um anticorpo primário validado para o sistema experimental em estudo. A avaliação técnica apresentada aqui foi limitada à comparação de dois anticorpos do mesmo fabricante e não constitui uma validação abrangente entre múltiplos clones ou fornecedores. No entanto, os resultados ilustram como o desempenho do anticorpo pode variar substancialmente entre sistemas experimentais. Embora conclusões definitivas sobre especificidade de espécie não possam ser extraídas dessa comparação limitada, o desempenho subótimo do anticorpo alternativo avaliado neste modelo destaca a importância da validação empírica em vez da dependência de reatividade cruzada prevista. De acordo com a ficha técnica do fabricante, este anticorpo é validado para amostras humanas, enquanto a reatividade em camundongo é prevista com base na homologia de sequência. Embora uma detecção fraca de LC3 tenha sido observada em células de camundongo (Figura 2H), o mesmo anticorpo anteriormente falhou em gerar sinais detectáveis em tecido pancreático de rato e em células AR42J derivadas de rato (dados não mostrados). Essas observações enfatizam a importância de validar o desempenho do anticorpo dentro do modelo biológico específico que está sendo investigado.
Parâmetros adicionais que exigem otimização incluem a composição do gel e as condições de eletroforese. Um gel resolvedor a 15% proporciona separação adequada entre LC3-I e LC3-II quando a eletroforese é interrompida entre o momento em que a frente do corante atinge a base do gel e antes de o marcador de peso molecular de 10 kDa migrar para fora do gel. Em contraste, géis de porcentagem mais baixa, como géis a 7%, não oferecem resolução suficiente. As condições de transferência são igualmente importantes porque LC3 é uma proteína de baixo peso molecular. Tempo ou corrente de transferência insuficientes podem reduzir a eficiência da transferência, enquanto tempo ou corrente excessivos podem resultar na perda da proteína através da membrana. O uso de membranas com tamanhos de poro maiores pode aumentar ainda mais esse risco.
Várias modificações ao protocolo podem ser aceitáveis. Espátulas celulares comerciais podem ser usadas no lugar das ponteiras de pipeta P200 durante a coleta celular. As amostras podem ser processadas imediatamente após a lise, em vez de congeladas, desde que sejam mantidas sob refrigeração. Géis de poliacrilamida comercialmente disponíveis, incluindo géis gradientes de 4–20%, também podem ser utilizados. Reagentes alternativos para bloqueio, como leite de grau laboratorial ou BSA a 1% em TBS-T, podem substituir a solução de bloqueio descrita aqui. Da mesma forma, buffers alternativos para incubação de anticorpos podem ser usados, desde que o azida sódio seja excluído de soluções contendo anticorpos secundários conjugados à peroxidase do rabanete, pois ele inibe a atividade da peroxidase.
O protocolo também pode ser adaptado a outros sistemas experimentais, incluindo linhagens celulares derivadas de diferentes tecidos e lisados de tecidos. No entanto, como o fluxo de trabalho foi otimizado principalmente em células de câncer pancreático derivadas de KPC, sua aplicabilidade mais ampla deve ser considerada com cuidado. Diferenças no tipo celular, níveis basais de autofagia, perfis de expressão proteica e composição da amostra podem afetar significativamente a detecção de LC3. Consequentemente, a adaptação a sistemas alternativos provavelmente exigirá otimização adicional, e a compatibilidade do anticorpo com a espécie em estudo deve sempre ser verificada.
Uma limitação fundamental do imunoblotting de LC3 também deve ser enfatizada. O acúmulo de LC3-II isoladamente é insuficiente para determinar definitivamente o estado da autofagia ou distinguir entre indução aumentada da autofagia e eliminação prejudicada do autofagossomo. Embora a LC3-II seja gerada durante a indução da autofagia, ela também é degradada nos lisossomos como parte do processo autofágico. Consequentemente, tanto a autofagia potencializada quanto o fluxo autofágico prejudicado a jusante da conjugação da LC3 podem levar ao acúmulo de LC3-II26.
Essa limitação é ilustrada pelos experimentos mostrados na Figura 2A, B e Figura 2E, F, nos quais níveis elevados de LC3-II foram observados em condições biologicamente distintas. Em células tratadas com gemcitabina, o acúmulo de LC3-II reflete a indução ativa da autofagia associada ao aumento da expressão de VMP1 e à conversão aprimorada de LC3-I em LC3-II11,19. Em contraste, o silenciamento de VMP1 prejudica a maturação e a eliminação do autofagossomo. Nessas condições, a lipidificação de LC3 permanece intacta, mas a degradação de LC3-II é comprometida devido ao fluxo autofágico defeituoso, resultando no acúmulo de LC3-II apesar do progresso autofágico prejudicado22. Como esses estados biológicos distintos não podem ser diferenciados apenas por meio de imunoblotagem de LC3, abordagens complementares, como análise de SQSTM1/p62 e ensaios de inibição lisossômica, são necessárias para uma avaliação rigorosa do fluxo autofágico26.
Quando combinada com essas abordagens complementares, a imunodetecção por blotting de LC3 permanece um dos métodos mais acessíveis e informativos para monitorar a autofagia. Técnicas alternativas também apresentam limitações. A quantificação de pontos de LC3 por imunofluorescência27 não consegue distinguir de forma confiável o aumento da autofagia de um fluxo prejudicado e pode ser difícil de padronizar e automatizar. No entanto, a imunofluorescência exige menos material biológico e, portanto, pode ser vantajosa para amostras clínicas limitadas, como biópsias humanas. Além disso, a imunodetecção por blotting de LC3 não requer sistemas de repórter baseados em transfeção, evitando assim artefatos associados à superexpressão proteica. Por fim, a citometria de fluxo convencional não possui resolução suficiente para distinguir LC3-I de LC3-II, limitando sua utilidade na avaliação da atividade autofágica.
Divulgações
Os autores declaram não haver conflitos de interesse.
Agradecimentos
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Scanner C-DiGit Blot | LI-COR BioScience | 3600 | Utilizado para detecção quimioluminescente na Etapa 5.6 |
| Solução salina tamponada com fosfato 10x (PBS) | Corning | 46-013-CM | Utilizada para preparar PBS estéril 1x para lavagem das células antes da passagem na Etapa 1.1. |
| 2-Mercaptoetanol (β-mercaptoetanol) | Sigma-Aldrich (Merck) | M3148 | Utilizado para preparar tampão amostral Laemmli 4× para preparação de amostras de SDS-PAGE na Etapa 3.8. |
| Agitador 3D | DLAB | SK-D1807-E | Utilizado para incubação das membranas em soluções de bloqueio, anticorpos primários e secundários, bem como durante as etapas de lavagem (Etapas 4.6, 4.8, 4.9, 4.11, 4.12 e 4.13). |
| Placa de cultura celular de 6 poços | SORFA | SCP-11-006 | Utilizada para semear as células na Etapa 1.1. |
| Acrilamida | Sigma-Aldrich (Merck) | A8887 | Utilizada para preparar o gel de SDS-PAGE 15% necessário para as Etapas 4.2–4.5. |
| Anticorpo anti-Gliceraldeído-3-fosfato desidrogenase, monoclonal de camundongo, clone 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Reatividade: humano, felino, suíno, camundongo, coelho, peixe, canino, rato. Utilizado como controle de carga para avaliar a eficiência de silenciamento (Figuras 2C e 2D). |
| Anticorpo secundário anti-IgG de camundongo conjugado à HRP | Cell Signaling Technology | 7076 | RRID: AB_330924. Utilizado para preparar a solução de anticorpo secundário na Etapa 4.10. |
| Anticorpo secundário anti-IgG de coelho conjugado à HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. Utilizado para preparar a solução de anticorpo secundário na Etapa 4.10. |
| Anticorpo anti-β-Actina (ACTB), monoclonal de camundongo, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Reatividade: ovino, carpa, felino, galinha, rato, camundongo, Hirudo medicinalis, coelho, canino, suíno, humano, bovino, porquinho-da-índia. Utilizado como controle de carga nas Figuras 2A, 2B, 2E, 2F, 2G e 2H. |
| Azul de bromofenol | Sigma-Aldrich (Merck) | B0126 | Utilizado para preparar tampão amostral Laemmli 4× para preparação de amostras de SDS-PAGE na Etapa 3.8. |
| Ácido etilenodiaminotetraacético (EDTA) | Sigma-Aldrich (Merck) | E9884 | Utilizado para preparar o tampão de lise com baixo detergente (Figuras 2G e 2H). |
| Soro bovino fetal | NATOCOR | Lintc-634 | Utilizado para preparar o meio completo para cultivo celular (Etapas 1 e 2). |
| Fiji | Software de código aberto | N/A | Software para análise de imagens |
| Glicerol | Sigma-Aldrich (Merck) | G5516 | Utilizado para preparar tampão amostral Laemmli 4× para preparação de amostras de SDS-PAGE na Etapa 3.8. |
| Glicina | Sigma-Aldrich (Merck) | G7126 | Utilizada para preparar o tampão de transferência para a Etapa 4.5. |
| Membrana PVDF Immun-Blot, rolo, 0,2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Utilizada para transferência na Etapa 4.5. |
| Tampão de bloqueio Intercept (TBS) | LI-COR BioScience | 927-60001 | Utilizado para bloqueio na Etapa 4.6 e para preparar as soluções de anticorpos primário e secundário nas Etapas 4.7 e 4.10. |
| Anticorpo monoclonal de coelho LC3 A/B (D3U4C) | Cell Signaling Technology | 12741 | RRID: AB_2617131 Reatividade: humano, camundongo, coelho. Utilizado para preparar a solução de anticorpo primário na Etapa 4.7. |
| Anticorpo monoclonal de coelho LC3B (D11) | Cell Signaling Technology | 3868S | RRID: AB_2137707 Reatividade: Humano. Utilizado como anticorpo primário anti-LC3 na Figura 2H. |
| Metanol | Anedra | 6197 | Utilizado para ativar a membrana PVDF e preparar o tampão de transferência na Etapa 4.5. |
| Unidade de filtro de seringa Millex-HV, PVDF 0,45 μm | Merck Millipore | SLHV033RS | Utilizada para filtrar o meio contendo lentivírus (Etapa 1.1). |
| Banho-maria seco digital mini | Labnet International, Inc. | D 5060075 | Utilizado para aquecer as amostras na Etapa 4.1. |
| Sistema de eletroforese Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | Utilizado para SDS-PAGE e transferência nas Etapas 4.2, 4.3 e 4.5. |
| shRNA MISSION direcionada ao Vmp1 de camundongo (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Utilizada para gerar linhagens celulares com silenciamento estável de VMP1 (Etapa 1.1). |
| N,N'-Metilenobisacrilamida (Bis-acrilamida) | Sigma-Aldrich (Merck) | M7279 | Utilizada para preparar o gel de SDS-PAGE 15% necessário para as Etapas 4.2–4.5. |
| Nabigem 1g Gemcitabina | Microsules Argentina | M3060584-3 | Utilizada para tratamento com gemcitabina na Etapa 2. |
| Solução Pen-Estrep | Sartorius | 03-031-1B | Utilizada para preparar o meio completo para cultivo celular (Etapas 1 e 2). |
| Kit Pierce BCA para ensaio de proteína | Thermo Fisher Scientific | 23227 | Utilizado para quantificação de proteína (Etapa 3.7). |
| Comprimidos Pierce de inibidor de protease | Thermo Fisher Scientific | A32953 | Utilizados para preparar o tampão de lise na Etapa 3.2. |
| Polietilenimina HCl MAX, Linear (PEI MAX), MM 40.000 | Polysciences | 24765-1 | Utilizada para transfeção com plasmídeos lentivirais (Etapa 1.1). |
| Cloreto de potássio (KCl) | Sigma-Aldrich (Merck) | P9333 | Utilizado para preparar PBS na Etapa 3.1. |
| Fosfato monobásico de potássio (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | Utilizado para preparar PBS na Etapa 3.1. |
| Fonte de alimentação PowerPac Basic | Bio-Rad | 1645050 | Utilizada para SDS-PAGE e transferência nas Etapas 4.2, 4.3 e 4.5. |
| Escada de proteína pré-marcada | Genbiotech | PM201 | Utilizada para SDS-PAGE nas Etapas 4.2 - 4.4. |
| Puromicina (solução 10 mg/mL) | InvivoGen | ant-pr-1 | Utilizada para seleção de células transduzidas de forma estável (Etapa 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Utilizado para preparar o meio completo para cultivo celular (Etapas 1 e 2). |
| Cloreto de sódio (NaCl) | Sigma-Aldrich (Merck) | S9888 | Utilizado para preparar PBS na Etapa 3.1, tampões de lise na Etapa 3.2 e TBS na Etapa 4.9. |
| Dodecilsulfato de sódio (SDS) | Sigma-Aldrich (Merck) | L3771 | Utilizado para preparar o tampão de lise na Etapa 3.2 e o gel de SDS-PAGE 15% necessário para as Etapas 4.2–4.5. |
| Fluoreto de sódio (NaF) | Sigma-Aldrich (Merck) | S7920 | Utilizado para preparar o tampão de lise com baixo detergente (Figuras 2G e 2H). |
| Fosfato dibásico de sódio (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Utilizado para preparar PBS na Etapa 3.1. |
| Centrífuga Sorval ST 16R | Thermo Fisher Scientific | 75004380 | Utilizada para centrifugar células na Etapa 1.1 e lisados na Etapa 3.5. |
| Substrato quimioluminescente SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | Utilizado para detecção quimioluminescente na Etapa 5.1. |
| Câmara de segurança biológica Thermo Scientific 1300 Series A2, Tipo A2 | Thermo Fisher Scientific | 1386 | Utilizada para manipulação estéril de culturas celulares nas Etapas 1.1, 1.3 e 2.1. |
| Incubadora Thermo Scientific BB 150 CO2 | Thermo Fisher Scientific | BB150-2TCS-L | Utilizada para cultivo celular nas Etapas 1.2 e 2.2. |
| Anticorpo monoclonal de coelho TMEM49/VMP1 (D1Y3E) | Cell Signaling Technology | 12929 | RRID: AB_2714018 Reatividade: humano, camundongo, rato. Utilizado como anticorpo primário para verificar a eficiência de silenciamento de VMP1 nas Figuras 2C e 2D. |
| Tris base | Sigma-Aldrich (Merck) | T1503 | Utilizado para preparar o tampão de transferência para a Etapa 4.5. |
| Cloridrato de Tris (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Utilizado para preparar tampões de lise na Etapa 3.2, tampão amostral Laemmli 4× na Etapa 3.8, gel de SDS-PAGE 15% necessário para as Etapas 4.2–4.5 e TBS na Etapa 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Utilizado para preparar tampões de lise na Etapa 3.2. |
| Tripsina EDTA | Gibco | 11570626 | Utilizada para passagem celular na Etapa 1.1. |
Referências
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve